
Schwarmverhalten , auch Schwärmen genannt , ist ein kollektives Verhalten von Lebewesen, insbesondere von Tieren ähnlicher Größe, die sich zusammenschließen, beispielsweise um denselben Ort herumlungern, sich massenhaft bewegen oder in eine bestimmte Richtung wandern . Es handelt sich um ein stark interdisziplinäres Thema. [ 1 ]
Der Begriff „ Schwärmen“ wird insbesondere auf Insekten angewendet, kann aber auch auf andere Lebewesen oder Tiere mit Schwarmverhalten verwendet werden. Die Begriffe „Flocking “ oder „Murmuration“ bezeichnen speziell das Schwarmverhalten von Vögeln, „Herding“ das von Vierfüßern und „Haling“ oder „Schooling“ das von Fischen. Auch Phytoplankton bildet riesige Schwärme, sogenannte Algenblüten , obwohl diese Organismen Algen sind und sich nicht wie die meisten Tiere selbst fortbewegen. Im übertragenen Sinne wird der Begriff „Schwarm“ auch auf unbelebte Objekte angewendet, die ähnliche Verhaltensweisen zeigen, wie beispielsweise einen Roboterschwarm , einen Erdbebenschwarm oder einen Sternenschwarm . [ 2 ] [ 3 ]
Aus einer abstrakteren Perspektive betrachtet, ist Schwarmverhalten die kollektive Bewegung einer großen Anzahl selbstangetriebener Einheiten . [ 4 ] Aus der Sicht des mathematischen Modellierers handelt es sich um ein emergentes Verhalten, das aus einfachen, von den Individuen befolgten Regeln entsteht und keine zentrale Koordination erfordert. Auch in der Physik aktiver Materie wird Schwarmverhalten als ein Phänomen untersucht, das sich nicht im thermodynamischen Gleichgewicht befindet und daher die Entwicklung von Werkzeugen erfordert, die über die Möglichkeiten der statistischen Physik thermodynamischer Systeme hinausgehen. In diesem Zusammenhang wurde das Schwarmverhalten mit der Mathematik von Supraflüssigkeiten verglichen , insbesondere im Kontext von Starenschwärmen (Murmuration). [ 5 ]
Schwarmverhalten wurde erstmals 1986 mit dem Simulationsprogramm Boids am Computer simuliert . [ 6 ] Dieses Programm simuliert einfache Agenten (Boids), die sich nach festgelegten Grundregeln bewegen können. Das Modell wurde ursprünglich entwickelt, um das Schwarmverhalten von Vögeln nachzubilden, lässt sich aber auch auf Fischschwärme und andere schwärmende Organismen anwenden.
Modelle
In den letzten Jahrzehnten haben sich Wissenschaftler der Modellierung des Schwarmverhaltens zugewandt, um ein tieferes Verständnis dieses Verhaltens zu erlangen.
Mathematische Modelle

Frühe Studien zum Schwarmverhalten nutzten mathematische Modelle, um das Verhalten zu simulieren und zu verstehen. Die einfachsten mathematischen Modelle von Tierschwärmen stellen einzelne Tiere im Allgemeinen gemäß drei Regeln dar:
- Bewegen Sie sich in die gleiche Richtung wie Ihre Nachbarn.
- Sie bleiben in engem Kontakt mit ihren Nachbarn.
- Kollisionen mit Nachbarn vermeiden.
Das 1986 von Craig Reynolds entwickelte Computerprogramm Boids simuliert Schwarmverhalten nach den oben genannten Regeln. [ 6 ] Viele nachfolgende und aktuelle Modelle verwenden Variationen dieser Regeln und implementieren sie häufig mithilfe konzentrischer „Zonen“ um jedes Tier. In der „Abstoßungszone“, die sich in unmittelbarer Nähe des Tieres befindet, versucht dieses, Abstand zu seinen Nachbarn zu gewinnen, um Kollisionen zu vermeiden. Etwas weiter entfernt, in der „Ausrichtungszone“, versucht das Tier, seine Bewegungsrichtung an die seiner Nachbarn anzupassen. In der äußersten „Anziehungszone“, die sich so weit vom Tier entfernt erstreckt, wie es wahrnehmen kann, versucht das Tier, sich einem Nachbarn anzunähern.
Die Form dieser Zonen wird zwangsläufig von den Sinnesfähigkeiten des jeweiligen Tieres beeinflusst. So erstreckt sich das Sichtfeld eines Vogels beispielsweise nicht hinter seinen Körper. Fische verlassen sich sowohl auf ihr Sehvermögen als auch auf hydrodynamische Wahrnehmungen, die über ihre Seitenlinienorgane weitergeleitet werden , während antarktischer Krill sowohl auf Sehvermögen als auch auf hydrodynamische Signale angewiesen ist, die über Antennen übertragen werden .
Neuere Untersuchungen von Starenschwärmen haben jedoch gezeigt, dass jeder Vogel seine Position relativ zu den sechs oder sieben ihn direkt umgebenden Tieren verändert, unabhängig von deren Entfernung. [ 7 ] Die Interaktionen zwischen Starenschwärmen basieren demnach auf einer topologischen , nicht auf einer metrischen Regel. Ob dies auch für andere Tiere gilt, bleibt abzuwarten. Eine weitere aktuelle Studie, die auf der Analyse von Hochgeschwindigkeitsaufnahmen von Starenschwärmen über Rom basiert und minimale Verhaltensregeln annimmt, hat überzeugend verschiedene Aspekte des Schwarmverhaltens simuliert. [ 8 ] [ 9 ] [ 10 ] [ 11 ]
Evolutionsmodelle
Um zu verstehen, warum Tiere Schwarmverhalten entwickeln, haben Wissenschaftler evolutionäre Modelle herangezogen, die Populationen sich entwickelnder Tiere simulieren. Typischerweise verwenden diese Studien einen genetischen Algorithmus, um die Evolution über viele Generationen zu simulieren . Dabei wurden verschiedene Hypothesen untersucht, die die Entstehung von Schwarmverhalten bei Tieren erklären sollen, darunter die Theorie der egoistischen Herde [ 12 ] [ 13 ] [ 14 ] [ 15 ] [ 16 ], der Raubtier-Verwirrungseffekt [ 17 ] [ 18 ] , der Verdünnungseffekt [ 19 ] [ 20 ] , die Theorie der vielen Augen [ 21 ] und die Theorie des Überlebensdrucks zwischen Raubtier und Beute [ 22 ] .
Agenten
- Mach, Robert; Schweitzer, Frank (2003). „Multiagentenmodell des biologischen Schwarmverhaltens“. Advances in Artificial Life . Lecture Notes in Computer Science . Band 2801. S. 810–820 . CiteSeerX 10.1.1.87.8022 . doi : 10.1007/978-3-540-39432-7_87 . ISBN 978-3-540-20057-4Die
Selbstorganisation

Entstehung
Das Konzept der Emergenz – dass Eigenschaften und Funktionen einer hierarchischen Ebene auf niedrigeren Ebenen nicht vorhanden und irrelevant sind – ist oft ein Grundprinzip selbstorganisierender Systeme . [ 23 ] Ein Beispiel für Selbstorganisation in der Biologie, die zur Emergenz in der Natur führt, sind Ameisenkolonien. Die Königin gibt keine direkten Befehle und weist die Ameisen nicht an, was sie zu tun haben. Stattdessen reagiert jede Ameise auf Reize in Form von Duftstoffen von Larven, anderen Ameisen, Eindringlingen, Nahrung und Abfallansammlungen und hinterlässt eine Duftspur, die wiederum andere Ameisen stimuliert. Jede Ameise ist hier eine autonome Einheit, die ausschließlich in Abhängigkeit von ihrer lokalen Umgebung und den genetisch kodierten Regeln ihrer Art reagiert. Trotz fehlender zentraler Entscheidungsfindung zeigen Ameisenkolonien komplexe Verhaltensweisen und haben sogar die Fähigkeit bewiesen, geometrische Probleme zu lösen. Beispielsweise finden Kolonien routinemäßig den maximalen Abstand von allen Kolonieeingängen, um tote Ameisen zu entsorgen.
Stigmergie
Ein weiteres Schlüsselkonzept im Bereich der Schwarmintelligenz ist die Stigmergie . [ 24 ] [ 25 ] Stigmergie ist ein Mechanismus der indirekten Koordination zwischen Agenten oder Aktionen. Das Prinzip besteht darin, dass die von einer Aktion in der Umgebung hinterlassene Spur die Ausführung einer nachfolgenden Aktion durch denselben oder einen anderen Agenten anregt. Auf diese Weise verstärken und erweitern sich aufeinanderfolgende Aktionen gegenseitig, was zum spontanen Entstehen kohärenter, scheinbar systematischer Aktivitäten führt. Stigmergie ist eine Form der Selbstorganisation. Sie erzeugt komplexe, scheinbar intelligente Strukturen, ohne dass Planung, Kontrolle oder gar direkte Kommunikation zwischen den Agenten erforderlich ist. Somit ermöglicht sie eine effiziente Zusammenarbeit zwischen extrem einfachen Agenten, denen jegliches Gedächtnis, Intelligenz oder gar Bewusstsein füreinander fehlt. [ 25 ]
Schwarmintelligenz
Schwarmintelligenz ist das kollektive Verhalten dezentraler , selbstorganisierter Systeme, ob natürlich oder künstlich. Das Konzept findet Anwendung in der Forschung zur künstlichen Intelligenz . Der Begriff wurde 1989 von Gerardo Beni und Jing Wang im Kontext zellulärer Robotersysteme eingeführt . [ 26 ]
Schwarmintelligenzsysteme bestehen typischerweise aus einer Population einfacher Agenten, wie z. B. Boids, die lokal miteinander und mit ihrer Umgebung interagieren. Die Agenten folgen sehr einfachen Regeln, und obwohl es keine zentrale Kontrollstruktur gibt, die das Verhalten einzelner Agenten vorschreibt, führen lokale und bis zu einem gewissen Grad zufällige Interaktionen zwischen diesen Agenten zur Entstehung intelligenten globalen Verhaltens, das den einzelnen Agenten unbekannt ist.
Die Schwarmintelligenzforschung ist multidisziplinär. Sie lässt sich in die Forschung zu natürlichen Schwärmen, die biologische Systeme untersucht, und die Forschung zu künstlichen Schwärmen, die von Menschen erzeugte Artefakte analysiert, unterteilen. Daneben existiert ein wissenschaftlicher Zweig, der versucht, die Schwarmsysteme selbst zu modellieren und ihre zugrunde liegenden Mechanismen zu verstehen, sowie ein ingenieurwissenschaftlicher Zweig, der sich darauf konzentriert, die von der wissenschaftlichen Forschung gewonnenen Erkenntnisse zur Lösung praktischer Probleme in anderen Bereichen anzuwenden. [ 27 ]
Algorithmen
Schwarmalgorithmen basieren entweder auf dem Lagrange- oder dem Euler- Ansatz. [ 28 ] Der Euler-Ansatz betrachtet den Schwarm als Feld , arbeitet mit der Dichte des Schwarms und leitet daraus mittlere Feldeigenschaften ab. Es handelt sich um einen hydrodynamischen Ansatz, der sich zur Modellierung der Gesamtdynamik großer Schwärme eignet. [ 29 ] [ 30 ] [ 31 ] Die meisten Modelle verwenden jedoch den Lagrange-Ansatz, ein agentenbasiertes Modell , das die einzelnen Agenten (Punkte oder Partikel) des Schwarms verfolgt. Einzelne Partikelmodelle können Informationen über Richtung und Abstand erfassen, die im Euler-Ansatz verloren gehen. [ 28 ] [ 32 ]
Ameisenkolonieoptimierung
| Externes Bild | |
|---|---|
 Swarmanoid-Roboter finden den kürzesten Weg über eine Doppelbrücke [ 33 ]. |
Die Ameisenkolonieoptimierung ist ein weit verbreiteter Algorithmus, der vom Verhalten von Ameisen inspiriert wurde und sich bei der Lösung diskreter Optimierungsprobleme im Zusammenhang mit Schwarmverhalten bewährt hat. [ 34 ] Der Algorithmus wurde ursprünglich 1992 von Marco Dorigo vorgeschlagen [ 35 ] [ 36 ] und seither weiterentwickelt, um eine breitere Klasse numerischer Probleme zu lösen. Bei Arten mit mehreren Königinnen kann es vorkommen, dass eine Königin zusammen mit einigen Arbeiterinnen das Nest verlässt, um an einem neuen Standort eine Kolonie zu gründen – ein Vorgang, der dem Schwärmen bei Honigbienen ähnelt . [ 37 ] [ 38 ]
- Ameisen sind verhaltensmäßig einfach, aber gemeinsam vollbringen sie komplexe Aufgaben. Sie verfügen über eine hochentwickelte, zeichenbasierte Kommunikation.
- Ameisen kommunizieren mithilfe von Pheromonen; sie legen Duftspuren, denen andere Ameisen folgen können.
- Bei einem Routing-Problem setzen Ameisen verschiedene Pheromone frei, die zur Berechnung des "kürzesten" Weges von der Quelle zum/zu den Ziel(en) verwendet werden.
- Rauch, EM; Millonas, MM; Chialvo, DR (1995). „Musterbildung und Funktionalität in Schwarmmodellen“. Physics Letters A. 207 ( 3–4 ) : 185. arXiv : adap-org/9507003 . Bibcode : 1995PhLA..207..185R . doi : 10.1016/0375-9601(95)00624-c . S2CID 120567147 .
Selbstangetriebene Partikel
| Externe Videos | |
|---|---|
 Interaktive Simulation des SPP-Modells [ 39 ] – benötigt Java |
Das Konzept der selbstangetriebenen Partikel (SPP) wurde 1995 von Tamás Vicsek et al. [ 40 ] als Spezialfall des 1986 von Reynolds eingeführten Boids-Modells [ 6 ] vorgestellt. Ein SPP-Schwarm wird durch eine Ansammlung von Partikeln modelliert, die sich mit konstanter Geschwindigkeit bewegen und auf zufällige Störungen reagieren, indem sie in jedem Zeitschritt die mittlere Bewegungsrichtung der anderen Partikel in ihrer lokalen Umgebung übernehmen. [ 41 ]
Simulationen zeigen, dass eine geeignete „Nächste-Nachbarn-Regel“ letztendlich dazu führt, dass sich alle Partikel zusammenschließen oder in dieselbe Richtung bewegen. Dies geschieht, obwohl keine zentrale Koordination stattfindet und sich die Nachbarn jedes Partikels ständig ändern. [ 40 ] SPP-Modelle sagen voraus, dass schwärmende Tiere auf Gruppenebene bestimmte Eigenschaften teilen, unabhängig von der Tierart im Schwarm. [ 42 ] Schwarmsysteme führen zu emergenten Verhaltensweisen , die auf vielen verschiedenen Skalen auftreten, von denen einige sowohl universell als auch robust sind. Es ist zu einer Herausforderung in der theoretischen Physik geworden, minimale statistische Modelle zu finden, die diese Verhaltensweisen erfassen. [ 43 ] [ 44 ]
Partikelschwarmoptimierung
Die Partikelschwarmoptimierung ist ein weiterer, weit verbreiteter Algorithmus zur Lösung von Problemen im Zusammenhang mit Schwärmen. Sie wurde 1995 von Kennedy und Eberhart entwickelt und zielte ursprünglich darauf ab, das Sozialverhalten und die Choreografie von Vogelschwärmen und Fischschulen zu simulieren . [ 45 ] [ 46 ] Der Algorithmus wurde vereinfacht und es zeigte sich, dass er Optimierungsprozesse durchführt. Das System initialisiert eine Population mit zufälligen Lösungen. Anschließend durchsucht es den Problemraum in aufeinanderfolgenden Generationen mithilfe stochastischer Optimierung, um die besten Lösungen zu finden. Die gefundenen Lösungen werden als Partikel bezeichnet . Jedes Partikel speichert seine Position sowie die bisher beste erreichte Lösung. Der Partikelschwarmoptimierer verfolgt den bisher besten lokalen Wert, der von einem Partikel in seiner lokalen Umgebung erzielt wurde. Die übrigen Partikel bewegen sich dann, den optimalen Partikeln folgend, durch den Problemraum. In jeder Iteration beschleunigt der Partikelschwarmoptimierer jedes Partikel gemäß einfacher mathematischer Regeln in Richtung seiner optimalen Position . In einem verwandten Ansatz haben Shvalb et al. (2024) wurde ein auf statistischer Physik basierendes Rahmenwerk zur Steuerung großskaliger Multi-Robotersysteme vorgestellt. Durch die Modellierung von Robotern als Partikel innerhalb eines statistischen Ensembles nutzt die Studie makroskopische Parameter – wie Dichte und Strömungsfelder –, um das kollektive Verhalten zu steuern, ohne dass eine individuelle Identifizierung oder direkte Kommunikation zwischen den Agenten erforderlich ist. Diese Methode ermöglicht eine skalierbare und robuste Steuerung von Roboterschwärmen und zieht konzeptionelle Parallelen zur Partikelschwarmoptimierung, indem sie globale Informationen nutzt, um die lokale Agentendynamik zu beeinflussen. [ 47 ] Die Partikelschwarmoptimierung wurde in vielen Bereichen angewendet. Sie hat wenige anzupassende Parameter, und eine Version, die für eine spezifische Anwendung gut funktioniert, kann mit geringfügigen Modifikationen auch in einer Reihe verwandter Anwendungen gut funktionieren. [ 48 ] Ein Buch von Kennedy und Eberhart beschreibt einige philosophische Aspekte von Anwendungen der Partikelschwarmoptimierung und der Schwarmintelligenz. [ 49 ] Eine umfassende Übersicht über Anwendungen findet sich bei Poli. [ 50 ] [ 51 ]
Altruismus
Forscher in der Schweiz haben einen Algorithmus entwickelt, der auf Hamiltons Regel der Verwandtenselektion basiert. Der Algorithmus zeigt, wie sich Altruismus in einem Schwarm von Einheiten im Laufe der Zeit entwickeln und zu einem effektiveren Schwarmverhalten führen kann. [ 52 ] [ 53 ]
Biologisches Schwärmen
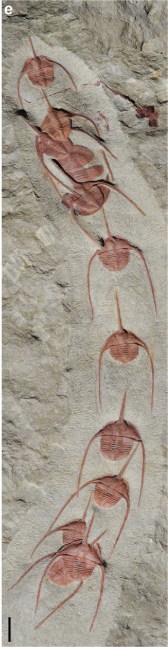
Die frühesten Belege für Schwarmverhalten bei Tieren datieren auf etwa 480 Millionen Jahre zurück. Fossilien des Trilobiten Ampyx priscus wurden kürzlich beschrieben; sie waren in Reihen am Meeresboden angesiedelt. Die Tiere waren ausgewachsen und blickten alle in dieselbe Richtung, als hätten sie eine Polonaise oder ein Peloton gebildet . Es wird vermutet, dass sie sich in dieser Formation zur Wanderung aufstellen, ähnlich wie Langusten in langen Schlangen wandern; [ 54 ] es wird auch angenommen, dass diese Formation die Vorstufe zur Paarung darstellt, [ 55 ] wie bei der Fliege Leptoconops torrents . Die Funde deuten darauf hin, dass kollektives Verhalten bei Tieren sehr frühe evolutionäre Ursprünge hat. [ 56 ]
Beispiele für biologisches Schwarmverhalten finden sich bei Vogelschwärmen [ 57 ] , Fischschwärmen [ 58 ] [ 59 ] , Insektenschwärmen [ 60 ] , Bakterienschwärmen [ 61 ] [ 62 ] , Schimmelpilzen [ 63 ] , molekularen Motoren [ 64 ] , Vierbeinerherden [ 65 ] und Menschen [ 66 ] [ 67 ] [ 68 ] [ 69 ] .
Soziale Insekten
Das Verhalten sozialer Insekten (Insekten, die in Kolonien leben , wie Ameisen, Bienen, Wespen und Termiten) fasziniert seit jeher Kinder, Naturforscher und Künstler. Einzelne Insekten scheinen ohne zentrale Steuerung ihren eigenen Interessen nachzugehen, doch die Kolonie als Ganzes agiert hochgradig koordiniert. [ 70 ] Forscher haben herausgefunden, dass die Kooperation auf Kolonieebene weitgehend selbstorganisiert ist . Die entstehende Gruppenkoordination ist oft einfach eine Folge der Interaktionen der einzelnen Individuen. Diese Interaktionen können bemerkenswert einfach sein, beispielsweise wenn eine Ameise der Spur einer anderen folgt. Zusammengenommen kann die kumulative Wirkung solcher Verhaltensweisen jedoch hochkomplexe Probleme lösen, wie etwa die Suche nach dem kürzesten Weg zu einer Nahrungsquelle in einem Netzwerk möglicher Pfade. Dieses organisierte Verhalten wird mitunter als Schwarmintelligenz bezeichnet , eine Form der biologischen Emergenz . [ 70 ]
Ameisen
Einzelne Ameisen zeigen kein komplexes Verhalten, doch eine Ameisenkolonie vollbringt gemeinsam komplexe Aufgaben wie den Nestbau, die Brutpflege, den Brückenbau und die Nahrungssuche . Eine Ameisenkolonie kann gemeinsam die beste oder nächstgelegene Nahrungsquelle aus mehreren in der Umgebung auswählen (d. h. die meisten Arbeiterinnen dorthin schicken). [ 71 ] Solche kollektiven Entscheidungen werden durch positive Rückkopplungsmechanismen getroffen. Die Auswahl der besten Nahrungsquelle erfolgt nach zwei einfachen Regeln: Erstens kehren Ameisen, die Nahrung gefunden haben, zum Nest zurück und hinterlassen dabei ein Pheromon . Je hochwertiger die Nahrungsquelle, desto mehr Pheromon wird abgelegt. [ 72 ] Werden also zwei gleich weit entfernte Nahrungsquellen unterschiedlicher Qualität gleichzeitig gefunden, ist die Pheromonspur zur besseren Quelle stärker. Die Ameisen im Nest folgen einer weiteren einfachen Regel: Sie bevorzugen im Durchschnitt stärkere Spuren. Dadurch folgen mehr Ameisen der stärkeren Spur, sodass mehr Ameisen die hochwertige Nahrungsquelle erreichen. Ein positiver Rückkopplungszyklus sorgt für die kollektive Entscheidung für die beste Nahrungsquelle. Wenn zwei Wege vom Ameisennest zu einer Futterquelle führen, wählt die Kolonie in der Regel den kürzeren. Dies liegt daran, dass die Ameisen, die als erste von der Futterquelle zum Nest zurückkehren, mit größerer Wahrscheinlichkeit diejenigen sind, die den kürzeren Weg genommen haben. Weitere Ameisen folgen dann dem kürzeren Weg und verstärken so die Pheromonspur. [ 73 ]
Wanderameisen bauen , anders als die meisten Ameisenarten, keine permanenten Nester; eine Wanderameisenkolonie ist während ihres gesamten Bestehens fast ununterbrochen in Bewegung und befindet sich im Wesentlichen in einem permanenten Zustand des Schwärmens. Mehrere Linien haben unabhängig voneinander dasselbe grundlegende Verhaltens- und Ökologiemuster entwickelt, das oft als „Legionärsverhalten“ bezeichnet wird und ein Beispiel für konvergente Evolution sein könnte . [ 74 ]
Die von Ameisenkolonien angewandten erfolgreichen Strategien wurden in der Informatik und Robotik untersucht, um verteilte und fehlertolerante Systeme zur Problemlösung zu entwickeln . Dieses Gebiet der Biomimetik hat zu Studien über die Fortbewegung von Ameisen, Suchmaschinen, die „Futterspuren“ nutzen, sowie fehlertoleranten Speicher- und Netzwerkalgorithmen geführt . [ 75 ]
Honigbienen

In temperate climates, honey bees usually form swarms in late spring. A swarm typically contains about half the workers together with the old queen, while the new queen stays back with the remaining workers in the original hive. When honey bees emerge from a hive to form a swarm, they may gather on a branch of a tree or on a bush only a few meters from the hive. The bees cluster about the queen and send out 20–50 scouts to find suitable new nest locations. The scouts are the most experienced foragers in the cluster. If a scout finds a suitable location, she returns to the cluster and promotes it by dancing a version of the waggle dance. This dance conveys information about the quality, direction, and distance of the new site. The more excited she is about her findings, the more vigorously she dances. If she can convince others they may take off and check the site she found. If they approve they may promote it as well. In this decision-making process, scouts check several sites, often abandoning their own original site to promote the superior site of another scout. Several different sites may be promoted by different scouts at first. After some hours and sometimes days, a preferred location eventually emerges from this decision-making process. When all scouts agree on the final location, the whole cluster takes off and swarms to it. Sometimes, if no decision is reached, the swarm will separate, some bees going in one direction; others, going in another. This usually results in failure, with both groups dying. A new location is typically a kilometre or more from the original hive, though some species, e.g., Apis dorsata,[76] may establish new colonies within as little as 500 meters from the natal nest. This collective decision-making process is remarkably successful in identifying the most suitable new nest site and keeping the swarm intact. A good hive site has to be large enough to accommodate the swarm (about 15 litres in volume), has to be well-protected from the elements, receive an optimal amount of sunshine, be some height above the ground, have a small entrance and be capable of resisting ant infestation - that is why tree cavities are often selected.[77][78][79][80][81]
Non-social insects
Unlike social insects, swarms of non-social insects that have been studied primarily seem to function in contexts such as mating, feeding, predator avoidance, and migration.
Moths
Motten können synchronisierte Paarungen zeigen, bei denen von den Weibchen freigesetzte Pheromone das Such- und Schwärmverhalten der Männchen auslösen. [ 82 ] Männchen nehmen Pheromone mit empfindlichen Antennen wahr und können Weibchen über mehrere Kilometer verfolgen. [ 83 ] Die Schwarmpaarung beinhaltet die Partnerwahl der Weibchen und die Konkurrenz der Männchen. Nur ein Männchen im Schwarm – typischerweise das erste – wird sich erfolgreich paaren. [ 84 ] Weibchen maximieren ihren Nutzen und minimieren die Kosten, indem sie den Beginn und die Menge der freigesetzten Pheromone steuern. Zu wenig Pheromon lockt kein Weibchen an, zu viel ermöglicht es weniger fitten Männchen, das Signal wahrzunehmen. [ 85 ] Nach der Paarung legen die Weibchen die Eier auf einer Wirtspflanze ab. Die Qualität der Wirtspflanze kann ein Faktor sein, der den Ort des Schwärmens und der Eiablage beeinflusst. In einem Fall beobachteten Forscher, wie rosagestreifte Eichenwickler ( Anisota virginiensis ) an einer Aasstelle in Schwärmen auftraten , wo die Zersetzung wahrscheinlich den Nährstoffgehalt des Bodens und die Qualität der Wirtspflanze erhöhte. [ 86 ]
Fliegen
Mückenarten wie die Tokunagayusurika akamusi bilden Schwärme und tanzen in der Luft. Dieses Schwärmen dient mehreren Zwecken, unter anderem der Paarung, indem es Weibchen anlockt – ein Phänomen, das als Lek-Paarung bekannt ist . Solche wolkenartigen Schwärme bilden sich oft am frühen Abend, wenn die Sonne tief steht, an Buschspitzen, auf Hügelkuppen, über Wasserbecken oder sogar manchmal über Menschen. Die Bildung dieser Schwärme ist kein instinktives Verhalten, sondern eine Anpassung – ein „Konsens“ – zwischen den Individuen im Schwarm. Es wird auch vermutet, dass das Schwärmen ein Ritual ist , da männliche Mücken selten allein und nicht in einem Schwarm anzutreffen sind. Dies könnte sich aufgrund des Vorteils der Verringerung von Inzucht entwickelt haben, indem Männchen mit unterschiedlichen Genen an einem Ort zusammenkommen. [ 87 ] Die Gattung Culicoides , auch bekannt als Stechmücken, zeigt ein Schwarmverhalten, das vermutlich bei Fressfeinden Verwirrung stiftet. [ 88 ]
Kakerlaken
Kakerlaken hinterlassen chemische Spuren in ihrem Kot und geben zudem Pheromone zur Paarung ab. Andere Kakerlaken folgen diesen Spuren, um Nahrungs- und Wasserquellen sowie die Verstecke anderer Kakerlaken zu finden. So können Kakerlakengruppen ein sogenanntes „Emerging Behavior“ zeigen [ 89 ] , bei dem sich Gruppen- oder Schwarmverhalten aus einer einfachen Reihe individueller Interaktionen entwickelt.
Kakerlaken sind hauptsächlich nachtaktiv und fliehen bei Lichteinfall. Eine Studie untersuchte die Hypothese, dass Kakerlaken unter diesen Bedingungen lediglich zwei Informationen nutzen, um ihren Aufenthaltsort zu bestimmen: die Dunkelheit und die Anzahl anderer Kakerlaken. Die Studie von José Halloy und Kollegen der Freien Universität Brüssel und anderer europäischer Institutionen entwickelte winzige Roboter , die den Kakerlaken wie Artgenossen erscheinen und so deren Wahrnehmung einer kritischen Masse beeinflussen können . Die Roboter wurden zudem mit einem speziellen Duftstoff versehen, um von den echten Kakerlaken akzeptiert zu werden. [ 90 ]
Heuschrecken

Heuschrecken sind das Schwarmstadium der Kurzfühlerschrecken ( Acrididae ) . Einige Arten vermehren sich unter geeigneten Bedingungen rasant und werden anschließend zu Schwarmheuschrecken mit Wandercharakter. Als Larven bilden sie Gruppen , als ausgewachsene Tiere Schwärme – beide können weite Strecken zurücklegen, Felder schnell kahlfressen und Ernten erheblich schädigen . Die größten Schwärme können Hunderte von Quadratkilometern bedecken und Milliarden von Heuschrecken umfassen. Eine Heuschrecke kann täglich ihr eigenes Körpergewicht (etwa 2 Gramm) an Pflanzen fressen. Das bedeutet, dass eine Million Heuschrecken täglich mehr als eine Tonne Nahrung verzehren können und die größten Schwärme sogar über 100.000 Tonnen täglich. [ 91 ]
Das Schwärmverhalten von Heuschrecken steht in Zusammenhang mit einem erhöhten Serotoninspiegel. Dies führt dazu, dass die Heuschrecken ihre Farbe ändern, deutlich mehr fressen, sich gegenseitig anziehen und sich viel leichter fortpflanzen. Forscher vermuten, dass das Schwärmverhalten eine Reaktion auf Überbevölkerung ist. Studien haben gezeigt, dass eine verstärkte taktile Stimulation der Hinterbeine oder, bei manchen Arten, allein die Begegnung mit anderen Individuen einen Anstieg des Serotoninspiegels bewirkt. Die Umwandlung der Heuschrecke in die schwärmende Variante kann durch mehrere Kontakte pro Minute über einen Zeitraum von vier Stunden ausgelöst werden. [ 92 ] [ 93 ] [ 94 ] [ 95 ] Bemerkenswerterweise wurde bei den Larven der Wüstenheuschrecke (Schistocerca gregaria) eine angeborene Neigung zur Aggregation festgestellt , unabhängig von ihrem Entwicklungsstadium. [ 96 ]
Die Reaktion einer einzelnen Heuschrecke auf einen Verlust der Ausrichtung innerhalb der Gruppe scheint darin zu bestehen, die Zufälligkeit ihrer Bewegung zu erhöhen, bis wieder ein ausgerichteter Zustand erreicht ist. Diese durch Rauschen hervorgerufene Ausrichtung scheint eine intrinsische Eigenschaft kollektiver, kohärenter Bewegung zu sein. [ 97 ]
Wanderverhalten

Die Insektenwanderung ist die saisonale Wanderung von Insekten , insbesondere von Libellen , Käfern , Schmetterlingen und Motten . Die zurückgelegte Strecke variiert je nach Art, doch in den meisten Fällen sind große Individuengruppen beteiligt. Manchmal kehren die in eine Richtung wandernden Tiere nicht zurück, und die nächste Generation wandert stattdessen in die entgegengesetzte Richtung. Dies unterscheidet sich wesentlich von der Vogelwanderung .
Monarchfalter sind besonders für ihre lange jährliche Wanderung bekannt. In Nordamerika unternehmen sie ab August bis zum ersten Frost ausgedehnte Wanderungen nach Süden. Im Frühjahr wandern sie wieder nach Norden. Der Monarchfalter ist der einzige Schmetterling, der wie Vögel regelmäßig sowohl nach Norden als auch nach Süden wandert. Allerdings legt kein einzelnes Individuum die gesamte Strecke zurück. Während dieser Wanderungen legen die Weibchen Eier für die nächste Generation ab. [ 98 ] Die Dauer dieser Reisen übersteigt die normale Lebensspanne der meisten Monarchfalter, die für im Frühsommer geborene Falter weniger als zwei Monate beträgt. Die letzte Generation des Sommers tritt in eine nicht-reproduktive Phase ein, die Diapause genannt wird , und kann sieben Monate oder länger leben. [ 99 ] Während der Diapause fliegen die Falter zu einem von vielen Überwinterungsgebieten. Die überwinternde Generation pflanzt sich in der Regel erst fort, nachdem sie das Überwinterungsgebiet im Februar oder März verlassen hat. Die zweite, dritte und vierte Generation kehren im Frühjahr in ihre nördlichen Verbreitungsgebiete in den Vereinigten Staaten und Kanada zurück. Wie es der Art gelingt, über mehrere Generationen hinweg zu denselben Überwinterungsplätzen zurückzukehren, ist noch immer Gegenstand der Forschung; die Flugmuster scheinen vererbt zu sein und basieren auf einer Kombination aus dem Sonnenstand [ 100 ] und einem zeitkompensierten Sonnenkompass, der von einer in den Antennen befindlichen circadianen Uhr abhängt. [ 101 ] [ 102 ]
Vögel
 Starenschwärme
Vogelzug

Etwa 1800 der weltweit 10.000 Vogelarten sind Langstreckenzieher. [ 104 ] Hauptmotiv für den Vogelzug scheint die Nahrungssuche zu sein; so verzichten beispielsweise manche Kolibris auf den Zug, wenn sie über den Winter ausreichend Nahrung erhalten. Zudem bieten die längeren Tage des Sommers auf der Nordhalbkugel brütenden Vögeln mehr Zeit, ihre Jungen zu füttern. Dies ermöglicht tagaktiven Vögeln größere Gelege als verwandten, nicht wandernden Arten, die in den Tropen bleiben. Mit den kürzer werdenden Tagen im Herbst kehren die Vögel in wärmere Regionen zurück, wo das Nahrungsangebot nur geringfügigen Schwankungen unterliegt. Diese Vorteile gleichen den hohen Stress, die körperliche Anstrengung und andere Risiken des Vogelzugs, wie beispielsweise die Gefahr durch Raubtiere, aus.
Viele Vögel ziehen in Schwärmen. Bei größeren Vögeln wird angenommen, dass das Fliegen im Schwarm den Energieaufwand reduziert. Die V-Formation soll die Effizienz und Reichweite fliegender Vögel, insbesondere auf langen Zugrouten, erhöhen . Alle Vögel außer dem ersten fliegen im Aufwind eines Flügelspitzenwirbels des vorausfliegenden Vogels. Dieser Aufwind hilft jedem Vogel, sein eigenes Gewicht im Flug zu tragen, ähnlich wie ein Segelflugzeug in aufsteigender Luft steigen oder seine Höhe unbegrenzt halten kann. Gänse, die in V-Formation fliegen , sparen Energie, indem sie im Aufwind des Flügelspitzenwirbels des vorhergehenden Vogels fliegen. Dadurch müssen die nachfolgenden Vögel weniger Energie aufwenden, um Auftrieb zu erzeugen. Studien zeigen, dass Vögel in V-Formation sich in etwa im optimalen Abstand zueinander positionieren, der von der einfachen aerodynamischen Theorie vorhergesagt wird. [ 105 ] Gänse in V-Formation können 12–20 % der Energie einsparen, die sie im Einzelflug benötigen würden. [ 106 ] [ 107 ] Radaruntersuchungen ergaben, dass Knutt und Alpenstrandläufer in Schwärmen 5 km/h schneller fliegen als im Einzelflug. [ 108 ] Die Vögel an den äußeren und vorderen Enden des Schwarms wechseln sich regelmäßig ab, um die Flugermüdung gleichmäßig zu verteilen . Die Formation erleichtert zudem die Kommunikation und ermöglicht den Vögeln, Sichtkontakt zueinander zu halten.
| Externe Videos | |
|---|---|
| Szene der Hummerwanderung – aus „Die Prüfungen des Lebens“ |
Auch andere Tiere nutzen ähnliche Strategien beim Wandern. Hummer beispielsweise wandern in dichten, einreihigen Formationen, sogenannten „Hummerzügen“, manchmal über Hunderte von Kilometern.
Das Mittelmeer und andere Meere stellen ein großes Hindernis für Segelvögel dar, die die engsten Stellen passieren müssen. Riesige Schwärme großer Greifvögel und Störche ziehen während des Vogelzugs durch Gebiete wie Gibraltar , Falsterbo und den Bosporus . Häufigere Arten wie der Wespenbussard können im Herbst zu Hunderttausenden gezählt werden. Auch andere Hindernisse, wie Gebirgszüge, können zu einer Engstelle führen, insbesondere bei großen tagaktiven Zugvögeln. Dies ist ein wesentlicher Faktor für den zentralen Zugvogelengpass in Mittelamerika . Diese Konzentration von Vögeln während des Vogelzugs kann Arten gefährden. Einige spektakuläre Zugvögel sind bereits ausgestorben, allen voran die Wandertaube . Während des Zugs waren die Schwärme 1,6 km breit und 500 km lang, benötigten mehrere Tage für ihren Durchzug und umfassten bis zu einer Milliarde Vögel.
Meeresleben
Fisch
| Externes Bild | |
|---|---|
| Effizienz der Nahrungssuche [ 109 ] |
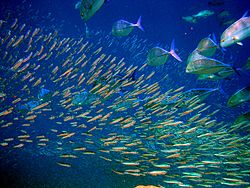
Der Begriff „Schwarm“ kann zur Beschreibung jeder beliebigen Gruppe von Fischen verwendet werden, einschließlich gemischter Artengruppen, während „Schule“ für enger verbundene Gruppen derselben Art verwendet wird, die hochgradig synchronisiert und polarisiert schwimmen.
Fische ziehen viele Vorteile aus dem Schwarmverhalten, darunter die Verteidigung gegen Fressfeinde (durch bessere Erkennung von Fressfeinden und Verringerung des Fangrisikos), eine höhere Erfolgsquote bei der Nahrungssuche und eine größere Wahrscheinlichkeit, einen Partner zu finden. [ 110 ] Es ist außerdem wahrscheinlich, dass Fische durch die Zugehörigkeit zu einem Schwarm von einer erhöhten hydrodynamischen Effizienz profitieren. [ 111 ]
Fische nutzen viele Merkmale, um ihre Schwarmgenossen auszuwählen. Im Allgemeinen bevorzugen sie größere Schwärme, Artgenossen der eigenen Art, solche, die ihnen in Größe und Aussehen ähneln, gesunde Fische und Verwandte (sofern erkannt). Der sogenannte „Auffälligkeitseffekt“ besagt, dass jedes Schwarmmitglied, das durch sein Aussehen auffällt, bevorzugt von Raubfischen angegriffen wird. Dies könnte erklären, warum Fische sich bevorzugt mit Artgenossen zusammenschließen, die ihnen ähneln. Der Auffälligkeitseffekt würde somit tendenziell zu einer Homogenisierung der Schwärme führen. [ 112 ]
Ein rätselhafter Aspekt der Schwarmwahl ist, wie ein Fisch sich einem Schwarm ähnlicher Tiere anschließen kann, da er sein eigenes Aussehen nicht kennen kann. Experimente mit Zebrafischen haben gezeigt, dass die Schwarmpräferenz eine erlernte und keine angeborene Fähigkeit ist. Ein Zebrafisch neigt dazu, sich Schwärmen anzuschließen, die denen ähneln, in denen er aufgewachsen ist – eine Form der Prägung . [ 113 ]
Weitere offene Fragen zum Schwarmverhalten betreffen die Identifizierung der Individuen, die für die Richtung der Schwarmbewegung verantwortlich sind. Im Falle von Wanderungen scheinen die meisten Mitglieder eines Schwarms zu wissen, wohin sie schwimmen. Im Falle des Nahrungssuchverhaltens werden in Gefangenschaft gehaltene Schwärme von Goldelritzen (einer Elritzenart ) von einer kleinen Anzahl erfahrener Individuen angeführt, die wissen, wann und wo Nahrung verfügbar ist. [ 114 ]
Radakov schätzte, dass Heringsschwärme im Nordatlantik ein Volumen von bis zu 4,8 Kubikkilometern (1,2 Kubikmeilen) einnehmen können, mit einer Fischdichte zwischen 0,5 und 1,0 Fischen pro Kubikmeter, was insgesamt mehrere Milliarden Fische in einem einzigen Schwarm ergibt. [ 115 ]
- Partridge BL (1982) „Die Struktur und Funktion von Fischschwärmen“ Scientific American , Juni:114–123.
- Parrish JK, Viscido SV, Grunbaum D (2002). „Selbstorganisierte Fischschwärme: Eine Untersuchung emergenter Eigenschaften“ (PDF) . Biol. Bull . 202 ( 3): 296–305 . CiteSeerX 10.1.1.116.1548 . doi : 10.2307/1543482 . JSTOR 1543482. PMID 12087003. S2CID 377484. Archiviert vom Original (PDF) am 11. September 2006 .
Fischwanderung
| Externes Bild | |
|---|---|
| Videoausschnitt vom „Sardinenlauf“ [ 116 ] |
Zwischen Mai und Juli laichen riesige Sardinenschwärme in den kühlen Gewässern der Agulhasbank und folgen dann einer Kaltwasserströmung nordwärts entlang der Ostküste Südafrikas. Diese gewaltige Wanderung, der sogenannte Sardinenlauf , führt zu spektakulären Fressorgien entlang der Küste, wenn Meeresräuber wie Delfine, Haie und Basstölpel die Schwärme angreifen.
Krill
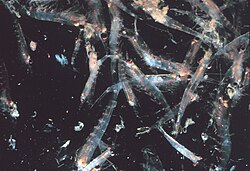
Die meisten Krillarten , kleine garnelenartige Krebstiere , bilden große Schwärme, die mitunter Dichten von 10.000 bis 60.000 Tieren pro Kubikmeter erreichen. [ 117 ] [ 118 ] [ 119 ] Das Schwärmen ist ein Verteidigungsmechanismus, der kleinere Fressfeinde verwirrt, die einzelne Tiere erbeuten wollen. Die größten Schwärme sind aus dem Weltraum sichtbar und können per Satellit verfolgt werden. [ 120 ] Ein beobachteter Schwarm bedeckte eine Fläche von 450 Quadratkilometern (175 Quadratmeilen) Ozean bis in eine Tiefe von 200 Metern (650 Fuß) und enthielt schätzungsweise über 2 Millionen Tonnen Krill. [ 121 ] Jüngste Forschungsergebnisse deuten darauf hin, dass Krill nicht einfach passiv in den Meeresströmungen treibt, sondern diese aktiv beeinflusst. [ 121 ] Krill folgt typischerweise einer tageszeitlichen Vertikalwanderung . Durch ihre vertikale Bewegung im Ozean in einem 12-Stunden-Zyklus tragen die Fischschwärme maßgeblich zur Durchmischung von nährstoffreichem Tiefenwasser mit nährstoffarmem Oberflächenwasser bei. [ 121 ] Bis vor Kurzem ging man davon aus, dass sie tagsüber in größeren Tiefen verweilen und nachts zur Oberfläche aufsteigen. Es hat sich jedoch gezeigt, dass sie mit zunehmender Tiefe ihre Aktivität reduzieren, [ 122 ] offenbar um Begegnungen mit Fressfeinden zu vermeiden und Energie zu sparen.
Spätere Untersuchungen legten nahe, dass die Schwimmaktivität von Krill mit dem Füllungsgrad seines Magens variiert. Gesättigte Tiere, die an der Oberfläche gefressen haben, schwimmen weniger aktiv und sinken daher unter die durchmischte Schicht. [ 123 ] Beim Absinken scheiden sie Kot aus, was darauf hindeutet, dass dieser eine wichtige Rolle im antarktischen Kohlenstoffkreislauf spielt. Krill mit leerem Magen schwimmt hingegen aktiver und steigt zur Oberfläche auf. Dies lässt vermuten, dass Vertikalwanderungen zwei- bis dreimal täglich stattfinden. Einige Arten bilden tagsüber Schwärme an der Oberfläche, um zu fressen und sich fortzupflanzen, obwohl dieses Verhalten gefährlich ist, da es sie extrem anfällig für Fressfeinde macht. [ 124 ] Dichte Schwärme können bei Fischen, Vögeln und Säugetierräubern, insbesondere in Oberflächennähe, einen Fressrausch auslösen . Bei Störung zerstreut sich ein Schwarm, und es wurde sogar beobachtet, dass sich einige Individuen augenblicklich häuten und die Exuvie als Köder zurücklassen. [ 125 ] Im Jahr 2012 stellten Gandomi und Alavi einen anscheinend erfolgreichen stochastischen Algorithmus zur Modellierung des Verhaltens von Krillschwärmen vor. Der Algorithmus basiert auf drei Hauptfaktoren: „(i) Bewegung, die durch die Anwesenheit anderer Individuen hervorgerufen wird, (ii) Nahrungssuche und (iii) zufällige Diffusion.“ [ 126 ]
Ruderfußkrebse
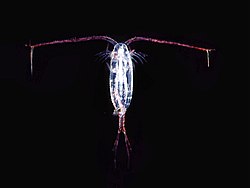
Ruderfußkrebse sind eine Gruppe winziger Krebstiere, die im Meer und in Seen vorkommen. Viele Arten leben planktonisch (treiben im Meerwasser), andere benthisch (leben auf dem Meeresboden). Ruderfußkrebse sind typischerweise 1 bis 2 Millimeter lang, haben einen tropfenförmigen Körper und große Antennen . Obwohl sie wie andere Krebstiere ein gepanzertes Exoskelett besitzen , sind sie so klein, dass dieser dünne Panzer und der gesamte Körper bei den meisten Arten fast vollständig transparent sind. Ruderfußkrebse haben ein einzelnes, mittig angeordnetes Facettenauge, das meist leuchtend rot ist und sich in der Mitte des transparenten Kopfes befindet.
Auch Ruderfußkrebse bilden Schwärme. So wurden beispielsweise regelmäßig monospezifische Schwärme in der Nähe von Korallenriffen und Seegraswiesen sowie in Seen beobachtet. Die Dichte der Schwärme betrug etwa eine Million Ruderfußkrebse pro Kubikmeter. Typische Schwärme hatten einen Durchmesser von ein bis zwei Metern, einige jedoch überstiegen 30 Kubikmeter. Ruderfußkrebse benötigen Sichtkontakt, um zusammenzubleiben, und sie zerstreuen sich nachts. [ 127 ]
Im Frühling kommt es zu Massenvermehrungen von Phytoplankton , das den Ruderfußkrebsen als Nahrung dient. Planktonische Ruderfußkrebse sind meist die dominanten Mitglieder des Zooplanktons und ihrerseits eine wichtige Nahrungsquelle für viele andere Meerestiere. Insbesondere fallen Ruderfußkrebse Fischen und Quallen zum Opfer , die sich zu riesigen Schwärmen von Millionen Tieren versammeln können. Einige Ruderfußkrebse verfügen über extrem schnelle Fluchtreaktionen, sobald sie einen Fressfeind wahrnehmen, und können mit hoher Geschwindigkeit über wenige Millimeter springen (siehe animiertes Bild unten).
 Foto: Ein Heringsschwarm stürzt sich auf einen Schwarm Ruderfußkrebse.
 Animation, die zeigt, wie Heringe durch synchrones Jagen den äußerst aufmerksamen und scheuen Ruderfußkrebs erbeuten können (zum Ansehen klicken).
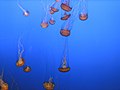 Quallenschwärme jagen ebenfalls Ruderfußkrebse .
Planktonische Ruderfußkrebse spielen eine wichtige Rolle im Kohlenstoffkreislauf . Einige Wissenschaftler gehen davon aus, dass sie die größte tierische Biomasse der Erde bilden. [ 128 ] Sie konkurrieren mit dem Antarktischen Krill um diesen Titel . Aufgrund ihrer geringeren Größe und ihres vergleichsweise schnelleren Wachstums sowie ihrer gleichmäßigeren Verbreitung in den Weltmeeren tragen Ruderfußkrebse jedoch mit hoher Wahrscheinlichkeit weitaus mehr zur Sekundärproduktion der Weltmeere und zur globalen Kohlenstoffsenke bei als Krill und möglicherweise sogar mehr als alle anderen Organismengruppen zusammen. Die Oberflächenschichten der Ozeane gelten derzeit als die größte Kohlenstoffsenke der Welt und absorbieren jährlich etwa 2 Milliarden Tonnen Kohlenstoff, was etwa einem Drittel der menschlichen Kohlenstoffemissionen entspricht und somit deren Auswirkungen reduziert. Viele planktonische Ruderfußkrebse ernähren sich nachts nahe der Oberfläche und sinken tagsüber in tiefere Gewässer ab, um visuellen Fressfeinden zu entgehen. Ihre abgeworfenen Exoskelette, Kotpillen und ihre Atmung in der Tiefe transportieren Kohlenstoff in die Tiefsee.
Algenblüten
Viele einzellige Organismen, sogenannte Phytoplankton, leben in Ozeanen und Seen. Unter bestimmten Bedingungen, wie beispielsweise hohem Nährstoffangebot oder starker Lichteinstrahlung, vermehren sich diese Organismen explosionsartig. Die daraus resultierende dichte Phytoplankton-Ansammlung wird als Algenblüte bezeichnet . Algenblüten können Hunderte von Quadratkilometern bedecken und sind auf Satellitenbildern gut zu erkennen. Einzelne Phytoplankton-Organismen leben selten länger als ein paar Tage, Algenblüten hingegen können wochenlang anhalten. [ 129 ] [ 130 ]
Pflanzen
Wissenschaftler schreiben Pflanzen schon seit Jahrhunderten Schwarmverhalten zu. In seinem 1800 erschienenen Buch „ Phytologia: oder, Die Philosophie des Ackerbaus und der Gartenarbeit“ schrieb Erasmus Darwin, dass das Pflanzenwachstum den in der Natur beobachteten Schwärmen ähnele. [ 131 ] Obwohl er sich dabei auf allgemeinere Beobachtungen der Pflanzenmorphologie bezog und sowohl das Wurzel- als auch das Sprossverhalten untersuchte, wird diese These durch neuere Forschungsergebnisse gestützt.
Pflanzenwurzeln zeigen insbesondere ein beobachtbares Schwarmverhalten. Ihr Wachstum verläuft in Mustern, die die statistische Wahrscheinlichkeit für Zufallswachstum überschreiten und auf eine Kommunikation zwischen den einzelnen Wurzelspitzen hindeuten . Die Hauptfunktion der Pflanzenwurzeln ist die Aufnahme von Nährstoffen aus dem Boden , und genau dieser Zweck treibt das Schwarmverhalten an. Pflanzen, die dicht beieinander wachsen, haben ihr Wachstum so angepasst, dass eine optimale Nährstoffverfügbarkeit gewährleistet ist. Dies erreichen sie, indem sie in eine Richtung wachsen, die den Abstand zwischen benachbarten Wurzeln optimiert und so die Wahrscheinlichkeit erhöht, ungenutzte Nährstoffreserven zu erschließen. Dieses Verhalten äußert sich in zwei Formen: der Maximierung des Abstands zu benachbarten Wurzelspitzen und der Abstoßung durch diese. [ 132 ] Die Übergangszone einer Wurzelspitze ist maßgeblich für die Überwachung des Vorhandenseins von im Boden vorkommenden Hormonen verantwortlich und signalisiert entsprechend reagierende Wachstumsmuster. Die Reaktionen der Pflanzen sind oft komplex und integrieren mehrere Faktoren, um eine autonome Reaktion zu ermöglichen. Zu den weiteren Faktoren, die das Schwarmwachstum beeinflussen, gehören Licht und Schwerkraft, die beide ebenfalls in der Übergangszone der Wurzelspitze überwacht werden. [ 133 ] Diese Kräfte beeinflussen die Anzahl der wachsenden Hauptwurzeln, die ihrerseits unabhängig voneinander hemmende Substanzen freisetzen, um einen geeigneten Abstand herzustellen und so zu einem schwarmartigen Wurzelwachstum beizutragen. Horizontales Wurzelwachstum, sei es als Reaktion auf einen hohen Mineralstoffgehalt im Boden oder durch Ausläuferbildung , führt zu verzweigtem Wachstum, das ebenfalls eigene, unabhängige Wurzelschwärme bildet. [ 134 ]
Bakterien
Der Begriff „Schwärmen“ beschreibt auch Ansammlungen bestimmter Arten räuberischer Bakterien, wie beispielsweise Myxobakterien . Myxobakterien bilden sogenannte „Wolfsrudel“, bewegen sich aktiv durch einen als bakterielles Gleiten bekannten Prozess fort und halten sich mithilfe interzellulärer molekularer Signale zusammen . [ 61 ] [ 135 ]
Säugetiere


- Parrish JK, Edelstein-Keshet L (1999). „Komplexität, Muster und evolutionäre Kompromisse bei der Aggregation von Tieren“ (PDF) . Science . 284 (5411): 99–101 . Bibcode : 1999Sci...284...99P . CiteSeerX 10.1.1.560.5229 . doi : 10.1126/science.284.5411.99 . PMID 10102827. Archiviert vom Original (PDF) am 20. Juli 2011.
Menschen

| Externe Bilder | |
|---|---|
| Simulation der mexikanischen Welle [ 136 ] | |
| Simulation von rhythmischem Applaus [ 137 ] |
Eine Menschenansammlung kann ebenfalls Schwarmverhalten zeigen, wie beispielsweise Fußgänger [ 138 ] oder Soldaten, die die Brüstungen stürmen. In Köln demonstrierten zwei Biologen der Universität Leeds ein schwarmähnliches Verhalten bei Menschen. Die Gruppe zeigte ein ähnliches Verhaltensmuster wie ein Schwarm: Änderten fünf Prozent der Gruppe die Richtung, folgten die anderen. Wurde eine Person als „Raubtier“ bestimmt und alle anderen angewiesen, sie zu meiden, verhielt sich die Gruppe ähnlich wie ein Fischschwarm. [ 139 ] [ 140 ] Das Verständnis der Interaktion von Menschen in großen Menschenmengen ist wichtig für ein effektives Crowd-Management, um Unfälle in Fußballstadien, bei Konzerten und in U-Bahn-Stationen zu vermeiden. [ 141 ]
Die mathematische Modellierung von Schwarmverhalten ist eine gängige Technologie und findet Anwendung in der Animation. Schwarmsimulationen wurden in vielen Filmen [ 142 ] eingesetzt , um realistische Menschenmengen zu erzeugen . Tim Burtons „Batman Returns“ war der erste Film, der Schwarmtechnologie für das Rendering nutzte und die Bewegungen einer Fledermausgruppe mithilfe des Boids -Systems realistisch darstellte. Die „Herr der Ringe“ -Trilogie verwendete eine ähnliche Technologie namens Massive in den Kampfszenen. Schwarmtechnologie ist besonders attraktiv, da sie kostengünstig, robust und einfach ist.
Eine auf Ameisen basierende Computersimulation mit nur sechs Interaktionsregeln wurde ebenfalls zur Bewertung des Boardingverhaltens von Flugzeugen eingesetzt. [ 143 ] Fluggesellschaften nutzen auch ameisenbasiertes Routing, um Flugzeugankünfte den Gates zuzuweisen. Ein von Douglas A. Lawson entwickeltes System basiert auf der Schwarmintelligenz – der Idee, dass eine Ameisenkolonie effizienter arbeitet als eine einzelne Ameise. Jeder Pilot agiert wie eine Ameise auf der Suche nach dem optimalen Gate. „Der Pilot lernt aus Erfahrung, was für ihn am besten ist, und das erweist sich als die beste Lösung für die Fluggesellschaft“, erklärt Lawson. Dadurch steuert die Pilotenkolonie stets Gates an, die sie schnell erreichen und von denen sie schnell abfliegen können. Das Programm kann Piloten sogar vor Flugzeugstaus warnen. „Wir können vorhersehen, dass es zu Staus kommen wird, und haben daher immer ein freies Gate“, so Lawson. [ 144 ]
Schwarmverhalten tritt auch in der Verkehrsdynamik auf , beispielsweise bei Verkehrswellen . Auch in Ameisenstraßen lässt sich bidirektionaler Verkehr beobachten . [ 145 ] [ 146 ] In den letzten Jahren wurde dieses Verhalten im Hinblick auf Fußgänger- und Verkehrsmodelle untersucht. [ 147 ] [ 148 ] Simulationen auf Basis von Fußgängermodellen wurden auch auf panikartige Massenpaniken angewendet. [ 149 ]
Herdenverhalten im Marketing wird genutzt, um die Abhängigkeiten im Verhalten von Kunden zu erklären. Der Economist berichtete über eine kürzlich in Rom abgehaltene Konferenz zum Thema Simulation adaptiven menschlichen Verhaltens. [ 150 ] Dort wurden Mechanismen vorgestellt, die Impulskäufe fördern und Konsumenten dazu anregen, „mehr zu kaufen, indem man den Herdentrieb ausnutzt“. Die Grundidee ist, dass Menschen mehr von Produkten kaufen, die als beliebt gelten. Verschiedene Feedback-Mechanismen, wie Smartcard- Technologie und RFID-Tags , werden genannt, um Konsumenten über die Beliebtheit von Produkten zu informieren. Ein Forscher des Florida Institute of Technology präsentierte ein „Schwarmverhalten“-Modell , das für Supermärkte interessant ist, da es „den Umsatz steigern kann, ohne dass Rabatte gewährt werden müssen“.
- Helbing D, Keltsch J, Molnar P (1997). „Modellierung der Evolution menschlicher Pfadsysteme“. Nature . 388 (6637): 47–50 . arXiv : cond-mat/9805158 . Bibcode : 1997Natur.388 ...47H . doi : 10.1038/40353 . PMID 9214501. S2CID 4364517 .
- Helbing D, Farkas I, Vicsek T (2000). „Simulating dynamical features of escape panic“. Nature . 407 (6803): 487–490 . arXiv : cond-mat/0009448 . Bibcode : 2000Natur.407..487H . doi : 10.1038 /35035023 . PMID 11028994. S2CID 310346 .
- Helbing D, Farkas IJ, Vicsek T (2000). „Gefrieren durch Erhitzen in einem getriebenen mesoskopischen System“. Physical Review Letters . 84 (6): 1240–1243 . arXiv : cond-mat/9904326 . Bibcode : 2000PhRvL..84.1240H . doi : 10.1103 /PhysRevLett.84.1240 . PMID 11017488. S2CID 18649078 .
Robotik

Die Anwendung von Schwarmprinzipien auf Roboter wird als Schwarmrobotik bezeichnet , während sich der Begriff Schwarmintelligenz auf die allgemeinere Menge an Algorithmen bezieht.
| Externe Videos | |
|---|---|
| Ein Schwarm von Nano-Quadrocoptern – YouTube [ 151 ] | |
| Marsch der mikroskopischen Roboter (Nature Video, YouTube) |
Teils inspiriert von Insektenkolonien wie Ameisen und Bienen, modellieren Forscher das Verhalten von Schwärmen aus Tausenden winziger Roboter, die gemeinsam eine nützliche Aufgabe erfüllen, beispielsweise etwas Verstecktes finden, reinigen oder spionieren. Jeder einzelne Roboter ist recht einfach, doch das resultierende Verhalten des Schwarms ist komplexer. [ 152 ] Der gesamte Roboterschwarm kann als ein einziges verteiltes System betrachtet werden, ähnlich wie eine Ameisenkolonie als Superorganismus mit Schwarmintelligenz . Der bisher größte Schwarm ist der Kilobot-Schwarm mit 1024 Robotern. [ 153 ] Weitere große Schwärme sind der iRobot- Schwarm, das Centibots- Projekt von SRI International /ActivMedia Robotics [ 154 ] und der Schwarm des Open-Source Micro-Robotic Project, die zur Erforschung kollektiven Verhaltens eingesetzt werden. [ 155 ] [ 156 ] Schwärme sind zudem ausfallsicherer. Während ein einzelner großer Roboter ausfallen und eine Mission zum Scheitern bringen kann, bleibt ein Schwarm auch bei Ausfall mehrerer Roboter funktionsfähig. Dies macht ihn besonders attraktiv für Weltraummissionen, wo Fehlschläge normalerweise extrem kostspielig sind. [ 157 ] Neben Bodenfahrzeugen umfasst die Schwarmrobotik auch die Forschung an Schwärmen von Flugrobotern [ 151 ] [ 158 ] sowie an heterogenen Teams aus Boden- und Luftfahrzeugen. [ 159 ] [ 160 ]
Im Gegensatz zu makroskopischen Robotern können kolloidale Partikel im Mikromaßstab auch als Akteure eingesetzt werden, um kollektive Verhaltensweisen zur Aufgabenbewältigung mithilfe mechanischer und physikalischer Ansätze auszuführen. Beispiele hierfür sind rekonfigurierbare, tornadoartige Mikroschwärme [ 161 ] , die das Schwarmverhalten von Fischen imitieren [ 162 ] , hierarchische Partikelarten [ 163 ], die das Jagdverhalten von Säugetieren nachahmen, sowie die Manipulation von Mikroobjekten mithilfe eines transformierbaren Mikroschwarms [ 164 ] . Die Herstellung solcher kolloidaler Partikel basiert üblicherweise auf chemischer Synthese.
Militär

Military swarming is a behaviour where autonomous or partially autonomous units of action attack an enemy from several different directions and then regroup. Pulsing, where the units shift the point of attack, is also a part of military swarming. Military swarming involves the use of a decentralized force against an opponent, in a manner that emphasizes mobility, communication, unit autonomy and coordination or synchronization.[165] Historically military forces used principles of swarming without really examining them explicitly, but now active research consciously examines military doctrines that draw ideas from swarming.
Merely because multiple units converge on a target, they are not necessarily swarming. Siege operations do not involve swarming, because there is no manoeuvre; there is convergence but on the besieged fortification. Nor do guerrilla ambushes constitute swarms, because they are "hit-and-run". Even though the ambush may have several points of attack on the enemy, the guerillas withdraw when they either have inflicted adequate damage, or when they are endangered.
In 2014 the U. S. Office of Naval Research released a video showing tests of a swarm of small autonomous drone attack boats that can steer and take coordinated offensive action as a group.[166]
Gallery
 A swarm of migrating herrings
 A swarm of bees

 A swarm of ladybirds
 A swarm of robots
 A swarm of ancient stars
Myths
- There is a popular myth that lemmings commit mass suicide by swarming off cliffs when they migrate. Driven by strong biological urges, some species of lemmings may migrate in large groups when population density becomes too great. Lemmings can swim and may choose to cross a body of water in search of a new habitat. In such cases, many may drown if the body of water is so wide as to stretch their physical capability to the limit. This fact combined with some unexplained fluctuations in the population of Norwegian lemmings gave rise to the myth.[170]
- Piranhas gelten als furchtlose Fische, die in wilden, räuberischen Schwärmen jagen. Neuere Forschungen, die von der Annahme ausgingen, dass sie zum Zweck der gemeinsamen Jagd Schwärme bilden, ergaben jedoch, dass sie in Wirklichkeit eher ängstliche Fische sind, ähnlich wie andere Fische, die sich zum Schutz vor Fressfeinden wie Kormoranen, Kaimanen und Delfinen in Schwärmen zusammenschließen. Ein Forscher beschrieb sie als „im Grunde wie normale Fische mit großen Zähnen“. [ 171 ]
Siehe auch
- Aktive Materie – Materieverhalten im Systemmaßstab
- Dyson-Schwarm – Hypothetische Megastruktur um einen Stern
- Liste der Kollektivnomen im Englischen
- Mobile Bay Jubilee – Ein Naturphänomen, das in der Mobile Bay in Alabama, USA, auftritt.
- Populationszyklus – Zyklische Veränderung der Population einer Art
- Schwarm (Simulation)
- Swirlonischer Zustand – ein kürzlich (2020) entdeckter neuer Zustand selbstangetriebener Partikel
- Verkehrswelle – Art der Autobahnstauung
- Schwarmalatoren – Agenten, die gleichzeitig Schwarmverhalten und Synchronisierung durchführen.
Referenzen
- ^ Bouffanais, Roland (2016). Entwurf und Steuerung der Schwarmdynamik . SpringerBriefs in Complexity (1. Aufl.). Springer. doi : 10.1007/978-981-287-751-2 . ISBN 978-981-287-750-5Die
- ^ Ein Schwarm alter Sterne. Europäische Südsternwarte , 8. Dezember 2010. Abgerufen am 23. Oktober 2025.
- ^ Hubble entdeckt einen Sternschwarm. NASA Hubble Mission Team , 6. September 2019. Abgerufen am 23. Oktober 2025.
- O’Loan ; Evans (1998). „Alternating steady state in one-dimensional flocking“. Journal of Physics A: Mathematical and General . 32 (8): L99– L105. arXiv : cond-mat/9811336 . Bibcode : 1999JPhA...32L..99O . doi : 10.1088/0305-4470/32/8/002 . S2CID 7642063 .
- ^ Attanasi, A.; Cavagna, A.; Del Castello, L.; Giardina, I.; Grigera, TS; Jelić, A.; Melillo, S.; Parisi, L.; Pohl, O.; Shen, E.; Viale, M. (September 2014). „Informationsübertragung und Verhaltensträgheit in Starenschwärmen“ . Naturphysik . 10 (9): 691–696 . arXiv : 1303.7097 . Bibcode : 2014NatPh..10..691A . doi : 10.1038/nphys3035 . PMC 4173114 . PMID 25264452 .
- ^ a b c Reynolds CW (1987). „Flocks, herds and schools: A distributed behavioral model“. Proceedings of the 14th annual conference on Computer graphics and interactive techniques . Vol. 21. pp. 25– 34. CiteSeerX 10.1.1.103.7187 . doi : 10.1145/37401.37406 . ISBN 978-0-89791-227-3. S2CID 546350 .
- ^ a b Ballerini M, Cabibbo N, Candelier R, Cavagna A, Cisbani E, Giardina I, Lecomte V, Orlandi A, Parisi G, Procaccini A, Viale M, Zdravkovic V (2008). „Interaktion, die das kollektive Verhalten von Tieren bestimmt, hängt eher von der topologischen als von der metrischen Distanz ab: Ergebnisse einer Feldstudie“ . Proc. Natl. Acad. Sci. USA . 105 (4): 1232–7 . arXiv : 0709.1916 . Bibcode : 2008PNAS..105.1232B . doi : 10.1073/ pnas.0711437105 . PMC 2234121. PMID 18227508 .
- ^ Hildenbrandt H, Carere C, Hemelrijk CK (2010). „Selbstorganisierte Balzrituale von Tausenden von Staren: ein Modell“ . Behavioral Ecology . 21 (6): 1349–1359 . arXiv : 0908.2677 . doi : 10.1093/beheco/arq149 .
- ^ Hemelrijk CK, Hildenbrandt H (2011). „Einige Ursachen für die variable Form von Vogelschwärmen“ . PLOS ONE . 6 (8) e22479. Bibcode : 2011PLoSO...622479H . doi : 10.1371/ journal.pone.0022479 . PMC 3150374. PMID 21829627 .
- ^ „Zwermen en scholen – Swarming – Permanente expo – Bezoek onze expos & Workshops! – Science LinX – Rijksuniversiteit Groningen“ . 10. November 2007.
- ^ „Onderzoek aan de Faculteit Wiskunde en Natuurwetenschappen – Faculteit Wiskunde en Natuurwetenschappen – Over ons – Rijksuniversiteit Groningen“ . 25. Oktober 2012.
- ^ Yang, W.; Schmickl, T. (2019). „Kollektive Bewegung als ultimativer Effekt in überfüllten egoistischen Herden“ . Scientific Reports . 9 (1): 6618. Bibcode : 2019NatSR...9.6618Y . doi : 10.1038/ s41598-019-43179-6 . PMC 6488663. PMID 31036873 .
- ^ Olson RS, Knoester DB, Adami C (2013). „Das entscheidende Zusammenspiel zwischen dichteabhängiger Prädation und der Evolution der egoistischen Herde“ . Proceedings der 15. jährlichen Konferenz über genetische und evolutionäre Berechnung . Gecco '13. S. 247–254 . doi : 10.1145/2463372.2463394 . ISBN 978-1-4503-1963-8. S2CID 14414033 .
- ^ Ward CR, Gobet F, Kendall G (2001). „Evolving collective behavior in an artificial ecology“ . Artificial Life . 7 (2): 191–209 . CiteSeerX 10.1.1.108.3956 . doi : 10.1162/106454601753139005 . PMID 11580880. S2CID 12133884 .
- ^ Reluga TC, Viscido S ( 2005). „Simulierte Evolution egoistischen Herdenverhaltens“. Journal of Theoretical Biology . 234 (2): 213–225 . Bibcode : 2005JThBi.234..213R . doi : 10.1016/j.jtbi.2004.11.035 . PMID 15757680 .
- ^ Wood AJ, Ackland GJ (2007). „Die Entwicklung der egoistischen Herde: Entstehung unterschiedlicher Aggregationsstrategien in einem individuenbasierten Modell“ . Proc Biol Sci . 274 (1618): 1637–1642 . Bibcode : 2007PBioS.274.1637W . doi : 10.1098/rspb.2007.0306 . PMC 2169279. PMID 17472913 .
- ^ Olson RS, Hintze A, Dyer FC, Knoester DB, Adami C (2013). „Verwirrung der Fressfeinde reicht aus , um Schwarmverhalten zu entwickeln“ . JR Soc. Interface . 10 (85) 20130305. Bibcode : 2013JRSI...1030305O . doi : 10.1098/rsif.2013.0305 . PMC 4043163. PMID 23740485 .
- ^ Demsar J, Hemelrijk CK, Hildenbrandt H, Bajec IL (2015). „Simulating predator attacks on schools: Evolving composite tactics“ (PDF) . Ecological Modelling . 304 : 22–33 . Bibcode : 2015EcMod.304...22D . doi : 10.1016/j.ecolmodel.2015.02.018 . hdl : 11370/0bfcbb69-a101-4ec1-833a-df301e49d8ef . S2CID 46988508 .
- ^ Tosh CR (2011). „Welche Bedingungen fördern eine negative dichteabhängige Selektion bei Beuteansammlungen?“ (PDF) . Journal of Theoretical Biology . 281 (1): 24–30 . Bibcode : 2011JThBi.281...24T . doi : 10.1016/j.jtbi.2011.04.014 . PMID 21540037 .
- ^ Ioannou CC, Guttal V, Couzin ID (2012). „Raubfische wählen koordinierte kollektive Bewegungen bei virtueller Beute“ . Science . 337 (6099): 1212–1215 . Bibcode : 2012Sci...337.1212I . doi : 10.1126 / science.1218919 . PMID 22903520. S2CID 10203872 .
- ^ Olson RS, Haley PB, Dyer FC, Adami C (2015). „Exploring the evolution of a trade-off between vigilance and foraging in group-living organisms“ . Royal Society Open Science . 2 (9) 150135. arXiv : 1408.1906 . Bibcode : 2015RSOS....250135O . doi : 10.1098 / rsos.150135 . PMC 4593673. PMID 26473039 .
- ^ Li JN, Li L, Zhao SY (2023). „Der Überlebensdruck im Räuber-Beute-Verhältnis reicht aus, um Schwarmverhalten zu entwickeln“. New Journal of Physics . 25 (9): 092001. arXiv : 2308.12624 . Bibcode : 2023NJPh...25i2001L . doi : 10.1088/1367-2630/acf33a .
- ^ „Hierarchie des Lebens“ . 14. September 2008. Archiviert vom Original am 3. Juli 2016. Abgerufen am 6. Oktober 2009 .
- ^ Parunak, H. v D. (2003). "Making swarming happen" In: Proceedings of Conference on Swarming and Network Enabled Command, Control, Communications, Computers, Intelligence, Surveillance and Reconnaissance (C4ISR), McLean, Virginia, USA, 3 January 2003.
- ^ a b Marsh L.; Onof C. (2008). „Stigmergische Epistemologie, stigmergische Kognition“ ( PDF) . Cognitive Systems Research . 9 (1): 136–149 . doi : 10.1016/j.cogsys.2007.06.009 . S2CID 23140721. SSRN 1382262 .
- ^ Beni, G., Wang, J. Schwarmintelligenz in zellulären Robotersystemen, Proceedings. NATO Advanced Workshop on Robots and Biological Systems, Toskana, Italien, 26.–30. Juni (1989)
- ^ Dorigo, M; Birattari, M (2007). „Schwarmintelligenz“ . Scholarpedia . 2 (9): 1462. Bibcode : 2007SchpJ...2.1462D . doi : 10.4249/scholarpedia.1462 . hdl : 2013/ULB-DIPOT:oai:dipot.ulb.ac.be:2013/72293 .
- ^ a b Li, YX; Lukeman, R; Edelstein-Keshet, L (2007). „Minimale Mechanismen zur Schulbildung selbstangetriebener Partikel“ (PDF) . Physica D: Nonlinear Phenomena . 237 (5): 699–720 . Bibcode : 2008PhyD..237..699L . doi : 10.1016/j.physd.2007.10.009 .
- ^ Toner J und Tu Y (1995) "Langstreckenordnung in einem zweidimensionalen xy-Modell: Wie Vögel zusammen fliegen" Physical Revue Letters, 75 (23)(1995), 4326–4329.
- ^ Topaz C, Bertozzi A (2004). „Schwarmverhalten in einem zweidimensionalen kinematischen Modell für biologische Gruppen“. SIAM J Appl Math . 65 (1): 152–174 . Bibcode : 2004APS..MAR.t9004T . CiteSeerX 10.1.1.88.3071 . doi : 10.1137/S0036139903437424 . S2CID 18468679 .
- ^ Topaz C, Bertozzi A, Lewis M (2006). „Ein nichtlokales Kontinuumsmodell für die biologische Aggregation“. Bull Math Biol . 68 (7): 1601–1623 . arXiv : q-bio/0504001 . doi : 10.1007 /s11538-006-9088-6 . PMID 16858662. S2CID 14750061 .
- ^ Carrillo, J.; Fornasier, M.; Toscani, G. (2010). „Partikel-, kinetische und hydrodynamische Modelle des Schwarmverhaltens“ (PDF) . Mathematische Modellierung kollektiven Verhaltens in den sozioökonomischen und Lebenswissenschaften . Modellierung und Simulation in Wissenschaft, Ingenieurwesen und Technologie. Band 3. S. 297–336 . CiteSeerX 10.1.1.193.5047 . doi : 10.1007/978-0-8176-4946-3_12 . ISBN 978-0-8176-4945-6Die
- ^ „Swarmanoid-Projekt“ . Archiviert vom Original am 5. Juli 2007.
- ^ Ameisenkolonieoptimierung. Abgerufen am 15. Dezember 2010.
- ^ A. Colorni, M. Dorigo und V. Maniezzo, Distributed Optimization by Ant Colonies , actes de la première conférence européenne sur la vie artificielle, Paris, Elsevier Publishing, 134–142, 1991.
- ^ M. Dorigo, Optimierung, Lernen und natürliche Algorithmen , Doktorarbeit, Politecnico di Milano, Italien, 1992.
- ^ Hölldobler & Wilson (1990), S. 143–179
- ^ DORIGO, M.; DI CARO, G.; GAMBERELLA, LM (1999). Ant Algorithms for Discrete Optimization, Artificial Life . MIT Press.
- ^ Selbstgetriebenes Partikelmodell. Archiviert am 14. Oktober 2012 im Internet Archive. Interaktive Simulationen, 2005, Universität von Colorado. Abgerufen am 10. April 2011.
- Vicsek T , Czirok A , Ben - Jacob E, Cohen I, Shochet O (1995). „Neuartiger Phasenübergang in einem System selbstgetriebener Teilchen“. Physical Review Letters . 75 (6): 1226–1229 . arXiv : cond-mat/0611743 . Bibcode : 1995PhRvL..75.1226V . doi : 10.1103 / PhysRevLett.75.1226 . PMID 10060237. S2CID 15918052 .
- ^ Czirók A, Vicsek T (2006). „Kollektives Verhalten interagierender selbstangetriebener Partikel“. Physica A. 281 ( 1–4 ) : 17–29 . arXiv : cond-mat/0611742 . Bibcode : 2000PhyA..281...17C . doi : 10.1016/S0378-4371(00)00013-3 . S2CID 14211016 .
- ^ Buhl J, Sumpter DJT, Couzin D, Hale JJ, Despland E, Miller ER, Simpson SJ, et al. (2006). „From disorder to order in marching locusts“ (PDF) . Science . 312 (5778): 1402–1406 . Bibcode : 2006Sci...312.1402B . doi : 10.1126/science.1125142 . PMID 16741126. S2CID 359329. Archiviert vom Original (PDF) am 29. September 2011. Abgerufen am 13. April 2011 .
- ^ Toner J, Tu Y, Ramaswamy S (2005). „Hydrodynamik und Phasen von Vogelschwärmen“ (PDF) . Annals of Physics . 318 (1): 170–244 . Bibcode : 2005AnPhy.318..170T . doi : 10.1016/j.aop.2005.04.011 . Archiviert vom Original (PDF) am 18. Juli 2011. Abgerufen am 13. April 2011 .
- Bertin , E.; Droz; Grégoire, G. (2009). „Hydrodynamische Gleichungen für selbstangetriebene Partikel: mikroskopische Herleitung und Stabilitätsanalyse“. J. Phys. A. 42 ( 44) 445001. arXiv : 0907.4688 . Bibcode : 2009JPhA...42R5001B . doi : 10.1088/1751-8113/42/44/445001 . S2CID 17686543 .
- ^ Kennedy, J.; Eberhart, R. (1995). „Particle Swarm Optimization“. Proceedings of IEEE International Conference on Neural Networks . Vol. IV. S. 1942–1948 .
- ^ Kennedy, J. (1997). „Der Partikelschwarm: Soziale Anpassung von Wissen“. Proceedings of IEEE International Conference on Evolutionary Computation . S. 303–308 .
- ^ Shvalb, Nir; Hacohen, Shlomi; Medina, Oded (2024). „Statistische Robotik: Steuerung von Multi - Robotersystemen mittels statistischer Physik“ . IEEE Access . 12 : 134739–134753 . Bibcode : 2024IEEEA..12m4739S . doi : 10.1109/ACCESS.2024.3406599 . Abgerufen am 13. Mai 2025 .
- ^ Hu X Partikelschwarmoptimierung: Tutorial . Abgerufen am 15. Dezember 2010.
- ^ Kennedy, J.; Eberhart, R. C. (2001). Schwarmintelligenz . Morgan Kaufmann. ISBN 978-1-55860-595-4Die
- ^ Poli, R. (2007). „Eine Analyse von Veröffentlichungen zu Anwendungen der Partikelschwarmoptimierung“ (PDF) . Technischer Bericht CSM-469 . Archiviert vom Original (PDF) am 16. Juli 2011. Abgerufen am 15. Dezember 2010 .
- ^ Poli, R. (2008). „Analyse der Veröffentlichungen zu den Anwendungen der Partikelschwarmoptimierung“ (PDF) . Journal of Artificial Evolution and Applications . 2008; 685175: 1–10 . doi : 10.1155/2008/685175 .
- ^ Altruismus hilft Schwarmrobotern beim Fliegen. Archiviert am 15.09.2012 in der Wayback Machine. genevalunch.com , 4. Mai 2011.
- ^ Waibel, M.; Floreano, D.; Keller, L. (2011). „Ein quantitativer Test von Hamiltons Regel für die Evolution des Altruismus“ . PLOS Biology . 9 (5) : 1000615. doi : 10.1371/journal.pbio.1000615 . PMC 3086867. PMID 21559320 .
- ^ Herrnkind, W. (1969). „Warteschlangenverhalten von Langusten“. Science . 164 ( 3886): 1425–1427 . Bibcode : 1969Sci...164.1425H . doi : 10.1126/science.164.3886.1425 . PMID 5783720. S2CID 10324354 .
- ^ Fossile „Conga-Linien“ enthüllen Ursprünge von Tierschwärmen National Geographic , 17. Oktober 2019.
- Vannier , J.; Vidal, M.; Marchant, R.; El Hariri, K.; Kouraiss, K.; Pittet, B.; El Albani, A.; Mazurier, A.; Martin, E. (2019). „Kollektives Verhalten bei 480 Millionen Jahre alten Trilobiten aus Marokko“ . Scientific Reports . 9 (1): 14941. Bibcode : 2019NatSR...914941V . doi : 10.1038/s41598-019-51012-3 . PMC 6797724. PMID 31624280 .
- ^ Feare C (1984) Der Star , Oxford University Press. ISBN 978-0-19-217705-6Die
- ^ Partridge BL (1982). „Die Struktur und Funktion von Fischschwärmen“ (PDF) . Scientific American . Band 246, Nr. 6, S. 114–123 . Bibcode : 1982SciAm.246f.114P . doi : 10.1038/scientificamerican0682-114 . PMID 7201674. Archiviert vom Original (PDF) am 3. Juli 2011.
- ^ Hubbard S, Babak P, Sigurdsson S, Magnusson K (2004). „Ein Modell zur Bildung von Fischschwärmen und zur Wanderung von Fischen“. Ecol. Model . 174 (4): 359–374 . Bibcode : 2004EcMod.174..359H . doi : 10.1016/j.ecolmodel.2003.06.006 .
- Rauch E, Millonas M, Chialvo D (1995). „Musterbildung und Funktionalität in Schwarmmodellen“. Physics Letters A. 207 ( 3–4 ) : 185–193 . arXiv : adap-org/9507003 . Bibcode : 1995PhLA..207..185R . doi : 10.1016/0375-9601(95)00624-C . S2CID 120567147 .
- ^ a b Allison C, Hughes C (1991). „Bakterienschwärmen: ein Beispiel für prokaryotische Differenzierung und mehrzelliges Verhalten“. Science Progress . 75 (298 Pt 3–4): 403– 422. PMID 1842857 .
- ^Ben-Jacob E, Cohen I, Shochet O, Czirok A, Vicsek T (1995). "Cooperative Formation of Chiral Patterns during Growth of Bacterial Colonies". Physical Review Letters. 75 (15): 2899–2902. Bibcode:1995PhRvL..75.2899B. doi:10.1103/PhysRevLett.75.2899. PMID 10059433.
- ^Rappel WJ, Nicol A, Sarkissian A, Levine H, Loomis WF (1999). "Self-organized vortex state in two-dimensional Dictyostelium dynamics". Physical Review Letters. 83 (6): 1247–1250. arXiv:patt-sol/9811001. Bibcode:1999PhRvL..83.1247R. doi:10.1103/PhysRevLett.83.1247. S2CID 1590827.
- ^Chowdhury, D (2006). "Collective effects in intra-cellular molecular motor transport: coordination, cooperation and competition". Physica A. 372 (1): 84–95. arXiv:physics/0605053. Bibcode:2006PhyA..372...84C. doi:10.1016/j.physa.2006.05.005. S2CID 14822256.
- ^Parrish JK and Hamner WM (eds) (1997) Animal Groups in Three Dimensions Cambridge University Press. ISBN 978-0-521-46024-8.
- ^Helbing D, Keltsch J, Molnar P (1997). "Modelling the evolution of human trail systems". Nature. 388 (6637): 47–50. arXiv:cond-mat/9805158. Bibcode:1997Natur.388...47H. doi:10.1038/40353. PMID 9214501. S2CID 4364517.
- ^Helbing D, Farkas I, Vicsek T (2000). "Simulating dynamical features of escape panic". Nature. 407 (6803): 487–490. arXiv:cond-mat/0009448. Bibcode:2000Natur.407..487H. doi:10.1038/35035023. PMID 11028994. S2CID 310346.
- Helbing D, Farkas IJ, Vicsek T (2000). „Gefrieren durch Erhitzen in einem getriebenen mesoskopischen System“. Physical Review Letters . 84 (6): 1240–1243 . arXiv : cond-mat/9904326 . Bibcode : 2000PhRvL..84.1240H . doi : 10.1103 /PhysRevLett.84.1240 . PMID 11017488. S2CID 18649078 .
- ^
- Schwarmtheorie. National Geographic . Feature-Artikel, Juli 2007.
- Beekman M, Sword GA und Simpson SK (2008) Biological Foundations of Swarm Intelligence . In „Swarm Intelligence: Introduction and Applications“ , Hrsg. Blum C und Merkle D. , Seite 3–43. ISBN 978-3-540-74088-9
- Parrish JK, Edelstein-Keshet L (1999). „Komplexität, Muster und evolutionäre Kompromisse bei der Aggregation von Tieren“ (PDF) . Science . 284 (5411): 99–101 . Bibcode : 1999Sci...284...99P . CiteSeerX 10.1.1.560.5229 . doi : 10.1126/science.284.5411.99 . PMID 10102827. Archiviert vom Original (PDF) am 20. Juli 2011.
- ^ a b Bonabeau E und Theraulaz G (2008) „Schwarmintelligenz“. In: Ihre Zukunft mit Robotern. Scientific American Sonderausgaben.
- ^ Czaczkes, TJ; Grüter, C.; Ratnieks, FLW (2015). „Spurpheromone: Eine integrative Betrachtung ihrer Rolle in der Kolonieorganisation“ . Annual Review of Entomology . 60 : 581–599 . doi : 10.1146/annurev-ento-010814-020627 . PMID 25386724. S2CID 37972066 .
- Beckers , R.; Deneubourg, J. L.; Goss, S. (1993). „Modulation of trail laying in the amt Lasius niger (Hymenoptera: Formicidae) and its role in the collective selection of a food source“. Journal of Insect Behavior . 6 (6): 751–759 . Bibcode : 1993JIBeh...6..751B . CiteSeerX : 10.1.1.161.9541 . doi : 10.1007/BF01201674 . S2CID : 14670150 .
- ^ Goss, S.; Aron, S.; Deneubourg, JL; Pasteels, JM (1989). „Selbstorganisierte Abkürzungen bei der argentinischen Ameise“ (PDF) . Naturwissenschaften . 76 (12): 579–581 . Bibcode : 1989NW.....76..579G . doi : 10.1007/BF00462870 . S2CID 18506807 .
- ^ Brady, Seán G. (2003). „Evolution des Wanderameisensyndroms: Ursprung und langfristige evolutionäre Stasis eines Komplexes von Verhaltens- und Fortpflanzungsanpassungen“ . Proceedings of the National Academy of Sciences of the United States of America . 100 (11): 6575–9 . Bibcode : 2003PNAS..100.6575B . doi : 10.1073 / pnas.1137809100 . PMC 164488. PMID 12750466 .
- Dicke E, Byde A, Cliff D, Layzell P (2004). „Eine von Ameisen inspirierte Technik für den Entwurf von Speichernetzwerken“. In: AJ Ispeert, M. Murata, N. Wakamiya (Hrsg.). Proceedings of Biologically Inspired Approaches to Advanced Information Technology: First International Workshop, BioADIT 2004 LNCS 3141. Springer. S. 364–379 . ISBN 978-3-540-23339-8Die
- ^ Oldroyd, BP (1998). „Verwandtschaftsverhältnisse in Kolonien von Apis dorsata Fabricius (Hymenoptera, Apidae)“. Insectes Sociaux . 47 : 94–95 . doi : 10.1007/s000400050015 . S2CID 40346464 .
- ^ Milius, Susan: Schwarmintelligenz ( Archiviert am 27. September 2012 im Internet Archive) , Wie Bienen, Ameisen und andere Tiere dumme kollektive Entscheidungen vermeiden; Science News, 9. Mai 2009; Band 175, Nr. 10 (S. 16)
- ^ Bienenschwärme folgen schnellen „Streifbienen“ auf der Suche nach einem neuen Nest ; ScienceDaily (24. November 2008)
- Seeley , Thomas D.; Visscher, P. Kirk (2003). „Die Wahl eines Zuhauses: Wie die Späherinnen eines Bienenschwarms den Abschluss ihrer Gruppenentscheidung wahrnehmen“ (PDF) . Behavioral Ecology and Sociobiology . 54 (5): 511–520 . Bibcode : 2003BEcoS..54..511S . doi : 10.1007/s00265-003-0664-6 . S2CID 16948152. Archiviert vom Original (PDF) am 31. Januar 2009. Abgerufen am 14. Dezember 2010 .
- ^ Morse, R. A. (1963). „Schwarmorientierung bei Honigbienen“. Science . 141 ( 3578): 357–358 . Bibcode : 1963Sci...141..357M . doi : 10.1126/science.141.3578.357 . PMID 17815993. S2CID 46516976 .
- ^ Seeley, Thomas (2003). „Konsensbildung bei der Nistplatzwahl von Honigbienenschwärmen: Das Ende des Dissens“. Behavioral Ecology and Sociobiology . 53 (6): 417–424 . Bibcode : 2003BEcoS..53..417S . doi : 10.1007/s00265-003-0598-z . S2CID 34798300 .
- ^ Stepien, TL; Zmurchok, C.; Hengenius, JB; Caja Rivera, RM; D'Orsogna, MR ; Lindsay, AE (2000). „Mottenpaarung: Modellierung des weiblichen Pheromonrufs und der Navigationsstrategien der Männchen zur Optimierung des Fortpflanzungserfolgs“ . Applied Sciences . 10 (18): 6543. doi : 10.3390/app10186543 .
- ^ Badeke, B.; Haverkamp, A.; Sachse, SA (2016). „Eine Herausforderung für einen männlichen Eulenfalter? Die Unterscheidung des weiblichen Sexualpheromons vor dem Hintergrund pflanzlicher Duftstoffe“ . Frontiers in Physiology . 7 : 143. doi : 10.3389/fphys.2016.00143 . PMC 4843018. PMID 27199761 .
- ^ Greenfield, MD (1981). „Motten-Sexualpheromone: eine evolutionäre Perspektive“ . The Florida Entomologist . 64 (1): 4–17 . Bibcode : 1981FlEnt..64....4G . doi : 10.2307/3494597 . JSTOR 3494597 .
- ^Umbers, K.D.L.; Symonds, M.R.E.; Kokko, H. (2015). "The Mothematics of female pheromone signaling: Strategies for aging virgins"(PDF). American Naturalist. 185 (3): 417–432. Bibcode:2015ANat..185..417U. doi:10.1086/679614. hdl:1885/13166. PMID 25674695. S2CID 13846468.
- ^Mason, D.S.; Baruzzi, C. (2019). "Love in strange places". Frontiers in Ecology and the Environment. 17 (3): 184. Bibcode:2019FrEE...17..184M. doi:10.1002/fee.2027.
- ^"Midges". MDC Discover Nature. Retrieved 19 November 2019.
- ^Kirkeby, Carsten (30 June 2018). "Observations of female and mixed sex swarming behaviour in Culicoides LATREILLE, 1809 (Diptera: Ceratopogonidae)". Polish Journal of Entomology. 87 (2): 191–197. doi:10.2478/pjen-2018-0014.
- ^Jennifer Viegas. "Cockroaches Make Group Decisions". Discovery Channel. Archived from the original on 4 July 2008. Retrieved 10 June 2006.
- ^Lemonick, Michael D. (15 November 2007). "Robotic Roaches Do the Trick". Time. Archived from the original on 16 November 2007.
- ^Locust LocustidaeNational Geographic. Retrieved 12 December 2010.
- ^"Locust swarms 'high' on serotonin". 29 January 2009 – via BBC.
- ^Rogers SM, Matheson T, Despland E, Dodgson T, Burrows M, Simpson SJ (November 2003). "Mechanosensory-induced behavioural gregarization in the desert locust Schistocerca gregaria". J. Exp. Biol. 206 (Pt 22): 3991–4002. Bibcode:2003JExpB.206.3991R. doi:10.1242/jeb.00648. PMID 14555739.
- ^ Stevenson, PA (2009). „Der Schlüssel zur Büchse der Pandora“. Science . 323 ( 5914): 594–595 . doi : 10.1126/science.1169280 . PMID 19179520. S2CID 39306643 .
- ^ Die Blockierung des „Glückshormons“ könnte Heuschreckenplagen verhindern , New Scientist , 29.01.2009, abgerufen am 31.01.2009
- ^ Moshe Guershon; Amir Ayali (Mai 2012). „Angeborenes Phasenverhalten bei der Wüstenheuschrecke Schistocerca gregaria “ . Insect Science . 19 (6): 649–656 . Bibcode : 2012InsSc..19..649G . doi : 10.1111/j.1744-7917.2012.01518.x . S2CID 83412818 .
- Yates , C. A.; Erban, R.; Escudero, C.; Couzin, I. D.; Buhl, J.; Kevrekidis, I. G.; Maini, P. K.; Sumpter, D. J. (2009). „Inhärentes Rauschen kann die Kohärenz kollektiver Schwarmbewegungen fördern“ . Proc. Natl. Acad. Sci. USA . 106 (14): 5464–9 . Bibcode : 2009PNAS..106.5464Y . doi : 10.1073 / pnas.0811195106 . PMC 2667078. PMID 19336580 .
- ^ Pyle, Robert Michael, „National Audubon Society Field Guide to North American Butterflies“, S. 712–713, Alfred A. Knopf, New York, ISBN 0-394-51914-0
- ^ „Monarch, Danaus plexippus“ . Abgerufen am 27. August 2008 .
{{cite web}}CS1-Wartung: Veralteter Archivierungsdienst ( Link ) - ^ Gugliotta, Guy (2003): Schmetterlinge folgen ihrer inneren Uhr und der Sonne – Wissenschaftler beleuchten die Wanderung der Monarchfalter. Archiviert am 5. März 2006 im Internet Archive . Washington Post , 23. Mai 2003, Seite A03. Abgerufen am 7. Januar 2006.
- ^ Merlin C, Gegear RJ, Reppert SM (2009). „Antennale zirkadiane Uhren koordinieren die Sonnenkompassorientierung bei wandernden Monarchfaltern“ . Science . 325 ( 5948): 1700–1704 . Bibcode : 2009Sci...325.1700M . doi : 10.1126/science.1176221 . PMC 2754321. PMID 19779201 .
- ^ Kyriacou CP (2009). „Unraveling Traveling“. Science . 325 (5948): 1629–1630 . doi : 10.1126 / science.1178935 . hdl : 2381/17774 . PMID 19779177. S2CID 206522416 .
- ^ Nagy, M; Akos Zs, Biro D; Vicsek, T (2010). „Hierarchische Gruppendynamik in Taubenschwärmen“ (PDF) . Natur . 464 (7290): 890–893 . arXiv : 1010.5394 . Bibcode : 2010Natur.464..890N . doi : 10.1038/nature08891 . PMID 20376149 . S2CID 4430488 . Archiviert vom Original (PDF) am 6. Juli 2010. Ergänzendes PDF
- ^ Sekercioglu, CH (2007). „Naturschutzökologie: Fläche ist wichtiger als Mobilität beim Aussterben von Vögeln in Fragmenten“ . Current Biology . 17 (8): R283– R286. Bibcode : 2007CBio...17.R283S . doi : 10.1016/j.cub.2007.02.019 . PMID 17437705. S2CID 744140 .
- ^ Reduzierung des Luftwiderstands durch Formationsflug. Flugzeuge in vogelähnlichen Formationen könnten die Reichweite deutlich erhöhen ; Defense Technical Information Center; April 2002; abgerufen am 27. Februar 2008
- ^ Hummel D.; Beukenberg M. (1989). „Aerodynamische Interferenzeffekte beim Formationsflug von Vogeln“. J. Ornithol . 130 (1): 15– 24. Bibcode : 1989JOrn..130...15H . doi : 10.1007/BF01647158 . S2CID 823269 .
- ^ Cutts, CJ & JR Speakman (1994). „Energieeinsparungen beim Formationsflug von Kurzschnabelgänsen“ (PDF) . J. Exp. Biol . 189 (1): 251–261 . Bibcode : 1994JExpB.189..251C . doi : 10.1242/jeb.189.1.251 . PMID 9317742 .
- ^ Newton, I. (2008). Die Migrationsökologie der Vögel . Elsevier. ISBN 978-0-12-517367-4Die
- ^ Pitcher et al. 1982.
- ^ Pitcher TJ und Parish JK (1993) „Funktionen des Schwarmverhaltens bei Teleostiern“ In: Pitcher TJ (Hrsg.) Verhalten von Teleostiern . Chapman and Hall, New York, S. 363–440
- ^ Hoare DJ, Krause J, Peuhkuri N und Godin JGJ (2000) Körpergröße und Schwarmverhalten bei Fischen Journal of Fish Biology, 57(6) 1351-1366.
- ^ Snekser JL, Ruhl N, Bauer K, McRobert SP (2010). „Der Einfluss von Geschlecht und Phänotyp auf das Schwarmverhalten von Zebrafischen“ (PDF) . International Journal of Comparative Psychology . 23 : 70–81 . doi : 10.46867/IJCP.2010.23.01.04 . Archiviert vom Original (PDF) am 25. Juli 2011.
- ^ Engeszer RE, Ryan MJ, Parichy DM (2004). „Erlernte soziale Präferenzen bei Zebrafischen“ (PDF) . Current Biology . 14 (10): 881–884 . Bibcode : 2004CBio...14..881E . doi : 10.1016 / j.cub.2004.04.042 . PMID 15186744. S2CID 18741014 .
- ^ Reebs, SG (2000). „Kann eine Minderheit informierter Führungskräfte die Nahrungssuchbewegungen eines Fischschwarms bestimmen?“ Animal Behaviour . 59 (2): 403–9 . Bibcode : 2000AnBeh..59..403R . doi : 10.1006 / anbe.1999.1314 . PMID 10675263. S2CID 4945309 .
- ^ Radakov DV (1973) Schulbildung in der Ökologie der Fische. Israelisches Programm für wissenschaftliche Übersetzung, übersetzt von Mill H. Halsted Press, New York. ISBN 978-0-7065-1351-6
- ^ Fotograf: Mark van Coller
- ^ Hamner, WM; Hamner, PP; Strand, SW; Gilmer, RW (1983). „Verhalten des Antarktischen Krills, Euphausia superba : Chemorezeption, Nahrungsaufnahme, Schwarmbildung und Häutung“". Science . 220 (4595): 433– 5. Bibcode : 1983Sci...220..433H . doi : 10.1126/science.220.4595.433 . PMID 17831417 . S2CID 22161686 .
- ^ U. Kils; P. Marshall (1995). „Der Krill, wie er schwimmt und frisst – neue Einsichten mit neuen Methoden “ . In I. Hempel; G. Hempel (Hrsg.). Biologie der Polarmeere – Erlebnisse und Ergebnisse . Fischer Verlag . S. 201–210 . ISBN 978-3-334-60950-7Die
- ^ R. Piper (2007). Außergewöhnliche Tiere: Eine Enzyklopädie kurioser und ungewöhnlicher Tiere . Greenwood Press. ISBN 978-0-313-33922-6Die
- ^ Hoare, Ben (2009). Tierwanderung. London: Natural History Museum. S. 107. ISBN 978-0-565-09243-6Die
- ^ a b c Hoare, Ben (2009). Tierwanderung. London: Natural History Museum. S. 107. ISBN 978-0-565-09243-6
- ^ J. S. Jaffe, M. D. Ohmann, A. de Robertis (1999). „Sonar-Schätzungen der Tagesaktivität von Euphausia pacifica im Saanich Inlet“ (PDF) . Canadian Journal of Fisheries and Aquatic Sciences . 56 (11): 2000–10 . doi : 10.1139/cjfas-56-11-2000 . S2CID 228567512. Archiviert vom Original (PDF) am 20. Juli 2011.
- ^ Geraint A. Tarling & Magnus L. Johnson (2006). „Sättigung gibt Krill dieses sinkende Gefühl“ . Current Biology . 16 (3): 83–4 . Bibcode : 2006CBio...16..R83T . doi : 10.1016/j.cub.2006.01.044 . PMID 16461267 .
- ^ Howard, D.: „ Krill “, S. 133–140 in Karl, HA et al. (Hrsg.): Beyond the Golden Gate – Oceanography, Geology, Biology, and Environmental Issues in the Gulf of the Farallones , USGS Circular 1198, 2001. URLs zuletzt abgerufen am 04.06.2010.
- ^ D. Howard. „Krill im Cordell Bank National Marine Sanctuary“ . NOAA . Abgerufen am 15. Juni 2005 .
- ^Gandomi, A.H.; Alavi, A.H. (2012). "Krill Herd Algorithm: A New Bio-Inspired Optimization Algorithm". Communications in Nonlinear Science and Numerical Simulation. 17 (12): 4831–4845. Bibcode:2012CNSNS..17.4831G. doi:10.1016/j.cnsns.2012.05.010.
- ^Hamner, WM; Carleton, JH (1979). "Copepod swarms: Attributes and role in coral reef ecosystems". Limnol. Oceanogr. 24 (1): 1–14. Bibcode:1979LimOc..24....1H. doi:10.4319/lo.1979.24.1.0001.
- ^Johannes Dürbaum & Thorsten Künnemann (5 November 1997). "Biology of Copepods: An Introduction". Carl von Ossietzky University of Oldenburg. Archived from the original on 26 May 2010. Retrieved 8 December 2009.
- ^Lindsey R and Scott M (2010) What are phytoplanktonNASA Earth Observatory.
- ^Harmful algal blooms in the Great LakesArchived 2010-06-16 at the Wayback Machine 2009, NOAA, Center of Excellence for Great Lakes and Human Health.
- ^Darwin, Erasmus (1 January 1800). Phytologia: Or, The Philosophy of Agriculture and Gardening. With the Theory of Draining Morasses and with an Improved Construction of the Drill Plough. P. Byrne.
- ^Ciszak, Marzena; Comparini, Diego; Mazzolai, Barbara; Baluska, Frantisek; Arecchi, F. Tito; Vicsek, Tamás; Mancuso, Stefano (17 January 2012). "Swarming Behavior in Plant Roots". PLOS ONE. 7 (1) e29759. Bibcode:2012PLoSO...729759C. doi:10.1371/journal.pone.0029759. ISSN 1932-6203. PMC 3260168. PMID 22272246.
- ^Baluška, František; Mancuso, Stefano; Volkmann, Dieter; Barlow, Peter W. (1 July 2010). "Root apex transition zone: a signalling–response nexus in the root". Trends in Plant Science. 15 (7): 402–408. Bibcode:2010TPS....15..402B. doi:10.1016/j.tplants.2010.04.007. PMID 20621671.
- ^J., Trewavas, A. (2014). Plant behaviour and intelligence. Oxford university press. ISBN 978-0-19-953954-3. OCLC 961862730.
{{cite book}}: CS1 Wartung: Mehrere Namen: Autorenliste ( Link ) - ^Reichenbach H (2001). "Myxobacteria, producers of novel bioactive substances". J Ind Microbiol Biotechnol. 27 (3): 149–56. Bibcode:2001JIMB...27..149R. doi:10.1038/sj.jim.7000025. PMID 11780785. S2CID 34964313.
- ^Farkas I, Helbing D, Vicsek T (2002). "Mexican waves in an excitable medium"(PDF). Nature. 419 (6903): 131–132. arXiv:cond-mat/0210073. Bibcode:2002Natur.419..131F. doi:10.1038/419131a. PMID 12226653. S2CID 4309609. Archived from the original(PDF) on 10 July 2007.
- ^Neda Z, Ravasz E, Brechet Y, Vicsek T, Barabasi AL (2002). "Physics of Rhythmic Applause"(PDF). Physical Review E. 61 (6): 6987–6992. arXiv:cond-mat/0006423. Bibcode:2000PhRvE..61.6987N. doi:10.1103/physreve.61.6987. PMID 11088392. S2CID 14135891. Archived from the original(PDF) on 11 June 2011.
- ^Helbing, D; Keltsch, J; Molnar, P (1997). "Modelling the evolution of human trail systems". Nature. 388 (6637): 47–50. arXiv:cond-mat/9805158. Bibcode:1997Natur.388...47H. doi:10.1038/40353. PMID 9214501. S2CID 4364517.
- ^"http://psychcentral.com/news/2008/02/15/herd-mentality-explained/1922.htmlArchived 29 November 2014 at the Wayback Machine". Retrieved on October 31st 2008.
- ^"Danger in numbers during Haj". The National. 6 September 2009.
{{cite web}}CS1-Wartung: Veralteter Archivierungsdienst ( Link ) - ^ Couzin ID, Krause J (2003). Selbstorganisation und kollektives Verhalten bei Wirbeltieren (PDF) . Advances in the Study of Behavior. Band 32. S. 1–75 . doi : 10.1016/S0065-3454(03)01001-5 . ISBN 978-0-12-004532-7Archiviert vom Original (PDF) am 13. März 2012. Abgerufen am 14. April 2011 .
- ^ Gabbai, JME (2005). Komplexität und die Luft- und Raumfahrtindustrie: Emergenz verstehen durch die Verknüpfung von Struktur und Leistung mithilfe von Multiagentensystemen (Dissertation). Manchester: Dissertation der Universität Manchester. Archiviert vom Original am 19. Dezember 2014. Abgerufen am 11. Juli 2009 .
- ^ Livermore R (2008) „Ein Multiagentensystemansatz für eine Simulationsstudie zum Vergleich der Leistungsfähigkeit des Flugzeugeinsteigens mit vorab zugewiesenen Sitzplätzen und Free-for-All-Strategien“ Archiviert am 13. August 2011 in der Wayback Machine Open University , Technischer Bericht Nr. 2008/25.
- ^ „Flugzeuge, Züge und Ameisenhügel: Informatiker simulieren die Aktivität von Ameisen, um Flugverspätungen zu reduzieren“ Archiviert am 24.11.2010 in der Wayback Machine Science Daily , 1. April 2008.
- ^ Burd, Martin; N. Aranwela (Februar 2003). „Frontale Begegnungsraten und Laufgeschwindigkeit von Sammlerinnen im Verkehr von Blattschneiderameisen“. Insectes Sociaux . 50 (1): 3–8 . Bibcode : 2003InSoc..50....3B . doi : 10.1007/s000400300001 . S2CID 23876486 .
- ^ Ribeiro, Pedro; André Frazão Helene; Gilberto Xavier; Carlos Navas; Fernando Leite Ribeiro (1. April 2009). Dornhaus, Anna (Hrsg.). „Ameisen können lernen, auf Einbahnstraßen nach Futter zu suchen“ . PLUS EINS . 4 (4) e5024. Bibcode : 2009PLoSO...4.5024R . doi : 10.1371/journal.pone.0005024 . PMC 2659768 . PMID 19337369 .
- ^ John, Alexander; Andreas Schadschneider; Debashish Chowdhury; Katsuhiro Nishinari (März 2008). „Characteristics of amt-inspired traffic flow“. Swarm Intelligence . 2 (1): 25–41 . arXiv : 0903.1434 . doi : 10.1007/s11721-008-0010-8 . S2CID 18350336 .
- Sind wir bald da? Autofahrer könnten sich von Ameisen einiges abschauen. The Economist , 10. Juli 2009.
- ^ Helbing, Dirk; Farkas, Illinois; Vicsek, Tamás (2000). „Simulation dynamischer Merkmale der Fluchtpanik“. Natur . 407 (6803): 487–490 . arXiv : cond-mat/0009448 . Bibcode : 2000Natur.407..487H . doi : 10.1038/35035023 . PMID 11028994 . S2CID 310346 .
- ^ „Die Regale stürmen: Wie Geschäfte die Herdenmentalität der Menschen ausnutzen können, um den Umsatz zu steigern?“. The Economist . 11. November 2006. S. 90.
- ^ a b Kushleyev, Alex; Mellinger, Daniel; Powers, Caitlin; Kumar, Vijay (2013). „Towards a swarm of agile micro quadrotors“. Autonomous Robots . 35 (4): 287–300 . Bibcode : 2013AuRob..35..287K . doi : 10.1007/s10514-013-9349-9 . S2CID 18340816 .
- ^ Bouffanais, Roland (2016). Entwurf und Steuerung der Schwarmdynamik . SpringerBriefs in Complexity (1. Aufl.). Springer. doi : 10.1007/978-981-287-751-2 . ISBN 978-981-287-750-5Die
- ^ „Forschungsgruppe für selbstorganisierende Systeme“ . Archiviert vom Original am 26. Oktober 2014.
- ^ „Centibots 100-Robot Collaborative Reconnaissance Project“ . ActivMedia Robotics. Archiviert vom Original am 14. Juli 2011.
- ^ „Open-Source-Mikroroboterprojekt“ . Abgerufen am 28. Oktober 2007 .
- ^ „Swarm“ . iRobot Corporation. Archiviert vom Original am 27. September 2007. Abgerufen am 28. Oktober 2007 .
- ^ Knapp, Louise (21. Dezember 2000). „Schau, hoch in den Himmel: Robofly“ . Wired . Abgerufen am 25. September 2008 .
- ^ Saska, Martin; Jan, Vakula; Libor, Preucil (2014). Schwärme von Mikro-Luftfahrzeugen, stabilisiert durch visuelle relative Lokalisierung . IEEE International Conference on Robotics and Automation (ICRA).
- ^ Saska, Martin; Vonasek, Vojtech; Krajnik, Tomas; Preucil, Libor (2014). „Koordination und Navigation heterogener MAV-UGV-Formationen mittels eines Falkenaugen-ähnlichen Ansatzes unter einem modellprädiktiven Regelungsschema“ (PDF) . International Journal of Robotics Research . 33 (10): 1393–1412 . doi : 10.1177/0278364914530482 . S2CID 1195374 .
- ^ Saska, Martin; Vonasek, Vojtech; Krajnik, Tomas; Preucil, Libor (2012). Koordination und Navigation heterogener UAV-UGV-Teams, lokalisiert durch einen Hawk-Eye-Ansatz . IEEE/RSJ Internationale Konferenz über intelligente Roboter und Systeme (IROS).
- ^ Ji, Fengtong; Jin, Dongdong; Wang, Ben; Zhang, Li (23. Juni 2020). „Lichtgetriebenes Schweben eines magnetischen Mikroschwarms in einer Flüssigkeit“. ACS Nano . 14 (6): 6990–6998 . Bibcode : 2020ACSNa..14.6990J . doi : 10.1021 / acsnano.0c01464 . ISSN 1936-0851 . PMID 32463226. S2CID 218976382 .
- ^ Hughes, Robin (22. Februar 2007), Barracuda Tornado , abgerufen am 7. Februar 2022
- Mou , Fangzhi; Li, Xiaofeng; Xie, Qi; Zhang, Jianhua; Xiong, Kang; Xu, Leilei; Guan, Jianguo (20. Dezember 2019). „Aktive Mikromotorsysteme aus passiven Partikeln mit biomimetischen Räuber-Beute-Interaktionen“ . ACS Nano . 14 (1): 406–414 . doi : 10.1021/acsnano.9b05996 . ISSN 1936-0851 . PMID 31860277. S2CID 209435036 .
- ^ Yu, Jiangfan; Wang, Ben; Du, Xingzhou; Wang, Qianqian; Zhang, Li (21. August 2018). „Ultra-extensible ribbon-like magnetic microswarm“ . Nature Communications . 9 (1): 3260. Bibcode : 2018NatCo...9.3260Y . doi : 10.1038/ s41467-018-05749-6 . ISSN 2041-1723 . PMC 6104072. PMID 30131487 .
- ^ Edwards, Sean J. A. (2000). Swarming on the Battlefield: Past, Present, and Future . Rand Monograph MR-1100. Rand Corporation. ISBN 978-0-8330-2779-5Die
- ^ Die US-Marine könnte Feinde mit Roboterbooten "schwarm" , CNN , 13. Oktober 2014.
- ^ „Tauchen und Entdecken: Wissenschaftliche Expedition 10: Antarktis“ . Abgerufen am 3. September 2008 .
- ^ Crowd-Modellierung: Die Simulation des Verhaltens von Menschenmengen oder Tierschwärmen hat sowohl triviale als auch wichtige Anwendungsgebiete. The Economist , 5. März 2009.
- ^ Fisher, Len (2009) Der perfekte Schwarm: Die Wissenschaft der Komplexität im Alltag. Seite 57. Basic Books. ISBN 978-0-465-01884-0
- ^ Woodford, Riley. „Mythos Lemming-Selbstmord: Disney-Film fälscht Verhalten“ . Archiviert vom Original am 3. Januar 2010.
- ^ Der Rotbauchpiranha ist eigentlich gelb. New York Times , 24. Mai 2005.
Quellen
- Blum C und Merkle D (2008) Schwarmintelligenz: Einführung und Anwendungen. Springer. ISBN 978-3-540-74088-9Die
- Camazine S, Deneubourg JL, Franks NR , Sneyd J, Theraulaz G und Bonabeau E (2003) Selbstorganisation in biologischen Systemen . Princeton University Press. ISBN 978-0-691-11624-2Die
- Fisher L (2009) Der perfekte Schwarm: Die Wissenschaft der Komplexität im Alltag. Basic Books. ISBN 978-0-465-01884-0Die
- Kennedy JF, Kennedy J, Eberhart RC und Shi Y (2001) Schwarmintelligenz. Morgan Kaufmann. ISBN 978-1-55860-595-4Die
- Krause, J. (2005). Leben in Gruppen. Oxford University Press. ISBN 978-0-19-850818-2
- Lim CP, Jain LC und Dehuri S (2009) Innovationen in der Schwarmintelligenz. Springer. ISBN 978-3-642-04224-9Die
- Miller, Peter (2010) Der intelligente Schwarm: Wie das Verständnis von Herden, Schulen und Kolonien unsere Kommunikation, Entscheidungsfindung und Effektivität verbessern kann. Penguin, ISBN 978-1-58333-390-7
- Nedjah N und Mourelle LdM (2006) Schwarmintelligente Systeme . Springer. ISBN 978-3-540-33868-0Die
- Sumpter, David JT (2010) Kollektives Tierverhalten. Princeton University Press. ISBN 978-0-691-14843-4Die
- Vicsek A, Zafeiris A (2012). „Sammelbewegung“. Physikberichte . 517 ( 3–4 ): 71–140 . arXiv : 1010.5017 . Bibcode : 2012PhR...517...71V . doi : 10.1016/j.physrep.2012.03.004 . S2CID 119109873 .


