
Lemuren wurden 1758 von Carl von Linné erstmals klassifiziert , und ihre Taxonomie ist bis heute umstritten. Je nach Definition des Begriffs „Art“ werden etwa 70 bis 100 Arten und Unterarten anerkannt. Da Lemuren auf Madagaskar eine eigenständige Evolution durchlaufen haben , haben sie sich diversifiziert und viele ökologische Nischen besetzt , die normalerweise von anderen Säugetieren eingenommen werden. Sie zählen zu den kleinsten Primaten der Welt und gehörten einst zu den größten. Seit der Ankunft des Menschen vor etwa 2.000 Jahren ist ihr Lebensraum auf 10 % der Insel, etwa 60.000 Quadratkilometer, beschränkt, und viele Arten sind vom Aussterben bedroht . Die Sorgen um den Schutz der Lemuren haben sich auf ihre Taxonomie ausgewirkt, da eigenständige Arten im Vergleich zu Unterarten mehr Aufmerksamkeit im Naturschutz erhalten.
Die Verwandtschaft zwischen dem Fingertier und den übrigen Lemuren hatte den größten Einfluss auf die Lemuren-Taxonomie auf Familienebene und darüber hinaus. Genetische Analysen dieser Verwandtschaft haben zudem die Lemuren- Phylogenie aufgeklärt und stützen die Hypothese, dass Lemuren durch Treibgut nach Madagaskar gelangten. Trotz weitgehender Übereinstimmung in der Phylogenie ist die Taxonomie weiterhin Gegenstand von Diskussionen. Auf Gattungsebene ist die Taxonomie seit 1931 relativ stabil, jedoch wurden seither zahlreiche weitere Gattungen anerkannt.
Seit den 1990er Jahren hat die Zahl der anerkannten Lemurenarten und -unterarten durch die Entdeckung neuer Arten, die Erhebung bestehender Unterarten in den Status eigenständiger Arten und die Anerkennung neuer Arten innerhalb zuvor bekannter Populationen, die nicht einmal als eigenständige Unterarten galten, stark zugenommen. Die aktuell lebenden Lemurenarten sind in fünf Familien und 15 Gattungen unterteilt. Würde man die ausgestorbenen subfossilen Lemuren mit einbeziehen, kämen drei Familien, acht Gattungen und 17 Arten hinzu. Der jüngste Anstieg der Artenzahlen ist sowohl auf verbesserte genetische Analysen als auch auf verstärkte Naturschutzbemühungen zurückzuführen, die den Schutz isolierter und eigenständiger Lemurenpopulationen fördern. Nicht alle Wissenschaftler unterstützen diese taxonomischen Änderungen; einige bevorzugen stattdessen eine Schätzung von 50 lebenden Arten.
Hintergrund

Seit ihrer Ankunft auf Madagaskar, einer biogeografisch isolierten Insel mit einer einzigartigen Säugetierfauna , haben sich Lemuren sowohl in ihrem Verhalten als auch in ihrer Morphologie stark diversifiziert. Ihre Vielfalt ist vergleichbar mit der der Affen und Menschenaffen im Rest der Welt, insbesondere wenn man die kürzlich ausgestorbenen subfossilen Lemuren mit einbezieht. [ 1 ] Von der nur 30 g leichten Madame-Berthe-Mausmaki , dem vermutlich kleinsten Primaten der Welt, [ 2 ] bis hin zum ausgestorbenen, 160–200 kg schweren Archaeoindris fontoynonti , dem größten bekannten Halbaffen , [ 3 ] [ 4 ] [ 5 ] entwickelten Lemuren vielfältige Fortbewegungsarten, unterschiedliche Grade sozialer Komplexität und einzigartige Anpassungen an das lokale Klima. Sie besetzten viele ökologische Nischen, die normalerweise von Affen , Eichhörnchen , Spechten und großen Weidetieren eingenommen wurden . [ 6 ] [ 7 ] Neben der unglaublichen Vielfalt zwischen den Lemurenfamilien gab es auch eine große Diversifizierung innerhalb der eng verwandten Lemurenarten. [ 1 ]
Die Ankunft des Menschen auf der Insel vor 1.500 bis 2.000 Jahren hatte verheerende Folgen, nicht nur für die Größe der Lemurenpopulationen, sondern auch für deren Artenvielfalt. [ 7 ] Durch Lebensraumzerstörung und Jagd sind mindestens 17 Arten und 8 Gattungen ausgestorben, und viele weitere sind bedroht. [ 8 ] Einst besiedelten Lemuren die gesamte Insel und lebten in einer Vielzahl von Lebensräumen, darunter trockene Laubwälder , Tieflandwälder , Dornensträucher , subhumide Wälder , Bergwälder und Mangroven . Heute ist ihr Verbreitungsgebiet auf 10 % der Insel, also etwa 60.000 km², beschränkt . [ 9 ] Die meisten der verbliebenen Wälder und Lemuren leben am Rand der Insel. Das Zentrum der Insel, die Hauts-Plateaux , wurde von den ersten Siedlern durch Brandrodung , lokal als Tavy bekannt, in Reisfelder und Grasland umgewandelt . Mit der fortschreitenden Bodenerosion kam der zyklische Waldwachstums- und Brandzyklus zum Erliegen, da der Wald allmählich nicht mehr nachwuchs. [ 10 ] Im Jahr 2008 waren 41 % aller Lemurenarten vom Aussterben bedroht, während 42 % auf der Roten Liste der IUCN als „ Datenmangel “ eingestuft wurden. [ 11 ]
Überblick über die taxonomische und phylogenetische Klassifizierung
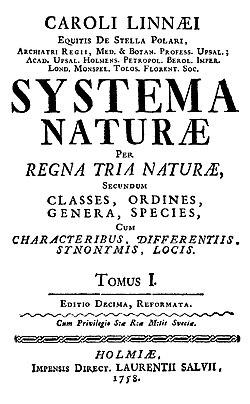
Im ersten Band der 10. Auflage von Systema Naturae (1758) schuf Carl von Linné , der Begründer der modernen binären Nomenklatur , die Gattung Lemur mit drei Arten: Lemur tardigradus (der Rote Schlanklori , heute bekannt als Loris tardigradus ), Lemur catta (der Katta ) und Lemur volans (der Philippinen-Gleitflieger , heute bekannt als Cynocephalus volans ). [ 12 ] Obwohl der Begriff „Lemur“ ursprünglich für Loris gedacht war , wurde er bald auf die endemischen Primaten Madagaskars angewendet, die seither als „Lemuren“ bekannt sind. [ 13 ] [ 14 ] Der Name leitet sich vom lateinischen Begriff „lemures “ ab, der in der römischen Mythologie die „Geister der Toten“ bezeichnet . [ 1 ] Laut Linnaeus' eigener Erklärung wurde der Name aufgrund der nächtlichen Aktivität und der langsamen Bewegungen des Schlankloris gewählt. [ 14 ] Da er mit den Werken Vergils und Ovids vertraut war und eine Analogie sah, die zu seinem Benennungsschema passte, übernahm Linnaeus den Begriff „Lemur“ für diese nachtaktiven Primaten. [ 15 ] Es wurde jedoch häufig fälschlicherweise angenommen, Linnaeus habe sich auf das geisterhafte Aussehen, die reflektierenden Augen und die geisterhaften Rufe der Lemuren bezogen. [ 14 ] Es wurde auch spekuliert, dass Linnaeus möglicherweise wusste, dass einige Madagassen Legenden hatten , wonach Lemuren die Seelen ihrer Vorfahren seien, [ 16 ] aber dies ist unwahrscheinlich, da der Name für Schlankloris aus Indien gewählt wurde. [ 14 ]
Seit der ersten taxonomischen Klassifizierung der Lemuren wurden zahlreiche Änderungen an deren Taxonomie vorgenommen. Innerhalb der Primatenordnung galten Spitzhörnchen (Ordnung Scandentia) bis in die 1980er Jahre als basale Halbaffen – enge Verwandte der Lemuren. [ 17 ] Gleitflieger , fälschlicherweise auch als „Fluglemuren“ bezeichnet, wurden einst als lemurenartige Primaten betrachtet, später jedoch als enge Verwandte der Fledermäuse [ 18 ] und in jüngerer Zeit als enge Verwandte der Primaten innerhalb ihrer eigenen Ordnung, den Dermoptera, neu klassifiziert. [ 19 ] Primaten bilden zusammen mit ihren nächsten Verwandten, den Spitzhörnchen, Gleitfliegern und den längst ausgestorbenen Plesiadapiformes , die taxonomisch nicht klassifizierte Klade Euarchonta innerhalb der Euarchontoglires . Loris , von denen einige ursprünglich von Carl von Linné in die Gattung Lemur eingeordnet wurden , werden inzwischen entweder in eine eigene Unterordnung (Lorisiformes) oder in eine eigene Überfamilie (Lorisoidea) innerhalb der Lemuriformes gestellt. [ 20 ] [ 21 ]
Für die Primatenfauna Madagaskars entstand im 19. Jahrhundert eine Vielzahl taxonomischer Nomenklaturen, maßgeblich dank der Arbeit von Museumssystematikern wie Albert Günther und John Edward Gray sowie von Naturforschern und Entdeckern wie Alfred Grandidier . [ 22 ] [ 23 ] Erst Jahrzehnte später, im Jahr 1931, wurde diese Nomenklatur durch Ernst Schwarz standardisiert. [ 24 ] [ 25 ] In den 1990er Jahren erlebte die Nomenklatur dann eine neue Welle taxonomischer Veränderungen. [ 26 ]
Supragenerische Klassifizierung
Obwohl Carl von Linné die ersten von ihm klassifizierten „Lemuren“ ursprünglich der Ordnung Primates zuordnete, [ 27 ] wurden Lemuren und andere nicht-menschliche Primaten später von den Menschen getrennt, indem Johann Friedrich Blumenbach sie 1775 in die Ordnung Quadrumana einordnete. ( Er ordnete auch die Menschen der Ordnung Bimana zu.) [ 28 ] Diese Ansicht wurde von anderen berühmten Naturforschern und Zoologen der damaligen Zeit vertreten, darunter Étienne Geoffroy Saint-Hilaire (der die Lemuren 1812 erstmals in die Ordnung Strepsirrhini einordnete), [ 29 ] Georges Cuvier , [ 30 ] und (anfangs) John Edward Gray. [ 31 ] Um 1862 argumentierte der vergleichende Anatom William Henry Flower gegen die Einordnung der Feuchtnasenaffen (Strepsirrhini) aus der Ordnung der Quadrumana in die Ordnung der Insektenfresser ( Insectivora , eine heute nicht mehr gebräuchliche biologische Gruppierung). Er behauptete, ihr Gehirn weise Merkmale auf, die einen Übergang zwischen anderen Primaten und „niederen“ Säugetieren darstellten. [ 32 ] 1863 stellte Thomas Henry Huxley die Ordnung der Primaten wieder her und schloss Menschen, andere Menschenaffen, Affen, Lemuren und sogar Gleitflieger ein. [ 33 ] Der Widerstand hielt jedoch an, da viele Spezialisten argumentierten, Lemuren (oder „Halbaffen“) sollten in eine eigene Ordnung eingeordnet werden. 1873 entkräftete der englische vergleichende Anatom St. George Jackson Mivart diese Argumente und definierte die Primaten anhand einer Liste anatomischer Merkmale. [ 34 ]
| Nächste Lemurenverwandte [ 35 ] [ 36 ] | ||||||||||||||||||||||||
|
Seit dem 19. Jahrhundert hat die Klassifizierung der Lemuren oberhalb der Gattungsebene viele Veränderungen erfahren. Frühe Taxonomen schlugen verschiedene Klassifikationen für Lemuren vor, trennten aber im Allgemeinen die Indriiden von den übrigen Lemuren und ordneten das Fingertier einer eigenen Hauptgruppe zu; einige klassifizierten die Zwerg- und Mausmakis zusammen mit den Galagos. [ 37 ] 1915 veröffentlichte William King Gregory eine Klassifikation [ 38 ] , die in den folgenden Jahrzehnten allgemein anerkannt blieb. Er fasste alle Lemuren in einer „Serie“ Lemuriformes zusammen und erkannte drei Familien an: Daubentoniidae, Indriidae und Lemuridae (einschließlich der heutigen Cheirogaleidae und Lepilemuridae). [ 37 ] George Gaylord Simpsons einflussreiche Klassifizierung der Säugetiere aus dem Jahr 1945 ordnete die Spitzhörnchen und den fossilen Anagale (beide heute nicht mehr zu den Primaten gezählt) den Lemuriformes zu und klassifizierte die fossilen Familien Plesiadapidae und Adapidae zusammen mit den meisten Lemuren in die Überfamilie Lemuroidea. [ 39 ]
Obwohl Spitzhörnchen, Plesiadapiden und ähnliche Arten heute nicht mehr als eng mit den Lemuren verwandt gelten, bestehen weiterhin Uneinigkeiten hinsichtlich der Klassifizierung der Lemuren und verwandter Gruppen. Dies führt zu unterschiedlichen Einteilungen der Unterordnungen und Überfamilien innerhalb der Strepsirrhini. In einer Taxonomie umfasst die Unterordnung Lemuriformes alle lebenden Strepsirrhini in zwei Überfamilien: Lemuroidea für alle Lemuren und Lorisoidea für die Lorisoiden ( Lorisiden und Galagos). [ 21 ] [ 40 ] Alternativ werden die Lorisoiden manchmal in eine eigene Unterordnung, Lorisiformes, eingeordnet, getrennt von den Lemuren. [ 41 ] Eine weitere, von Colin Groves veröffentlichte Klassifikation ordnet das Fingertier einer eigenen Unterordnung, Chiromyiformes, zu, während die übrigen Lemuren in Lemuriformes und die Lorisoiden in Lorisiformes eingeordnet werden. [ 20 ]
| 2 Infraordnungen [ 40 ] | 3 Infraordnungen [ 41 ] | 4 Infraordnungen [ 42 ] |
|---|---|---|
|
|
|
Die Klassifizierung verschiedener Lemurenarten hat besondere Debatten ausgelöst. Vor allem die Stellung des Fingertiers ist seit seiner Einführung in die westliche Wissenschaft im Jahr 1782 umstritten und war bis vor Kurzem Gegenstand von Diskussionen. [ 1 ] [ 37 ] [ 43 ] Richard Owen argumentierte 1863 gegen Darwins Theorie der natürlichen Selektion und behauptete, die besonderen Merkmale des Fingertiers, darunter seine ständig nachwachsenden Schneidezähne und sein einzigartiger, hochflexibler Mittelfinger, seien so perfekt an seine Rolle bei der Nahrungssuche angepasst, dass sie sich nicht allmählich durch natürliche Selektion entwickelt haben könnten. [ 44 ] In jüngerer Zeit hat die Stellung des Fingertiers Probleme für die Theorie der Besiedlung Madagaskars durch Primaten durch Treibgut aufgeworfen. Wenn diese Art keine monophyletische Gruppe mit den übrigen Lemuren bildet, müssten mehrere Besiedlungsereignisse stattgefunden haben, um das Vorkommen von Lemuren auf Madagaskar zu erklären. [ 1 ]

Bis Owen 1866 eine maßgebliche anatomische Studie veröffentlichte, waren sich frühe Naturforscher unsicher, ob das Fingertier (Gattung Daubentonia ) ein Primat , ein Nagetier oder ein Beuteltier war . [ 43 ] [ 45 ] [ 46 ] [ 47 ] Ende des 18. Jahrhunderts wurde das Fingertier beispielsweise der Eichhörnchengattung Sciurus zugeordnet . [ 48 ] Indem Owen die primatentypischen Merkmale, wie den postorbitalen Knochenstreifen , das stereoskopische Sehen und den opponierbaren Großzeh , gegenüber den nagetierartigen Zähnen hervorhob, wies er die Verwandtschaft des Fingertiers mit anderen Primaten nach. [ 43 ] [ 49 ] 1996 wies Ankel-Simons nach, dass Form und Anordnung der winzigen Milchschneidezähne des Fingertiers auf eine gemeinsame Abstammung dieser Gattung mit den Kammprimaten hindeuten . [ 50 ] Die Einordnung des Fingertiers innerhalb der Primaten blieb jedoch bis vor Kurzem problematisch. Der Karyotyp des Fingertiers unterscheidet sich deutlich von dem seiner nächsten Verwandten, den Loris und den übrigen Lemuren, mit einer diploiden Chromosomenzahl von 2n=30. [ 51 ] Aufgrund seiner Anatomie fanden Forscher Hinweise darauf, die Gattung Daubentonia als spezialisierte Indriiden , als Schwestergruppe aller Feuchtnasenaffen und als unbestimmtes Taxon innerhalb der Primaten zu klassifizieren. [ 52 ] 1931 bezeichnete Schwarz das Fingertier als einen Zweig der Indriidae und behauptete, alle Lemuren seien monophyletisch. [ 53 ] Reginald Innes Pocock hatte das Fingertier zuvor außerhalb der Lemuren eingeordnet. [ 54 ] Im selben Jahr ordneten Anthony und Coupin das Fingertier der Unterordnung Chiromyiformes zu, einer Schwestergruppe der übrigen Feuchtnasenaffen. Colin Groves bestätigte diese Klassifizierung 2005, da er nicht gänzlich davon überzeugt war, dass das Fingertier mit den übrigen madagassischen Lemuren eine Klade bildete. [ 55 ] Dies trotz molekularer Untersuchungen, die gezeigt hatten, dass die Daubentoniidae basal zu allen Lemuroidea sind. [ 56 ]
| Konkurrierende Lemuren-Phylogenien |
| There are two competing lemur phylogenies, one by Horvath et al. (top)[57] and one by Orlando et al. (bottom).[58] Note that Horvath et al. did not attempt to place the subfossil lemurs. |
Another interpretation of the aye-aye's origins has once again called into question the single origins of the lemurs. The aye-aye and a fossil strepsirrhine primate from Africa, Plesiopithecus, share similarities in the shape of the skull and the morphology of the lower jaw, which suggest that the latter could be an early relative of the aye-aye. However, the placement of an aye-aye ancestor in Africa would require multiple colonizations of Madagascar by strepsirrhine primates. Molecular tests may offer support, since they show that the aye-aye was the first to diverge in the lemur clade and that the other lemur families did not diverge until much later.[59][60]
Often classified with the galagos by early students, the cheirogaleids (dwarf and mouse lemurs) were placed with the other lemurs from Gregory's 1915 classification until the early 1970s, when several anthropologists proposed that they were more closely related to lorisoids, based on morphological data.[37][61] However, relevant genetic studies unanimously place cheirogaleids within the lemuroid clade and Groves himself, who had promoted the cheirogaleid-lorisoid relationship in a 1974 paper, by 2001 regarded the idea as refuted.[62][61]
Classifications in the first half of the 20th century divided lemurs into three families: Daubentoniidae, Indriidae, and Lemuridae, with the latter including the current Cheirogaleidae and Lepilemuridae.[37] Because of concerns that Lemuridae might not be monophyletic, the family was later split; in 1982 Tattersall separated the Cheirogaleidae for the dwarf lemurs, mouse lemurs and relatives, and the Lepilemuridae for the sportive lemurs and bamboo lemurs (including the greater bamboo lemur).[63] This classification is still used, except that the bamboo lemurs were moved back to Lemuridae.[64][42]
Von den 1970er bis zu den 1990er Jahren gab es Vermutungen, dass die Varis mit den Indriiden verwandt oder eine Schwestergruppe der Lemuridae und Indriidae sein könnten und dass die Bambuslemuren mit den Wiesellemuren verwandt seien [ 65 ] , doch keine dieser Ansichten wird durch die molekulare Phylogenie gestützt [ 57 ] . Sowohl den Wiesellemuren als auch den ausgestorbenen Koalalemuren (Megaladapidae) fehlen die oberen Schneidezähne im bleibenden Gebiss [ 66 ] [ 67 ] , und 1981 ordnete Groves beide der Familie Megaladapidae zu, die er 2005 in Lepilemuridae umbenannte, da dieser ältere Name Vorrang hat [ 68 ] . Genetische Untersuchungen belegen keine enge Verwandtschaft zwischen den Wiesellemuren und den Koalalemuren und positionieren die Koalalemuren stattdessen als Schwestergruppe der Lemuridae. Daher werden die beiden nun in getrennte Familien eingeordnet (Lepilemuridae für die Wieselmakis und Megaladapidae für die Koala-Makis). [ 69 ] [ 70 ] [ 71 ] Die Faultiermakis (Palaeopropithecidae) und Affenmakis (Archaeolemuridae) wurden noch 1982 als Unterfamilien innerhalb der Indriidae klassifiziert, [ 63 ] gelten aber heute als eigenständige Familien. [ 72 ]
Die Verwandtschaftsverhältnisse innerhalb der Lemurenfamilien sind problematisch und noch nicht endgültig geklärt. Es existieren zwei konkurrierende Stammbäume, die auf genetischen und molekularen Daten basieren. Ein Ansatz (Horvath et al .) untersucht eine größere Anzahl von Genen, jedoch bei weniger Arten. Dies führt dazu, dass die Lemuridae die Schwestergruppe der Lepilemuridae, Cheirogaleidae und Indriidae bilden. [ 57 ] Der andere Ansatz (Orlando et al .) untersucht weniger Gene, aber mehr Lemurenarten. Nach dieser Analyse bilden die Lepilemuridae die Schwestergruppe der Lemuridae, Cheirogaleidae und Indriidae. [ 58 ] Beide Stammbäume stimmen darin überein, dass die madagassischen Primaten monophyletisch sind und dass die Daubentoniidae (das Fingertier) basal innerhalb der Lemuren-Klade stehen, da sie sich deutlich früher als die anderen Familien abspalteten. [ 56 ] [ 57 ] [ 58 ] Allerdings erschweren zwei Probleme beide Ansätze. Erstens spalteten sich die vier engsten verwandten lebenden Lemurenfamilien innerhalb eines kurzen Zeitraums von etwa 10 Millionen Jahren ab, was es deutlich schwieriger macht, die Aufspaltungen anhand molekularer Daten zu erkennen. Zudem trennten sich diese Familien vor etwa 42 Millionen Jahren von ihrem letzten gemeinsamen Vorfahren; solch weit zurückliegende Aufspaltungen führen zu erheblichen Störungen bei molekularen Analysemethoden. [ 73 ]
Klassifizierung auf Gattungsebene
Die frühe Einteilung der Lemurenarten in Gattungen unterschied sich in vielerlei Hinsicht von der heutigen Taxonomie. So wurden beispielsweise die Gabelstreifenlemuren zunächst in die Gattung Lemur und dann zusammen mit den Mausmakis in die Gattung Microcebus eingeordnet , bevor sie in die eigene Gattung Phaner gestellt wurden [ 74 ] [ 75 ] [ 76 ] [ 77 ] . Charles Immanuel Forsyth Major spaltete die Artengruppe der Zwerglemuren (Cheirogaleus medius) in die separate Gattung Opolemur auf , was jedoch nicht anerkannt wurde [ 78 ] [ 77 ] . Die Taxonomie auf Gattungsebene wurde 1931 von Schwarz weitgehend stabilisiert [ 25 ] , doch einige spätere Änderungen haben sich durchgesetzt.
- Kattas , Varis und Braune Lemuren wurden aufgrund zahlreicher morphologischer Ähnlichkeiten einst in der Gattung Lemur zusammengefasst . So sind beispielsweise die Skelette von Kattas und Braunen Lemuren nahezu identisch. [ 79 ] Varis wurden jedoch 1962 der Gattung Varecia zugeordnet [ 80 ] , und aufgrund von Ähnlichkeiten zwischen Kattas und Bambuslemuren, insbesondere hinsichtlich molekularer Befunde und Ähnlichkeiten der Duftdrüsen, wurden die Braunen Lemuren 1988 in die Gattung Eulemur überführt. [ 79 ] [ 81 ] [ 82 ] Die Gattung Lemur ist heute monotypisch und umfasst nur noch den Katta.
- Im Jahr 2001 kam Colin Groves zu dem Schluss, dass der Große Bambuslemure trotz Ähnlichkeiten ausreichend von den Bambuslemuren der Gattung Hapalemur unterschieden sei , um eine eigene monotypische Gattung, Prolemur , zu verdienen. [ 83 ] [ 84 ] Dies steht im Gegensatz zu Schwarz' Widerspruch aus dem Jahr 1931 zu Pococks Entscheidung, Prolemur von Hapalemur zu trennen . [ 85 ]
- Ursprünglich der Gattung Microcebus ( Mausmakis ) zugeordnet, wurde der Riesenmausmaki 1985 aufgrund seiner größeren Körpergröße, morphologischer Unterschiede, Zahnmerkmale und seines Verhaltens in eine eigene Gattung, Mirza , überführt. [ 86 ] [ 87 ]
- Der Haarohr-Zwergmaki wurde 1875 zunächst der Gattung Cheirogaleus ( Zwergmakis ) zugeordnet und später als enger mit Microcebus verwandt befunden . Aufgrund seiner Zahn- und Schädelstruktur wurde er jedoch als so eigenständig angesehen, dass er in eine eigene Gattung, Allocebus, erhoben wurde . [ 86 ] [ 88 ]
- 1948 schlug der Paläontologe Charles Lamberton eine neue Untergattung für die Riesen-Varieder vor, Pachylemur , die zuvor der Gattung Lemur zugeordnet worden waren. Seit den 1960er Jahren gilt sie als eigenständige Gattung, obwohl die beiden ausgestorbenen Arten der Riesen-Varieder zeitweise zusammen mit ihren nächsten Verwandten unter Varecia zusammengefasst wurden . [ 89 ]
- Im Jahr 1990 wurde eine neue Gattung der Faultierlemuren , Babakotia, benannt. [ 90 ]
Klassifizierung auf Artenebene
Es herrscht weitgehende Uneinigkeit über Aspekte der Lemuren-Taxonomie auf Artenebene, insbesondere hinsichtlich des jüngsten Anstiegs der Anzahl anerkannter Arten. [ 91 ] [ 92 ] [ 93 ] Laut Russell Mittermeier , dem Präsidenten von Conservation International (CI), dem Taxonomen Colin Groves und anderen gibt es derzeit 101 anerkannte Arten oder Unterarten rezenter Lemuren, die in fünf Familien und 15 Gattungen unterteilt sind. [ 94 ] Andere Experten auf diesem Gebiet bezeichnen dies hingegen als mögliches Beispiel taxonomischer Inflation [ 95 ] und bevorzugen stattdessen eine Schätzung von mindestens 50 Arten. [ 92 ] Alle Seiten sind sich im Allgemeinen einig , dass die kürzlich ausgestorbenen subfossilen Lemuren in drei Familien , acht Gattungen und 17 Arten klassifiziert werden sollten . [ 96 ] [ 97 ]

In den letzten zwei Jahrzehnten hat sich die Anzahl der anerkannten Lemurenarten laut einigen Experten mehr als verdreifacht. 1994 wurden in der ersten Auflage des Feldführers „ Lemurs of Madagascar“ von Conservation International 32 verschiedene Arten benannt [ 98 ] , in der 2006 erschienenen zweiten Auflage waren es bereits 68 [ 99 ]. Im Dezember 2008 veröffentlichten Russell Mittermeier, Colin Groves und weitere Experten einen Artikel im „ International Journal of Primatology“, in dem sie 99 Arten und Unterarten klassifizierten [ 100 ] . Ende 2010 listete die dritte Auflage von „Lemurs of Madagascar“ 101 Taxa auf [ 101 ] . Die Anzahl der Lemurenarten dürfte in den kommenden Jahren weiter steigen, da Feldstudien sowie zytogenetische und molekulargenetische Forschungen, insbesondere an kryptischen Arten wie den Mausmakis, die visuell nicht zu unterscheiden sind, fortgesetzt werden [ 102 ] .
This threefold increase in less than two decades has not had universal support among taxonomists and lemur researchers. In many cases, classifications ultimately depends upon which species concept is used. Due to the critical condition that most Malagasy primate populations are in, taxonomists and conservationists sometimes favor splitting them into separate species to develop an effective strategy for the conservation of the full range of lemur diversity.[92][103] Implicitly, this means that full species status will help grant genetically distinct populations added environmental protection.[92]
The first large wave of new lemur species descriptions came in 2000, when Colin Groves split two species of dwarf lemur (Cheirogaleus) into seven species[104] while Rodin Rasoloarison and colleagues recognized seven species of mouse lemur in western Madagascar.[105] Then in 2001, Groves elevated the red ruffed lemur (Varecia rubra),[106][107] five subspecies of brown lemur (Eulemur albifrons, E. albocollaris, E. collaris, E. rufus and E. sanfordi),[108] and four subspecies of sifaka (Propithecus coquereli, P. deckenii, P. edwardsi, and P. perrieri) to full species status.[109] Additional elevations of all remaining subspecies within the Eulemur and Propithecus genera were made in the years that followed.[110][111] These and subsequent changes in taxonomy were largely due to a shift to the phylogenetic species concept,[112] and are not universally endorsed.[113]
Den mit Abstand größten Zuwachs an Arten (absolut gesehen) verzeichneten die Gattungen Microcebus und Lepilemur . Im Jahr 2006 wurden 15 neue Lepilemur -Arten beschrieben, drei davon im Februar [ 114 ] , eine im Juni [ 115 ] und elf im September [ 116 ] . Seither wurden drei weitere Arten beschrieben, von denen sich eine als identisch mit einer bereits beschriebenen Art erwies [ 117 ] . Genetische und morphologische Unterschiede deuten darauf hin, dass es sich um kryptische Arten handelt. Es besteht jedoch weiterhin Uneinigkeit darüber, ob diese den Status eigenständiger Arten verdienen oder als Unterarten bereits identifizierter „Kernarten“ betrachtet werden sollten [ 70 ] [ 118 ] .

Sowohl Braune Lemuren als auch Mausmakis wurden ursprünglich in wenige Arten unterteilt, entweder ohne unterscheidbare Unterarten (im Fall der Mausmakis) [ 119 ] oder mit mehreren unterscheidbaren Unterarten (im Fall der Braunen Lemuren) [ 120 ] . Da molekulare Untersuchungen auf eine weiter zurückliegende Aufspaltung beider Gattungen hindeuten, wurden diese Unterarten bzw. nicht unterscheidbaren Populationen in den Artenstatus erhoben. [ 119 ] [ 121 ]
In the case of mouse lemurs, the rise in species numbers has been only slightly less sudden and dramatic. Classified as one species by Ernst Schwarz in 1931 (excluding one, Coquerel's giant mouse lemur, that is no longer classified in Microcebus),[122] the genus was revised to contain two species, the gray mouse lemur (Microcebus murinus) and the brown mouse lemur (M. rufus), after an extensive field study in 1972 showed both living in sympatry in southeastern Madagascar.[123] At the time, the gray mouse lemur was known in the drier parts of the north, west, and south, while the brown mouse lemur inhabited the humid rainforest regions of the east. However, the species diversity and distribution are now known to be significantly more complex.[124] Revisions throughout the 1990s and 2000s identified numerous new species through genetic testing using mitochondrial DNA, demonstrating that the genus is represented by a multitude of cryptic species.[125][126][127][128] Many, but not all of these defined species have been supported by nuclear DNA tests.[129]
However, there are still concerns that species are being identified prematurely. Ian Tattersall, an anthropologist who recognized 42 species of lemur in 1982,[130] has expressed concern that the geographically organized variety in lemur populations is being recognized with full species status while the number of subspecies in lemur genera has virtually disappeared. He has argued that taxonomists are confusing differentiation and speciation, two processes that are often unrelated, while denying the role of microevolution in evolutionary processes.[91] Still other researchers who emphasize the framework of the "general lineage concept of species" contend that lineage divergence or differentiation demarcates the beginning of a new species.[131]
Neue Arten wurden aufgrund von Unterschieden in Morphologie , Karyotypen, Cytochrom- b- Sequenzen und anderen genetischen Tests sowie verschiedenen Kombinationen dieser Merkmale identifiziert. [ 132 ] Bei der Untersuchung von Kern-DNA (nDNA) zusammen mit mitochondrialer DNA (mtDNA) bei Mausmakis zeigte sich, dass einige Arten, wie beispielsweise der Claire-Mausmaki ( Microcebus mamiratra ), nicht von anderen, eng verwandten Arten zu unterscheiden waren. In solchen Fällen variierte die nDNA nicht, die mtDNA, die zur Definition der Art verwendet worden war, blieb jedoch weiterhin charakteristisch. Die Unterschiede zwischen den Ergebnissen der von beiden Elternteilen vererbten nDNA und der von der Mutter vererbten mtDNA wurden auf die Philopatrie der Weibchen zurückgeführt . Dabei bleiben die Weibchen in oder nahe dem Gebiet , in dem sie geboren wurden, während die Männchen abwandern. Da die isolierte Population, die als Claires Mausmaki bekannt ist, zwar eine eigene mtDNA, aber keine eigene nDNA aufweist, handelt es sich wahrscheinlich um eine Population, die von einer verwandten Gruppe von Weibchen abstammt, sich aber dennoch ausbreitet und mit benachbarten Populationen vermischt. [ 133 ]
Traditionell wird die Karyologie zur Bestimmung des Artstatus herangezogen. [ 51 ] So wurden beispielsweise im Jahr 2006 drei neue Arten von Wiesenmakis teilweise auf Grundlage von Karyotypen beschrieben. [ 114 ] Bei den bisher untersuchten Lemuren variiert die diploide Chromosomenzahl zwischen 2n = 20 und 2n = 66. Bei den Braunen Lemuren liegt die diploide Chromosomenzahl zwischen 2n = 44 und 2n = 60, während die Größe der einzelnen Chromosomen trotz starker morphologischer Ähnlichkeiten erheblich variiert. [ 134 ]
Manchmal werden Arten aufgrund geringfügiger Unterschiede in der Fellfärbung unterschieden . So wurden beispielsweise in einer mehrjährigen Studie im Beza-Mahafaly-Reservat im Süden Madagaskars drei deutlich gefärbte Mausmaki-Typen entdeckt. DNA-Tests ergaben jedoch, dass sie alle – entgegen der Annahme, es handele sich um verschiedene Arten – zu einer einzigen Art gehören, dem Rotgrauen Mausmaki ( Microcebus griseorufus ). [ 135 ] Aus diesem Grund sind weitere Forschungen notwendig, um die jüngsten Artentrennungen zu bestätigen oder zu widerlegen. Nur durch detaillierte Studien zu Morphologie, Ökologie, Verhalten und Genetik lässt sich die tatsächliche Anzahl der Lemurenarten bestimmen. [ 136 ]
| 1931 Schwarz [ 25 ] | 1982 Tattersall [ 130 ] | 1994 Mittermeier et al . [ 137 ] | 2005 Groves [ 42 ] | 2006 Mittermeier et al . [ 138 ] | 2010 Mittermeier et al . [ 94 ] | |||||||
|---|---|---|---|---|---|---|---|---|---|---|---|---|
| Gattung | Spezies | Unterart | Spezies | Unterart | Spezies | Unterart | Spezies | Unterart | Spezies | Unterart | Spezies | Unterart |
| Allocebus [ N 1 ] | – | – | 1 | 0 | 1 | 0 | 1 | 0 | 1 | 0 | 1 | 0 |
| Avahi | 1 | 2 | 1 | 2 | 2 | 0 | 3 | 0 | 4 | 0 | 9 | 0 |
| Cheirogaleus [ N 1 ] | 3 | 4 | 2 | 0 | 2 | 0 | 7 | 0 | 7 | 0 | 5 | 0 |
| Daubenton | 1 | 0 | 1 | 0 | 1 | 0 | 1 | 0 | 1 | 0 | 1 | 0 |
| Eulemur [ N 2 ] | – | – | – | – | 5 | 8 | 11 | 2 | 10 | 2 | 12 | 0 |
| Hapalemur [ N 3 ] | 2 | 2 | 2 | 3 | 3 | 3 | 4 | 2 | 5 | 0 | 5 | 3 |
| Indri | 1 | 0 | 1 | 0 | 1 | 0 | 1 | 2 | 1 | 0 | 1 | 0 |
| Lemur [ N 2 ] [ N 4 ] | 6 | 7 | 4 | 7 | 1 | 0 | 1 | 0 | 1 | 0 | 1 | 0 |
| Lepilemur | 2 | 0 | 1 | 6 | 7 | 0 | 8 | 0 | 8 | 0 | 26 | 0 |
| Microcebus [ N 5 ] | 2 | 2 | 2 | 0 | 3 | 0 | 8 | 0 | 12 | 0 | 18 | 0 |
| Mirza [ N 5 ] | – | – | 1 | 0 | 1 | 0 | 1 | 0 | 2 | 0 | 2 | 0 |
| Phaner | 1 | 0 | 1 | 0 | 1 | 4 | 4 | 0 | 4 | 0 | 4 | 0 |
| Prolemur [ N 3 ] | – | – | – | – | – | – | 1 | 0 | 1 | 0 | 1 | 0 |
| Propithecus | 2 | 9 | 2 | 9 | 3 | 8 | 7 | 4 | 9 | 0 | 9 | 0 |
| Varecia [ N 4 ] | – | – | 1 | 2 | 1 | 2 | 1 | 4 | 2 | 3 | 2 | 3 |
| Summen [ N 6 ] | 21 | 26 | 20 | 29 | 32 | 25 | 59 | 14 | 68 | 5 | 97 | 6 |
| 38 | 42 | 50 | 67 | 71 | 101 | |||||||
Anmerkungen
- ^ a b Im Jahr 1931 wurde Allocebus nicht als eigenständige Gattung anerkannt, sondern der Gattung Cheirogaleus zugeordnet .
- ^ a b In den Jahren 1931 und 1982 wurde Eulemur nicht als eigenständige Gattung anerkannt, sondern der Gattung Lemur zugeordnet .
- ^ a b Die Gattung Prolemur wurde erst 2001 unterschieden. Zuvor wurde der Große Bambuslemuren in die Gattung Hapalemur eingeordnet .
- ^ a b Im Jahr 1931 wurde Varecia nicht als eigenständige Gattung anerkannt, sondern der Gattung Lemur zugeordnet .
- ^ a b Im Jahr 1931 wurde Mirza nicht als eigenständige Gattung anerkannt, sondern der Gattung Microcebus zugeordnet .
- Die Gesamtzahl der Arten und Unterarten eines jeden Jahres entspricht nicht der Summe der Arten- und Unterartenzahlen, da jede Unterartengruppe bereits als eine Art zählt. Beispielsweise wurden 2010 drei Unterarten von Varecia variegata anerkannt: V. v. variegata , V. v. editorum und V. v. subcincta . Zusammen zählen sie als eine Art, die bereits in der Artenzahl des Jahres enthalten ist. Dasselbe gilt im selben Jahr für Hapalemur . Aus diesem Grund gibt es 101 Arten und Unterarten (97 − 2 + 6 = 101), nicht 103.
Referenzen
- ^ a b c d e Garbutt 2007 , S. 85–86.
- ^ Mittermeier et al. 2010 , S. 124.
- ^ Mittermeier et al. 2010 , S. 37.
- ^ Godfrey, Jungers & Burney 2010 , p. 356.
- ↑ Vuillaume-Randriamanantena 1988 , S. 379.
- ^ Preston-Mafham 1991 , S. 141–188.
- ^ a b Sussman 2003 , S. 110.
- ^ Mittermeier et al. 2010 , S. 1, 27.
- ^ Mittermeier et al. 2006 , S. 17.
- ^ Preston-Mafham 1991 , S. 18–21.
- ^ Mittermeier et al. 2010 , S. 1.
- ^ Linnaeus 1758 , S. 29–30.
- ^ Tattersall 1982 , S. 43–44.
- ^ a b c d Dunkel, Zijlstra & Groves 2011–2012 , p. 65.
- ^ Blunt & Stearn 2002 , S. 252.
- ^ Nield 2007 , S. 41.
- ^ Rowe 1996 , S. 13.
- ^ Rowe 1996 , S. 27.
- ^ Janečka et al. 2007 .
- ^ a b Groves 2005 , Strepsirrini .
- ^ a b Godinot 2006 , S. 446.
- ^ Jolly & Sussman 2006 , S. 25.
- ^ Mittermeier et al. 2010 , S. 48–49.
- ^ Mittermeier et al. 2010 , S. 49.
- ^ a b c Schwarz 1931 .
- ^ Tattersall 2007 , S. 14.
- ^ Groves 2008 , S. 90.
- ^ Groves 2008 , S. 107.
- ^ Groves 2008 , S. 113–114.
- ^ Groves 2008 , S. 117.
- ^ Groves 2008 , S. 128–129.
- ^ Gray 1862 , S. 105.
- ^ Groves 2008 , S. 136–137.
- ^ Groves 2008 , S. 149–151.
- ^ Janečka et al. 2007 , Abb. 2.
- ^ Asher, Bennett & Lehmann 2009 , S. 856.
- ^ a b c d e Tattersall 1982 , S. 246–247.
- ^ Gregory 1915 .
- ^ Simpson 1945 , S. 61–62.
- ^ a b Cartmill 2010 , S. 15.
- ^ a b Hartwig 2011 , S. 20–21.
- ^ a b c Groves 2005 .
- ^ a b c Sterling & McCreless 2006 , S. 159–160.
- ^ Sterling & McCreless 2006 , S. 159.
- ↑ Ankel-Simons 2007 , S. 257.
- ^ Garbutt 2007 , S. 205–207.
- ^ Owen 1866 , S. 36.
- ^ Elliot 1907 , S. 552.
- ^ Owen 1866 , S. 96.
- ^ Simons 1997 , S. 144.
- ^ a b Ankel-Simons 2007 , p. 544.
- ^ Yoder 2003 , S. 1242.
- ^ Schwarz 1931 , S. 400.
- ^ Pocock 1918 , S. 51–52.
- ^ Groves 2005 , Chiromyiformes .
- ^ a b Yoder 2003 , S. 1243.
- ^ a b c d Horvath et al. 2008 , Abb. 1.
- ^ a b c Orlando et al. 2008 , Abb. 1.
- ^ Godinot 2006 , S. 457–458.
- ^ Chatterjee et al. 2009 , S. 3, 5.
- ^ a b Groves 2001 , S. 55.
- ^ Yoder 2003 , S. 1242–1243.
- ^ a b Tattersall 1982 , S. 263.
- ^ Mittermeier et al. 2008 , S. 1628.
- ^ Groves 2001 , S. 54–55.
- ^ Ankel-Simons 2007 , S. 248.
- ^ Godfrey & Jungers 2002 , S. 112.
- ^ Groves 2005 , Lepilemuridae .
- ^ Orlando et al. 2008 .
- ^ a b Garbutt 2007 , S. 115.
- ^ Karanth et al. 2005 , S. 5094.
- ^ Orlando et al. 2008 , S. 2.
- ^ Yoder & Yang 2004 , S. 768.
- ^ Schwarz 1931 , S. 406.
- ^ Garbutt 2007 , S. 111.
- ^ Groves 2005 , Phaner .
- ^ a b Groves 2001 , S. 65–66.
- ^ Schwarz 1931 , S. 404.
- ^ a b Garbutt 2007 , S. 146.
- ^ Groves 2005 , Varecia .
- ^ Mittermeier et al. 2010 , S. 315.
- ^ Groves 2005 , Eulemur .
- ^ Garbutt 2007 , S. 144.
- ^ Groves 2005 , Prolemur .
- ^ Schwarz 1931 , S. 407.
- ^ a b Garbutt 2007 , S. 108.
- ^ Groves 2005 , Mirza .
- ^ Groves 2005 , Allocebus .
- ^ Godfrey & Jungers 2002 , S. 105.
- ^ Godfrey & Jungers 2002 , S. 102.
- ^ a b Tattersall 2007 , S. 21–22.
- ^ a b c d Yoder 2007 , S. 866.
- ^ Groeneveld et al. 2009 , S. 2–3, 12.
- ^ Mittermeier et al . 2010 , S. 100–103.
- ^ Tattersall 2007 , S. 12, 21–22.
- ^ Gommery et al. 2009 .
- ^ Mittermeier et al. 2010 , S. 34.
- ^ Mittermeier et al. 1994 , S. 51.
- ^ Mittermeier et al. 2006 , S. 54–55.
- ^ Mittermeier et al. 2008 , S. 1608.
- ^ Mittermeier et al. 2010 , S. 68.
- ^ Yoder 2007 , S. 866–867.
- ^ Mittermeier et al. 2008 , S. 1609–1614.
- ^ Groves 2000 , S. 943.
- ^ Rasoloarison, Goodman & Ganzhorn 2000 , p. 963.
- ^ Garbutt 2007 , S. 170.
- ^ Groves 2005 , Varecia rubra .
- ^ Groves 2005 , Eulemur fulvus .
- ^ Groves 2005 , Propithecus .
- ^ Mittermeier et al. 2010 , S. 377.
- ^ Garbutt 2007 , S. 149, 182.
- ^ Thalmann 2006 .
- ^ Tattersall 2007 , S. 19–20.
- ^ ein b Andriaholinirina et al. 2006 .
- ^ Rabarivola et al. 2006 .
- ^ Louis et al. 2006 .
- ^ Mittermeier et al. 2008 , S. 1624, 1628.
- ^ Tattersall 2007 , S. 18.
- ^ a b Yoder & Yang 2004 , p. 769–770.
- ^ Johnson 2006 , S. 188–189.
- ^ Johnson 2006 , S. 193–194.
- ↑ Schwarz 1931 , S. 401–403.
- ↑ Kappeler & Rasoloarison 2003 , S. 1310.
- ^ Garbutt 2007 , S. 86.
- ^ Mittermeier et al. 2008 , S. 1615.
- ↑ Braune, Schmidt & Zimmermann 2008 .
- ^ Olivieri et al. 2007 , S. 309.
- ^ Louis et al. 2008 .
- ^ Weisrock et al. 2010 , S. 8–9.
- ^ a b Tattersall 1982 , S. 40–43.
- ^ Weisrock et al. 2010 , S. 8.
- ^ Tattersall 2007 .
- ^ Weisrock et al. 2010 , S. 11.
- ^ Ankel-Simons 2007 , S. 541–544.
- ^ Heckman et al. 2006 , S. 1.
- ^ Yoder 2007 , S. 867.
- ^ Mittermeier et al. 1994 , S. 80–82.
- ^ Mittermeier et al. 2006 , S. 85–88.
Zitierte Literatur
- Andriaholinirina, N.; Fausser, JL; Roos, C.; Zinner, D.; Thalmann, U.; Rabarivola, C.; Ravoarimanana, I.; Ganzhorn, JU; Meier, B.; Hilgartner, R.; Walter, L.; Zaramody, A.; Langer, C.; Hahn, T.; Zimmermann, E.; Radespiel, U.; Craul, M.; Tomiuk, JR; Tattersall, I.; Rumpler, Y. (2006). „Molekulare Phylogenie und taxonomische Revision der sportlichen Lemuren ( Lepilemur , Primaten)“ . BMC Evolutionsbiologie . 6 (1): 17. Bibcode : 2006BMCEE...6...17A . doi : 10.1186/1471-2148-6-17 . PMC 1397877 . PMID 16504080 .
- Ankel-Simons, F. (2007). Primatenanatomie (3. Aufl.). Academic Press. ISBN 978-0-12-372576-9OCLC 42622248 .
- Asher, RJ; Bennett, N.; Lehmann, T. (6. Juli 2009). „Das neue Rahmenkonzept zum Verständnis der Evolution der Plazentatiere“ . BioEssays . 31 (8): 853–864 . doi : 10.1002/bies.200900053 . PMID 19582725. S2CID 46339675 .
- Blunt, W.; Stearn, W. T. (2002). Linnaeus: Der vollständige Naturforscher . Princeton University Press. ISBN 978-0-691-09636-0Die
- Braune, P.; Schmidt, S.; Zimmermann, E. (2008). „Akustische Divergenz in der Kommunikation kryptischer Arten nachtaktiver Primaten ( Microcebus ssp. )“ . BMC Biology . 6 (19): 19. doi : 10.1186 / 1741-7007-6-19 . PMC 2390514. PMID 18462484 .
- „Es begann mit einem Quietschen: Mondscheinserenade hilft Lemuren bei der Partnerwahl der richtigen Art“ . ScienceDaily (Pressemitteilung). 14. Mai 2008.
- Cartmill, M. (2010). „Kapitel 2: Primatenklassifizierung und -diversität“ . In: Platt, M.; Ghazanfar, A. (Hrsg.). Primatenneuroethologie . Oxford University Press. ISBN 978-0-19-532659-8Die
- Chatterjee, Helen J.; Ho, Simon YW; Barnes, Ian; Groves, Colin (2009). „Schätzung der Phylogenie und der Divergenzzeiten von Primaten mittels eines Supermatrix-Ansatzes“ . BMC Evolutionary Biology . 9 (259): 259. Bibcode : 2009BMCEE...9..259C . doi : 10.1186/1471-2148-9-259 . PMC 2774700. PMID 19860891 .
- Dunkel, AR; Zijlstra, JS; Groves, CP (2011–2012). „Riesenkaninchen, Weißbüschelaffen und britische Komödien: Etymologie der Lemurennamen, Teil 1“ (PDF) . Lemur News . 16 : 64–70 . ISSN 1608-1439 . Archiviert vom Original (PDF) am 6. November 2016. Abgerufen am 9. April 2013 .
- Elliot, DG (1907). Ein Katalog der Säugetiersammlung im Field Columbian Museum . Field Columbian Museum. S. 552. Sciurus
madagascariensis.
- Garbutt, N. (2007). Säugetiere Madagaskars, ein vollständiger Leitfaden . A&C Black Publishers. ISBN 978-0-300-12550-4OCLC 154689042 .
- Godfrey, L. R.; Jungers, W. L. (2002). „Kapitel 7: Fossile Lemuren des Quartärs“. In: Hartwig, W. C. (Hrsg.). The Primate Fossil Record . Cambridge University Press. S. 97–121 . ISBN 978-0-521-66315-1Die
- Godfrey, L. R.; Jungers, W. L.; Burney, D. A. (2010). „Subfossile Lemuren Madagaskars“. In: Werdelin, L.; Sanders, W. J. (Hrsg.). Känozoische Säugetiere Afrikas . Berkeley: University of California Press. S. 351–367 . ISBN 978-0-520-25721-4Die
- Godinot, M. (2006). „ Die Ursprünge der Lemurenartigen aus der Sicht des Fossilienbestands“. Folia Primatologica . 77 (6): 446–464 . doi : 10.1159/000095391 . PMID 17053330. S2CID 24163044 .
- Gommery, D.; Ramanivosoa, B.; Tombomiadana-Raveloson, S.; Randrianantenaina, H.; Kerloc'h, P. (2009). „Eine neue Art riesiger subfossiler Lemuren aus dem Nordwesten Madagaskars ( Palaeopropithecus kelyus , Primaten)“. Comptes Rendus Palevol . 8 (5): 471–480 . doi : 10.1016/j.crpv.2009.02.001 .
- „Neue ausgestorbene Lemurenart in Madagaskar entdeckt“ . ScienceDaily (Pressemitteilung). 27. Mai 2009.
- Goodman, SM; Benstead, JP (Hrsg.). (2003). Die Naturgeschichte Madagaskars . University of Chicago Press. ISBN 978-0-226-30306-2OCLC 51447871 .
- Yoder, AD (2003). „Phylogenie der Lemuren“. Naturgeschichte Madagaskars . S. 1242–1247 .
- Kappeler, PM; Rasoloarison, RM (2003). „ Microcebus , Mausmakis, Tsidy “. Die Naturgeschichte Madagaskars . S. 1310–1315 .
- Gould, L.; Sauther, ML (Hrsg.). (2006). Lemuren: Ökologie und Anpassung . Springer. ISBN 978-0-387-34585-7OCLC 209925660 .
- Jolly, A.; Sussman, RW (2006). „Kapitel 2: Anmerkungen zur Geschichte ökologischer Studien an madagassischen Lemuren“ . Lemuren: Ökologie und Anpassung . Springer. S. 19–40 . ISBN 978-0-387-34586-4Die
- Sterling, EJ; McCreless, EE (2006). „Kapitel 8: Anpassungen beim Fingertier: Ein Überblick“ . Lemuren: Ökologie und Anpassung . Springer. S. 159–184 . ISBN 978-0-387-34586-4Die
- Johnson, SE (2006). „Kapitel 9: Evolutionäre Divergenz im Braunen Lemuren-Artenkomplex“ . Lemuren: Ökologie und Anpassung . Springer. S. 187–210 . ISBN 978-0-387-34586-4Die
- Gray, VP (1862). „Herr W. H. Flower über den Java-Lori“ . Proceedings of the Zoological Society of London . 1 : 103–105 . doi : 10.1111/j.1469-7998.1862.tb06463.x .
- Gregory, W. K. (1915). „1. Über die Verwandtschaft des eozänen Lemuren Notharctus mit den Adapidae und anderen Primaten. 2. Über die Klassifikation und Phylogenie der Lemuroidea“ . Bulletin of the Geological Society of America . 26 : 419–446 . doi : 10.1130/GSAB-26-419 .
- Groeneveld, LF; Weisrock, DW; Rasoloarison, RM; Yoder, AD; Kappeler, PM (2009). „Artabgrenzung bei Lemuren: Multiple genetische Loci zeigen geringe Artenvielfalt in der Gattung Cheirogaleus “ . BMC Evolutionary Biology . 9 (1): 30. Bibcode : 2009BMCEE...9...30G . doi : 10.1186/1471-2148-9-30 . PMC 2652444. PMID 19193227 .
- Groves, CP (2000). „Die Gattung Cheirogaleus : Unerkannte Biodiversität bei Zwerglemuren“. International Journal of Primatology . 21 (6): 943–962 . doi : 10.1023/A:1005559012637 . S2CID 6657094 .
- Groves, C. P. (2001). Primatentaxonomie . Smithsonian Institution Press. ISBN 978-1-56098-872-4OCLC 44868886 .
- Groves, CP (2005). „Ordnung Primaten“ . In: Wilson, DE; Reeder, DM (Hrsg.). Säugetierarten der Welt: Ein taxonomisches und geographisches Nachschlagewerk (3. Aufl.). The Johns Hopkins University Press. S. 111–184 . ISBN 978-0-8018-8221-0Die
- Groves, CP (2008). Erweiterte Familie: Lange verschollene Verwandte. Ein persönlicher Blick auf die Geschichte der Primatologie . Conservation International. ISBN 978-1-934151-25-9Die
- Hartwig, W. (2011). „Kapitel 3: Primatenevolution“. In: Campbell, CJ; Fuentes, A.; MacKinnon, KC; Bearder, SK; Stumpf, R. M (Hrsg.). Primaten im Überblick (2. Aufl.). Oxford University Press. S. 19–31 . ISBN 978-0-19-539043-8Die
- Heckman, KL; Rasoazanabary, E.; Machlin, E.; Godfrey, LR; Yoder, AD (2006). „Inkongruenz zwischen genetischer und morphologischer Diversität bei Microcebus griseorufus von Beza Mahafaly“ ( PDF) . BMC Evolutionary Biology . 6 (98): 98. doi : 10.1186/1471-2148-6-98 . PMC 1657033. PMID 17109740 .
- „Unterschiedliche Fellfarbe bedeutet bei Lemuren nicht zwangsläufig, dass es sich um verschiedene Arten handelt . “ ScienceDaily (Pressemitteilung). 16. November 2006.
- Horvath, JE; Weisrock, DW; Embry, SL; Fiorentino, I; Balhoff, JP; Kappeler, P; Wray, GA; Willard, HF; Yoder, AD (2008). „Entwicklung und Anwendung eines phylogenomischen Werkzeugkastens: Aufklärung der Evolutionsgeschichte der Lemuren Madagaskars“ ( PDF) . Genome Research . 18 (3): 489–499 . doi : 10.1101/gr.7265208 . PMC 2259113. PMID 18245770 .
- Janečka, JE; Miller, W; Pringle, TH; Wiens, F; Zitzmann, A; Helgen, KM; Springer, MS; Murphy, WJ (2007). „Molekulare und genomische Daten identifizieren den nächsten lebenden Verwandten der Primaten“ (PDF) . Science . 318 (5851): 792–794 . Bibcode : 2007Sci...318..792J . doi : 10.1126 /science.1147555 . PMID 17975064. S2CID 12251814 .
- Karanth, KP; Delefosse, T; Rakotosamimanana, B; Parsons, TJ; Yoder, AD (2005). „Alte DNA von ausgestorbenen Riesenlemuren bestätigt den gemeinsamen Ursprung der madagassischen Primaten“ ( PDF) . Proceedings of the National Academy of Sciences . 102 (14): 5090–5095 . Bibcode : 2005PNAS..102.5090K . doi : 10.1073/pnas.0408354102 . PMC 555979. PMID 15784742 .
- Linnaeus, Carl (1758). Systema Naturae (in Latein). Bd. 1. Impensis Direct. Laurentii Salvii.
- Louis, EE Jr.; Engberg, SE; Lei, R.; Geng, H.; Sommer, JA; Randriamampionona, R.; Randriamanana, JC; Zaonarivelo, JR; Andriantompohavana, R.; Randria, G.; Prosper; Ramaromilanto, B.; Rakotoarisoa, G.; Rooney, A.; Brenneman, RA (2006). „Molekulare und morphologische Analysen der Sportive Lemuren (Familie Megaladapidae: Gattung Lepilemur ) zeigen 11 bisher unbekannte Arten“ (PDF) . Special Publications, Museum of Texas Tech University . 49 : 1–47 . Archiviert vom Original (PDF) am 5. Juni 2011.
- Louis, EE; Engberg, SE; McGuire, SM; McCormick, MJ; Randriamampionona, R.; Ranaivoarisoa, JF; Bailey, CA; Mittermeier, RA; Lei, R. (2008). „Revision der Mausmakis, Microcebus (Primates, Lemuriformes), des nördlichen und nordwestlichen Madagaskars mit Beschreibungen zweier neuer Arten im Nationalpark Montagne d’Ambre und im klassifizierten Waldgebiet Antafondro“ (PDF) . Primate Conservation . 23 : 19–38 . doi : 10.1896/052.023.0103 . S2CID 84533039. Archiviert vom Original (PDF) am 5. Februar 2009.
- Mittermeier, R. A .; Tattersall, I .; Konstant, W. R.; Meyers, D. M.; Mast, R. B. (1994). Lemuren Madagaskars . Illustriert von S. D. Nash (1. Aufl.). Conservation International . ISBN 1-881173-08-9OCLC 32480729 .
- Mittermeier, RA ; Konstant, WR; Hawkins, F.; Louis, EE ; et al. (2006). Lemuren von Madagaskar . Illustriert von SD Nash (2. Aufl.). Naturschutz International . ISBN 1-881173-88-7OCLC 883321520 .
- Mittermeier, RA ; Ganzhorn, JU; Konstant, WR; Glander, K.; Tattersall, I. ; Groves, CP ; Rylands, AB; Hapke, A.; Ratsimbazafy, J.; Bürgermeister, MI; Louis, EE; Rumpler, Y.; Schwitzer, C.; Rasoloarison, RM (2008). „Lemurenvielfalt in Madagaskar“ (PDF) . Internationale Zeitschrift für Primatologie . 29 (6): 1607–1656 . doi : 10.1007/s10764-008-9317-y . HDL : 10161/6237 . S2CID 17614597 . Archiviert vom Original (PDF) am 27. August 2018 . Abgerufen am 29. August 2015 .
- Mittermeier, RA ; Louis, EE ; Richardson, M.; Schwitzer, C.; et al. (2010). Lemuren von Madagaskar . Illustriert von SD Nash (3. Aufl.). Naturschutz International . ISBN 978-1-934151-23-5OCLC 670545286 .
- Nield, T. (2007). Superkontinent: Zehn Milliarden Jahre im Leben unseres Planeten . Harvard University Press. ISBN 978-0-674-02659-9Die
- Olivieri, G.; Zimmermann, E.; Randrianambinina, B.; Rasoloharijaona, S.; Rakotondravony, D.; Guschanski, K.; Radespiel, U. (2007). „Die stetig wachsende Diversität der Mausmakis: Drei neue Arten im Norden und Nordwesten Madagaskars“ (PDF) . Molecular Phylogenetics and Evolution . 43 (1): 309–327 . Bibcode : 2007MolPE..43..309O . doi : 10.1016/j.ympev.2006.10.026 . PMID 17197200 .
- Orlando, L.; Calvignac, S.; Schnebelen, C.; Douady, C.J.; Godfrey, L.R.; Hänni, C. (2008). „DNA ausgestorbener Riesenlemuren verbindet Archaeolemuriden mit rezenten Indriiden“ . BMC Evolutionary Biology . 8 (121): 121. Bibcode : 2008BMCEE...8..121O . doi : 10.1186/1471-2148-8-121 . PMC 2386821. PMID 18442367 .
- Owen, R. (1866). „Auf dem Aye-aye ( Chiromys , Cuvier; Chiromys Madagascariensis , Desm.; Sciurus Madagascariensis , Gmel., Sonnerat; Lemur Psilodactylus , Schreber, Shaw)“ . Transaktionen der Zoological Society of London . 5 (2): 33– 101. doi : 10.1111/j.1096-3642.1863.tb00641.x . Abgerufen am 29. Mai 2011 .
- Pocock, R. I. (1918). „Über die äußeren Merkmale der Lemuren und der Tarsius “ . Proceedings of the Zoological Society of London . 1918 ( 1–2 ): 19–53 . doi : 10.1111/j.1096-3642.1918.tb02076.x .
- Preston-Mafham, K. (1991). Madagaskar: Eine Naturgeschichte . Facts on File. ISBN 978-0-8160-2403-2OCLC 23650974 .
- Rabarivola, C.; Zaramody, A.; Fausser, J.; Andriaholinirina, N.; Roos, C.; Zinner, D.; Marcel, H.; Rumpler, Y. (2006). „Zytogenetische und molekulare Charakteristika einer neuen Art von Wiesenmakis aus Nordmadagaskar“ (PDF) . Lemur News . 11 : 45–49 . ISSN 0343-3528 . Archiviert vom Original (PDF) am 23. Juli 2011.
- Rasoloarison, RM; Goodman, SM; Ganzhorn, JU (2000). „Taxonomische Revision der Mausmakis ( Microcebus ) in den westlichen Teilen Madagaskars“. International Journal of Primatology . 21 (6): 963–1019 . doi : 10.1023/A:1005511129475 . S2CID 24593160 .
- Rowe, N. (1996). Der Bildführer zu den lebenden Primaten . Pogonias Press. ISBN 978-0-9648825-1-5OCLC 35692646 .
- Simons, EL (1997). „Kapitel 6: Lemuren: Alt und Neu“ . In: Goodman, SM; Patterson, BD (Hrsg.). Natürlicher Wandel und menschlicher Einfluss in Madagaskar . Smithsonian Institution Press. ISBN 978-1-56098-682-9OCLC 35620388 .
- Schwarz, E. (1931). „Eine Revision der Gattungen und Arten der Lemuren Madagaskars“. Proceedings of the Zoological Society of London . 1931 (2): 399–428 . doi : 10.1111/j.1096-3642.1931.tb01020.x .
- Simpson, G. G. (1945). „Die Prinzipien der Klassifizierung und eine Klassifizierung der Säugetiere“. Bulletin of the American Museum of Natural History . 85 : 1–350 . hdl : 2246/1104 . OCLC 341579 .
- Sussman, RW (2003). Primatenökologie und Sozialstruktur . Pearson Custom Publishing. ISBN 978-0-536-74363-3OCLC 199284796 .
- Tattersall, I. ( 2007). „Madagaskars Lemuren: Kryptische Diversität oder taxonomische Inflation?“ Evolutionary Anthropology: Issues, News, and Reviews . 16 (1): 12–23 . doi : 10.1002/evan.20126 . S2CID 54727842 .
- Tattersall, I. (1982). Primaten Madagaskars . Columbia University Press. ISBN 978-0-231-04704-3OCLC 7837781 .
- Thalmann, U. (Dezember 2006). „Lemuren – Botschafter für Madagaskar“ . Erhaltung und Entwicklung Madagaskars . 1 : 4–8 . doi : 10.4314/mcd.v1i1.44043 . eISSN 1662-2510 .
- Vuillaume-Randriamanantena, M. (1988). „Die taxonomischen Zuschreibungen riesiger subfossiler Lemurenknochen aus Ampasambazimba: Archaeoindris und Lemuridotherium “. Zeitschrift für menschliche Evolution . 17 (4): 379–391 . Bibcode : 1988JHumE..17..379V . doi : 10.1016/0047-2484(88)90027-9 .
- Weisrock, DW; Rasoloarison, RM; Fiorentino, I.; Ralison, JM; Goodman, SM; Kappeler, PM; Yoder, AD (2010). „Abgrenzung von Arten ohne nukleäre Monophylie bei den Mausmakis Madagaskars“ . PLOS ONE . 5 (3) e9883. Bibcode : 2010PLoSO...5.9883W . doi : 10.1371/journal.pone.0009883 . PMC 2847600. PMID 20360988 .
- Yoder, AD (2007). „Lemuren: Ein kurzer Leitfaden“ (PDF) . Current Biology . 17 (20): R866– R868. doi : 10.1016/j.cub.2007.07.050 . PMID 17956741 .
- Yoder, AD; Yang, Z. (2004). „Divergenzdaten für madagassische Lemuren, geschätzt anhand mehrerer Genloci: geologischer und evolutionärer Kontext“ ( PDF) . Molecular Ecology . 13 (4): 757–773 . Bibcode : 2004MolEc..13..757Y . doi : 10.1046/j.1365-294X.2004.02106.x . PMID 15012754. S2CID 14963272 .


