
Eine Allgemeinanästhesie (oder ein Narkosemittel ) ist ein Medikament , das einen reversiblen Bewusstseinsverlust herbeiführt . [ 2 ] Diese Medikamente werden im Allgemeinen von einem Anästhesisten verabreicht, um eine Allgemeinanästhesie einzuleiten oder aufrechtzuerhalten und so eine Operation zu ermöglichen .
Seit Crawford Long 1842 erstmals Diethylether verabreichte und eine schmerzfreie Operation durchführte , werden Allgemeinanästhetika in der Chirurgie häufig eingesetzt . Lange Zeit ging man davon aus, dass Allgemeinanästhetika ihre Wirkung (Analgesie, Bewusstlosigkeit, Immobilität) [ 3 ] über einen membranvermittelten Mechanismus oder durch direkte Modulation der Aktivität von Membranproteinen in der neuronalen Membran entfalten. Im Allgemeinen weisen verschiedene Anästhetika unterschiedliche Wirkmechanismen auf, sodass es zahlreiche, sich nicht ausschließende molekulare Zielstrukturen auf allen Integrationsebenen des zentralen Nervensystems gibt . [ 4 ] Bei bestimmten intravenösen Anästhetika wie Propofol und Etomidat gilt jedoch der GABA<sub> A </sub>-Rezeptor als Hauptzielstruktur , wobei bestimmte β-Untereinheiten eine entscheidende Rolle spielen. [ 5 ] [ 6 ] [ 7 ]
Das von Paul Ehrlich 1897 eingeführte Konzept der spezifischen Wechselwirkungen zwischen Rezeptoren und Arzneistoffen [ 8 ] besagt, dass Arzneistoffe nur dann wirken, wenn sie an ihre Zielstrukturen (Rezeptoren) binden. [ 1 ] Die Identifizierung konkreter molekularer Zielstrukturen für Allgemeinanästhetika wurde erst durch die moderne Entwicklung molekularbiologischer Techniken zur Untersuchung einzelner Aminosäuremutationen in Proteinen gentechnisch veränderter Mäuse ermöglicht . [ 1 ] [ 5 ] [ 6 ] [ 7 ]
Korrelation zwischen Lipidlöslichkeit und anästhetischer Wirkung (die Meyer-Overton-Korrelation)

Ein unspezifischer Wirkmechanismus von Allgemeinanästhetika wurde erstmals 1847 von Emil Harless und Ernst von Bibra vorgeschlagen. [ 9 ] Sie vermuteten, dass Allgemeinanästhetika wirken, indem sie sich in der Fettfraktion der Gehirnzellen auflösen und Fettbestandteile aus diesen entfernen. Dadurch würden die Aktivität der Gehirnzellen verändert und eine Anästhesie herbeigeführt. 1899 veröffentlichte Hans Horst Meyer den ersten experimentellen Nachweis, dass die anästhetische Potenz mit der Lipidlöslichkeit zusammenhängt. [ 10 ] [ 11 ] Zwei Jahre später veröffentlichte Charles Ernest Overton unabhängig davon eine ähnliche Theorie . [ 12 ]
Meyer verglich die Wirkstärke zahlreicher Substanzen, definiert als der Kehrwert der molaren Konzentration , die zur Einleitung einer Anästhesie bei Kaulquappen erforderlich ist, mit ihrem Olivenöl/Wasser- Verteilungskoeffizienten . Er fand einen nahezu linearen Zusammenhang zwischen Wirkstärke und Verteilungskoeffizient für viele Arten von Anästhetikamolekülen wie Alkohole , Aldehyde , Ketone , Ether und Ester . Die Anästhetikakonzentration, die erforderlich ist, um bei 50 % einer Tierpopulation eine Anästhesie auszulösen ( EC<sub> 50</sub> ), war unabhängig von der Art der Verabreichung des Anästhetikums, d. h. der Gas- oder Wasserphase. [ 10 ] [ 11 ] [ 13 ]
Meyer und Overton entdeckten den auffälligen Zusammenhang zwischen den physikalischen Eigenschaften von Allgemeinanästhetika und ihrer Wirkstärke: Je höher die Lipidlöslichkeit einer Verbindung in Olivenöl ist, desto höher ist ihre anästhetische Wirkung. [ 13 ] Dieser Zusammenhang gilt für eine Vielzahl von Anästhetika mit Lipidlöslichkeiten, die sich über vier bis fünf Größenordnungen erstrecken, wenn Olivenöl als Ölphase verwendet wird. Dieser Zusammenhang lässt sich hinsichtlich seiner Qualität und der Bandbreite der untersuchten Anästhetika deutlich verbessern, wenn man Octanol [ 14 ] oder eine vollständig hydratisierte Lipiddoppelschicht [ 15 ] [ 16 ] [ 17 ] [ 18 ] als „Ölphase“ verwendet. Es wurde außerdem festgestellt, dass sich die Wirkung flüchtiger Anästhetika addiert. (Eine Mischung aus jeweils einer halben Dosis zweier verschiedener flüchtiger Anästhetika erzielte die gleiche anästhetische Wirkung wie eine volle Dosis eines der beiden Wirkstoffe allein.)
Die am besten charakterisierte Anästhetika-Bindungsstelle, die für die Meyer-Overton-Korrelation verantwortlich ist, befindet sich in geordneten Lipiddomänen. Anästhetika binden unspezifisch an die Oberfläche einer Palmitat-spezifischen Bindungsstelle innerhalb der Lipidmembran und verdrängen das Palmitat aus den geordneten GM1-Lipiden. Dieser Prozess führt zu einer Komponente der membranvermittelten Anästhesie . [ 19 ] Ein ähnlicher Mechanismus wurde für Luciferase gezeigt. [ 20 ] Die Anästhetika binden unspezifisch an eine hydrophobe Oberfläche und verdrängen die spezifische Bindung von Luciferin. Luciferase ist jedoch für Wirbeltiere physiologisch nicht relevant, da sie in Wirbeltieren nicht endogen exprimiert wird.
Frühe Lipidhypothesen zur Wirkungsweise von Allgemeinanästhetika

Aus der Korrelation zwischen Lipidlöslichkeit und anästhetischer Potenz leiteten Meyer und Overton einen einheitlichen Wirkmechanismus der Allgemeinanästhesie ab. Sie nahmen an, dass die Solubilisierung lipophiler Allgemeinanästhetika in der Lipiddoppelschicht des Neurons deren Funktionsstörung und die anästhetische Wirkung verursacht, sobald eine kritische Konzentration des Anästhetikums erreicht ist. Später, im Jahr 1973, schlugen Miller und Smith die Hypothese des kritischen Volumens, auch Lipiddoppelschicht-Expansionshypothese genannt, vor. [ 21 ] Sie nahmen an, dass sich voluminöse und hydrophobe Anästhetikummoleküle in den hydrophoben (oder lipophilen) Bereichen der neuronalen Lipidmembran anreichern und durch Volumenverdrängung deren Verformung und Ausdehnung (Verdickung) bewirken. Die Anreicherung kritischer Mengen an Anästhetikum führt zu einer Membranverdickung, die ausreicht, um die Funktion der Membranionenkanäle reversibel zu verändern und so die anästhetische Wirkung zu erzielen. Die eigentliche chemische Struktur des Anästhetikums ist nicht von Bedeutung, sondern sein Molekülvolumen spielt die entscheidende Rolle: Je mehr Raum das Anästhetikum innerhalb der Membran einnimmt, desto stärker ist die anästhetische Wirkung. Basierend auf dieser Theorie schlug Mullins 1954 vor, die Meyer-Overton-Korrelation mit der Wirkstärke zu verbessern, wenn die Molekülvolumina der Anästhetika berücksichtigt werden. [ 22 ] Diese Theorie bestand über 60 Jahre und wurde durch den experimentellen Befund gestützt, dass ein Anstieg des atmosphärischen Drucks die anästhetische Wirkung umkehrt ( Druckumkehreffekt ). [ 21 ] [ 23 ] [ 24 ]
Anschließend entstanden weitere, physikochemische Theorien zur Wirkung von Anästhetika, die die unterschiedliche chemische Natur von Allgemeinanästhetika berücksichtigten und nahelegten, dass die anästhetische Wirkung durch eine Störung der Lipiddoppelschicht hervorgerufen wird. [ 25 ] Es wurden verschiedene Arten von Doppelschichtstörungen vorgeschlagen, die die anästhetische Wirkung verursachen sollen, darunter (1) Änderungen der Phasentrennung, (2) Änderungen der Doppelschichtdicke, (3) Änderungen der Ordnungsparameter oder (4) Änderungen der Krümmungselastizität. [ 26 ] [ 27 ] [ 28 ]
Gemäß der Theorie der lateralen Phasentrennung [ 28 ] wirken Anästhetika, indem sie Nervenmembranen so weit verflüssigen, dass die Phasentrennung in den kritischen Lipidbereichen verschwindet. Diese anästhetikabedingte Verflüssigung beeinträchtigt die Fähigkeit der Membranen, Konformationsänderungen von Proteinen zu ermöglichen, die die Grundlage für Membranprozesse wie Ionenkanalsteuerung, synaptische Transmitterfreisetzung und Transmitterbindung an Rezeptoren bilden können. Neuere Techniken mit hochauflösender Bildgebung zeigen jedoch, dass die Anästhetika die Phasentrennung nicht aufheben – sie bleibt bestehen. Vielmehr können gesättigte Lipide innerhalb der Phasentrennung einen Übergang von geordnet zu ungeordnet durchlaufen, der durch Anästhetika stark beeinflusst wird. Dennoch hat sich das Konzept, dass Proteine als Reaktion auf Anästhetika zwischen phasengetrennten Lipiden wandern, als korrekt erwiesen. [ 29 ]
Man ging allgemein davon aus, dass alle diese frühen Lipidtheorien unter vier Schwächen litten [ 1 ] (eine vollständige Beschreibung mit Widerlegungen finden Sie in den folgenden Abschnitten):
- Stereoisomere eines Anästhetikums weisen eine sehr unterschiedliche anästhetische Potenz auf, während ihre Öl/Gas-Verteilungskoeffizienten ähnlich sind.
- Bestimmte Arzneimittel, die in Lipiden sehr gut löslich sind und daher als Anästhetika wirken sollten, üben stattdessen eine krampfauslösende Wirkung aus (und wurden daher als Nicht-Immobilisatoren bezeichnet ).
- Ein geringfügiger Anstieg der Körpertemperatur beeinflusst die Membrandichte und -fluidität ebenso stark wie eine Allgemeinanästhesie, führt aber nicht zu einer Anästhesie.
- Eine Verlängerung der Kette in einer homologen Reihe geradkettiger Alkohole oder Alkane erhöht deren Lipidlöslichkeit, aber ihre anästhetische Wirkung nimmt jenseits einer bestimmten Kettenlänge nicht weiter zu.
Die Korrelation zwischen Lipidlöslichkeit und Wirkstärke von Allgemeinanästhetika galt als notwendige, aber nicht hinreichende Bedingung für die Identifizierung einer Lipid-Zielstruktur. Allgemeinanästhetika könnten ebenso gut an hydrophobe Zielstrukturen von Proteinen im Gehirn binden. Angesichts der chemischen Vielfalt der Anästhetika wären dafür jedoch wahrscheinlich mehrere Bindungsstellen erforderlich, und diese würden eine Bindungsstelle in der Membran nicht grundsätzlich ausschließen. Ein Grund für die geringere Wirkstärke polarer Allgemeinanästhetika bei Proteinen könnte sein, dass sie die Blut-Hirn-Schranke überwinden müssen, um ihre Wirkung auf die Neuronen im Gehirn zu entfalten.
Moderne Lipidhypothese

Es existieren zwei moderne Lipidhypothesen, die die direkte Proteinbindung nicht ausschließen. Die jüngste Hypothese postuliert, dass geordnete Lipide in der Plasmamembran eine strukturierte Bindungsstelle für das Lipid Palmitat enthalten . Diese Bindungsstelle befindet sich innerhalb einer Lipidstruktur, nicht innerhalb einer Proteinstruktur. Proteine mit kovalent gebundenem Palmitat ( Palmitoylierung ) werden durch eine spezifische Lipid-Lipid-Wechselwirkung an die geordneten Lipide dirigiert. Die Bindung von Palmitat an die Lipiddomäne ist cholesterinabhängig, und die Zelle reguliert das Protein durch nanoskopische Lokalisierung.
Anästhetika wirken durch unspezifische Bindung an die Palmitatbindungsstelle. Dadurch wird die Fähigkeit von Cholesterin, an das Protein zu binden und es in einen inaktiven Zustand zu überführen, gestört. Dieser membranvermittelte Mechanismus wurde 2020 von Pavel und Kollegen experimentell nachgewiesen. Sie zeigten, dass das Enzym Phospholipase D2 (PLD2) anästhetikasensitiv ist und den Kaliumkanal TREK-1 über einen membranvermittelten Mechanismus aktiviert . Die Anästhetika verdrängten PLD2 aus geordneten Lipiddomänen, wodurch das Enzym durch Substratpräsenz aktiviert werden und den Kanal aktivieren konnte. [ 29 ] [ 30 ]
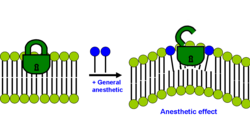
Die zweite Lipidhypothese besagt, dass die anästhetische Wirkung eintritt, wenn die Solubilisierung des Allgemeinanästhetikums in der Doppelschicht eine Umverteilung des lateralen Membrandrucks bewirkt. [ 31 ] [ 32 ]
Jede Lipiddoppelschichtmembran weist ein spezifisches Profil der lateralen Druckverteilung auf. Die meisten Membranproteine (insbesondere Ionenkanäle) reagieren empfindlich auf Veränderungen dieses Profils. Diese lateralen Spannungen sind beträchtlich und variieren mit der Tiefe innerhalb der Membran. Gemäß der modernen Lipidhypothese verschiebt eine Veränderung des lateralen Druckprofils der Membran das Konformationsgleichgewicht bestimmter Membranproteine, die bekanntermaßen durch klinische Konzentrationen von Anästhetika beeinflusst werden, wie beispielsweise ligandengesteuerte Ionenkanäle. Dieser Mechanismus ist zudem unspezifisch, da die Wirksamkeit des Anästhetikums nicht durch seine chemische Struktur, sondern durch die Position und Orientierung seiner Segmente und Bindungen innerhalb der Doppelschicht bestimmt wird.
1997 schlug Cantor einen detaillierten Mechanismus der Allgemeinanästhesie auf Basis der statistischen Gitterthermodynamik vor. [ 32 ] Er postulierte, dass der Einbau amphiphiler und anderer grenzflächenaktiver Substanzen (z. B. Allgemeinanästhetika) in die Lipiddoppelschicht den lateralen Druck selektiv in der Nähe der wässrigen Grenzflächen erhöht, was durch eine Abnahme des lateralen Drucks zum Zentrum der Doppelschicht hin kompensiert wird. Berechnungen ergaben, dass die Allgemeinanästhesie wahrscheinlich die Hemmung der Öffnung des Ionenkanals in einem postsynaptischen, ligandengesteuerten Membranprotein [ 32 ] durch folgenden Mechanismus beinhaltet:
- Als Reaktion auf einen Nervenimpuls versucht sich ein Kanal zu öffnen, wodurch sich die Querschnittsfläche des Proteins in der Nähe der wässrigen Grenzfläche stärker vergrößert als in der Mitte der Doppelschicht;
- Der durch die Anästhesie hervorgerufene Anstieg des lateralen Drucks in der Nähe der Grenzfläche verschiebt dann das Konformationsgleichgewicht des Proteins zurück in den geschlossenen Zustand, da die Kanalöffnung aufgrund des höheren Drucks an der Grenzfläche eine größere Arbeit erfordern würde.
Dies ist die erste Hypothese, die nicht nur Korrelationen der Wirkstärke mit strukturellen oder thermodynamischen Eigenschaften lieferte, sondern ein detailliertes mechanistisches und thermodynamisches Verständnis der Anästhesie ermöglichte.

Nach der modernen Lipidhypothese wirken Anästhetika nicht direkt auf ihre Membranprotein-Zielstrukturen, sondern beeinflussen spezialisierte Lipidmatrizen an der Protein-Lipid-Grenzfläche, die als Mediatoren fungieren. Dies ist ein neuartiger Transduktionsmechanismus, der sich von der üblichen Schlüssel-Schloss-Interaktion zwischen Ligand und Rezeptor unterscheidet, bei der das Anästhetikum (Ligand) die Funktion von Membranproteinen durch Bindung an eine spezifische Stelle des Proteins beeinflusst. Daher wird angenommen, dass einige Membranproteine empfindlich auf ihre Lipidumgebung reagieren.
Im selben Jahr wurde ein leicht abweichender, detaillierter molekularer Mechanismus vorgeschlagen, wie die Störung der Lipiddoppelschicht den Ionenkanal beeinflussen kann. Oleamid (Fettsäureamid der Ölsäure) ist ein endogenes Anästhetikum, das in vivo (im Gehirn der Katze) vorkommt und bekanntermaßen den Schlaf verstärkt und die Körpertemperatur senkt, indem es den Gap-Junction-Kanal Connexon schließt. [ 33 ] Der detaillierte Mechanismus ist in der Abbildung dargestellt: Der geordnete Lipid(grün)/Cholesterin(gelb)-Ring, der Connexon (magenta) umgibt, wird durch die Behandlung mit einem Anästhetikum (rote Dreiecke) gestört, was zum Schließen des Connexon-Ionenkanals führt. Dies verringert die Hirnaktivität und induziert Lethargie und einen anästhetischen Effekt.
Kürzlich lieferten hochauflösende Bildgebungsverfahren direkte experimentelle Beweise dafür, dass volatile Anästhetika, wie vorhergesagt, die geordneten Lipidstrukturen stören. [ 34 ] In derselben Studie wurde ein verwandter Mechanismus entdeckt, bei dem die Anästhetika das Enzym Phospholipase D (PLD) aus den Lipidstrukturen freisetzen. Das Enzym bindet dann an TREK-1- Kanäle und aktiviert diese durch die Bildung von Phosphatidsäure. Diese Ergebnisse belegen experimentell, dass die Membran ein physiologisch relevantes Zielmolekül von Allgemeinanästhetika ist.
Membranproteinhypothese der Wirkung von Allgemeinanästhetika

Anfang der 1980er Jahre zeigten Nicholas P. Franks und William R. Lieb [ 35 ] , dass die Meyer-Overton-Korrelation mithilfe eines löslichen Proteins reproduziert werden kann. Sie fanden heraus, dass zwei Proteinklassen durch klinische Dosen von Anästhetika in völliger Abwesenheit von Lipiden inaktiviert werden. Dies sind Luciferasen , die von biolumineszenten Tieren und Bakterien zur Lichterzeugung genutzt werden [ 36 ] , und Cytochrom P450 [ 37 ] , eine Gruppe von Hämproteinen , die eine Vielzahl von Verbindungen hydroxylieren, darunter Fettsäuren , Steroide und Xenobiotika wie Phenobarbital . Bemerkenswerterweise korrelierte die Hemmung dieser Proteine durch Allgemeinanästhetika direkt mit deren anästhetischer Potenz. Die Luciferasehemmung zeigt zudem eine Hemmgrenze für langkettige Alkohole, die mit der Größe der Anästhetika-Bindungstasche zusammenhängt. [ 38 ]
Diese Beobachtungen waren wichtig, da sie zeigten, dass Allgemeinanästhetika ihre Wirkung unspezifisch entfalten, auch durch Bindung an Proteine. Dies eröffnete die Möglichkeit, dass Anästhetika durch direkte Bindung an Proteine wirken könnten, anstatt Membranproteine indirekt über unspezifische Wechselwirkungen mit der Lipiddoppelschicht als Mediator zu beeinflussen. [ 14 ] [ 39 ] Es wurde gezeigt, dass Anästhetika die Funktionen vieler zytoplasmatischer Signalproteine, einschließlich der Proteinkinase C , verändern . [ 40 ] [ 41 ]
Die wahrscheinlichsten molekularen Zielstrukturen von Anästhetika sind jedoch Ionenkanäle. Laut dieser Theorie sind Allgemeinanästhetika deutlich selektiver als in den Lipidhypothesen angenommen. Sie binden direkt nur an wenige Zielstrukturen im zentralen Nervensystem, hauptsächlich an ligandengesteuerte Ionenkanäle in Synapsen und G-Protein-gekoppelte Rezeptoren , und verändern deren Ionenfluss. Insbesondere Cys-Loop-Rezeptoren [ 42 ] sind plausible Zielstrukturen für Allgemeinanästhetika, die an der Grenzfläche zwischen den Untereinheiten binden. Zur Cys-Loop-Rezeptor-Superfamilie gehören inhibitorische Rezeptoren ( GABA <sub> A </sub>-Rezeptoren , GABA<sub> C </sub>-Rezeptoren , Glycinrezeptoren ) und exzitatorische Rezeptoren ( nikotinischer Acetylcholinrezeptor und 5-HT<sub>3</sub>-Serotoninrezeptor ). Allgemeinanästhetika können die Kanalfunktion exzitatorischer Rezeptoren hemmen bzw. die Funktion inhibitorischer Rezeptoren verstärken.
Die Lokalisierung unspezifischer Bindungsstellen in Ionenkanälen ist nach wie vor eine zentrale Frage. Insbesondere ist unklar, wie eine Verbindung, die der Overton-Meyer-Gleichung folgt, direkt eine Konformationsänderung des Proteins bewirkt. Typischerweise beinhaltet die allosterische Regulation eine Veränderung der Proteinform, die die Bindung des Liganden ermöglicht. Dieser Mechanismus unterscheidet sich vom Luciferase-Mechanismus. Eine weitere wichtige Frage ist, wie die unspezifischen Proteinbindungsstellen über verschiedene Spezies hinweg konserviert sind und warum sie im Allgemeinen exzitatorische Rezeptoren hemmen und inhibitorische Rezeptoren potenzieren.
Zahlreiche experimentelle und computergestützte Studien haben gezeigt, dass Allgemeinanästhetika die Dynamik der flexiblen Schleifen verändern können, welche die α-Helices eines Bündels verbinden und an der Membran-Wasser-Grenzfläche von Cys-Loop-Rezeptoren exponiert sind. [ 43 ] [ 44 ] [ 45 ] [ 46 ] [ 47 ] [ 48 ] Die Hauptbindungsstellen für Allgemeinanästhetika befinden sich jedoch innerhalb der transmembranären Vier-α-Helix-Bündel von Cys-Loop-Rezeptoren. [ 49 ] [ 50 ] [ 51 ]
GABA- A- Rezeptor als wichtiges Ziel von Allgemeinanästhetika
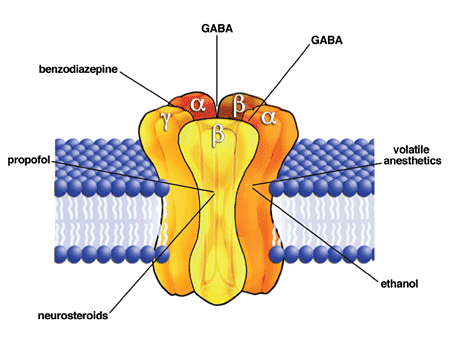
Der GABA <sub>A </sub>-Rezeptor (GABA <sub>A </sub>R) ist ein ionotroper Rezeptor, der durch den inhibitorischen Neurotransmitter γ-Aminobuttersäure (GABA) aktiviert wird. Die Aktivierung des GABA<sub> A </sub>-Rezeptors führt zu einem Einstrom von Chloridionen , was eine Hyperpolarisation der neuronalen Membranen verursacht . [ 52 ]
Der GABA <sub>A </sub>-Rezeptor wurde in der Vergangenheit als wichtiges Ziel von intravenösen Anästhetika wie Propofol und Etomidat untersucht . [ 4 ] [ 5 ] Die Bindungsstelle von Propofol an GABA<sub> A</sub> -Rezeptoren von Säugetieren wurde mittels Photomarkierung mit einem Diazirinderivat identifiziert . [ 53 ] Eine starke Aktivierung der tonischen GABA<sub> A </sub>-Rezeptorleitfähigkeit durch klinische Propofol-Konzentrationen wurde durch elektrophysiologische Ableitungen von CA1-Neuronen des Hippocampus in Hirnschnitten adulter Ratten bestätigt . [ 54 ]
GABA <sub>A </sub>-Rezeptoren mit β3-Untereinheiten sind die Hauptzielstrukturen für die anästhetische Wirkung von Etomidat , während β2-haltige GABA<sub> A</sub> -Rezeptoren an der durch dieses Medikament hervorgerufenen Sedierung beteiligt sind . [ 55 ] Elektrophysiologische Experimente mit amnestischen Etomidat-Konzentrationen zeigten zudem eine Erhöhung der tonischen GABA<sub> A </sub>-Leitfähigkeit von CA1- Pyramidenneuronen in Hippocampus-Schnitten. [ 56 ]
Eine starke Aktivierung der GABA <sub>A </sub>-Rezeptor-vermittelten Hemmung mit der Folge einer starken Verringerung der Feuerungsrate neokortikaler Neuronen wurde auch für klinische Konzentrationen volatiler Anästhetika wie Isofluran , Enfluran und Halothan nachgewiesen . [ 57 ]
Weitere molekulare Zielstrukturen
Eine Steigerung der GABA <sub>A </sub>-Rezeptoraktivität ist höchstwahrscheinlich nicht der alleinige Mechanismus, der den vielfältigen Verhaltenswirkungen von Allgemeinanästhetika zugrunde liegt. [ 58 ] Die meisten Anästhetika sind in der Tat sehr „promiskuitiv“ [ 59 ] , d. h., sie binden nicht-selektiv an verschiedene Rezeptorziele mit ähnlicher Potenz. Propofol, das oft als „GABAerges“ Mittel beschrieben wird, zeigt insbesondere eine höhere Potenz an nikotinischen Acetylcholinrezeptoren (nAChR) und hyperpolarisierungsaktivierten zyklischen Nukleotid-gesteuerten (HCN-)Kanälen als an GABA<sub> A </sub>-Rezeptoren. Zunehmende experimentelle Daten deuten darauf hin , dass die Modulation von Nicht-GABA<sub> A </sub>-Rezeptor-Zielstrukturen (wie z. B. Zwei-Poren-Domänen-Kaliumkanäle [ 60 , 61 ] , spannungsgesteuerte Natriumkanäle [ 62 ] usw. ) einige anästhetische Effekte erklären kann. Bei einigen Substanzen (hauptsächlich Ketamin , Xenon und Lachgas ) wird die Hemmung von Glutamat-gesteuerten N-Methyl-D-Aspartat-Rezeptoren (NMDAR) als primärer Wirkmechanismus angenommen (mit geringer bis keiner Wirkung auf GABA <sub>A </sub>-Rezeptoren). [ 1 ]
Historische Einwände gegen die frühen Lipidhypothesen
1. Stereoisomere eines Anästhetikums
Stereoisomere, die Spiegelbilder voneinander darstellen, werden als Enantiomere oder optische Isomere bezeichnet (z. B. die Isomere von R-(+)- und S-(−)-Etomidat). [ 1 ] In einer achiralen Umgebung (z. B. in der Lipiddoppelschicht) sind die physikochemischen Wirkungen von Enantiomeren stets identisch. In vivo können sich Enantiomere vieler Allgemeinanästhetika (z. B. Isofluran , Thiopental , Etomidat ) jedoch trotz ähnlicher Öl/Gas-Verteilungskoeffizienten stark in ihrer anästhetischen Potenz unterscheiden. [ 63 ] [ 64 ] Beispielsweise ist das R-(+)-Isomer von Etomidat zehnmal wirksamer als sein S-(−)-Isomer. [ 1 ] Dies bedeutet, dass sich optische Isomere zwar identisch in Lipiden verteilen, aber unterschiedliche Wirkungen auf Ionenkanäle und die synaptische Übertragung haben . Dieser Einwand liefert überzeugende Beweise dafür, dass das primäre Ziel von Anästhetika nicht die achirale Lipiddoppelschicht selbst ist, sondern vielmehr stereoselektive Bindungsstellen an Membranproteinen, die eine chirale Umgebung für spezifische Anästhetika-Protein-Interaktionen bereitstellen. [ 1 ]
Erwiderung auf den Einwand: 1) Der stereoselektive Transport des Anästhetikums wurde nicht berücksichtigt. Anästhetika sind hydrophob und werden im Blut proteingebunden transportiert. Jede stereoselektive Bindung an das Transportprotein würde die Konzentration am Wirkort verändern. Darüber hinaus könnte eine Proteinsenke in der Membran eines der Isomere etwas besser binden und die effektive Konzentration in der Membran verringern. Alle Stereoisomere sind wirksame Anästhetika; sie verändern lediglich die Empfindlichkeit. Dies legt nahe, dass selektiver Transport und selektive Proteinsenken in Betracht gezogen werden müssen. 2) Lipide sind chiral, genau wie Proteine. Und wie Proteine weisen auch Lipide geordnete und ungeordnete Bereiche auf. [ 65 ] [ 66 ] Die Chiralität geordneter Lipide wurde aufgrund mangelnder Kenntnisse über deren Existenz nicht untersucht.
2. Nicht-Immobilisatoren
Alle Allgemeinanästhetika bewirken eine Immobilisierung (fehlende Reaktion auf Schmerzreize) durch Dämpfung der Rückenmarksfunktionen, während ihre amnestische Wirkung im Gehirn erfolgt. Gemäß der Meyer-Overton-Korrelation ist die anästhetische Potenz eines Wirkstoffs direkt proportional zu seiner Lipidlöslichkeit. Es gibt jedoch viele Substanzen, die dieser Regel nicht genügen. Diese Wirkstoffe ähneln stark wirksamen Allgemeinanästhetika und werden aufgrund ihrer Lipidlöslichkeit als potente Anästhetika vorhergesagt. Sie bewirken jedoch nur einen Teil der anästhetischen Wirkung (Amnesie) und unterdrücken – anders als alle anderen Anästhetika – keine Bewegung (d. h. sie dämpfen nicht die Rückenmarksfunktionen). [ 67 ] [ 68 ] [ 69 ] [ 70 ] Diese Wirkstoffe werden als Nicht-Immobilisatoren bezeichnet. Die Existenz von Nicht-Immobilisatoren legt nahe, dass Anästhetika unterschiedliche Komponenten der anästhetischen Wirkung (Amnesie und Immobilität) durch Beeinflussung verschiedener molekularer Zielstrukturen und nicht nur einer Zielstruktur (der neuronalen Lipiddoppelschicht), wie früher angenommen, hervorrufen. [ 71 ] Ein gutes Beispiel für Nicht-Immobilisatoren sind halogenierte Alkane, die zwar stark hydrophob sind, aber in geeigneten Konzentrationen die Bewegung als Reaktion auf einen Schmerzreiz nicht unterdrücken. Siehe auch: Flurothyl .
Erwiderung auf den Einwand: Dies ist ein logischer Fehlschluss . Die Hypothese setzt nicht voraus, dass jedes jemals getestete Molekül ihr gehorcht, um wahr zu sein. Die Existenz von weniger als 10–20 verwandten Verbindungen, die bekanntermaßen der Meyer-Overton-Hypothese nicht gehorchen, widerlegt in keiner Weise die Hunderte, wenn nicht Tausende chemisch unterschiedlicher Verbindungen, die der Overton-Meyer-Hypothese gehorchen. Ausnahmen können aus Gründen auftreten, die nicht mit dem der Meyer-Overton-Hypothese zugrunde liegenden Mechanismus zusammenhängen.
3. Temperaturerhöhungen haben keine anästhetische Wirkung.
Experimentelle Studien haben gezeigt, dass Allgemeinanästhetika, einschließlich Ethanol, die Fluidität natürlicher und künstlicher Membranen stark erhöhen. Die Veränderungen der Membrandichte und -fluidität bei klinisch relevanten Konzentrationen von Allgemeinanästhetika sind jedoch so gering, dass bereits relativ kleine Temperaturerhöhungen (~1 °C) diese nachahmen können, ohne eine Anästhesie auszulösen. [ 72 ] Die Körpertemperaturänderung von etwa 1 °C liegt im physiologischen Bereich und reicht offensichtlich nicht aus, um per se einen Bewusstseinsverlust herbeizuführen. Membranen werden demnach nur durch große Mengen an Anästhetika fluidisiert; bei geringen, pharmakologisch relevanten Konzentrationen von Anästhetika treten keine Veränderungen der Membranfluidität auf.
Erwiderung auf den Einwand: Frühere Studien berücksichtigten lediglich die Fluidität der gesamten Lipidmembran. Neuere Arbeiten haben gezeigt, dass Temperaturänderungen in geordneten nanoskopischen Lipiddomänen über mehrere Grad auftreten können. [ 73 ] Darüber hinaus wird die Fluidität aktiv durch Fettsäure-Desaturasen reguliert . Und schließlich findet die Konkurrenz von Anästhetika mit palmitoylierten Proteinen unabhängig von der Temperatur und trotz erhöhter Ordnung der Lipide statt. [ 29 ]
4. Ab einer bestimmten Kettenlänge verschwindet der Effekt.
Gemäß der Meyer-Overton-Korrelation führt in einer homologen Reihe beliebiger Allgemeinanästhetika (z. B. n - Alkohole oder Alkane) eine Verlängerung der Kohlenstoffkette zu einer erhöhten Lipidlöslichkeit und damit zu einer entsprechenden Steigerung der anästhetischen Wirkung. Ab einer bestimmten Kettenlänge verschwindet die anästhetische Wirkung jedoch. Bei den n -Alkoholen liegt diese Grenze bei einer Kohlenstoffkettenlänge von etwa 13 [ 74 ] und bei den n- Alkanen, je nach Verbindung, zwischen 6 und 10 [ 75 ] .

Wenn Allgemeinanästhetika Ionenkanäle durch Einlagerung in die Lipiddoppelschicht und deren Störung beeinträchtigen, wäre zu erwarten, dass ihre Löslichkeit in Lipiddoppelschichten ebenfalls einen Cutoff-Effekt aufweist. Die Verteilung von Alkoholen in Lipiddoppelschichten zeigt jedoch keinen Cutoff für langkettige Alkohole von n - Decanol bis n - Pentadecanol . Die Auftragung der Kettenlänge gegen den Logarithmus des Lipiddoppelschicht/Puffer-Verteilungskoeffizienten K ergibt einen linearen Zusammenhang, wobei die Hinzufügung jeder Methylengruppe eine Änderung der freien Gibbs-Energie von -3,63 kJ/mol bewirkt.
Der Cutoff-Effekt wurde zunächst als Beleg dafür interpretiert, dass Anästhetika ihre Wirkung nicht durch globale Einwirkung auf Membranlipide entfalten, sondern durch direkte Bindung an hydrophobe Taschen mit genau definiertem Volumen in Proteinen. Mit zunehmender Länge der Alkylkette füllt das Anästhetikum einen größeren Teil der hydrophoben Tasche und bindet mit höherer Affinität. Ist das Molekül zu groß, um vollständig von der hydrophoben Tasche aufgenommen zu werden, steigt die Bindungsaffinität mit zunehmender Kettenlänge nicht weiter an. Somit liefert das Volumen der n-Alkanolkette bei der Cutoff-Länge eine Schätzung des Volumens der Bindungsstelle. Dieser Einwand bildete die Grundlage für die Proteinhypothese der anästhetischen Wirkung (siehe unten).

Der Cutoff-Effekt lässt sich jedoch weiterhin im Rahmen der Lipidhypothese erklären. [ 31 ] [ 76 ] Bei kurzkettigen Alkanolen (A) sind die Kettensegmente relativ starr (bezüglich der Konformationsentropie) und befinden sich in unmittelbarer Nähe der an die wässrige Grenzfläche gebundenen Hydroxylgruppe („Auftriebskörper“). Dadurch verteilen diese Segmente laterale Spannungen effizient vom Inneren der Doppelschicht zur Grenzfläche. Bei langkettigen Alkanolen (B) liegen die Kohlenwasserstoffkettensegmente weiter von der Hydroxylgruppe entfernt und sind flexibler als bei kurzkettigen Alkanolen. Die Effizienz der Druckverteilung nimmt mit zunehmender Länge der Kohlenwasserstoffkette ab, bis die anästhetische Wirkung ab einem bestimmten Punkt verloren geht. Es wurde postuliert, dass Polyalkanole (C) eine ähnliche anästhetische Wirkung wie kurzkettige 1-Alkanole aufweisen, wenn der Kettenabstand zwischen zwei benachbarten Hydroxylgruppen unterhalb des Cutoff-Wertes liegt. [ 77 ] Diese Annahme wurde durch experimentelle Befunde gestützt, da die Polyhydroxyalkane 1,6,11,16-Hexadecantetraol und 2,7,12,17-Octadecantetraol, wie ursprünglich vermutet, eine signifikante anästhetische Wirkung zeigten. [ 76 ]
Erwiderung auf den Einwand: Das Argument setzt voraus, dass alle Anästhetikaklassen auf die gleiche Weise an der Membran wirken. Es ist durchaus möglich, dass ein oder zwei Molekülklassen über einen nicht-membranvermittelten Mechanismus wirken. Beispielsweise wurde gezeigt, dass Alkohole über eine enzymatische Transphosphatidylierungsreaktion in die Lipidmembran eingebaut werden. [ 78 ] Der Ethanolmetabolit band an einen Anästhetikakanal und hemmte diesen. Und obwohl dieser Mechanismus einem einheitlichen Wirkmechanismus der Anästhesie widersprechen mag, schließt er einen membranvermittelten Wirkmechanismus nicht aus.
Referenzen
- ^ a b c d e f g h Weir, Cameron J. (2006). „Die molekularen Mechanismen der Allgemeinanästhesie: Eine Analyse des GABA<sub> A </sub>-Rezeptors“ . Continuing Education in Anaesthesia Critical Care & Pain . 6 (2): 49–53 . doi : 10.1093/bjaceaccp/mki068 .
- ^ Miller, Ronald D.; Cohen, Neal H.; Eriksson, Lars I.; Fleisher, Lee A.; Wiener-Kronish, Jeanine P.; Young, William L. (2014). Miller’s Anesthesia (8. Aufl.). Philadelphia: Saunders. ISBN 978-0-7020-5283-5OCLC 892338436 .
- ^ Egan, Talmage D. (2019). „Sind Opioide für die Allgemeinanästhesie unverzichtbar?“ British Journal of Anaesthesia . 122 (6): e127– e135 . doi : 10.1016/j.bja.2019.02.018 . PMID 31104756. S2CID 133023216 .
- ^ a b Urban, BW (2002). „Aktuelle Bewertung von Zielen und Theorien der Anästhesie“ . British Journal of Anaesthesia . 89 (1): 167–183 . doi : 10.1093/bja/aef165 . PMID 12173228 .
- Franks , Nicholas P. (2006). „ Molekulare Zielstrukturen der Allgemeinanästhesie“ . British Journal of Pharmacology . 147 (S1): S72– S81 . doi : 10.1038/sj.bjp.0706441 . PMC 1760740. PMID 16402123 .
- ^ a b Weir, CJ; Mitchell, SJ; Lambert, JJ (2017). „Rolle der GABA <sub> A </sub>-Rezeptorsubtypen bei den Verhaltenswirkungen intravenöser Allgemeinanästhetika“ . British Journal of Anaesthesia . 119 (Suppl. 1): i167– i175. doi : 10.1093/bja/aex369 . PMID 29161398 .
- ^ a b Drexler, Berthold; Antkowiak, Bernd; Engin, Elif; Rudolph, Uwe (2011). „Identifizierung und Charakterisierung von Anästhetika-Zielstrukturen mittels molekulargenetischer Methoden an Mäusen“ . Canadian Journal of Anesthesia . 58 (2): 178–190 . doi : 10.1007/s12630-010-9414-1 . PMC 3330822. PMID 21174184 .
- ^ Maehle, Andreas-Holger (2009). „ Eine Bindungsfrage: Die Evolution des Rezeptorkonzepts“ . Endeavour . 33 (4): 135–140 . doi : 10.1016/j.endeavour.2009.09.001 . PMC 2812702. PMID 19837460 .
- ^ Harless, Emil; von Bibra, Ernst (1847). Die Ergebnisse der Versuche über die Wirkung des Schwefeläthers . Erlangen.
- ^ a b Meyer, Hans Horst (1899). „Zur Theorie der Alkoholnarkose. Erste Mittheilung. Welche Eigenschaft der Anästhetika bedingt ihre narkotische Wirkung?“ . Archiv für experimentelle Pathologie und Pharmakologie . 42 ( 2– 4): 109– 118. doi : 10.1007/BF01834479 . S2CID 7040253 .
- ^ a b Meyer, Hans Horst (1901). „Zur Theorie der Alkoholnarkose. Dritte Mittheilung. Der Einfluss wechselnder Temperatur auf Wirkungsstärke und Theilungskoeffizient der Narcotica“ . Archiv für experimentelle Pathologie und Pharmakologie . 46 ( 5– 6): 338– 346. doi : 10.1007/BF01978064 . S2CID 30441885 .
- ^ Overton, Charles Ernest (1901). Studien über die Narkose: zugleich ein Beitrag zur allgemeinen Pharmakologie . Jena: Gustav Fischer. OCLC 876369243 .
- ^ a b Meyer, Kurt H. (1937). „Beiträge zur Theorie der Narkose“. Transactions of the Faraday Society . 33 : 1062–1068 . doi : 10.1039/tf9373301062 .
- ^ a b Franks, Nicholas P. ; Lieb, William R. (1978). „Wo wirken Allgemeinanästhetika?“. Nature . 274 (5669): 339– 342. Bibcode : 1978Natur.274..339F . doi : 10.1038/274339a0 . PMID 672957 . S2CID 4200246 .
- ^ Janoff AS, Pringle MJ, Miller KW (1981). „Korrelation der Potenz von Allgemeinanästhetika mit der Löslichkeit in Membranen“. Biochimica et Biophysica Acta (BBA) - Biomembranes . 649 (1): 125–128 . doi : 10.1016/0005-2736(81)90017-1 . PMID 7306543 .
- ^ Taheri S, Halsey MJ, Liu J, Eger EI, Koblin DD, Laster MJ (1991). „Welches Lösungsmittel repräsentiert am besten den Wirkort von Inhalationsanästhetika bei Menschen, Ratten und Hunden?“ Anesthesia & Analgesia . 72 (5): 627–634 . doi : 10.1213/00000539-199105000-00010 . PMID 2018220. S2CID 39187918 .
- ^ Vaes WH, Ramos EU, Hamwijk C, van Holsteijn I, Blaauboer BJ, Seinen W, Verhaar HJ, Hermens JL (1997). „Festphasenmikroextraktion als Werkzeug zur Bestimmung von Membran/Wasser-Verteilungskoeffizienten und bioverfügbaren Konzentrationen in In-vitro-Systemen“. Chemical Research in Toxicology . 10 (10): 1067–1072 . doi : 10.1021/tx970109t . PMID 9348427 .
- ^ Meijer LA, Leermakers FA, Lyklema J (1999). „Selbstkonsistente Feldmodellierung komplexer Moleküle mit vereinigten Atomdetails in inhomogenen Systemen. Zyklische und verzweigte Fremdmoleküle in Dimyristoylphosphatidylcholinmembranen“. Journal of Chemical Physics . 110 (13): 6560–6579 . Bibcode : 1999JChPh.110.6560M . doi : 10.1063 / 1.478562 .
- Pavel, Mahmud Arif; Petersen, E. Nicholas; Wang, Hao; Lerner, Richard A.; Hansen, Scott B. (16. Juni 2020). „Studien zum Wirkmechanismus der Allgemeinanästhesie“ . Proceedings of the National Academy of Sciences . 117 (24): 13757–13766 . Bibcode : 2020PNAS..11713757P . doi : 10.1073 / pnas.2004259117 . PMC 7306821. PMID 32467161 .
- ^ Curry, S.; Lieb, W. R.; Franks, N. P. (15. Mai 1990). „Wirkungen von Allgemeinanästhetika auf das bakterielle Luciferase-Enzym von Vibrio harveyi: ein anästhetisches Zielmolekül mit unterschiedlicher Empfindlichkeit“. Biochemistry . 29 (19): 4641–52 . doi : 10.1021/bi00471a020 . PMID 2372547 .
- ^ a b Miller KW, Paton WD, Smith RA, Smith EB (1973). „Die Druckumkehr der Allgemeinanästhesie und die Hypothese des kritischen Volumens“. Molecular Pharmacology . 9 (2): 131–143 . doi : 10.1016/S0026-895X(25)13842-X . PMID 4711696 .
- ^ Mullins LI (1954). „Einige physikalische Mechanismen der Narkose“. Chemical Reviews . 54 (2): 289–323 . Bibcode : 1954ChRv...54..289M . doi : 10.1021/cr60168a003 .
- Trudell , JR; Payan, DG; Chin, JH; Cohen, EN (1975). „Der antagonistische Effekt eines Inhalationsanästhetikums und hohen Drucks auf das Phasendiagramm gemischter Dipalmitoyl-Dimyristoylphosphatidylcholin-Doppelschichten“ . Proceedings of the National Academy of Sciences . 72 (1): 210–213 . Bibcode : 1975PNAS...72..210T . doi : 10.1073 / pnas.72.1.210 . PMC 432272. PMID 164016 .
- ^ Kendig, JJ; Grossman, Y.; MacIver, M. Bruce (1988). „Druckumkehr der Anästhesie: Ein synaptischer Mechanismus“ . British Journal of Anaesthesia . 60 (7): 806–816 . doi : 10.1093/bja/60.7.806 . PMID 2840107 .
- ^ Miller KW (1985). „Die Natur des Wirkortes der Allgemeinanästhesie“. International Review of Neurobiology, Band 27, S. 1–61. doi : 10.1016 / S0074-7742(08)60555-3 . ISBN 978-0-12-366827-1PMID 3910602 .
- ^ Seeman, P. (1974). „Die Membranexpansionstheorie der Anästhesie: Direkter Nachweis mittels Ethanol und eines hochpräzisen Dichtemessgeräts“. Experientia . 30 ( 7): 759–760 . doi : 10.1007/BF01924170 . PMID 4847658. S2CID 25056954 .
- ^ Jain, Mahendra K.; Yen-Min Wu, Nora; Wray, Lewis V. (1975). „Arzneimittelinduzierter Phasenwechsel in der Lipiddoppelschicht als möglicher Wirkungsmechanismus membranexpandierender Arzneimittel“. Nature . 255 ( 5508): 494–496 . Bibcode : 1975Natur.255..494J . doi : 10.1038/255494a0 . PMID 1138201. S2CID 2033461 .
- ^ a b Trudell JR (1977). „Eine einheitliche Theorie der Anästhesie basierend auf lateralen Phasentrennungen in Nervenmembranen“ . Anesthesiology . 46 (1): 5–10 . doi : 10.1097/00000542-197701000-00003 . PMID 12686. S2CID 24107213 .
- Pavel , MA; Petersen, EN; Wang, H; Lerner, RA ; Hansen, SB (16. Juni 2020). „ Studien zum Wirkmechanismus der Allgemeinanästhesie“ . Proceedings of the National Academy of Sciences of the United States of America . 117 (24): 13757–13766 . Bibcode : 2020PNAS..11713757P . doi : 10.1073 / pnas.2004259117 . PMC 7306821. PMID 32467161 .
- ^ Petersen, EN; Pavel, MA; Wang, H; Hansen, SB (1. Januar 2020). „Störung der Palmitat-vermittelten Lokalisierung; ein gemeinsamer Weg der Kraft- und Anästhesieaktivierung von TREK-1-Kanälen“ . Biochimica et Biophysica Acta (BBA) - Biomembranes . 1862 (1) 183091. doi : 10.1016/j.bbamem.2019.183091 . PMC 6907892. PMID 31672538 .
- Eckenhoff RG , Tanner JW, Johansson JS (1999). „ Sterische Hinderung ist für den n-Alkanol-Cutoff in löslichen Proteinen nicht erforderlich“. Molecular Pharmacology . 56 (2): 414–418 . doi : 10.1124/mol.56.2.414 . PMID 10419562 .
- ^ a b c Cantor RS (1997). „Das laterale Druckprofil in Membranen: Ein physikalischer Mechanismus der Allgemeinanästhesie“. Biochemistry . 36 (9): 2339–2344 . doi : 10.1021/bi9627323 . PMID 9054538 .
- ^ Lerner, Richard A. (1997). „Eine Hypothese über das endogene Analogon der Allgemeinanästhesie“ . Proceedings of the National Academy of Sciences . 94 (25): 13375–13377 . Bibcode : 1997PNAS...9413375L . doi : 10.1073 / pnas.94.25.13375 . PMC 33784. PMID 9391028 .
- Pavel , Mahmud Arif; Petersen, E. Nicholas; Wang, Hao; Lerner, Richard A.; Hansen, Scott B. (2020). „Studien zum Wirkmechanismus der Allgemeinanästhesie“ . Proceedings of the National Academy of Sciences . 117 (24): 13757–13766 . Bibcode : 2020PNAS..11713757P . doi : 10.1073 / pnas.2004259117 . PMC 7306821. PMID 32467161 .
- ^ Franks, Nicholas P .; Lieb, William R. (1984). „Wirken Allgemeinanästhetika durch kompetitive Bindung an spezifische Rezeptoren?“ Nature . 310 (16): 599–601 . Bibcode : 1984Natur.310..599F . doi : 10.1038 / 310599a0 . PMID 6462249. S2CID 4350646 .
- Franks NP, Jenkins A, Conti E, Lieb WR, Brick P (1998). „Strukturelle Grundlage für die Hemmung der Glühwürmchen-Luciferase durch ein Allgemeinanästhetikum“ . Biophysical Journal . 75 (5): 2205–2211 . Bibcode : 1998BpJ....75.2205F . doi : 10.1016/ S0006-3495 (98)77664-7 . PMC 1299894. PMID 9788915 .
- ^ LaBella FS, Stein D, Queen G (1998). „Besetzung der Substrattasche des Cytochrom P450 durch verschiedene Verbindungen in Konzentrationen, die bei Allgemeinanästhesie angewendet werden“. European Journal of Pharmacology . 358 (2): 177–185 . doi : 10.1016/S0014-2999(98)00596-2 . PMID 9808268 .
- ^ Franks, Nicholas P .; Lieb, William R. (1985). „Die Kartierung von Zielstrukturen allgemeiner Anästhetika liefert eine molekulare Grundlage für Abschneideeffekte“. Nature . 316 ( 6026): 349–351 . Bibcode : 1985Natur.316..349F . doi : 10.1038/316349a0 . PMID 4022125. S2CID 4239192 .
- ^ Miller, Keith W. (1985). „Die Natur des Wirkortes der Allgemeinanästhesie“. International Review of Neurobiology , Band 27, S. 1–61 . doi : 10.1016/S0074-7742(08)60555-3 . ISBN 978-0-12-366827-1PMID 3910602 .
- ^ Slater SJ, Cox KJ, Lombardi JV, Ho C, Kelly MB, Rubin E, Stubbs CD (1993). „Inhibition of protein kinase C by alcohols and anaesthetics“. Nature . 364 ( 6432): 82–84 . Bibcode : 1993Natur.364...82S . doi : 10.1038/364082a0 . PMID 8316305. S2CID 4343565 .
- ^ Hemmings Jr, HC; Adamo, AI (1994). „Wirkungen von Halothan und Propofol auf die Aktivierung der gereinigten Proteinkinase C im Gehirn“. Anesthesiology . 81 (1): 147–155 . doi : 10.1097/00000542-199409001-00886 . PMID 8042784 .
- ^ Franks, Nicholas P .; Lieb, William R. (1994). „Molekulare und zelluläre Mechanismen der Allgemeinanästhesie“. Nature . 367 (6464): 607–614 . Bibcode : 1994Natur.367..607F . doi : 10.1038/367607a0 . PMID 7509043. S2CID 4357493 .
- ^ Johansson JS, Gibney BR, Rabanal F, Reddy KS, Dutton PL (1998). „Eine gezielt eingebrachte Kavität im hydrophoben Kern eines Vier-α-Helix-Bündels verbessert die Bindungsaffinität flüchtiger Anästhetika“. Biochemistry . 37 (5): 1421–1429 . doi : 10.1021/bi9721290 . PMID 9477971 .
- ^ Cui T, Bondarenko V, Ma D, Canlas C, Brandon NR, Johansson JS, Xu Y, Tang P (2008). „Vier-α-Helix-Bündel mit designten Anästhetika-Bindungstaschen. Teil II: Halothan-Effekte auf Struktur und Dynamik“ . Biophysical Journal . 94 (11): 4464–4472 . Bibcode : 2008BpJ....94.4464C . doi : 10.1529/biophysj.107.117853 . PMC 2480694. PMID 18310239 .
- ^ Ma D, Brandon NR, Cui T, Bondarenko V, Canlas C, Johansson JS, Tang P, Xu Y (2008). „Vier-α-Helix-Bündel mit designten Anästhetika-Bindungstaschen. Teil I: Struktur- und Dynamikanalysen“ . Biophysical Journal . 94 (11): 4454–4463 . Bibcode : 2008BpJ....94.4454M . doi : 10.1529/ biophysj.107.117838 . PMC 2480675. PMID 18310240 .
- ^ Liu R, Loll PJ, Eckenhoff RG (2005). „Strukturelle Grundlage für die hochaffine Bindung flüchtiger Anästhetika an ein natürliches 4-Helix-Bündelprotein“ . FASEB Journal . 19 (6): 567–576 . doi : 10.1096/fj.04-3171com . PMID 15791007. S2CID 27832370 .
- Tang P, Xu Y (2002). „Groß angelegte Molekulardynamiksimulationen der Wirkung von Allgemeinanästhetika auf den Ionenkanal in der vollständig hydratisierten Membran: Die Bedeutung molekularer Mechanismen der Allgemeinanästhesie“ . Proceedings of the National Academy of Sciences . 99 (25): 16035–16040 . Bibcode : 2002PNAS...9916035T . doi : 10.1073/pnas.252522299 . PMC 138560. PMID 12438684 .
- ^ Canlas CG, Cui T, Li L, Xu Y, Tang P (2008). „Anästhetische Modulation der Proteindynamik: Erkenntnisse aus einer NMR-Studie“ . Journal of Physical Chemistry B. 112 ( 45): 14312–14318 . Bibcode : 2008JPCB..11214312C . doi : 10.1021/jp805952w . PMC 2669902. PMID 18821786 .
- ^ Mihic SJ, Ye Q, Wick MJ, Koltchine VV, Krasowski MD, Finn SE, Mascia MP, Valenzuela CF, Hanson KK, Greenblatt EP, Harris RA, Harrison NL (1997). „Wirkorte von Alkohol und flüchtigen Anästhetika an GABA<sub> A</sub>- und Glycinrezeptoren“. Nature . 389 (6649): 385–389 . Bibcode : 1997Natur.389..385M . doi : 10.1038/38738 . PMID 9311780. S2CID 4393717 .
- ^ Kim, Jeong Joo; Gharpure, Anant; Teng, Jinfeng; Zhuang, Yuxuan; Howard, Rebecca J.; Zhu, Shaotong; Noviello, Colleen M.; Walsh, Richard M.; Lindahl, Erik; Hibbs, Ryan E. (2020). „Menschlicher GABA- A- Rezeptor-Subtyp α1-β2-γ2 im Komplex mit GABA plus Propofol“. RCSB PDB . doi : 10.2210/pdb6X3T/pdb . S2CID 225185057 .
- ^ Kim, Jeong Joo; Gharpure, Anant; Teng, Jinfeng; Zhuang, Yuxuan; Howard, Rebecca J.; Zhu, Shaotong; Noviello, Colleen M.; Walsh, Richard M.; Lindahl, Erik; Hibbs, Ryan E. (2020). „Gemeinsame Strukturmechanismen von Allgemeinanästhetika und Benzodiazepinen“ . Nature . 585 ( 7824): 303–308 . doi : 10.1038/s41586-020-2654-5 . PMC 7486282. PMID 32879488 .
- ^ Sallard, Erwan; Letourneur, Diane; Legendre, Pascal (2021). „Elektrophysiologie ionotroper GABA-Rezeptoren“ . Cellular and Molecular Life Sciences . 78 (13): 5341–5370 . doi : 10.1007/s00018-021-03846-2 . PMC 8257536. PMID 34061215 .
- Yip , Grace MS; Chen, Zi-Wei; Edge, Christopher J.; Smith, Edward H.; Dickinson, Robert; Hohenester, Erhard; Townsend, R. Reid; Fuchs, Karoline; Sieghart, Werner; Evers, Alex S.; Franks, Nicholas P. (2013). „Identifizierung einer Propofol-Bindungsstelle an GABA<sub> A </sub>-Rezeptoren von Säugetieren durch Photomarkierung“ . Nature Chemical Biology . 9 (11): 715–720 . doi : 10.1038/nchembio.1340 . PMC 3951778. PMID 24056400 .
- ^ Bieda, Mark C.; MacIver, M. Bruce (2004). „Wichtige Rolle der tonischen GABA<sub> A </sub>-Leitfähigkeit bei der anästhetischen Unterdrückung der intrinsischen neuronalen Erregbarkeit“. Journal of Neurophysiology . 92 (3): 1658–1667 . doi : 10.1152/jn.00223.2004 . PMID 15140905 .
- ^ Chiara DC, Dostalova Z, Jayakar SS, Zhou X, Miller KW, Cohen JB (2012). „Kartierung der Bindungsstelle(n) von Allgemeinanästhetika in humanen α1β3-GABA-A-Rezeptoren mit [³H]TDBzl-Etomidat, einem photoreaktiven Etomidat-Analogon“ . Biochemistry . 51 ( 4): 836–47 . doi : 10.1021/bi201772m . PMC 3274767. PMID 22243422 .
- ^ Dai, Shuiping; Perouansky, Misha; Pearce, Robert A. (2009). „Amnestische Konzentrationen von Etomidat modulieren die GABA<sub> A</sub> -vermittelte , langsame synaptische Inhibition im Hippocampus“ . Anesthesiology . 111 (4): 766–773 . doi : 10.1097/ALN.0b013e3181b4392d . PMC 2797577. PMID 19741493 .
- ^ Hentschke, Harald; Schwarz, Cornelius; Antkowiak, Bernd (2005). „Der Neocortex ist das Hauptziel sedativer Konzentrationen volatiler Anästhetika: starke Depression der Feuerungsrate und Zunahme der GABA<sub> A </sub> -Rezeptor-vermittelten Inhibition“. European Journal of Neuroscience . 21 (1): 93–102 . doi : 10.1111/j.1460-9568.2004.03843.x . PMID 15654846. S2CID 12707025 .
- ^ Forman, Stuart A. (16.02.2026). „Ist unser Diskurs über die molekularen Mechanismen der Allgemeinanästhesie zu vereinfacht?“ . Anesthesia & Analgesia . doi : 10.1213/ANE.0000000000007954 . ISSN 0003-2999 .
- Kale , Kush M.; Goldstein, Peter A.; Pandit, Jaideep J. (23.01.2026). „Sind GABAerge Wirkstoffe wirklich so selektiv für GABA? Implikationen für Single-Site- versus Multi-Site-Hypothesen aus dem promiskuitiven Verhalten von Anästhetika und ihren molekularen Zielstrukturen in vitro“ . Anesthesia & Analgesia . doi : 10.1213/ANE.0000000000007888 . ISSN 0003-2999 .
- ^ Patel, Amanda J.; Honoré, Eric; Lesage, Florian; Fink, Michel; Romey, Georges; Lazdunski, Michel (1999). „Inhalationsanästhetika aktivieren Zwei-Poren-Domänen-Hintergrund-K+-Kanäle“. Nature Neuroscience . 2 (5): 422–426 . doi : 10.1038/8084 . PMID 10321245. S2CID 23092576 .
- Steinberg , EA; Wafford, KA; Brickley, SG; Franks, Nicholas P .; Wisden, W. (2015). „Die Rolle von K2P-Kanälen in Anästhesie und Schlaf“ . Pflügers Archiv: European Journal of Physiology . 467 (5): 907–916 . doi : 10.1007/s00424-014-1654-4 . PMC 4428837. PMID 25482669 .
- ^ Denomme, Nicholas; Hull, Jacob M.; Mashour, George A. (2019). „Rolle spannungsgesteuerter Natriumkanäle im Mechanismus der ätherinduzierten Bewusstlosigkeit“ . Pharmacological Reviews . 71 (4): 450–466 . doi : 10.1124/pr.118.016592 . PMID 31471460. S2CID 201757964 .
- ^ Nau C, Strichartz GR (2002). „ Arzneimittelchiralität in der Anästhesie“ . Anesthesiology . 97 (2): 497–502 . doi : 10.1097/00000542-200208000-00029 . PMID 12151942. S2CID 2388540 .
- ^ Franks, Nicholas P .; Lieb, William R. (1991). „Stereospezifische Effekte optischer Isomere von Inhalationsanästhetika auf Nervenionenkanäle“. Science . 254 (5030): 427–430 . Bibcode : 1991Sci...254..427F . doi : 10.1126/science.1925602 . PMID: 1925602 .
- ^ Cebecauer, M.; Amaro, M.; Jurkiewicz, P.; Sarmento, M.J.; Šachl, R.; Cwiklik, L.; Hof, M. (12. Dezember 2018). „Membranlipid-Nanodomänen“. Chemical Reviews . 118 (23): 11259–11297 . doi : 10.1021/acs.chemrev.8b00322 . PMID 30362705. S2CID 53096675 .
- ^ Sezgin, E.; Levental, I.; Mayor, S.; Eggeling, C. (Juni 2017). „Das Geheimnis der Membranorganisation: Zusammensetzung, Regulation und Rolle von Lipid Rafts“ . Nature Reviews Molecular Cell Biology . 18 (6): 361–374 . Bibcode : 2017NRMCB..18..361S . doi : 10.1038/nrm.2017.16 . PMC 5500228. PMID 28356571 .
- ^ Kandel L, Chortkoff BS, Sonner J, Laster MJ, Eger EI (1996). „Nichtanästhetika können das Lernen unterdrücken“ . Anesthesia & Analgesia . 82 (2): 321–326 . doi : 10.1097/00000539-199602000-00019 . PMID 8561335. S2CID 32518667 .
- ^ Koblin DD, Chortkoff BS, Laster MJ, Eger EI II, Halsey MJ, Ionescu P (1994). „Polyhalogenierte und perfluorierte Verbindungen, die der Meyer-Overton-Hypothese widersprechen“ . Anesthesia & Analgesia . 79 (6): 1043–1048 . doi : 10.1213/00000539-199412000-00004 . PMID 7978424 .
- Fang Z, Sonner J, Laster MJ, Ionescu P, Kandel L, Koblin DD, Eger EI II, Halsey MJ (1996). „ Anästhetische und krampfauslösende Eigenschaften aromatischer Verbindungen und Cycloalkane: Implikationen für die Mechanismen der Narkose“ . Anesthesia & Analgesia . 83 (5): 1097–1104 . doi : 10.1097/00000539-199611000-00035 . PMID 8895293. S2CID 25929855 .
- ^ Taheri S, Laster MJ, Liu J, Eger EI II, Halsey MJ, Koblin DD (1993). „Anästhesie durch n-Alkane entspricht nicht der Meyer-Overton-Hypothese: Bestimmung der Löslichkeit von Alkanen in Kochsalzlösung und verschiedenen Lipiden“ . Anästhesie und Analgesie . 77 (1): 7–11 . doi : 10.1213/00000539-199307000-00003 . PMID 8317750 .
- ^ Eger EI, Koblin DD, Harris RA, Kendig JJ, Pohorille A, Halsey MJ, Trudell JR (1997). „ Hypothese: Inhalationsanästhetika erzeugen Immobilität und Amnesie durch unterschiedliche Mechanismen an verschiedenen Stellen“ . Anesthesia & Analgesia . 84 (4): 915–918 . doi : 10.1097/00000539-199704000-00039 . PMID 9085981. S2CID 890662 .
- ^ Franks, Nicholas P .; Lieb, William R. (1982). „ Molekulare Mechanismen der Allgemeinanästhesie“. Nature . 300 (5892): 487–493 . Bibcode : 1982Natur.300..487F . doi : 10.1038/300487a0 . PMID 6755267. S2CID 4277388 .
- Gray , E.; Karslake, J.; Machta, B. B.; Veatch, S. L. (17. Dezember 2013). „Flüssige Allgemeinanästhetika senken die kritischen Temperaturen in Plasmamembranvesikeln“ . Biophysical Journal . 105 (12): 2751–2759 . arXiv : 1309.2684 . Bibcode : 2013BpJ...105.2751G . doi : 10.1016/j.bpj.2013.11.005 . PMC 3882514. PMID 24359747 .
- ^ Pringle MJ, Brown KB, Miller KW (1981). „Können die Lipidtheorien der Anästhesie die Grenze der anästhetischen Potenz in homologen Reihen von Alkoholen erklären?“ Molecular Pharmacology . 19 ( 1): 49–55 . doi : 10.1016/S0026-895X(25)12536-4 . PMID 7207463 .
- ^ Liu J, Laster MJ, Taheri S, Eger EI, Koblin DD, Halsey MJ (1993). „Gibt es eine Grenze für die Anästhesiewirkung der normalen Alkane?“ . Anästhesie und Analgesie . 77 (1): 12–18 . doi : 10.1213/00000539-199307000-00004 . PMID 8317717 . S2CID 24811390 .
- ^ a b Mohr JT, Gribble GW, Lin SS, Eckenhoff RG, Cantor RS (2005). „Anästhetische Potenz zweier neuartiger synthetischer mehrwertiger Alkanole mit längerer Kettenlänge als die n-Alkanol-Grenze: Hinweise auf einen durch eine Doppelschicht vermittelten Anästhesiemechanismus?“. Journal of Medicinal Chemistry . 48 (12): 4172–76 . doi : 10.1021/jm049459k . PMID 15943489 .
- ^ Cantor RS (2001). „Die Meyer-Overton-Regel aufheben: Vorhergesagte Auswirkungen variierender Steifigkeit und Grenzflächenaktivität auf die intrinsische Wirksamkeit von Anästhetika“ . Biophysical Journal . 80 (5): 2284–2297 . Bibcode : 2001BpJ....80.2284C . doi : 10.1016/ S0006-3495 (01)76200-5 . PMC 1301419. PMID 11325730 .
- ^ Chung, HW; Petersen, EN; Cabanos, C; Murphy, KR; Pavel, MA; Hansen, AS; Ja, WW; Hansen, SB (18. Januar 2019). „Ein molekulares Ziel für einen Alkoholkettenlängen-Cutoff“ . Journal of Molecular Biology . 431 (2): 196–209 . doi : 10.1016 / j.jmb.2018.11.028 . PMC 6360937. PMID 30529033 .


