Trilobites (/ˈtraɪləˌbaɪts,ˈtrɪlə-/;[4][5][6] meaning "three-lobed entities") are extinctmarinearthropods that form the classTrilobita. One of the earliest groups of arthropods to appear in the fossil record, trilobites were among the most successful of all early animals, existing in oceans for almost 270 million years, with over 22,000 species having been described.
Because trilobites had wide diversity and an easily fossilized mineralised exoskeleton made of calcite, they left an extensive fossil record. The study of their fossils has facilitated important contributions to biostratigraphy, paleontology, evolutionary biology, and plate tectonics. Trilobites are placed within the clade Artiopoda, which includes many organisms that are morphologically similar to trilobites, but are largely unmineralised. The relationship of Artiopoda to other arthropods is uncertain.
Trilobiten entwickelten sich in viele ökologische Nischen; einige bewegten sich als Räuber , Aasfresser oder Filtrierer über den Meeresboden , andere schwammen und ernährten sich von Plankton . Manche krochen sogar an Land. [ 7 ] Die meisten Lebensweisen, die man von modernen marinen Arthropoden erwartet, finden sich auch bei Trilobiten, mit der möglichen Ausnahme des Parasitismus (über den die Wissenschaft noch diskutiert). [ 8 ] Es wird sogar angenommen, dass einige Trilobiten (insbesondere die Familie Olenidae ) eine Symbiose mit schwefelfressenden Bakterien entwickelten , von denen sie sich ernährten. [ 9 ] Die größten Trilobiten waren über 70 Zentimeter lang und wogen möglicherweise bis zu 4,5 Kilogramm. [ 10 ]
Das erste Auftreten von Trilobiten im Fossilienbestand markiert den Beginn des Atdabanium/Kambrium-Stadiums 3 des frühen Kambriums vor etwa 521 Millionen Jahren . Schon kurz nach ihrem Entstehen waren Trilobiten artenreich und weltweit verbreitet. Ihre Artenvielfalt erreichte im späten Kambrium bis Ordovizium ihren Höhepunkt und blieb auch im darauffolgenden Silur und frühen Devon hoch. Im mittleren bis späten Devon ging ihre Diversität jedoch stark zurück, bedingt durch aufeinanderfolgende Aussterbeereignisse wie das Taghanic-Ereignis , das Massenaussterben am Ende des Devons (Kellwasser-Ereignis) und das Hangenberg-Ereignis am Ende des Devons . Diese Ereignisse vernichteten den Großteil der Trilobitenvielfalt, sodass nur die Proetida als einzige Ordnung überlebten. Im frühen Karbon erholte sich ihre Diversität etwas , bevor sie im späten Karbon und Perm auf ein dauerhaft niedriges Niveau sank . Dennoch blieben sie bis zu ihrem Ende weit verbreitet. Die letzten Trilobiten verschwanden beim Massenaussterben am Ende des Perms vor etwa 251,9 Millionen Jahren; zu diesem Zeitpunkt existierten nur noch wenige Arten.
Evolution
Verwandte der Trilobiten
Trilobiten gehören zu den Artiopoda , einer Gruppe ausgestorbener Arthropoden , die morphologisch den Trilobiten ähneln, obwohl nur die Trilobiten stark mineralisierte Exoskelette besaßen. Daher findet man andere Artiopoden typischerweise nur in außergewöhnlich gut erhaltenen Ablagerungen, hauptsächlich aus dem Kambrium.
Die genauen Verwandtschaftsverhältnisse der Artiopoden zu anderen Arthropoden sind unklar. Einige Wissenschaftler betrachten sie als eng verwandt mit den Cheliceraten (zu denen Pfeilschwanzkrebse , Seespinnen und Spinnentiere gehören ) und als Teil eines Taxons namens Arachnomorpha , während andere sie eher mit den Mandibulata (zu denen Insekten , Krebstiere und Tausendfüßer gehören ) und als Teil eines Taxons namens Antennulata verwandt sehen . [ 11 ]
Kladogramm der Artiopoda einschließlich der Trilobiten nach Berks et al. 2023. [ 12 ]


Fossilienfunde früher Trilobiten
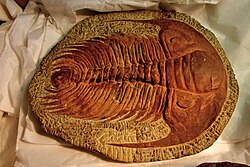


Die frühesten aus dem Fossilienbestand bekannten Trilobiten sind Redlichiiden und Ptychopariiden Bigotiniden, die auf die Zeit vor etwa 520 Millionen Jahren datiert werden. [ 1 ] [ 2 ] Zu den Anwärtern auf die frühesten Trilobiten zählen Profallotaspis jakutensis (Sibirien), Fritzaspis spp. (westliche USA), Hupetina antiqua (Marokko) [ 13 ] [ 14 ] und Serrania gordaensis (Spanien). [ 15 ] Trilobiten tauchten ungefähr zur gleichen Zeit in Laurentia , Sibirien und West- Gondwana auf . [ 14 ] [ 16 ]
Alle Olenellina besitzen keine Gesichtsnähte (siehe unten ), was als ursprünglicher Zustand gilt. Der bisher älteste gefundene Trilobit mit Gesichtsnähten ( Lemdadella ) stammt fast zeitgleich mit den frühesten Olenellina, was darauf hindeutet, dass der Ursprung der Trilobiten vor Beginn des Atdabaniums liegt, jedoch ohne dass Fossilien erhalten geblieben sind. [ 1 ] Andere Gruppen, wie alle Agnostina und einige Phacopina , weisen sekundär verlorene Gesichtsnähte auf . Ein weiteres gemeinsames Merkmal der Olenellina deutet ebenfalls darauf hin, dass diese Unterordnung der Stammvater der Trilobiten ist: Frühe Protaspidenstadien wurden nicht gefunden, vermutlich weil sie nicht verkalkt waren, was ebenfalls als ursprünglicher Zustand gilt. [ 17 ] Möglicherweise werden noch frühere Trilobiten gefunden, die weitere Erkenntnisse über ihren Ursprung liefern könnten. [ 1 ] [ 18 ] [ 19 ]
Drei Exemplare des Trilobiten Megistaspis hammondi aus Marokko , die auf ein Alter von 478 Millionen Jahren datiert wurden, enthalten fossilisierte Weichteile. [ 20 ] [ 21 ] Im Jahr 2024 entdeckten Forscher Weichteile und andere Strukturen, darunter das Labrum , in gut erhaltenen Trilobitenexemplaren aus dem Kambrium (Stufe 4) in Marokko. Dies lieferte neue anatomische Erkenntnisse über die äußere und innere Morphologie von Trilobiten. Die Ursache für diese außergewöhnliche Erhaltung liegt wahrscheinlich in ihrem schnellen Tod nach einem pyroklastischen Strom unter Wasser. [ 22 ]
Divergenz und Aussterben

Trilobiten erlebten im Laufe der Zeit eine große Diversifizierung. [ 23 ] Angesichts der langen Lebensdauer dieser Tiergruppe ist es nicht verwunderlich, dass die Evolutionsgeschichte der Trilobiten von mehreren Aussterbeereignissen geprägt ist, bei denen einige Gruppen ausstarben und die überlebenden Gruppen sich diversifizierten, um ökologische Nischen mit vergleichbaren oder einzigartigen Anpassungen zu besetzen. Im Allgemeinen wiesen die Trilobiten während des Kambriums und Ordoviziums eine hohe Artenvielfalt auf, bevor im Devon ein langwieriger Rückgang einsetzte , der schließlich am Ende des Perms zum endgültigen Aussterben der letzten Überlebenden führte . [ 24 ]
Evolutionstrends
Zu den wichtigsten evolutionären Trends, ausgehend von primitiven Morphologien wie beispielsweise Eoredlichia [ 25 ], gehören die Entstehung neuer Augentypen, die Verbesserung von Einroll- und Gelenkmechanismen, die Vergrößerung des Pygidiums (von Mikropygie zu Isopygie) und die Entwicklung extremer Bedornung in bestimmten Gruppen [ 24 ] . Weitere Veränderungen umfassen die Verengung des Thorax und die Zu- oder Abnahme der Anzahl der Thoraxsegmente [25]. Spezifische Veränderungen des Cephalons wurden ebenfalls beobachtet: variable Größe und Form der Glabella, Position der Augen und Gesichtsnähte sowie Spezialisierung des Hypostoms [25]. Mehrere Morphologien traten unabhängig voneinander innerhalb verschiedener Haupttaxa auf (z. B. Reduktion oder Miniaturisierung der Augen ) [ 25 ] .
Die Verflachung, also der Verlust von Oberflächendetails am Cephalon, Pygidium oder den Thoraxfurchen, ist ebenfalls ein häufiges evolutionäres Phänomen. Bekannte Beispiele hierfür sind die Ordnungen Agnostida und Asaphida sowie die Unterordnung Illaenina der Corynexochida . Man geht davon aus, dass die Verflachung auf eine grabende oder pelagische Lebensweise hinweist. Sie stellt Taxonomen vor ein Problem , da der Verlust von Details (insbesondere der Glabella ) die Bestimmung phylogenetischer Verwandtschaftsverhältnisse erschweren kann. [ 26 ]
Kambrium
Obwohl man historisch vermutete, dass Trilobiten im Präkambrium entstanden [ 1 ] [ 27 ], gilt diese Annahme heute nicht mehr. Man geht vielmehr davon aus, dass Trilobiten kurz vor ihrem ersten Auftreten im Fossilienbestand entstanden [ 16 ] . Kurz nach dem ersten Auftreten von Trilobitenfossilien im Unterkambrium diversifizierten sie sich rasch in die für das Kambrium typischen Hauptordnungen: Redlichiida , Ptychopariida , Agnostida und Corynexochida . Die erste große Krise im Trilobitenfossilienbestand ereignete sich im Mittelkambrium ; die überlebenden Ordnungen entwickelten Isopygius- oder Macropygius-Körper und dickere Cuticula, was einen besseren Schutz vor Fressfeinden ermöglichte (siehe Thorax unten) [ 28 ] . Das Oberkambrium markiert den Beginn der Blütezeit der Trilobitenvielfalt [ 29 ] . Das Massenaussterben am Ende des Kambriums führte zu einer bedeutenden Veränderung der Trilobitenfauna. Fast alle Redlichiida (einschließlich der Olenelloidea) und die meisten spätkambrischen Populationen starben aus. [ 24 ] Zeitgleich mit dem Artensterben wurde ein kontinuierlicher Rückgang der Fläche des Laurentischen Kontinentalschelfs [ 30 ] verzeichnet, was auf einen tiefgreifenden Umweltwandel hindeutet.
Zu den bemerkenswerten Trilobitengattungen, die im Kambrium auftraten, gehören: [ 31 ]
- Abadiella (Unterkambrium)
- Buenellus (Unterkambrium)
- Judomia (Unterkambrium)
- Olenellus (Unterkambrium)
- Ellipsocephalus (Mittleres Kambrium)
- Elrathia (Mittleres Kambrium)
- Paradoxides (Mittleres Kambrium)
- Peronopsis (Mittleres Kambrium)
- Xiuqiella (Mittleres Kambrium)
- Yiliangella (Mittleres Kambrium)
- Yiliangellina (Mittleres Kambrium)
- Olenus (Spätkambrium)
Ordovizium
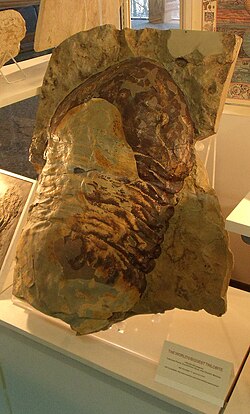

Das frühe Ordovizium ist durch eine starke Radiation artikulierter Brachiopoden, Bryozoen, Muscheln, Stachelhäuter und Graptolithen gekennzeichnet, wobei viele Gruppen erstmals im Fossilienbestand auftauchen. [ 24 ] Obwohl die Diversität innerhalb der Trilobitenarten im Kambrium ihren Höhepunkt erreicht zu haben scheint, [ 32 ] waren Trilobiten weiterhin aktiv an der ordovizischen Radiation beteiligt, wobei eine neue Fauna die alte kambrische ablöste . [ 33 ] Phacopida und Trinucleioidea sind charakteristische, hochdifferenzierte und vielfältige Formen, deren Vorfahren größtenteils im Dunkeln liegen. [ 24 ] Die Phacopida und andere „neue“ Kladen hatten mit hoher Wahrscheinlichkeit kambrische Vorfahren, doch die Tatsache, dass sie bisher unentdeckt blieben, deutet stark darauf hin, dass sich neue Morphologien sehr schnell entwickelten. [ 17 ] Veränderungen innerhalb der Trilobitenfauna während des Ordoviziums kündigten das Massenaussterben am Ende des Ordoviziums an und ermöglichten es vielen Familien, im Silur weitgehend ungestört fortzubestehen. [ 33 ] Ordovizische Trilobiten besiedelten erfolgreich neue Lebensräume, insbesondere Riffe . Das Massenaussterben im Ordovizium verschonte die Trilobiten jedoch nicht; einige markante und zuvor erfolgreiche Formen wie die Telephinidae und Agnostida starben aus. Das Ordovizium markiert die letzte große Diversifizierungsphase der Trilobiten: Nach dem Ordovizium entstanden nur sehr wenige völlig neue Organisationsmuster. Die spätere Evolution der Trilobiten bestand größtenteils aus Variationen der ordovizischen Merkmale. Mit dem Massenaussterben im Ordovizium kam die intensive Radiation der Trilobiten zum Erliegen, und ein allmählicher Rückgang kündigte sich an. [ 24 ] Das Ordovizium markiert den Höhepunkt der morphologischen und Artenvielfalt der Trilobiten. [ 29 ]
Zu den im Ordovizium vorkommenden Gattungen der Trilobiten gehören: [ 31 ]
- Cyclopyge (Frühes bis spätes Ordovizium)
- Selenopeltis (Frühes bis spätes Ordovizium)
- Parabolina (Frühes Ordovizium)
- Cheirurus (Mittleres Ordovizium)
- Eodalmanitina (Mittleres Ordovizium)
- Trinucleus (Mittleres Ordovizium)
- Triarthrus (Spätordovizium)
Silur und Devon

Die meisten Familien des frühen Silurs bilden eine Untergruppe der Fauna des späten Ordoviziums. Nur wenige, wenn überhaupt, der dominanten Fauna des frühen Ordoviziums überlebten bis zum Ende des Ordoviziums, doch 74 % der dominanten Trilobitenfauna des späten Ordoviziums überdauerten das Ordovizium. Die Überlebenden des späten Ordoviziums umfassen alle postordovizischen Trilobitengruppen mit Ausnahme der Harpetida . [ 33 ] Silurische und devonische Trilobitenvergesellschaftungen ähneln oberflächlich den ordovizischen Vergesellschaftungen und werden von Lichida und Phacopida (einschließlich der bekannten Calymenina ) dominiert. [ 25 ] Die Diversität der Trilobiten im Silur war während des Llandovery und Wenlock hoch , sank jedoch während des Pridoli am Ende dieser Periode stark ab, gefolgt von einer Diversifizierung im frühen Devon, die im Emsium mit 180 Trilobitengattungen ihren Höhepunkt erreichte . [ 29 ]
Das mittlere bis späte Devon markierte einen entscheidenden Wendepunkt in der Geschichte der Trilobiten. Das Taghanic-Ereignis im Givetium führte zu einem starken Rückgang der Trilobitenvielfalt, insbesondere in Flachwassergebieten. Darauf folgte das Massenaussterben im späten Devon , auch Kellwasser-Ereignis genannt (eine Kombination aus Meeresspiegelanstieg und mariner Anoxie ), an der Frasnium - Famennium- Grenze. Dieses Ereignis gilt weithin als eines der bedeutendsten Massenaussterben der Erdgeschichte und dezimierte die Vielfalt der Trilobiten, einschließlich der Ordnungen Corynexochida , Harpetida und Odontopleurida . Die geringe Trilobitenvielfalt im Famennium, die nur noch aus den Ordnungen Phacopida und Proetida bestand, wurde am Ende des Devons durch das Hangenberg-Ereignis (auch als enddevonisches Massenaussterben bezeichnet) erneut stark beeinträchtigt , wobei sowohl Flachwasser- als auch Tiefwasser-Trilobiten betroffen waren. [ 29 ] Nur eine einzige Ordnung, die Proetida, überlebte bis ins Karbon. [ 24 ]
Zu den Gattungen der Trilobiten während des Silurs und Devons gehören: [ 31 ]
- Dalmaniten (Frühes bis Spätes Silur)
- Kalymene (Silur)
- Encrinurus (Silur)
- Exallaspis (Mittleres bis spätes Silur)
- Paralejurus (Unterdevon)
- Lioharpes (Frühes bis Mittleres Devon)
- Phacops (Mittleres bis spätes Devon)
Karbon und Perm
Die Proetida , die einzige Trilobitenordnung, die das Ende des Devons überlebte, existierte im Karbon und bis zum Ende des Perms (als die überwiegende Mehrheit der Arten auf der Erde ausstarb ). [ 24 ] Proetiden waren im Allgemeinen morphologisch homogen (einander ähnlich), besaßen eine eher konservative Körperform [ 34 ] und waren vermutlich alle Raubtiere oder Aasfresser. Im frühen Karbon ( Tournasium ) diversifizierten sich die Trilobiten rasant und erreichten eine Artenvielfalt, die seit dem Taghanic-Ereignis nicht mehr beobachtet worden war. Der größte Teil dieser Diversifizierung betraf jedoch die Familie Phillipsiidae , während sich andere Trilobitenfamilien kaum erholten. Im Serpukhovium am Ende des frühen Karbons ging die Trilobitendiversität erneut stark zurück und blieb im gesamten späten Karbon auf einem niedrigen Niveau. Die Trilobitenvielfalt könnte durch ökologische Veränderungen während des Karbons beeinflusst worden sein, wie beispielsweise durch das Auftreten von durophagen Fischen mit mahlenden Mundwerkzeugen. [ 29 ]
Am Ende des Karbons war die Diversität der Trilobiten auf nur noch 1,8–2,2 % (etwa 7 Gattungen [ 35 ] ) der im frühen Paläozoikum erreichten Höchstwerte gesunken, und diese geringe Diversität setzte sich im Perm fort. Während des Perms waren Trilobiten zwar weit verbreitet und in verschiedenen Lebensräumen anzutreffen, stellten aber im Gegensatz zu ihrer oft großen Häufigkeit im frühen Paläozoikum typischerweise seltene Bestandteile der lokalen Fauna dar. [ 34 ] Die Trilobitendiversität des Perms erreichte im Guadalupium ihren Höhepunkt und sank zu Beginn des darauffolgenden Lopingiums rapide ab . [ 36 ]
Zu den Gattungen der Trilobiten aus dem Karbon und Perm gehören: [ 31 ]
- Archegonus (Frühes bis Mittleres Karbon)
- Hessleriden (Mittleres Karbon)
- Endops ( Mittleres Perm )
- Triproetus (Spätkarbon bis Frühperm )
- Ditomopyge (Spätkarbon bis Spätperm)
- Pseudophillipsia (Spätkarbon bis Spätperm)
Endgültiges Aussterben
Am Ende des Perms ( Changhsingium ) existierten nur noch zwei Trilobitengattungen, Acropyge und Pseudophillipsia. [ 34 ] Trilobiten des späten Perms lebten vorwiegend in flachen marinen Karbonatplattformen , kamen aber auch in der Tiefsee vor und waren weit verbreitet, bis hin zu den Polen. [ 34 ]
Warum die Trilobiten genau ausstarben, ist unklar. Angesichts wiederholter Aussterbeereignisse (oft gefolgt von einer scheinbaren Erholung) im gesamten Fossilienbestand der Trilobiten ist eine Kombination von Ursachen wahrscheinlich. Nach dem Aussterbeereignis am Ende des Devons beschränkte sich die verbliebene Trilobitenvielfalt auf die Ordnung der Proetida. Die abnehmende Diversität [ 37 ] von Gattungen, die auf Flachwasserhabitate des Schelfs beschränkt waren, in Verbindung mit einem drastischen Meeresspiegelabfall ( Regression ), führte dazu, dass der endgültige Niedergang der Trilobiten kurz vor dem Massenaussterben am Ende des Perm erfolgte . [ 25 ] Da so viele marine Arten am Massenaussterben im Perm beteiligt waren, wäre das Ende der fast 300 Millionen Jahre währenden Blütezeit der Trilobiten damals nicht unerwartet gewesen. [ 37 ]
Fossilienverteilung



Trilobiten scheinen vorwiegend Meeresorganismen gewesen zu sein, da ihre fossilen Überreste stets in Gesteinen gefunden werden, die auch Fossilien anderer Salzwassertiere wie Brachiopoden, Seelilien und Korallen enthalten. Einige Fährten deuten darauf hin, dass Trilobiten zumindest zeitweise Ausflüge an Land unternahmen. [ 7 ] Innerhalb des marinen Paläoökosystems kamen Trilobiten in einem breiten Spektrum von extrem flachen bis hin zu sehr tiefen Gewässern vor. Wie Brachiopoden, Seelilien und Korallen sind Trilobiten auf allen heutigen Kontinenten verbreitet und besiedelten jeden Ozean der Urzeit, aus dem paläozoische Fossilien geborgen wurden. [ 38 ] Die Überreste von Trilobiten reichen vom erhaltenen Körper bis hin zu Teilen des Exoskeletts, das sie im Zuge der Häutung (Ecdysis) abwarfen. Darüber hinaus sind die Spuren, die Trilobiten auf dem Meeresboden hinterließen, häufig als Spurenfossilien erhalten .
Es gibt drei Hauptformen von Spurenfossilien, die mit Trilobiten in Verbindung gebracht werden: Rusophycus , Cruziana und Diplichnites . Diese Spurenfossilien zeugen von der erhaltenen Lebensaktivität von Trilobiten auf dem Meeresboden. Rusophycus , die Ruhespur, sind von Trilobiten angelegte Ausgrabungen, die kaum oder gar keine Vorwärtsbewegung erkennen lassen. Ethologische Interpretationen deuten auf Ruhe-, Schutz- und Jagdspuren hin. [ 39 ] Cruziana , die Fressspur, sind Furchen im Sediment, die vermutlich die Fortbewegung von Trilobiten beim Fressen von Sedimenten darstellen. [ 40 ] Viele der Diplichnites- Fossilien werden als Spuren von Trilobiten interpretiert, die auf der Sedimentoberfläche liefen. [ 40 ] Vorsicht ist geboten, da ähnliche Spurenfossilien auch in Süßwasserablagerungen [ 41 ] und postpaläozoischen Ablagerungen [ 42 ] gefunden wurden, die nicht von Trilobiten stammen.
Trilobitenfossilien finden sich weltweit, und es sind Tausende von Arten bekannt. Da sie geologisch gesehen schnell auftraten und sich wie andere Arthropoden häuteten, eignen sich Trilobiten hervorragend als Leitfossilien. Sie ermöglichen es Geologen, das Alter der Gesteine, in denen sie gefunden werden, zu bestimmen. Sie gehörten zu den ersten Fossilien, die breite Aufmerksamkeit erregten, und jedes Jahr werden neue Arten entdeckt.

In den Vereinigten Staaten befindet sich die bedeutendste öffentlich zugängliche Trilobitensammlung in Hamburg, New York . Der Schiefersteinbruch, informell als Penn Dixie bekannt, wurde in den 1960er Jahren stillgelegt. Die zahlreichen Trilobitenfunde wurden in den 1970er Jahren von Dan Cooper entdeckt. [ 43 ] Als bekannter Gesteinssammler weckte er das wissenschaftliche und öffentliche Interesse an dem Fundort. [ 44 ] Die Fossilien stammen aus dem Givetium (vor 387,2–382,7 Millionen Jahren), als die Region um West-New York 30 Grad südlich des Äquators lag und vollständig von Wasser bedeckt war. [ 45 ] Das Gelände wurde von der Stadt Hamburg in Zusammenarbeit mit der Hamburg Natural History Society von Vincent C. Bonerb erworben, um es vor Bebauung zu schützen. [ 43 ] 1994 wurde der Steinbruch zum Penn Dixie Fossil Park & Nature Reserve, nachdem er den Status einer gemeinnützigen Organisation (501(c)3) erhalten hatte und für Besucher und die Sammlung von Trilobitenfunden geöffnet wurde. Die beiden am häufigsten gefundenen Exemplare sind Eldredgeops rana und Greenops . [ 46 ] Die Trilobite Wilderness in Kalifornien verdankt ihren Namen dem dortigen Reichtum an Fossilienfunden. [ 47 ]
Ein bekannter Fundort für Trilobitenfossilien in Großbritannien ist Wren’s Nest bei Dudley in den West Midlands . Dort wurde der Trilobit Calymene blumenbachii in der silurischen Wenlock-Gruppe entdeckt . Dieser Trilobit ist auf dem Stadtwappen abgebildet und wurde von den Steinbrucharbeitern, die einst in den heute stillgelegten Kalksteinbrüchen arbeiteten , „ Dudley Bug“ oder „Dudley Locust“ genannt . Llandrindod Wells in Powys , Wales , ist ein weiterer bekannter Trilobitenfundort. Der bekannte Trilobit Elrathia kingi kommt in großer Zahl im kambrischen Wheeler Shale von Utah vor . [ 48 ]
Spektakulär erhaltene Trilobitenfossilien, die oft Weichteile (Beine, Kiemen, Antennen usw.) aufweisen, wurden in British Columbia , Kanada (im kambrischen Burgess Shale und ähnlichen Fundorten); New York , USA (ordovizischer Walcott-Rust-Steinbruch in der Nähe von Russia, New York , und Beecher's Trilobite Bed in der Nähe von Rome, New York ); China (unterkambrische Maotianshan Shales in der Nähe von Chengjiang ); Deutschland (die devonischen Hunsrück Slates in der Nähe von Bundenbach ) und, viel seltener, in trilobitenführenden Schichten in Utah (Wheeler Shale und andere Formationen), Ontario und Manuels River, Neufundland und Labrador , gefunden .
Auch in Marokko wurden sehr gut erhaltene Trilobiten gefunden, viele davon lebendig in Schlammlawinen begraben und daher perfekt konserviert. Um ihre Bergung hat sich ein ganzer Wirtschaftszweig entwickelt, was zu Kontroversen über die Restaurierungsmethoden geführt hat. [ 49 ] Die Vielfalt der Augen- und Oberkörperformen sowie der fragilen Auswüchse ist am besten anhand dieser ähnlich wie die in Pompeji erhaltenen Exemplare bekannt.
Der französische Paläontologe Joachim Barrande (1799–1883) führte seine bahnbrechende Studie über Trilobiten im Kambrium, Ordovizium und Silur Böhmens durch und veröffentlichte 1852 den ersten Band des Système silurien du centre de la Bohême .
Bedeutung
Die Untersuchung paläozoischer Trilobiten im walisisch-englischen Grenzgebiet durch Niles Eldredge war grundlegend für die Formulierung und Überprüfung des punktuellen Gleichgewichts als Evolutionsmechanismus. [ 50 ] [ 51 ] [ 52 ]
Die Identifizierung der Trilobitenfaunen des „Atlantischen“ und „Pazifischen“ Kontinents in Nordamerika und Europa [ 53 ] deutete auf die Schließung des Iapetus-Ozeans (wodurch die Iapetus-Naht entstand) [ 54 ] und lieferte somit wichtige Belege für die Theorie der Kontinentaldrift . [ 55 ] [ 56 ]
Trilobiten spielten eine wichtige Rolle bei der Abschätzung der Artbildungsrate während der sogenannten kambrischen Explosion , da sie die artenreichste Gruppe der Metazoen darstellen , die aus den Fossilienfunden des frühen Kambriums bekannt ist. [ 57 ] [ 58 ]
Trilobiten sind hervorragende stratigraphische Marker des Kambriums: Forscher, die Trilobiten mit alimentärem Prosopon und einem Mikropygium finden, haben frühkambrische Schichten entdeckt. [ 59 ] Der Großteil der kambrischen Stratigraphie basiert auf der Verwendung von Trilobiten-Markerfossilien. [ 60 ] [ 61 ] [ 62 ]
Trilobiten sind die Staatsfossilien von Ohio ( Isotelus ), Wisconsin ( Calymene celebra ) und Pennsylvania ( Phacops rana ).
Taxonomie


Die zehn am häufigsten anerkannten Trilobitenordnungen sind Agnostida , Redlichiida , Corynexochida , Lichida , Odontopleurida , Phacopida , Proetida , Asaphida , Harpetida und Ptychopariida . Im Jahr 2020 wurde vorgeschlagen, eine elfte Ordnung, die Trinucleida , aus der Asaphiden-Überfamilie Trinucleioidea herauszuheben . [ 63 ] Manchmal werden die Nektaspida zu den Trilobiten gezählt, ihnen fehlt jedoch ein verkalktes Exoskelett und Augen. Einige Wissenschaftler vermuten, dass die Ordnung Agnostida polyphyletisch ist und die Unterordnung Agnostina Nicht-Trilobiten-Arthropoden umfasst, die nicht mit der Unterordnung Eodiscina verwandt sind . Nach dieser Hypothese würde Eodiscina in eine neue Ordnung, die Eodiscida, erhoben.
Mehr als 22.000 Trilobitenarten wurden beschrieben. [ 34 ]
Trotz ihres reichen Fossilienbestands mit Tausenden beschriebenen Gattungen weltweit bestehen hinsichtlich der Taxonomie und Phylogenie der Trilobiten viele Unsicherheiten. [ 64 ] Mit Ausnahme der Vertreter der Ordnungen Phacopida und Lichida (die erstmals im frühen Ordovizium auftraten ) erschienen neun der elf Trilobitenordnungen vor dem Ende des Kambriums . Die meisten Wissenschaftler gehen davon aus, dass die Ordnung Redlichiida , genauer gesagt ihre Unterordnung Redlichiina , einen gemeinsamen Vorfahren aller anderen Ordnungen, mit Ausnahme der Agnostina, enthält. Obwohl in der Literatur zahlreiche mögliche Phylogenien zu finden sind, gehen die meisten davon aus, dass die Unterordnung Redlichiina im Unterkambrium die Ordnungen Corynexochida und Ptychopariida hervorbrachte und die Lichida im Mittelkambrium entweder von den Redlichiida oder den Corynexochida abstammten. Die Ordnung Ptychopariida stellt die problematischste Ordnung für die Klassifizierung der Trilobiten dar. In der 1959 erschienenen Abhandlung über Wirbellosenpaläontologie [ 65 ] wurden die heutigen Vertreter der Ordnungen Ptychopariida, Asaphida , Proetida und Harpetida zur Ordnung Ptychopariida zusammengefasst. Die Unterklasse Librostoma wurde 1990 [ 66 ] eingeführt , um alle diese Ordnungen aufgrund ihres gemeinsamen ursprünglichen Merkmals eines freistehenden Hypostoms zu umfassen . Die jüngst anerkannte der neun Trilobitenordnungen, Harpetida, wurde 2002 etabliert [ 67 ]. Der Vorfahre der Ordnung Phacopida ist unklar.
Morphologie

Wenn Trilobiten gefunden werden, ist – bis auf wenige Ausnahmen – nur das Exoskelett erhalten (oft unvollständig). Einige Fundstätten bewahren neben dem Exoskelett auch identifizierbare Weichteile (Beine, Kiemen, Muskulatur und Verdauungstrakt) sowie rätselhafte Spuren anderer Strukturen (z. B. feine Details der Augenstruktur). Von den 20.000 bekannten Arten weisen nur 38 Fossilien mit erhaltenen Extremitäten auf. [ 68 ]
Trilobiten variieren in ihrer Länge von winzig (unter 1 Millimeter) bis sehr groß (über 70 Zentimeter), mit einer durchschnittlichen Größe von 3–10 cm. Die kleinste Art ist vermutlich Acanthopleurella stipulae mit maximal 1,5 Millimetern. [ 69 ] Das weltweit größte bekannte Trilobitenexemplar, Isotelus rex zugeordnet, misst 72 cm. Es wurde 1998 von kanadischen Wissenschaftlern in ordovizischen Gesteinen an der Hudson Bay gefunden . [ 30 ] Ein Teilexemplar des ordovizischen Trilobiten Hungioides bohemicus, das 2009 in Arouca , Portugal, entdeckt wurde, hatte im vollständigen Zustand schätzungsweise eine Länge von 86,5 cm. [ 70 ] [ 71 ] [ 72 ]

Lediglich der obere (dorsale) Teil ihres Exoskeletts ist mineralisiert und besteht aus Kalzit- und Kalziumphosphatmineralien in einem Chitin- Gitter [ 73 ]. Er ist am unteren Rand eingerollt und bildet so einen kleinen Saum, die sogenannte „Doublure“. Ihre Extremitäten und der weiche Bauch waren nicht mineralisiert. [ 74 ] [ 75 ] Drei charakteristische Tagmata (Abschnitte) sind vorhanden: Cephalon (Kopf), Thorax (Körper) und Pygidium (Schwanz).
Terminologie
Wie bei einer Tiergruppe mit ca. 5.000 Gattungen zu erwarten [ 76 ] , ist die Morphologie und Beschreibung der Trilobiten komplex. Trotz dieser Komplexität und ihrer unklaren Stellung innerhalb höherer Klassifikationen gibt es eine Reihe von Merkmalen, die die Trilobiten von anderen Arthropoden unterscheiden: ein im Allgemeinen subelliptisches, dorsales Chitin - Exoskelett, das längs in drei deutliche Lappen unterteilt ist (daher der Name der Gruppe); ein deutlich ausgeprägter, relativ großer Kopfschild (Cephalon), der axial mit einem Thorax verbunden ist , der aus gelenkig verbundenen Quersegmenten besteht, von denen die hintersten fast immer zum Schwanzschild ( Pygidium ) verschmolzen sind. Bei der Beschreibung von Unterschieden zwischen Trilobiten- Taxa werden häufig das Vorhandensein, die Größe und die Form der Kopfmerkmale erwähnt.
Während der Häutung spaltet sich das Exoskelett in der Regel zwischen Kopf und Brustkorb, weshalb bei vielen Trilobitenfossilien eines der beiden Teile fehlt. Bei den meisten Gruppen erleichterten Gesichtsnähte am Cephalon die Häutung. Ähnlich wie Hummer und Krebse wuchsen Trilobiten vermutlich zwischen der Häutung und der Aushärtung des neuen Exoskeletts.
Cephalon


Der Cephalon, der Kopfabschnitt eines Trilobiten, ist äußerst variabel und morphologisch komplex. Die Glabella bildet eine Kuppel, unter der sich der Kropf oder Magen befindet. Das Exoskelett weist im Allgemeinen wenige charakteristische ventrale Merkmale auf, doch der Cephalon bewahrt oft Muskelansatzspuren und gelegentlich das Hypostom , eine kleine, starre Platte, vergleichbar mit der Ventralplatte anderer Arthropoden. Mund und Magen, die ohne Zähne auskommen, befinden sich auf dem Hypostom, wobei der Mund am hinteren Rand des Hypostoms nach hinten gerichtet ist.
Die Morphologie des Hypostoms ist sehr variabel; manchmal wird es von einer nicht mineralisierten Membran gestützt (natant), manchmal ist es mit der vorderen Doppelkrone verschmolzen und weist eine dem darüber liegenden Glabella sehr ähnliche Kontur auf (conterminant) oder mit der vorderen Doppelkrone verschmolzen und unterscheidet sich deutlich von der Glabella (impendent). Zahlreiche Variationen in Form und Lage des Hypostoms wurden beschrieben. [ 66 ] Die Größe der Glabella und des seitlichen Randes des Cephalons sowie die Variationen des Hypostoms wurden mit unterschiedlichen Lebensweisen, Ernährungsweisen und spezifischen ökologischen Nischen in Verbindung gebracht . [ 8 ]
Bei den Harpetida ist der vordere und seitliche Rand des Cephalons stark vergrößert ; bei anderen Arten ist eine Ausbuchtung im Bereich vor der Glabella erhalten, die auf eine Bruttasche hindeutet. [ 77 ] Hochkomplexe Facettenaugen sind ein weiteres auffälliges Merkmal des Cephalons.
Gesichtsnähte
Gesichts- oder Kopfnähte sind die natürlichen Bruchlinien im Kopfbereich von Trilobiten. Ihre Funktion bestand darin, dem Trilobiten während der Häutung (Ecdysis) das Abwerfen seines alten Exoskeletts zu erleichtern . [ 78 ]
Alle Arten der Unterordnung Olenellina , die am Ende des frühen Kambriums ausstarben (wie Fallotaspis , Nevadia , Judomia und Olenellus ), besaßen keine Gesichtsnähte. Man geht davon aus, dass sie diese nie entwickelten, da sie vor der Evolution der Gesichtsnähte entstanden. Aufgrund dessen (und anderer primitiver Merkmale) gelten sie als die frühesten Vorfahren der späteren Trilobiten. [ 79 ] [ 1 ]
Einige spätere Trilobitenarten verloren ihre Gesichtsnähte ebenfalls sekundär. [ 79 ] Die in verschiedenen Arten vorkommenden Nahttypen werden in der Taxonomie und Phylogenie der Trilobiten umfassend genutzt. [ 80 ]
Dorsale Nähte
Die dorsale Oberfläche des Trilobiten-Cephalons (des vordersten Tagmas , des „Kopfes“) lässt sich in zwei Bereiche unterteilen: das Cranidium und die Librigena („freie Wangen“). Das Cranidium kann weiter in die Glabella (den Mittellappen des Cephalons) und die Fixigena („fixierte Wangen“) unterteilt werden . [ 81 ] Die Gesichtsnähte verlaufen entlang des Vorderrandes an der Grenze zwischen Cranidium und Librigena.
Die Gesichtsnähte der Trilobiten auf der Dorsalseite lassen sich grob in fünf Haupttypen unterteilen, je nachdem, wo die Nähte relativ zum Wangenwinkel (den Kanten, an denen die seitlichen und hinteren Ränder des Cephalons zusammenlaufen) enden. [ 82 ]
- Fehlend – Bei der Olenellina fehlen die Gesichtsnähte . Dies gilt als primitiver Zustand und geht stets mit dem Vorhandensein von Augen einher.
- Proparian – Die Gesichtsnaht endet vor dem Wangenwinkel entlang des lateralen Randes. [ 81 ] Beispiele für Gattungen mit dieser Nahtart sind Dalmanites aus der Gattung Phacopina ( Phacopida ) und Ekwipagetia aus der Gattung Eodiscina ( Agnostida ).
- Gonatoparian – Die Gesichtsnaht endet an der Spitze des Wangenwinkels. [ 83 ] Beispiele für Gattungen mit dieser Nahtart sind Calymene und Trimerus aus der Familie Calymenina ( Phacopida ). [ 80 ]
- Opisthoparia – Die Gesichtsnaht endet am Hinterrand des Cephalons. [ 80 ] Beispiele für Gattungen mit dieser Nahtform sind Peltura aus der Gattung Olenina ( Ptychopariida ) und Bumastus aus der Gattung Illaenina ( Corynexochida ). Dies ist die häufigste Form der Gesichtsnaht. [ 80 ]
- Hypopar oder marginal – Bei einigen Trilobiten können die dorsalen Nähte sekundär verloren gehen. Mehrere exemplarische Zeitreihen von Arten zeigen die „Wanderung“ der dorsalen Naht, bis sie mit den Rändern des Cephalons übereinstimmt. [ 81 ] Da sich die Sehfläche des Auges auf der schrumpfenden freien Wange (oder Librigena) befindet, nimmt die Anzahl der Linsen tendenziell ab, und schließlich verschwindet das Auge. Der Verlust der dorsalen Nähte kann aus dem proparien Stadium resultieren, wie beispielsweise bei einigen Eodiscina wie Weymouthia , allen Agnostina und einigen Phacopina wie Ductina . Die marginalen Nähte der Harpetiden und Trinucleioiden stammen von den opisthoparien Nähten ab. [ 84 ] Andererseits geht Blindheit nicht immer mit dem Verlust der Gesichtsnähte einher.

Der ursprüngliche Zustand der dorsalen Nähte ist proparisch. Opisthoparische Nähte haben sich mehrfach unabhängig voneinander entwickelt. Es gibt keine Beispiele für die Entwicklung proparischer Nähte in Taxa mit opisthoparischer Abstammung. Trilobiten, die als adulte Tiere opisthoparische Nähte aufweisen, besitzen im Larvenstadium üblicherweise proparische Nähte (bekannte Ausnahmen sind Yunnanocephalus und Duyunaspis ). [ 85 ] Hypoparische Nähte sind ebenfalls unabhängig voneinander in mehreren Trilobitengruppen entstanden.
Der Verlauf der Gesichtsnähte an der Vorderseite der Sehfläche variiert mindestens ebenso stark wie an der Rückseite, doch das Fehlen eines eindeutigen Bezugspunkts, vergleichbar mit dem Wangenwinkel, erschwert die Kategorisierung. Ein besonders auffälliges Merkmal ist, dass die vorderen Gesichtsnähte den seitlichen oder vorderen Rand nicht selbst durchschneiden, sondern vor der Glabella zusammenlaufen und den vorderen Rand in der Mittellinie schneiden. Dies ist unter anderem bei den Asaphida der Fall. Noch ausgeprägter ist die Situation, dass die vorderen Äste der Gesichtsnähte ineinander enden, wodurch freie Wangen entstehen. Dieses Phänomen ist bei Triarthrus und den Phacopidae bekannt, wobei die Gesichtsnähte in dieser Familie jedoch keine Funktion haben, da keine vom Schädel getrennten freien Wangen gefunden werden.
Außerdem gibt es zwei Arten von Nähten auf der Rückenfläche, die mit den Facettenaugen der Trilobiten verbunden sind. [ 80 ] [ 86 ] Sie sind:
- Augennähte – das sind Nähte, die die Ränder des Facettenauges umgeben. Trilobiten mit diesen Nähten verlieren bei der Häutung die gesamte Oberfläche ihrer Augen. Dieses Merkmal ist bei kambrischen Trilobiten weit verbreitet.
- Die Lidnähte sind Nähte, die Teil der dorsalen Gesichtsnaht sind, welche entlang der oberen Ränder des Facettenauges verläuft.
Ventrale Nähte

Die dorsalen Gesichtsnähte setzen sich nach unten zur ventralen Seite des Cephalons fort, wo sie in die Bindenähte übergehen , welche die Dublure unterteilen. Im Folgenden werden die Arten der ventralen Nähte beschrieben. [ 86 ]
- Verbindungsnähte – das sind die Nähte, die von den Gesichtsnähten über den vorderen Rand des Schädels hinausgehen.
- Die Rostralnaht ist nur vorhanden, wenn der Trilobit ein Rostrum (oder eine Rostralplatte) besitzt. Sie verbindet das Rostrum mit dem vorderen Teil des dorsalen Cranidiums.
- Die Hypostomnaht trennt das Hypostom von der Dublura, wenn es sich um ein anhaftendes Hypostom handelt. Sie fehlt bei frei beweglichem (natantem) Hypostom sowie bei einigen kontraktanten Hypostomien, bei denen das Hypostom mit der Dublura verwachsen ist.
- Mediannaht – diese Naht kommt bei Asaphiden- Trilobiten vor und entsteht, wenn die beiden dorsalen Nähte anstatt zu verbindenden Nähten zu werden, an einem Punkt vor dem Cephalon zusammenlaufen und sich dann in der Mitte der Dublure gerade teilen.
Tribüne
Das Rostrum (oder die Rostralplatte) ist ein eigenständiger Teil der Doublure und befindet sich an der Vorderseite des Cephalons. Es ist durch die Rostralnaht vom Rest der Doublure getrennt.
Bei der Häutung von Trilobiten wie Paradoxides dient das Rostrum dazu, den Vorderteil des Trilobiten zu verankern, während sich das Cranidium von der Librigena trennt. Die durch die Krümmung des Körpers entstehende Öffnung ermöglicht dem sich häutenden Trilobiten den Austritt.
Bei einigen Trilobiten wie Lachnostoma fehlt es .
Hypostom


Das Hypostom ist der harte Mundapparat des Trilobiten und befindet sich an der Bauchseite des Cephalons, typischerweise unterhalb der Glabella. Man unterscheidet drei Hypostomtypen: einen permanenten und einen nicht permanenten, und einen, der sich an der vorderen dorsalen Spitze der Glabella ausrichtet.
- Natant – Hypostom nicht mit der Dublure verbunden. Ausgerichtet an der Vorderkante der Glabella.
- Conterminant – Hypostom an der Rostralplatte der Dublure befestigt. Ausgerichtet an der Vorderkante der Glabella.
- Impendent – Hypostom an der Rostralplatte befestigt, aber nicht mit der Glabella ausgerichtet.
Thorax
Der Thorax besteht aus einer Reihe von gelenkig verbundenen Segmenten, die zwischen Cephalon und Pygidium liegen. Die Anzahl der Segmente variiert zwischen 2 und 103 [ 87 ] , wobei die meisten Arten 2 bis 16 Segmente aufweisen. [ 69 ]
Jedes Segment besteht aus dem zentralen Achsenring und den äußeren Pleuren, die die Gliedmaßen und Kiemen schützten. Die Pleuren können verkürzt oder zu langen Stacheln verlängert sein. Apodeme sind knollenförmige Ausstülpungen an der ventralen Oberfläche des Exoskeletts, an denen die meisten Beinmuskeln ansetzen, obwohl einige Beinmuskeln auch direkt am Exoskelett ansetzen. [ 88 ] Die Bestimmung der Verbindung zwischen Thorax und Pygidium kann schwierig sein, und viele Segmentzählungen leiden unter diesem Problem. [ 69 ]
Volvation

Trilobitenfossilien werden oft in einer eingerollten Position gefunden, ähnlich wie moderne Kellerasseln, um sich zu schützen. Hinweise deuten darauf hin, dass diese Einrollung („ Volation “) den Schutz vor der natürlichen Schwäche der Arthropodenkutikula bot, die von Anomalocariden- Prädatoren ausgenutzt wurde . [ 28 ] Die frühesten Belege für Volation sind etwas über 510 Millionen Jahre alt und wurden bei Olenellidae gefunden , diese Formen wiesen jedoch keine der ineinandergreifenden Mechanismen auf, die bei späteren Trilobiten zu finden sind. [ 89 ]
Einige Trilobiten erreichten eine vollständig geschlossene Kapsel (z. B. Phacops ), während andere mit langen Pleuralstacheln (z. B. Selenopeltis ) seitliche Lücken aufwiesen oder solche mit einem kleinen Pygidium (z. B. Paradoxides ) eine Lücke zwischen Cephalon und Pygidium ließen. [ 69 ] Bei Phacops überlappen die Pleuren eine glatte Facette, die einen dichten Abschluss mit der Doublure ermöglicht. [ 88 ] Die Doublure trägt an jedem Segment eine Pandersche Kerbe oder einen Vorsprung, um eine Überrotation zu verhindern und einen guten Abschluss zu gewährleisten. [ 88 ] Selbst bei einem Agnostiden mit nur zwei gelenkigen Thoraxsegmenten erforderte der Einrollvorgang eine komplexe Muskulatur, um das Exoskelett zusammenzuziehen und in den flachen Zustand zurückzukehren. [ 90 ]
Pygidium
Das Pygidium besteht aus mehreren Segmenten, die mit dem Telson verschmolzen sind. Die Segmente des Pygidiums ähneln den Thoraxsegmenten (mit zweigliedrigen Gliedmaßen), sind aber nicht miteinander verbunden. Trilobiten lassen sich anhand der Größe ihres Pygidiums beschreiben: mikropyg (Pygidium kleiner als das Cephalon), subisopyg (Pygidium etwa so groß wie das Cephalon), isopyg (Pygidium so groß wie das Cephalon) oder makropyg (Pygidium größer als das Cephalon).
Prosopon (Oberflächenskulptur)

Die Exoskelette von Trilobiten weisen eine Vielzahl kleinskaliger Strukturen auf, die zusammenfassend als Prosopon bezeichnet werden. Prosopon umfasst keine großflächigen Ausstülpungen der Kutikula (z. B. hohle Pleuralstacheln), sondern feinere Strukturen wie Rippen, Kuppeln, Pusteln, Grübchen, Wülste und Perforationen. Der genaue Zweck des Prosopon ist noch nicht geklärt. Vermutet werden unter anderem die strukturelle Verstärkung, Sinnesgruben oder -haare, der Schutz vor Fressfeinden und die Aufrechterhaltung der Belüftung während der Einrollung. [ 69 ] Beispielsweise könnten die bei kambrischen Trilobiten gut sichtbaren Netzwerke von Verdauungsrippen im Cephalon und anderen Körperregionen entweder Verdauungs- oder Atmungsröhren gewesen sein. [ 24 ]
Stacheln
Einige Trilobiten, wie beispielsweise jene der Ordnung Lichida, entwickelten vom Ordovizium bis zum Ende des Devons aufwendige Stachelformen . Exemplare dieser Art wurden in der Hamar-Laghdad-Formation von Alnif in Marokko gefunden . Spektakuläre, stachelige Trilobiten wurden auch in Westrussland, Oklahoma (USA) und Ontario (Kanada) entdeckt.
Einige Trilobiten besaßen Hörner auf dem Kopf, ähnlich denen einiger heutiger Käfer. Aufgrund der Größe, Lage und Form dieser Hörner wird vermutet, dass sie im Kampf um Weibchen eingesetzt wurden. Hörner waren in der Familie Raphiophoridae (Asaphida) weit verbreitet. [ 91 ] Eine weitere Funktion dieser Stacheln war der Schutz vor Fressfeinden. Eingeklappt boten die Trilobitenstacheln zusätzlichen Schutz. Diese Schlussfolgerung dürfte auch auf andere Trilobiten zutreffen, beispielsweise auf die Phacopiden -Gattung Walliserops , die spektakuläre Dreizacke entwickelte. [ 92 ]
Weichteilgewebe


Von nur etwa 21 Arten sind Weichteile erhalten, [ 88 ] [ 93 ] daher bleiben einige Merkmale (z. B. die hinteren antenniformen Cerci, die nur bei Olenoides serratus erhalten sind ) [ 94 ] im Gesamtkontext schwer zu beurteilen. [ 95 ]
Anhängsel


Trilobiten besaßen ein einzelnes Paar präoraler Antennen und ansonsten undifferenzierte, zweigliedrige Gliedmaßen (vier Kopfpaare [96, 97], gefolgt von je einem Paar pro Thoraxsegment und einigen Pygidiumpaaren [88, 93 ] ) . Jeder Endopodit ( Laufbein ) bestand aus sechs oder sieben Segmenten [93], homolog zu anderen frühen Arthropoden [ 95 ] . Die Endopoditen waren an der Coxa befestigt, die auch einen federartigen Exopoditen, einen Kiemenast , trug . Dieser diente der Atmung und, bei einigen Arten, dem Schwimmen [ 95 ] . Eine Studie aus dem Jahr 2021 ergab, dass der obere Gliedmaßenast der Trilobiten eine gut entwickelte Kieme darstellt, die die Hämolymphe mit Sauerstoff anreichert und mit den Buchkiemen des modernen Pfeilschwanzkrebses Limulus vergleichbar ist . Bei Olenoides unterscheidet sich die teilweise artikulierte Verbindung zum Körper von den Exopoden der Chelicerata oder Crustacea . [ 98 ] [ 99 ] Die Innenseite der Coxa (oder Gnathobase ) trägt Stacheln, vermutlich zur Verarbeitung von Beutetieren. [ 100 ] Das letzte Exopoditensegment besaß üblicherweise Klauen oder Stacheln. [ 88 ] Zahlreiche Beispiele für Haare an den Beinen deuten auf Anpassungen an die Nahrungsaufnahme (ähnlich den Gnathobasen) oder auf Sinnesorgane zur Unterstützung der Fortbewegung hin. [ 95 ]
Verdauungstrakt und Ernährung

Das zahnlose Maul der Trilobiten befand sich am hinteren Rand des Hypostoms (nach hinten gerichtet), vor den am Cephalon ansetzenden Beinen. Über eine kleine Speiseröhre war das Maul mit dem Magen verbunden, der vor dem Maul, unterhalb der Glabella, lag. Der „Darm“ führte von dort nach hinten zum Pygidium. Man nimmt an, dass die am Cephalon ansetzenden „Fressbeine“ die Nahrung in das Maul beförderten, wobei sie diese möglicherweise zuvor am Hypostom und/oder den Gnathobasen zerkleinerten. Jüngste Untersuchungen mittels Synchrotron-Mikrotomographie mit Ausbreitungsphasenkontrast (PPC-SRμCT), einer dreidimensionalen Darstellung von Gewebe in Bezug auf die Organismusfunktion [ 101 ] , an einer Probe von Bohemolichas incola zeigen hohe Konzentrationen unverdaulicher Fragmente von Conchoprimitia osekensis (einem Ostrakoden ), einer heute ausgestorbenen, kleinschaligen Art , im Verdauungstrakt von B. incola .
Die Fragmente deuten auf durophage Prädation (Zerkleinern der Schalen) hin. Da die Zusammensetzung der gefundenen Schalen taxonomisch nicht aussagekräftig war, sondern vielmehr auf physikalischen Eigenschaften wie Schalenfestigkeit und -größe basierte, war B. incola opportunistisch auf Nahrungssuche; seine Ernährungsgewohnheiten ähnelten denen von Aasfressern. [ 102 ] Die Schalenreste geben Aufschluss über einen weiteren Aspekt der Verdauung von B. incola : die enzymatischen Mechanismen, mit denen diese unverdaulichen Schalen von Nährstoffen befreit wurden, sodass nur Fragmente zurückblieben. Diese Überreste untermauern die Annahme, dass frühe Trilobiten möglicherweise Drüsen besaßen, die Enzyme absonderten, welche den Verdauungsprozess unterstützten. [ 103 ]
Innere Organe
Während es direkte und indirekte Hinweise auf das Vorhandensein und die Lage von Mund, Magen und Verdauungstrakt gibt (siehe oben), wird das Vorhandensein von Herz, Gehirn und Leber nur angedeutet (obwohl es in vielen Rekonstruktionen als „vorhanden“ dargestellt wird) und es gibt nur wenige direkte geologische Belege. [ 95 ]
Muskulatur
Obwohl selten erhalten, erstreckten sich lange seitliche Muskeln vom Cephalon bis etwa zur Mitte des Pygidiums und setzten an den Axialringen an, wodurch eine Einrollung ermöglicht wurde, während separate Muskeln an den Beinen diese beiseite hielten. [ 88 ]
Sinnesorgane
Viele Trilobiten besaßen komplexe Augen und ein Paar Antennen . Einige Trilobiten waren blind, vermutlich weil sie zu tief im Meer lebten, als dass Licht sie erreichen konnte. Dadurch erblindeten sie sekundär in diesem Zweig der Trilobiten-Evolution. Andere Trilobiten (z. B. Phacops rana und Erbenochile erbeni ) hatten große Augen, die ihnen in hellen, von Raubtieren bevölkerten Gewässern zugutekamen.
Antennen

Das bei den meisten Trilobiten vermutete (und in einigen wenigen Exemplaren erhaltene) Antennenpaar war hochflexibel, sodass es beim Einrollen des Trilobiten zurückgezogen werden konnte. Eine Art ( Olenoides serratus ) weist antennenartige Cerci auf , die vom Hinterteil des Trilobiten abstehen. [ 94 ]
Augen

Schon die frühesten Trilobiten besaßen komplexe Facettenaugen mit Linsen aus Kalzit (ein charakteristisches Merkmal aller Trilobitenaugen), was bestätigt, dass sich die Augen von Arthropoden und wahrscheinlich auch anderer Tiere bereits vor dem Kambrium entwickelt haben könnten. [ 104 ] Die Verbesserung des Sehvermögens von Räuber und Beute im marinen Lebensraum gilt als einer der evolutionären Faktoren, die die scheinbar rasante Entwicklung neuer Lebensformen während der sogenannten Kambrischen Explosion begünstigten . [ 105 ]
Die Augen der Trilobiten waren typischerweise Facettenaugen , wobei jede Linse ein längliches Prisma darstellte. [ 106 ] Die Anzahl der Linsen in einem solchen Auge variierte: Manche Trilobiten besaßen nur eine Linse, andere hingegen Tausende von Linsen in einem einzigen Auge. In Facettenaugen waren die Linsen typischerweise hexagonal angeordnet. [ 24 ] Der Fossilienbestand der Trilobitenaugen ist so vollständig, dass ihre Evolution im Laufe der Zeit untersucht werden kann, was den Mangel an Erhaltung weicher innerer Organe teilweise kompensiert. [ 107 ]
Die Linsen der Trilobitenaugen bestanden aus Kalzit ( Calciumcarbonat , CaCO₃ ) . Reines Kalzit ist transparent, und einige Trilobiten verwendeten kristallographisch orientierte, klare Kalzitkristalle für die Linsen ihrer Augen. [ 108 ] Starre Kalzitlinsen hätten sich nicht wie die weiche Linse des menschlichen Auges an eine Fokusänderung anpassen können ; bei manchen Trilobiten bildete das Kalzit eine interne Dublettstruktur [ 109 ] , die gemäß den optischen Prinzipien des französischen Wissenschaftlers René Descartes und des niederländischen Physikers Christiaan Huygens im 17. Jahrhundert eine hervorragende Tiefenschärfe und minimale sphärische Aberration ermöglichte. [ 106 ] [ 109 ] Ein lebender Vogel mit ähnlichen Linsen ist der Schlangenstern Ophiocoma wendtii . [ 110 ]
Bei anderen Trilobiten, bei denen eine Huygens-Grenzfläche offenbar fehlt, wird eine Gradientenindexlinse angenommen, deren Brechungsindex sich zum Zentrum hin ändert. [ 111 ]
Sublensäre Sinnesstrukturen wurden in den Augen einiger Phacopiden- Trilobiten gefunden. [ 112 ] Die Strukturen bestehen aus mehreren Sinneszellen, die eine rhadomere Struktur umgeben und den sublensären Strukturen in den Augen vieler moderner Arthropoden mit Appositionsaugen , insbesondere der Gattung Limulus ( Pfeilschwanzkrebse), stark ähneln. [ 112 ]
- Holochroale Augen besaßen eine große Anzahl (manchmal über 15.000) kleiner Linsen (30–100 μm, selten größer) [ 107 ] . Die Linsen waren hexagonal dicht gepackt und berührten sich; eine einzige Hornhautmembran bedeckte alle Linsen. [ 108 ] Jede Linse stand in direktem Kontakt mit benachbarten Linsen. Holochroale Augen sind die ursprünglichen Augen der Trilobiten und mit Abstand die häufigsten. Sie finden sich in allen Ordnungen außer den Agnostida und während der gesamten Existenz der Trilobiten. [ 107 ] Über die Frühgeschichte der holochroalen Augen ist wenig bekannt; Trilobiten des Unter- und Mittelkambriums haben die Sehfläche nur selten erhalten. [ 107 ] Das räumliche Auflösungsvermögen von Gitteraugen (wie z. B. holochroalen Augen) hängt von der Lichtintensität , der Kreisbewegung , der Rezeptordichte, dem Einfallswinkel des Lichts und dem Grad der neuronalen Kombination der Signale der einzelnen Rhabdome ab. Dies impliziert, dass die Linsen bei schwachem Licht (wie beispielsweise bei Pricyclopyge im Vergleich zu Carolinites ) und bei sich schnell bewegenden Raubtieren und Beutetieren größer sein müssen. Da die durch die Vorwärtsgeschwindigkeit des Tieres selbst verursachte Kreisgeschwindigkeit für die senkrecht zur Bewegungsrichtung ausgerichteten Ommatidien deutlich höher ist , sind die Augen schnell bewegender Trilobiten (wie Carolinites ) seitlich abgeflacht und dort, wo die Ommatidien nach vorn oder hinten gerichtet sind, stärker gekrümmt. Daher lassen sich anhand der Augenmorphologie Rückschlüsse auf das Ökosystem der Trilobiten ziehen. [ 113 ]
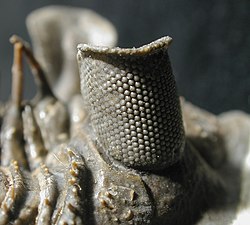
Das schizochroale Auge von Erbenochile erbenii ; der Augenschatten ist ein eindeutiger Beweis dafür, dass einige Trilobiten tagaktiv waren . [ 114 ] - Schizochroale Augen besaßen typischerweise weniger (etwa 700), dafür aber größere Linsen als holochroale Augen und kommen ausschließlich bei Phacopina vor . Jede Linse besaß eine Hornhaut, und benachbarte Linsen waren durch eine dicke interlensäre Kutikula, die sogenannte Sklera, voneinander getrennt. Schizochroale Augen traten im frühen Ordovizium recht plötzlich auf und stammten vermutlich von einem holochroalen Vorfahren ab. [ 107 ] Das Gesichtsfeld (Rundumsicht), die Augenposition und die gleichzeitige Entwicklung effizienterer Einrollmechanismen deuten darauf hin, dass das Auge eher ein defensives „Frühwarnsystem“ war als ein direktes Hilfsmittel bei der Nahrungssuche. [ 107 ] Man ging lange davon aus, dass moderne Augen, die funktionell dem schizochroalen Auge entsprechen, nicht existieren [ 108 ] , sie wurden jedoch in der modernen Insektenart Xenos peckii gefunden . [ 115 ]
- Abathochroale Augen finden sich ausschließlich bei kambrischen Eodiscina und bestehen aus etwa 70 kleinen, separaten Linsen mit jeweils eigener Hornhaut. [ 116 ] Die Sklera war von der Hornhaut getrennt und nicht so dick wie bei schizochroalen Augen. [ 108 ] Obwohl gut erhaltene Exemplare im frühen Fossilienbestand selten sind, wurden abathochroale Augen im Unterkambrium nachgewiesen und zählen damit zu den ältesten bekannten. [ 108 ] Umweltbedingungen scheinen später zum Verlust der Sehorgane bei vielen Eodiscina geführt zu haben. [ 108 ]
Sekundäre Blindheit ist nicht selten, insbesondere bei langlebigen Gruppen wie den Agnostida und Trinucleioidea . Bei den Proetida und Phacopina aus Westeuropa und insbesondere den Tropidocoryphinae aus Frankreich (wo eine gute stratigraphische Kontrolle besteht) gibt es gut untersuchte Trends, die eine fortschreitende Reduktion der Augengröße zwischen eng verwandten Arten zeigen, die schließlich zur Blindheit führt. [ 108 ]
Mehrere andere Strukturen an Trilobiten wurden als Photorezeptoren gedeutet. [ 108 ] Von besonderem Interesse sind die „Macula“, die kleinen Bereiche mit verdünnter Kutikula an der Unterseite des Hypostoms. Bei einigen Trilobiten wird vermutet, dass die Macula als einfache „ventrale Augen“ fungierten, die Tag und Nacht unterscheiden konnten oder es einem Trilobiten ermöglichten, schwimmend (oder kopfüber) zu navigieren. [ 111 ]
Sinnesgruben

Es gibt verschiedene Arten von Prosopon, die als Sinnesorgane zur Erfassung chemischer oder vibratorischer Signale vorgeschlagen wurden. Der Zusammenhang zwischen großen, grubigen Fransen auf dem Cephalon der Harpetida und Trinucleoidea mit entsprechend kleinen oder fehlenden Augen legt die interessante Möglichkeit nahe, dass die Fransen als „Komplexohr“ fungieren. [ 108 ]
Entwicklung

Trilobiten durchliefen aufeinanderfolgende Häutungsstadien , sogenannte Instare , in denen sich die vorhandenen Segmente vergrößerten und neue Rumpfsegmente in einer subterminalen generativen Zone während der anamorphen Entwicklungsphase entstanden. Darauf folgte die epimorphe Entwicklungsphase, in der das Tier weiter wuchs und sich häutete, jedoch keine neuen Rumpfsegmente im Exoskelett gebildet wurden. Die Kombination aus anamorphem und epimorphem Wachstum stellt den hemianamorphen Entwicklungsmodus dar, der bei vielen lebenden Arthropoden verbreitet ist. [ 117 ]
Die Entwicklung der Trilobiten war insofern ungewöhnlich, als sich die Gelenke zwischen den Segmenten ausbildeten. Veränderungen in der Gelenkentwicklung führten zu den allgemein anerkannten Entwicklungsphasen des Trilobiten-Lebenszyklus (unterteilt in drei Stadien), die sich nicht ohne Weiteres mit denen anderer Arthropoden vergleichen lassen. Das eigentliche Wachstum und die Veränderung der äußeren Form des Trilobiten erfolgten vermutlich in der Zeit, als er noch einen weichen Panzer hatte, nach der Häutung und bevor sich das nächste Exoskelett verhärtete. [ 118 ]

Trilobitenlarven sind aus dem Kambrium bis zum Karbon bekannt [ 119 ] und stammen aus allen Unterordnungen. [ 118 ] [ 120 ] Da Larvenstadien eng verwandter Taxa einander ähnlicher sind als Larvenstadien entfernt verwandter Taxa, liefern Trilobitenlarven wichtige morphologische Informationen zur Beurteilung übergeordneter phylogenetischer Verwandtschaftsverhältnisse innerhalb der Trilobiten. [ 118 ]
Trotz fehlender fossiler Belege hat die Ähnlichkeit mit lebenden Arthropoden zu der Annahme geführt, dass sich Trilobiten sexuell fortpflanzten und Eier legten. [ 118 ] [ 121 ] Einige Arten könnten Eier oder Larven in einer Bruttasche vor der Glabella aufbewahrt haben, [ 77 ] insbesondere wenn die ökologische Nische für die Larven ungünstig war. [ 9 ] Größe und Morphologie des ersten verkalkten Stadiums variieren stark zwischen den Trilobiten-Taxa (jedoch nicht innerhalb derselben Gruppe), was darauf hindeutet, dass manche Trilobiten im Ei ein stärkeres Wachstum durchliefen als andere. Frühe Entwicklungsstadien vor der Verkalkung des Exoskeletts sind eine Möglichkeit (wie für Fallotaspiden vorgeschlagen), [ 17 ] ebenso denkbar ist jedoch ein gleichzeitiges Auftreten von Verkalkung und Schlüpfen. [ 118 ]
Das früheste mit Sicherheit bekannte postembryonale Wachstumsstadium der Trilobiten ist das „Protaspid“-Stadium (anamorphe Phase). [ 118 ] Ausgehend von einem nicht unterscheidbaren Protocephalon und Protopygidium (Anaprotaspid) finden verschiedene Veränderungen statt, die mit einer quer verlaufenden Furche enden, welche Protocephalon und Protopygidium trennt (Metaprotaspid). Durch diese Furche können weitere Segmente entstehen. Die Segmente werden am hinteren Teil des Pygidiums angefügt, bleiben aber alle miteinander verschmolzen. [ 118 ] [ 120 ]
Die „meraspiden“ Stadien (anamorphe Phase) sind durch das Auftreten eines Gelenks zwischen Kopf und verschmolzenem Rumpf gekennzeichnet. Vor Beginn des ersten meraspiden Stadiums besaß das Tier eine zweiteilige Struktur – den Kopf und die Platte aus verschmolzenen Rumpfsegmenten, das Pygidium. Während der meraspiden Stadien bildeten sich neue Segmente im hinteren Bereich des Pygidiums, und es entwickelten sich zusätzliche Gelenke im vorderen Bereich des Pygidiums, wodurch frei bewegliche Segmente in den Thorax freigesetzt wurden. Im Allgemeinen wurde mit jeder Häutung ein neues Segment hinzugefügt (obwohl auch zwei pro Häutung und eines alle zwei Häutungen beobachtet wurden), wobei die Anzahl der Stadien der Anzahl der Thoraxsegmente entspricht. Wahrscheinlich fand in den meraspiden Stadien ein beträchtliches Wachstum von weniger als 25 % bis zu 30–40 % statt. [ 118 ]
Die „holaspiden“ Stadien (epimorphe Phase) beginnen, sobald eine stabile, ausgereifte Anzahl von Segmenten im Thorax freigesetzt wurde. Die Häutung setzte sich während der holaspiden Stadien fort, ohne dass sich die Anzahl der Thoraxsegmente veränderte. [ 118 ] Es wird vermutet, dass einige Trilobiten sich ihr ganzes Leben lang weiter häuteten und wuchsen, wenn auch mit Erreichen der Geschlechtsreife langsamer.
Einige Trilobiten zeigten in einem bestimmten Larvenstadium einen deutlichen morphologischen Wandel, der als „Trilobitenmetamorphose“ bezeichnet wird. Radikale Veränderungen der Morphologie sind mit dem Verlust oder Gewinn charakteristischer Merkmale verbunden, die einen Wechsel der Lebensweise kennzeichnen. [ 122 ] Ein solcher Wandel während der Entwicklung ist im Hinblick auf den evolutionären Druck bedeutsam, da der Trilobit auf dem Weg zum adulten Tier verschiedene ökologische Nischen durchlaufen kann und Veränderungen die Überlebensrate und Verbreitung der Trilobiten-Taxa stark beeinflussen. [ 118 ] Es ist bemerkenswert, dass Trilobiten, deren gesamtes Protaspidenstadium ausschließlich planktonisch und deren spätere Meraspidenstadien benthisch waren (z. B. Asaphiden), das ordovizische Massenaussterben nicht überlebten, während Trilobiten, die nur im ersten Protaspidenstadium planktonisch lebten, bevor sie sich zu benthischen Formen metamorphosierten, überlebten (z. B. Lichiden, Phacopiden). [ 122 ] Der pelagische Larvenlebensstil erwies sich als schlecht an den raschen Beginn der globalen Klimaabkühlung und den Verlust tropischer Schelfhabitate während des Ordoviziums angepasst. [ 30 ]
Es gibt keine Belege dafür, dass Trilobiten ihr Exoskelett während der Häutung resorbierten. [ 123 ] Einige Autoren argumentieren, dass die fehlende Resorption des mineralisierten Exoskeletts bei Trilobiten im Vergleich zu modernen Arthropoden, die ihre Kutikula in der Regel resorbieren, einen funktionellen Nachteil darstellte, da die Rekonstruktion des Exoskeletts deutlich länger dauerte und sie dadurch anfälliger für Fressfeinde wurden. [ 124 ]
Nutzungsgeschichte und Forschung

Der Reverend Edward Lhwyd veröffentlichte 1698 in den „ Philosophical Transactions of the Royal Society“ , der ältesten wissenschaftlichen Zeitschrift in englischer Sprache, einen Teil seines Briefes „Concerning Several Regularly Figured Stones Lately Found by Him“, dem eine Seite mit Radierungen von Fossilien beigefügt war. [ 125 ] Eine seiner Radierungen zeigte einen Trilobiten, den er in der Nähe von Llandeilo , vermutlich auf dem Gelände von Lord Dynefors Schloss, gefunden hatte und den er als „das Skelett eines Plattfisches“ beschrieb. [ 2 ]
Die Entdeckung der Dudley-Heuschrecke ( Calymene blumenbachii ) im Jahr 1749 durch Charles Lyttleton gilt als Beginn der Trilobitenforschung. Lyttleton reichte 1750 einen Brief bei der Royal Society of London ein, in dem er ein „versteinertes Insekt“ beschrieb, das er in den Kalksteinbrüchen von Dudley gefunden hatte. 1754 erklärte Manuel Mendez da Costa, die Dudley-Heuschrecke sei kein Insekt, sondern gehöre zur „Krebstiergruppe“. Er schlug vor, die Dudley-Exemplare Pediculus marinus major trilobos (große dreilappige Meereslaus) zu nennen – ein Name, der bis weit ins 19. Jahrhundert Bestand hatte. Der deutsche Naturforscher Johann Walch , der die erste umfassende Studie dieser Gruppe durchführte, schlug die Verwendung des Namens „Trilobit“ vor. Er hielt es für angemessen, den Namen von der einzigartigen dreilappigen Struktur der Mittelachse und den beidseitigen Pleuralzonen abzuleiten. [ 126 ]

Schriftliche Beschreibungen von Trilobiten datieren möglicherweise aus dem 3. Jahrhundert v. Chr. und definitiv aus dem 4. Jahrhundert n. Chr. Die spanischen Geologen Eladio Liñán und Rodolfo Gozalo argumentieren, dass einige der in griechischen und lateinischen Lapidarien als Skorpionstein, Käferstein und Ameisenstein beschriebenen Fossilien Trilobitenfossilien sind. Eindeutigere Hinweise auf Trilobitenfossilien finden sich in chinesischen Quellen. Fossilien aus der Kushan-Formation im Nordosten Chinas waren als Reibsteine und Schmuckstücke begehrt. [ 125 ]
In der Neuen Welt entdeckten amerikanische Fossiliensammler in den 1860er Jahren im Westen Utahs reichhaltige Vorkommen von Elrathia kingi . Bis zum Beginn des 20. Jahrhunderts trugen die Ute-Indianer Utahs diese Trilobiten, die sie Pachavee (kleine Wasserwanze) nannten, als Amulette . [ 127 ] [ 128 ] Man bohrte ein Loch in den Kopf des Fossils und trug es an einer Schnur. [ 127 ] Laut den Ute selbst schützten Trilobiten-Halsketten vor Kugeln und Krankheiten wie Diphtherie . [ 127 ] [ 128 ] 1931 entdeckte Frank Beckwith Beweise für die Verwendung von Trilobiten durch die Ute. Auf einer Reise durch die Badlands fotografierte er zwei Petroglyphen , die höchstwahrscheinlich Trilobiten darstellen. Auf derselben Reise untersuchte er ein Grab unbekannten Alters, in dessen Brusthöhle ein durchbohrtes Trilobitenfossil lag. Seitdem wurden Trilobiten-Amulette im gesamten Großen Becken sowie in British Columbia und Australien gefunden. [ 125 ]
In den 1880er Jahren entdeckten Archäologen in der Grotte du Trilobite ( Höhlen von Arcy-sur-Cure , Yonne , Frankreich) ein stark beanspruchtes Trilobitenfossil, das offenbar angebohrt worden war, als ob es als Anhänger getragen werden sollte. Die Fundschicht, in der der Trilobit entdeckt wurde, ist 15.000 Jahre alt. Aufgrund der starken Beanspruchung lässt sich die Trilobitenart nicht bestimmen. Da diese Art von Trilobit in der Gegend um Yonne nicht vorkommt, könnte sie ein begehrtes Sammlerstück gewesen sein und von anderswo gehandelt worden sein. [ 125 ]
Siehe auch
Referenzen
- ^ a b c d e f B. S., Lieberman (2002), „Phylogenetische Analyse einiger basaler frühkambrischer Trilobiten, die biogeographischen Ursprünge der Eutrilobita und der Zeitpunkt der kambrischen Radiation“, Journal of Paleontology , 76 (4) (4. Aufl.): 692–708 , doi : 10.1666/0022-3360(2002)076<0692:PAOSBE>2.0.CO;2
- ^ a b c Fortey, Richard (2000), Trilobite!: Eyewitness to Evolution , London: HarperCollins, ISBN 978-0-00-257012-1
- ^ Robert Kihm; James St. John (2007). „Walchs Trilobitenforschung – Eine Übersetzung seines Trilobitenkapitels von 1771“. In: Donald G. Mikulic; Ed Landing; Joanne Kluessendorf (Hrsg.). Fabulous fossils – 300 years of worldwide research on trilobites (PDF) . New York State Museum Bulletin. Band 507. University of the State of New York. S. 115–140 . Archiviert vom Original (PDF) am 14.07.2014.
- ^ Jones, Daniel (2003) [1917]. „Trilobit“. In: Peter Roach, James Hartmann, Jane Setter (Hrsg.). English Pronouncing Dictionary . Cambridge: Cambridge University Press . ISBN 978-3-12-539683-8Die
- ^ „Trilobit“ . Merriam-Webster.com Dictionary . Merriam-Webster. OCLC 1032680871 .
- ^ „Trilobit“ . Dictionary.com Unabridged (Online). nd
- ^ a b „Trilobiten wagten sich über den Ozean hinaus“ . Nature . 505 (7483): 264–265 . Januar 2014. doi : 10.1038/505264e .
- ^ a b Fortey, Richard (2004). „The Lifestyles of the Trilobites“ (PDF) . American Scientist . 92 (5): 446–453 . doi : 10.1511/2004.49.944 . Archiviert vom Original (PDF) am 18.09.2006.
- ^ a b Fortey, Richard (Juni 2000), „Oleniden-Trilobiten: Die ältesten bekannten chemoautotrophen Symbionten?“, Proceedings of the National Academy of Sciences , 97 (12): 6574–6578 , Bibcode : 2000PNAS...97.6574F , doi : 10.1073/pnas.97.12.6574 , PMC 18664 , PMID 10841557
- ^ "Trilobit | fossiler Arthropode" . 22. August 2023.
- ^ Aria, Cédric (26.04.2022). „Der Ursprung und die frühe Evolution der Arthropoden“ . Biological Reviews . 97 (5): 1786–1809 . doi : 10.1111/brv.12864 . ISSN 1464-7931 . PMID 35475316. S2CID 248402333 .
- ^ Berks, HO; Nielsen, ML; Flannery-Sutherland, J.; Nielsen, AT; Park, T.-YS; Vinther, J. (2023). „Ein möglicherweise tief verzweigter Artiopode aus der unterkambrischen Sirius-Passet-Lagerstätte (Nordgrönland)“ . Papers in Palaeontology . 9 (3). e1495. Bibcode : 2023PPal....9E1495B . doi : 10.1002/spp2.1495 . S2CID 259253098 .
- ^ Hollingsworth, JS (2008). „Die ersten Trilobiten in Laurentia und anderswo“. In I. Rábano; R. Gozalo; D. García-Bellido (Hrsg.). Fortschritte in der Trilobitenforschung (PDF) . Vierte Internationale Trilobitenkonferenz, Toledo, 16.–24. Juni 2008. Cuadernos del Museo Geominero, Nr. 9 . Madrid, Spanien: Instituto Geológico y Minero de España. ISBN 978-84-7840-759-0Archiviert vom Original (PDF) am 10. Juli 2015.
- ^ a b Bushuev E., Goryaeva I., Pereladov V. (2014). „Neue Entdeckungen der ältesten Trilobiten Profallotaspis und Nevadella auf der nordöstlichen Sibirischen Plattform, Russland“ (PDF) . Bull. Geosci . 89 (2): 347–364 . doi : 10.3140/bull.geosci.1406 . Archiviert vom Original (PDF) am 19.03.2022.
{{cite journal}}: CS1 Wartung: Mehrere Namen: Autorenliste ( Link ) - ^ Linan, Eladio; Gozalo, Rodolfo; Dies Alvarez, María Eugenia ( 2008), „Nuevos trilobites del Ovetiense inferior (Cámbrico Inferior bajo) de Sierra Morena (España)“ , Ameghiniana , 45 (1): 123–138
- ^ a b Holmes, James D.; Budd, Graham E. (2022-11-04). „Reassessing a cryptic history of early trilobite evolution“ . Communications Biology . 5 (1): 1177. doi : 10.1038/s42003-022-04146-6 . ISSN 2399-3642 . PMC 9636250. PMID 36333446 .
- ^ a b c Clowes, Chris, Trilobite Origins , archiviert vom Original am 14. Mai 2011 , abgerufen am 12. April 2009
- ^ Jell, P. (2003), „Phylogenie frühkambrischer Trilobiten“, in Lane, PD; Siveter, DJ; Fortey, RA (Hrsg.), Trilobiten und ihre Verwandten: Beiträge der dritten internationalen Konferenz, Oxford 2001 , Special Papers in Palaeontology, Bd. 70, Blackwell Publishing & Palaeontological Association, S. 45–57
- ^ Sam Gon III. "Erste Trilobiten" .
- ^ „Gefunden: Innereien eines 470 Millionen Jahre alten Meerestieres“ . 6. Februar 2017. Archiviert vom Original am 6. Februar 2017. Abgerufen am 7. Februar 2017 .
- ^ Gutiérrez-Marco, Juan C.; García-Bellido, Diego C.; Rabano, Isabel; Sá, Artur A. (10.01.2017). „Verdauungs- und appendikuläre Weichteile mit Auswirkungen auf das Verhalten bei einem großen ordovizischen Trilobiten aus der Lagerstätte Fezouata, Marokko“ . Wissenschaftliche Berichte . 7 39728. Bibcode : 2017NatSR...739728G . doi : 10.1038/srep39728 . ISSN 2045-2322 . PMC 5223178 . PMID 28071705 .
- ^ El Albani, A.; Mazurier, A.; Edgecombe, GD; Azizi, A.; El Bakhouch, A.; Berks, HO; Bouougri, EH; Chraiki, I.; Donoghue, PCJ; Fontaine, C.; Gaines, RR; Ghnahalla, M.; Meunier, A.; Trentesaux, A.; Paterson, JR (2024). „Schnelle Einbettung durch vulkanische Asche enthüllt die dreidimensionale Anatomie kambrischer Trilobiten“. Science . 384 (6703): 1429–1435 . Bibcode : 2024Sci...384.1429E . doi : 10.1126/science.adl4540 . PMID 38935712 .
- ^ „Die Evolution der Trilobiten – Paläokunst“ . Archiviert vom Original am 12.12.2018 . Abgerufen am 26.11.2019 .
- ^ a b c d e f g h i j Clarkson, ENK (1998), Invertebrate Paleontology and Evolution (4. Aufl.), Oxford: Wiley/Blackwell Science, S. 452, ISBN 978-0-632-05238-7
- ^ a b c d e f Fortey, RA; Owens, RM (1997), „Evolutionary History“, in Kaesler, RL (Hrsg.), Treatise on Invertebrate Paleontology, Part O, Arthropoda 1, Trilobita, überarbeitet. Band 1: Einführung, Ordnung Agnostida, Ordnung Redlichiida , Boulder, CO & Lawrence, KS: The Geological Society of America, Inc. & The University of Kansas, S. 249–287 , ISBN 978-0-8137-3115-5
- ^ Samuel M. Gon III (20. Juli 2008). „Evolutionäre Trends bei Trilobiten“ . Ein Leitfaden zu den Ordnungen der Trilobiten. Archiviert vom Original am 17. Mai 2013. Abgerufen am 14. April 2011 .
- ^ Fortey, RA; Briggs, DEG; Wills, MA (1996), „Die kambrische evolutionäre „Explosion“: Entkopplung der Kladogenese von der morphologischen Disparität“, Biological Journal of the Linnean Society , 57 : 13–33 , doi : 10.1111/j.1095-8312.1996.tb01693.x
- ^ a b Nedin, C. (1999), „ Anomalocaris- Prädation an nichtmineralisierten und mineralisierten Trilobiten“, Geology , 27 (11): 987–990 , Bibcode : 1999Geo....27..987N , doi : 10.1130/0091-7613(1999)027<0987:APONAM>2.3.CO;2
- ^ a b c d e Bault, Valentin; Balseiro, Diego; Monnet, Claude; Crônier, Catherine (Juli 2022). „Postordovizische Trilobitendiversität und evolutionäre Faunen“ . Earth-Science Reviews . 230 104035. Bibcode : 2022ESRv..23004035B . doi : 10.1016/j.earscirev.2022.104035 .
- ^ a b c Rudkin, DA; Young, GA; Elias, RJ; Dobrzanske, EP (2003), „Der größte Trilobit der Welt: Isotelus rex, eine neue Art aus dem Oberordovizium des nördlichen Manitoba, Kanada“, Journal of Paleontology , 70 (1): 99–112 , Bibcode : 2003JPal...77...99R , doi : 10.1666/0022-3360(2003)077<0099:TWBTIR>2.0.CO;2
- ^ a b c d Prähistorisches Leben: Die definitive visuelle Geschichte des Lebens auf der Erde . London: Dorling Kindersley. 2009. S. 76, 88, 89, 90, 91, 104, 105, 127, 161, 180, 181. ISBN 978-0-7566-5573-0Die
- ^ Webster, Mark (2007), „Ein kambrischer Höhepunkt morphologischer Variation innerhalb von Trilobitenarten“, Science , 317 (5837): 499–502 , Bibcode : 2007Sci...317..499W , doi : 10.1126/science.1142964 , PMID 17656721 , S2CID 36290256
- ^ a b c Adrain, Jonathan M.; Fortey, Richard A. ; Westrop, Stephen R. (1998), „Postkambrische Trilobitendiversität und evolutionäre Faunen“ (PDF) , Science , 280 (5371): 1922– 5, Bibcode : 1998Sci...280.1922A , doi : 10.1126/science.280.5371.1922 , PMID 9632387
- Hopkins , Melanie J.; Wagner, Peter J.; Jordan, Katherine J. (17.04.2023). „ Permische Trilobiten und die Anwendbarkeit des Konzepts des „lebenden Fossils“ auf ausgestorbene Kladen“ . Frontiers in Ecology and Evolution . 11 1166126. Bibcode : 2023FrEEv..1166126H . doi : 10.3389/ fevo.2023.1166126 . ISSN 2296-701X .
- ^ Brezinski, David K. (Januar 2023). „Biogeographische Muster bei spätpaläozoischen Trilobiten“ . Palaeogeography, Palaeoclimatology, Palaeoecology . 609 111319. Bibcode : 2023PPP...60911319B . doi : 10.1016/j.palaeo.2022.111319 .
- ^ Lerosey-Aubril, Rudy; Feist, Raimund (2012), „Quantitative Approach to Diversity and Decline in Late Palaeozoic Trilobites“, Earth and Life , Dordrecht: Springer Netherlands, S. 535–555 , doi : 10.1007/978-90-481-3428-1_16 , ISBN 978-90-481-3427-4
- ^ a b Owens, RM (2003), „Die stratigraphische Verbreitung und das Aussterben permischer Trilobiten.“, in Lane, PD; Siveter, DJ; Fortey RA (Hrsg.), Trilobiten und ihre Verwandten: Beiträge der dritten internationalen Konferenz, Oxford 2001 , Special Papers in Palaeontology, Bd. 70, Blackwell Publishing & Palaeontological Association, S. 377–397
- ^ Burns, Jasper (1991). „Fossiliensammeln in den Mittelatlantikstaaten“. The Johns Hopkins University Press . S. 5.
- ^ Baldwin, CT (1977), „ Rusophycus morgati : ein von einem Asaphiden erzeugtes Spurenfossil aus dem Kambrium-Ordovizium der Bretagne und Nordwestspaniens“, Journal of Paleontology , 51 (2): 411–425 , JSTOR 1303619
- ^ a b Garlock, TL; Isaacson, PE (1977), „Das Vorkommen einer Cruziana- Population im Moyer Ridge Member der Bloomsberg-Formation (Spätsilur) – Snyder County, Pennsylvania“, Journal of Paleontology , 51 (2): 282– 287, JSTOR 1303607
- ^ Woolfe, KJ (1990), „Spurenfossilien als paläoökologische Indikatoren in der Taylor-Gruppe (Devon) der Antarktis“, Palaeogeography, Palaeoclimatology, Palaeoecology , 80 ( 3–4 ): 301–310 , Bibcode : 1990PPP....80..301W , doi : 10.1016/0031-0182(90)90139-X
- ^ Zonneveld, John-Paul; Pemberton, S. George; Saunders, Thomas DA; Pickerill, Ronald K. (1. Oktober 2002). „Große, robuste Cruziana aus der Mitteltrias des nordöstlichen British Columbia: Ethologische, biostratigraphische und paläobiologische Bedeutung“. PALAIOS . 17 (5): 435–448 . Bibcode : 2002Palai..17..435Z . doi : 10.1669/0883-1351(2002)017<0435:LRCFTM>2.0.CO;2 . S2CID 131613992 .
- ^ a b Carolyn Raeke; Tom Earnst; Mike Vogel; Harold McNeil (18. August 1995). „Stadtrat und Naturkundeverein bemühen sich um Rettung des Hamburger Fossilienfundes“ . The Buffalo News .
- ^ Barbara O'Brien (13.10.2013). „In Penn Dixie werden ihnen die Fossilien nie ausgehen . “ The Buffalo News . Abgerufen am 13. Oktober 2013 .
- ^ Matt Gryta; Tom Ernst (4. März 1990). „Initiative zur Erhaltung der Fossilienfundstätte Hamburg Quarry wird als wertvoll angesehen“ . The Buffalo News .
- ^ „Trilobiten“ . Penn Dixie Fossil Park & Nature Preserve . 15.03.2016 . Abgerufen am 16.07.2017 .
- ^ „Latham Shale – California Dreamin'“" . Amerikanisches Naturkundemuseum . Archiviert vom Original am 14. April 2024.
- ^ Robert R. Gaines ; Mary L. Droser (2003), „Paläoökologie des bekannten Trilobiten Elrathia kingii : ein früher Bewohner der exaeroben Zone“ (PDF) , Geology , 31 (11): 941–4 , Bibcode : 2003Geo....31..941G , doi : 10.1130/G19926.1
- ^ „Eine Kurzanleitung zur Erkennung gefälschter Trilobiten!“ . 29. Oktober 2019.
- ^ Eldredge, Niles & Gould, Stephen Jay (1972), „Punktualismus: Eine Alternative zum phyletischen Gradualismus“ , in: Schopf, Thomas JM (Hrsg.), Modelle der Paläobiologie , San Francisco, CA: Freeman, Cooper, S. 82–115 , ISBN 978-0-87735-325-6Nachgedruckt in: Eldredge, Niles (1985), Time frames: the rethinking of Darwinian evolution and the theory of punctuated equilibria , New York: Simon and Schuster, ISBN 978-0-671-49555-8
- ^ Mayr, Ernst (1992), „Speciational Evolution or Punctuated Equilibria?“ , in: Peterson, Steven A.; Somit, Albert (Hrsg.), The Dynamics of evolution: the punctuated equilibrium debate in the natural and social sciences , Ithaca, NY: Cornell University Press , S. 25–26 , ISBN 978-0-8014-9763-6archiviert vom Original am 07.09.2018 , abgerufen am 21.11.2008
- ^ Shermer, Michael (2001), Die Grenzgebiete der Wissenschaft: Wo Sinn auf Unsinn trifft , Oxford, UK: Oxford University Press, ISBN 978-0-19-514326-3
- ^ Windley, B. F. (1996), Die sich entwickelnden Kontinente (3. Aufl.), John Wiley & Sons, S. xvi, 526, ISBN 978-0-471-91739-7
- ^ Harland, WB; Gayer, RA (1972), „Die arktischen Kaledoniden und frühere Ozeane“, Geological Magazine , 109 (4): 289–314 , Bibcode : 1972GeoM..109..289H , doi : 10.1017/S0016756800037717 , S2CID 131091660
- ^ Hughes Patrick, „Alfred Wegener (1880–1930): Ein geographisches Puzzle“ , Auf den Schultern von Giganten , Earth Observatory, NASA, archiviert vom Original am 8. August 2007 , abgerufen am 26. Dezember 2007 ,
... am 6. Januar 1912 schlug Wegener ... stattdessen eine große Vision von driftenden Kontinenten und sich ausdehnenden Meeren vor, um die Entwicklung der Erdgeographie zu erklären.
- ^ Alfred Wegener (1966), Die Entstehung der Kontinente und Ozeane , Biram John, Courier Dover, S. 246, ISBN 978-0-486-61708-4
- ^ Lieberman, BS (1999), „Testing the Darwinian Legacy of the Cambrian Radiation Using Trilobite Phylogeny and Biogeography“, Journal of Paleontology , 73 (2): 176–181 , Bibcode : 1999JPal...73..176L , doi : 10.1017/S0022336000027700 , S2CID 88588171
- ^ Lieberman, BS (2003), „Den Puls der kambrischen Strahlung spüren“, Integrative and Comparative Biology , 43 (1): 229–237 , doi : 10.1093/icb/43.1.229 , PMID 21680426
- ^ Schnirel, BL (2001), Trilobiten-Evolution und -Aussterben , Dania, Florida: Graves Museum of Natural History
- ^ Geyer, Gerd (1998). „Interkontinentale, auf Trilobiten basierende Korrelation des frühen mittleren Kambriums Marokkos“. Canadian Journal of Earth Sciences . 35 (4): 374–401 . Bibcode : 1998CaJES..35..374G . doi : 10.1139/cjes-35-4-374 .
- ^ Babcock, LE; Peng, S.; Geyer, G.; Shergold, JH (2005), „Veränderte Perspektiven auf die kambrische Chronostratigraphie und Fortschritte bei der Unterteilung des kambrischen Systems“, Geosciences Journal , 9 (2): 101–106 , Bibcode : 2005GescJ...9..101B , doi : 10.1007/BF02910572 , S2CID 128841167
- ^ „Internationale Unterkommission für kambrische Stratigraphie“ . Archiviert vom Original am 20.04.2008 . Abgerufen am 27.05.2009 .
- ^ Bignon , Arnaud; Waisfeld, Beatriz G.; Vaccari, N. Emilio; Chatterton, Brian DE (2020-07-02). „Neubewertung der Ordnung Trinucleida (Trilobita)“. Journal of Systematic Palaeontology . 18 (13): 1061–1077 . Bibcode : 2020JSPal..18.1061B . doi : 10.1080/14772019.2020.1720324 . ISSN 1477-2019 . S2CID 212995185 .
- ^ Fortey, RA (2001), „Trilobitensystematik: Die letzten 75 Jahre“, Journal of Paleontology , 75 (6): 1141–1151 , Bibcode : 2001JPal...75.1141F , doi : 10.1666/0022-3360(2001)075<1141:TSTLY>2.0.CO;2 , S2CID 86291472
- ^ Moore, R. C. (Hrsg.) (1959), Treatise on Invertebrate Paleontology, Part O, Arthropoda 1, Trilobita , Boulder, CO & Lawrence, KA: The Geological Society of America & The University of Kansas Press, S. xix + 560 S., 415 Abb., ISBN 978-0-8137-3015-8
{{citation}}:ISBN-/Datumsinkompatibilität ( Hilfe ) - ^ a b Fortey, RA (1990), „Ontogenese, Hypostomenansatz und Trilobitenklassifizierung“ (PDF) , Palaeontology , 33 (3): 529–576 , archiviert vom Original am 26. März 2009 , abgerufen am 22. Juni 2009
- ^ Ebach, MC; McNamara, KJ (2002), „Eine systematische Revision der Familie Harpetidae (Trilobita)“, Records of the Western Australian Museum , 21 (3): 135–167 , doi : 10.18195/issn.0312-3162.21(3).2002.235-267
- ^ Dank neuer Fossilien wissen wir nun endlich, wie sich Trilobiten fortgepflanzt haben.
- Whittington , HB (1997), „ Morphologie des Exoskeletts“, in: Kaesler, RL (Hrsg.), Treatise on Invertebrate Paleontology, Part O, Arthropoda 1, Trilobita, überarbeitet. Band 1: Einführung , Ordnung Agnostida, Ordnung Redlichiida , Boulder, CO & Lawrence, KA: The Geological Society of America, Inc. & The University of Kansas, S. 1–85 , ISBN 978-0-8137-3115-5
- ^ Gutiérrez-Marco, Juan C.; Sá, Artur A.; García-Bellido, Diego C.; Rabano, Isabel; Valério, Manuel (2009). „Riesige Trilobiten und Trilobitenhaufen aus dem Ordovizium Portugals“. Geologie . 37 (5): 443– 446. Bibcode : 2009Geo....37..443G . doi : 10.1130/g25513a.1 . ISSN 1943-2682 .
- ^ „Os Mais Importantes Fósseis de Portugal“ (auf europäisches Portugiesisch). National Geographic (Portugal) . 7. November 2018. Archiviert vom Original am 1. Mai 2021 . Abgerufen am 1. Mai 2021 .
- ^ „Fósseis de trilobites: um tesouro nacional – Museu das Trilobites – Centro de Interpretação Geológica de Canelas – Arouca“ (auf europäisches Portugiesisch). museudastrilobites.pt . Abgerufen am 1. Mai 2021 .
- ^ „Mikrostruktur und Zusammensetzung des Trilobiten-Exoskeletts“ (PDF) .
- ^ Kambrium: Die urzeitliche Meereswelt Nordamerikas
- ^ Dynamische Paläontologie: Nutzung von Quantifizierung und anderen Werkzeugen zur Entschlüsselung der Lebensgeschichte
- ^ Jell, PA; Adrain, JM (2003), „Verfügbare Gattungsnamen für Trilobiten“, Memoirs of the Queensland Museum , 48 (2): 331– 553
- ^ a b Fortey, RA; Hughs, NC (1998), "Bruttaschen bei Trilobiten", Journal of Paleontology , 72 (4): 639– 649, Bibcode : 1998JPal...72..638F , doi : 10.1017/S0022336000040361 , S2CID 89175427 .
- ^ Riccardo Levi-Setti (1995), Trilobiten , University of Chicago Press, ISBN 978-0-226-47452-6
- ^ a b Chris Clowes (15. April 2006). „Trilobitenursprünge“ . Peripatus. Archiviert vom Original am 14. Mai 2011. Abgerufen am 13. April 2011 .
- Samuel M. Gon III (3. Februar 2009). „ Trilobiten -Gesichtsnähte“ . Ein Leitfaden zu den Ordnungen der Trilobiten. Archiviert vom Original am 17. Mai 2011. Abgerufen am 13. April 2011 .
- ^ a b c Rhona M. Black (1988), Die Elemente der Paläontologie (2. Aufl.), Cambridge University Press, S. 151–152 , ISBN 978-0-521-34836-2
- ^ Michael Kipping. „Anzugwechsel“ . www.trilobita.de . Abgerufen am 13. April 2011 .
- ^ Pat Vickers Rich; Mildred Adams Fenton ; Carroll Lane Fenton ; Thomas Hewitt Rich (1989), Das Fossilienbuch: Eine Aufzeichnung des prähistorischen Lebens , Dover Books on Animals, Courier Dover Publications, S. 204, ISBN 978-0-486-29371-4
- ^ Euan Clarkson; Riccardo Levi-Setti & Gabor Horvath (2006), „Die Augen der Trilobiten: Das älteste erhaltene visuelle System“, Arthropod Structure & Development , 35 (4): 247–259 , Bibcode : 2006ArtSD..35..247C , doi : 10.1016/j.asd.2006.08.002 , PMID 18089074
- ^ Dai, T.; Zhang, X. (2008). „Ontogenese des Trilobiten Yunnanocephalus yunnanensis aus der Chengjiang-Lagerstätte, Unterkambrium, Südwestchina“. Alcheringa . 32 (4): 465–468 . Bibcode : 2008Alch...32..465D . doi : 10.1080/03115510802418057 . ISSN 0311-5518 . S2CID 129582955 .
- ^ a b Euan Neilson Kerr Clarkson (1998), Invertebrate palaeontology and evolution , Wiley-Blackwell, ISBN 978-0-632-05238-7
- ^ Paterson, JR; Edgecombe, GD (2006). „Die frühkambrische Trilobitenfamilie Emuellidae Popock, 1970: Systematische Stellung und Revision australischer Arten“. Journal of Paleontology . 85 (3): 496–513 . doi : 10.1666/0022-3360(2006)80[496:TECTFE]2.0.CO;2 . S2CID 84868780 .
- Bruton , DL; Haas, W. (2003), „ Making Phacops come alive“ , in Lane, PD; DJ Siveter; RA Fortey (Hrsg.), Trilobites and Their Relatives: Contributions from the Third International Conference, Oxford 2001 , Special Papers in Palaeontology, Bd. 70, Blackwell Publishing & Palaeontological Association, S. 331–348 , ISBN 978-0-901702-81-4
- ^ Frühe Roller: Wissenschaftler identifizieren das allererste "eingeschriebene" Tier
- ^ Bruton, DL; Nakrem, HA (2005), „Enrollment in a Middle Ordovician agnostoid trilobit“ (PDF) , Acta Palaeontologica Polonica , 50 (3. Aufl.): 441–448 , abgerufen am 22. Juni 2009
- ^ Knell, RJ; Fortey, RA ( 2005). „ Trilobitenstacheln und Käferhörner: Sexuelle Selektion im Paläozoikum?“ Biology Letters . 1 (2): 196–199 . doi : 10.1098/rsbl.2005.0304 . PMC 1626209. PMID 17148165 .
- ^ New Scientist Magazin (2005), Früheste Teilnehmer an sexuellen Wettkämpfen enthüllt (veröffentlicht am 28. Mai 2005)
- ^ a b c Hughes, Nigel (2003), „Trilobiten-Tagmose und Körpermusterung aus morphologischer und entwicklungsbiologischer Perspektive“ , Integrative and Comparative Biology , 43 (1) (1. Aufl.): 185–205 , doi : 10.1093/icb/43.1.185 , PMID 21680423 , archiviert vom Original am 03.10.2006.
- ^ a b Whittington, HB (1980), "Exoskelett, Häutungsstadium, Anhängselmorphologie und Lebensweise des mittelkambrischen Trilobiten Olenoides serratus ", Palaeontology , 23 : 171– 204
- Whittington , HB ( 1997 ), „The Trilobite Body“ , in : Kaesler, RL (Hrsg.), Treatise on Invertebrate Paleontology, Part O, Arthropoda 1, Trilobita, überarbeitet. Band 1: Einführung , Ordnung Agnostida, Ordnung Redlichiida , Boulder, CO & Lawrence, KA: The Geological Society of America, Inc. & The University of Kansas, S. 137–169 , ISBN 978-0-8137-3115-5
- ^ „Prähistorisches Pompeji“ – Von Vulkanasche getötete Trilobiten enthüllen nie zuvor gesehene Merkmale
- ^ Die rasche Einbettung in vulkanische Asche enthüllt die dreidimensionale Anatomie kambrischer Trilobiten
- ^ Hou, Jin-bo; Hughes, Nigel C.; Hopkins, Melanie J. (01.03.2021). „Der obere Extremitätenast des Trilobiten ist eine gut entwickelte Kieme“ . Science Advances . 7 (14) eabe7377. Bibcode : 2021SciA....7.7377H . doi : 10.1126/sciadv.abe7377 . ISSN 2375-2548 . PMC 8011964. PMID 33789898 .
- ^ „Vor 450 Millionen Jahren hatten Meerestiere einen Vorsprung beim Atmen . “ phys.org . Abgerufen am 7. April 2021 .
- ^ Ramskold, L.; Edgecombe, GD (1996), „Trilobiten-Anhängselstruktur – Eoredlichia neu betrachtet“, Alcheringa , 20 (4): 269–276 , Bibcode : 1996Alch...20..269R , doi : 10.1080/03115519608619471
- ^ Töpperwien, Mareike; Gradl, Regine; Keppeler, Daniel; Vassholz, Malte; Meyer, Alexander; Heßler, Roland; Achterhold, Klaus; Gleich, Bernhard; Dierolf, Martin; Pfeiffer, Franz; Moser, Tobias; Salditt, Tim (21.03.2018). „Ausbreitungsbasierte Phasenkontrast-Röntgentomographie der Cochlea unter Verwendung einer kompakten Synchrotronquelle“ . Wissenschaftliche Berichte . 8 (1): 4922. Bibcode : 2018NatSR...8.4922T . doi : 10.1038/s41598-018-23144-5 . ISSN 2045-2322 . PMC 5862924 . PMID 29563553 .
- ^ Kraft, Petr; Vaškaninová, Valéria; Mergl, Michal; Budil, Petr; Fatka, Oldřich; Ahlberg, Per (27. September 2023). „Einzigartig erhaltener Darminhalt beleuchtet die Paläophysiologie von Trilobiten“ . Natur . 622 (7983). Nature.com: 545–551 . Bibcode : 2023Natur.622..545K . doi : 10.1038/s41586-023-06567-7 . PMC 10584673 . PMID 37758946 .
- ^ „Fossile Trilobiten-Darminhalte enthüllen die Ernährung urzeitlicher Arthropoden“ . www.nhm.ac.uk. Abgerufen am 2. November 2023 .
- ^ McCall, GJH (2006), „Das Vendium (Ediacarium) im geologischen Archiv: Rätsel in der geologischen Vorgeschichte der kambrischen Explosion“, Earth-Science Reviews , 77 ( 1–3 ): 1–229 , Bibcode : 2006ESRv...77....1M , doi : 10.1016/j.earscirev.2005.08.004
- ^ Parker, Andrew (2003), Im Augenblick , Cambridge, MA: Perseus Books, ISBN 978-0-7382-0607-3, OCLC 52074044
- ^ a b Levi-Setti, Riccardo (1993), Trilobites (2. Aufl.), Chicago, IL: University of Chicago Press, p. 342 , ISBN 978-0-226-47451-9
- ^ a b c d e f Clarkson, ENK (1979), „Das visuelle System der Trilobiten“, Paläontologie , Enzyklopädie der Geowissenschaften, Bd. 22, S. 1–22 , doi : 10.1007/3-540-31078-9_67 , ISBN 978-0-87933-185-6
- ^ a b c d e f g h i Clarkson, EN (1997), „Das Auge, Morphologie, Funktion und Evolution“, in Kaesler, RL (Hrsg.), Treatise on Invertebrate Paleontology, Teil O, Arthropoda 1, Trilobita, überarbeitet. Band 1: Einführung, Ordnung Agnostida, Ordnung Redlichiida , Boulder, CO & Lawrence, KA: The Geological Society of America, Inc. & The University of Kansas, S. 114–132 , ISBN 978-0-8137-3115-5
- ^ a b Clarkson, ENK; Levi-Setti, RL (1975), „Trilobitenaugen und die Optik von Descartes und Huygens“, Nature , 254 (5502): 663– 7, Bibcode : 1975Natur.254..663C , doi : 10.1038/254663a0 , PMID 1091864 , S2CID 4174107
- ^ Joanna Aizenberg; Alexei Tkachenko; Steve Weiner; Lia Addadi ; Gordon Hendler (2001), „Kalzitische Mikrolinsen als Teil des Photorezeptorsystems bei Schlangensternen“, Nature , 412 (6849): 819–822 , Bibcode : 2001Natur.412..819A , doi : 10.1038/35090573 , PMID 11518966 , S2CID 4327277
- ^ a b Bruton, DL; Haas, W. (2003b), „Das rätselhafte Auge des Phacops “ , in Lane, PD; Siveter, DJ; Fortey RA (Hrsg.), Trilobiten und ihre Verwandten: Beiträge der dritten internationalen Konferenz, Oxford 2001 , Special Papers in Palaeontology, Bd. 70, Blackwell Publishing & Palaeontological Association, S. 349–362
- ^ a b Schoenemann, Brigitte; Clarkson, Euan (2013). „Entdeckung von etwa 400 Millionen Jahre alten Sinnesstrukturen in den Facettenaugen von Trilobiten“ . Scientific Reports . 3 1429. Bibcode : 2013NatSR...3.1429S . doi : 10.1038/srep01429 . PMC 3596982. PMID 23492459 .
- ^ McCormick, T.; Fortey, R. A. (1998). „Unabhängige Überprüfung einer paläobiologischen Hypothese: Die optische Struktur zweier ordovizischer pelagischer Trilobiten enthüllt ihre relative Paläobathymetrie“. Paleobiology . 24 (2): 235–253 . doi : 10.1666/0094-8373(1998)024[0235:ITOAPH ] 2.3.CO;2 . JSTOR 2401241. S2CID 132509541 .
- ^ Fortey, R.; Chatterton, B. (2003), „Ein devonischer Trilobit mit Augenschutz“, Science , 301 (5640): 1689, doi : 10.1126/science.1088713 , PMID 14500973 , S2CID 45993674
- ^ Buschbeck, Elke; Ehmer, Birgit; Hoy, Ron (1999), „Chunk Versus Point Sampling: Visual Imaging in a Small Insect“, Science , 286 (5442): 1178– 80, doi : 10.1126/science.286.5442.1178 , PMID 10550059
- ^ Jell, PA (1975), „Das abathochroale Auge von Pagetia , ein neuer Typ von Trilobitenauge“, Fossils and Strata , Bd. 4, S. 33–43 , doi : 10.18261/8200049639-1975-02 , ISBN 82-00-04963-9
- ^ Sam Gon III. „Trilobitenentwicklung“ . Archiviert vom Original am 26.04.2016 . Abgerufen am 28.05.2009 .
- Chatterton, BDE ; Speyer, SE (1997), „ Ontogenese “, in Kaesler, RL (Hrsg.), Treatise on Invertebrate Paleontology, Part O, Arthropoda 1, Trilobita, überarbeitet . Band 1 : Einführung , Ordnung Agnostida , Ordnung Redlichiida , Boulder, CO & Lawrence, KA: The Geological Society of America, Inc. & The University of Kansas, S. 173–247 , ISBN 978-0-8137-3115-5
- ^ Lerosey-Aubril, R.; Feist, R. (2005), „Erste karbonische Protaspidenlarven (Trilobita)“, Journal of Paleontology , 79 (4): 702–718 , doi : 10.1666/0022-3360(2005)079[0702:FCPLT]2.0.CO;2 , S2CID 130584215
- ^ a b Rudy Lerosey-Aubril. „Die Ontogenese der Trilobiten“ . Archiviert vom Original am 27. Oktober 2009. Abgerufen am 8. November 2010 .
- ^ Zhang, X.; Pratt, B. (1994), „Arthropodenembryonen des mittleren Kambriums mit Blastomere“, Science , 266 (5185): 637–9 , Bibcode : 1994Sci...266..637Z , doi : 10.1126/science.266.5185.637 , PMID 17793458 , S2CID 35620499
- ^ a b Chatterton, BDE; Speyer, SE (1989), „Larvenökologie, Lebenszyklusstrategien und Muster des Aussterbens und Überlebens bei ordovizischen Trilobiten“, Paleobiology , 15 (2): 118– 132, Bibcode : 1989Pbio...15..118C , doi : 10.1017/S0094837300009313 , S2CID 89379920
- ^ Daley, Allison C.; Drage, Harriet B. (März 2016). „Der Fossilienbestand der Häutung und Trends im Häutungsverhalten von Trilobiten“ . Arthropod Structure & Development . 45 (2): 71–96 . Bibcode : 2016ArtSD..45...71D . doi : 10.1016/j.asd.2015.09.004 . PMID 26431634 .
- ^ Brandt, Danita S. (Januar 2002). „Ecydsiale Effizienz und evolutionäre Wirksamkeit bei marinen Arthropoden: Implikationen für das Überleben von Trilobiten“ . Alcheringa: An Australasian Journal of Palaeontology . 26 (3): 399–421 . Bibcode : 2002Alch...26..399B . doi : 10.1080/03115510208619264 . ISSN 0311-5518 . S2CID 84274343 .
- ^ a b c d John J. McKay (22.11.2011). „Der erste Trilobit“ . OhioLINK ETD Center . Abgerufen am 3. Oktober 2012 .
- ^ Alex J. Chestnut. „Anwendung von Morphometrie, phylogenetischer Systematik und Parsimonieanalyse zur Gewinnung von Einblicken in die evolutionären Verwandtschaftsverhältnisse der Calymenidae Trilobita“ . OhioLINK ETD Center. Archiviert vom Original am 31. März 2012. Abgerufen am 21. August 2011 .
- ^ a b c Joleen Robinson (Oktober 1970), „Tracking the Trilobites“, Desert Magazine
- ^ a b van der Geer, Alexandra; Dermitzakis, Michael (2010). „Fossilien in der Pharmazie: von „Schlangeneiern“ zu „Heiligenknochen“; ein Überblick“ (PDF) . Hellenic Journal of Geosciences . 45 : 323–332 .
Bibliographie
- Fortey, Richard (2000), Trilobiten: Augenzeugen der Evolution , New York: Vintage Books , ISBN 978-0-375-70621-9
- Lawrence, Pete (2014), Trilobiten der Welt: Ein Atlas mit 1000 Fotografien , Manchester: Siri Scientific Press , ISBN 978-0-9574530-3-6archiviert vom Original am 08.03.2014 , abgerufen am 15.04.2014
- Levi-Setti, Riccardo (2014), Das Trilobitenbuch: Eine visuelle Reise , Chicago: University of Chicago Press , Bibcode : 2014tbvj.book.....L , ISBN 978-0-226-12441-4
Externe Links
- Ein Leitfaden zu den Trilobitenordnungen (archiviert am 18.02.2019 in der Wayback Machine) . Diese Website bietet umfassende Informationen zu Trilobiten. Sie enthält zahlreiche Strichzeichnungen und Fotografien sowie monatliche Neuigkeiten. Erstellt und gepflegt von Sam Ohu Gon III .
- Das virtuelle Fossilienmuseum – Klasse Trilobita . Enthält zahlreiche Fotografien, geordnet nach Taxonomie und Fundort.
- Die Western Trilobites Association ( WTA) bietet Informationen zu ihren Projekten und Fotos von Fundstücken ihrer Mitglieder und Mitwirkenden. Gestaltung und Pflege: Kevin D. Brett und Roger Perkins.
- Kevins Trilobiten-Galerie . Archivsammlung von Fotografien von Trilobitenfossilien. Erstellt von Kevin D. Brett.
- Informationen über gefälscht hergestellte Trilobiten (Archiviert am 21.01.2013 im Internet Archive) .
- Die Paläontologische Gesellschaft
- Chisholm, Hugh (Hrsg.) (1911). . Encyclopædia Britannica (11. Aufl.). Cambridge University Press.
- Als Trilobiten die Welt beherrschten von Natalie Angier, New York Times, 3. März 2014.
- Website des Amerikanischen Naturkundemuseums über Trilobiten
- Trilobiten im Naturkundemuseum von Houston