
ALOX15 (auch Arachidonat-15-Lipoxygenase, 15-Lipoxygenase-1, 15-LO-1, 15-LOX-1 genannt) ist, wie andere Lipoxygenasen , ein Schlüsselenzym im Stoffwechsel mehrfach ungesättigter Fettsäuren zu einer Vielzahl physiologisch und pathologisch wichtiger Produkte. ▼ Genfunktion
Kelavkar und Badr (1999) stellten fest, dass das Genprodukt von ALOX15 an Entzündungshemmung, Membranumbau und Krebsentstehung/Metastasierung beteiligt ist. Sie beschrieben Experimente, deren Ergebnisse die Hypothese stützten, dass der Verlust des TP53-Gens oder Funktionsgewinne durch die Expression seiner mutierten Formen die ALOX15-Promotoraktivität in Mensch und Maus regulieren, allerdings in entgegengesetzter Richtung. Diese Studien belegten einen direkten Zusammenhang zwischen der ALOX15-Genaktivität und einem etablierten, chromosomal nahe gelegenen Tumorsuppressorgen. Kelavkar und Badr (1999) werteten dies als Beweis dafür, dass 15-Lipoxygenase ein Mutatorgen ist. ▼ Kartierung
Durch PCR-Analyse eines somatischen Hybrid-DNA-Panels von Mensch und Hamster konnten Funk et al. (1992) nachweisen, dass die Gene für 12-Lipoxygenase und 15-Lipoxygenase auf dem menschlichen Chromosom 17 lokalisiert sind, während die am wenigsten verwandte Lipoxygenase (5-Lipoxygenase) auf Chromosom 10 kartiert wurde.
Kelavkar und Badr (1999) gaben an, dass das ALOX15-Gen auf Chromosom 17p13.3 in unmittelbarer Nähe des Tumorsuppressorgens TP53 (191170) lokalisiert ist. Beim Menschen wird es durch das ALOX15- Gen auf Chromosom 17p13.3 kodiert . [ 5 ] Dieses 11 Kilobasenpaare lange Gen besteht aus 14 Exons und 13 Introns und kodiert für ein 75 Kilodalton großes Protein mit 662 Aminosäuren. 15-LO ist von einem anderen humanen 15-Lipoxygenase-Enzym, ALOX15B (auch 15-Lipoxygenase-2 genannt), zu unterscheiden. [ 6 ] Orthologe von ALOX15, genannt Alox15, sind in Tier- und Pflanzenarten weit verbreitet, weisen jedoch üblicherweise unterschiedliche Enzymaktivitäten auf und produzieren teilweise andere Produkte als ALOX15.
Nomenklatur
Das humane ALOX15 wurde ursprünglich als Arachidonat-15-Lipoxygenase oder 15-Lipoxygenase bezeichnet. Spätere Studien entdeckten jedoch ein zweites humanes Enzym mit 15-Lipoxygenase-Aktivität sowie verschiedene nicht-humane Säugetier-Alox15-Enzyme, die eng mit dem humanen ALOX15 verwandt und somit Orthologe sind . Viele dieser letztgenannten Alox15-Enzyme weisen jedoch überwiegend oder ausschließlich 12-Lipoxygenase-Aktivität anstelle von 15-Lipoxygenase-Aktivität auf. Daher wird das humane ALOX15 heute als Arachidonat-15-Lipoxygenase-1, 15-Lipoxygenase-1, 15-LOX-1, 15-LO-1, humane 12/15-Lipoxygenase, Arachidonat-12-Lipoxygenase vom Leukozytentyp oder Arachidonat-Omega-6-Lipoxygenase bezeichnet. Die zweite entdeckte humane 15-Lipoxygenase, ein Produkt des ALOX15B- Gens, wird als ALOX15B, Arachidonat-15-Lipoxygenase 2, 15-Lipoxygenase-2, 15-LOX-2, 15-LO-2, Arachidonat-15-Lipoxygenase Typ II, Arachidonat-15-Lipoxygenase zweiten Typs oder Arachidonat-15-Lipoxygenase bezeichnet. Die Maus-, Ratten- und Kaninchen-Orthologe des humanen ALOX15, die eine Aminosäureidentität von 74–81 % mit dem humanen Enzym aufweisen, werden üblicherweise als Alox15, 12/15-Lipoxygenase, 12/15-LOX oder 12/15-LO bezeichnet. [ 5 ] [ 6 ]
Die menschlichen Gene ALOX15 und ALOX15B befinden sich beide auf Chromosom 17; ihre Produktproteine weisen eine Aminosäuresequenzidentität von nur etwa 38 % auf; sie unterscheiden sich auch in den mehrfach ungesättigten Fettsäuren , die sie als Substrate bevorzugen, und zeigen unterschiedliche Produktprofile, wenn sie auf dieselben Substrate einwirken. [ 6 ] [ 7 ]
Gewebeverteilung
Das humane ALOX15-Protein wird stark in zirkulierenden eosinophilen Granulozyten und Retikulozyten , Bronchialepithelzellen, Brustdrüsenepithelzellen, Reed-Sternberg-Zellen des Hodgkin-Lymphoms , Hornhautepithelzellen und dendritischen Zellen exprimiert ; weniger stark wird es in Alveolarmakrophagen , Gewebsmastzellen , Gewebsfibroblasten , zirkulierenden Neutrophilen , vaskulären Endothelzellen , Gelenksynovialmembranzellen , Samenflüssigkeit , Prostataepithelzellen und Milchgangepithelzellen exprimiert. [ 8 ] [ 9 ] [ 10 ] [ 11 ]
Die Verteilung von Alox15 bei nicht-menschlichen Primaten und insbesondere bei Nagetieren unterscheidet sich deutlich von der des menschlichen ALOX15; dies, zusammen mit der unterschiedlichen Hauptproduktbildung (z. B. 12-HETE statt 15-HETE), erschwert die Übertragung der Erkenntnisse über die Funktionen von Alox15 in Ratten-, Maus- oder Kaninchenmodellen auf die Funktion von ALOX15 beim Menschen. [ 6 ]
Enzymaktivitäten
Lipoxygenase-Aktivität
ALOX15 und Alox15-Enzyme sind Nicht-Häm- Dioxygenasen mit Eisenanteil . Sie katalysieren üblicherweise die Anlagerung von molekularem Sauerstoff (O₂).2Als Peroxyrest an mehrfach ungesättigte Fettsäuren (PUFA) mit zwei Kohlenstoff-Kohlenstoff- Doppelbindungen fungiert das humane ALOX15-Enzym. Diese Doppelbindungen befinden sich zwischen den Kohlenstoffatomen 10 und 9 sowie 7 und 6, wobei die Nummerierung vom letzten oder Omega-Kohlenstoffatom (ω) am Methylende der PUFA rückwärts erfolgt (diese Kohlenstoffatome werden auch als ω-10 und ω-9 sowie ω-7 und ω-6 bezeichnet). In PUFA ohne eine dritte Kohlenstoff-Kohlenstoff-Doppelbindung zwischen den Kohlenstoffatomen ω-13 und ω-12 bildet das humane ALOX15 ω-6-Peroxy-Zwischenprodukte. In PUFA mit dieser dritten Doppelbindung bildet das humane ALOX15 neben dem ω-6-Peroxy-Zwischenprodukt auch geringe Mengen des ω-9-Peroxy-Zwischenprodukts. Alox15-Enzyme von Nagetieren hingegen produzieren fast ausschließlich ω-9-Peroxy-Zwischenprodukte. Gleichzeitig ordnen die Enzyme ALOX15 und Alox15 von Nagetieren die Kohlenstoff-Kohlenstoff-Doppelbindungen so um, dass sie in die 1S-Hydroxy-2E,4Z-Dien-Konfiguration übergehen . Die Enzyme ALOX15 und Alox15 wirken mit hoher Stereospezifität und bilden Produkte, die den Hydroperoxyrest in der S- Stereoisomer -Konfiguration positionieren. [ 12 ]
Lipohydroperoxidase-Aktivität
Das humane ALOX15 kann das Peroxy-PUFA-Zwischenprodukt auch in einen cyclischen Ether mit einem Dreiatomring umwandeln, d. h. in ein Epoxid- Zwischenprodukt, das von einem Wassermolekül angegriffen wird, um Epoxy-Hydroxy-PUFA-Produkte zu bilden. [ 6 ] Eoxine stimulieren die Gefäßpermeabilität in einem ex vivo humanen vaskulären Endothelzellmodellsystem. [ 13 ]
Leukotrien-Synthase-Aktivität
Das von ALOX15 hergestellte PUFA-Epoxid der Arachidonsäure - Eoxin A4 - kann auch mit Glutathion konjugiert werden, um Eoxin B4 zu bilden, welches Produkt weiter zu Eoxin C4 und Eoxin D4 metabolisiert werden kann. [ 6 ]
Substrate, Substratmetaboliten und Metabolitaktivitäten
Zu ihren physiologischen Substraten zählen die menschlichen und Nagetier-ALOX15-Enzyme, die auf Linolsäure , α-Linolensäure , γ-Linolensäure , Arachidonsäure, Eicosapentaensäure und Docosahexaensäure wirken, sowohl in freier Form als auch als Ester in Phospholipiden , Glyceriden oder Cholesterinestern . Das menschliche Enzym ist besonders aktiv gegenüber Linolsäure und bevorzugt diese gegenüber Arachidonsäure. Es ist weniger aktiv gegenüber mehrfach ungesättigten Fettsäuren (PUFA), die als Ester in den genannten Lipiden vorliegen. [ 6 ]
Arachidonsäure
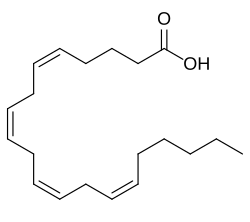
Arachidonsäure (AA) besitzt Doppelbindungen zwischen den Kohlenstoffatomen 5-6, 8-9, 11-12 und 14-15; diese Doppelbindungen liegen in cis- oder Z- Konfiguration vor, nicht in trans- oder E- Konfiguration. ALOX15 fügt AA an den Kohlenstoffatomen 15 und in geringerem Maße an 12 einen Hydroperoxyrest hinzu, wodurch 15( S )-Hydroperoxy- 5Z , 8Z ,11Z , 13E - Eicosatetraensäure (15( S )-HpETE) und 12( S )-Hydroperoxy-5Z , 8Z , 10E , 14Z-Eicosatetraensäure (12( S )-HpETE) entstehen. Das gereinigte Enzym produziert 15( S )-HpETE und 12( S )-HpETE in einem Produktverhältnis von ~4-9 zu 1. [ 14 ] Beide Produkte können durch ubiquitäre zelluläre Glutathionperoxidase- Enzyme rasch zu ihren entsprechenden Hydroxy-Analoga, 15( S )-HETE und 12( S )-HETE, reduziert werden . 15( S )-HpETE und 15( S )-HETE binden an den Leukotrien-B4-Rezeptor 2 und aktivieren ihn , aktivieren den Peroxisom-Proliferator-aktivierten Rezeptor gamma und veranlassen die Zellen in hohen Konzentrationen zur Bildung toxischer reaktiver Sauerstoffspezies . Einer oder mehrere dieser Effekte könnten zumindest teilweise für ihre Fähigkeit verantwortlich sein, Entzündungsreaktionen zu fördern, das Wachstum verschiedener menschlicher Krebszelllinien zu verändern, verschiedene Arten von Blutgefäßen zu verengen und pathologische Fibrose in Lungenarterien und Leber zu stimulieren (siehe 15-Hydroxyeicosatetraensäure § 15(S)-HpETE und 15(S)-HETE ). 15( S )-HpETE und 15( S )-HETE werden in Membranphospholipide verestert, wo sie gespeichert und bei Zellstimulation freigesetzt werden können. Im Rahmen dieses Prozesses werden die beiden Produkte während der Reifung roter Blutkörperchen zunehmend in mitochondriale Membranphospholipide verestert und könnten dadurch als Signal für den Abbau der Mitochondrien und die Reifung dieser Vorläuferzellen zu roten Blutkörperchen bei Mäusen dienen. Dieser Stoffwechselweg existiert neben zwei anderen mitochondrienabbauenden Stoffwechselwegen und scheint daher für die Reifung roter Blutkörperchen bei Mäusen nicht essentiell zu sein. [ 6 ]
15-( S )-HpETE und 15-( S )-HETE können weiter zu verschiedenen bioaktiven Produkten metabolisiert werden, darunter:
- Lipoxin (LX)A4, LXB4, AT-LXA4 und AT-LXB4; diese Metabolite gehören zur Klasse der spezialisierten pro-resolvierenden Mediatoren, einer Gruppe von entzündungshemmenden Wirkstoffen, die zur Auflösung von Entzündungsreaktionen und entzündungsbedingten Erkrankungen in Tiermodellen und möglicherweise auch beim Menschen beitragen.
- Hepoxilin- Isomere (z. B. 11 S -Hydroxy-14 S ,15 S -epoxy-5 Z ,8 Z ,12 E -eicosatriensäure (14,15-HxA3) und 13 R -Hydroxy-14 S ,15 S -epoxy-5 Z ,8 Z ,11 Z -eicosatriensäure (14,15-HxB3)), die zur Regulierung von Entzündungsreaktionen und Insulinausschüttung beitragen können .
- Eoxine (z. B. Eoxin C4, 14,15-Eoxin D4 und Eoxin E4), die entzündungsfördernde Wirkungen haben und zu schwerem Asthma , durch Aspirin verschlimmerten Atemwegserkrankungen und anderen allergischen Reaktionen beitragen; sie könnten auch an der Pathologie der Hodgkin-Krankheit beteiligt sein .
- Poxytrin 8( S ),15( S )-dihydroxy-5 Z ,9 E ,11 Z ,13 E -eicosatetraensäure (8( S ),15( S )-diHETE), ein Inhibitor der menschlichen Thrombozytenaggregation.
- 5( S ),15( S )-Dihydroxy- 6Z ,8E , 11E , 13Z - Eicosatetraensäure (5( S ),15( S )-DiHETE) und ihr 5- Keton -Analogon, 5-Oxo-15( S )-Hydroxy-ETE, sind schwache bzw. starke Stimulatoren der Chemotaxis von humanen Eosinophilen , Neutrophilen und Monozyten und tragen somit möglicherweise zu allergischen und nicht-allergischen Entzündungsreaktionen beim Menschen bei (siehe 5-Hydroxyeicosatetraensäure §§ Entzündung und Allergie ).
- 15-Oxo-ETE hemmt das Wachstum von kultivierten humanen Nabelschnurvenenendothelzellen und verschiedenen humanen Krebszelllinien; es hat auch Aktivitäten auf THP1-Zellen, was darauf hindeutet, dass es als Inhibitor von Entzündungs- und oxidativen Stressreaktionen wirken könnte (siehe 15-Hydroxyeicosatetraensäure § 15-Oxo-ETE ).
Die Nebenprodukte von ALOX15, 12-( S )-HpETE und 12-( S )-HETE, weisen ein breites Wirkungsspektrum auf. Eine oder beide dieser Verbindungen stimulieren Zellen durch Bindung an und Aktivierung zweier G-Protein-gekoppelter Rezeptoren , GPR31 und des Leukotrien-B4-Rezeptors 2. 12-( S )-HETE wirkt zudem als Rezeptorantagonist , indem es an den Thromboxan-Rezeptor bindet, diesen jedoch nicht stimuliert und dadurch die Wirkung von Thromboxan A2 und Prostaglandin H2 hemmt (siehe 12-Hydroxyeicosatetraensäure § Rezeptorziele und Wirkmechanismen ). Als zumindest teilweise Folge dieser rezeptorgerichteten Wirkungen zeigen eines oder beide der beiden ALOX15-Produkte in Tiermodellen entzündungsfördernde, diabetesinduzierende und gefäßerweiternde Aktivitäten sowie eine tumorfördernde Wirkung auf kultivierte menschliche Krebszellen. und weitere Wirkungen (siehe 12-Hydroxyeicosatetraensäure § Aktivitäten und mögliche klinische Bedeutung ). Die beiden Produkte werden außerdem zu verschiedenen bioaktiven Produkten weiter verstoffwechselt, darunter:
- Hepoxilin A3 und Hepoxilin B3 sowie ihre jeweiligen Trihydroxyl-Metaboliten, Trioxilin A3 und Trioxilin B3, weisen nachweislich entzündungshemmende und gefäßerweiternde Eigenschaften auf, fördern die Schmerzwahrnehmung, können oxidativen Stress in Zellen umkehren und die Insulinausschüttung in Tiermodellsystemen anregen (siehe Hepoxilin ).
- 12-Oxo-ETE aktiviert zusammen mit 12( S )-HETE den Leukotrien -B4- Rezeptor 2 (BLT2), nicht aber dessen Rezeptor 1 (BLT1). Dies lässt die Möglichkeit offen, dass 12-Oxo-ETE zu den proinflammatorischen und anderen Aktivitäten beiträgt, die von BLT2 reguliert werden (siehe 12-Hydroxyeicosatetraensäure § Entzündung und entzündliche Erkrankungen sowie Leukotrien-B4-Rezeptor 2 [ 15 ] ).
Docosahexaensäure
Das humane ALOX15 metabolisiert Docosahexaensäure (DHA) zu 17S - Hydroperoxy- 4Z ,7Z , 10Z , 13Z , 15E , 19Z - Docosahexaensäure (17S - HpDHA) und 17S - Hydroxy-4Z , 7Z , 10Z , 13Z , 15E , 19Z - Docosahexaensäure (17S - HDHA). [ 16 ] Eines oder beide dieser Produkte stimulieren humane Brust- und Prostatakrebszelllinien in Zellkulturen, und 17S - HDHA besitzt eine starke, spezialisierte proresolvierende Mediatoraktivität (siehe Spezialisierte proresolvierende Mediatoren § DHA-abgeleitete Resolvine ). [ 17 ] [ 18 ] [ 19 ] [ 20 ] Eines oder beide dieser Produkte können enzymatisch weiter metabolisiert werden zu:
- Resolvin D (RvDs), d. h. RvD-1, RvD2, RvD3, RvD4, RvD5, RvD6, und Protectin D (PDs), d. h. PD1, PDX, 20-Hydroxy-PD1, 17-epi-PD1 und 10-epi-PD1 (siehe Neuroprotectin D1 und Spezialisierte proresolvierende Mediatoren § DHA-abgeleitete Protectine/Neuroprotectine ). Diese Produkte gehören zur Klasse der spezialisierten proresolvierenden Mediatoren und weisen ein breites Spektrum an gemeinsamen Aktivitäten auf.
Eicosapentaensäure
Das humane ALOX15 metabolisiert Eicosapentaensäure zu 15S - Hydroperoxy- 5Z ,8Z , 11Z , 13E , 17E - Eicosapentaensäure ( 15S- HpEPA) und 15S - Hydroxy- 5Z ,8Z , 11Z , 13E , 17E - Eicosapentaensäure (15S - HEPA). 15S - HEPA hemmt die ALOX5 -abhängige Produktion des proinflammatorischen Mediators LTB4 in Zellen und könnte dadurch eine entzündungshemmende Funktion ausüben. [ 21 ] Diese Produkte können weiter metabolisiert werden zu:
- Resolvin E3, ein spezialisierter Proresolvin-Mediator mit entzündungshemmender Wirkung (siehe Spezialisierte Proresolvin-Mediatoren § EPA-abgeleitete Resolvine, z. B. RvE).
n-3 Docosapentaensäure
Menschliche Zellen und Mausgewebe metabolisieren n-3-Docosapentaensäure (d. h. 7Z , 10Z , 13Z , 16Z , 19Z - Docosapentaensäure oder Clupanodonsäure ) zu einer Reihe von Produkten, die als spezialisierte Proresolvin-Mediatoren klassifiziert wurden. In Analogie zum Metabolismus von Docosahexaensäure zu Resolvin-D-Substanzen wird angenommen, dass eine 15-Lipoxygenase, höchstwahrscheinlich ALOX15 beim Menschen, zu diesem Metabolismus beiträgt. Diese Produkte, die als n-3-Resolvin-D-Substanzen (RvD n-3 ) bezeichnet werden, sind:
- RvD1 n-3 , RvD2 n-3 und RvD3 n-3 ; jedes dieser Produkte besitzt eine starke entzündungshemmende Wirkung (siehe Spezialisierte proresolvierende Mediatoren § n-3 DPA-abgeleitete Resolvine ).
Linolsäure
Die humane 15-LOX-1 bevorzugt Linolsäure gegenüber Arachidonsäure als primäres Substrat und oxygeniert diese am Kohlenstoffatom 13 zu 13( S )-Hydroperoxy-9 Z ,11 E -octadecensäure (13-HpODE oder 13( S )-HpODE), die dann zum entsprechenden Hydroxyderivat 13( S )-HODE oder 13-HODE reduziert werden kann (siehe 13-Hydroxyoctadecadiensäure ). Neben 13( S )-HpODE metabolisieren nicht-humane 15-LOX1-Orthologe wie die Maus-12/15-LOX und die Sojabohnen-15-LOX Linolsäure zu 9-Hydroperoxy-10E , 12Z - octadecensäure (9-HpODE oder 9( S )-HpODE), die rasch in 9( S )-HODE (9-HODE) umgewandelt wird (siehe 9-Hydroxyoctadecadiensäure ). [ 22 ] [ 23 ] 13( S )-HODE wirkt über Peroxisomenproliferator-aktivierte Rezeptoren sowie die TRPV1- und humanen GPR132- Rezeptoren und stimuliert so eine Vielzahl von Reaktionen im Zusammenhang mit der Monozytenreifung, dem Lipidstoffwechsel und der neuronalen Aktivierung (siehe 13-Hydroxyoctadecadiensäure § Aktivitäten ). 9( S )-HODE ist ein Marker für Erkrankungen, die mit oxidativem Stress einhergehen , und kann sowohl zu dieser Erkrankung als auch zur Schmerzwahrnehmung und Atherosklerose beitragen (siehe 9-Hydroxyoctadecadiensäure § Biologische und klinische Relevanz von 9-HODEs). Die beiden HODEs können weiter zu ihren Ketonen , 13-Oxo- 9Z ,11E - octadecensäure und 9-Oxo-10E , 12Z- octadecensäure , metabolisiert werden ; diese Ketone gelten als Biomarker und mögliche Faktoren für die Entzündungskomponente bei Atherosklerose, Alzheimer-Krankheit , Steatohepatitis und anderen pathologischen Zuständen. [ 24 ]
Dihomo-γ-Linolensäure
Neutrophile des Menschen metabolisieren vermutlich mithilfe ihres ALOX15- Enzyms Dihomo-γ-Linolensäure (8Z , 11Z , 14Z - Eicosatriensäure) zu 15S - Hydroperoxy-8Z , 11Z , 13E - Eicosatriensäure und 15S - Hydroxy- 8Z , 11Z ,13E - Eicosatriensäure (15S - HETrE). 15S - HETrE besitzt entzündungshemmende Eigenschaften. [ 21 ] [ 25 ]
Genmanipulationsstudien
Mäuse mit einem Defekt im 12/15-Lipoxygenase-Gen (Alox15) zeigen eine verlängerte Entzündungsreaktion sowie verschiedene andere Aspekte einer pathologisch verstärkten Entzündungsreaktion in experimentellen Modellen von Hornhautverletzungen , Atemwegsentzündungen und Peritonitis . Diese Mäuse weisen zudem eine beschleunigte Progression der Atherosklerose auf, während Mäuse mit Überexpression von 12/15-Lipoxygenase eine verzögerte Atheroskleroseentwicklung zeigen. Alox15-überexprimierende Kaninchen wiesen in einem Parodontitismodell eine reduzierte Gewebszerstörung und einen geringeren Knochenverlust auf . Schließlich reagierten Kontrollmäuse, nicht aber 12/15-Lipoxygenase-defiziente Mäuse, auf die Verabreichung von Eicosapentaensäure mit einer Verringerung der Läsionsanzahl in einem Endometriosemodell . [ 26 ] Diese Studien deuten darauf hin, dass die Unterdrückung von Entzündungen eine Hauptfunktion der 12/15-Lipoxygenase und der von ihr produzierten spezialisierten proresolvierenden Mediatoren bei Nagetieren ist. Obwohl sich die 12/15-Lipoxygenase von Nagetieren von der menschlichen ALOX15 im Profil der von ihr produzierten PUFA-Metabolite sowie in verschiedenen anderen Parametern (z. B. Gewebeverteilung) unterscheidet, lassen diese genetischen Studien darauf schließen, dass die menschliche ALOX15 und die von ihr produzierten spezialisierten proresolvierenden Mediatoren eine ähnliche wichtige entzündungshemmende Funktion beim Menschen spielen könnten.
Klinische Bedeutung
Entzündliche Erkrankungen
Eine große und stetig wachsende Anzahl von Studien an Tiermodellen deutet darauf hin, dass 15-LOX-1 und seine Lipoxin-, Resolvin- und Protectin-Metaboliten (siehe Spezialisierte proresolvierende Mediatoren ) verschiedene entzündliche Erkrankungen hemmen, begrenzen und auflösen können, darunter Parodontitis , Peritonitis , Sepsis und andere durch Pathogene ausgelöste Entzündungsreaktionen; Ekzeme , Arthritis , Asthma , Mukoviszidose , Atherosklerose und Entzündungen des Fettgewebes ; die Insulinresistenz bei Adipositas, die mit Diabetes und dem metabolischen Syndrom assoziiert ist ; sowie die Alzheimer-Krankheit . [ 27 ] [ 28 ] [ 29 ] [ 30 ] [ 31 ] Obwohl diese Studien noch nicht auf menschliche Erkrankungen übertragbar sind, wurden synthetische Resolvine und Lipoxine der ersten und zweiten Generation, die im Gegensatz zu ihren natürlichen Analoga relativ resistent gegen metabolische Inaktivierung sind, hergestellt und als Entzündungshemmer in Tiermodellen getestet. [ 32 ] Diese synthetischen Analoga könnten sich als klinisch nützlich für die Behandlung der genannten entzündlichen Erkrankungen des Menschen erweisen.
Durch die Metabolisierung der ω-3-mehrfach ungesättigten Fettsäuren Eicosapentaensäure und Docosahexaensäure zu 17-HpDHA, 17-HDHA sowie Resolvinen und Protectinen wird angenommen, dass die metabolische Wirkung von 15-LOX-1 ein Mechanismus ist, durch den ω-3-mehrfach ungesättigte Fettsäuren aus der Nahrung, insbesondere aus Fischöl , Entzündungen, entzündungsbedingte Erkrankungen und bestimmte Krebsarten lindern können. [ 11 ] [ 27 ]
Asthma
15-LOX-1 und seine Metaboliten 5-Oxo-15-Hydroxy-ETE und Eoxin wurden als potenzielle Faktoren für die Entstehung von allergeninduziertem Asthma , aspirininduziertem Asthma und möglicherweise anderen allergischen Erkrankungen beim Menschen vorgeschlagen und stellen daher potenzielle Zielstrukturen für zukünftige Studien und Behandlungen dar. [ 33 ] [ 34 ]
Krebs
Bei Darm-, Brust- und Nierenkrebs sind die 15-LOX-1-Spiegel im Vergleich zum gesunden Gewebe niedrig oder nicht nachweisbar und/oder nehmen mit dem Fortschreiten der Erkrankung stark ab. [ 10 ] [ 27 ] [ 35 ] Diese Ergebnisse sowie eine Transgenstudie mit 15-LOX-1 an Darmkrebsmäusen [ 36 ] legen nahe, beweisen aber nicht [ 37 ] , dass 15-LOX-1 ein Tumorsuppressor ist .
Durch die Metabolisierung von ω-3-mehrfach ungesättigten Fettsäuren, Eicosapentaensäure und Docosahexaensäure zu Lipoxinen und Resolvinen wird angenommen, dass 15-LOX-1 ein Mechanismus ist, durch den ω-3-mehrfach ungesättigte Fettsäuren aus der Nahrung, insbesondere Fischöl, die Inzidenz und/oder das Fortschreiten bestimmter Krebsarten verringern können. [ 27 ] Tatsächlich ist die Fähigkeit der Docosahexaensäure, das Wachstum von kultivierten menschlichen Prostatakrebszellen zu hemmen, vollständig von der Expression von 15-LOX-1 durch diese Zellen abhängig und scheint auf die Produktion von Docosahexaensäure-Metaboliten durch dieses Enzym zurückzuführen zu sein, wie z. B. 17(S)-HpETE, 17(S)-HETE und/oder möglicherweise ein Isomer von Protectin DX (10S,17S-Dihydroxy-4Z,7Z,11E,13Z,15E,19Z-Docosahexaensäure) [ 11 ] [ 16 ].
Kelavkar et al. zeigten, dass eine aberrante Überexpression von 15-LO-1 in humanem Prostatakarzinom (PCa), insbesondere in hochgradigem PCa, und in hochgradiger prostatischen intraepithelialen Neoplasie (HGPIN) auftritt und dass das murine Ortholog in SV40-basierten gentechnisch veränderten Mausmodellen (GEM) von PCa, wie z. B. LADY und dem transgenen Adenokarzinom der Mausprostata (TRAnsgenic Adenocarcinoma of Mouse Prostate), erhöht ist. Die gezielte Überexpression von h15-LO-1 (einem in humanem PCa und HGPIN überexprimierten Gen) in der Mausprostata reicht aus, um die Epithelproliferation und die Entwicklung von mPIN zu fördern. Diese Ergebnisse stützen die Annahme, dass 15-LO-1 eine Rolle bei der Entstehung von Prostatatumoren spielt und ein frühes Ziel für diätetische oder andere Präventionsstrategien darstellt. Das FLiMP-Mausmodell sollte sich auch für Kreuzungen mit anderen GEM-Modellen eignen, um die für die PCa-Progression notwendigen Kombinationen molekularer Veränderungen weiter zu charakterisieren. [ 38 ]
Inhibitoren
Zu den ALOX15-Inhibitoren gehören folgende:
- Baicalein
- CU-13001
- i472
- KNX-100 (synthetische Oxytocin-ähnliche Verbindung 1; SOC-1)
- KNX-101
- Luteolin
- ML351
- SKL-11197 (SKL-NP)
- Utreloxastat (EPI-857; PTC-857)
- Vatiquinon (α-Tocotrienolchinon; EPI-743; PTC-743; Vincerenon)
Anmerkungen
Siehe auch
Referenzen
- ^ a b c GRCh38: Ensembl Release 89: ENSG00000161905 – Ensembl , Mai 2017
- ^ a b c GRCm38: Ensembl Release 89: ENSMUSG00000018924 – Ensembl , Mai 2017
- ^ „Human PubMed Reference:“ . National Center for Biotechnology Information, US National Library of Medicine .
- ^ „Maus PubMed-Referenz:“ . National Center for Biotechnology Information, US National Library of Medicine .
- Funk CD , Funk LB, FitzGerald GA, Samuelsson B (Mai 1992). „Charakterisierung humaner 12-Lipoxygenase-Gene“ . Proceedings of the National Academy of Sciences of the United States of America . 89 (9): 3962–6 . Bibcode : 1992PNAS...89.3962F . doi : 10.1073 / pnas.89.9.3962 . PMC 525611. PMID 1570320 .
- Ivanov I , Kuhn H, Heydeck D ( November 2015). „ Strukturelle und funktionelle Biologie der Arachidonsäure-15-Lipoxygenase-1 (ALOX15)“ . Gene . 573 ( 1 ) : 1–32 . doi : 10.1016 /j.gene.2015.07.073 . PMC 6728142. PMID 26216303 .
- ^ Brash AR, Boeglin WE, Chang MS (Juni 1997). „Entdeckung einer zweiten 15S-Lipoxygenase beim Menschen“ . Proceedings of the National Academy of Sciences of the United States of America . 94 (12): 6148–52 . Bibcode : 1997PNAS...94.6148B . doi : 10.1073 / pnas.94.12.6148 . PMC 21017. PMID 9177185 .
- ^ Claesson HE (September 2009). „Zur Biosynthese und biologischen Rolle von Eoxinen und 15-Lipoxygenase-1 bei Atemwegsentzündungen und Hodgkin-Lymphomen“. Prostaglandins & Other Lipid Mediators . 89 ( 3–4 ): 120–5 . doi : 10.1016/j.prostaglandins.2008.12.003 . PMID 19130894 .
- ^ Jiang WG, Watkins G, Douglas-Jones A, Mansel RE (April 2006). „Reduktion der Isoformen der 15-Lipoxygenase (15-LOX)-1 und 15-LOX-2 in menschlichem Brustkrebs“. Prostaglandins, Leukotrienes, and Essential Fatty Acids . 74 (4): 235–45 . doi : 10.1016/j.plefa.2006.01.009 . PMID 16556493 .
- ^ a b Shureiqi I, Wu Y, Chen D, Yang XL, Guan B, Morris JS, Yang P, Newman RA, Broaddus R, Hamilton SR, Lynch P, Levin B, Fischer SM, Lippman SM (Dezember 2005). „Die entscheidende Rolle der 15-Lipoxygenase-1 bei der terminalen Differenzierung und Tumorentstehung von kolorektalen Epithelzellen“ . Cancer Research . 65 (24): 11486–92 . doi : 10.1158/0008-5472.can-05-2180 . PMC 1564070. PMID 16357157 .
- ^ a b c Hu Y, Sun H, O'Flaherty JT, Edwards IJ (Januar 2013). „15-Lipoxygenase-1-vermittelter Metabolismus von Docosahexaensäure ist für die Syndecan-1 - Signalgebung und Apoptose in Prostatakrebszellen erforderlich“ . Carcinogenesis . 34 (1): 176–82 . doi : 10.1093/carcin/bgs324 . PMC 3584949. PMID 23066085 .
- Kuhn H, Banthiya S, van Leyen K (April 2015). „Lipoxygenasen von Säugetieren und ihre biologische Relevanz“ . Biochimica et Biophysica Acta (BBA) – Molekulare und Zellbiologie der Lipide . 1851 (4): 308–330 . doi : 10.1016 / j.bbalip.2014.10.002 . PMC 4370320. PMID 25316652 .
- Feltenmark S, Gautam N, Brunnström A, Griffiths W, Backman L, Edenius C, Lindbom L, Björkholm M, Claesson HE (2008). „Eoxine sind proinflammatorische Arachidonsäure-Metabolite, die über den 15-Lipoxygenase-1-Weg in humanen Eosinophilen und Mastzellen gebildet werden . “ Proceedings of the National Academy of Sciences of the United States of America . 105 (2): 680–5 . Bibcode : 2008PNAS..105..680F . doi : 10.1073/pnas.0710127105 . PMC 2206596. PMID 18184802 .
- Bryant RW, Bailey JM, Schewe T, Rapoport SM (Juni 1982). „Positionsspezifität einer Retikulozyten-Lipoxygenase. Umwandlung von Arachidonsäure in 15-S-Hydroperoxy-Eicosatetraensäure“ . The Journal of Biological Chemistry . 257 (11): 6050–5 . doi : 10.1016/S0021-9258(20)65103-1 . PMID 6804460 .
- ^ Yokomizo T, Kato K, Hagiya H, Izumi T, Shimizu T (April 2001). „Hydroxyeicosanoide binden an den Leukotrien-B4-Rezeptor BLT2 mit niedriger Affinität und aktivieren ihn“ . The Journal of Biological Chemistry . 276 (15): 12454–9 . doi : 10.1074/jbc.M011361200 . PMID 11278893 .
- O'Flaherty JT , Hu Y, Wooten RE, Horita DA, Samuel MP, Thomas MJ, Sun H, Edwards IJ (2012). „15-Lipoxygenase-Metabolite der Docosahexaensäure hemmen die Proliferation und das Überleben von Prostatakrebszellen“ . PLOS ONE . 7 ( 9): e45480. Bibcode : 2012PLoSO...745480O . doi : 10.1371/journal.pone.0045480 . PMC 3447860. PMID 23029040 .
- ^ Hu Y, Sun H, O'Flaherty JT, Edwards IJ (2013). „15-Lipoxygenase-1-vermittelter Metabolismus von Docosahexaensäure ist für die Syndecan-1-Signalgebung und Apoptose in Prostatakrebszellen erforderlich“ . Carcinogenesis . 34 (1): 176–82 . doi : 10.1093/carcin/ bgs324 . PMC 3584949. PMID 23066085 .
- ^ O'Flaherty JT, Wooten RE, Samuel MP, Thomas MJ, Levine EA, Case LD, Akman SA, Edwards IJ (2013). „Fettsäuremetaboliten in schnell proliferierendem Brustkrebs“ . PLOS ONE . 8 (5) e63076. Bibcode : 2013PLoSO...863076O . doi : 10.1371/ journal.pone.0063076 . PMC 3642080. PMID 23658799 .
- ^ Ramon S, Baker SF, Sahler JM, Kim N, Feldsott EA, Serhan CN, Martínez-Sobrido L, Topham DJ, Phipps RP (2014). „Der spezialisierte proresolvierende Mediator 17-HDHA verstärkt die antikörpervermittelte Immunantwort gegen das Influenzavirus: eine neue Klasse von Adjuvans?“ Journal of Immunology . 193 (12): 6031–40 . doi : 10.4049 / jimmunol.1302795 . PMC 4258475. PMID 25392529 .
- ^ Kim N, Ramon S, Thatcher TH, Woeller CF, Sime PJ, Phipps RP (2016). „Spezialisierte proresolvierende Mediatoren (SPMs) hemmen die IgE-Produktion humaner B-Zellen“ . European Journal of Immunology . 46 (1): 81–91 . doi : 10.1002/eji.201545673 . PMC 4710564. PMID 26474728 .
- ^ a b Ziboh VA, Miller CC, Cho Y (2000). „Metabolismus mehrfach ungesättigter Fettsäuren durch epidermale Hautenzyme: Bildung entzündungshemmender und antiproliferativer Metaboliten“ . The American Journal of Clinical Nutrition . 71 (1 Suppl): 361S– 6S. doi : 10.1093/ajcn/71.1.361s . PMID 10617998 .
- ^ Rankin SM, Parthasarathy S, Steinberg D (März 1991). „Nachweis einer dominanten Rolle von Lipoxygenasen bei der Oxidation von LDL durch peritoneale Makrophagen der Maus“ . Journal of Lipid Research . 32 (3): 449–56 . doi : 10.1016/S0022-2275(20)42068-1 . PMID 1906087 .
- ^ Veldink GA, Vliegenthart JF, Boldingh J (Februar 1970). „Nachweis der enzymatischen Bildung von 9-Hydroperoxy-10-trans, 12-cis-octadecadienonsäure aus Linolsäure durch Soja-Lipoxygenase“. Biochimica et Biophysica Acta (BBA) – Lipids and Lipid Metabolism . 202 (1): 198–9 . doi : 10.1016/0005-2760(70)90235-3 . hdl : 1874/5546 . PMID 5461374 .
- ^ Yuan ZX, Rapoport SI, Soldin SJ, Remaley AT, Taha AY, Kellom M, Gu J, Sampson M, Ramsden CE (2013). „Identifizierung und Profilierung gezielter oxidierter Linolsäuremetaboliten im Rattenplasma mittels Quadrupol-Flugzeit-Massenspektrometrie“ . Biomedical Chromatography . 27 (4): 422–32 . doi : 10.1002/bmc.2809 . PMC 3552117. PMID 23037960 .
- ^ Chilton-Lopez, Surette ME, Swan DD, Fonteh AN, Johnson MM, Chilton FH (1996). „Metabolismus der Gammalinolensäure in humanen Neutrophilen“ . Journal of Immunology . 156 (8): 2941–7 . doi : 10.4049/jimmunol.156.8.2941 . PMID 8609415. S2CID 22847636 .
- ^ Serhan CN, Chiang N, Dalli J (2015). „Der Auflösungscode der akuten Entzündung: Neue pro-resolvierende Lipidmediatoren bei der Auflösung“ . Seminars in Immunology . 27 (3): 200–15 . doi : 10.1016/j.smim.2015.03.004 . PMC 4515371. PMID 25857211 .
- ^ a b c d López-Vicario C, Rius B, Alcaraz-Quiles J, García-Alonso V, Lopategi A, Titos E, Clària J (Mai 2015). „Aus EPA und DHA hergestellte pro-auflösende Mediatoren: Überblick über die beteiligten Signalwege und ihre Mechanismen beim metabolischen Syndrom und damit verbundenen Lebererkrankungen“. Europäisches Journal für Pharmakologie . 785 : 133–143 . doi : 10.1016/j.ejphar.2015.03.092 . PMID 25987424 .
- ^ Romano M, Cianci E, Simiele F, Recchiuti A (August 2015). „Lipoxine und durch Aspirin ausgelöste Lipoxine bei der Auflösung von Entzündungen“. European Journal of Pharmacology . 760 : 49–63 . doi : 10.1016/j.ejphar.2015.03.083 . PMID 25895638 .
- ^ Cole BK, Lieb DC, Dobrian AD, Nadler JL (Juli 2013). „12- und 15-Lipoxygenasen bei Entzündungen des Fettgewebes“ . Prostaglandins & Other Lipid Mediators . 104–105 : 84–92 . doi : 10.1016/j.prostaglandins.2012.07.004 . PMC 3526691. PMID 22951339 .
- Russell CD, Schwarze J (Februar 2014). „ Die Rolle von pro-resolution Lipidmediatoren bei Infektionskrankheiten“ . Immunology . 141 (2): 166–73 . doi : 10.1111/imm.12206 . PMC 3904237. PMID 24400794 .
- ^ Serhan CN, Chiang N, Dalli J (Mai 2015). „Der Auflösungscode der akuten Entzündung: Neue pro-resolvierende Lipidmediatoren bei der Auflösung“ . Seminars in Immunology . 27 (3): 200–15 . doi : 10.1016/j.smim.2015.03.004 . PMC 4515371. PMID 25857211 .
- ^ Orr SK, Colas RA, Dalli J, Chiang N, Serhan CN (Mai 2015). „Proresolvierende Wirkung eines neuen Resolvin-D1-Analogons, das als Immunresolvens geeignet ist“ . American Journal of Physiology. Lung Cellular and Molecular Physiology . 308 (9): L904–11. doi : 10.1152/ajplung.00370.2014 . PMC 4421783. PMID 25770181 .
- James A, Daham K, Backman L, Brunnström A, Tingvall T, Kumlin M, Edenius C, Dahlén SE, Dahlén B, Claesson HE (2013). „Der Einfluss von Aspirin auf die Freisetzung von Eoxin C4, Leukotrien C4 und 15-HETE in eosinophilen Granulozyten von Patienten mit Asthma“. International Archives of Allergy and Immunology . 162 (2): 135–42 . doi : 10.1159 / 000351422 . PMID 23921438. S2CID 29180895 .
- ^ Neighbour H (2014). „Mechanismen des Aspirin-intoleranten Asthmas: Identifizierung entzündlicher Signalwege in der Pathogenese des Asthmas“ . International Archives of Allergy and Immunology . 163 (1): 1–2 . doi : 10.1159/000355949 . PMID 24247362 .
- ^ Gohara A, Eltaki N, Sabry D, Murtagh D, Jankun J, Selman SH, Skrzypczak-Jankun E (Oktober 2012). „Humane 5-, 12- und 15-Lipoxygenase-1 koexistieren in der Niere, zeigen aber gegenläufige Trends und Veränderungen ihres Gleichgewichts bei Krebs“ . Oncology Reports . 28 (4): 1275–82 . doi : 10.3892/or.2012.1924 . PMID 22825379 .
- Zuo X, Peng Z, Wu Y, Moussalli MJ, Yang XL, Wang Y, Parker-Thornburg J, Morris JS, Broaddus RR, Fischer SM, Shureiqi I (Mai 2012). „Auswirkungen der darmgerichteten 15-LOX-1-Transgenexpression auf die Kolontumorigenese bei Mäusen“ . Journal of the National Cancer Institute . 104 (9): 709–16 . doi : 10.1093/jnci/djs187 . PMC 3341308. PMID 22472308 .
- ^ Umar A (Mai 2012). „Ist 15-LOX-1 ein Tumorsuppressor?“ . Journal of the National Cancer Institute . 104 (9): 645– 7. doi : 10.1093/jnci/djs192 . PMID 22472307 .
- ^ Kelavkar UP, Parwani AV, Shappell SB, Martin WD (2006). „Konditionelle Expression der humanen 15-Lipoxygenase-1 in der Mausprostata induziert prostatische intraepitheliale Neoplasie: das FLiMP-Mausmodell“ . Neoplasia . 8 ( 6): 510–22 . doi : 10.1593/neo.06202 . PMC 1601466. PMID 16820097 .
- Kelavkar UP, Badr KF (1999). „Auswirkungen der Expression von mutiertem p53 auf die Aktivität des humanen 15-Lipoxygenase-Promotors und die Expression des murinen 12/15-Lipoxygenase-Gens: Hinweise darauf, dass 15-Lipoxygenase ein Mutatorgen ist“ . Proceedings of the National Academy of Sciences of the United States of America . 96 (8): 4378–83 . Bibcode : 1999PNAS...96.4378K . doi : 10.1073 / pnas.96.8.4378 . PMC 16340. PMID 10200270 .
Weiterführende Literatur
- Kelavkar UP, Badr KF (1999). „Auswirkungen der Expression von mutiertem p53 auf die Aktivität des humanen 15-Lipoxygenase-Promotors und die Expression des murinen 12/15-Lipoxygenase-Gens: Hinweise darauf, dass 15-Lipoxygenase ein Mutatorgen ist“ . Proceedings of the National Academy of Sciences of the United States of America . 96 (8): 4378–83 . Bibcode : 1999PNAS...96.4378K . doi : 10.1073 / pnas.96.8.4378 . PMC 16340. PMID 10200270 .
- Kelavkar U, Glasgow W, Eling TE (Juni 2002). „Der Einfluss der 15-Lipoxygenase-1-Expression auf Krebszellen“. Current Urology Reports . 3 (3): 207–14 . doi : 10.1007/s11934-002-0066-8 . PMID 12084190. S2CID 21497252 .
- Sigal E, Dicharry S, Highland E, Finkbeiner WE (April 1992). „Klonierung der humanen Atemwegs-15-Lipoxygenase: Identität mit dem Retikulozytenenzym und Expression im Epithel“. The American Journal of Physiology . 262 (4 Pt 1): L392–8. doi : 10.1152/ajplung.1992.262.4.L392 . PMID 1566855 .
- Izumi T, Rådmark O, Jörnvall H, Samuelsson B (Dezember 1991). „Reinigung zweier Formen der Arachidonat-15-Lipoxygenase aus menschlichen Leukozyten“ . European Journal of Biochemistry . 202 (3): 1231–8 . doi : 10.1111/j.1432-1033.1991.tb16495.x . PMID 1662607 .
- Conrad DJ, Kuhn H, Mulkins M, Highland E, Sigal E (Januar 1992). „Spezifische inflammatorische Zytokine regulieren die Expression der 15-Lipoxygenase in humanen Monozyten“ . Proceedings of the National Academy of Sciences of the United States of America . 89 (1): 217–221 . Bibcode : 1992PNAS...89..217C . doi : 10.1073/pnas.89.1.217 . PMC 48207. PMID 1729692 .
- Lei ZM, Rao CV (Februar 1992). „Die Expression des 15-Lipoxygenase-Gens und das Vorhandensein eines funktionellen Enzyms im Zytoplasma und Zellkern von schwangeren menschlichen Myometriumzellen“. Endocrinology . 130 (2): 861–70 . doi : 10.1210/endo.130.2.1733732 . PMID 1733732 .
- Izumi T, Rådmark O, Samuelsson B (1991). „Reinigung von 15-Lipoxygenase aus menschlichen Leukozyten, Nachweis von Isoenzymen“. Advances in Prostaglandin, Thromboxane, and Leukotriene Research . 21A : 101–4 . PMID 1825526 .
- Sloane DL, Leung R, Craik CS, Sigal E (November 1991). „Ein primärer Determinant für die Positionsspezifität der Lipoxygenase“. Nature . 354 ( 6349): 149–52 . Bibcode : 1991Natur.354..149S . doi : 10.1038/354149a0 . PMID 1944593. S2CID 4352315 .
- Nadel JA, Conrad DJ, Ueki IF, Schuster A, Sigal E (April 1991). „Immunzytochemische Lokalisierung der Arachidonat - 15-Lipoxygenase in Erythrozyten, Leukozyten und Atemwegszellen“ . The Journal of Clinical Investigation . 87 (4): 1139–45 . doi : 10.1172/JCI115110 . PMC 295116. PMID 2010530 .
- Kroschwald P, Kroschwald A, Kühn H, Ludwig P, Thiele BJ, Höhne M, Schewe T, Rapoport SM (April 1989). „Vorkommen der erythroiden zellenspezifischen Arachidonat-15-Lipoxygenase in menschlichen Retikulozyten“. Biochemical and Biophysical Research Communications . 160 (2): 954–60 . Bibcode : 1989BBRC..160..954K . doi : 10.1016/0006-291X(89)92528-X . PMID 2719708 .
- Sigal E, Nadel JA (Dezember 1988). „Arachidonsäure-15-Lipoxygenase und Atemwegsepithel. Biologische Wirkungen und Enzymreinigung“. The American Review of Respiratory Disease . 138 (6 Pt 2): S35–40. doi : 10.1164/ajrccm/138.6_pt_2.s35 . PMID 3202520 .
- Sigal E, Craik CS, Highland E, Grunberger D, Costello LL, Dixon RA, Nadel JA (Dezember 1988). „Molekulares Klonen und Primärstruktur der humanen 15-Lipoxygenase“. Biochemical and Biophysical Research Communications . 157 (2): 457–64 . Bibcode : 1988BBRC..157..457S . doi : 10.1016/S0006-291X(88)80271-7 . PMID 3202857 .
- Sigal E, Grunberger D, Craik CS, Caughey GH, Nadel JA (April 1988). „Arachidonat-15-Lipoxygenase (Omega-6-Lipoxygenase) aus menschlichen Leukozyten. Reinigung und strukturelle Homologie zu anderen Lipoxygenasen von Säugetieren“ . The Journal of Biological Chemistry . 263 (11): 5328–32 . doi : 10.1016/S0021-9258(18)60719-7 . PMID 3356688 .
- Nassar GM, Morrow JD, Roberts LJ, Lakkis FG, Badr KF (November 1994). „Induktion von 15-Lipoxygenase durch Interleukin-13 in menschlichen Blutmonozyten“ . The Journal of Biological Chemistry . 269 (44): 27631–4 . doi : 10.1016/S0021-9258(18)47031-7 . PMID 7961680 .
- Kritzik MR, Ziober AF, Dicharry S, Conrad DJ, Sigal E (Juni 1997). „Charakterisierung und Sequenz eines weiteren 15-Lipoxygenase-Transkripts und des menschlichen Gens“. Biochimica et Biophysica Acta (BBA) – Gene Structure and Expression . 1352 (3): 267–281 . doi : 10.1016/s0167-4781(97)00005-5 . PMID 9224951 .
- Brinckmann R, Schnurr K, Heydeck D, Rosenbach T, Kolde G, Kühn H (Januar 1998). „Membrantranslokation von 15-Lipoxygenase in hämatopoetischen Zellen ist calciumabhängig und aktiviert die Oxygenaseaktivität des Enzyms“ . Blood . 91 (1): 64–74 . doi : 10.1182/blood.V91.1.64 . PMID 9414270 .
- Kelavkar U, Wang S, Montero A, Murtagh J, Shah K, Badr K (Juli 1998). „Promotor des humanen 15-Lipoxygenase-Gens: Analyse und Identifizierung von DNA-Bindungsstellen für IL-13-induzierte regulatorische Faktoren in Monozyten“. Molecular Biology Reports . 25 (3): 173–182 . doi : 10.1023/A:1006813009006 . PMID 9700053. S2CID 13147031 .
- Roy B, Cathcart MK (November 1998). „Die Induktion der 15-Lipoxygenase-Expression durch IL-13 erfordert die Tyrosinphosphorylierung von Jak2 und Tyk2 in humanen Monozyten“ . The Journal of Biological Chemistry . 273 (48): 32023–9 . doi : 10.1074/jbc.273.48.32023 . PMID 9822675 .
- Kratky D, Lass A, Abuja PM, Esterbauer H, Kühn H (Januar 1999). „Eine sensitive Chemilumineszenzmethode zur Messung der Lipoxygenase-katalysierten Oxygenierung komplexer Substrate“. Biochimica et Biophysica Acta (BBA) – Molekulare und Zellbiologie der Lipide . 1437 (1): 13–22 . doi : 10.1016/s0005-2760(98)00176-3 . PMID 9931410 .
- Kelavkar UP, Badr KF (April 1999). „Auswirkungen der Expression von mutiertem p53 auf die Aktivität des humanen 15-Lipoxygenase-Promotors und die Expression des murinen 12/15-Lipoxygenase-Gens: Hinweise darauf, dass 15-Lipoxygenase ein Mutatorgen ist“ . Proceedings of the National Academy of Sciences of the United States of America . 96 (8): 4378–83 . Bibcode : 1999PNAS...96.4378K . doi : 10.1073/pnas.96.8.4378 . PMC 16340. PMID 10200270 .
Externe Links
- Lage des menschlichen ALOX15 -Genoms und Detailseite zum ALOX15 -Gen im UCSC Genome Browser .