| Steroid-5α-Reduktase 1 | |||||||
|---|---|---|---|---|---|---|---|
| Kennungen | |||||||
| Symbol | SRD5A1 | ||||||
| NCBI-Gen | 6715 | ||||||
| HGNC | 11284 | ||||||
| OMIM | 184753 | ||||||
| RefSeq | NM_001047 | ||||||
| UniProt | P18405 | ||||||
| Andere Daten | |||||||
| EG-Nummer | 1.3.1.22 | ||||||
| Ort | Chr. 5 S. 15 | ||||||
| |||||||
| Steroid-5α-Reduktase 2 | |||||||
|---|---|---|---|---|---|---|---|
 Humanes SRD5A2 im Komplex mit NADPH und Finasterid PDB : 7BW1 | |||||||
| Kennungen | |||||||
| Symbol | SRD5A2 | ||||||
| NCBI-Gen | 6716 | ||||||
| HGNC | 11285 | ||||||
| OMIM | 607306 | ||||||
| RefSeq | NM_000348 | ||||||
| UniProt | P31213 | ||||||
| Andere Daten | |||||||
| EG-Nummer | 1.3.1.22 | ||||||
| Ort | Chr. 2 S. 23 | ||||||
| |||||||

5α-Reduktasen , auch bekannt als 3-Oxo-5α-Steroid-4-Dehydrogenasen , sind Enzyme des Steroidstoffwechsels. Sie sind an drei Stoffwechselwegen beteiligt : der Gallensäurebiosynthese sowie dem Androgen- und Östrogenstoffwechsel . Es gibt drei Isoenzyme der 5α-Reduktase, die von den Genen SRD5A1 , SRD5A2 und SRD5A3 kodiert werden .
5α-Reduktasen katalysieren die folgende allgemeine chemische Reaktion :
- a 3-oxo-5α-Steroid + Akzeptor ⇌ a 3-oxo-Δ 4 -Steroid + reduzierter Akzeptor
Dabei sind ein 3-Oxo-5α-Steroid und ein Akzeptor Substrate und ein entsprechendes 3-Oxo-Δ4-Steroid sowie der reduzierte Akzeptor Produkte . Ein Beispiel für diese allgemeine Reaktion, die von der 5α-Reduktase Typ 2 katalysiert wird, ist:
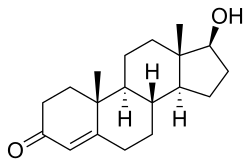

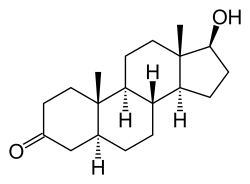
wobei Dihydrotestosteron das 3-Oxo-5α-Steroid, NADP + der Akzeptor und Testosteron das 3-Oxo-Δ4-Steroid und NADPH der reduzierte Akzeptor ist. [ 1 ]
Produktion und Aktivität
Das Enzym wird in vielen Geweben von Männern und Frauen produziert, im Fortpflanzungstrakt, in den Hoden und Eierstöcken [ 2 ] , in der Haut , den Samenbläschen , der Prostata , dem Nebenhoden und vielen Organen [ 3 ] , einschließlich des Nervensystems [ 4 , 5 ] . Es gibt drei Isoenzyme der 5α-Reduktase: Steroid-5α-Reduktase 1, 2 und 3 ( SRD5A1 , SRD5A2 und SRD5A3 ) [ 3 , 6 , 7 , 8 ] .
5α-Reduktasen wirken auf 3-Oxo- (3-Keto-) und Δ <sup>4,5 </sup>-C19/C21-Steroide als Substrate; „3-Keto“ bezieht sich auf die Doppelbindung zwischen dem dritten Kohlenstoffatom und Sauerstoff. Die Kohlenstoffatome 4 und 5 tragen ebenfalls eine Doppelbindung, die mit „Δ<sup> 4,5</sup> “ bezeichnet wird. Die Reaktion beinhaltet die stereospezifische und permanente Spaltung der Δ <sup>4,5</sup> -Doppelbindung mithilfe von NADPH als Cofaktor. Ein Hydrid-Anion (H<sup>−</sup>) wird an der α-Seite des fünften Kohlenstoffatoms und ein Proton an der β-Seite des vierten Kohlenstoffatoms gebunden. [ 9 ]
Verteilung mit dem Alter
5α-R1 wird in der fetalen Kopfhaut und der nichtgenitalen Haut des Rückens exprimiert, allerdings 5- bis 50-mal weniger als beim Erwachsenen. 5α-R2 wird in der fetalen Prostata ähnlich wie beim Erwachsenen exprimiert. 5α-R1 findet sich hauptsächlich im Epithel , 5α-R2 im Stroma der fetalen Prostata. Wissenschaftler untersuchten die Expression von 5α-R2 in fetaler Leber, Nebenniere, Hoden, Eierstock, Gehirn, Kopfhaut, Brustkorb und Genitalhaut mittels Immunoblotting und konnten es lediglich in der Genitalhaut nachweisen. [ 9 ]
Nach der Geburt wird 5α-R1 in mehr Organen exprimiert, darunter Leber, Haut, Kopfhaut und Prostata. 5α-R2 wird in Prostata, Samenbläschen, Nebenhoden, Leber und in geringerem Maße in Kopfhaut und Haut exprimiert. Die Expression von 5α-R1 und 5α-R2 in der Leber erfolgt unmittelbar, verschwindet jedoch in Haut und Kopfhaut ab dem 18. Lebensmonat. Mit Beginn der Pubertät wird dann nur noch 5α-R2 in Haut und Kopfhaut erneut exprimiert.
5α-R1 und 5α-R2 scheinen in der Prostata männlicher Föten und während des gesamten postnatalen Lebens exprimiert zu werden. Sie werden außerdem, wenn auch in unterschiedlichem Ausmaß, in Leber, genitaler und nicht-genitaler Haut, Prostata, Nebenhoden, Samenbläschen, Hoden, Eierstöcken, Uterus, Niere, exokrinem Pankreas und Gehirn exprimiert. [ 4 ] [ 9 ]
5α-R3 wird ubiquitär in den meisten Geweben exprimiert, spielt aber keine erkennbare Rolle bei der Androgenverarbeitung oder -signalübertragung. Stattdessen ist 5α-R3 an der Reduktion von Polyphenolsubstraten und N-Glykosylierungswegen beteiligt . [ 10 ]
Substrate
Zu den spezifischen Substraten gehören Testosteron , Progesteron , Androstendion , [ 11 ] Epitestosteron , Cortisol , Aldosteron und Desoxycorticosteron . Abgesehen von Dihydrotestosteron ist die physiologische Rolle der 5α-reduzierten Steroide weitgehend unbekannt. [ 9 ] Neben der Reduktion von Testosteron zu Dihydrotestosteron reduzieren die 5α-Reduktase-Isoformen I und II Progesteron zu Dihydroprogesteron (DHP) und Desoxycorticosteron zu Dihydrodesoxycorticosteron (DHDOC). In-vitro- und Tiermodelle deuten darauf hin, dass die anschließende 3α-Reduktion von DHT, DHP und DHDOC zu Steroidmetaboliten führt, deren Wirkung auf die Hirnfunktion durch eine Verstärkung der GABAergen Hemmung vermittelt wird. Diese neuroaktiven Steroidderivate verstärken GABA durch allosterische Modulation an GABA(A)-Rezeptoren und wirken antikonvulsiv, antidepressiv und anxiolytisch. Sie beeinflussen zudem das Sexual- und Alkoholverhalten. [ 12 ] 5α-Dihydrocortisol ist im Kammerwasser des Auges vorhanden, wird in der Linse synthetisiert und trägt möglicherweise zur Kammerwasserbildung bei. [ 13 ] Allopregnanolon und THDOC sind Neurosteroide , wobei letzteres die Anfälligkeit von Tieren für Krampfanfälle beeinflusst. Bei sozial isolierten Mäusen ist 5α-R1 spezifisch in glutamatergen Pyramidenzellen herunterreguliert , die aus kortikalen und hippokampalen Regionen zur Amygdala konvergieren. Diese Herunterregulierung könnte das Auftreten von Verhaltensstörungen wie Angstzuständen, Aggression und kognitiven Beeinträchtigungen erklären. [ 4 ] [ 5 ] 5α-Dihydroaldosteron ist ein starkes Antinatriuretikum , das sich jedoch von Aldosteron unterscheidet . Seine Bildung in der Niere wird durch eine Einschränkung der Salzzufuhr gefördert, was darauf hindeutet, dass es möglicherweise zur Natriumretention beiträgt: [ 14 ]

Dies ist der Mechanismus der 5α-Reduktase, die Testosteron in DHT (Dihydrotestosteron) umwandelt. Die 5α-Reduktase nutzt die Reduktionskraft von NADPH, um eine Hydridverschiebung an der Doppelbindung im Ring durchzuführen. Dies führt zur Enolatbildung und anschließenden Tautamerisierung zu DHT. [ 15 ]

5α-DHP ist ein wichtiges Hormon im Blutkreislauf von Frauen mit normalem Menstruationszyklus und von Schwangeren. [ 16 ]
Testosteron
Die 5α-Reduktase ist vor allem dafür bekannt, Testosteron, das männliche Sexualhormon , in das wirksamere Dihydrotestosteron umzuwandeln :
Dadurch wird die Δ 4,5 -Doppelbindung am A-Ring (ganz links) entfernt. [ 1 ]
Liste der Umrechnungen
Folgende Reaktionen sind bekanntermaßen durch 5α-Reduktase katalysiert: [ 11 ]
- Cholestenon → 5α-Cholestanon
- Progesteron → 5α-Dihydroprogesteron
- 3α-Dihydroprogesteron → Allopregnanolon
- 3β-Dihydroprogesteron → Isopregnanolon
- Desoxycorticosteron → 5α-Dihydrodesoxycorticosteron
- Corticosteron → 5α-Dihydrocorticosteron
- Aldosteron → 5α-Dihydroaldosteron
- Androstendion → 5α-Androstandion
- Testosteron → 5α-Dihydrotestosteron
- Nandrolon → 5α-Dihydronandrolon
Struktur


Die 5α-Reduktase ist ein membrangebundenes Enzym, das die NADPH- abhängige Reduktion von Doppelbindungen in Steroidsubstraten katalysiert und dadurch deren Wirksamkeit erhöht. [ 17 ] Die Kristallstruktur eines Homologs der 5α-Reduktase-Isoenzyme 1 und 2 wurde in Proteobakterien (Proteobakterien-5α-Reduktase) gefunden. Dieses liegt als Monomer mit einer Transmembranstruktur aus sieben α-Helices vor, die eine hydrophobe Tasche für den Cofaktor NADPH und Monoolein enthält . Monoolein besetzt die Bindungstasche für das Steroidsubstrat. [ 18 ] In Insektenzellen fehlt Monoolein; stattdessen wird es durch andere Androgene und Inhibitoren ersetzt. [ 19 ] Die Topologie der integralen Sieben-Transmembran-Struktur ist wahrscheinlich speziesübergreifend konserviert, wobei sich der N-Terminus im Lumen des endoplasmatischen Retikulums und der C-Terminus im Zytosol befindet . Eine hohe Konformationsdynamik der cytosolischen Region reguliert wahrscheinlich den NADPH/NADP+-Austausch. [ 19 ] Die Sequenzkonservierung in bekannten Kristallstrukturen bestätigt eine hohe Konservierung der Enzymstruktur. [ 18 ]
In der 5α-Reduktase des Proteobacteria-Bakteriums , PbSRD5A, ist NADPH durch ein ausgedehntes Wasserstoffbrückennetzwerk gebunden, einschließlich der Reste Arg34, das eine Wasserstoffbrücke zur Nicotinamidgruppe bildet, Arg170, das eine Wasserstoffbrücke zum 2'-Phosphat der an Nicotinamid gebundenen Ribosegruppe bildet, Asn192 und His230, die eine Wasserstoffbrücke zur Nicotinamid-Nukleotidphosphatgruppe bilden, Tyr32 und Tyr193, die eine Wasserstoffbrücke zur Adenin-Nukleotidphosphatgruppe bilden, und Asn159, Glu196 und Thr219, die eine Wasserstoffbrücke zur Adeningruppe von NADPH bilden. Die Steroidbindungstasche enthält ein Motiv aus Gln-, Glu- und Tyr-Resten, die eine Triade von Wasserstoffbrücken bilden. Diese koordiniert das C3-Keton der Steroide in unmittelbare Nähe zum Nicotinamid des NADPH, was einen Hydridtransfer und eine Δ⁴-Doppelbindungsreduktion ermöglicht . Diese Reste sind Gln53, Glu54 und Tyr87 in PbSRD5A. [ 18 ]
Hemmung
Der Mechanismus der 5α-Reduktase-Hemmung ist komplex, beinhaltet aber die Bindung von NADPH an das Enzym, gefolgt vom Substrat. 5α-Reduktase- Hemmer werden bei benigner Prostatahyperplasie , Prostatakrebs , androgenetischer Alopezie und in der Hormonersatztherapie für Transfrauen eingesetzt .
Die Hemmung des Enzyms lässt sich in zwei Kategorien einteilen: steroidale, irreversible, und nicht-steroidale. Zu den steroidalen Inhibitoren zählen beispielsweise Finasterid (MK-906), Dutasterid (GG745), 4-MA, Turosterid, MK-386, MK-434 und MK-963. Aufgrund der unerwünschten Nebenwirkungen von Steroiden haben Forscher die Synthese nicht-steroidaler Inhibitoren der 5α-Reduktase vorangetrieben. Die potentesten und selektivsten Inhibitoren der 5α-R1 gehören dieser Klasse an und umfassen Benzochinolone, nicht-steroidale Arylsäuren, Butansäurederivate sowie – besonders bekannt – mehrfach ungesättigte Fettsäuren (insbesondere Linolensäure ), Zink und Grüntee . [ 9 ] Auch Riboflavin wurde als Inhibitor der 5α-Reduktase identifiziert. [ 20 ]
Darüber hinaus wurde behauptet, dass Alfatradiol über diesen Wirkmechanismus (5α-Reduktase) wirkt, ebenso wie die Ganoderinsäuren im Lingzhi-Pilz und in der Sägepalme .
Die Hemmung der 5α-Reduktase führt zu einer verminderten Umwandlung von Testosteron in DHT, was einen Anstieg von Testosteron und Estradiol zur Folge hat . Andere Enzyme kompensieren den fehlenden Umwandlungsvorgang teilweise, insbesondere durch die lokale Expression der reduktiven 17β-Hydroxysteroid-Dehydrogenase , der oxidativen 3α-Hydroxysteroid-Dehydrogenase und der 3β-Hydroxysteroid-Dehydrogenase in der Haut . [ 21 ]
Gynäkomastie , erektile Dysfunktion , kognitive Beeinträchtigungen, Müdigkeit , Hypoglykämie , Leberfunktionsstörungen, Verstopfung und Depressionen sind nur einige der möglichen Nebenwirkungen einer 5α-Reduktase-Hemmung. Es wurden auch Langzeitnebenwirkungen berichtet, die selbst nach Absetzen des Medikaments fortbestanden. [ 22 ]
Finasterid
Finasterid hemmt zwei 5α-Reduktase-Isoenzyme (II und III), während Dutasterid alle drei hemmt. [ 3 ] Finasterid hemmt 5α-R2 stark mit einer mittleren IC<sub> 50 </sub> von 69 nM, ist aber bei 5α-R1 mit einer IC<sub> 50</sub> von 360 nM weniger wirksam. [ 23 ] Finasterid senkt den mittleren Serum-DHT-Spiegel nach 6 Monaten um 71 % [ 24 ] und hemmt in vitro 5α-R3 in transfizierten Zelllinien mit ähnlicher Potenz wie 5α-R2. [ 3 ]
Dutasterid
Dutasterid hemmt die 5α-Reduktase-Isoenzyme Typ 1 und 2 besser als Finasterid und führt nach 24 Wochen zu einer vollständigeren Reduktion von DHT (94,7 % gegenüber 70,8 %). [ 25 ] Es senkt außerdem den intraprostatischen DHT-Spiegel bei Männern mit Prostatakrebs um 97 % bei einer Dosierung von 5 mg/Tag über drei Monate. [ 26 ] Eine zweite Studie mit 3,5 mg/Tag über vier Monate reduzierte den intraprostatischen DHT-Spiegel sogar um 99 %. [ 27 ] Die Suppression von DHT in vivo und der Bericht, dass Dutasterid 5α-R3 in vitro hemmt [ 28 ] , legen nahe, dass Dutasterid ein dreifacher 5α-Reduktase-Inhibitor sein könnte. [ 9 ]

Angeborene Defekte
5α-Reduktase 1
Männliche Mäuse mit inaktivierter 5α-Reduktase Typ 1 weisen eine reduzierte Knochenmasse und eine verminderte Greifkraft der Vorderbeinmuskulatur auf, was vermutlich auf einen Mangel an 5α-Reduktase Typ 1 in Knochen und Muskeln zurückzuführen ist. [ 31 ] Bei männlichen Mäusen mit einem Mangel an 5α-Reduktase Typ 2 wird angenommen, dass das Isoenzym Typ 1 für die Virilisierung in der Pubertät verantwortlich ist. [ 7 ]
5α-Reduktase 2
Eine verminderte Aktivität der 5α-Reduktase 2 kann durch Mutationen im zugrundeliegenden SRD5A2-Gen verursacht werden. Dieser als 5α-Reduktase-2-Mangel bekannte Zustand äußert sich bei Männern in verschiedenen Formen, beispielsweise durch atypische Merkmale der äußeren Geschlechtsorgane. Dies liegt daran, dass die 5α-Reduktase 2 die Umwandlung von Testosteron in das potente Androgen Dihydrotestosteron katalysiert, welches für die korrekte Maskulinisierung der männlichen Geschlechtsorgane notwendig ist. [ 32 ]
5α-Reduktase 3
Wird kleine interferierende RNA (siRNA) verwendet, um die Expression des 5α-R3 -Isozyms in Zelllinien zu unterdrücken , kommt es zu verringertem Zellwachstum und reduzierter Zellviabilität sowie zu einem niedrigeren DHT/T-Verhältnis. [ 33 ] Darüber hinaus konnte gezeigt werden, dass Adenovirusvektoren in der Lage sind, die Konzentrationen von Testosteron, Androstendion und Progesteron in androgenstimulierten Prostatakrebszelllinien zu senken. [ 9 ]
Ein angeborener Mangel an 5α-R3 im Gen SRD5A3 ist mit einer seltenen, autosomal-rezessiven Erkrankung assoziiert, bei der die Patienten mit schwerer geistiger Behinderung sowie Kleinhirn- und Augenfehlbildungen geboren werden. Der vermutete Mangel besteht in der Reduktion der terminalen Polyprenolbindung zu Dolichol, einem wichtigen Schritt der N-Glykosylierung von Proteinen, die wiederum für die korrekte Faltung von Asparaginresten auf neu synthetisierten Proteinen im endoplasmatischen Retikulum wichtig ist . [ 34 ]
Nervensystem
Affektive Störungen
Es wurde gezeigt, dass die Aufzucht in Isolation die Proteinexpression der 5α-Reduktase-Isoenzyme 1 und 2 in kortikalen und subkortikalen Hirnregionen von Rattenmodellen verringert. Die Menge des reduzierten 5α- Metaboliten blieb jedoch unbeeinflusst. Dies bedeutet, dass die Aufzucht in Isolation wahrscheinlich zu Veränderungen in der Expression und Aktivität der 5α-Reduktase im Gehirn führt, was eine Dysregulation der Dopamin-Neurotransmission und somit frühzeitigen chronischen Stress zur Folge hat [ 35 ]. Die Behandlung mit Finasterid , einem 5α-Reduktase-Inhibitor, ahmt die Wirkung von SSRIs nach und verursacht sexuelle Funktionsstörungen [ 36 ] . Studien haben gezeigt, dass die 5α-Reduktase das geschwindigkeitsbestimmende Enzym der Neurosteroidsynthese ist , insbesondere bei der Umwandlung von Progesteron in Allopregnanolon [ 37 ] . Niedrige Allopregnanolon-Spiegel werden mit Depressionen , Angstzuständen und Schizophrenie in Verbindung gebracht . Schlafentzug kann die Expression und Aktivität der 5α-Reduktase im präfrontalen Kortex erhöhen und bei Ratten zu manieähnlichen Symptomen führen . [ 37 ] Es ist umstritten, ob die Anwendung von 5α-Reduktasehemmern bei Patienten mit benigner Prostatahyperplasie mit Suizidgedanken und Depressionen einhergeht . [ 38 ] [ 39 ] Diese Symptome wurden sowohl während der aktiven Anwendung der Hemmer als auch in der unmittelbaren Nachbeobachtung beobachtet. [ 38 ] Es ist jedoch unklar, ob diese Symptome spontan durch die benigne Prostatahyperplasie bedingt sind. [ 39 ]
Funktionsstörung der Hypothalamus-Hypophysen-Nebennierenrinden-Achse
Ein alternativer Mechanismus der Cortisolregulation wird über die 5α-Reduktase reguliert, die eine Reduktion des A-Rings von Cortisol katalysiert und die Verbindung dadurch metabolisiert. [ 40 ] Die 5α-Reduktase Typ 1 und 2 sind die Hauptenzyme, die an der Cortisol-Clearance über die Leber beteiligt sind . [ 41 ] Ein Cortisolüberschuss wird mit der metabolisch bedingten Steatohepatitis (MASLD) in Verbindung gebracht. In-vitro -Studien haben jedoch gezeigt, dass eine Überexpression der 5α-Reduktase Typ 2 die Lipogenese hemmen kann . [ 42 ] Die Schlüsselrolle der 5α-Reduktase beim Cortisolabbau und der Fettspeicherung hat einige der Nebenwirkungen von 5α-Reduktase-Inhibitoren aufgeklärt. In randomisierten Studien an Probanden wurde festgestellt, dass die Hemmung der 5α-Reduktase durch die Anwendung von Dutasterid und Finasterid bei Männern zu einer hepatischen Lipidakkumulation führen kann. [ 43 ] Bei kritischen Erkrankungen kann eine Überstimulation von Cortisol als Teil einer Stressreaktion zu einer verminderten Clearance von Cortisol über die Leber mittels 5α-Reduktase und über die Nieren mittels 11β-Hydroxysteroid-Dehydrogenase Typ 2 führen . [ 41 ] Eine langfristige Erhöhung des Cortisolspiegels kann zum Cushing-Syndrom führen .
Nomenklatur
Dieses Enzym gehört zur Familie der Oxidoreduktasen , genauer gesagt zu jenen, die auf die CH-CH-Gruppe des Donors mit anderen Akzeptoren wirken. Der systematische Name dieser Enzymklasse lautet 3-Oxo-5α-Steroid:Akzeptor-Δ⁴ - Oxidoreduktase . Weitere gebräuchliche Bezeichnungen sind:
- 5α-Reduktase
- 3-Oxosteroid-Δ4 - Dehydrogenase
- 3-Oxo-5α-Steroid-Δ4 - Dehydrogenase
- Steroid Δ 4 -5α-Reduktase
- Δ 4-3 -Ketosteroid-5α-Reduktase
- Δ 4-3 -Oxo-Steroidreduktase
- Δ 4-3 -Ketosteroid-5α-Oxidoreduktase
- Δ 4-3 -Oxosteroid-5α-Reduktase
- 3-Keto-Δ 4 -Steroid-5α-Reduktase
- Testosteron-5α-Reduktase
- 4-Ene-3-Ketosteroid-5α-Oxidoreduktase
- Δ 4 -5α-Dehydrogenase
- 3-Oxo-5α-Steroid:(Akzeptor) Δ 4 -Oxidoreduktase
Siehe auch
- Steroidogenes Enzym
- Akne vulgaris
- Cholestenon-5α-Reduktase
- Hirsutismus
- Symptome der unteren Harnwege
- Polyzystisches Ovarialsyndrom
- Liste der Steroidstoffwechselmodulatoren
Referenzen
- ^ a b Enzym 1.3.1.22 in der KEGG Pathway Database.
- ^ Pinna G, Agis-Balboa RC, Pibiri F, Nelson M, Guidotti A, Costa E (Oktober 2008). „ Neurosteroidbiosynthese reguliert geschlechtsspezifisches Angst- und Aggressionsverhalten bei Mäusen“. Neurochemical Research . 33 (10): 1990–2007 . doi : 10.1007/s11064-008-9718-5 . PMID 18473173. S2CID 19338424 .
- ^ a b c d Yamana K, Labrie F, Luu-The V (August 2010). „Die humane 5α-Reduktase vom Typ 3 wird in peripheren Geweben in höheren Konzentrationen exprimiert als die Typen 1 und 2, und ihre Aktivität wird durch Finasterid und Dutasterid stark gehemmt.“ Hormone Molecular Biology and Clinical Investigation . 2 (3): 293–9 . doi : 10.1515/hmbci.2010.035 . PMID 25961201. S2CID 28841145 .
- Agís -Balboa RC , Pinna G, Zhubi A, Maloku E, Veldic M, Costa E et al. (September 2006). „Charakterisierung von Gehirnneuronen, die Enzyme exprimieren, welche die Neurosteroidbiosynthese vermitteln“ . Proceedings of the National Academy of Sciences of the United States of America . 103 (39): 14602–7 . Bibcode : 2006PNAS..10314602A . doi : 10.1073 / pnas.0606544103 . PMC 1600006. PMID 16984997 .
- Agís -Balboa RC, Pinna G, Pibiri F, Kadriu B, Costa E, Guidotti A (November 2007). „ Down-regulation of neurosteroid biosynthesis in corticolimbic circuits mediates social isolation-induced behavior in mice“ . Proceedings of the National Academy of Sciences of the United States of America . 104 (47): 18736–41 . Bibcode : 2007PNAS..10418736A . doi : 10.1073 / pnas.0709419104 . PMC 2141846. PMID 18003893 .
- ^ Killian J, Pratis K, Clifton RJ, Stanton PG, Robertson DM, O'Donnell L (Mai 2003). „5α-Reduktase-Isoenzyme 1 und 2 im Rattenhoden während der postnatalen Entwicklung“ . Biology of Reproduction . 68 (5): 1711–8 . doi : 10.1095/biolreprod.102.009142 . PMID 12606426 .
- ^ a b Thiele S, Hoppe U, Holterhus PM, Hiort O (Juni 2005). „Isoenzym Typ 1 der 5α-Reduktase wird in normalen menschlichen Genitalhautfibroblasten reichlich transkribiert und könnte eine wichtige Rolle bei der Maskulinisierung von Männern mit 5α-Reduktase-Typ-2-Defizienz spielen“ . European Journal of Endocrinology . 152 (6): 875–880 . doi : 10.1530/eje.1.01927 . PMID 15941927 .
- ^ Godoy A, Kawinski E, Li Y, Oka D, Alexiev B, Azzouni F, et al. (Juli 2011). „5α-Reduktase Typ 3 Expression in benignen und malignen menschlichen Geweben: eine vergleichende Analyse während der Progression von Prostatakrebs“ . The Prostate . 71 (10): 1033–46 . doi : 10.1002/pros.21318 . PMC 4295561. PMID 21557268 .
- Azzouni F , Godoy A, Li Y , Mohler J ( 2012). „ Die 5α-Reduktase-Isoenzymfamilie: Ein Überblick über die Grundlagenbiologie und ihre Rolle bei menschlichen Erkrankungen“ . Advances in Urology . 2012 ; 530121. doi : 10.1155/2012/530121 . PMC 3253436. PMID 22235201 .
- ^ Stiles AR, Russell DW (2010). „SRD5A3: Eine überraschende Rolle bei der Glykosylierung“ . Cell . 142 ( 2): 196–198 . doi : 10.1016/j.cell.2010.07.003 . PMC 3104503. PMID 20655462 .
- ^ a b Paba S, Frau R, Godar SC, Devoto P, Marrosu F, Bortolato M (2011). „Steroid-5α-Reduktase als neues therapeutisches Ziel für Schizophrenie und andere neuropsychiatrische Erkrankungen“. Current Pharmaceutical Design . 17 (2): 151–67 . doi : 10.2174/138161211795049589 (inaktiv am 11. Juli 2025). hdl : 11380/1331413 . PMID 21361868 .
{{cite journal}}: CS1 Wartung: DOI inaktiv ab Juli 2025 ( Link ) - Finn DA, Beadles-Bohling AS, Beckley EH, Ford MM, Gililland KR, Gorin-Meyer RE, et al. (2006). „Ein neuer Blick auf den 5α-Reduktase-Inhibitor Finasterid“ . CNS Drug Reviews . 12 (1): 53–76 . doi : 10.1111 / j.1527-3458.2006.00053.x . PMC 6741762. PMID 16834758 .
- ^ Weinstein BI, Kandalaft N, Ritch R, Camras CB, Morris DJ, Latif SA, et al. (Juni 1991). „5 alpha-Dihydrocortisol im menschlichen Kammerwasser und Metabolismus von Cortisol durch menschliche Linsen in vitro“. Investigative Ophthalmology & Visual Science . 32 (7): 2130–5 . PMID 2055703 .
- ^ Kenyon CJ, Brem AS, McDermott MJ, Deconti GA, Latif SA, Morris DJ (Mai 1983). „Antinatriuretische und kaliuretische Wirkungen der reduzierten Aldosteronderivate“. Endocrinology . 112 (5): 1852–6 . doi : 10.1210/endo-112-5-1852 . PMID 6403339 .
- ^ Ahmed S, Denison S (September 1998). „Mechanismusbasierte Darstellung des aktiven Zentrums der 5α-Reduktase (5AR)“. Bioorganic & Medicinal Chemistry Letters . 8 (18): 2615–70 . doi : 10.1016/S0960-894X(98)00463-6 . PMID 9873591 .
- ^ Milewich L, Gomez-Sanchez C, Crowley G, Porter JC, Madden JD, MacDonald PC (Oktober 1977). „Progesteron und 5α-Pregnan-3,20-dion im peripheren Blut gesunder junger Frauen: Tägliche Messungen während des gesamten Menstruationszyklus“ . The Journal of Clinical Endocrinology and Metabolism . 45 (4): 617–22 . doi : 10.1210/jcem-45-4-617 . PMID 914969 .
- ^ Wilson JD (8. Februar 2002). „Die Rolle der 5α-Reduktion in der Steroidhormonphysiologie“ . Reproduction , Fertility, and Development . 13 ( 7–8 ): 673–8 . doi : 10.1071/rd01074 . PMID 11999320. Archiviert vom Original am 26. Mai 2021. Abgerufen am 6. März 2021 .
- Han Y, Zhuang Q, Sun B, Lv W, Wang S, Xiao Q et al. (Januar 2021). „Kristallstruktur der Steroidreduktase SRD5A enthüllt konservierten Steroidreduktionsmechanismus“ . Nature Communications . 12 ( 1 ) 449. Bibcode : 2021NatCo..12..449H . doi : 10.1038 / s41467-020-20675-2 . PMC 7815742. PMID 33469028 .
- ^ a b Xiao Q, Wang L, Supekar S, Shen T, Liu H, Ye F, et al. (Oktober 2020). „Struktur der humanen Steroid-5α-Reduktase 2 nach Behandlung mit dem Antiandrogen Finasterid“ . Nature Communications . 11 (1) 5430. Bibcode : 2020NatCo..11.5430X . doi : 10.1038/s41467-020-19249-z . PMC 7591894. PMID 33110062 .
- ^ Nakayama O, Yagi M, Kiyoto S, Okuhara M, Kohsaka M (Dezember 1990). „Riboflavin, ein Testosteron-5-Alpha-Reduktase-Hemmer“ . Das Journal of Antibiotika . 43 (12): 1615– 6. doi : 10.7164/antibiotics.43.1615 . PMID 2276981 .
- ^ Andersson S (2001). „Steroidogene Enzyme in der Haut“. European Journal of Dermatology . 11 (4): 293–5 . PMID 11399532 .
- ^ Irwig MS, Kolukula S (Juni 2011). „Anhaltende sexuelle Nebenwirkungen von Finasterid bei androgenetischer Alopezie“. The Journal of Sexual Medicine . 8 (6): 1747–53 . doi : 10.1111/j.1743-6109.2011.02255.x . PMID 21418145 .
- ^ Tian G, Stuart JD, Moss ML, Domanico PL, Bramson HN, Patel IR, et al. (März 1994). „17 β-(N-tert-Butylcarbamoyl)-4-aza-5 α-androstan-1-en-3-on ist ein am aktiven Zentrum gerichteter, langsam zeitabhängiger Inhibitor der humanen Steroid-5 α-Reduktase 1“. Biochemistry . 33 (8): 2291–6 . doi : 10.1021/bi00174a041 . PMID 8117686 .
- ^ McConnell JD, Wilson JD, George FW, Geller J, Pappas F, Stoner E (März 1992). „Finasterid, ein Inhibitor der 5α-Reduktase, unterdrückt das prostatische Dihydrotestosteron bei Männern mit benigner Prostatahyperplasie“. The Journal of Clinical Endocrinology and Metabolism . 74 (3): 505–8 . doi : 10.1210/jcem.74.3.1371291 . PMID 1371291 .
- Clark RV, Hermann DJ, Cunningham GR, Wilson TH, Morrill BB, Hobbs S (Mai 2004). „Deutliche Suppression von Dihydrotestosteron bei Männern mit benigner Prostatahyperplasie durch Dutasterid, einen dualen 5α-Reduktase-Inhibitor“ . The Journal of Clinical Endocrinology and Metabolism . 89 (5): 2179–84 . doi : 10.1210/jc.2003-030330 . PMID 15126539 .
- ^ Andriole GL, Humphrey P, Ray P, Gleave ME, Trachtenberg J, Thomas LN, et al. (September 2004). „Wirkung des dualen 5α-Reduktase-Inhibitors Dutasterid auf Marker der Tumorregression bei Prostatakrebs“. The Journal of Urology . 172 (3): 915–919 . doi : 10.1097/01.ju.0000136430.37245.b9 . PMID 15310997 .
- ^ Gleave M, Qian J, Andreou C, Pommerville P, Chin J, Casey R, et al. (November 2006). „Die Wirkung des dualen 5α-Reduktase-Inhibitors Dutasterid auf lokalisierten Prostatakrebs – Ergebnisse einer 4-monatigen Studie vor radikaler Prostatektomie“ . The Prostate . 66 (15): 1674–85 . doi : 10.1002/pros.20499 . PMID 16927304. S2CID 40446842 .
- ^ Moss GP (Dezember 1989). „Gemeinsame Kommission der IUPAC und IUB für die biochemische Nomenklatur (JCBN). Die Nomenklatur der Steroide. Empfehlungen 1989“. European Journal of Biochemistry . 186 (3): 429–58 . doi : 10.1111/j.1432-1033.1989.tb15228.x . PMID 2606099 .
- ^ Drury JE, Di Costanzo L, Penning TM, Christianson DW (Juli 2009). „Hemmung der humanen Steroid-5β - Reduktase (AKR1D1) durch Finasterid und Struktur des Enzym-Inhibitor-Komplexes“ . The Journal of Biological Chemistry . 284 (30): 19786–90 . doi : 10.1074/jbc.c109.016931 . PMC 2740403. PMID 19515843 .
- ^ Hulin-Curtis SL, Petit D, Figg WD, Hsing AW, Reichardt JK (Dezember 2010). „Finasterid - Metabolismus und Pharmakogenetik: Neue Ansätze zur personalisierten Prävention von Prostatakrebs“ . Future Oncology . 6 (12): 1897–913 . doi : 10.2217/fon.10.149 . PMC 6300128. PMID 21142863 .
- ^ Windahl SH, Andersson N, Börjesson AE, Swanson C, Svensson J, Movérare-Skrtic S, et al. (2011). Vanacker JM (Hrsg.). „Reduzierte Knochenmasse und Muskelkraft bei männlichen Mäusen mit inaktivierter 5α-Reduktase Typ 1“ . PLOS ONE . 6 (6) : e21402. Bibcode : 2011PLoSO...621402W . doi : 10.1371/journal.pone.0021402 . PMC 3120862. PMID 21731732 .
- ^ Sinnecker GH, Hiort O, Dibbelt L, Albers N, Dörr HG, Hauß H, et al. (3. Mai 1996). „Phänotypische Klassifizierung des männlichen Pseudohermaphroditismus aufgrund eines Steroid-5α-Reduktase-2-Mangels“. American Journal of Medical Genetics . 63 (1): 223–230 . doi : 10.1002/(SICI)1096-8628(19960503)63:1<223::AID-AJMG39>3.0.CO;2-O . PMID 8723114 .
- ^ Uemura M, Tamura K, Chung S, Honma S, Okuyama A, Nakamura Y, et al. (Januar 2008). „ Neuartige 5-alpha-Steroidreduktase (SRD5A3, Typ 3) ist in hormonrefraktärem Prostatakrebs überexprimiert“ . Cancer Science . 99 (1): 81–6 . doi : 10.1111 / j.1349-7006.2007.00656.x . PMC 11158902. PMID 17986282. S2CID 51733620 .
- ^ Cantagrel V, Lefeber DJ, Ng BG, Guan Z, Silhavy JL, Bielas SL, et al. (Juli 2010). „SRD5A3 ist für die Umwandlung von Polyprenol in Dolichol erforderlich und ist bei einer angeborenen Glykosylierungsstörung mutiert . “ Cell . 142 (2): 203–17 . doi : 10.1016/j.cell.2010.06.001 . PMC 2940322. PMID 20637498 .
- ^ Bortolato M, Devoto P, Roncada P, Frau R, Flore G, Saba P, et al. (Juni 2011). „Isolation rearing-induced reduction of brain 5α-reductase expression: relevance to dopaminergic impairments“. Neuropharmacology . 60 ( 7–8 ) : 1301–8 . doi : 10.1016/j.neuropharm.2011.01.013 . hdl : 11380/1331418 . PMID 21256141. S2CID 20164197 .
- ^ Giatti S, Diviccaro S, Panzica G, Melcangi RC (August 2018). „Post-Finasterid-Syndrom und sexuelle Funktionsstörung nach SSRI- Einnahme : Zwei Seiten derselben Medaille?“. Endocrine . 61 (2): 180–193 . doi : 10.1007/s12020-018-1593-5 . PMID 29675596. S2CID 4974636 .
- Frau R, Bini V, Soggiu A, Scheggi S, Pardu A, Fanni S, et al. (Oktober 2017). „Das neurosteroidogene Enzym 5α-Reduktase vermittelt psychoseähnliche Komplikationen von Schlafentzug“ . Neuropsychopharmacology . 42 ( 11): 2196–2205 . doi : 10.1038 / npp.2017.13 . PMC 5603808. PMID 28102229 .
- ^ a b Welk B, McArthur E, Ordon M, Anderson KK, Hayward J, Dixon S (Mai 2017). „Zusammenhang zwischen Suizidalität und Depression bei der Einnahme von 5α-Reduktase-Inhibitoren“ . JAMA Internal Medicine . 177 (5): 683–691 . doi : 10.1001/jamainternmed.2017.0089 . PMC 5818776. PMID 28319231 .
- Dyson TE , Cantrell MA, Lund BC (Oktober 2020). „Kein Zusammenhang zwischen 5α-Reduktase-Inhibitoren und Depression“. The Journal of Urology . 204 (4): 793–798 . doi : 10.1097 / JU.0000000000001079 . PMID 32294395. S2CID 215794669 .
- ^ Petrescu AD, Kain J, Liere V, Heavener T, DeMorrow S (2018). „Hypothalamus-Hypophysen-Nebennierenrinden-Dysfunktion bei cholestatischer Lebererkrankung“ . Frontiers in Endocrinology . 9: 660. doi : 10.3389 /fendo.2018.00660 . PMC 6240761. PMID 30483216 .
- Boonen E, Vervenne H, Meersseman P, Andrew R, Mortier L, Declercq PE, et al. (April 2013). „ Reduzierter Cortisolstoffwechsel bei kritischer Erkrankung“ . The New England Journal of Medicine . 368 (16): 1477–88 . doi : 10.1056 / NEJMoa1214969 . PMC 4413428. PMID 23506003 .
- ^ Nasiri M, Nikolaou N, Parajes S, Krone NP, Valsamakis G, Mastorakos G, et al. (August 2015). „ 5α-Reduktase Typ 2 reguliert die Glukokortikoidwirkung und den metabolischen Phänotyp in humanen Hepatozyten“ . Endocrinology . 156 (8): 2863–71 . doi : 10.1210/en.2015-1149 . PMC 4511138. PMID 25974403 .
- ^ Hazlehurst JM, Oprescu AI, Nikolaou N, Di Guida R, Grinbergs AE, Davies NP, et al. (Januar 2016). „Die Hemmung der dualen 5α-Reduktase fördert die hepatische Lipidakkumulation beim Menschen“ . The Journal of Clinical Endocrinology and Metabolism . 101 (1): 103–113 . doi : 10.1210/jc.2015-2928 . PMC 4701851. PMID 26574953 .
Weiterführende Literatur
- Levy HR, Talalay P (August 1959). „Bakterielle Oxidation von Steroiden. II. Untersuchungen zum enzymatischen Mechanismus der Dehydrierung des A-Rings“ . The Journal of Biological Chemistry . 234 (8): 2014–21 . doi : 10.1016/S0021-9258(18)69859-X . PMID 13673006 .
Externe Links
- Testosteron + 5-alpha-Reduktase in den Medical Subject Headings (MeSH) der US National Library of Medicine