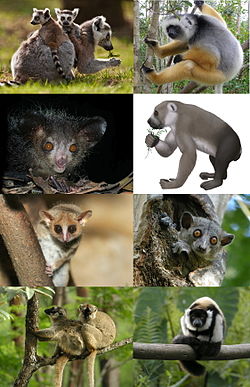
Archaeoindris fontoynontii ist ein ausgestorbener Riesenmaki und der größtebekannte Primat Madagaskars , vergleichbar mit einem männlichenGorilla . Er gehörte zur Familie der Faultiermakis (Palaeopropithecidae) und wurde aufgrund seiner enormen Größe mit den einst in Nord- und Südamerika beheimateten Bodenfaultieren verglichen . Am engsten verwandt war er mit Palaeopropithecus , der zweitgrößten Faultiermaki-Art. Zusammen mit anderen Faultiermakis war Archaeoindris mit den heute lebenden Indris , Sifakas und Wollmakis sowie den kürzlich ausgestorbenen Affenmakis ( Archaeolemuridae ) verwandt. Der Gattungsname Archaeoindrisbedeutet übersetzt „urzeitlicher indriähnlicher Lemur“.
Archaeoindris wurde 1909 von Herbert F. Standing anhand von subfossilen Kieferfragmenten erstmals beschrieben , obwohl Charles Lamberton später einen vollständigen Schädel entdeckte. Bislang wurden nur sechs Knochen des Unterskeletts gefunden, und Ausgrabungen in den 1980er Jahren brachten keine neuen Funde. Die Überreste wurden nur an einem einzigen Ort entdeckt: Ampasambazimba , einer subfossilen Fundstätte in Zentralmadagaskar. Nach der ersten Entdeckung wurden einige subfossile Überreste von Megaladapis grandidieri (einer ausgestorbenen Koala-Lemurenart ) fälschlicherweise Archaeoindris zugeordnet , während kleinere Beinknochen eines Jungtiers und ein massiver Beinknochen eines ausgewachsenen Tieres irrtümlicherweise zwei verschiedenen Arten zugeordnet wurden. Diese Fehler wurden zwischen den 1930er und 1980er Jahren schrittweise korrigiert.
Das Skelett von Archaeoindris war massiv und robust und wies viele Ähnlichkeiten mit dem von Palaeopropithecus auf . Die Arme waren länger als die Beine, jedoch wurden keine Hand- oder Fußknochen zum Vergleich mit anderen Faultierlemuren gefunden. Größenschätzungen, die auf den wenigen erhaltenen Überresten basieren, variieren stark und reichen bis zu 244 Kilogramm (538 Pfund). Die umfassendste statistische Untersuchung mittels Regressionsanalysen prognostiziert jedoch eine Masse von 160 kg (350 Pfund).
Fehlzuordnungen und die begrenzte Anzahl erhaltener Überreste haben zu unterschiedlichen Ansichten über die Fortbewegungsart von Archaeoindris geführt , die von einem Leben auf Bäumen bis hin zu einer bodenlebenden Art reichen. Sein Skelett deutet darauf hin, dass es sich um einen bewussten Kletterer handelte, der sich gelegentlich auch am Boden fortbewegte.
Die Nahrung des Archaeoindris bestand hauptsächlich aus Blättern, und sein Lebensraum – vor der Ankunft des Menschen – war eine Mischung aus Wäldern , Buschland und Savanne mit einer reichen Lemurenvielfalt. Heute wird die Region von Grasland dominiert , und die Lemurenvielfalt im nächstgelegenen Schutzgebiet , dem Ambohitantely-Sonderreservat , ist sehr gering . Obwohl es sich um einen seltenen Lemur handelte, existierte er noch, als die ersten Menschen Madagaskar besiedelten , und war daher durch Jagd und Lebensraumverlust gefährdet .
Etymologie
Der Gattungsname Archaeoindris , der „alter indri-ähnlicher Lemur“ bedeutet, leitet sich vom griechischen Wort ἀρχαῖος ( archaios oder „alt“) und indris ab , einer gebräuchlichen Variante des Gattungsnamens Indri . [ 3 ] Der Artname, Fontoynontii (manchmal auch Fontoynonti geschrieben ), wurde zu Ehren von Antoine Maurice Fontoynont, dem damaligen Präsidenten der Académie Malgache ( magassische Akademie ), gewählt. Fontoynont soll die Ausgrabungen überwacht haben, als sie entdeckt wurden. [ 4 ]
Evolutionsgeschichte
Archaeoindris war eine Art Faultiermaki (Familie Palaeopropithecidae), eine kürzlich ausgestorbene Familie von Riesenmakis (bekannt als subfossile Lemuren ), die in Madagaskar beheimatet war . Seine Vorfahren waren wahrscheinlich Baumbewohner , und dieser Riesenfaultiermaki wurde mit den ausgestorbenen Riesenfaultieren Nord- und Südamerikas verglichen. [ 5 ]
| Phylogenie von Archaeoindris und seinen nächsten Lemurenverwandten [ 6 ] [ 7 ] | |||||||||||||||||||||||||||||||||||||||
|
Archaeoindris war am engsten mit Palaeopropithecus verwandt [ 1 ] , einer Gattung, die den zweitgrößten Faultierlemuren umfasste und sich auf ein hängendes Leben in seinem baumbewohnenden Lebensraum spezialisiert hatte [ 8 ] . Merkmale des Postcraniums (des Skeletts unterhalb des Schädels) deuten darauf hin, dass Babakotia der nächstverwandte Faultierlemuren zu Archaeoindris und Palaeopropithecus war , gefolgt von Mesopropithecus [ 1 ] , dem kleinsten Faultierlemuren [ 9 ] .
Alle vier Gattungen der Faultierlemuren sind als Schwestertaxon (nahe Verwandte) der Familie Indriidae bekannt , zu der auch der Indri ( Indri ), der Sifaka ( Propithecus ) und der Wollmaki ( Avahi ) gehören. Diese Verwandtschaft wird durch morphologische , entwicklungsbiologische und molekularbiologische Daten gestützt . Ein weiteres Mitglied dieser Gruppe ist die Familie der Affenmakis (Archaeolemuridae). Merkmale der Zähne, wie die Morphologie ihrer Backenzähne und die veränderte Anzahl der Zähne in ihrem Zahnkamm (einer speziellen Putzstruktur bei Lemuren), deuten schon lange auf eine Verwandtschaft hin.
Andere anatomische und entwicklungsgeschichtliche Merkmale legten jedoch nahe, dass Affenmakis enger mit der Familie der Lemuren ( Lemuridae) verwandt sein könnten , zu der fünf Lemurengattungen gehören, darunter der Katta ( Lemur catta ). Molekularanalysen lieferten starke Belege für diese Annahme und ordneten die Affenmakis einer Klade mit den Faultiermakis und Indriiden zu. [ 1 ]
Taxonomische Klassifizierung
Die Familie Palaeopropithecidae umfasst im Vergleich zu den meisten anderen subfossilen Lemurenfamilien eine große Artenzahl. Sie beinhaltet vier bekannte Gattungen und sieben Arten, die alle ausgestorben sind. [ 10 ] Darunter befand sich die Gattung Archaeoindris , eines der wenigen monotypischen Lemurentaxa . [ 11 ]
Archaeoindris fontoynontii wurde 1909 von Herbert F. Standing anhand zweier Fragmente eines Oberkiefers und eines vollständigen Unterkiefers erstmals beschrieben . [ 12 ] [ 13 ] Diese Typusexemplare – AM-6239 (Oberkiefer) und AM-6237 (Unterkiefer) – befinden sich in der Sammlung der Universität Antananarivo . [ 14 ] Der Unterkiefer enthält ein vollständiges Gebiss des Oberkiefers, das linke Oberkieferfragment den letzten Prämolaren (P4) und alle drei Molaren (M1–M3), und das rechte Oberkieferfragment die beiden Prämolaren (P2 und P4) sowie den ersten Molaren (M1). [ 13 ]
Standing bemerkte damals Ähnlichkeiten mit dem Gebiss von Palaeopropithecus . Sechzehn Jahre nach Standings Entdeckung entdeckte Charles Lamberton den ersten und einzigen vollständigen Schädel und den dazugehörigen Unterkiefer von Archaeoindris , die beide gut erhalten waren. Er veröffentlichte diesen Fund 1934. [ 13 ]
Bislang wurden nur sechs postkraniale Skelettfunde von Archaeoindris gemacht. Zwei davon stammen von einem ausgewachsenen Tier und umfassen einen beschädigten Oberarmknochen (Humerus) und einen nahezu vollständigen Oberschenkelknochen (Femur). Die anderen vier stammen von einem Jungtier und umfassen einen beschädigten Oberarmknochen, eine beschädigte Elle (Ulna) und zwei Oberschenkelknochen, denen an beiden Enden die Epiphysen (Knochenfortsätze) fehlen.
Archaeoindris gehört zu den seltensten subfossilen Lemuren, und die wenigen bekannten Exemplare wurden alle in Ampasambazimba im zentralen Hochland gefunden . [ 12 ] Ausgrabungen, die von einem multidisziplinären madagassisch-amerikanischen Team an dieser Fossilienfundstätte zwischen 1983 und 1984 durchgeführt wurden, erbrachten keine neuen subfossilen Überreste , und es sind keine weiteren potenziellen Fundorte dieser Art bekannt. [ 15 ]
Historisch gesehen wurden einige Überreste anderer subfossiler Lemuren fälschlicherweise Archaeoindris zugeordnet , was zu falschen Interpretationen seiner Anatomie und seines Verhaltens führte. [ 12 ] 1934 übersah Lamberton frühere Zuordnungsfehler [ 16 ] und ordnete fälschlicherweise ein Schienbein und zwei Wadenbeine (Unterschenkelknochen) einer Koala-Lemurenart ( Megaladapis grandidieri ) Archaeoindris zu . Aufgrund dieser Fehlzuordnungen und Lambertons Verwendung unreifer Knochen war seine Rekonstruktion ungenau. [ 12 ] [ 17 ]
1936 korrigierte Alice Carleton Lamberton, indem sie Schienbein und Wadenbein als zu einem Koala gehörig identifizierte. Carletons Korrekturen wurden später bestätigt, und weitere Fehlzuordnungen wurden in den 1960er und 1970er Jahren von Alan Walker und William L. Jungers korrigiert . [ 12 ] [ 18 ]
Im Jahr 1910, 24 Jahre vor Lambertons Monographie über Archaeoindris , identifizierte Standing einen massiven rechten Oberschenkelknochen aus Ampasambazimba als neue Art, Lemuridotherium madagascariense . Obwohl Standing die starken Ähnlichkeiten zwischen Lemuridotherium und Archaeoindris erkannte , ordnete er sie aufgrund des seiner Ansicht nach großen Größenunterschieds verschiedenen Gattungen zu. [ 18 ] Auch Lamberton ließ sich von diesem Größenunterschied leiten, zum Teil, weil er die kleineren Schien- und Wadenbeine nicht als zu der kleineren Art Megaladapis grandidieri gehörig erkannte . Darüber hinaus bemerkte Lamberton nicht, dass die kleineren Oberschenkelknochen, die er Archaeoindris zuordnete , von einem Jungtier stammten. [ 19 ]
Obwohl einige spätere Autoren Lemuridotherium als Synonym von Archaeoindris betrachteten , hatte bis Martine Vuillaume-Randriamanantena im Jahr 1988 keinen endgültigen Beweis erbracht. [ 18 ] Vuillaume-Randriamanantena stellte außerdem Verbindungen zwischen dem Postkranium und dem Schädel von Archaeoindris her , [ 16 ] fasste den aktuellen Kenntnisstand über das postkraniale Skelett zusammen und dokumentierte die starke Ähnlichkeit mit der Gattung Palaeopropithecus . [ 12 ]
Anatomie und Physiologie
Obwohl Archaeoindris Ähnlichkeiten mit Palaeopropithecus aufwies , war er deutlich größer und kräftiger gebaut. [ 5 ] [ 14 ] Archaeoindris zählte zu den größten Primaten, die jemals existierten, [ 10 ] und war der größte bekannte Feuchtnasenprimat [ 13 ] mit einem geschätzten Gewicht von 160 kg. [ 2 ] Er hatte etwa die Größe eines ausgewachsenen männlichen Gorillas, [ 12 ] was erstmals von Lamberton festgestellt wurde. [ 20 ]

Seit seiner Entdeckung variieren die Größenschätzungen von „größer als ein Mensch“ bis hin zu „möglicherweise der größte jemals entdeckte Primat“. In einer Studie von Jungers aus dem Jahr 1990 wurde anhand der Fläche der Backenzähne eine Masse von 230,5 kg (508 lb) und anhand des Femurkopfdurchmessers eine Masse von 244,1 kg (538 lb) geschätzt. [ 20 ] 1995 schätzte Laurie Godfrey die Masse anhand des Schaftumfangs von Oberarm- und Oberschenkelknochen auf 197,5 kg (435 lb). [ 21 ] Mithilfe multipler Regressionen der kortikalen Fläche des Oberschenkelknochens ermittelten Jungers und Kollegen im Jahr 2008 [ 22 ] die aktuell beste Schätzung von 161,2 kg (355 lb) mit einer möglichen Spanne von 150–187,8 kg (331–414 lb). [ 23 ] Diese Schätzungen galten als genauer, da die härtere Kortikalis im mittleren Femurschaft das Gewicht des Tieres trug und ihre Dicke besser mit der Körpermasse des Tieres korrelierte als der Schaftdurchmesser (der sowohl die harte Kortikalis als auch die Spongiosa umfasst ). [ 21 ] Der einzige fossile Primat , der wahrscheinlich größer als Archaeoindris war , war Gigantopithecus blacki , ein naher Verwandter der Orang-Utans . [ 24 ]
Wie alle drei Arten von Palaeopropithecus wies auch Archaeoindris abgeleitete Merkmale auf , die bei den beiden anderen, weniger spezialisierten Gattungen der Faultierlemuren nicht zu finden waren. [ 7 ] Zu diesen Merkmalen gehörten abgeflachte Paukenblasen und paarige Knochenvorsprünge um die Nasenöffnung, die aus Teilen des Zwischenkiefers und den Nasenbeinen bestanden . [ 14 ] [ 25 ] [ 26 ] Sein Schädel war breiter als der von Megaladapis , aber mit 269 mm (10,6 Zoll) kürzer. [ 2 ] Sein Gesicht war kürzer als das von Palaeopropithecus [ 5 ] , und seine Augen waren weiter nach vorn gerichtet. Der Neurocranium ( Hirnschädel) war klein [ 2 ] und im Vergleich zum Gesicht erhöht, anders als bei Palaeopropithecus . [ 27 ] Die postorbitale Einschnürung (Verengung des Schädels hinter den Augenhöhlen) war deutlich ausgeprägt. [ 2 ] Der Schädel wies zudem einen niedrigen, breiten Sagittalkamm (einen Knochenkamm auf dem Schädel, an dem die Kiefermuskulatur ansetzt) und robuste, aber kleinere Nackenkämme (Knochenkämme am Hinterkopf, an denen die Nackenmuskulatur ansetzt) auf. [ 2 ] [ 5 ] [ 27 ]
Die Ränder der Augenhöhlen waren nicht so dick wie die von Palaeopropithecus . [ 25 ] Die Fläche der Augenhöhle betrug 946 mm² ( 1,466 Quadratzoll) und war damit vergleichbar mit der von Gorillas. Das Verhältnis der Augenhöhlenfläche zur Größe des Sehnervenkanals deutet darauf hin, dass Archaeoindris eine geringe Summation der Netzhaut aufwies . Das bedeutet, seine Augen waren ähnlich lichtempfindlich wie die heutiger tagaktiver Lemuren, jedoch war dieses Verhältnis nicht so gering wie bei vergleichbar großen Affen. Dies lässt vermuten, dass Archaeoindris eine geringere Sehschärfe als Affen besaß und kein trichromatisches Farbsehen hatte . [ 28 ]

Der Kiefer wies eine lange, kräftige Mandibularsymphyse (Verbindung der beiden Unterkieferhälften) auf, die sich früh in der Entwicklung verknöcherte. [ 25 ] [ 29 ] Sein Gaumen (Knochen am Dach des Mundes) war rechteckig. [ 14 ] Wie andere Faultierlemuren durchlief er wahrscheinlich eine beschleunigte Zahnentwicklung [ 29 ] und hatte im Erwachsenenalter die folgende Zahnformel :2.1.2.32.0.2.3[ 26 ] Seine Zähne ähnelten denen von Palaeopropithecus sowohl in Morphologie als auch in Proportionen. [ 2 ] Die vier unteren Schneidezähne , die den Zahnkamm bildeten, waren modifiziert: Sie waren kürzer und robuster, möglicherweise um die Nahrungsaufnahme zu erleichtern. [ 30 ] Die Eckzähne waren kurz und kräftig, aber spitz. [ 31 ] Außerdem bestand ein Diastema (Zahnlücke) zwischen den unteren Prämolaren (P2 und P4). Weitere zahnärztliche Ähnlichkeiten mit Palaeopropithecus umfassten kleine dritte obere und untere Molaren (M3 und M3), schmale und lange erste und zweite Molaren sowie einen gekerbten (flachen und abgerundeten) Zahnschmelz der Backenzähne, der jedoch nicht so stark gewellt und etwas höher gekrönt war . [ 2 ]
Die meisten Knochen des postkranialen Skeletts, darunter die Knochen der Hände, Füße, Wirbelsäule, Rippen, Speiche (Unterarmknochen), Schienbein und Wadenbein, wurden bei Archaeoindris nicht gefunden . [ 32 ] Wie viele Schädelmerkmale ähneln auch die gefundenen postkranialen Knochen denen von Palaeopropithecus , sind jedoch deutlich größer und robuster. Der Femurkopf war groß und wies keine Fovea capitis femoris (eine kleine Vertiefung im Femurkopf) auf. [ 2 ] Der Femur war kurz und extrem robust, [ 14 ] hatte einen sehr hohen Collodiaphysenwinkel (den Winkel zwischen Schenkelhals und -schaft) und einen kleinen Trochanter major . [ 2 ]
Beim adulten Exemplar war der Oberarmknochen deutlich länger als der Oberschenkelknochen, während beim Jungtier sowohl Oberarmknochen als auch Elle wesentlich länger als der Oberschenkelknochen waren [ 33 ] . Dadurch waren die Arme erheblich länger als die Beine, wie auch bei Palaeopropithecus zu beobachten . Das Verhältnis von Arm- zu Beinlänge war bei Archaeoindris jedoch geringer , sodass sein Intermembralindex zwar über 100 lag, aber niedriger war als der von Palaeopropithecus . [ 2 ] [ 34 ]
Verhalten

Archaeoindris ernährte sich vermutlich von Blättern ( folivorisch ) [ 5 ] , eine Annahme, die durch Abnutzungsspuren an seinen Zähnen gestützt wird. [ 35 ] Die verwachsenen Unterkiefersymphysen und die Wahrscheinlichkeit einer beschleunigten Zahnentwicklung deuten darauf hin, dass er begann, faserreiche Nahrung im Maul durch gründliches Kauen zu verarbeiten. [ 29 ] Zu seiner Nahrung gehörten möglicherweise auch Früchte und Samen. [ 36 ] Wie die meisten anderen Riesenlemuren war Archaeoindris vermutlich tagaktiv , da seine Augenhöhlen relativ klein waren und mit denen von Gorillas vergleichbar sind. [ 37 ]
Sowohl Standing als auch Lamberton gingen davon aus, dass Archaeoindris ein langsam kriechender Baumbewohner wie Megaladapis war , vor allem aufgrund falsch zugeordneter Knochen. Lamberton spekulierte zudem, dass es einem Riesenfaultier geähnelt haben könnte – eine Ansicht, die Jungers 1980 bestätigte, nachdem mehrere Fehlzuordnungen korrigiert worden waren und man seine gorillaähnliche Größe berücksichtigt hatte. Jungers schlug darüber hinaus vor, dass es die meiste Zeit am Boden verbracht hätte ( terrestrisch ).
Die funktionelle Morphologie seines Hüftgelenks deutet auf eine Beweglichkeit hin, die typisch für baumbewohnende Tiere ist. [ 33 ] Andere Merkmale, die er mit Palaeopropithecus teilt , insbesondere am Oberschenkelknochen, legen nahe, dass Archaeoindris viel Zeit in den Bäumen verbrachte, um Nahrung zu suchen und möglicherweise zu nisten. [ 25 ] [ 38 ] Er dürfte aber auch den Boden aufgesucht haben, um zu fressen und sich fortzubewegen. Er wird als bedächtiger, kletternder Pflanzenfresser beschrieben , und ob er wie Palaeopropithecus hängende Nahrung suchte, ist unbekannt, da Hand- und Fußknochen fehlen. Angesichts seiner massigen Statur wäre dies unerwartet. [ 33 ]
Verbreitung und Lebensraum
Archaeoindris is known from only one subfossil site, Ampasambazimba, in central Madagascar, and all remains date to the Late Quaternary.[39] The area today is dominated by grasslands, particularly of the grass genus Aristida.[40] Prior to human arrival, the area around Ampasambazimba was not completely forested, but more of an open habitat, consisting of a mix of woodlands, bushlands, and savanna.[41] Animal remains at this subfossil site have yielded about 20 species of lemurs living in sympatry (sharing the same geographic area). In comparison, the nearby Ambohitantely Special Reserve today contains only four species, roughly 20% of the area's original lemur diversity.[42]
Extinction
Despite being the most species-rich family among the giant lemurs, all four genera of sloth lemur, including Archaeoindris, have gone extinct.[35]Radiocarbon dating of the stratigraphic level of some of the Archaeoindris remains were dated to 8000 BP,[5] while two other specimens were dated to 2362–2149 BP (412–199 BCE) and 2711–2338 BP (761–388 BCE).[43] From these dates, it is likely that Archaeoindris was still alive on the high plateau in 350 BCE when the first humans reached the west coast of Madagascar,[44] despite being rare by that time. Consequently, it would have been especially vulnerable to hunting and habitat loss.[5]
References
- ^ abcdGodfrey, Jungers & Burney 2010, p. 354.
- ^ abcdefghijkGodfrey, Jungers & Burney 2010, p. 356.
- ^Dunkel, Zijlstra & Groves 2011–2012, p. 68.
- ^Standing 1909, p. 9.
- ^ abcdefgNowak 1999, p. 91.
- ^Orlando et al. 2008, p. 4 of 9.
- ^ abGodfrey & Jungers 2003a, p. 1252.
- ^Mittermeier et al. 2010, pp. 37–40.
- ^Mittermeier et al. 2010, pp. 39–40.
- ^ a b Jungers, Demes & Godfrey 2008 , p. 343.
- ^ Godfrey & Jungers 2003a , p. 1248.
- ^ a b c d e f g Godfrey & Jungers 2002 , p. 101.
- ^ a b c d Vuillaume-Randriamanantena 1988 , p. 379.
- ^ a b c d e Godfrey & Jungers 2002 , p. 112.
- ↑ Vuillaume-Randriamanantena 1988 , S. 390.
- ^ a b Godfrey & Jungers 2003b , p. 255.
- ^ Godfrey, Jungers & Burney 2010 , p. 361.
- ^ a b c Vuillaume-Randriamanantena 1988 , p. 380.
- ^ Vuillaume-Randriamanantena 1988 , S. 381–382.
- ^ a b Jungers, Demes & Godfrey 2008 , p. 344.
- ^ a b Jungers, Demes & Godfrey 2008 , p. 345.
- ^ Jungers, Demes & Godfrey 2008 , p. 347.
- ^ Jungers, Demes & Godfrey 2008 , p. 350.
- ^ Jungers 1990 , S. 114.
- ^ a b c d Godfrey & Jungers 2003b , p. 256.
- ^ a b Godfrey, Jungers & Burney 2010 , p. 355.
- ^ a b Tattersall 1982 , S. 224.
- ^ Godfrey, Jungers & Schwartz 2006 , p. 53–55.
- ^ a b c Godfrey & Jungers 2002 , p. 103.
- ^ Jungers et al. 2001 , S. 388.
- ^ Tattersall 1982 , S. 225.
- ↑ Vuillaume-Randriamanantena 1988 , S. 387.
- ^ a b c Godfrey & Jungers 2002 , p. 102.
- ↑ Vuillaume-Randriamanantena 1988 , S. 389.
- ^ a b Godfrey, Jungers & Schwartz 2006 , p. 49.
- ^ Godfrey & Jungers 2003b , p. 257.
- ^ Godfrey, Jungers & Schwartz 2006 , p. 53.
- ^ Jungers et al. 2001 , S. 393.
- ^ Godfrey, Jungers & Burney 2010 , S. 356–357.
- ^ MacPhee, Burney & Wells 1985 , p. 467.
- ^ MacPhee, Burney & Wells 1985 , p. 463.
- ^ Godfrey & Jungers 2002 , S. 118.
- ^ Godfrey, Jungers & Burney 2010 , p. 353.
- ^ Mittermeier et al. 2010 , S. 37 & 39.
Zitierte Literatur
- Dunkel, AR; Zijlstra, JS; Groves, CP (2011–2012). „Riesenkaninchen, Weißbüschelaffen und britische Komödien: Etymologie der Lemurennamen, Teil 1“ (PDF) . Lemur News . 16 : 64–70 . ISSN 1608-1439 . Archiviert vom Original (PDF) am 06.11.2016 . Abgerufen am 19.08.2012 .
- Godfrey, L. R.; Jungers, W. L. (2002). „Quartäre Lemurenfossilien“. In: Hartwig, W. C. (Hrsg.). The Primate Fossil Record . Cambridge University Press . S. 97–121 . ISBN 978-0-521-66315-1Die
- Godfrey, L. R.; Jungers, W. L. (2003a). „Subfossile Lemuren“. In: Goodman, S. M.; Benstead, J. P. (Hrsg.). Die Naturgeschichte Madagaskars . University of Chicago Press . S. 1247–1252 . ISBN 978-0-226-30306-2Die
- Godfrey, LR; Jungers, WL (2003b). „Die ausgestorbenen Faultierlemuren Madagaskars“ (PDF) . Evolutionary Anthropology: Issues, News, and Reviews . 12 (6): 252–263 . doi : 10.1002/evan.10123 . S2CID 4834725. Archiviert vom Original (PDF) am 20.03.2012 . Abgerufen am 21.08.2012 .
- Godfrey, L. R.; Jungers, W. L.; Burney, D. A. (2010). „Subfossile Lemuren Madagaskars“. In: Werdelin, L.; Sanders, W. J. (Hrsg.). Känozoische Säugetiere Afrikas . University of California Press . S. 351–367 . doi : 10.1525/california/9780520257214.003.0021 . ISBN 978-0-520-25721-4Die
- Godfrey, L. R.; Jungers, W. L.; Schwartz, G. T. (2006). „Ökologie und Aussterben der subfossilen Lemuren Madagaskars“. In: Gould, L.; Sauther, M. L. (Hrsg.). Lemuren: Ökologie und Anpassung . Entwicklungen in der Primatologie: Fortschritt und Perspektiven. Springer. S. 41–64 . doi : 10.1007/978-0-387-34586-4_3 . ISBN 978-0-387-34585-7Die
- Jungers, W. L. (1990). „Probleme und Methoden zur Rekonstruktion der Körpergröße fossiler Primaten“ . In: Damuth, J.; MacFadden, B. J. (Hrsg.). Körpergröße in der Paläobiologie der Säugetiere: Schätzung und biologische Implikationen . Cambridge University Press. S. 103–118 . ISBN 978-0-521-36099-9Die
- Jungers, W. L.; Demes, B.; Godfrey, L. R. (2008). „Wie groß waren die ausgestorbenen „Riesenlemuren“ Madagaskars?“. In: Fleagle, J. G.; Gilbert, C. C. (Hrsg.). Elwyn Simons: Eine Suche nach den Ursprüngen . Entwicklungen in der Primatologie: Fortschritt und Perspektiven. S. 343–360 . doi : 10.1007/978-0-387-73896-3_23 . ISBN 978-0-387-73895-6Die
- Jungers, W. L.; Godfrey, L. R.; Simons, E. L.; Wunderlich, R. E.; Richmond, B. G.; Chatrath, P. S. (2001). „Ökomorphologie und Verhalten ausgestorbener Riesenlemuren aus Madagaskar“. In: Plavcan, J. M.; Kay, R. F.; Jungers, W. L.; van Schaik, C. P. (Hrsg.). Rekonstruktion des Verhaltens im Primatenfossilienbestand (PDF) . Springer. S. 371–411 . doi : 10.1007/978-1-4615-1343-8_10 . ISBN 978-0-306-46604-5Archiviert vom Original (PDF) am 09.09.2006.
- MacPhee, RDE; Burney, DA; Wells, NA (1985). „Frühholozäne Chronologie und Umwelt von Ampasambazimba, einer subfossilen Lemurenfundstätte in Madagaskar“. International Journal of Primatology . 6 (5): 463–489 . doi : 10.1007/BF02735571 . S2CID 44449535 .
- Mittermeier, RA ; Louis, EE ; Richardson, M.; Schwitzer, C.; et al. (2010). Lemuren von Madagaskar . Illustriert von SD Nash (3. Aufl.). Naturschutz International . ISBN 978-1-934151-23-5OCLC 670545286 .
- Nowak, RM (1999). Walker's Mammals of the World (6. Aufl.). Johns Hopkins University Press . ISBN 978-0-8018-5789-8Die
- Orlando, L.; Calvignac, S.; Schnebelen, C.; Douady, C.J.; Godfrey, L.R.; Hänni, C. (2008). „DNA ausgestorbener Riesenlemuren verbindet Archaeolemuriden mit rezenten Indriiden“ . BMC Evolutionary Biology . 8 (121): 121. Bibcode : 2008BMCEE...8..121O . doi : 10.1186/1471-2148-8-121 . PMC 2386821. PMID 18442367 .
- Stehend, HF (1909). „Subfossiles provenant des fouilles d’Ampasambazimba“ . Bulletin de l'Académie Malgache (auf Französisch). 6 : 9–11 .
- Tattersall, I. (1982). Die Primaten Madagaskars . Columbia University Press . S. 382. ISBN 978-0-231-04704-3Die
- Vuillaume-Randriamanantena, M. (1988). „Die taxonomischen Zuschreibungen riesiger subfossiler Lemurenknochen aus Ampasambazimba: Archaeoindris und Lemuridotherium “. Zeitschrift für menschliche Evolution . 17 (4): 379–391 . Bibcode : 1988JHumE..17..379V . doi : 10.1016/0047-2484(88)90027-9 .