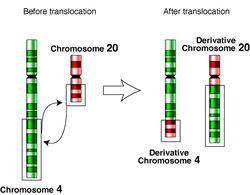
In der Genetik bezeichnet man als Chromosomentranslokation ein Phänomen, das zu einer ungewöhnlichen Umlagerung von Chromosomen führt. Man unterscheidet zwischen balancierten und unbalancierten Translokationen, wobei drei Haupttypen unterschieden werden: reziproke, nicht-reziproke und Robertsonsche Translokationen. Bei der reziproken Translokation handelt es sich um eine Chromosomenaberration , die durch den Austausch von Teilen zwischen nicht- homologen Chromosomen verursacht wird . Dabei werden zwei voneinander getrennte Fragmente zweier verschiedener Chromosomen vertauscht. Eine Robertsonsche Translokation tritt auf, wenn sich zwei nicht-homologe Chromosomen verbinden. Das bedeutet, dass bei zwei gesunden Chromosomenpaaren jeweils ein Chromosom jedes Paares aneinanderhaftet und sich homogen miteinander verbindet. Jede Art von Chromosomentranslokation kann zu Störungen des Wachstums, der Funktion und der Entwicklung des Körpers führen, häufig aufgrund einer Veränderung des Genoms. [ 1 ]
Eine Genfusion entsteht, wenn durch eine Translokation zwei ansonsten getrennte Gene miteinander verbunden werden. Sie wird zytogenetisch oder anhand des Karyotyps betroffener Zellen nachgewiesen . Translokationen können balanciert sein (gleichmäßiger Austausch von Material ohne zusätzliche oder fehlende genetische Information und idealerweise volle Funktionalität) oder unbalanciert (ungleichmäßiger Austausch von Chromosomenmaterial mit zusätzlichen oder fehlenden Genen ). [ 1 ] [ 2 ] Letztendlich können diese Veränderungen der Chromosomenstruktur auf Deletionen, Duplikationen und Inversionen zurückzuführen sein und drei Hauptarten von Strukturveränderungen zur Folge haben.
Geschichte
Chromosomale Translokationen – bei denen ein Segment eines Chromosoms abbricht und sich an ein anderes anlagert – wurden erstmals Anfang des 20. Jahrhunderts beobachtet. 1916 dokumentierte der amerikanische Zoologe William R. B. Robertson eine Chromosomenfusion bei Heuschrecken (heute als Robertson-Translokation bekannt ). [ 3 ] 1938 wies Karl Sax nach, dass Röntgenstrahlung chromosomale Translokationen auslösen kann, indem er strahleninduzierte Fusionen zwischen verschiedenen Chromosomen in Pflanzenzellen beobachtete. [ 3 ] In den 1940er Jahren enthüllten Barbara McClintocks zytogenetische Experimente an Mais den Bruch-Fusions-Brücken-Zyklus von Chromosomen und trugen so zum besseren Verständnis der Mechanismen chromosomaler Umlagerungen bei. [ 4 ] Ein bedeutender Durchbruch gelang 1960 mit der Entdeckung des Philadelphia-Chromosoms bei chronischer myeloischer Leukämie – der ersten konsistenten Chromosomenaberration, die mit einer menschlichen Krebserkrankung in Verbindung gebracht wurde. 1973 identifizierte Janet Rowley das Philadelphia-Chromosom als eine Translokation zwischen den Chromosomen 9 und 22 und stellte damit einen eindeutigen Zusammenhang zwischen einer spezifischen Chromosomentranslokation und Leukämie her. [ 5 ]
In den folgenden Jahrzehnten verbesserten technologische Fortschritte die Erkennung und das Verständnis von Translokationen erheblich. Die Einführung von Chromosomenbandentechniken in den 1970er Jahren (z. B. Q- und G-Bandenfärbung ) ermöglichte eine präzisere Identifizierung einzelner Chromosomen und ihrer Aberrationen im Karyotyp. [ 6 ] Die Entwicklung der Fluoreszenz-in-situ-Hybridisierung ( FISH ) Anfang der 1980er Jahre erlaubte es Forschern, spezifische DNA-Sequenzen auf Chromosomen mit fluoreszierenden Sonden zu markieren und so die Kartierung von Translokationsbruchpunkten deutlich zu verbessern. [ 6 ] Im 21. Jahrhundert ermöglichte die Hochdurchsatz-DNA-Sequenzierung (z. B. die Sequenzierung des gesamten Genoms) die Erkennung von Translokationen mit Einzelnukleotidauflösung, was zur Entdeckung zahlreicher zuvor unerkannter Translokationen bei verschiedenen Krebsarten und genetischen Erkrankungen führte. [ 4 ]
Ausgewogene reziproke Translokationen
Reziproke Translokationen beinhalten einen Austausch von Material zwischen nicht-homologen Chromosomen. [ 7 ] Solche Translokationen sind in der Regel harmlos, da sie – anders als nicht-reziproke Translokationen – nicht zu einem Gewinn oder Verlust von genetischem Material führen. Diese Art von Translokation wird häufig durch fehlerhafte Reparatur von Doppelstrangbrüchen oder durch nicht-homologes Crossing-over während der Meiose verursacht. [ 7 ]
Eine häufige balancierte reziproke Translokation ist der Austausch von Material zwischen Chromosom 11 und 22. Personen mit dieser Chromosomenanomalie zeigen keine phänotypischen Auswirkungen, können aber Fruchtbarkeitsprobleme haben, da Träger balancierter reziproker Translokationen Gameten mit unbalancierten reziproken oder nicht-reziproken Chromosomentranslokationen bilden können. [ 8 ] Die Verschmelzung der Gamete des Trägers mit der Wildtyp-Gamete des anderen Elternteils kann, abhängig von der Chromosomensegregation während der Meiose, zu einer Duplikation oder Deletion von genetischem Material führen. [ 8 ] Dies kann Unfruchtbarkeit, Fehlgeburten oder Kinder mit Fehlbildungen zur Folge haben. Familien, die möglicherweise Träger einer Translokation sind, werden häufig genetische Beratung und Gentests angeboten. Ein häufiges Beispiel für einen Geburtsfehler, der durch die oben genannte Translokation verursacht werden kann, ist das Emanuel-Syndrom . [ 9 ]
Unbalancierte reziproke Translokationen
Unbalancierte reziproke Translokationen ähneln balancierten reziproken Translokationen insofern, als sie den Austausch genetischer Information zwischen zwei nicht-homologen Chromosomen beinhalten. [ 10 ] Bei unbalancierten reziproken Translokationen führt dieser Prozess jedoch auch zur Duplikation oder Deletion von genetischem Material. Aufgrund dieses genetischen Ungleichgewichts weisen Individuen mit einer unbalancierten reziproken Translokation häufig einen Phänotyp auf , der die abnorme Genexpression widerspiegelt. [ 10 ]
Die meisten unbalancierten reziproken Translokationen entstehen durch Vererbung von einem Elternteil mit einer balancierten Translokation. [ 11 ] Wie bereits erwähnt, bekommen Eltern mit balancierten Translokationen mit hoher Wahrscheinlichkeit Kinder mit unbalancierten Translokationen. Seltener können unbalancierte Translokationen auch durch Fehler während der Gametogenese oder durch Fehler bei der Reparatur von DNA-Doppelstrangbrüchen entstehen. [ 11 ]
Nichtreziproke Translokation
Eine nicht-reziproke Translokation ist eine Chromosomenaberration, bei der Gene einseitig von einem Chromosom auf ein anderes , nicht-homologes Chromosom übertragen werden. Diese Übertragung ist stets unausgewogen und führt zu einem genetischen Ungleichgewicht. Ein Überschuss oder Mangel an genetischem Material im Vergleich zu einem normalen Genom kann Krankheiten verursachen.
Nicht-reziproke Translokationen können durch drei Hauptprozesse entstehen: Fehler bei der DNA-Replikation , ungleiches Crossing-over in Meiose oder Mitose und/oder exogene Faktoren, die zu Doppelstrangbrüchen in der DNA führen. [ 12 ] Erleidet ein Chromosom einen Doppelstrangbruch an einer oder mehreren Stellen, kann es sich mit einem nicht-homologen Chromosom verbinden. [ 12 ] Bei nicht-reziproken Translokationen nimmt das Akzeptorchromosom genetisches Material auf, während das Donorchromosom im Gegenzug kein Material aufnimmt. Dieser ungleiche Transfer führt zu einem Verlust an genetischem Material, dessen Auswirkungen unterschiedlich stark sein können.
Eine Reihe von Faktoren beeinflusst die Auswirkungen der Translokation. Das vom Doppelstrangbruch betroffene Chromosomensegment kann sich in einer kodierenden oder nicht-kodierenden Region befinden. [ 13 ] Daher kann die Umlagerung verschiedene Auswirkungen auf das Gen haben. Essenzielle Gene können stillgelegt oder Onkogene aktiviert werden. [ 13 ] Auch das Chromosom, auf dem die Translokation auftritt, kann das Ergebnis beeinflussen, da manche Chromosomen mehr essentielle Gene enthalten . Der Zelltyp, in dem die Translokation stattfindet, kann ebenfalls eine Rolle spielen. Somatische Zellen neigen eher zu Krebs, während Keimzellen eher zu Geburtsfehlern wie Fehlgeburten und Totgeburten führen. [ 14 ]
Ein konkretes Beispiel für eine unbalancierte, nicht-reziproke Translokation ist das Emanuel-Syndrom . Auf chromosomaler Ebene wird ein Fragment von Chromosom 11 nicht-reziprok auf Chromosom 22 transloziert, wodurch genetische Ungleichgewichte entstehen. [ 9 ] Phänotypisch manifestiert sich das Emanuel-Syndrom durch neurologische und körperliche Entwicklungsstörungen, Mikrozephalie und angeborene Fehlbildungen . [ 9 ]
Robertsonsche Translokationen
Die Robertsonsche Translokation ist eine Translokationsart, die durch Brüche an oder nahe den Zentromeren zweier akrozentrischer Chromosomen verursacht wird. Der wechselseitige Austausch von Chromosomenteilen führt zu einem großen metazentrischen Chromosom und einem extrem kleinen Chromosom, das aufgrund seiner geringen Genanzahl im Organismus weitgehend verloren gehen kann. Der resultierende Karyotyp beim Menschen besteht aus nur 45 Chromosomen, da zwei Chromosomen miteinander verschmolzen sind. [ 15 ] Dies hat keine direkten Auswirkungen auf den Phänotyp, da die einzigen Gene auf den kurzen Armen der akrozentrischen Chromosomen allen gemeinsam sind und in variabler Kopienzahl vorliegen (Gene des Nukleolusorganisators).
Robertson-Translokationen wurden in allen Kombinationen akrozentrischer Chromosomen beobachtet. Die häufigste Translokation beim Menschen betrifft die Chromosomen 13 und 14 und tritt bei etwa 0,97 von 1000 Neugeborenen auf. [ 16 ] Träger von Robertson-Translokationen weisen keine phänotypischen Anomalien auf, jedoch besteht das Risiko unausgewogener Gameten, die zu Fehlgeburten oder Fehlbildungen des Kindes führen können. Beispielsweise haben Träger von Robertson-Translokationen mit Beteiligung von Chromosom 21 ein erhöhtes Risiko, ein Kind mit Down-Syndrom zu bekommen . Dies wird als „Translokations-Down-Syndrom“ bezeichnet. Es entsteht durch eine Fehlverteilung ( Non-Disjunction ) während der Gametogenese. Das Risiko der Vererbung ist für die Mutter mit 10 % höher als für den Vater mit 1 %. Robertson-Translokationen mit Beteiligung von Chromosom 14 bergen aufgrund der Trisomie-Rescue ebenfalls ein geringes Risiko einer uniparentalen Disomie 14 .
Chromosomale Strukturveränderungen
Veränderungen der Chromosomenstruktur können durch Deletionen, Duplikationen und Inversionen bedingt sein, was letztendlich zu drei Hauptarten von Strukturveränderungen führt.
Isochromosomen entstehen, wenn ein Chromosom zwei identische Arme aufweist, beispielsweise zwei P- oder zwei Q-Arme, anstatt der erwarteten Q- und P-Paarung. Diese isochromosomalen Strukturveränderungen können zu einem Informationsverlust sowie zu einer veränderten Genexpression im Körper führen, bedingt durch die Duplikation eines Chromosomenarmpaares. [ 17 ]
Dizentrische Chromosomen sind Chromosomen mit zwei Zentromeren. Dies führt zu einer Instabilität innerhalb des Chromosoms und einem Verlust genetischer Information durch die Verschmelzung zweier Chromosomenabschnitte mit einem Zentromer. [ 17 ] Dadurch entsteht ein einzelnes Chromosom mit zwei Zentromeren, da zwei Chromosomenabschnitte mit jeweils einem Zentromer verschmelzen.
Ringchromosomen sind Chromosomen, die entstehen, wenn die Enden der vorherigen Chromosomen abbrechen und eine ringförmige Struktur bilden. [ 18 ] Dies führt zu einem Verlust an genetischem Material sowie möglicherweise zum Verlust des chromosomalen Zentromers. [ 17 ]
DNA-Doppelstrangbrüche mit Translokationen
Das auslösende Ereignis bei der Entstehung einer Translokation ist in der Regel ein Doppelstrangbruch in der chromosomalen DNA . [ 19 ] Doppelstrangbrüche in der chromosomalen DNA können viele Ursachen haben; eine wichtige Rolle bei der Entstehung dieser Translokationen spielt jedoch der nicht-homologe Endverknüpfungsmechanismus (NHEJ). [ 19 ] [ 20 ] Funktioniert dieser Mechanismus ordnungsgemäß, repariert er einen DNA-Doppelstrangbruch, indem er die ursprünglich gebrochenen Enden mithilfe ihrer klebrigen oder glatten Enden, die durch Enzyme und Proteine entstanden sind, wieder verbindet. Funktioniert der NHEJ-Mechanismus jedoch fehlerhaft, kann er Enden falsch verbinden, was zu genomischen Umlagerungen, einschließlich Translokationen, führt. Diese fehlerhaften Kombinationen entstehen durch Sequenzen in unmittelbarer Nähe, die zwar eine ähnliche, aber keine perfekte Homologie aufweisen. Die Reparaturmechanismen erkennen diese Homologie jedoch fälschlicherweise als perfekt. Dies veranlasst die Mechanismen, die Reparatur mittels NHEJ mit den falschen Sequenzen zu beginnen, was zu Deletionen und Insertionen spezifischer Nukleotide oder zur Verbindung falscher Endsequenzen führt. [ 21 ] Letztendlich entstehen diese Probleme durch eine fehlerhafte Interpretation homologer Sequenzen durch die Protein- oder Enzymmaschinerie, was zum Einbau falscher Sequenzen in das Genom führt. Dies geschieht, wenn die Genome schwach homologer Sequenzen zu nahe beieinander liegen, wodurch die Maschinerie verwirrt wird oder die falsche Sequenz mit der richtigen verwechselt. [ 22 ]
Ein weiterer Faktor für die Entstehung von DNA-Doppelstrangbrüchen ist die Bildung von AID-Translokationen. Diese Sequenzen entstehen durch die Desaminierung eines Cytosin-Nukleotids zu einem Uracil-Nukleotid. Diese Veränderung führt zu einer Fehlpaarung zwischen der komplementären Sequenz und ihrer Zielsequenz und somit zu einer Translokation. Die weitere Verarbeitung durch spezifische Endonukleasen führt zu einer Mutation oder einem Doppelstrangbruch. [ 23 ] Auch diese Doppelstrangbrüche und die entstandene Fehlpaarung führen zu einer Translokation der genomischen Sequenz, die wiederum Auswirkungen auf das Chromosom hat, auf dem sich die DNA befindet.
Schließlich tauchen neue Erkenntnisse über den Einfluss exogener, selten schneidender Endonukleasen auf DNA-Doppelstrangbrüche und die daraus resultierenden chromosomalen Translokationen auf. [ 24 ] [ 25 ] Insbesondere wurden während der Reparatur von DNA-Doppelstrangbrüchen Fehlverbindungen ausgetauschter Sequenzenden beobachtet, die primär auf die durch den NHEJ-Reparaturweg bedingte Homologie zurückzuführen sind. An diesen spezifischen Bruchstellen wurde jedoch ein zusätzlicher Verlust an Nukleinsäure und DNA-Sequenz festgestellt, was zu dem Schluss führt, dass weitere exogene, selten schneidende Endonukleasen an verschiedenen Stellen dieser Stränge vorhanden sind. Jede Deletion führt zu einer variierenden Größe, Position oder Schnittvariante, was letztendlich auf einen DNA-Abbau durch Endonukleasen vor der NHEJ-Reparatur hindeutet. [ 25 ] Ähnliche Einflüsse auf den DNA-Abbau wie exogene, selten schneidende Endonukleasen wurden auch als Folge zytotoxischer Chemotherapie [ 26 ] und ionisierender Strahlung beobachtet , obwohl weitere Forschung erforderlich ist, um schlüssigere und praktikablere Antworten zu liefern. [ 27 ]
Insgesamt können DNA-Doppelstrangbrüche und deren Reparaturmechanismen durch verschiedene Mechanismen sowohl reziproke als auch nicht-reziproke Chromosomentranslokationen hervorrufen. [ 25 ] Solche DNA-Brüche und Reparaturmechanismen können auch größere Chromosomenmutationen erzeugen, darunter nicht nur Translokationen, sondern auch Inversionen, Amplifikationen und einfache Deletionen, die alle zu Null- oder gefährlichen Transformationen führen. [ 27 ]
Rolle bei der Krankheit
Chromosomale Translokationen können eine Vielzahl von Krankheiten, Mutationen oder anderen vererbbaren Veränderungen im Genom eines Individuums verursachen. Häufig entstehen diese Mutationen durch den Verlust genetischer Information infolge einer Strukturveränderung des Chromosoms. Es gibt drei Hauptformen solcher Strukturveränderungen, und jede von ihnen trägt zur Krankheitsentstehung bei. Ob durch die Strukturveränderungen selbst oder direkt durch den Verlust genetischer Information – viele verschiedene Krankheiten oder Mutationen können durch chromosomale Translokationen entstehen.
Eine häufige und gefährliche Erkrankung, die durch Chromosomentranslokationen verursacht wird, ist Krebs. [ 28 ] Es gibt verschiedene Krebsarten, die durch erworbene Translokationen entstehen. Viele davon fallen unter die Leukämie-Klassifikationen [ 29 ] , akute myeloische Leukämie [ 30 ] und chronische myeloische Leukämie [ 31 ]. Weitere Translokationen wurden bei soliden Tumoren wie dem Ewing-Sarkom nachgewiesen. [ 32 ] Unabhängig von der Krebsklassifikation entsteht dieser Krebs meist durch die Störung oder Fehlregulation der normalen Genfunktion. Dies führt zu einer molekularen Umlagerung der für die korrekte Genregulation notwendigen Gene und somit zur Krebsentstehung. [ 33 ] Eine alternative Entstehungsmöglichkeit solcher Krebsarten ist die Fusion von kodierenden Sequenzen. Diese Fusion entsteht entweder durch die Translation, die zur Bildung eines Ring- oder Isochromosoms führt, oder durch DNA-Endverknüpfung aufgrund der räumlichen Nähe homologer Gene, wodurch ein potentes, fusioniertes Onkogen entsteht. [ 34 ] [ 35 ]
Unfruchtbarkeit ist eine weit verbreitete Erkrankung, die durch Chromosomentranslokationen verursacht wird und beim Fötus oft asymptomatisch oder symptomatisch verläuft. [ 36 Häufig ist ein Elternteil Träger einer balancierten Translokation , ohne Symptome zu zeigen. Die Nachkommen erwerben oft vor der Geburt zusätzliche Mutationen, die aufgrund der Translokation in ihrem Genom zu Symptomen führen. Diese Symptome treten schließlich dann auf, wenn die Homologie zwischen den Genomen zweier Individuen dazu führt, dass genetische Informationen aus der asymptomatischen Chromosomentranslokation verloren gehen und problematisch werden. [ 33 ] [ 37 ]
Darüber hinaus kann die Vererbung des Down-Syndroms [ 38 ] durch Chromosomentranslokationen verursacht werden. In einer Minderheit (etwa 3–4 %) der Fälle von Down-Syndrom ist die Ursache dieser Mutation eine Robertson-Translokation. Diese entsteht durch die Translokation des langen Arms von Chromosom 21 auf den langen Arm von Chromosom 14. [ 39 ] Solche Translokationen können auch an anderen Chromosomen wie Chromosom 13, 15 oder 22 auftreten, wodurch auch diese Chromosomen als Robertson-Chromosomen bezeichnet werden. Unabhängig vom Ort der Translokation führt dies zu einem Verlust von genetischer Information auf Chromosom 21 und einer Hinzufügung genetischer Information auf dem veränderten Chromosom. [ 39 ]
Schließlich können Chromosomentranslokationen zwischen den Geschlechtschromosomen auch zu einer Reihe genetischer Erkrankungen führen, wie beispielsweise dem XX -Mann-Syndrom [ 40 ] , das durch eine Translokation des SRY-Gens vom Y- zum X-Chromosom verursacht wird [ 41 ] . Alternativ können auch andere genetische Erkrankungen durch Chromosomentranslokationen entstehen, wie das Emmanuel-Syndrom [ 42 ] , das Klinfelter-Syndrom [ 43 ] und das Turner-Syndrom [ 44 ] .
Nach Chromosom


Bezeichnung
Das Internationale System für die Nomenklatur der menschlichen Zytogenetik (ISCN) wird zur Bezeichnung einer Translokation zwischen Chromosomen verwendet . [ 46 ] Die Bezeichnung „t(A;B)(p1;q2)“ steht für eine Translokation zwischen Chromosom A und Chromosom B. Die Angabe in der zweiten Klammer gibt, sofern vorhanden, die genaue Position innerhalb des jeweiligen Chromosoms an – wobei p den kurzen Arm, q den langen Arm und die Zahlen nach p bzw. q die Regionen, Banden und Subbanden bezeichnen, die nach Anfärbung des Chromosoms mit einem Farbstoff sichtbar werden . [ 47 ] Siehe auch die Definition eines genetischen Locus .
Die Translokation ist der Mechanismus, der dazu führen kann, dass ein Gen von einer Kopplungsgruppe in eine andere wandert.
Beispiele für Translokationen auf menschlichen Chromosomen
| Translokation | Begleiterkrankungen | Fusionierte Gene/Proteine | |
|---|---|---|---|
| Erste | Zweite | ||
| t(8;14)(q24;q32) | Burkitt-Lymphom – tritt in etwa 70 % der Fälle auf und stellt MYC unter die Kontrolle des IGH-Enhancers [ 48 ]. | Das c-myc-Gen auf Chromosom 8 verleiht dem Fusionsprotein die Fähigkeit zur Lymphozytenproliferation. | Der IGH@ -Locus (Immunglobulin-Schwerlastlocus) auf Chromosom 14 induziert eine massive Transkription des Fusionsproteins . |
| t(11;14)(q13;q32) | Mantelzelllymphom [ 49 ] – in den meisten Fällen vorhanden [ 50 ] | Cyclin D1 [ 49 ] auf Chromosom 11 verleiht dem Fusionsprotein zellproliferative Fähigkeit | IGH@ [ 49 ] (Immunglobulin-Schwerkettenlocus) auf Chromosom 14 induziert eine massive Transkription des Fusionsproteins |
| t(14;18)(q32;q21) | Follikuläres Lymphom (~90 % der Fälle) [ 51 ] | IGH@ [ 49 ] (Immunglobulin-Schwerkettenlocus) auf Chromosom 14 induziert eine massive Transkription des Fusionsproteins | Bcl-2 auf Chromosom 18 verleiht dem Fusionsprotein antiapoptotische Eigenschaften. |
| t(10;(verschiedene))(q11;(verschiedene)) | Papilläres Schilddrüsenkarzinom [ 52 ] | RET-Protoonkogen [ 52 ] auf Chromosom 10 | PTC ( Papilläres Schilddrüsenkarzinom ) – Platzhalter für verschiedene andere Gene/Proteine [ 52 ] |
| t(2;3)(q13;p25) | Follikuläres Schilddrüsenkarzinom [ 52 ] | PAX8 – gepaartes Box-Gen 8 [ 52 ] auf Chromosom 2 | PPARγ1 [ 52 ] ( Peroxisomenproliferator-aktivierter Rezeptor γ 1) auf Chromosom 3 |
| t(8;21)(q22;q22) [ 51 ] | Akute myeloblastische Leukämie mit Reifung | ETO auf Chromosom 8 | AML1 auf Chromosom 21 findet sich in etwa 7 % der neuen AML-Fälle, hat eine günstige Prognose und lässt auf ein gutes Ansprechen auf die Cytarabin -Therapie schließen [ 51 ]. |
| t(9;22)(q34;q11) Philadelphia-Chromosom | Chronische myeloische Leukämie (CML), akute lymphatische Leukämie (ALL) | Abl1- Gen auf Chromosom 9 [ 53 ] | BCR ("Breakpoint-Cluster-Region" auf Chromosom 22 [ 53 ] |
| t(15;17)(q22;q21) [ 51 ] | Akute Promyelozytenleukämie | PML-Protein auf Chromosom 15 | RAR-α auf Chromosom 17 Der persistierende laborchemische Nachweis des PML-RARA-Transkripts ist ein starker Prädiktor für einen Rückfall [ 51 ]. |
| t(12;15)(p13;q25) | Akute myeloische Leukämie, kongenitales Fibrosarkom, sekretorisches Mammakarzinom, sekretorisches Karzinom der Speicheldrüsen vom Mamma-Typ, zelluläre Variante des mesoblastischen Nephroms | TEL auf Chromosom 12 | TrkC-Rezeptor auf Chromosom 15 |
| t(9;12)(p24;p13) | CML , ALLE | JAK auf Chromosom 9 | TEL auf Chromosom 12 |
| t(12;16)(q13;p11) | Myxoides Liposarkom | DDIT3 (ehemals CHOP) auf Chromosom 12 | FUS- Gen auf Chromosom 16 |
| t(12;21)(p12;q22) | ALLE | TEL auf Chromosom 12 | AML1 auf Chromosom 21 |
| t(11;18)(q21;q21) | MALT-Lymphom [ 54 ] | BIRC3 (API-2) | MLT [ 54 ] |
| t(1;11)(q42.1;q14.3) | Schizophrenie [ 45 ] (familiäre Translokation, die DISC1 stört ) [ 55 ] | DISC1 (1q42) [ 55 ] | DISC1FP1 (11q14) [ 55 ] |
| t(2;5)(p23;q35) | Anaplastisches großzelliges Lymphom | ALK | NPM1 |
| t(11;22)(q24;q11.2-12) | Ewing-Sarkom | FLI1 | EWS |
| t(17;22) | DFSP | COL1A1/ Kollagen I auf Chromosom 17 | Blutplättchen-Wachstumsfaktor B auf Chromosom 22 |
| t(1;12)(q21;p13) | Akute myeloische Leukämie (seltener Subtyp) [ 56 ] | ETV6 (TEL, 12p13) [ 56 ] | ARNT (1q21) [ 56 ] |
| t(X;18)(p11.2;q11.2) | Synovialsarkom - 90 % der Fälle [ 57 ] | SS18 (18q11) [ 57 ] | SSX1 / SSX2 (Xp11) [ 57 ] |
| t(1;19)(q10;p10) | Oligodendrogliom und Oligoastrozytom | Im Zusammenhang mit der 1p/19q-Kodeletion bei Oligodendrogliomen und Oligoastrozytomen, nicht mit einer spezifischen Genfusion [ 58 ] [ 59 ]. | |
| t(17;19)(q22;p13) | Akute lymphatische Leukämie, ein sehr seltener Subtyp, <1 % der akuten lymphatischen Leukämie. (verbunden mit einer schlechten Prognose) [ 60 ] | TCF3 (E2A, 19p13) [ 60 ] | HLF (17q22) [ 60 ] |
| t(7,16) (q32-34;p11) oder t(11,16) (p11;p11) | Niedriggradiges fibromyxoides Sarkom – die meisten Fälle [ 61 ] | FUS (16p11) [ 61 ] | CREB3L1 (11p11) [ 61 ] |
Siehe auch
Referenzen
- ^ a b „EuroGentest: Chromosomentranslokationen“ . www.eurogentest.org . Archiviert vom Original am 24. Januar 2018. Abgerufen am 29. März 2019 .
- ^ „Können Veränderungen in der Struktur der Chromosomen Gesundheit und Entwicklung beeinflussen?“ Genetics Home Reference . National Library of Medicine . Abgerufen am 15. Juli 2020 .
- ^ a b HROMAS, ROBERT; WILLIAMSON, ELIZABETH; LEE, SUK-HEE; NICKOLOFF, JAC (2016). „Prävention von chromosomalen Translokationen, die Krebs verursachen“ . Transactions of the American Clinical and Climatological Association . 127 : 176–195 . PMC 5216476. PMID 28066052 .
- ^ Oviedo de Valeria , Jenny (2. August 1994). „Problemas multiplicativos tip transformacion lineal: tareas de compra y venta“. Mathematische Bildung . 6 (2): 73–86 . doi : 10.24844/em0602.06 . ISSN 2448-8089 .
- ^ Rowley, Janet D. (Juni 1973). „Eine neue, konsistente Chromosomenaberration bei chronischer myeloischer Leukämie, identifiziert durch Quinacrin-Fluoreszenz und Giemsa-Färbung“ . Nature . 243 (5405): 290–293 . Bibcode : 1973Natur.243..290R . doi : 10.1038/243290a0 . ISSN 1476-4687 .
- ^ a b Case, Sean (27. Juli 2020). „Geschichte und Entwicklung der Zytogenetik“ . Behind the Bench . Abgerufen am 13. März 2025 .
- ^ a b Therman, Eeva; Susman, Millard (1993), „Reziproke Translokationen“ , in: Therman, Eeva; Susman, Millard (Hrsg.), Menschliche Chromosomen: Struktur, Verhalten und Auswirkungen , New York, NY: Springer US, S. 273–287 , doi : 10.1007/978-1-4684-0529-3_26 , ISBN 978-1-4684-0529-3abgerufen am 2. April 2025
- ^ a b Wilch, Ellen S.; Morton, Cynthia C. (2018), „Historische und klinische Perspektiven auf Chromosomentranslokationen“ , in: Zhang, Yu (Hrsg.), Chromosomentranslokation , Bd. 1044, Singapur: Springer, S. 1–14 , doi : 10.1007/978-981-13-0593-1_1 , ISBN 978-981-13-0593-1, PMID 29956287 , abgerufen am 2. April 2025
- ^ a b c PMC, Europe. "Europe PMC" . europepmc.org . Abgerufen am 2. April 2025 .
- ^ a b Parslow, Malcolm; Chambers, Diana; Aftimos, Salim (1981). „Eine vererbte reziproke Translokation – balanciert oder unbalanciert?“. Pathology . 13 (1): 174. doi : 10.1016/S0031-3025(16)38470-7 .
- ^ Chen , Chih - Ping; Wu, Pei-Chen; Lin, Chen-Ju; Chern, Schu-Rern; Tsai, Fuu-Jen; Lee, Chen-Chi; Stadt, Dai-Dyi; Chen, Wen-Lin; Chen, Li-Feng; Lee, Meng-Shan; Pan, Chen-Wen; Wang, Wayseen (März 2011). „Unausgeglichene reziproke Translokationen bei der Amniozentese“ . Taiwanesisches Journal für Geburtshilfe und Gynäkologie . 50 (1): 48–57 . doi : 10.1016/j.tjog.2011.02.001 . PMID 21482375 .
- ^ a b Ali, Hanif; Daser, Angelika; Dear, Paul; Wood, Henry; Rabbitts, Pamela; Rabbitts, Terence (2013). „Nicht-reziproke Chromosomentranslokationen bei Nierenkrebs beinhalten multiple Doppelstrangbrüche und NHEJ, die mit einer Bruchpunktinversion, aber nicht notwendigerweise mit der Transkription assoziiert sind . “ Genes, Chromosomes and Cancer . 52 (4): 402–409 . doi : 10.1002/gcc.22038 . ISSN 1098-2264 . PMID 23341332 .
- Nikitin , Dmitri; Tosato, Valentina; Zavec, Apolonija Bedina ; Bruschi, Carlo V. (15. Juli 2008). „ Zelluläre und molekulare Effekte nichtreziproker Chromosomentranslokationen in Saccharomyces cerevisiae“ . Proceedings of the National Academy of Sciences . 105 (28): 9703–9708 . Bibcode : 2008PNAS..105.9703N . doi : 10.1073/pnas.0800464105 . PMC 2474487. PMID 18599460 .
- ^ Nambiar, Mridula; Kari, Vijayalakshmi; Raghavan, Sathees C. (Dezember 2008). „Chromosomentranslokationen bei Krebs“. Biochimica et Biophysica Acta (BBA) – Rezensionen zu Krebs . 1786 (2): 139–152 . doi : 10.1016/j.bbcan.2008.07.005 . PMID 18718509 .
- ^ Hartwell, Leland H. (2011). Genetik: Von Genen zu Genomen . New York: McGraw-Hill. S. 443. ISBN 978-0-07-352526-6Die
- ^ E. Anton; J. Blanco; J. Egozcue; F. Vidal (29. April 2004). „Spermien-FISH-Studien bei sieben männlichen Trägern der Robertson-Translokation t(13;14)(q10;q10)“ . Human Reproduction . 19 (6): 1345–1351 . doi : 10.1093/humrep/deh232 . ISSN 1460-2350 . PMID 15117905 .
- ^ a b c Mehta, Parang. "Was sind Translokationen?" . WebMD . Abgerufen am 2. April 2025 .
- ^ Yip, Moh-Ying (April 2015). „ Autosomale Ringchromosomen bei menschlichen Erbkrankheiten“ . Translational Pediatrics . 4 (2): 164–174 . doi : 10.3978/j.issn.2224-4336.2015.03.04 . PMC 4729093. PMID 26835370 .
- ^ a b Agarwal, S.; Tafel, AA; Kanaar, R. (2006). „DNA-Doppelstrangbruchreparatur und Chromosomentranslokationen“. DNA-Reparatur . 5 ( 9– 10): 1075– 1081. doi : 10.1016/j.dnarep.2006.05.029 . PMID 16798112 .
- ^ Bohlander, Stefan K.; Kakadia, Purvi M. (2015). „DNA-Reparatur und chromosomale Translokationen“. Chromosomale Instabilität in Krebszellen . Aktuelle Ergebnisse der Krebsforschung. Band 200. S. 1–37 . doi : 10.1007/978-3-319-20291-4_1 . ISBN 978-3-319-20290-7PMID 26376870 .
- ^ Steyer, Benjamin; Cory, Evan; Saha, Krishanu (August 2018). „Entwicklung von Präzisionsmedizin durch narbenfreie Genomeditierung humaner pluripotenter Stammzellen“ . Drug Discovery Today: Technologies . 28 : 3–12 . doi : 10.1016/j.ddtec.2018.02.001 . PMC 6136251. PMID 30205878. Nicht-homologe Endverknüpfung (NHEJ) – ein
fehleranfälliger DNA-Reparaturprozess, bei dem Doppelstrangbrüche direkt ligiert werden, was häufig zu Insertions- oder Deletionsmutationen führt.
- ^ Rocha, PP; Chaumeil, J.; Skok, JA (2013). „Molekularbiologie. Den richtigen Partner im 3D-Genom finden“ . Science . 342 ( 6164): 1333–1334 . doi : 10.1126/science.1246106 . PMC 3961821. PMID 24337287 .
- ^ Nambiar, Mridula; Raghavan, Sathees C. (August 2011). „Wie bricht DNA bei chromosomalen Translokationen?“ Nucleic Acids Research . 39 (14): 5813–5825 . doi : 10.1093 / nar/gkr223 . ISSN 1362-4962 . PMC 3152359. PMID 21498543 .
- ^ Jasin, Maria (Juni 1996). „Genetische Manipulation von Genomen mit selten schneidenden Endonukleasen“ . Trends in Genetics . 12 (6): 224–228 . doi : 10.1016/0168-9525(96)10019-6 . PMID 8928227 .
- ^ a b c Povirk, Lawrence F. (September 2006). „Biochemische Mechanismen von Chromosomentranslokationen infolge von DNA-Doppelstrangbrüchen“. DNA Repair . 5 ( 9–10 ): 1199–1212 . doi : 10.1016/j.dnarep.2006.05.016 . PMID 16822725 .
- ^ „Chemotherapie – Was ist das, Arten, Behandlung und Nebenwirkungen“ . www.macmillan.org.uk . Abgerufen am 11. April 2025 .
- Qiu , Zhijun; Zhang, Zhenhua; Roschke, Anna; Varga, Tamas; Aplan, Peter D. (22. Februar 2017). „Erzeugung großer chromosomaler Umlagerungen durch einen einzelnen, gezielt erzeugten DNA-Doppelstrangbruch“ . Scientific Reports . 7 ( 1 ) 43156. Bibcode : 2017NatSR...743156Q . doi : 10.1038/ srep43156 . hdl : 2437/288170 . ISSN 2045-2322 . PMC 5320478. PMID 28225067 .
- ^ „Krebs – Symptome und Ursachen“ . Mayo Clinic . Abgerufen am 11. April 2025 .
- ^ „Leukämie – Patientenversion – NCI“ . www.cancer.gov . Abgerufen am 11. April 2025 .
- ^ „Behandlung der akuten myeloischen Leukämie – NCI“ . www.cancer.gov . 4. April 2025. Abgerufen am 11. April 2025 .
- ^ „Chronische myeloische Leukämie – Symptome und Ursachen“ . Mayo Clinic . Abgerufen am 11. April 2025 .
- ^ „Ewing-Sarkom – Symptome und Ursachen“ . Mayo Clinic . Abgerufen am 11. April 2025 .
- ^ a b „Translokationen menschlicher Chromosomen und Krebs | Wissenschaft lernen mit Scitable“ . www.nature.com . Abgerufen am 2. April 2025 .
- ^ Streb, Patrick; Kowarz, Eric; Benz, Tamara; Reis, Jennifer; Marschalek, Rolf (Juni 2023). „ Wie chromosomale Translokationen Krebs verursachen: Gennähe, Trans-Splicing und DNA-Endverknüpfung“ . iScience . 26 (6) 106900. Bibcode : 2023iSci...26j6900S . doi : 10.1016/j.isci.2023.106900 . PMC 10291325. PMID 37378346 .
- ^ Aplan, Peter D. (Januar 2006). „Ursachen onkogener Chromosomentranslokationen“ . Trends in Genetics . 22 (1): 46–55 . doi : 10.1016/j.tig.2005.10.002 . ISSN 0168-9525 . PMC 1762911. PMID 16257470 .
- ^ „Unfruchtbarkeit“ . www.who.int . Abgerufen am 11. April 2025 .
- ^ Zhang, Hong-Guo; Wang, Rui-Xue; Pan, Yuan; Zhang, Han; Li, Lei-Lei; Zhu, Hai-Bo; Liu, Rui-Zhi (25. Januar 2018). „Bericht über neun Fälle und Literaturübersicht zu infertilen Männern mit balancierten Translokationen des Chromosoms 5“ . Molecular Cytogenetics . 11 (1): 10. doi : 10.1186 / s13039-018-0360-x . ISSN 1755-8166 . PMC 5785882. PMID 29416565 .
- ^ CDC (26. Dezember 2024). „Down-Syndrom“ . Geburtsfehler . Abgerufen am 11. April 2025 .
- ^ a b Philadelphia, The Children's Hospital of. "Translocation Down Syndrome | Children's Hospital of Philadelphia" . www.chop.edu . Abgerufen am 2. April 2025 .
- ^ Gilbert, Scott F. (2000). „Chromosomale Geschlechtsbestimmung bei Säugetieren“ . Entwicklungsbiologie. 6. Auflage . Sinauer Associates.
- ^ „SRY-Gen“ (PDF) . medlineplus.gov .
- ^ „Emanuel-Syndrom: MedlinePlus Genetik“ .
- ^ Gaviria, Anibal; Cadena-Ullauri, Santiago; Cevallos, Francisco; Guevara-Ramirez, Patricia; Ruiz-Pozo, Viviana; Tamayo-Trujillo, Rafael; Paz-Cruz, Elius; Zambrano, Ana Karina (5. September 2022). „Klinische, zytogenetische und genomische Analysen eines ecuadorianischen Patienten mit Klinefelter-Syndrom, rezessiver Hämophilie A und 1;19 chromosomaler Translokation: ein Fallbericht“ . Molekulare Zytogenetik . 15 (1): 40. doi : 10.1186/s13039-022-00618-w . PMC 9446752 . PMID 36064723 .
- ^ „Eine genetische Störung, die Frauen betrifft – Turner-Syndrom – Symptome und Ursachen“ . Mayo Clinic .
- ^ a b Semple CA, Devon RS, Le Hellard S, Porteous DJ (April 2001). „Identifizierung von Genen aus einer mit Schizophrenie assoziierten Translokationsbruchpunktregion“. Genomics . 73 (1): 123–6 . doi : 10.1006/geno.2001.6516 . PMID 11352574 .
- ^ Schaffer, Lisa. (2005) Internationales System für die Nomenklatur der menschlichen Zytogenetik. S. Karger AG. ISBN 978-3-8055-8019-9
- ^ „Charakteristika von Chromosomengruppen: Karyotypisierung“ . rerf.jp. Radiation Effects Research Foundation . Abgerufen am 30. Juni 2014 .
- ^ Zheng, Jie (1. November 2013). „Onkogene Chromosomentranslokationen und menschlicher Krebs (Übersicht)“ . Oncology Reports . 30 (5): 2011–2019 . doi : 10.3892/or.2013.2677 . ISSN 1021-335X . PMID 23970180 .
- ^ a b c d Li JY, Gaillard F, Moreau A, et al. (Mai 1999). „Nachweis der Translokation t(11;14)(q13;q32) beim Mantelzelllymphom mittels Fluoreszenz-in-situ-Hybridisierung“ . Am. J. Pathol . 154 (5): 1449–52 . doi : 10.1016 / S0002-9440(10)65399-0 . PMC 1866594. PMID 10329598 .
- ^ Zheng, Jie (1. November 2013). „Onkogene Chromosomentranslokationen und menschlicher Krebs (Übersicht)“ . Oncology Reports . 30 (5): 2011–2019 . doi : 10.3892/or.2013.2677 . ISSN 1021-335X . PMID 23970180 .
- ^ a b c d e Burtis, Carl A.; Ashwood, Edward R.; Bruns, David E. (16. Dezember 2011). „44. Hämatopoetische Malignome“ . Tietz Lehrbuch der klinischen Chemie und molekularen Diagnostik . Elsevier Health Sciences. S. 1371–1396 . ISBN 978-1-4557-5942-2Abgerufen am 5. November 2012 .
- ^ a b c d e f Kumar, Vinay; Abbas, Abul K.; Fausto, Nelson; Mitchell, Richard Sheppard (2007). „Kapitel 20: Das endokrine System“. Robbins Basic Pathology (8. Aufl.). Philadelphia: Saunders. ISBN 978-1-4160-2973-1Die
- ^ a b Kurzrock R, Kantarjian HM, Druker BJ, Talpaz M (Mai 2003). „Philadelphia-Chromosom-positive Leukämien: von grundlegenden Mechanismen zu molekularen Therapien“. Ann. Intern. Med . 138 (10): 819–30 . doi : 10.7326 / 0003-4819-138-10-200305200-00010 . PMID 12755554. S2CID 25865321 .
- ^ a b Kumar, Vinay; Abbas, Abul K.; Fausto, Nelson; Mitchell, Richard Sheppard (2007). Robbins Basic Pathology (8. Aufl.). Philadelphia: Saunders. S. 626. ISBN 978-1-4160-2973-1Die
- Eykelenboom , Jennifer E.; Briggs, Gareth J.; Bradshaw, Nicholas J.; Soares, Dinesh C.; Ogawa , Fumiaki; Christie, Sheila; Malavasi, Elise LV; Makedonopoulou, Paraskevi; Mackie, Shaun; Malloy, Mary P.; Wear, Martin A.; Blackburn, Elizabeth A.; Bramham, Janice; McIntosh, Andrew M.; Blackwood, Douglas H. (30. April 2012). „ Eine mit Schizophrenie und affektiven Störungen assoziierte t(1;11)-Translokation führt zu aberranten chimären DISC1-Transkripten, die strukturell veränderte, schädliche mitochondriale Proteine kodieren . “ Human Molecular Genetics . 21 (15): 3374–3386 . doi : 10.1093/hmg/dds169 . PMC 3392113 . PMID 22547224 .
- ^ a b c "t(1;12)(q21;p13) ETV6/ARNT" . atlasgeneticsoncology.org . Abgerufen am 12. März 2025 .
- ^ a b c Przybyl, Joanna; Sciot, Raf; Rutkowski, Piotr; Siedlecki, Janusz A.; Vanspauwen, Vanessa; Samson, Ignace; Debiec-Rychter, Maria (Dezember 2012). „Wiederkehrende und neuartige SS18-SSX-Fusionstranskripte beim Synovialsarkom: Beschreibung von drei neuen Fällen“ . Tumorbiologie . 33 (6): 2245–2253 . doi : 10.1007/s13277-012-0486-0 . PMC 3501176 . PMID 22976541 .
- ^ Eckel-Passow, Jeanette E.; Lachance, Daniel H.; Molinaro, Annette M.; Walsh, Kyle M.; Decker, Paul A.; Sicotte, Hugues; Pekmezci, Melike; Reis, Terri; Kosel, Matt L.; Smirnow, Iwan V.; Sarkar, Gobinda; Caron, Alissa A.; Kollmeyer, Thomas M.; Praska, Corinne E.; Chada, Anisha R. (25. Juni 2015). „Gliomgruppen basierend auf 1p/19q-, IDH- und TERT-Promotormutationen in Tumoren“ . Das New England Journal of Medicine . 372 (26): 2499–2508 . doi : 10.1056/NEJMoa1407279 . ISSN 1533-4406 . PMC 4489704 . PMID 26061753 .
- ^ Cairncross, Gregory; Jenkins, Robert (November 2008). „Gliome mit 1p/19q-Kodeletion: auch Oligodendrogliom genannt“. The Cancer Journal . 14 (6): 352–357 . doi : 10.1097/PPO.0b013e31818d8178 . PMID 19060598 .
- Wu , Shuiyan; Lu, Jun; Su, Dongni; Yang, Fan; Zhang, Yongping; Hu, Shaoyan (März 2021). „ Der Vorteil der CAR-T - Zell-Therapie bei akuter lymphatischer Leukämie im Kindesalter mit E2A-HLF - Fusionsgenpositivität: eine Fallserie“ . Translational Pediatrics . 10 (3): 686–691 . doi : 10.21037/tp-20-323 . ISSN 2224-4344 . PMC 8041607. PMID 33880339 .
- Mohamed, Mustafa; Fisher, Cyril; Thway, Khin (Juni 2017). „Niedriggradiges fibromyxoides Sarkom: Klinische, morphologische und genetische Merkmale“. Annals of Diagnostic Pathology . 28 : 60–67 . doi : 10.1016 / j.anndiagpath.2017.04.001 . PMID 28648941 .
Externe Links
 Medien zum Thema Chromosomentranslokationen auf Wikimedia Commons