Die Artiodactyla ( aus dem Altgriechischen ἄρτιος ártios ‚ gerade ‘ und δάκτυλος dáktylos ‚ Finger, Zehe ‘ ) sind eine Ordnung der Plazentatiere . Typischerweise sind sie Huftiere , die ihr Gewicht gleichmäßig auf zwei ( eine gerade Anzahl ) ihrer fünf Zehen tragen ( die dritte und vierte, oft in Form eines Hufs ). Die anderen drei Zehen sind entweder vorhanden, fehlen, verkümmert oder nach hinten gerichtet. Im Gegensatz dazu tragen die meisten Unpaarhufer ihr Gewicht auf einer ungeraden Anzahl der fünf Zehen. Ein weiterer Unterschied zwischen den beiden Ordnungen besteht darin, dass viele Paarhufer (mit Ausnahme der Suina ) pflanzliche Zellulose in einem oder mehreren Magenkammern verdauen , anstatt im Darm (wie die Unpaarhufer). Molekularbiologische Untersuchungen und Fossilienfunde haben gezeigt, dass Wale , Delfine und Schweinswale zu diesem taxonomischen Zweig gehören und am engsten mit Flusspferden verwandt sind . Einige moderne Taxonomen bezeichnen diese Gruppe daher als Cetartiodactyla ( ausgesprochen / sɪˌtɑːrtioʊˈdæktɪlə / ) , während andere die Wale weiterhin unter dem bestehenden Namen Artiodactyla einordnen. Manche Forscher verwenden den Begriff „ Paarhufer “ , um Wale auszuschließen und nur landlebende Paarhufer zu berücksichtigen, wodurch der Begriff paraphyletisch wird .
Zu den rund 270 landlebenden Paarhuferarten zählen Schweine , Pekaris , Flusspferde , Antilopen , Hirsche , Giraffen , Kamele , Lamas , Alpakas , Schafe , Ziegen und Rinder . Viele sind Pflanzenfresser, Schweine hingegen Allesfresser und Wale ausschließlich Fleischfresser. Paarhufer sind auch durch zahlreiche ausgestorbene Gruppen wie Anoplotheren , Cainotherien , Merycoidodonten , Entelodonten , Anthracotherien , Basilosauriden und Palaeomeryciden bekannt . Viele Paarhufer waren für den Menschen von großer Bedeutung in Bezug auf Ernährung, Wirtschaft und Kultur.
Evolutionsgeschichte
Die ältesten Fossilien von Paarhufern stammen aus dem frühen Eozän (vor etwa 53 Millionen Jahren). Da diese Funde fast gleichzeitig in Europa , Asien und Nordamerika auftraten , ist es sehr schwierig, den Ursprung der Paarhufer genau zu bestimmen. Die frühesten Paarhufer hatten keinen signifikanten Einfluss auf die Fortbewegungsvielfalt der Huftiere in Nordamerika, was darauf hindeutet, dass sie basalere Huftiere nicht durch Konkurrenzausschluss verdrängten . [ 1 ] Die ältesten Paarhuferfossilien werden der Familie Diacodexeidae zugeordnet ; [ 2 ] [ 3 ] [ 4 ] ihr bekanntester und am besten erhaltener Vertreter ist Diacodexis . [ 3 ] Es handelte sich um kleine Tiere, manche so klein wie ein Hase , mit schlankem Körperbau, langen Beinen und einem langen Schwanz. Ihre Hinterbeine waren deutlich länger als ihre Vorderbeine. Im frühen bis mittleren Eozän entstanden die Vorfahren der meisten heutigen Säugetiere. [ 5 ]

Zwei ehemals weit verbreitete, heute ausgestorbene Familien der Paarhufer waren die Entelodontidae und die Anthracotheriidae . Die Entelodonten lebten vom mittleren Eozän bis zum frühen Miozän in Eurasien und Nordamerika. Sie hatten einen gedrungenen Körper mit kurzen Beinen und einen massiven Kopf, der durch zwei Höcker am Unterkieferknochen gekennzeichnet war. Die Anthracotherien hingegen waren groß und schweineähnlich gebaut , mit kurzen Beinen und einer länglichen Schnauze . Diese Gruppe erschien vom mittleren Eozän bis zum Pliozän und verbreitete sich in Eurasien, Afrika und Nordamerika. Man geht davon aus, dass die Anthracotherien die Vorfahren der Flusspferde sind und vermutlich ebenfalls eine aquatische Lebensweise führten. Flusspferde erschienen im späten Miozän und besiedelten Afrika und Asien, erreichten aber nie Amerika. [ 5 ]
Kamele ( Tylopoda ) waren während großer Teile des Känozoikums auf Nordamerika beschränkt; frühe Formen wie die Cainotheriidae besiedelten Europa. Zu den nordamerikanischen Kamelen gehörten Gruppen wie die gedrungenen, kurzbeinigen Merycoidodontidae . Sie traten erstmals im späten Eozän auf und entwickelten in Nordamerika eine große Artenvielfalt. Erst im späten Miozän oder frühen Pliozän wanderten sie von Nordamerika nach Eurasien ein. Die nordamerikanischen Arten starben vor etwa 10.000 Jahren aus. [ 6 ]
Suina (einschließlich Schweine ) gibt es seit dem Eozän. Im späten Eozän oder Oligozän blieben zwei Familien in Eurasien und Afrika; die Pekaris , die in der Alten Welt ausstarben , existieren heute nur noch in Amerika .
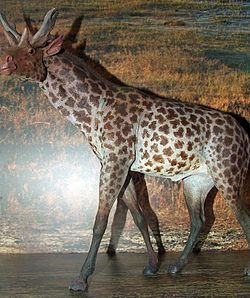
Südamerika wurde erst im Pliozän von landlebenden Paarhufern besiedelt , nachdem sich vor etwa drei Millionen Jahren die Landbrücke am Isthmus von Panama gebildet hatte. Mit nur Pekaris, Lamas und verschiedenen Arten von Hirschen weist Südamerika im Vergleich zu anderen Kontinenten – mit Ausnahme von Australien, das keine (landlebenden) Arten besitzt, und der Antarktis, die überhaupt keine landlebenden Säugetiere aufweist – vergleichsweise wenige Paarhuferfamilien auf.

Taxonomie und Phylogenie

Die Klassifizierung der Paarhufer war Gegenstand hitziger Debatten, da sich die im Meer lebenden Wale aus den landlebenden Paarhufern entwickelten. Einige semiaquatische Paarhufer ( Flusspferde ) sind enger mit den im Meer lebenden Walen verwandt als mit anderen Paarhufern. [ 7 ]
Die phylogenetische Klassifikation erkennt nur monophyletische Taxa an; das heißt, Gruppen, die von einem gemeinsamen Vorfahren abstammen und alle seine Nachkommen umfassen. Um dieses Problem zu lösen, werden die traditionelle Ordnung Artiodactyla und die Unterordnung Cetacea mitunter in das umfassendere Taxon Cetartiodactyla eingegliedert. [ 7 ] Ein alternativer Ansatz besteht darin, sowohl landlebende Paarhufer als auch im Meer lebende Wale in ein revidiertes Artiodactyla-Taxon aufzunehmen. [ 5 ]
Einstufung
Ordnung Artiodactyla / Klade Cetartiodactyla [ 5 ] [ 8 ]
- Basal und incertae sedis
- Familie † Diacodexeidae
- Familie † Dichobunidae
- Familie † Cebochoeridae
- Familie † Leptochoeridae
- Familie † Homacodontidae
- Überfamilie Anoplotheroidea (möglicherweise Tylopoda oder Stamm-Ruminantia)
- Familie † Mixtotheriidae
- Familie † Robiacinidae
- Familie † Cainotheriidae
- Familie † Anoplotheriidae
- Familie † Amphimerycidae ?
- Familie † Xiphodontidae ?
- Überfamilie Merycoidodontoidea (Oreodonten, möglicherweise Tylopoda oder Stamm-Rumänier)
- Familie † Merycoidodontidae
- Familie † Agriochoeridae
- Familie † Protoceratidae (möglicherweise Tylopoda oder Stamm-Wiederkäuer)
- Unterordnung Tylopoda
- Klade Artiofabula
- Unterordnung Suina
- Familie Suidae : Schweine (19 Arten)
- Familie Tayassuidae : Pekaris (4 Arten)
- Familie † Sanitheriidae
- Familie † Doliochoeridae
- Klade Cetruminantia
- Klade Cetancodontamorpha
- Gattung † Andrewsarchus ?
- Familie † Helohyidae ?
- Familie † Entelodontidae ?
- Unterordnung Whippomorpha
- Infraordnung Ancodonta
- Familie † Choeropotamidae
- Familie † Anthracotheriidae – paraphyletisch zu Hippopotamidae
- Familie Hippopotamidae : Flusspferde (zwei Arten)
- Klade Cetaceamorpha
- Familie † Raoellidae
- Infraordnung Cetacea : Wale (etwa 90 Arten)
- Parvorder † Archaeoceti
- Familie † Pakicetidae
- Familie † Ambulocetidae
- Familie † Remingtonocetidae
- Familie † Protocetidae – paraphyletisch
- Familie † Basilosauridae
- Klade Neoceti
- Parvorder Mysticeti : Bartenwale
- Überfamilie Balaenoidea: Glattwale
- Familie Balaenidae : Große Glattwale (vier Arten)
- Familie Cetotheriidae : Zwergglattwal (eine Art)
- Überfamilie Balaenopteroidea: große Bartenwale
- Familie Balaenopteridae : Schlankrücken-Furchenwale und Buckelwale (acht Arten)
- Familie Eschrichtiidae : Grauwal (eine Art)
- Überfamilie Balaenoidea: Glattwale
- Parvorder Odontoceti : Zahnwale
- Überfamilie Delphinoidea : Hochseedelfine , Schweinswale und andere
- Familie Delphinidae : Ozeanische Echte Delfine (38 Arten)
- Familie Monodontidae : Arktische Wale ; Narwal und Beluga (zwei Arten)
- Familie Phocoenidae : Schweinswale (sechs Arten)
- Überfamilie Physeteroidea : Pottwale
- Familie Kogiidae : Kleine Pottwale (zwei Arten)
- Familie Physeteridae : Pottwal (eine Art)
- Überfamilie Platanistoidea : Flussdelfine
- Familie Iniidae : Südamerikanische Flussdelfine (zwei Arten)
- Familie Lipotidae : Chinesischer Flussdelfin (eine Art, möglicherweise ausgestorben)
- Familie Platanistidae : Südasiatischer Flussdelfin (eine Art)
- Familie Pontoporiidae : La-Plata-Delfin (eine Art)
- Überfamilie Ziphioidea
- Familie Ziphiidae : Schnabelwale (22 Arten)
- Überfamilie Delphinoidea : Hochseedelfine , Schweinswale und andere
- Parvorder Mysticeti : Bartenwale
- Parvorder † Archaeoceti
- Infraordnung Ancodonta
- Gesamtgruppe Wiederkäuer
- Unterordnung Wiederkäuer
- Infraorder Tragulina (paraphyletisch)
- Familie † Archaeomerycidae
- Familie † Leptomerycidae
- Familie † Hypertragulidae
- Familie † Praetragulidae
- Familie † Lophiomerycidae
- Familie † Gelocidae
- Familie † Bachitheriidae
- Familie Tragulidae : Zwergziegen (zehn Arten)
- Infraordnung Pecora
- Familie Antilocapridae : Gabelbock (eine Art)
- Familie † Hoplitomerycidae
- Überfamilie Giraffoidea
- Familie † Palaeomerycidae
- Familie † Climacoceratidae
- Familie Giraffidae : Okapi und vier Giraffenarten ( insgesamt fünf Arten)
- Überfamilie Cervoidea
- Familie † Dromomerycidae ?
- Familie Cervidae : Hirsche (49 Arten)
- Überfamilie Bovoidea
- Infraorder Tragulina (paraphyletisch)
- Unterordnung Wiederkäuer
- Klade Cetancodontamorpha
- Unterordnung Suina
Forschungsgeschichte
In den 1990er Jahren nutzte die biologische Systematik neben Morphologie und Fossilien auch die Molekularbiologie zur Klassifizierung von Organismen . Die Molekularbiologie sequenziert die DNA und RNA eines Organismus und vergleicht die Sequenz mit der anderer Lebewesen; je ähnlicher die Sequenzen sind, desto enger ist die Verwandtschaft. Der Vergleich des genetischen Materials von Paarhufern und Walen hat gezeigt, dass die nächsten lebenden Verwandten von Walen und Flusspferden die paraphyletische Gruppe der Artiodactyla sind. [ 9 ] [ 10 ]
Dan Graur und Desmond Higgins gehörten zu den Ersten, die zu diesem Schluss kamen und veröffentlichten dazu eine Arbeit im Jahr 1994. [ 11 ] Allerdings erkannten sie Flusspferde nicht an und klassifizierten die Wiederkäuer als Schwestergruppe der Wale. Nachfolgende Studien belegten die enge Verwandtschaft zwischen Flusspferden und Walen; diese Studien basierten auf Casein-Genen [ 9 ] , SINEs [ 12 ] , Fibrinogen- Sequenzen [ 13 ] , Cytochrom- und rRNA- Sequenzen [ 7 , 14 ] , IRBP- (und vWF- )Gensequenzen [ 15 ] , adrenergen Rezeptoren [ 16 ] und Apolipoproteinen [ 10 ] .
Im Jahr 2001 wurden in Pakistan die fossilen Gliedmaßen eines Pakicetus (eines amphibienartigen Wals von der Größe eines Wolfes) und eines Ichthyolestes (eines frühen Wals von der Größe eines Fuchses) gefunden. Beide gehörten zu den Archaeoceten („Urwalen“) und lebten vor etwa 48 Millionen Jahren (im Eozän). Diese Funde zeigten, dass Archaeoceten stärker an das Landleben angepasst waren als bisher angenommen und dass die besondere Konstruktion des Sprungbeins mit einer doppelt gerollten Gelenkfläche, die man zuvor für ein Merkmal von Paarhufern gehalten hatte, auch bei frühen Walen vorkam. [ 17 ] Die Mesonychier , eine andere Huftierart, wiesen diese besondere Konstruktion des Sprungbeins nicht auf und hatten daher vermutlich nicht dieselben Vorfahren wie die Wale.

Die ältesten Wale stammen aus dem frühen Eozän (vor 53 Millionen Jahren), während das älteste bekannte Flusspferd erst aus dem Miozän (vor 15 Millionen Jahren) datiert. Die Flusspferde stammen von den Anthracotherien ab, einer Familie semiaquatischer und terrestrischer Paarhufer, die im späten Eozän auftraten und vermutlich kleinen oder schmalköpfigen Flusspferden ähnelten. Die Forschung konzentriert sich daher auf die Anthracotherien (Familie Anthracotheriidae); ein Exemplar aus dem Eozän bis Miozän wurde bei seiner Entdeckung im 19. Jahrhundert als „flusspferdähnlich“ beschrieben. Eine Studie aus dem Jahr 2005 zeigte, dass Anthracotherien und Flusspferde sehr ähnliche Schädel besaßen , sich aber in den Anpassungen ihrer Zähne unterschieden. Dennoch ging man davon aus, dass Wale und Anthracotherien von einem gemeinsamen Vorfahren abstammten und dass sich Flusspferde aus den Anthracotherien entwickelten. Eine 2015 veröffentlichte Studie bestätigte dies, zeigte aber auch, dass Flusspferde von älteren Anthracotherien abstammen. [ 14 ] [ 18 ] Die neu eingeführte Gattung Epirigenys aus Ostafrika ist somit die Schwestergruppe der Flusspferde.
Historische Klassifizierung der Paarhufer
Linnaeus postulierte bereits Mitte des 18. Jahrhunderts eine enge Verwandtschaft zwischen Kamelen und Wiederkäuern. [ 19 ] Henri de Blainville erkannte die ähnliche Anatomie der Gliedmaßen von Schweinen und Flusspferden, und der britische Zoologe Richard Owen prägte 1848 den Begriff „Paarhufer“ und den wissenschaftlichen Namen „Artiodactyla“. [ 20 ]
Die innere Morphologie (hauptsächlich Magen und Backenzähne ) diente der Klassifizierung. Schweine (einschließlich der Suinen) und Flusspferde besitzen Backenzähne mit gut entwickelten Wurzeln und einen einfachen, der Nahrung verdauenden Magen. Daher wurden sie als Nichtwiederkäuer (Schweine) zusammengefasst. Alle anderen Paarhufer besitzen Backenzähne mit selenodonter Konstruktion (halbmondförmige Höcker) und sind wiederkäuend , was das Hochwürgen und erneute Kauen der Nahrung erfordert. Unterschiede in der Magenkonstruktion deuten darauf hin, dass sich das Wiederkäuen bei Tylopoden und Wiederkäuern unabhängig voneinander entwickelt hat; daher wurden die Tylopoden aus den Ruminantia ausgeschlossen . [ 18 ]
Die am Ende des 20. Jahrhunderts weithin akzeptierte Taxonomie lautete: [ 18 ]


Historische Klassifizierung der Wale

Moderne Wale sind hochgradig an das Leben im Meer angepasste Lebewesen, die morphologisch wenig mit Landsäugetieren gemein haben. Ihre Ähnlichkeit mit anderen Meeressäugetieren wie Robben und Seekühen ist auf konvergente Evolution zurückzuführen . Sie stammen jedoch ursprünglich von Landsäugetieren ab. Lange Zeit galten Mesonychier , große Fleischfresser aus dem frühen Känozoikum ( Paläozän und Eozän ), als ihre wahrscheinlichsten Vorfahren. Sie besaßen Hufe statt Krallen . Ihre Backenzähne waren an eine fleischfressende Ernährung angepasst und ähnelten den Zähnen heutiger Zahnwale . Im Gegensatz zu anderen Säugetieren wiesen sie einen einheitlichen Aufbau auf. [ 21 ]
Die damals vermuteten Verwandtschaftsverhältnisse waren folgende: [ 18 ] [ 22 ]
| Paraxonia |
| ||||||


Innere Systematik
Molekulargenetische und morphologische Befunde legen nahe, dass die Paarhufer (Artiodactyla) in ihrer traditionellen Definition paraphyletisch in Bezug auf die Wale (Cetacea) sind. Die Wale sind tief in die Paarhufer eingebettet; beide Gruppen bilden zusammen ein monophyletisches Taxon, für das mitunter der Name Cetartiodactyla verwendet wird. Die moderne Nomenklatur unterteilt die Paarhufer (Artiodactyla bzw. Cetartiodactyla) in vier Untergruppen: Kamele (Tylopoda), Schweine und Pekaris (Suina), Wiederkäuer (Ruminantia) sowie Flusspferde und Wale (Whippomorpha).
Die vermuteten Abstammungslinien innerhalb der Artiodactyla können im folgenden Kladogramm dargestellt werden : [ 23 ] [ 24 ] [ 25 ] [ 26 ] [ 27 ]
| Paarhufer |
| ||||||||||||||||||||||||||||||

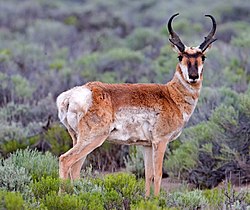
Die vier zusammengefassten Artiodactyla-Taxa werden in zehn rezente Familien unterteilt: [ 28 ].
- Die Kameliden ( Tylopoda ) umfassen nur eine Familie, die Camelidae . Dies ist eine artenarme Unterordnung der Paarhufer nordamerikanischer Herkunft [ 29 ] , die gut an extreme Lebensräume angepasst ist; die Dromedare und Trampeltiere in den Wüsten der Alten Welt und die Guanakos , Lamas, Vikunjas und Alpakas in den Hochgebirgsregionen Südamerikas.
- Die schweineähnlichen Wesen ( Suina ) bestehen aus zwei Familien:
- Die Schweine ( Suidae ) sind auf die Alte Welt beschränkt. Dazu gehören das Wildschwein und die domestizierte Form, das Hausschwein .
- Die Pekaris ( Tayassuidae ) sind nach Drüsen an ihrem Bauch benannt und stammen aus Mittel- und Südamerika.
- Die Wiederkäuer ( Ruminantia ) bestehen aus sechs Familien:
- Die Zwerghirsche ( Tragulidae ) sind die kleinsten und ursprünglichsten Paarhufer; sie bewohnen die Wälder Afrikas und Asiens.
- Die giraffenähnlichen Tiere ( Giraffidae ) bestehen aus zwei Arten, der Giraffe und dem Okapi .
- Das Moschustier ( Moschidae ) ist in Ostasien heimisch.
- Die Antilocapriden ( Antilocapridae ) Nordamerikas umfassen nur eine noch existierende Art, den Gabelbock .
- Die Hirsche ( Cervidae ) umfassen etwa 45 Arten, die sich durch ein Geweihpaar ( in der Regel nur bei den Männchen) auszeichnen. Sie sind in Europa, Asien und Amerika weit verbreitet. Zu dieser Gruppe gehören unter anderem Rothirsche , Elche , Rehe , Muntjaks und Rentiere (Karibus).
- Die Hornträger ( Bovidae ) sind die artenreichste Familie. Zu ihnen gehören unter anderem Rinder , Schafe , Ziegen und Antilopen .
- Zu den Whippomorpha gehören Flusspferde und Wale:
- Die Flusspferde ( Hippopotamidae ) umfassen zwei Arten, das Flusspferd und das Zwergflusspferd .
- Die Wale umfassen 72 Arten in zwei Unterordnungen, die Zahnwale ( Odontoceti ) und die Bartenwale ( Mysticeti ).
Obwohl Hirsche, Moschustiere und Gabelböcke traditionell als Cerviden (Cervioidea) zusammengefasst wurden, liefern molekulare Studien unterschiedliche und widersprüchliche Ergebnisse, sodass die Frage der phylogenetischen Systematik der Infraordnung Pecora (der gehörnten Wiederkäuer) vorerst noch nicht beantwortet ist.

Anatomie

Abgesehen von Walen sind Paarhufer im Allgemeinen Vierfüßer . Man unterscheidet zwei Hauptkörpertypen: Schweine und Flusspferde zeichnen sich durch einen gedrungenen Körperbau, kurze Beine und einen großen Kopf aus; Kamele und Wiederkäuer hingegen sind schlanker und haben lange Beine. Die Größe variiert beträchtlich; das kleinste Tier, das Hirschferkel, erreicht oft nur eine Körperlänge von 45 Zentimetern und ein Gewicht von 1,5 Kilogramm. Das größte Tier, das Flusspferd, kann bis zu 5 Meter lang und 4,5 Tonnen schwer werden, und die Giraffe kann bis zu 5,5 Meter hoch und 4,7 Meter lang werden. Alle Paarhufer weisen einen gewissen Geschlechtsdimorphismus auf : Die Männchen sind durchweg größer und schwerer als die Weibchen. Bei den meisten Hirscharten tragen nur die Männchen ein Geweih, und die Hörner von Rindern sind bei Weibchen meist klein oder fehlen ganz. Männliche indische Antilopen haben ein deutlich dunkleres Fell als die Weibchen. Bei Walen haben sich die beiden Vorderbeine zu Flossen entwickelt, die Hinterbeine sind nicht mehr sichtbar; [ 30 ] die größten Wale, bis zu 30 m lang, sind deutlich größer als alle anderen Paarhufer.
Fast alle Paarhufer besitzen Fell, mit Ausnahme des nahezu haarlosen Flusspferds. Felllänge und -farbe variieren je nach Lebensraum. Arten in kühleren Regionen können im Sommer ihr Fell abwerfen. Tarnfelle weisen gelbe, graue, braune oder schwarze Farbtöne auf. Wale sind bis auf einige wenige kleine Schnurrhaare im Gesicht weitgehend haarlos . [ 30 ]
Glieder

Paarhufer verdanken ihren Namen der geraden Anzahl ihrer Zehen (zwei oder vier). Bei einigen Pekaris ist die Zehenzahl an den Hinterbeinen auf drei reduziert. Die Mittelachse des Beins liegt zwischen der dritten und vierten Zehe. Die erste Zehe fehlt bei modernen Paarhufern und findet sich nur noch bei ausgestorbenen Gattungen. Die zweite und fünfte Zehe sind je nach Art unterschiedlich angepasst.
 Flusspferde haben alle vier Zehen nach außen gerichtet.
 Bei Schweinen und anderen Zweihufern sind die zweite und fünfte Zehe nach hinten gerichtet.
 Wenn Kamele nur zwei Zehen haben, wandeln sich die Krallen in Nägel um.
Wenn Kamele nur zwei Zehen besitzen, wandeln sich die Krallen in Nägel um (beide bestehen aus Keratin , Krallen sind jedoch gebogen und spitz, Nägel hingegen flach und stumpf). [ 31 ] Diese Krallen bestehen aus drei Teilen: der Platte (oben und seitlich), der Sohle (unten) und dem Ballen (hinten). Im Allgemeinen sind die Krallen der Vorderbeine breiter und stumpfer als die der Hinterbeine und stehen weiter auseinander. Abgesehen von Kamelen setzen alle Paarhufer nur die Spitze des vordersten Zehenglieds auf den Boden. [ 32 ]

Bei Paarhufern sind die Knochen des Stylopodiums (Oberarmknochen) und der Zygopodien (Schienbein und Wadenbein) in der Regel verlängert. Die Beinmuskulatur ist überwiegend lokalisiert, wodurch Paarhufer oft sehr schlanke Beine besitzen. Ein Schlüsselbein fehlt, und das Schulterblatt ist sehr beweglich und schwingt beim Laufen für zusätzliche Mobilität hin und her. Die spezielle Beinkonstruktion verhindert die Rotation der Beine, was für größere Stabilität bei hohen Geschwindigkeiten sorgt. Darüber hinaus besitzen viele kleinere Paarhufer einen sehr flexiblen Körper, der durch die Vergrößerung ihrer Schrittlänge zu ihrer Geschwindigkeit beiträgt.
Kopf
Viele Paarhufer besitzen einen relativ großen Kopf. Der Schädel ist länglich und eher schmal; das Stirnbein ist im hinteren Bereich vergrößert und verdrängt das Scheitelbein , das nur einen Teil der Schädelseite bildet (insbesondere bei Wiederkäuern).
Hörner und Geweihe

Vier Familien der Paarhufer besitzen Schädelanhänge. Diese Pecora (mit Ausnahme des Moschustiers ) besitzen einen von vier Typen von Schädelanhängen: echte Hörner, Geweihe , Ossicone oder Gabelböcke . [ 33 ]
Echte Hörner besitzen einen Knochenkern, der von einer permanenten Keratinschicht umgeben ist, und kommen ausschließlich bei Hornträgern (Bovidae) vor . Geweihe sind knöcherne Strukturen, die jährlich abgeworfen und ersetzt werden; sie kommen bei Hirschen (Familie Cervidae ) vor. Sie wachsen aus einem permanenten Auswuchs des Stirnbeins, dem sogenannten Geweihstiel, und können verzweigt sein, wie beim Weißwedelhirsch ( Odocoileus virginianus ), oder schaufelförmig [ 34 ] , wie beim Elch ( Alces alces ). Ossicone sind permanente Knochenstrukturen, die im Laufe des Lebens eines Tieres mit dem Stirn- oder Scheitelbein verschmelzen und nur bei Giraffen ( Giraffidae ) vorkommen . Gabelböcke , die zwar insofern Hörnern ähneln, als auch bei ihnen Keratinschichten einen permanenten Knochenkern umhüllen, werfen ihr Geweih jährlich ab. [ 35 ]
Alle diese Schädelanhängsel können der Imponiergehabe, dem Kampf um das Paarungsrecht und der Verteidigung dienen. In fast allen Fällen sind sie geschlechtsspezifisch und kommen oft nur bei den Männchen vor. Eine Ausnahme bildet die Art Rangifer tarandus , in Europa als Rentier und in Nordamerika als Karibu bekannt, bei der beide Geschlechter jährlich ein Geweih ausbilden können, wobei das Geweih der Weibchen jedoch typischerweise kleiner und nicht immer vorhanden ist.
Zähne
| Zahnformel | ICH | C | P | M | |
|---|---|---|---|---|---|
| 30–44 | = | 0–3 | 0–1 | 2–4 | 3 |
| 1–3 | 1 | 2–4 | 3 | ||
Bei den Paarhufern lassen sich zwei Trends hinsichtlich der Zähne beobachten. Schweine und Flusspferde besitzen eine relativ große Anzahl an Zähnen (manche Schweine haben bis zu 44); ihr Gebiss ist besser an das für Allesfresser typische, quetschende Kauen angepasst . Kamele und Wiederkäuer haben weniger Zähne; häufig weisen sie ein Diastema gyné auf , eine Zahnlücke, in der die Backenzähne zum Zerkleinern von Pflanzenmaterial angeordnet sind.
Bei Wiederkäuern sind die Schneidezähne oft reduziert und fehlen im Oberkiefer vollständig . Die Eckzähne sind bei der Suina vergrößert und stoßzahnartig und dienen zum Graben und zur Verteidigung. Bei Wiederkäuern sind die oberen Eckzähne der Männchen vergrößert und werden bei bestimmten Arten (Maushirsch, Moschustier, Wasserreh ) als Waffe eingesetzt; Arten mit frontalen Waffen besitzen in der Regel keine oberen Eckzähne. Die unteren Eckzähne der Wiederkäuer ähneln den Schneidezähnen, sodass diese Tiere acht einheitliche Zähne im vorderen Bereich des Unterkiefers aufweisen .
Die Backenzähne von Schweinen weisen nur wenige Höcker auf. Im Gegensatz dazu besitzen Kamele und Wiederkäuer halbmondförmige Höcker ( Selenodonten ).
Die Zähne der Paarhufer weisen eine signifikante intraspezifische Variation auf, wobei die Breite des dritten Molaren (M3 ) und die Länge des ersten Molaren (M1 ) die häufigsten Variationen darstellen. Auch die Prämolarenreihen zeigen Variationen, da diese Zähne zur Replikation, Rotation und zum Fehlen neigen. [ 36 ]
Sinne
Paarhufer besitzen einen gut entwickelten Geruchs- und Hörsinn. Im Gegensatz zu vielen anderen Säugetieren ist ihr Sehvermögen schwach ausgeprägt, und sie können bewegte Objekte viel besser erkennen als unbewegliche. Ähnlich wie bei vielen anderen Beutetieren befinden sich ihre Augen seitlich am Kopf, was ihnen ein nahezu uneingeschränktes Sichtfeld ermöglicht.
Verdauungssystem

Wiederkäuer (Ruminantia) wiederkäuen ihre Nahrung, indem sie sie hochwürgen und erneut zerkauen. Ihr Maul besitzt oft zusätzliche Speicheldrüsen , und die Mundschleimhaut ist häufig stark verhornt, um Verletzungen durch harte Pflanzenteile zu vermeiden und den Transport grob zerkauter Nahrung zu erleichtern. Ihr Magen ist in drei bis vier Abschnitte unterteilt: Pansen , Netzmagen , Blättermagen und Labmagen . [ 37 ] Nach der Nahrungsaufnahme wird die Nahrung im Pansen und Netzmagen mit Speichel vermischt und trennt sich in feste und flüssige Bestandteile. Die festen Bestandteile verklumpen zu einem Bolus (auch Wiederkäu genannt ); dieser wird durch Kontraktionen des Netzmagens bei geschlossenem Kehlkopf hochgewürgt . Sobald der Bolus ins Maul gelangt, wird die Flüssigkeit mit der Zunge herausgepresst und wieder geschluckt. Der Bolus wird langsam zerkaut, um ihn vollständig mit Speichel zu vermischen und aufzuspalten. Aufgenommene Nahrung gelangt in den Gärraum (Pansen und Netzmagen), wo sie durch rhythmische Kontraktionen in ständiger Bewegung gehalten wird. Zelluloseabbauende Mikroorganismen ( Bakterien , Protozoen und Pilze ) produzieren Zellulase , die zum Abbau der in Pflanzenmaterial enthaltenen Zellulose benötigt wird. [ 37 ] Diese Form der Verdauung bietet zwei Vorteile: Pflanzen, die für andere Arten unverdaulich sind, können verdaut und verwertet werden, und die Dauer der eigentlichen Nahrungsaufnahme wird verkürzt; das Tier verbringt nur kurze Zeit im Freien mit dem Kopf am Boden; das Wiederkäuen kann später in einem geschützten Bereich erfolgen. [ 38 ]

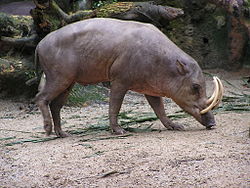
Tylopoda (Kamele, Lamas und Alpakas) und Hirschferkel besitzen dreikammerige Mägen, während die übrigen Wiederkäuer vierkammerige Mägen haben. Die Belastung durch ein schweres Verdauungssystem führte zu einem erhöhten Selektionsdruck hin zu Gliedmaßen, die es den Tieren ermöglichen, schnell vor Raubtieren zu fliehen. [ 39 ] Die meisten Arten der Suina besitzen einen einfachen, zweikammerigen Magen, der eine omnivore Ernährung ermöglicht. Die Babirusa hingegen ist ein Pflanzenfresser [ 37 ] und besitzt zusätzliche Oberkieferzähne , die das Zerkleinern von Pflanzenmaterial ermöglichen. Der Großteil der Fermentation findet mithilfe zellulolytischer Mikroorganismen im Blinddarm des Dickdarms statt . Pekaris besitzen einen komplexen, vierkammerigen Magen. [ 38 ] In ihrem Vormagen findet eine mikrobielle Fermentation statt, und er weist einen hohen Gehalt an flüchtigen Fettsäuren auf ; es wird vermutet, dass ihr komplexer Vormagen dazu dient, die Verdauungspassage zu verlangsamen und die Verdauungseffizienz zu steigern. [ 38 ] Flusspferde besitzen einen dreikammerigen Magen und sind keine Wiederkäuer. Sie fressen jede Nacht etwa 68 Kilogramm Gras und andere Pflanzen. Dabei legen sie Strecken von bis zu 32 Kilometern zurück, um Nahrung zu finden, die sie mithilfe von Mikroben verdauen, die Cellulase produzieren. Ihre nächsten lebenden Verwandten, die Wale , sind obligate Fleischfresser .
Im Gegensatz zu anderen Paarhufern besitzen Schweine einen einfachen, sackförmigen Magen . [ 37 ] Einige Paarhufer, wie beispielsweise Weißwedelhirsche , besitzen keine Gallenblase . [ 40 ]
Urogenitalsystem


Die Penisse der Paarhufer sind im Ruhezustand S-förmig und liegen in einer Tasche unter der Bauchhaut. [ 41 ] Die Schwellkörper sind nur schwach entwickelt; eine Erektion bewirkt hauptsächlich eine Verlängerung dieser Krümmung, was zu einer Verlängerung, aber nicht zu einer Verdickung des Penis führt . Wale besitzen ähnliche Penisse. [ 42 ] Bei einigen Paarhufern enthält der Penis eine Struktur, die als Urethralfortsatz [ 43 ] [ 44 ] [ 45 ] oder Wurmfortsatz des Penis [ 46 ] bezeichnet wird .
Die Hoden befinden sich im Hodensack und somit außerhalb der Bauchhöhle . Die Eierstöcke vieler Weibchen wandern ähnlich wie die Hoden vieler Männchen in die Tiefe und liegen nahe dem Beckeneingang auf Höhe des vierten Lendenwirbels . Die Gebärmutter besitzt zwei Hörner ( Uterus bicornis ). [ 42 ]
Andere

Die Anzahl der Milchdrüsen ist variabel und korreliert, wie bei allen Säugetieren, mit der Wurfgröße . Schweine, die die größte Wurfgröße aller Paarhufer aufweisen, besitzen zwei Zitzenreihen, die sich von der Achselhöhle bis zur Leistengegend erstrecken. In den meisten Fällen haben Paarhufer jedoch nur ein oder zwei Zitzenpaare. Bei einigen Arten bilden diese ein Euter in der Leistengegend.
In praktisch allen Arten sind in der Haut Drüsen vorhanden, die sich an verschiedenen Stellen befinden können, zum Beispiel in den Augen, hinter den Hörnern, am Hals oder Rücken, an den Füßen oder in der Analregion.
Paarhufer besitzen ein Carotis-Rete -Wärmeaustauschsystem, das es ihnen – im Gegensatz zu Unpaarhufern, denen dieses fehlt – ermöglicht, ihre Gehirntemperatur unabhängig von der Körpertemperatur zu regulieren. Es wird argumentiert, dass dessen Vorhandensein den größeren Erfolg der Paarhufer im Vergleich zu den Unpaarhufern bei der Anpassung an unterschiedliche Umgebungen vom Polarkreis bis hin zu Wüsten und tropischen Savannen erklärt. [ 47 ]
Lebensstil
Verbreitung und Lebensraum
Paarhufer sind mit Ausnahme Ozeaniens und der Antarktis in fast allen Teilen der Welt heimisch . Der Mensch hat verschiedene Paarhuferarten weltweit als Jagdtiere eingeführt. [ 48 ] Paarhufer bewohnen nahezu jeden Lebensraum, von tropischen Regenwäldern und Steppen bis hin zu Wüsten und Hochgebirgen . Die größte Artenvielfalt findet sich in offenen Lebensräumen wie Grasland und lichten Wäldern.
Soziales Verhalten

Das Sozialverhalten von Paarhufern variiert je nach Art. Im Allgemeinen besteht die Tendenz, sich zu größeren Gruppen zusammenzuschließen, manche leben aber auch einzeln oder paarweise. Bei Arten, die in Gruppen leben, herrscht oft eine Hierarchie , sowohl unter Männchen als auch unter Weibchen. Einige Arten leben auch in Haremsgruppen mit einem Männchen, mehreren Weibchen und deren gemeinsamen Nachkommen. Bei anderen Arten bleiben Weibchen und Jungtiere zusammen, während die Männchen Einzelgänger sind oder in Junggesellengruppen leben und nur während der Paarungszeit Weibchen suchen .
Viele Paarhufer sind territorial und markieren ihr Revier beispielsweise mit Drüsensekreten oder Urin . Neben den ganzjährig ortstreuen Arten gibt es auch Tiere, die saisonal wandern .
Es gibt tagaktive , dämmerungsaktive und nachtaktive Paarhufer. Bei manchen Arten variiert das Wachheitsmuster mit der Jahreszeit oder dem Lebensraum.
Fortpflanzung und Lebenserwartung
Im Allgemeinen weisen Paarhufer lange Tragzeiten , kleinere Würfe und besser entwickelte Jungtiere auf. Wie bei vielen anderen Säugetieren gibt es in gemäßigten und polaren Regionen eine feste Paarungszeit , während sich die Arten in tropischen Gebieten ganzjährig fortpflanzen. Sie praktizieren Polygynie , das heißt, ein Männchen paart sich mit mehreren Weibchen und unterdrückt so jegliche Konkurrenz.

Die Tragzeit variiert: Bei Schweinen, Hirschen und Moschustieren beträgt sie vier bis fünf Monate, bei Flusspferden, Hirschen und Rindern sechs bis zehn Monate, bei Kamelen zehn bis dreizehn Monate und bei Giraffen vierzehn bis fünfzehn Monate. Die meisten bringen ein oder zwei Junge zur Welt, manche Schweine können aber bis zu zehn Junge gebären.
Die Neugeborenen sind Nestflüchter (sie kommen relativ reif zur Welt), haben offene Augen und sind behaart (mit Ausnahme der haarlosen Flusspferde). Junge Hirsche und Wildschweine haben ein gestreiftes oder geflecktes Fell; dieses Muster verschwindet mit zunehmendem Alter. Die Jungtiere mancher Arten verbringen ihre ersten Wochen mit der Mutter an einem sicheren Ort, wo andere schon nach wenigen Stunden oder Tagen der Herde folgen.
Die Lebenserwartung liegt typischerweise bei zwanzig bis dreißig Jahren; wie bei vielen Säugetieren haben kleinere Arten oft eine kürzere Lebensspanne als größere. Die Paarhufer mit der längsten Lebenserwartung sind Flusspferde, Kühe und Kamele, die 40 bis 50 Jahre alt werden können.
Raubtiere und Parasiten
Paarhufer haben je nach Größe und Lebensraum unterschiedliche natürliche Feinde . Zu ihren natürlichen Feinden zählen verschiedene Fleischfresser , darunter Großkatzen ( Löwen , Tiger und ihre Verwandten) und Bären . Weitere Fressfeinde sind Krokodile , Wölfe und Hunde , große Greifvögel sowie – insbesondere bei kleinen Arten und Jungtieren – große Schlangen . Wale und Delfine (Cetaceen) können unter anderem von Haien, Eisbären und anderen Walarten gejagt werden; zu Letzteren gehört der Orca, der Spitzenprädator der Ozeane. [ 49 ]
Zu den Parasiten zählen Nematoden , Dasselfliegen , Flöhe , Läuse oder Saugwürmer , die jedoch nur bei starkem Befall zu schwächenden Auswirkungen führen.
Interaktionen mit Menschen
Domestizierung

Paarhufer wurden von frühen Menschen aus verschiedenen Gründen gejagt: wegen ihres Fleisches und Fells sowie um ihre Knochen und Zähne als Waffen oder Werkzeuge zu verwenden. Ihre Domestizierung begann um 8000 v. Chr. Bis heute haben Menschen Ziegen , Schafe , Rinder , Kamele, Lamas, Alpakas und Schweine domestiziert . Anfänglich dienten Nutztiere hauptsächlich der Nahrungsgewinnung, ab etwa 3000 v. Chr. wurden sie jedoch auch für Arbeitstätigkeiten eingesetzt. [ 39 ] Es gibt eindeutige Belege dafür, dass Antilopen vor 2 Millionen Jahren in der Olduvai-Schlucht , einem Teil des Großen Afrikanischen Grabenbruchs , als Nahrungsquelle dienten . [ 39 ] [ 50 ] Die Cro-Magnon-Menschen waren stark auf Rentiere als Nahrungsquelle, für deren Felle, Werkzeuge und Waffen angewiesen; mit sinkenden Temperaturen und steigenden Rentierbeständen am Ende des Pleistozäns wurden diese zu ihrer bevorzugten Beute. In einer Höhle oberhalb des Flusses Céou , die vor etwa 12.500 Jahren bewohnt war, wurden zu 94 % Knochen und Zähne von Rentieren gefunden . [ 51 ] Im Allgemeinen können die meisten Paarhufer als koscheres Fleisch verzehrt werden, mit den wichtigsten Ausnahmen von Schweinen und Flusspferden , die zwar Paarhufer sind, aber nicht wiederkäuen , sowie von Walen , die nach rabbinischem Recht als schuppenlose Fische gelten und daher nicht koscher sind.
Heute werden Paarhufer hauptsächlich wegen ihres Fleisches, ihrer Milch und ihrer Wolle , ihres Fells oder ihrer Haut für Kleidung gehalten . Hausrinder, Wasserbüffel , Yaks und Kamele werden als Arbeitstiere, Reittiere oder Lasttiere eingesetzt . [ 52 ]
Bedrohungen

Der Gefährdungsgrad der einzelnen Paarhufer ist unterschiedlich. Einige Arten sind synanthrop (wie das Wildschwein ) und haben sich in Gebiete ausgebreitet, in denen sie nicht heimisch sind, entweder weil sie als Nutztiere eingeführt wurden oder weil sie als Haustiere entlaufen sind. Manche Paarhufer profitieren auch davon, dass ihre natürlichen Feinde (z. B. der Tasmanische Tiger ) von Viehzüchtern, die sie als Konkurrenten ansahen, stark dezimiert wurden. [ 48 ]
Umgekehrt sind viele Paarhufer deutlich zurückgegangen, einige sind sogar ausgestorben, vor allem aufgrund von Überjagung und, in jüngerer Zeit, Lebensraumzerstörung . Zu den ausgestorbenen Arten zählen mehrere Gazellenarten, der Auerochse , das Madagaskar-Flusspferd , die Blaubockantilope und der Schomburgkhirsch . Eine Art, der Davidshirsch , ist nach der erfolgreichen Wiederansiedlung der Säbelantilope in freier Wildbahn ausgestorben . Vierzehn Arten gelten als vom Aussterben bedroht , darunter die Addax -Antilope und der möglicherweise ausgestorbene Kouprey . 24 Arten gelten als gefährdet , wie beispielsweise das Wildkamel , die Przewalski-Gazelle und das Zwergschwein . [ 53 ] [ 54 ]
Siehe auch
 Säugetierportal
Referenzen
- ^ Gould, François DH (10. November 2016). „Testing the Role of Cursorial Specializations as Adaptive Key Innovations in Paleocene-Eocene Ungulates of North America“ . Journal of Mammalian Evolution . 24 (4): 453–463 . doi : 10.1007/s10914-016-9359-4 . ISSN 1064-7554 . Abgerufen am 9. April 2025 – via Springer Nature Link.
- ^ Orliac, MJ; Benoit, J.; O'Leary, MA (November 2012). „Das Innenohr von Diacodexis , dem ältesten Paarhufer“ . Journal of Anatomy . 21 (5): 417–426 . doi : 10.1111/j.1469-7580.2012.01562.x . PMC 3482349. PMID 22938073. S2CID 2010691 .
- ^ a b Theodor, Jessica M.; Erfurt, Jörg; Grégoire Métais (23. Oktober 2007). „Die frühesten Artiodactyle: Diacodexeidae, Dichobunidae, Homacodontidae, Leptochoeridae und Raoellidae“ . In Prothero, Donald R.; Foss, Scott E. (Hrsg.). Evolution der Artiodactyle . Johns Hopkins Universität. S. 32–58 . ISBN 978-0-8018-8735-2Die
- ^ Boivin, M.; Orliac, MJ; et al. (September 2018). „Neues Material von Diacodexis (Mammalia, Artiodactyla) aus dem frühen Eozän Südeuropas“ ( PDF) . Geobios . 51 (4): 285–306 . Bibcode : 2018Geobi..51..285B . doi : 10.1016/j.geobios.2018.06.003 . S2CID 134967454. Archiviert (PDF) vom Original am 2. März 2022. Abgerufen am 16. Oktober 2023 .
- Spaulding , M.; O'Leary, M.A.; Gatesy, J. (2009). Farke, Andrew Allen (Hrsg.). „ Verwandtschaftsbeziehungen der Wale (Artiodactyla) unter den Säugetieren: Eine erweiterte Taxon-Auswahl verändert die Interpretation wichtiger Fossilien und die Evolution von Merkmalen“ . PLOS ONE . 4 (9) e7062. Bibcode : 2009PLoSO...4.7062S . doi : 10.1371/ journal.pone.0007062 . PMC 2740860. PMID 19774069 .
- ^ Huffman, Brent. „Familie Camelidae“ . Abgerufen am 11. November 2025 .
- Montgelard , Claudine ; Catzeflis, Francois M.; Douzery, Emmanuel (1997). „Phylogenetische Verwandtschaftsverhältnisse von Paarhufern und Walen, abgeleitet aus dem Vergleich von Cytochrom-b- und 12S-rRNA-Sequenzen der Mitochondrien“. Molecular Biology and Evolution . 14 (5): 550–559 . doi : 10.1093/oxfordjournals.molbev.a025792 . PMID 9159933 .
- ^ Groves, Colin P.; Grubb, Peter (2011). Ungulate Taxonomy . Baltimore, Maryland: Johns Hopkins University Press. S. 25. ISBN 978-1-4214-0093-8Die
- ^ a b Gatesy, John; Hayashi, Cheryl; Cronin, Mathew A.; Arctander, Peter (1996). „Beweise aus Milchcasein-Genen, dass Wale enge Verwandte der Flusspferde sind“ . Molecular Biology and Evolution . 13 (7): 954–963 . doi : 10.1093/oxfordjournals.molbev.a025663 . PMID 8752004 .
- ^ a b Amrine-Madsen, Heather; Koepfli, Klaus-Peter; Wayne, Robert K.; Springer, Mark S. (2003). „Ein neuer phylogenetischer Marker, Apolipoprotein B, liefert überzeugende Beweise für die Verwandtschaft der Eutheria“ . Molecular Phylogenetics and Evolution . 28 (2): 225–240 . Bibcode : 2003MolPE..28..225A . doi : 10.1016/s1055-7903(03)00118-0 . PMID 12878460. Archiviert vom Original am 4. September 2020. Abgerufen am 3. September 2018 .
- ^ Graur, Dan; Higgins, Desmond G. (1994). „Molekulare Belege für die Einordnung der Wale in die Ordnung der Paarhufer“ (PDF) . Molecular Biology and Evolution : 357–364 . Archiviert vom Original (PDF) am 5. März 2016. Abgerufen am 23. August 2015 .
- ^ Shimamura, M. (1997). „Molekulare Beweise aus Retroposons , dass Wale eine Klade innerhalb der Paarhufer bilden“ . Nature . 388 (6643): 666–670 . Bibcode : 1997Natur.388..666S . doi : 10.1038/41759 . PMID 9262399. S2CID 4429657 .

- ^ Gatesy, John (1997). „Weitere DNA-Beweise für eine Cetacea/Hippopotamidae-Klade: Das Blutgerinnungsprotein-Gen γ-Fibrinogen“ . Molecular Biology and Evolution . 14 (5): 537–543 . doi : 10.1093/oxfordjournals.molbev.a025790 . PMID 9159931 .
- Agnarsson , Ingi; May-Collado, Laura J. (2008). „ Die Phylogenie der Cetartiodactyla: Die Bedeutung einer dichten Taxon-Stichprobe, fehlender Daten und des bemerkenswerten Potenzials von Cytochrom b für die Erstellung zuverlässiger Phylogenien auf Artenebene“ . Molecular Phylogenetics and Evolution . 48 (3): 964–85 . Bibcode : 2008MolPE..48..964A . doi : 10.1016/j.ympev.2008.05.046 . PMID 18590827. Archiviert vom Original am 4. September 2020. Abgerufen am 3. September 2018 .
- ^ Gatesy, John; Milinkovitch, Michel; Waddell, Victor; Stanhope, Michael (1999). „Stabilität der kladistischen Verwandtschaftsverhältnisse zwischen Walen und höheren Artiodactylen“ . Systematic Biology . 48 (1): 6–20 . doi : 10.1080/106351599260409 . PMID 12078645 .
- ^ Madsen, Ole; Willemsen, Diederik; Ursing, Björn M.; Arnason, Ulfur; de Jong, Wilfried W. (2002). „Molekulare Evolution des α2B-Adrenozeptors der Säugetiere“ . Molecular Biology and Evolution . 19 (12): 2150–2160 . doi : 10.1093/oxfordjournals.molbev.a004040 . PMID 12446807 .
- ^ Savage, RJG ; Long, MR (1986). Säugetierevolution: Ein illustrierter Leitfaden . New York: Facts on File. S. 208. ISBN 978-0-8160-1194-0Die
- Price , Samantha A.; Bininda-Emonds, Olaf RP; Gittleman, John L. (2005). „ Eine vollständige Phylogenie der Wale, Delfine und Paarhufer (Cetartiodactyla)“ . Biological Reviews . 80 ( 3 ) : 445–73 . Bibcode : 2005BioRv..80..445P . doi : 10.1017/s1464793105006743 . PMID 16094808. S2CID 45056197. Archiviert vom Original am 4. September 2020. Abgerufen am 3. September 2018 .
- ^ D. Rose, Kenneth (2005). J. David Archibald (Hrsg.). Der Aufstieg der Plazentatiere: Ursprünge und Verwandtschaftsverhältnisse der wichtigsten rezenten Kladen . Johns Hopkins University Press. S. 216. ISBN 978-0-8018-8022-3Archiviert vom Original am 21. Juni 2024. Abgerufen am 20. Juni 2024 .
- ^ Owen, Richard (1848). „Beschreibung der Zähne und Kieferfragmente zweier ausgestorbener Anthracotherioiden (Hyopotamus vectianus und Hyop. bovinus), die von der Marchioness of Hastings in den eozänen Ablagerungen an der Nordwestküste der Isle of Wight entdeckt wurden: mit dem Versuch, Cuviers Idee der Klassifizierung von Dickhäutern nach der Anzahl ihrer Zehen weiterzuentwickeln“ . Quarterly Journal of the Geological Society of London . 4 (1): 103–141 . doi : 10.1144/GSL.JGS.1848.004.01-02.21 . Archiviert vom Original am 6. November 2023. Abgerufen am 16. Februar 2024 .
- ^ Ando, Konami; Fujiwara, Shin-ichi (10. Juli 2016). „Abschied vom Leben an Land – Thoraxstärke als neuer Indikator zur Bestimmung der Paläoökologie sekundär aquatischer Säugetiere“ . Journal of Anatomy . 229 (6): 768–777 . doi : 10.1111/joa.12518 . ISSN 0021-8782 . PMC 5108153. PMID 27396988 .
- ^ McKenna, Malcolm C.; Bell, Susan K. (1997).„Klassifizierung der Säugetiere – oberhalb der Artebene“ . Columbia University Press. ISBN 978-0-231-11013-6Die
- ^ Beck, NR (2006). „ Ein übergeordneter MRP-Superbaum der Plazentatiere“ . BMC Evol Biol . 6 : 93. doi : 10.1186/1471-2148-6-93 . PMC 1654192. PMID 17101039 .
- ^ O'Leary, MA; Bloch, JI; Flynn, JJ; Gaudin, TJ; Giallombardo, A.; Giannini, NP; Goldberg, SL; Kraatz, BP; Luo, Z.-X.; Meng, J.; Ni, X.; Novacek, MJ; Perini, FA; Randall, ZS; Rougier, GW; Sargis, EJ; Silcox, MT; Simmons, NB; Spaulding, M.; Velazco, PM; Weksler, M.; Wible, JR; Cirranello, AL (2013). „Der plazentare Säugetiervorfahre und die Post-K-Pg-Strahlung von Plazentalen“. Wissenschaft . 339 (6120): 662–667 . Bibcode : 2013Sci...339..662O . doi : 10.1126/ science.1229237 . hdl : 11336/7302 . PMID 23393258. S2CID 206544776 .
- Song , S.; Liu, L.; Edwards, S. V.; Wu, S. (2012). „Auflösung von Konflikten in der Phylogenie der Höheren Säugetiere mithilfe von Phylogenomik und dem Multispezies - Koaleszenzmodell“ . Proceedings of the National Academy of Sciences . 109 (37): 14942–14947 . Bibcode : 2012PNAS..10914942S . doi : 10.1073/pnas.1211733109 . PMC 3443116. PMID 22930817 .
- Reis, M.; Inoue, J.; Hasegawa, M.; Asher, RJ; Donoghue, PCJ; Yang, Z. (2012). „ Phylogenomische Datensätze liefern Präzision und Genauigkeit bei der Schätzung der Zeitskala der Phylogenie von Plazentatieren“ . Proceedings of the Royal Society B: Biological Sciences . 279 (1742): 3491–3500 . doi : 10.1098/ rspb.2012.0683 . PMC 3396900. PMID 22628470 .
- ^ Upham, NS; Esselstyn, JA; Jetz, W. (2019). „Die Rekonstruktion des Stammbaums der Säugetiere: Phylogenien auf Artenebene für Fragestellungen in Ökologie, Evolution und Naturschutz“ . PLOS Biology . 17 (12) e3000494. doi : 10.1371/journal.pbio.3000494 . PMC 6892540. PMID 31800571 . (siehe z. B. Abb. S10)
- ^ Wilson, DE; Reeder, DM, Hrsg. (2005). Säugetierarten der Welt (3. Aufl.). Johns Hopkins University Press. S. 111–184 . ISBN 978-0-8018-8221-0Die
- ^ Cui, P.; Ji, R.; Ding, F.; Qi, D.; Gao, H.; Meng, H.; Yu, J.; Hu, S.; Zhang, H. (2007). „Eine vollständige mitochondriale Genomsequenz des wilden Zweihöckerkamels ( Camelus bactrianus ferus ): Eine Evolutionsgeschichte der Kamele“ . BMC Genomics . 8 (1): 241. doi : 10.1186/1471-2164-8-241 . PMC 1939714. PMID 17640355 .
- ^ a b „Highlights of Cetacean Embryology“ (PDF) . Abgerufen am 12. November 2025 .
- ^ „Krallen raus: Dinge, die Sie über Krallen noch nicht wussten“ . Thomson Safaris . 7. Januar 2014. Archiviert vom Original am 24. September 2016. Abgerufen am 24. September 2016 .
- ^ Salomon, Franz-Viktor; et al. (2008). Salomon, F.-V. (Hrsg.). Anatomie für die Veterinärmedizin (Muskuloskelettales System) . S. 22–234 . ISBN 978-3-8304-1075-1Die
- ^ DeMiguel, Daniel; Azanza, Beatriz; Morales, Jorge (2014). „Schlüsselinnovationen in der Wiederkäuer-Evolution: eine paläontologische Perspektive“. Integrative Zoology . 9 (4): 412–433 . doi : 10.1111/1749-4877.12080 . PMID 24148672 .
- ^ palmat
- ^ Janis, CM; Scott, KM (1987). „Die Verwandtschaftsverhältnisse höherer Wiederkäuerfamilien mit besonderem Schwerpunkt auf den Vertretern der Cervoidea“ . American Museum Novitates (2893): 1–85 . hdl : 2246/5180 . Archiviert vom Original am 6. Oktober 2014. Abgerufen am 28. Februar 2016 .
- ^ Emery-Wetherell, Meaghan; Davis, Edward (20. April 2018). „Zahnmessungen diagnostizieren keine modernen Paarhuferarten: Implikationen für die Systematik der Merycoidodontoidea“ . Palaeontologia Electronica . doi : 10.26879/748 . Abgerufen am 15. März 2026 – via Palaeontologia Electronica.
- ^ a b c d Janis, C.; Jarman, P. (1984). Macdonald, D. (Hrsg.). The Encyclopedia of Mammals . New York: Facts on File. S. 498–499 . ISBN 978-0-87196-871-5Die
- ^ a b c Shively, CL; et al. (1985). „Einige Aspekte der Ernährungsbiologie des Halsbandpekaris“. The Journal of Wildlife Management . 49 (3): 729–732 . doi : 10.2307/3801702 . JSTOR 3801702 .
- ^ a b c „Artiodactyl“ . Encyclopædia Britannica Online . Encyclopædia Britannica, Inc. 2008. Archiviert vom Original am 28. April 2015. Abgerufen am 17. Oktober 2008 .
- ^ Hewitt, David G. (24. Juni 2011). Biologie und Management des Weißwedelhirsches . CRC Press. ISBN 978-1-4822-9598-6Archiviert vom Original am 21. Juni 2024. Abgerufen am 17. Oktober 2020 .
- ^ Lombardi, Julian (6. Dezember 2012). Vergleichende Wirbeltierreproduktion . Springer Science & Business Media. ISBN 978-1-4615-4937-6Die
- ^ a b Uwe Gille (2008). Harn- und Geschlechtsorgane, Urogenitalapparat. In: F.-V. Salomon u. a. (Hrsg.): Anatomie für die Veterinärmedizin . S. 368–403 . ISBN 978-3-8304-1075-1Die
- ^ Spinage, CA " Reproduction in the Uganda defassa waterbuck, Kobus defassa ugandae Neumann ". Journal of reproduction and fertility 18.3 (1969): 445–457.
- ^ Yong, Hwan-Yul. „ Reproduktionssystem der Giraffe (Giraffa camelopardalis). Archiviert am 25. April 2019 in der Wayback Machine .“ Journal of Embryo Transfer 24.4 (2009): 293–295.
- ^ Sumar, Julio. „ Reproduktionsphysiologie bei südamerikanischen Kameliden. Archiviert am 30. März 2023 in der Wayback Machine .“ Genetik der Reproduktion bei Schafen (2013): 81.
- ^ Lombardi, Julian (6. Dezember 2012). Vergleichende Wirbeltierreproduktion . Springer Science & Business Media. ISBN 978-1-4615-4937-6Die
- ^ Mitchell, G .; Lust, A. (23. August 2008). „Das Carotisrete und der Erfolg der Paarhufer“ . Biology Letters . 4 (4): 415–418 . doi : 10.1098/rsbl.2008.0138 . ISSN 1744-9561 . PMC 2610139. PMID 18426746 .
- ^ a b Pough, FW; Janis, CM; Heiser, JB (2005) [1979]. „Major Lineages of Mammals“. Vertebrate Life (7. Aufl.). Pearson. S. 539. ISBN 978-0-13-127836-3Die
- ^ „Schwertwal“ . NOAA Fisheries. 3. August 2021. Archiviert vom Original am 26. August 2021. Abgerufen am 26. August 2021 .
- ^ McKie, Robin (22. September 2012). „Menschen jagten vor 2 Millionen Jahren wegen ihres Fleisches“ . The Guardian . Abgerufen am 26. Oktober 2015 .
- ^ „Knochen aus französischer Höhle zeigen, dass Neandertaler und Cro-Magnon dieselbe Beute jagten“ . ScienceDaily. 2003. Archiviert vom Original am 22. Oktober 2008. Abgerufen am 17. Oktober 2008 .
- Clay, J. (2004). Weltlandwirtschaft und Umwelt: Ein Leitfaden zu Auswirkungen und Praktiken für jeden einzelnen Rohstoff . Washington, DC, USA: Island Press. ISBN 978-1-55963-370-3Die
- ^ „Cetartiodactyla“ . Archiviert vom Original am 5. August 2011. Abgerufen am 12. März 2007 .
- ^ „Artiodactyla“ . Encyclopedia of Life. Archiviert vom Original am 13. Oktober 2014. Abgerufen am 15. November 2014 .


