Conodonten sind eine ausgestorbene Gruppe mariner, kieferloser Wirbeltiere aus der Klasse Conodonta (vom altgriechischen κῶνος ( kōnos ), „ Zehen “, und ὀδούς ( odoús ), „ Zahn “). Sie sind vor allem durch ihre harten, mineralisierten, zahnähnlichen Strukturen, die sogenannten Conodontenelemente, bekannt, die sich zu Lebzeiten in der Mundhöhle befanden und der Nahrungszerkleinerung dienten. Seltene Weichteilreste deuten darauf hin, dass sie einen länglichen, aalartigen Körper mit großen Augen besaßen. Conodonten waren eine langlebige Gruppe mit einer Existenzdauer von über 300 Millionen Jahren, vom Kambrium (vor über 500 Millionen Jahren) bis zum Beginn des Jura (vor etwa 200 Millionen Jahren). Conodontenelemente sind für bestimmte Arten sehr charakteristisch und werden in der Biostratigraphie häufig als Indikatoren für bestimmte geologische Zeitabschnitte verwendet.
Entdeckung und Verständnis der Conodonten
Die zahnähnlichen Fossilien des Conodonten wurden erstmals von Heinz Christian Pander entdeckt und die Ergebnisse 1856 in Sankt Petersburg, Russland , veröffentlicht. [ 2 ]
Erst Anfang der 1980er Jahre wurden die ersten fossilen Überreste des restlichen Tieres gefunden (siehe unten). In den 1990er Jahren entdeckte man in Südafrika wunderschöne Fossilien, bei denen sich das Weichgewebe in Ton verwandelt hatte und sogar Muskelfasern erhalten geblieben waren. Das Vorhandensein von Muskeln zur Augenrotation bewies eindeutig, dass es sich um primitive Wirbeltiere handelte. [ 3 ]
Nomenklatur und taxonomischer Rang
Im Laufe der Forschungsgeschichte wurde der Begriff „Conodont“ sowohl für die einzelnen Fossilien als auch für die Tiere, zu denen sie gehörten, verwendet. Der ursprüngliche deutsche Begriff, den Pander verwendete, war „conodonten“, der später zu „conodonts“ anglisiert wurde, obwohl es mehrere Jahrzehnte lang keine formale latinisierte Bezeichnung gab. MacFarlane (1923) beschrieb sie als Ordnung , Conodontes (eine griechische Übersetzung), die Huddle (1934) in die lateinische Schreibweise Conodonta änderte. [ 4 ] Einige Jahre zuvor hatte Eichenberg (1930) einen anderen Namen für die Tiere eingeführt, die für Conodontenfossilien verantwortlich waren: Conodontophorida („Conodontenträger“). [ 1 ] Im 20. Jahrhundert wurden einige weitere wissenschaftliche Namen, wie Conodontophoridia, Conodontophora, Conodontochordata, Conodontiformes [ 5 ] und Conodontomorpha, selten und uneinheitlich für Conodonten und ihre vermuteten nahen Verwandten verwendet .
Conodonta und Conodontophorida sind die mit Abstand gebräuchlichsten wissenschaftlichen Bezeichnungen für Conodonten, obwohl hinsichtlich ihrer taxonomischen Stellung weiterhin Unstimmigkeiten bestehen. Bengtson (1976) identifizierte in seiner Forschung zur Conodonten-Evolution drei morphologische Gruppen früher conodontenähnlicher Fossilien: Protoconodonten , Paraconodonten und „echte Conodonten“ (Euconodonten). [ 5 ] Weitere Untersuchungen ergaben, dass Protoconodonten wahrscheinlich enger mit Pfeilwürmern (Chaetognathen) verwandt waren als mit echten Conodonten. Paraconodonten hingegen gelten weiterhin als wahrscheinlicher Vorfahre oder Schwestergruppe der Euconodonten.
Der 1981 erschienene Band der „Treatise on Invertebrate Paleontology“ über die Conodonten (Teil W, überarbeitet, Ergänzung 2) führt Conodonta sowohl als Stamm als auch als Klasse auf , wobei Conodontophorida als Unterordnung für „echte Conodonten“ geführt wird. Alle drei Ränge wurden Eichenberg zugeschrieben, und Paraconodontida wurde ebenfalls als Ordnung innerhalb von Conodonta geführt. [ 6 ] Dieser Ansatz wurde von Fåhraeus (1983) kritisiert, der argumentierte, dass er Panders historische Bedeutung als Begründer und Schlüsselfigur der Conodontologie außer Acht lasse. Fåhraeus schlug vor, Conodonta als Stamm (Pander zugeschrieben) mit der einzigen Klasse Conodontata (Pander) und der einzigen Ordnung Conodontophorida (Eichenberg) beizubehalten. [ 4 ] [ 7 ] Nachfolgende Autoren betrachteten Conodonta weiterhin als Stamm mit einer stetig wachsenden Anzahl von Untergruppen. [ 8 ]
Da immer stärkere Hinweise darauf hindeuten, dass Conodonten zum Stamm der Chordatiere gehören, bezeichnen neuere Studien die „echten Conodonten“ im Allgemeinen als die Klasse Conodonta, die mehrere kleinere Ordnungen umfasst. [ 9 ] [ 10 ] [ 11 ] Paraconodonten werden üblicherweise nicht zu dieser Gruppe gezählt, obwohl sie als nahe Verwandte gelten. [ 9 ] [ 10 ] [ 11 ] In der Praxis sind die Begriffe Conodonta, Conodontophorida und Euconodonta gleichbedeutend und werden synonym verwendet.
Conodontische Elemente

Lange Zeit waren Funktion und Anordnung der Conodontenelemente rätselhaft, da das gesamte Tier – mit Ausnahme der mineralisierten Elemente – aus Weichgewebe bestand. Nach dem Tod des Conodonten zersetzten sich die Weichteile , und die einzelnen Conodontenelemente trennten sich. In Fällen außergewöhnlicher Erhaltung können die Conodontenelemente jedoch im Gelenk erhalten bleiben. [ 12 ] Durch die genaue Untersuchung dieser seltenen Exemplare konnten Briggs et al . (1983) [ 13 ] erstmals die Anatomie der Komplexe untersuchen, die von den Conodontenelementen in ihrer ursprünglichen Anordnung gebildet wurden. Andere Forscher haben diese erste Beschreibung seither immer wieder überarbeitet und neu interpretiert. [ 14 ] [ 15 ] [ 16 ]
Einzelne Elemente
Conodontenelemente bestehen aus mineralisierten, zahnähnlichen Strukturen unterschiedlicher Morphologie und Komplexität. Die Evolution mineralisierter Gewebe gibt seit über einem Jahrhundert Rätsel auf. Es wird vermutet, dass der erste Mechanismus der Gewebemineralisierung bei Chordaten entweder im Mundskelett der Conodonten oder im Hautskelett früher Agnatha begann .
Die Anordnung dieser Elemente bildete einen Fressapparat, der sich grundlegend von den Kiefern moderner Tiere unterscheidet. Um Verwechslungen zu vermeiden, werden sie heute als „Conodontenelemente“ bezeichnet. Die drei Zahnformen – kegelförmige Zapfen, dornartige Leisten und kammartige Plattformen – erfüllten vermutlich unterschiedliche Funktionen.
Lange Zeit waren Conodonten nur durch rätselhafte, zahnähnliche Mikrofossilien (200 Mikrometer bis 5 Millimeter lang [ 17 ] ) bekannt, die zwar häufig, aber nicht immer isoliert vorkommen und nicht mit anderen Fossilien vergesellschaftet waren. Bis Anfang der 1980er-Jahre wurden Conodontenzähne nicht zusammen mit Fossilien des Wirtsorganismus in einer konservierten Lagerstätte gefunden . [ 13 ] Dies liegt daran, dass der Conodont ein Weichtier war und daher alles außer den Zähnen unter normalen Umständen nicht konserviert werden konnte.
Diese Mikrofossilien bestehen aus Hydroxylapatit (einem Phosphatmineral). [ 18 ] Die Conodontenelemente können mithilfe geeigneter Lösungsmittel aus dem Gestein extrahiert werden. [ 19 ] [ 20 ] [ 21 ]
Sie finden breite Anwendung in der Biostratigraphie . Conodontenelemente dienen auch als Paläothermometer , ein Indikator für die thermische Alteration des Wirtsgesteins, da das Phosphat bei höheren Temperaturen vorhersehbare und dauerhafte Farbveränderungen erfährt, die mit dem Conodonten-Alterationsindex gemessen werden. Dies hat sie in Gesteinen aus dem Kambrium bis zur späten Trias , in denen sie vorkommen, für die Erdölexploration nützlich gemacht .
Vollständige Ausrüstung
 Kompletter Elementsatz des Conodonten Hindeodus parvus
 Erhaltener, artikulierter Komplex von Conodontenelementen der Art Archeognathus primus (Ordovizium, Nordamerika)
Der Conodontenapparat kann aus einer Reihe diskreter Elemente bestehen, darunter spathognathiforme, ozarkodiniforme, trichonodelliforme, neoprioniodiforme und andere Formen. [ 22 ]
In den 1930er Jahren wurde das Konzept der Conodonten-Assemblagen von Hermann Schmidt [ 23 ] und 1934 von Harold W. Scott beschrieben. [ 24 ] [ 25 ] [ 26 ] [ 27 ]
Elementtypen

Die Anordnung der Elemente bei Ozarkodiniden und anderen komplexen Conodonten wurde erstmals anhand extrem gut erhaltener Taxa von Briggs et al. (1983) rekonstruiert [ 13 ] , obwohl bereits 1971 lose artikulierte Conodontenelemente beschrieben wurden [ 28 ]. Conodontenelemente werden anhand ihrer Form in drei verschiedene Gruppen eingeteilt. Diese Formengruppen werden als S- , M- und P- Elemente bezeichnet [ 15 ] .
Die S- und M- Elemente sind ästeförmig, länglich und kammartig. [ 14 ] Jedes einzelne Element besitzt eine einzelne Reihe vieler Höcker, die entlang der Mittellinie seiner Oberseite verlaufen. Diese Conodontenelemente sind zur vorderen Mundfläche des Tieres hin angeordnet und bilden im Maul einen ineinandergreifenden Höckerkorb. Die Höcker können zum Kopf des Tieres oder zum Schwanz hin zeigen. [ 16 ] Die Anzahl der vorhandenen S- und M- Elemente sowie ihre Ausrichtung können je nach taxonomischer Gruppe variieren. M -Elemente (Makellaten) liegen höher im Maul und bilden häufig eine symmetrische, hufeisen- oder spitz zulaufende Form. [ 13 ] S -Elemente werden weiter in drei Subtypen unterteilt:
- S a- Element – eine unpaarige, symmetrische, ästchenförmige Struktur im vorderen Mundbereich. Manchmal auch als S 0- Element bezeichnet.
- S b Element - gepaarte asymmetrische Strukturen
- S c Element - gepaarte, stark asymmetrische, bipennate Strukturen
Bei den P- Elementen geht eine kammartige Reihe von Höckern in eine breite, flache oder gerippte Plattform über, die sich zur Basis des Elements hin erstreckt. [ 13 ] Plattformen und Höcker befinden sich nur auf einer Seite der Struktur. Die einzelnen Elemente sind vertikal ausgerichtet und paarweise angeordnet, wobei Plattformen und Höcker zur Körpermitte des Tieres zeigen. Sie liegen tiefer im Rachen als die S- und M-Elemente. P -Elemente werden weiter in zwei Subtypen unterteilt:
- P a Element - klingenartige Strukturen
- P b Element - Bogenkonstruktionen
Das Conodontentier
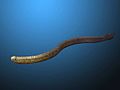 Lebenswiederherstellung von Promissum pulchrum
 Wiederherstellung des Panderodus unicostatus
 Ein Körperfossil von Panderodus unicostatus
 Ein Größenvergleich der drei Conodontenarten mit erhaltenen Körperfossilien.
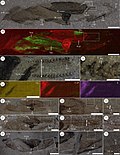 Fossilien von Typhloesus , die einst als erste Conodonten-Körperfossilien galten.
Obwohl Conodontenelemente im Fossilienbestand häufig vorkommen, sind Fossilien mit erhaltenen Weichteilen von Conodonten weltweit nur aus wenigen Fundstätten bekannt. Eines der ersten möglichen Körperfossilien eines Conodonten waren die von Typhloesus , einem rätselhaften Tier aus dem Bear-Gulch-Kalkstein in Montana . [ 29 ] Diese mögliche Zuordnung basierte auf dem Vorhandensein von Conodontenelementen bei den Fossilien von Typhloesus . Diese Annahme wurde jedoch widerlegt, da sich die Conodontenelemente tatsächlich im Verdauungstrakt des Tieres befanden . [ 30 ] Dieses Tier wird heute als mögliches Weichtier, verwandt mit den Schnecken, betrachtet . [ 30 ] Stand 2023 sind nur drei beschriebene Conodontenarten bekannt, von denen Rumpffossilien erhalten sind: Clydagnathus windsorensis aus dem karbonischen Granton Shrimp Bed in Schottland , Promissum pulchrum aus dem ordovizischen Soom Shale in Südafrika und Panderodus unicostatus aus der silurischen Waukesha -Biota in Wisconsin . [ 9 ] [ 31 ] [ 32 ] Weitere Beispiele für Conodonten, von denen lediglich der Kopfbereich einschließlich der Augen erhalten ist, stammen von den Fundstätten Eramosa (Silur) in Ontario und Akkamori ( Trias ) in Japan . [ 33 ] [ 34 ]
Laut diesen Fossilien besaßen Conodonten große Augen, Flossen mit Flossenstrahlen, V-förmige Muskeln und eine Achsenlinie, die als Chorda dorsalis oder dorsales Nervenrohr interpretiert wurde . [ 31 ] [ 35 ] Während Clydagnathus und Panderodus nur eine Länge von 4–5 cm erreichten, wird Promissum auf eine Länge von 40 cm geschätzt, sofern es die gleichen Proportionen wie Clydagnathus aufwies . [ 31 ] [ 32 ]
Ökologie
Diät
Da sie mit der Mundregion der Conodonten assoziiert sind, geht man davon aus, dass Conodontenelemente der Nahrungsaufnahme dienen. Zwei Hauptthesen wurden entwickelt, wie dies geschieht. Eine These besagt, dass die Elemente als Stützstrukturen für fadenförmiges Weichgewebe fungieren. [ 36 ] [ 28 ] Diese kleinen Fäden (Zilien) würden dazu dienen, kleine planktonische Organismen aus der Wassersäule zu filtern, analog zu den Nesselzellen einer Koralle oder dem Lophophor eines Brachiopoden .
Eine andere Hypothese besagt, dass die Conodontenelemente aktiv zum Fangen und Verarbeiten von Beute dienten. [ 28 ] [ 16 ] S- und M-Elemente könnten unabhängig voneinander beweglich gewesen sein, wodurch Beute im Mundbereich des Tieres gefangen werden konnte. Moderne Schleimaale und Neunaugen schaben Fleisch mit keratinhaltigen Klingen ab, die von einem einfachen, aber effektiven rollenartigen System gestützt werden. Dieses System besteht aus einer Muskelkette um einen Knorpelkern . Ein vergleichbares System könnte auch bei Conodonten vorhanden gewesen sein. [ 16 ] S- und M-Elemente hätten sich beliebig öffnen und schließen können, um Beute fest zu greifen oder zu quetschen, bevor sie sich zurückdrehten, um das Beuteelement zu fressen. Die klingenartigen P-Elemente tiefer im Rachen hätten die Nahrung verarbeitet, indem sie wie eine Schere gegen ihre Gegenstücke schnitten [ 16 ] oder wie Backenzähne aneinander rieben .
Der gegenwärtige Konsens stützt die letztgenannte Hypothese, nach der die Elemente der Prädation und nicht der Filtrierung von Nahrung dienten . [ 32 ] Ein Beleg dafür ist das isometrische Wachstumsmuster der S-, M- und P-Elemente. [ 28 ] Wenn sich das Conodontentier auf eine Filtrierstrategie stützte, würde dieses Wachstumsmuster nicht die notwendige Oberfläche für das Flimmerepithel während des Wachstums bieten. Es gibt Hinweise auf Knorpelstrukturen, die denen moderner kieferloser Fische ähneln, welche sowohl Raubtiere als auch Aasfresser sind . [ 16 ] Abnutzungsspuren an einigen Conodontenelementen deuten darauf hin, dass sie wie Zähne funktionierten, wobei die Abnutzungsspuren wahrscheinlich sowohl durch Nahrung als auch durch Okklusion mit anderen Elementen entstanden sind. [ 32 ] [ 37 ]
Da Conodonten eine vielfältige Gruppe bilden, ist es möglich, dass sich in verschiedenen Gruppen unterschiedliche Fressstrategien herausgebildet haben. Eine 2009 veröffentlichte Studie legte nahe, dass die Gattung Panderodus möglicherweise Gift zur Beutejagd einsetzte . [ 38 ] An einigen Conodontenelementen, die mit dem Fressapparat dieses Tieres in Verbindung stehen, finden sich Hinweise auf Längsrillen. Diese Rillen ähneln denen, die bei einigen heute lebenden Gruppen giftiger Wirbeltiere vorkommen.
Lebensstil
Studien haben gezeigt, dass Conodonten sowohl pelagische (im offenen Ozean lebende) als auch nektobenthische (über der Sedimentoberfläche schwimmende) Nischen besiedelten. [ 37 ] Die erhaltene Muskulatur deutet darauf hin, dass einige Conodonten ( zumindest Promissum ) effiziente Schwimmer waren, jedoch keine hohen Geschwindigkeiten erreichen konnten. [ 32 ] Isotopenanalysen legen nahe, dass einige devonische Conodonten Konsumenten von Zooplankton waren . [ 37 ]
Eine Studie zur Populationsdynamik von Alternognathus wurde veröffentlicht. Sie zeigt unter anderem, dass zumindest dieses Taxon eine kurze Lebensdauer von etwa einem Monat aufwies. [ 39 ] Eine Studie zu den Sr / Ca- und Ba /Ca-Verhältnissen einer Conodontenpopulation von einer Karbonatplattform aus dem Silur Schwedens ergab, dass die verschiedenen Conodontenarten und -gattungen wahrscheinlich unterschiedliche trophische Nischen besetzten . [ 37 ]
Klassifizierung und Phylogenie
Affinitäten
Seit 2012 klassifizieren Wissenschaftler die Conodonten anhand ihrer Flossen mit Flossenstrahlen, V- förmigen Muskeln und Chorda dorsalis in den Stamm der Chordatiere . [ 40 ]
Milsom und Rigby sehen sie als Wirbeltiere, die den heutigen Schleimaalen und Neunaugen ähneln [ 41 ] , und phylogenetische Analysen deuten darauf hin, dass sie abgeleiteter sind als diese beiden Gruppen [ 9 ] . Diese Analyse hat jedoch eine Einschränkung: Die frühesten conodontenähnlichen Fossilien, die Protoconodonten , scheinen eine eigene Klade zu bilden, die sich von den späteren Paraconodonten und Euconodonten unterscheidet. Protoconodonten sind wahrscheinlich nicht mit den eigentlichen Conodonten verwandt, sondern stellen vermutlich eine Stammgruppe der Chaetognatha dar , einem nicht verwandten Stamm, zu dem auch die Pfeilwürmer gehören [ 42 ] .
Darüber hinaus werden Conodonten in einigen Analysen weder den Wirbeltieren noch den Schädeltieren zugeordnet , da ihnen die Hauptmerkmale dieser Gruppen fehlen. [ 43 ] Jüngst wurde vorgeschlagen, dass Conodonten Stammgruppen der Cyclostomata sein könnten , die enger mit Schleimaalen und Neunaugen als mit Kiefermäulern verwandt sind . Diese Annahme basiert auf Ähnlichkeiten in der Form ihrer Flossen und der Annahme, dass die Conodontenelemente homolog zu den Zahnplatten von Neunaugen und Schleimaalen sein könnten. [ 44 ]
Beziehungen innerhalb der Gruppe
Einzelne Conodontenelemente lassen sich nur schwer einheitlich klassifizieren, doch sind mittlerweile immer mehr Conodontenarten aus Mehrelement-Vergesellschaftungen bekannt, die mehr Daten liefern, um Rückschlüsse auf die Verwandtschaftsverhältnisse verschiedener Conodontenlinien zu ziehen. Das folgende vereinfachte Kladogramm basiert auf Sweet und Donoghue (2001) [ 10 ] und fasst frühere Arbeiten von Sweet (1988) [ 8 ] und Donoghue et al. (2000) [ 9 ] zusammen.
Nur wenige Studien befassen sich mit der Frage der Verwandtschaftsverhältnisse innerhalb der Conodonten-Gruppe aus einer kladistischen Perspektive, gestützt auf phylogenetische Analysen . Eine der umfassendsten Studien dieser Art war die Analyse von Donoghue et al. (2008), die sich auf „komplexe“ Conodonten (Prioniodontida und andere Nachkommengruppen) konzentrierte: [ 11 ]
Evolutionsgeschichte

Die ältesten bekannten Conodontenfossilien stammen aus dem Kambrium. Im frühen Ordovizium erlebten die Conodonten eine starke Diversitätsentwicklung, die ihren Höhepunkt in der Mitte des Ordoviziums erreichte. Im späten Ordovizium und Silur ging ihre Artenvielfalt stark zurück, bevor sie im mittleren bis späten Devon erneut anstieg. Im Karbon nahm die Conodontendiversität weiter ab , mit einem Massenaussterben am Ende des mittleren Tournaisiums [ 45 ] und einem anhaltenden, signifikanten Verlust an Artenvielfalt im Pennsylvanium [ 46 ] [ 47 ] . Im Perm existierten nur wenige Conodontengattungen, obwohl die Diversität nach dem Massenaussterben an der Perm-Trias-Grenze (PT-Massenaussterben) in der frühen Trias wieder zunahm.
Die Diversität nahm im mittleren und späten Trias weiter ab und führte kurz nach der Trias-Jura-Grenze zu ihrem Aussterben. Ein Großteil ihrer Diversität im Paläozoikum wurde wahrscheinlich durch Meeresspiegel und Temperatur beeinflusst, wobei die stärksten Rückgänge im späten Ordovizium und späten Karbon auf kühlere Temperaturen, insbesondere auf Eiszeiten und damit verbundene Meeresabsenkungen , zurückzuführen waren, die die Fläche des Kontinentalschelfs verringerten . Ihr endgültiges Aussterben dürfte jedoch eher mit biotischen Interaktionen , möglicherweise der Konkurrenz mit neuen mesozoischen Taxa, zusammenhängen. [ 48 ]
Taxonomie
Die Taxonomie der Conodonta basiert auf Sweet (1988), [ 8 ] Sweet & Donoghue (2001), [ 10 ] und Mikkos Phylogeniearchiv. [ 49 ]
- Klasse Conodonta Pander, 1856 [ Conodontophorida Eichenberg, 1930; „Eukonodonten“ Bengtson, 1976 ]
- Cavidonti Sweet, 1988
- Belodellida bestellen ? Süß, 1988
- Ansellidae ? Fåhraeus & Hunter, 1985
- Belodellidae Khodalevich & Tschernich, 1973
- Dapsilodontidae ? Sweet, 1988
- Bestellen Sie Proconodontida Sweet, 1988
- Cordylodontidae Lindström, 1970
- Fryxellodontidae Miller, 1981
- Pseudooneotodidae ? Wang & Aldridge, 2010
- Proconodontidae Lindström, 1970
- Pygodontidae ? Bergstrom, 1981
- Belodellida bestellen ? Süß, 1988
- Conodonti Pander, 1856 non Branson, 1938
- Ordnung Protopanderodontida Sweet, 1988
- Acanthodontidae Lindström, 1970
- Clavohamulidae Lindström, 1970
- Drepanoistodontidae ? Fåhraeus, 1978 [Distacodontidae Bassler, 1925 ]
- Protopanderodontidae Lindström, 1970 [Scolopodontidae Bergström, 1981 ; Oneotodontidae Miller, 1981 ; Teridontidae Miller, 1981 ]
- Serratognathidae ? Zhen et al., 2009
- Strachanognathidae ? Bergström, 1981 [Cornuodontidae Stouge, 1984 ]
- Bestellung Panderodontida Sweet, 1988
- Panderodontidae Lindström, 1970
- Ordnung Prioniodontida Dzik, 1976 (paraphyletisch)
- Acodontidae ? Dzik, 1993 [Tripodontinae Sweet, 1988 ]
- Cahabagnathidae ? Stouge & Bagnoli 1999
- Distacodontidae ? Bassler, 1925 . Ulrich & Bassler, 1926 [Drepanodontinae Fåhraeus & Nowlan, 1978 ; Lonchodininae Hass, 1959 ]
- Gamachignathidae ? Wang & Aldridge, 2010
- Jablonnodontidae ? Dzik, 2006
- Nurrellidae ? Pomešano-Cherchi, 1967
- Paracordylodontidae ? Bergström, 1981
- Playfordiidae ? Dzik, 2002
- Ulrichodinidae ? Bergström, 1981
- Rossodus Repetski & Ethington, 1983
- Multioistodontidae Harris, 1964 [Dischidognathidae]
- Oistodontidae Lindström, 1970 [Juanognathidae Bergström, 1981 ]
- Parodontidae Lindström, 1970
- Rhipidognathidae Lindström, 1970 sensu Sweet, 1988
- Prioniodontidae Bassler, 1925
- Phragmodontidae Bergström, 1981 [Cyrtoniodontinae Hass, 1959 ]
- Plectodinidae Sweet, 1988
- Pygodontidae ? Bergstrom, 1981
- Icriodontacea
- Balognathidae (Hass, 1959)
- Polyplacognathidae Bergström, 1981
- Distomodontidae Klapper, 1981
- Icriodellidae Sweet, 1988
- Icriodontidae Müller & Müller, 1957
- Bestellen Sie Prioniodinida Sweet, 1988
- Oepikodontidae ? Bergström, 1981
- Xaniognathidae ? Sweet, 1981
- Chirognathidae Branson & Mehl, 1944
- Prioniodinidae Bassler, 1925 [Hibbardellidae Mueller, 1956 ]
- Bactrognathidae Lindström, 1970
- Ellisoniidae Clark, 1972
- Gondolellidae Lindström, 1970
- Ordnung Ozarkodinida Dzik, 1976 [Polygnathida]
- Anchignathodontidae ? Clark, 1972
- Archeognathidae ? Miller, 1969
- Belodontidae ? Huddle, 1934
- Coleodontidae ? Branson & Mehl, 1944 [Hibbardellidae Müller, 1956 ; Loxodontidae]
- Eognathodontidae ? Bardashev, Weddige & Ziegler, 2002
- Francodinidae ? Dzik, 2006
- Gladigondolellidae ? (Hirsch, 1994) [Sephardiellinae Plasencia, Hirsch & Márquez-Aliaga, 2007 ; Neogondolellinae Hirsch, 1994 ; Cornudininae- Obstgarten, 2005 ; Epigondolellinae- Obstgarten, 2005 ; Marquezellinae Plasencia et al. , 2018 ; Paragondolellinae- Obstgarten, 2005 ; Pseudofurnishiidae Ramovs, 1977 ]
- Iowagnathidae ? Liu et al. , 2017
- Novispathodontidae ? (Orchard, 2005)
- Trucherognathidae ? Branson & Mehl, 1944
- Vjalovognathidae ? Shen, Yuan & Henderson, 2015
- Wapitiodontidae ? Orchard, 2005
- Cryptotaxidae Klapper & Philip, 1971
- Spathognathodontidae Hass, 1959 [ Ozarkodinidae Dzik, 1976 ]
- Pterospathodontidae Cooper, 1977 [Carniodontidae]
- Kockelellidae Klapper, 1981 [Caenodontontidae]
- Polygnathidae Bassler, 1925 [?Eopolygnathidae Bardashev, Weddige & Ziegler, 2002 ]
- Palmatolepidae Sweet, 1988
- Hindeodontidae (Hass, 1959)
- Elictognathidae Austin & Rhodes, 1981
- Gnathodontidae Sweet, 1988
- Idiognathodontidae Harris & Hollingsworth, 1933
- Mestognathidae Austin & Rhodes, 1981
- Cavusgnathidae Austin & Rhodes, 1981
- Sweetognathidae Ritter, 1986
- Ordnung Protopanderodontida Sweet, 1988
- Cavidonti Sweet, 1988
Siehe auch
- Zeitleiste der Evolutionsgeschichte des Lebens
- Mikropaläontologie
- Liste der Conodontengattungen
- Conodonten-Biostratigraphie
- Conodonten-Alterationsindex
Referenzen
- ^ ein b Eichenberg, W. (1930). „Conodonten aus dem Culm des Harzes“. Paläontologische Zeitschrift . 12 ( 3– 4): 177– 182. Bibcode : 1930PalZ...12..177E . doi : 10.1007/BF03044446 . S2CID 129519805 .
- ^ Sweet, Walter C.; Cooper, Barry J. (Dezember 2008). „CH Panders Einführung in die Conodonten, 1856“ . Abgerufen am 3. Januar 2019 .
- ^ Jan Zalasiewicz und Sarah Gabbott (5. Juni 1999). „Die Lebenden und die Toten“ . New Scientist .
- ^ a b Fåhraeus, Lars E. (1983). „Phylum Conodonta Pander, 1856 and Nomenclatural Priority“ . Systematic Zoology . 32 (4): 455–459 . doi : 10.2307/2413175 . JSTOR 2413175 .
- ^ a b Bengtson, Stefan (1976). „Die Struktur einiger Conodonten des mittleren Kambriums und die frühe Evolution von Struktur und Funktion der Conodonten“ . Lethaia . 9 (2): 185–206 . Bibcode : 1976Letha...9..185B . doi : 10.1111/j.1502-3931.1976.tb00966.x . ISSN 0024-1164 .
- ^ Clark, David L. (1981). „Kapitel 3: Systematische Beschreibungen“ . In: Moore, Raymond C.; Robison, R. A. (Hrsg.). Teil W, Verschiedenes, Ergänzung 2: Conodonta . Abhandlung über Wirbellosenpaläontologie . Boulder, Colorado; Lawrence, Kansas: Geological Society of America; University of Kansas. S. 111–180 . ISBN 0-8137-3028-7Die
- ^ Fåhraeus, Lars E. (1984). „Ein kritischer Blick auf die Treatise-Familiengruppenklassifikation der Conodonta: eine Übung in Eklektizismus“ . Lethaia . 17 (4): 293–305 . doi : 10.1111/j.1502-3931.1984.tb00675.x (inaktiv seit 11. Juli 2025). ISSN 0024-1164 .
{{cite journal}}: CS1 Wartung: DOI inaktiv ab Juli 2025 ( Link ) - Sweet , WC (1988). Die Conodonta: Morphologie , Taxonomie, Paläoökologie und Evolutionsgeschichte eines längst ausgestorbenen Tierstammes . S. 1–211 . ISBN 978-0-19-504352-5Die
{{cite book}}:|journal=ignoriert ( Hilfe ) - Donoghue , PCJ; Forey, PL; Aldridge, RJ (2000). „ Conodonten -Affinität und Chordaten-Phylogenie“ . Biological Reviews . 75 ( 2 ): 191–251 . doi : 10.1111 / j.1469-185X.1999.tb00045.x . PMID 10881388. S2CID 22803015 .
- Sweet , WC; Donoghue, PCJ (2001). „Conodonten: Vergangenheit, Gegenwart, Zukunft“ ( PDF) . Journal of Paleontology . 75 ( 6): 1174–1184 . Bibcode : 2001JPal...75.1174S . doi : 10.1666 /0022-3360( 2001 ) 075 <1174:CPPF>2.0.CO;2 . S2CID 53395896. Archiviert (PDF) vom Original am 30.10.2022.
- Donoghue , Philip CJ; Purnell, Mark A.; Aldridge, Richard J.; Zhang, Shunxin (2008-01-01). „ Die Verwandtschaftsverhältnisse von ‚komplexen‘ Conodonten (Vertebrata)“ . Journal of Systematic Palaeontology . 6 ( 2): 119–153 . Bibcode : 2008JSPal...6..119D . doi : 10.1017/S1477201907002234 . ISSN 1477-2019 .
- ^ Liu, HP; Bergström, SM; Witzke, BJ; Briggs, DEG; McKay, RM; Ferretti, A. (2017). „Außergewöhnlich gut erhaltene Conodontenapparate mit Riesenelementen aus der mittelordovizischen Winneshiek Konservat-Lagerstätte, Iowa, USA“ . Journal of Paleontology . 91 (3): 493–511 . Bibcode : 2017JPal...91..493L . doi : 10.1017/jpa.2016.155 . hdl : 11380/1114523 .
- ^ a b c d e Briggs, DEG; Clarkson, ENK; Aldridge, RJ (1983). „Das Conodontentier“. Lethaia . 16 (1): 1– 14. Bibcode : 1983Letha..16....1B . doi : 10.1111/j.1502-3931.1983.tb01993.x .
- ^ a b Aldridge, RJ; Briggs, DEG; Smith, MP; Clarkson, ENK; Clark, NDL (1993). „Die Anatomie der Conodonten“. Philosophical Transactions of the Royal Society of London. Series B: Biological Sciences . 340 (1294): 405–421 . doi : 10.1098/rstb.1993.0082 .
- ^ a b Purnell, MA; Donoghue, PC (1997). „Architektur und funktionelle Morphologie des Skelettapparates von Ozarkodiniden-Conodonten“ . Philosophical Transactions of the Royal Society B: Biological Sciences . 352 (1361): 1545–1564 . Bibcode : 1997RSPTB.352.1545P . doi : 10.1098/rstb.1997.0141 . PMC 1692076 .
- Goudemand , N.; Orchard, MJ; Urdy, S.; Bucher, H.; Tafforeau, P. (2011). „ Synchrotrongestützte Rekonstruktion des Fressapparates der Conodonten und Implikationen für das Maul der ersten Wirbeltiere“ . PNAS . 108 ( 21 ) : 8720–8724 . Bibcode : 2011PNAS..108.8720G . doi : 10.1073 / pnas.1101754108 . PMC 3102352. PMID 21555584 .
- ^ Wunder. „Conodonten“ . Abgerufen am 26. August 2014 .
- ^ Trotter, Julie A. (2006). „Chemische Systematik von Conodonten-Apatit, bestimmt mittels Laserablations-ICP-MS“. Chemical Geology . 233 ( 3–4 ): 196–216 . Bibcode : 2006ChGeo.233..196T . doi : 10.1016/j.chemgeo.2006.03.004 .
- ^ Jeppsson, Lennart; Anehus, Rikard (1995). „Eine Methode mit gepufferter Ameisensäure zur Conodontenextraktion“. Journal of Paleontology . 69 (4): 790–794 . Bibcode : 1995JPal...69..790J . doi : 10.1017 / s0022336000035319 . JSTOR 1306313. S2CID 131850219 .
- ^ Green, Owen R. (2001). „Extraktionstechniken für phosphathaltige Fossilien“. In: Ein Handbuch praktischer Labor- und Feldtechniken in der Paläobiologie . S. 318–330 . doi : 10.1007/978-94-017-0581-3_27 . ISBN 978-90-481-4013-8Die
- ^ Quinton, Page C. (2016). „Einfluss von Extraktionsprotokollen auf die Sauerstoffisotopenzusammensetzung von Conodontenelementen“. Chemical Geology . 431 : 36–43 . Bibcode : 2016ChGeo.431...36Q . doi : 10.1016/j.chemgeo.2016.03.023 .
- ^ Bergström, SM; Carnes, JB; Ethington, RL; Votaw, RB; Wigley, PB (1974). „Appalachignathus, eine neue Conodontengattung mit mehreren Elementen aus dem mittleren Ordovizium Nordamerikas“. Journal of Paleontology . 48 (2): 227–235 . Bibcode : 2001JPal...75.1174S . doi : 10.1666/0022-3360(2001)075 < 1174:CPPF>2.0.CO;2 . JSTOR 1303249. S2CID 53395896 .
- ^ Schmidt, Hermann (1934). „Conodonten-Funde in ursprünglichem Zusammenhang“. Paläontologische Zeitschrift . 16 ( 1– 2): 76– 85. Bibcode : 1934PalZ...16...76S . doi : 10.1007/BF03041668 . S2CID 128496416 .
- ^ Harold W. Scott, „Die zoologischen Verwandtschaftsverhältnisse der Conodonten“. Journal of Paleontology , Bd. 8, Nr. 4 (Dez. 1934), Seiten 448-455 ( Stabile URL )
- ^ Scott, Harold W. (1942). „Conodonten-Vergesellschaftungen aus der Heath-Formation, Montana“. Journal of Paleontology . 16 (3): 293–300 . JSTOR 1298905 .
- ^ Dunn, David L. (1965). „Spätmississippische Conodonten aus der Bird-Spring-Formation in Nevada“ . Journal of Paleontology . 39 : 6. Archiviert vom Original am 18.08.2016 . Abgerufen am 15.07.2016 .
- ^ Barnes, Christopher R. (1967). „Eine fragwürdige natürliche Conodonten-Vergesellschaftung aus mittelordovizischem Kalkstein, Ottawa, Kanada“. Journal of Paleontology . 41 (6): 1557–1560 . JSTOR 1302203 .
- ^ a b c d Purnell, Mark A. (1. April 1993). „Feeding mechanisms in conodonts and the function of the earliest vertebrate hard tissues“ . Geology . 21 (4): 375–377 . Bibcode : 1993Geo....21..375P . doi : 10.1130/0091-7613(1993)021<0375:FMICAT>2.3.CO;2 . Abgerufen am 15. Juli 2021 .
- ^ Conway Morris, Simon (12.04.1990). „ Typhloesus wellsi (Melton und Scott, 1973), ein bizarres Metazoon aus dem Karbon von Montana, USA“ . Philosophical Transactions of the Royal Society of London. B, Biological Sciences . 327 (1242): 595–624 . Bibcode : 1990RSPTB.327..595M . doi : 10.1098/rstb.1990.0102 .
- ^ a b Conway Morris, Simon; Caron, Jean-Bernard (2022). „Ein möglicher Lebensraum für ein bizarres Tier aus dem Karbon: Ist Typhloesus eine pelagische Schnecke?“ . Biology Letters . 18 (9). doi : 10.1098/rsbl.2022.0179 . PMC 9489302 . PMID 36126687 .
- ^ a b c Murdock, Duncan JE; Smith, M. Paul (2021). Sansom, Robert (Hrsg.). „Panderodus aus der Waukesha-Lagerstätte in Wisconsin, USA: ein primitiver makrophager Wirbeltierräuber“ . Papers in Palaeontology . 7 (4): 1977–1993 . Bibcode : 2021PPal....7.1977M . doi : 10.1002/spp2.1389 . ISSN 2056-2799 . S2CID 237769553 .
- ^ a b c d e Gabbott, SE; RJ Aldridge; JN Theron (1995). „Ein riesiger Conodont mit erhaltenem Muskelgewebe aus dem Oberordovizium Südafrikas“. Nature . 374 (6525): 800–803 . Bibcode : 1995Natur.374..800G . doi : 10.1038/374800a0 . S2CID 4342260 .
- ^ von Bitter, Peter H.; Purnell, Mark A.; Tetreault, Denis K.; Stott, Christopher A. (2007). „Eramosa-Lagerstätte – Außergewöhnlich gut erhaltene Weichkörperfauna mit flachmarinen, schalenbildenden und bioturbierenden Organismen (Silur, Ontario, Kanada)“ . Geology . 35 (10): 879. Bibcode : 2007Geo....35..879V . doi : 10.1130/g23894a.1 . hdl : 2381/27162 . ISSN 0091-7613 .
- ^ Takahashi, Satoshi; Yamakita, Satoshi; Suzuki, Noritoshi (15.06.2019). „Natürliche Vergesellschaftungen der Conodonten Clarkina in tiefseeischem Schwarzlehm der Untertrias aus Nordostjapan mit wahrscheinlichen Weichteilabdrücken“ . Palaeogeography, Palaeoclimatology, Palaeoecology . 524 : 212–229 . Bibcode : 2019PPP...524..212T . doi : 10.1016/j.palaeo.2019.03.034 . ISSN 0031-0182 . S2CID 134664744 .
- ^ Foster, John (06.06.2014). Cambrian Ocean World: Ancient Sea Life of North America . Indiana University Press. S. 300–301 . ISBN 978-0-253-01188-6Die
- ^ Nicoli, RS (1985). „Multielementzusammensetzung der Conodontenarten Polygnathus xylus xylus (Stauffer, 1940) und Ozarkodina brevis (Bischoff und Ziegler, 1957) aus dem Oberdevon des Canning-Beckens, Westaustralien“. Journal of Australian Geology and Geophysics . 9 : 133–147 .
- Terrill , David F.; Jarochowska, Emilia; Henderson, Charles M.; Shirley, Bryan; Bremer, Oskar (08.04.2022). „ Sr/Ca- und Ba / Ca-Verhältnisse stützen die trophische Aufteilung innerhalb einer silurischen Conodonten - Gemeinschaft von Gotland, Schweden“ . Paleobiology . 48 (4): 601–621 . Bibcode : 2022Pbio...48..601T . doi : 10.1017/pab.2022.9 . ISSN 0094-8373 . S2CID 248062641 .
- ^ Szaniawski, H. (2009). „Die frühesten bekannten giftigen Tiere unter den Conodonten“ . Acta Palaeontologica Polonica . 54 (4): 669–676 . doi : 10.4202/app.2009.0045 .
- ^ Świś, Przemysław (2019). „Populationsdynamik des spätdevonischen Conodonten Alternognathus, kalibriert in Tagen“. Historical Biology: An International Journal of Paleobiology : 1–9 . doi : 10.1080/08912963.2018.1427088 . S2CID 89835464 .
- ^ Briggs, D. (Mai 1992). „Conodonten: eine bedeutende ausgestorbene Gruppe, die den Wirbeltieren hinzugefügt wurde“. Science . 256 (5061): 1285–1286 . Bibcode : 1992Sci...256.1285B . doi : 10.1126/science.1598571 . PMID 1598571 .
- ^ Milsom, Clare; Rigby, Sue (2004). „Wirbeltiere“. Fossilien auf einen Blick . Victoria, Australien: Blackwell Publishing. S. 88. ISBN 978-0-632-06047-4Die
- ^ Szaniawski, H. (2002). „Neue Belege für den protoconodontischen Ursprung der Pfeilwürmer“ (PDF) . Acta Palaeontologica Polonica . 47 (3): 405.
- ^ Turner, S., Burrow, CJ, Schultze, HP, Blieck, A., Reif, WE, Rexroad, CB, Bultynck, P., Nowlan, GS; Burrow; Schultze; Blieck; Reif; Rexroad; Bultynck; Nowlan (2010). „Falsche Zähne: Phylogenetische Beziehungen zwischen Conodonten und Wirbeltieren neu betrachtet“ (PDF) . Geodiversitas . 32 (4): 545–594 . doi : 10.5252/g2010n4a1 . S2CID 86599352. Archiviert vom Original (PDF) am 19.03.2012 . Abgerufen am 11.02.2011 .
{{cite journal}}: CS1 Wartung: Mehrere Namen: Autorenliste ( Link ) - ^ Miyashita, Tetsuto; Coates, Michael I.; Farrar, Robert; Larson, Peter; Manning, Phillip L.; Wogelius, Roy A.; Edwards, Nicholas P.; Anné, Jennifer; Bergmann, Uwe; Palmer, A. Richard; Currie, Philip J. (05.02.2019). „Schleimaale aus der Kreidezeit der Tethys und die Versöhnung des morphologisch-molekularen Konflikts in der frühen Wirbeltierphylogenie“ . Proceedings of the National Academy of Sciences . 116 (6): 2146–2151 . Bibcode : 2019PNAS..116.2146M . doi : 10.1073/pnas.1814794116 . ISSN 0027-8424 . PMC 6369785 . PMID 30670644 .
- ^ Zhuravlev, Andrey V.; Plotitsyn, Artem N. (18. Januar 2022). „Die Krise der Conodontendiversität im mittleren bis späten Tournaisium: ein Vergleich zwischen Nordost-Laurussia und Nordost-Sibirien“ . Palaeoworld . 31 (4): 633–645 . doi : 10.1016/j.palwor.2022.01.001 . S2CID 246060690. Abgerufen am 16. Oktober 2022 .
- ^ Shi, Yukun; Wang, Xiangdong; Fan, Junxuan; Huang, Hao; Xu, Huiqing; Zhao, Yingying; Shen, Shuzhong (September 2021). „Karbonisch-frühes Permisches marines Biodiversifizierungsereignis (CPBE) während der späten paläozoischen Eiszeit“ . Earth-Science Reviews . 220 103699. Bibcode : 2021ESRv..22003699S . doi : 10.1016/j.earscirev.2021.103699 . Abgerufen am 4. September 2022 .
- ^ Sepkoski, JJ (2002). „Ein Kompendium fossiler mariner Tiergattungen“. Bulletins of American Paleontology . 363 : 1–560 .
- ^ Ginot, Samuel; Goudemand, Nicolas (Dezember 2020). „Globale Klimaveränderungen erklären die Haupttrends der Conodontendiversität, aber nicht deren endgültiges Verschwinden“ . Global and Planetary Change . 195 103325. Bibcode : 2020GPC...19503325G . doi : 10.1016/j.gloplacha.2020.103325 . S2CID 225005180 .
- ^ Mikkos Phylogenie-Archiv [1] Haaramo, Mikko (2007). „ Conodonta – Conodonten “ . Abgerufen am 30.12.2015 .
Weiterführende Literatur
- Aldridge, RJ; Briggs, DEG; Smith, M. Paul ; Clarkson, ENK; Clark, NDL (1993). „Die Anatomie der Conodonten“. Philosophical Transactions of the Royal Society of London, Series B. 340 ( 1294): 405–421 . doi : 10.1098/rstb.1993.0082 .
- Aldridge, RJ; Purnell, MA (1996). „Die Kontroversen um die Conodonten“. Trends in Ecology and Evolution . 11 (11): 463–468 . Bibcode : 1996TEcoE..11..463A . doi : 10.1016/0169-5347(96)10048-3 . hdl : 2381/18155 . PMID 21237922 .
- Donoghue, PCJ; Forey, PL; Aldridge, RJ (2000). „Conodonten-Affinität und Chordaten-Phylogenie“. Biological Reviews . 75 (2): 191–251 . doi : 10.1111/j.1469-185X.1999.tb00045.x . PMID 10881388. S2CID 22803015 .
- Gould, Stephen Jay (1985). „Rätsel vereinfachen“. In: Das Lächeln des Flamingos , S. 245–260. New York: W. W. Norton and Company. ISBN 0-393-30375-6Die
- Janvier, P. (1997). „Euconodonta“ . Das Tree of Life Webprojekt . Abgerufen am 5. September 2007 .
- Knell, Simon J. Das große Fossilienrätsel: Die Suche nach dem Conodontentier (Indiana University Press; 2012) 440 Seiten
- Sweet, Walter (1988). Die Conodonta: Morphologie, Taxonomie, Paläoökologie und Evolutionsgeschichte eines längst ausgestorbenen Tierstammes . Oxford, Clarendon Press .
- Sweet, WC; Donoghue, PCJ (2001). „Conodonten: Vergangenheit, Gegenwart und Zukunft“ (PDF) . Journal of Paleontology . 75 (6): 1174–1184 . Bibcode : 2001JPal ... 75.1174S . doi : 10.1666/0022-3360(2001)075<1174:CPPF>2.0.CO;2 . ISSN 0022-3360 . S2CID 53395896. Archiviert (PDF) vom Original am 30.10.2022.
- Lindström, Maurits (1970). „Eine supragenerische Taxonomie der Conodonten“. Lethaia . 3 (4): 427–445 . Bibcode : 1970Letha...3..427L . doi : 10.1111/j.1502-3931.1970.tb00834.x .
Externe Links
- Mark Purnell . „Eine schräge Vorderansicht eines Modells des Apparats des pennsylvanischen Conodonten Idiognathodus “ .
- "„Die Kiefer, die fangen“: Eine Einführung in die Conodonta . Palæos . Abgerufen am 1. Juli 2013 .
- Jim Davison (15.10.2002). „Ordovizische Conodonten“ . Abgerufen am 07.07.2009 .