Seelilien (Crinoides) sind marine Wirbellose , die die Klasse Crinoidea bilden . Seelilien, die im Erwachsenenstadium mit einem Stiel am Meeresboden befestigt bleiben, werden gemeinhin als Seelilien bezeichnet , während die ungestielten Formen, Haarsterne [ 3 ] [ 4 ] oder Comatuliden genannt , zur größten Seelilienordnung, den Comatulida, gehören . Seelilien sind Stachelhäuter (Echinodermata ) und gehören zum Stamm der Stachelhäuter (Echinodermata) , zu dem auch Seesterne , Schlangensterne , Seeigel und Seegurken zählen . [ 5 ] Sie leben sowohl in flachen Gewässern [ 6 ] als auch in Tiefen von über 9.000 m. [ 7 ]
Adulte Seelilien zeichnen sich dadurch aus, dass sich ihre Mundöffnung auf der Oberseite befindet. Diese ist von Fangarmen umgeben und mit einem U-förmigen Darm verbunden. Der After liegt auf der Mundscheibe nahe der Mundöffnung. Obwohl die grundlegende fünfzählige Symmetrie der Stachelhäuter bei den meisten Seelilien erkennbar ist, sind die fünf Arme in zehn oder mehr Untergliederungen gegliedert. Diese tragen federartige Fiederblättchen und sind weit gespreizt, um Plankton aus dem Wasser aufzunehmen. In einem bestimmten Lebensabschnitt besitzen die meisten Seelilien einen kurzen Stiel, mit dem sie sich am Untergrund festhalten . Viele leben jedoch nur als Jungtiere festsitzend und schwimmen erst als ausgewachsene Tiere frei.
Es sind nur etwa 700 lebende Arten von Seelilien bekannt [ 8 ] , doch war diese Klasse in der Vergangenheit wesentlich zahlreicher und vielfältiger. Einige mächtige Kalksteinschichten aus dem mittleren Paläozoikum bis zum Jura bestehen fast vollständig aus disartikulierten Seelilienfragmenten. [ 9 ] [ 10 ] [ 11 ]
Etymologie
Der Name „Crinoidea“ stammt vom altgriechischen Wort κρίνον ( krínon ), „Lilie“, mit dem Suffix -oid , das „ähnlich“ bedeutet. [ 12 ] [ 13 ]
Morphologie

Der Grundkörper der Seelilien besteht aus einem Stiel (bei adulten Haarsternen nicht vorhanden) und einer Krone. Diese setzt sich aus einem becherförmigen Zentralkörper, der Theka, und fünf Armen zusammen, die meist verzweigt und federartig sind. Mund und After befinden sich auf der Oberseite der Theka, wodurch die Dorsalseite (Oberseite) die Mundöffnung bildet. Dies unterscheidet sich von anderen Stachelhäutern wie Seeigeln , Seesternen und Schlangensternen , bei denen sich der Mund auf der Unterseite befindet. [ 14 ] Zahlreiche Kalkplatten bilden den Hauptteil der Seelilien, während Weichgewebe nur einen geringen Anteil ausmacht. Diese Knochenfragmente fossilieren gut, und einige Kalksteinschichten aus dem Unterkarbon um Clitheroe in England bestehen fast ausschließlich aus einer vielfältigen Fauna von Seelilienfossilien. [ 15 ]
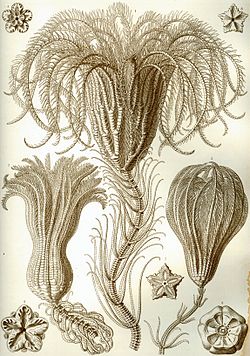
Der Stiel der Seelilien besteht aus einer Säule hochporöser Ossikel, die durch Bindegewebe verbunden sind. Er verankert sich mit einer abgeflachten Haftscheibe oder mit Wirteln gegliederter, wurzelartiger Strukturen, den sogenannten Cirren , am Untergrund . Weiter oben am Stiel können sich weitere Cirren befinden. Bei Seelilien, die sich an harte Oberflächen anheften, können die Cirren robust und gebogen sein und Vogelfüßen ähneln. Leben Seelilien hingegen auf weichem Sediment, sind die Cirren schlank und stäbchenförmig. Junge Haarsterne besitzen einen Stiel, der jedoch später abstirbt. Viele Arten behalten einige Cirren an der Basis ihrer Krone. Die meisten lebenden Seelilien sind freischwimmend und besitzen nur einen rudimentären Stiel. Bei Tiefseearten, die noch einen Stiel aufweisen, kann dieser bis zu 1 m lang werden (ist aber meist deutlich kleiner). Fossilien mit bis zu 20 m langen Stielen sind bekannt. [ 5 ]
Die Theka ist fünfzählig (pentamer) und homolog zum Körper oder zur Scheibe anderer Stachelhäuter. Ihre Basis bildet der becherförmige Kelch aus Ossikeln (Knochenplatten), während die Oberseite vom schwach verkalkten Tegmen , einer membranösen Scheibe, gebildet wird. Das Tegmen ist in fünf Ambulakralbereiche unterteilt, darunter eine tiefe Furche, aus der die Ambulakralfüßchen hervortreten, sowie fünf Interambulacralbereiche dazwischen. Die Mundöffnung befindet sich nahe der Mitte oder am Rand des Tegmens, und Ambulakralfurchen führen von der Basis der Arme zur Mundöffnung. Der After liegt ebenfalls auf dem Tegmen, oft auf einem kleinen, erhöhten Kegel in einem Interambulacralbereich. Die Theka ist relativ klein und enthält die Verdauungsorgane der Seelilie. [ 5 ]
Die Arme werden von einer Reihe gelenkiger Ossikel gestützt, die denen des Stiels ähneln. Ursprünglich besaßen Seelilien nur fünf Arme, doch bei den meisten modernen Formen teilen sich diese am zweiten Ossikel in zwei, sodass insgesamt zehn Arme vorhanden sind. Bei den meisten lebenden Arten, insbesondere den freischwimmenden Haarsternen, verzweigen sich die Arme mehrfach und bilden bis zu 200 Verzweigungen. Da die Arme gegliedert sind, können sie sich einrollen. Sie sind beidseitig abwechselnd mit kleineren, gegliederten Anhängseln, den sogenannten Pinnulae, besetzt, die ihnen ihr federartiges Aussehen verleihen. Sowohl Arme als auch Pinnulae tragen Ambulakralfüßchen an den Rändern der Ambulakralfurchen. Die Ambulakralfüßchen treten in Dreiergruppen unterschiedlicher Größe auf; sie besitzen keine Saugnäpfe und dienen dem Festhalten und Manipulieren von Nahrungspartikeln. Die Furchen sind mit Zilien ausgestattet , die die Nahrungsaufnahme erleichtern, indem sie die organischen Partikel entlang des Arms in den Mund befördern. [ 5 ]
 Stiel, Theka und Arme einer "echten" (gestielten) Seelilie (Familie Isselicrinidae )
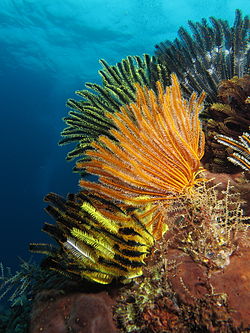
 Oxycomanthus bennetti (comatulid)
 Tegmen einer Lamprometra palmata : Die Mundöffnung befindet sich in der Mitte der 5 Fressrillen, der After am oberen Ende der Säule.
 Nahaufnahme der Cirren, die es den Comatuliden ermöglichen, zu laufen und sich festzuhalten
 Nahaufnahme der Fiederblättchen einer Tropiometra carinata (mit dem Parasiten Myzostoma fuscomaculatum )
Fütterung

Seelilien sind passive Suspensionsfresser , die mit ihren federartigen Armen Plankton und kleine Detrituspartikel aus dem vorbeiströmenden Meerwasser filtern . Die Arme sind fächerförmig aufgestellt und stehen senkrecht zur Strömung. Mobile Seelilien suchen Felsen, Korallenstöcke oder andere Erhebungen auf, um ihre Nahrungsquellen optimal zu nutzen. Die Nahrungspartikel werden von den primären (längsten) Ambulakralfüßchen aufgefangen, die vollständig ausgestreckt und von den Fiederblättchen aufrecht gehalten werden und so ein Fangnetz bilden. Die sekundären und tertiären Ambulakralfüßchen dienen der Manipulation der aufgenommenen Nahrung. [ 5 ]
Die Ambulakralfüßchen sind mit klebrigem Schleim bedeckt , der alle damit in Kontakt kommenden Partikel einfängt. Sobald sie ein Nahrungspartikel gefangen haben, schleudern die Ambulakralfüßchen es in die Ambulakralrinne, wo die Zilien den Schleim und die Nahrungspartikel zum Mund befördern. Lappen an den Seiten der Rinne helfen, den Schleimstrom zu halten. Die gesamte Länge der Nahrungsfangfläche kann sehr groß sein; die 56 Arme einer Japanischen Seelilie , mit jeweils 24 cm langen Armen, erreichen einschließlich der Fiederblättchen eine Gesamtlänge von 80 m. Im Allgemeinen haben Seelilien, die in planktonarmen Umgebungen leben, längere und stärker verzweigte Arme als solche, die in nahrungsreichen Umgebungen leben. [ 5 ]
Der Mund geht in eine kurze Speiseröhre über . Da kein eigentlicher Magen vorhanden ist, ist die Speiseröhre direkt mit dem Darm verbunden , der in einer einzigen Schleife um die Innenseite des Nierenkelchs verläuft. Der Darm weist häufig zahlreiche Ausstülpungen auf , von denen einige lang oder verzweigt sein können. Das Darmende mündet in ein kurzes, muskulöses Rektum . Dieses steigt zum Anus auf, der aus einer kleinen, kegelförmigen Vorwölbung am Rand des Tegmen hervortritt. Der Kot wird zu großen, schleimverklebten Kotpillen geformt, die auf das Tegmen und von dort auf den Untergrund fallen. [ 5 ]
Prädation
Exemplare des Seeigels Calocidaris micans, die in der Nähe der Seelilie Endoxocrinus parrae gefunden wurden , enthielten große Mengen an Stielabschnitten in ihrem Darm. Diese bestanden aus artikulierten Ossikeln mit Weichgewebe, während das lokale Sediment nur disartikulierte Ossikel ohne Weichgewebe enthielt. Diese Seeigel sind höchstwahrscheinlich Fressfeinde der Seelilien, die daraufhin fliehen und dabei einen Teil ihres Stiels abgeben. [ 16 ]
Verschiedene Seelilienfossilien deuten auf mögliche prähistorische Fressfeinde hin. Koprolithen von Fischen und Kopffüßern enthielten Ossikel verschiedener Seelilien, darunter die pelagische Seelilie Saccocoma aus den jurassischen Lagerstätten Solnhofen [ 17 ] . Beschädigte Seelilienstiele mit Bissspuren, die den Zahnplatten von Coccosteiden ( Placodermen) entsprechen , wurden im späten Devon Polens gefunden [ 18 ] . Die Kelche mehrerer Seelilien aus dem Devon bis zum Karbon weisen eng mit ihnen vergesellschaftete Gehäuse der Schnecke Platyceras auf [ 19 ] . Bei einigen Exemplaren befindet sich die Schnecke über dem After, was darauf hindeutet, dass Platyceras ein koprophager Kommensale war, während sie bei anderen direkt über einem Bohrloch liegt, was auf eine schädlichere Beziehung schließen lässt [ 20 ] .
Wassergefäßsystem
Wie andere Stachelhäuter besitzen auch Seelilien ein Wassergefäßsystem , das den hydraulischen Druck in den Ambulakralfüßchen aufrechterhält . Dieses ist nicht wie bei anderen Stachelhäutern über eine Madrepore mit dem umgebenden Meerwasser verbunden , sondern nur über zahlreiche Poren mit dem Coelom (der Leibeshöhle). Das Hauptflüssigkeitsreservoir ist der muskulöse Ringkanal, der über mit Kalk ausgekleidete Steinkanäle mit dem Coelom verbunden ist. Das Coelom ist durch Mesenterien in mehrere miteinander verbundene Räume unterteilt . Es umschließt die Eingeweide in der Scheibe und verzweigt sich im Stiel und in den Armen, wobei kleinere Äste in die Fiederblättchen reichen. Die Kontraktion des Ringkanals bewirkt das Ausfahren der Ambulakralfüßchen. Drei schmale Äste des Coeloms münden in jeden Arm, zwei oral und einer aboral, sowie in die Fiederblättchen. Die Zilienbewegung bewirkt einen langsamen Flüssigkeitsstrom (1 mm pro Sekunde) in diesen Kanälen, nach außen in den oralen und nach innen in den aboralen Ästen. Dies ist der Haupttransportweg für Nährstoffe und Abfallprodukte. Sie besitzen kein Herz und kein separates Kreislaufsystem, aber ein großes Blutgefäß, das sogenannte Axialorgan, an der Basis der Diskus enthält einige schlanke, blind endende Röhren unbekannter Funktion, die sich in den Stiel erstrecken. [ 5 ]
Diese verschiedenen flüssigkeitsgefüllten Räume dienen nicht nur dem Nährstofftransport im Körper, sondern auch der Atmung und Ausscheidung. Sauerstoff wird primär über die Ambulakralfüßchen aufgenommen, die die dünnsten Wände des Körpers aufweisen. Der weitere Gasaustausch findet über die große Oberfläche der Arme statt. Es gibt keine spezialisierten Ausscheidungsorgane; Abfallstoffe werden von phagozytären Coelomocyten aufgenommen. [ 5 ]
Nervensystem
Das Nervensystem der Seelilien ist in drei Abschnitte unterteilt, die durch zahlreiche Verbindungen miteinander verbunden sind. Der orale oder oberste Abschnitt ist der einzige, der mit den Nervensystemen anderer Stachelhäuter homolog ist . Er besteht aus einem zentralen Nervenring, der die Mundhöhle umgibt, und radialen Nerven, die sich in die Arme verzweigen und sensorische Funktionen haben. Darunter liegt ein mittlerer Nervenring, von dem radiale Nerven abgehen, welche die Arme und Pinnulae versorgen. Diese Nerven sind motorischer Natur und steuern die Muskulatur der Ambulakralfüßchen. Der dritte Abschnitt des Nervensystems liegt aboral und ist für die Beuge- und Bewegungsfunktionen der Arme, Pinnulae und Cirren verantwortlich. Er ist in einer Ansammlung von Nervengewebe nahe der Basis des Kelchs zentriert und versorgt jeden Arm mit einem einzelnen Nerv und den Stiel mit mehreren Nerven. [ 5 ]
Fortpflanzung und Lebenszyklus
Seelilien sind getrenntgeschlechtlich , es gibt also entweder Männchen oder Weibchen. Bei den meisten Arten befinden sich die Gonaden in den Fiederblättchen, bei einigen wenigen jedoch in den Armen. Nicht alle Fiederblättchen sind reproduktiv, sondern nur diejenigen, die dem Scheitel am nächsten liegen. Die Gameten werden in Genitalkanälen gebildet, die von Genitalhöhlen umschlossen sind. Die Fiederblättchen platzen schließlich auf und geben Spermien und Eier ins umgebende Meerwasser frei. Bei bestimmten Gattungen, wie beispielsweise Antedon , werden die befruchteten Eier mit Sekreten aus Epidermisdrüsen an den Armen festgeklebt; bei anderen, insbesondere Kaltwasserarten aus der Antarktis, werden die Eier in spezialisierten Säcken an den Armen oder Fiederblättchen ausgebrütet . [ 5 ]
Aus den befruchteten Eiern schlüpfen freischwimmende Vitellaria-Larven . Die bilateral-symmetrische Larve ist tonnenförmig und trägt ringförmige Wimpern sowie ein Büschel Sinneshaare am oberen Pol. Während in den vier anderen rezenten Stachelhäuterklassen sowohl fressende (planktotrophe) als auch nicht-fressende (lecithotrophe) Larven vorkommen, scheinen alle heutigen Seelilien von einem überlebenden Taxon abzustammen, das nach dem Massenaussterben im Perm einen genetischen Flaschenhals erlitt und dabei das fressende Larvenstadium verlor. [ 21 ] Die freischwimmende Phase der Larve dauert nur wenige Tage, bevor sie sich am Meeresboden festsetzt und sich mithilfe einer Haftdrüse an ihrer Unterseite an der Oberfläche anhaftet. Anschließend durchläuft die Larve eine längere Metamorphosephase zu einem gestielten Jungtier und wird dabei radialsymmetrisch. Auch die freischwimmenden Haarsterne durchlaufen dieses Stadium, wobei sich das ausgewachsene Tier schließlich vom Stiel löst. [ 5 ]
Regeneration
Seelilien können sich nicht wie einige Seesterne und Schlangensterne klonal vermehren, sind aber in der Lage, verlorene Körperteile zu regenerieren. Von Fressfeinden abgerissene oder durch widrige Umweltbedingungen beschädigte Arme können nachwachsen, und selbst die Eingeweide können sich innerhalb weniger Wochen regenerieren. [ 5 ] Das oberste Segment des Stiels und die Basalplatten besitzen die Fähigkeit, die gesamte Krone zu regenerieren. Nährstoffe und andere Bestandteile des Stiels, insbesondere der oberen 5 cm, werden für die Kronenregeneration verwendet. [ 22 ]
Seelilien sind seit dem Paläozoikum in der Lage, Körperteile zu regenerieren. [ 22 ] Diese Regenerationsfähigkeit könnte für das Überleben von Angriffen durch Raubfische von entscheidender Bedeutung sein. [ 5 ]
Fortbewegung

Die meisten modernen Haarsterne (Crinoiden) sind frei beweglich und besitzen als ausgewachsene Tiere keinen Stiel. Beispiele für fossile Haarsterne, die als freischwimmend interpretiert wurden, sind Marsupites , Saccocoma und Uintacrinus . [ 23 ] Im Allgemeinen bewegen sich Haarsterne kriechend fort und nutzen dabei ihre federartigen Arme, um ihren Körper zu stützen. Diese Bewegung kann durch eine Änderung der Strömungsrichtung, die Notwendigkeit, zum Fressen auf einen erhöhten Platz zu klettern, oder durch aggressives Verhalten eines anderen Tieres ausgelöst werden. [ 24 ] Haarsterne können auch schwimmen. Sie tun dies durch koordinierte, wiederholte und aufeinanderfolgende Bewegungen ihrer Arme in drei Gruppen. Zunächst bewegen sie sich aufwärts, bald jedoch horizontal und erreichen dabei eine Geschwindigkeit von etwa 7 cm pro Sekunde, wobei die Mundöffnung nach vorn gerichtet ist. Schwimmen erfolgt üblicherweise in Form kurzer Aktivitätsphasen von bis zu einer halben Minute Dauer und findet zumindest bei der Comatulidenart Florometra serratissima nur nach mechanischer Stimulation oder als Fluchtreaktion auf einen Fressfeind statt. [ 24 ]
Im Jahr 2005 wurde eine Stielseelilie ( Neocrinus decorus ) dabei beobachtet, wie sie sich vor der Insel Grand Bahama über den Meeresboden fortbewegte. Zwar war bekannt, dass sich Stielseelilien fortbewegen, doch die bisherige Höchstgeschwindigkeit lag bei 0,6 m pro Stunde. Die Aufnahme von 2005 zeigte, dass sich ein Exemplar mit einer deutlich höheren Geschwindigkeit von 4 bis 5 cm pro Sekunde bzw. 144 bis 180 m pro Stunde über den Meeresboden bewegte. [ 25 ]
Evolution


Ursprünge
Wenn man den rätselhaften Echmatocrinus aus dem Burgess Shale außer Acht lässt , datieren die frühesten bekannten, eindeutig belegten Crinoidengruppen auf das Ordovizium vor 480 Millionen Jahren. Zwei konkurrierende Hypothesen betreffen den Ursprung dieser Gruppe: Die traditionelle Ansicht besagt, dass sich die Crinoiden aus den Blastozoen (den Eocrinoiden und ihren abgeleiteten Nachkommen, den Blastoiden und Cystoiden ) entwickelten, während die populärste Alternative annimmt, dass sich die Crinoiden früh von den Edrioasteroiden abspalteten . [ 26 ] Die Debatte ist schwer zu entscheiden, unter anderem weil alle drei potenziellen Vorfahren viele Merkmale gemeinsam haben, darunter Radiärsymmetrie, Kalkplatten und gestielte oder direkte Anhaftung am Untergrund. [ 26 ]
Jüngste Forschungsergebnisse liefern nur schwache Belege dafür, dass Camptostroma die Schwestergruppe der Crinoiden ist . [ 27 ] [ 28 ] Andere Phylogenien sind jedoch hinsichtlich der Verwandtschaftsverhältnisse – ob näher mit den Crinoiden, Eocrinoiden oder Eleutherozoen verwandt – uneindeutig . [ 29 ]
Diversität
Stachelhäuter mit mineralisierten Skeletten traten im frühen Kambrium (vor 540 Millionen Jahren) in den Fossilienbestand ein, und in den folgenden 100 Millionen Jahren dominierten die Seelilien und Blastoiden (ebenfalls gestielte Filtrierer). [ 30 ] Damals umfassten die Stachelhäuter 20 Taxa , von denen nur fünf die darauffolgenden Massenaussterben überlebten. Die lange und abwechslungsreiche geologische Geschichte der Seelilien zeigt, wie gut sich die Stachelhäuter an die Filtrierung von Nahrung angepasst hatten. [ 5 ]
Die Crinoiden durchliefen zwei große Phasen abrupter adaptiver Radiation . Die erste ereignete sich im Ordovizium (vor 485 bis 444 Millionen Jahren) und wurde viel später im Paläozoikum von einem selektiven Massenaussterben am Ende des Perms gefolgt , bei dem alle Blastoiden und die meisten Crinoiden ausstarben. [ 31 ] Nach diesem Massenaussterben erreichten die Crinoiden nie wieder die morphologische Vielfalt und die dominante Stellung, die sie im Paläozoikum innegehabt hatten, sondern entwickelten stattdessen andere ökologische Strategien als die, die sich zuvor als so erfolgreich erwiesen hatten. [ 31 ]
Die zweite Radiation fand im frühen Trias (vor etwa 230 Millionen Jahren) statt [ 31 ] und führte zur Verbreitung von Formen mit flexiblen Armen. Auch die Beweglichkeit – vorwiegend eine Reaktion auf den Prädationsdruck – wurde deutlich häufiger als die Sessilität. [ 32 ] Diese Radiation erfolgte etwas früher als die mesozoische marine Revolution , möglicherweise weil sie hauptsächlich durch die Zunahme der benthischen Prädation, insbesondere durch Seeigel, bedingt war. [ 33 ] Mit der Zunahme der Prädation durch Seeigel vor etwa 225 Millionen Jahren zogen sich gestielte Crinoiden allmählich in tiefere Gewässer zurück, während bewegliche Formen ihre Stiele nur in ihren frühen Lebensstadien beibehielten. [ 34 ] [ 35 ]
Fossilien


Einige fossile Seelilien, wie beispielsweise Pentacrinites , scheinen an Treibholz angeheftet gelebt zu haben, und es werden häufig ganze Kolonien gefunden. Manchmal saugte sich dieses Treibholz mit Wasser voll und sank auf den Meeresgrund, wobei es die daran haftenden Seelilien mit sich riss. Der Stiel von Pentacrinites kann mehrere Meter lang werden. Heutige Verwandte von Pentacrinites leben in sanften Strömungen und heften sich mit dem Ende ihres Stiels an Felsen.
Im Jahr 2012 berichteten drei Geologen, dass sie komplexe organische Moleküle aus 340 Millionen Jahre alten ( mississippischen ) Fossilien verschiedener Seelilienarten isoliert hatten. Diese Moleküle, die als „ aromatischen oder polyaromatischen Chinonen ähnelnd “ identifiziert wurden, sind die ältesten, die eindeutig einzelnen Fossilien zugeordnet werden konnten, da man annimmt, dass sie während des Fossilisationsprozesses durch ausgefälltes Kalzit in den Poren der Knochen eingeschlossen wurden. [ 36 ]
Fossilien von Seelilien, insbesondere disartikulierte Säulenknochen, können so zahlreich sein, dass sie mitunter als primäre Stützgesteine in Sedimentgesteinen dienen. Solche Gesteine werden als Enkrinite bezeichnet .
Taxonomie


Die Crinoidea gelten seit ihrer Definition durch Miller im Jahr 1821 als eigenständige Gruppe der Stachelhäuter. [ 37 ] Sie umfasst zahlreiche ausgestorbene Ordnungen sowie vier eng verwandte, lebende Ordnungen ( Comatulida , Cyrtocrinida , Hyocrinida und Isocrinida ), die zur Untergruppe Articulata gehören . Die lebenden Crinoidea umfassen etwa 540 Arten.
- Klasse Crinoidea
- † Protocrinoidea ( incertae sedis )
- Unterklasse † Camerata
- Orden † Diplobathrida
- Ordnung † Monobathrida
- Unterklasse Pentacrinoidea
- Parvclass † Disparida
- Ordnung † Eustenocrinida
- Ordnung † Maennilicrinida
- Ordnung † Tetragonocrinida
- Ordnung † Calceocrinida
- Parvclass Cladida
- Überordnung † Porocrinoidea
- Ordnung † Hybocrinida
- Ordnung † Porocrinida
- Superorder † Flexibilia
- Ordnung † Sagenocrinida
- Ordnung † Taxocrinida
- Magnorder Eucladida
- † Ampelocrinida ( incertae sedis )
- Überordnung † Cyathosformes
- Superorder Articulata
- Ordnung † Encrinida
- Ordnung † Holocrinida
- Ordnung † Millericrinida
- Ordnung † Roveacrinida
- Ordnung † Uintacrinida
- Comatulida bestellen
- Ordnung Cyrtocrinida
- Ordnung Hyocrinida
- Ordnung Isocrinida
- Überordnung † Porocrinoidea
- Parvclass † Disparida
Phylogenie
Die Phylogenie , geologische Geschichte und Klassifikation der Crinoidea wurden von Wright et al. (2017) diskutiert. [ 38 ] Diese Autoren präsentierten neue phylogenetisch und rangbasiert basierte Klassifikationen, die auf den Ergebnissen aktueller phylogenetischer Analysen beruhen. [ 37 ] [ 39 ] [ 40 ] [ 41 ] Ihre rangbasierte Klassifikation der höheren Crinoiden-Taxa (bis hinunter zur Ordnung), die noch nicht vollständig aufgelöst ist und zahlreiche Gruppen mit unsicherer Zuordnung ( incertae sedis ) aufweist, wird im Kladogramm veranschaulicht .
| Crinoidea |
| ||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||




In der Kultur
Fossilisierte Säulensegmente von Seelilien, die aus Kalksteinbrüchen auf Lindisfarne gewonnen oder am Strand angespült wurden, wurden zu Halsketten oder Rosenkränzen verarbeitet und im Mittelalter als St.-Cuthbert-Perlen bekannt . [ 42 ] Ähnlich werden fossilisierte Säulensegmente von Seelilien im Mittleren Westen der USA manchmal als Indianerperlen bezeichnet . [ 43 ] Die Seelilienart Eperisocrinus missouriensis ist das Staatsfossil von Missouri . [ 44 ] Die Aliens der Filmreihe Alien wurden von Seelilien inspiriert. [ 45 ]
Galerie fossiler Seelilien
 Zerdrückte Seelilienstängel aus der Shamshak-Formation, Jura, Iran
 Fossil aus Deutschland, das Stiel, Kelch und Arme mit Fiederblättchen zeigt
 330 Millionen Jahre alte Seelilienfossilien aus Iowa
 Seelilien-Haftorgane und Moostierchen auf einem Geröll aus dem Oberordovizium aus dem nördlichen Kentucky

 Crinoidensäulen ( Isocrinus nicoleti ) aus der mitteljurassischen Carmel -Formation bei Mount Carmel Junction, Utah
 Wurzelartiger Haftapparat einer Seelilie aus dem Oberordovizium, Süd- Ohio
 Innenabdruck des Stiellumens einer Seelilie (und Außenabdruck des Stiels) aus dem Unterkarbon, Ohio
 Fossilien von Seirocrinus subsingularis aus der jurassischen Holzmaden-Schwarzschieferformation, Deutschland
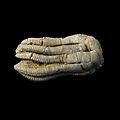 Crinoide
 Einige ausgestorbene Seelilienarten, wie beispielsweise Monstrocrinus aus dem Unter- bis Mitteldevon , konnten komplexe Stachelanordnungen auf Kelchplatten aufweisen.
Siehe auch
- Echinobase ist eine Datenbank, die Informationen über verschiedene Stachelhäuter, darunter auch eine Seelilienart, enthält.
Referenzen
- ^ "Crinoidea – Digitaler Atlas des antiken Lebens" .
- ^ Hansson, Hans (2012). „Crinoidea“ . WoRMS . World Register of Marine Species . Abgerufen am 30.01.2013 .
- ^ Gordon, DP (2009). Neuseeländisches Biodiversitätsinventar: 1. Tierreich: Radiata, Lophotrochozoa, Deuterostomia . Christchurch: Canterbury University Press. S. 373. ISBN 978-1-877257-72-8Die
- ^ McFall-Johnsen, Morgan; Lee, Lloyd (12. August 2023). „Wissenschaftler entdeckten ein neues Meerestier mit 20 ‚Armen‘ und benannten es nach einer Erdbeere“ . Insider . Abgerufen am 13. August 2023 .
{{cite news}}: CS1 maint: deprecated archival service (link) - Ruppert , Edward E .; Fox, Richard S.; Barnes, Robert D. (2004). Invertebrate Zoology : A Functional Evolutionary Approach ( 7. Aufl .) . Belmont , CA : Thomson-Brooks/Cole . S. 917–918 . ISBN 9780030259821OCLC 53021401 .
- ^ Zmarzly, DL (1985). „Die Flachwasser-Seelilienfauna des Kwajalein-Atolls, Marshallinseln: Ökologische Beobachtungen, Vergleiche zwischen den Atollen und zoogeographische Verwandtschaften“ . Pacific Science . 39 : 340–358 . hdl : 10125/941 .
- ^ Oji, T.; Ogawa, Y.; Hunter, A. W. & Kitazawa, K. (2009). „Entdeckung dichter Ansammlungen von Stielseelilien im Izu-Ogasawara-Graben, Japan“ . Zoological Science . 26 (6): 406–408 . doi : 10.2108/zsj.26.406 . PMID 19583499. S2CID 5991969 .
- ^ Fortpflanzung und Entwicklung bei Stachelhäutern und Vorläufern
- ^ Lucia, F. Jerry (1962). „Diagenese eines Crinoidensediments“. SEPM Journal of Sedimentary Research . 32 : 848–865 . doi : 10.1306/74D70D8F-2B21-11D7-8648000102C1865D .
- ^ Blyth Cain, JD (September 1968). „Aspekte des Ablagerungsmilieus und der Paläoökologie von Crinoidenkalken“. Scottish Journal of Geology . 4 (3): 191–208 . Bibcode : 1968ScJG....4..191B . doi : 10.1144/sjg04030191 . S2CID 219538295 .
- ^ Jach, Renata (April 2005). „Sturmdominierte Ablagerung der Crinoidenkalke des Unterjura in der Krížna-Einheit, Westliche Tatra, Polen“. Facies . 50 ( 3–4 ): 561–572 . Bibcode : 2005Faci...50..561J . doi : 10.1007/s10347-004-0028-3 . S2CID 128947091 .
- ^ Webster's New Universal Unabridged Dictionary. 2. Aufl. 1979.
- ^ "Seelilie" . Online-Etymologiewörterbuch .
- ^ O'Hara, Timothy; Byrne, Maria (2017). Australian Echinoderms: Biology, Ecology and Evolution . Csiro Publishing. S. 171–180 . ISBN 978-1-4863-0763-0Die
- ^ Hess, Hans; Brett, Carlton E.; Ausich, William I.; Simms, Michael J. (2002). Fossil Crinoiden . Cambridge University Press. S. 3–5 , 45–46 . ISBN 978-0-521-52440-7Die
- ^ Baumiller, Tomasz K.; Mooi, Rich; Messing, Charles G. (2008). „Seeigel auf der Wiese: Paläobiologische und evolutionäre Implikationen der Prädation von Seelilien durch Cidaroidea“. Paleobiology . 34 ( 1): 22–34 . Bibcode : 2008Pbio...34...22B . doi : 10.1666/07031.1 . JSTOR 20445573. S2CID 85647638 .
- ^ Hess, Hans (2003). „Oberjurassischer Solnhofener Plattenkalk Bayerns“ . In: Brett, Carlton E.; Ausich, William I.; Simms, Michael J. (Hrsg.). Fossile Crinoiden . Cambridge University Press. S. 216–224 . ISBN 978-0-521-52440-7Die
- ^ Gorzelak, Przemys-Gesetz; Rakowicz, Lukasz; Salamon, Mariusz A.; Szrek, Piotr (2011). „Abgeleitete Placoderm-Bissspuren auf devonischen Crinoiden aus Polen“. Neues Jahrbuch für Geologie und Paläontologie – Abhandlungen . 259 : 105–12 . doi : 10.1127/0077-7749/2010/0111 .
- ^ Brett, Carlton E.; Walker, Sally E. (2002). „Prädatoren und Prädation in paläozoischen Meeresumgebungen“ (PDF) . Paleontological Society Papers . 8 : 93–118 . doi : 10.1017/S1089332600001078 . Archiviert vom Original (PDF) am 13.08.2012 . Abgerufen am 06.04.2014 .
- ^ Gahn, Forest J.; Baumiller, Tomasz K. (2003). „Befall von Kameraten-Crinoiden des mittleren Devons (Givetium) durch Platyceratiden-Gastropoden und seine Implikationen für die Natur ihrer biotischen Interaktion“ (PDF) . Lethaia . 36 (2): 71–82 . Bibcode : 2003Letha..36...71G . doi : 10.1080/00241160310003072 . hdl : 2027.42/75509 .
- ^ Raff, RA; Byrne, M (2006). „Das aktive evolutionäre Leben von Stachelhäuterlarven“ . Heredity . 97 (3): 244–52 . doi : 10.1038/sj.hdy.6800866 . PMID 16850040 .
- ^ a b Amemiya, Shonan; Oji, Tatsuo (Juni 1992). „Regeneration in sea lilies“ . Nature . 357 (6379): 546–547. Bibcode : 1992Natur.357..546A . doi : 10.1038/357546a0 . ISSN 1476-4687 .
- ^ „Über Seelilien“ . FossilEra . Abgerufen am 15. März 2019 .
- ^ a b Shaw, GD; Fontaine, AR (2011). „Die Fortbewegung der Comatuliden Florometra serratissima (Echinodermata: Crinoidea) und ihre adaptive Bedeutung“. Canadian Journal of Zoology . 68 (5): 942–950 . doi : 10.1139/z90-135 .
- ^ Baumiller, Tomasz K.; Messing, Charles G. (6. Oktober 2005). „Kriechen in gestielten Seelilien: In-situ-Beobachtungen, funktionelle Morphologie und Implikationen für paläozoische Taxa“ . Geological Society of America Abstracts with Programs . Band 37. S. 62. Archiviert vom Original am 12. Mai 2006. Abgerufen am 6. April 2014 .
- ^ a b Guensburg, Thomas E.; Mooi, Rich; Sprinkle, James; David, Bruno; Lefebvre, Bertrand (2010). „Pelmatozoenarme aus dem mittleren Kambrium Australiens: Überbrückung der Lücke zwischen Brachiolen und Brachialarmen? Kommentar: Es gibt keine Brücke“. Lethaia . 43 (3): 432–440 . Bibcode : 2010Letha..43..432G . doi : 10.1111/j.1502-3931.2010.00220.x .
- ^ Guensburg, Thomas E.; Sprinkle, James; Mooi, Rich; Lefebvre, Bertrand; David, Bruno; Roux, Michael; Derstler, Kraig (2020). „ Athenacrinus n. gen. und andere frühe Echinodermen-Taxa liefern Erkenntnisse über den Ursprung der Crinoiden und die Evolution ihrer Arme“. Journal of Paleontology . 94 (2): 311–333 . doi : 10.1017/jpa.2019.87 .
- ^ Guensburg, Thomas E.; Mooi, Rich; Mongiardino Koch, Nicolás (2023). „Ursprung des Crinoidenkelchs bei stammesradialen Echinodermen“ . Journal of Paleontology . 97 (5): 1092–1115 . doi : 10.1017/jpa.2023.14 .
- ^ Rahman, Imran A.; Zamora, Samuel (Juli 2024). „Ursprung und frühe Evolution der Stachelhäuter“. Annual Review of Earth and Planetary Sciences . 52 : 295–320 . doi : 10.1146/annurev-earth-031621-113343 . hdl : 10141/623070 .
- ^ Waggoner, Ben (16. Januar 1995). „Echinodermata: Fossil Record“ . Einführung in die Echinodermata . Museum für Paläontologie: Universität von Kalifornien in Berkeley . Abgerufen am 30. März 2019 .
- Foote , Mike ( 1999). „ Morphologische Diversität in der evolutionären Radiation paläozoischer und postpaläozoischer Crinoiden“. Paleobiology . 25 (Sonderausgabe 1): 1–116 . doi : 10.1666 /0094-8373(1999)25[1:MDITER]2.0.CO;2 . ISSN 0094-8373 . JSTOR 2666042. S2CID 85586709 .
- ^ Baumiller, Tomasz K. (2008). „Ökologische Morphologie der Crinoiden“. Annual Review of Earth and Planetary Sciences . 36 : 221–249 . Bibcode : 2008AREPS..36..221B . doi : 10.1146/annurev.earth.36.031207.124116 .
- Baumiller , TK; Salamon, MA; Gorzelak, P; Mooi, R.; Messing, CG; Gahn, FJ (2010). „Postpaläozoische Crinoidenradiation als Reaktion auf benthische Prädation ging der mesozoischen marinen Revolution voraus“ . Proceedings of the National Academy of Sciences . 107 ( 13): 5893–5896 . Bibcode : 2010PNAS..107.5893B . doi : 10.1073 / pnas.0914199107 . JSTOR 25665085. PMC 2851891. PMID 20231453. INIST 22572914 .
- ^ Durch Raubtiere hervorgerufene makroevolutionäre Trends bei mesozoischen Crinoiden
- ^ Eskalierendes Wettrüsten: Raubseeigel treiben die Evolution voran
- ^ O'Malley, CE; Ausich, WI; Chin, Y.-P. (2013). „Isolierung und Charakterisierung der frühesten taxonspezifischen organischen Moleküle (Mississippium, Crinoidea)“. Geology . 41 (3): 347. Bibcode : 2013Geo....41..347O . doi : 10.1130/G33792.1 .Man beachte, dass der erste Satz des Artikels auf phys.org im Widerspruch zum Artikel selbst steht, in dem mehrere Isolierungen von Molekülen aus bestimmten Fossilien im Laufe des letzten Jahrzehnts besprochen werden.
- Pam Frost Gorder (19. Februar 2013). „Fossilien von Meereslebewesen liefern die ältesten Biomoleküle, die direkt aus einem Fossil isoliert wurden . “ Phys.org .
- ^ a b Ausich, William I.; Kammer, Thomas W.; Rhenberg, Elizabeth C.; Wright, David F. (2015). „Frühe Phylogenie der Crinoiden innerhalb der Pelmatozoen-Klade“ . Palaeontology . 58 (6): 937–952 . Bibcode : 2015Palgy..58..937A . doi : 10.1111/pala.12204 .
- ^ Wright, David F.; Ausich, William I.; Cole, Selina R.; Peter, Mark E.; Rhenberg, Elizabeth C. (2017). „Phylogenetische Taxonomie und Klassifikation der Crinoidea (Echinodermata)“ . Journal of Paleontology . 91 (4): 829–846 . Bibcode : 2017JPal...91..829W . doi : 10.1017/jpa.2016.142 .
- ^ Wright, David F. (2017). „Bayesianische Schätzung fossiler Phylogenien und die Evolution früh- bis mittelpaläozoischer Crinoiden (Echinodermata)“ . Journal of Paleontology . 91 (4): 799–814 . Bibcode : 2017JPal...91..799W . doi : 10.1017/jpa.2016.141 .
- ^ Cole, Selina R. (2017). „Phylogenie und morphologische Evolution der ordovizischen Camerata (Klasse Crinoidea, Stamm Echinodermata)“ . Journal of Paleontology . 91 (4): 815–828 . Bibcode : 2017JPal...91..815C . doi : 10.1017/jpa.2016.137 .
- ^ Rouse, Greg W.; Jermiin, Lars S.; Wilson, Nerida G.; Eeckhaut, Igor; Lanterbecq, Deborah; Oji, Tatsuo; Young, Craig M.; Browning, Teena; Cisternas, Paula; Helgen, Lauren E.; Stuckey, Michelle; Messing, Charles G. (2013). „Fest, frei und fest: die launische Phylogenie der vorhandenen Crinoidea (Echinodermata) und ihr perm-triasischer Ursprung“. Molekulare Phylogenetik und Evolution . 66 (6): 161–181 . Bibcode : 2013MolPE..66..161R . doi : 10.1016/j.ympev.2012.09.018 . PMID 23063883 .
- ^ Lane, N. Gary; Ausich, William I. (2001). „Die Legende von St. Cuthberts Perlen: Eine paläontologische und geologische Perspektive“. Folklore . 112 (1): 65–73 . JSTOR 1260865 .
- ^ „Identifizierung unbekannter Fossilien (anhand ihrer Form)“ . Kentucky Geological Survey / University of Kentucky . Abgerufen am 21. Juni 2009 .
- ^ „Missouris Staatsfossil“ . Büro des Staatssekretärs von Missouri . Abgerufen am 31. März 2019 .
- ^ Bressan, David (26. April 2019). „Die Fossilien, die ‚Alien‘ inspirierten“" . Forbes . Abgerufen am 1. Februar 2024 .
Externe Links
- Messing, Charles. „Seestern am Stiel: Eine Einführung in die Crinoiden“ . Vimeo.
- Charles Messings Crinoidenseiten