
Jasmonat ( JA ) und seine Derivate sind lipidbasierte Pflanzenhormone , die eine Vielzahl von Prozessen in Pflanzen regulieren, von Wachstum und Photosynthese bis hin zur reproduktiven Entwicklung. Insbesondere sind JAs entscheidend für die Abwehr von Pflanzenfressern und die Reaktion von Pflanzen auf ungünstige Umweltbedingungen sowie andere abiotische und biotische Stressfaktoren. [ 1 ] Einige JAs können auch als flüchtige organische Verbindungen (VOCs) freigesetzt werden , um die Kommunikation zwischen Pflanzen bei drohenden Gefahren zu ermöglichen. [ 2 ]
Geschichte
Die Isolierung von Methyljasmonat (MeJA) aus Jasminöl, das aus Jasminum grandiflorum gewonnen wurde, führte 1962 zur Entdeckung der Molekularstruktur der Jasmonate und ihrer Bezeichnung [ 3 ] [ 4 ] , während die Jasmonsäure selbst 1971 von Alderidge et al. aus Lasiodiplodia theobromae isoliert wurde . [ 4 ]
Biosynthese
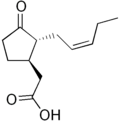

Die Biosynthese wird in Acosta und Farmer (2010), Wasternack und Hause (2013) sowie Wasternack und Song (2017) beschrieben. [ 4 ] Jasmonate (JA) sind Oxylipine , d. h. Derivate oxygenierter Fettsäuren . Sie werden in Chloroplastenmembranen aus Linolensäure biosynthetisiert. Die Synthese beginnt mit der Umwandlung von Linolensäure in 12-Oxo-phytodiensäure (OPDA), die anschließend reduziert und dreimal oxidiert wird, um (+)-7-iso-JA, die Jasmonatsäure, zu bilden. Nur die Umwandlung von Linolensäure in OPDA findet im Chloroplasten statt ; alle nachfolgenden Reaktionen erfolgen im Peroxisom . [ 5 ]
JA selbst kann weiter zu aktiven oder inaktiven Derivaten metabolisiert werden. Methyl-JA (MeJA) ist eine flüchtige Verbindung, die möglicherweise für die Kommunikation zwischen Pflanzen verantwortlich ist . JA konjugiert mit der Aminosäure Isoleucin (Ile) zu JA-Ile ((+)-7-iso-Jasmonoyl- L- Isoleucin), das laut Fonseca et al. (2009) an den meisten JA-Signalwegen beteiligt ist [ 6 ] – siehe auch die Übersicht von Katsir et al. (2008) [ 5 ] . Van Poecke & Dicke (2003) fanden jedoch heraus, dass die Emission flüchtiger Stoffe in Arabidopsis kein JA-Ile erfordert, ebenso wenig wie VanDoorn et al. (2011) für die Herbivorenresistenz von Solanum nigrum [ 6 ] . JA wird durch Decarboxylierung zu cis-Jasmon umgewandelt .
Funktion
Obwohl Jasmonat (JA) viele verschiedene Prozesse in der Pflanze reguliert, ist seine Rolle bei der Wundheilung am besten erforscht. Nach mechanischer Verletzung oder Fraß wird die JA-Biosynthese rasch aktiviert, was zur Expression der entsprechenden Antwortgene führt. Beispielsweise produziert die Tomate nach einer Verletzung Abwehrmoleküle, die die Blattverdauung im Darm von Insekten hemmen . Ein weiteres indirektes Ergebnis der JA-Signalübertragung ist die Freisetzung flüchtiger JA-Derivate. MeJA auf Blättern kann über die Luft zu benachbarten Pflanzen transportiert werden und die Konzentration von Transkripten erhöhen, die mit der Wundheilung in Zusammenhang stehen. [ 1 ] Im Allgemeinen kann diese Freisetzung die JA-Biosynthese und die Zellsignalisierung weiter steigern und so benachbarte Pflanzen dazu anregen, ihre Abwehrkräfte im Falle von Fraß zu aktivieren.
JAs spielen auch eine Rolle beim Zelltod und der Blattalterung. JA kann mit zahlreichen Kinasen und Transkriptionsfaktoren interagieren, die mit der Alterung assoziiert sind. Zudem kann JA durch die Induktion der Akkumulation reaktiver Sauerstoffspezies (ROS) zum mitochondrialen Zelltod führen. Diese Verbindungen schädigen die Mitochondrienmembranen und beeinträchtigen die Zelle durch Apoptose , den programmierten Zelltod. Die Funktion von JA in diesen Prozessen deutet auf Mechanismen hin, mit denen sich die Pflanze gegen biotische Belastungen verteidigt und die Ausbreitung von Infektionen eindämmt . [ 7 ]
JA und seine Derivate spielen auch eine Rolle bei der Pflanzenentwicklung, der Symbiose und einer Vielzahl anderer Prozesse, die in der folgenden Liste aufgeführt sind.
- Durch die Untersuchung von Mutanten mit JA-Überexpression wurde früh entdeckt, dass JA das Wurzelwachstum hemmt. Der zugrundeliegende Mechanismus ist noch nicht vollständig geklärt, aber Mutanten im COI1-abhängigen Signalweg zeigen tendenziell eine geringere Hemmung, was darauf hindeutet, dass der COI1-Signalweg für die Hemmung des Wurzelwachstums notwendig ist. [ 8 ] [ 9 ]
- JA spielt vielfältige Rollen in der Blütenentwicklung . Mutanten in der JA-Synthese oder der JA-Signalübertragung in Arabidopsis weisen männliche Sterilität auf, typischerweise aufgrund einer verzögerten Entwicklung. Dieselben Gene, die die männliche Fertilität in Arabidopsis fördern, fördern die weibliche Fertilität in Tomaten. Eine Überexpression von 12-OH-JA kann die Blüte ebenfalls verzögern. [ 9 ]
- JA und MeJA hemmen die Keimung nicht-dormanter Samen und stimulieren die Keimung dormanter Samen. [ 10 ]
- Hohe JA-Konzentrationen fördern die Anreicherung von Speicherproteinen; Gene, die für vegetative Speicherproteine kodieren, reagieren auf JA. Insbesondere induziert Tuberonsäure, ein JA-Derivat, die Knollenbildung. [ 11 ] [ 12 ]
- JAs spielen auch eine Rolle in der Symbiose zwischen Pflanzen und Mikroorganismen; ihre genaue Funktion ist jedoch noch unklar. Derzeit scheint JA den Signalaustausch und die Knöllchenbildung zwischen Leguminosen und Rhizobien zu regulieren. Andererseits scheinen erhöhte JA-Konzentrationen die Kohlenhydratverteilung und die Stresstoleranz in Mykorrhiza-Pflanzen zu regulieren. [ 13 ]

- Jasmonate spielen eine Rolle in der Entwicklung fleischfressender Pflanzen wie der Venusfliegenfalle . Forschungsergebnisse deuten darauf hin, dass die evolutionäre Umfunktionierung des Jasmonat-Signalwegs, der bei nicht-fleischfressenden Pflanzen die Abwehr gegen Pflanzenfresser vermittelt, die Evolution des Pflanzenfleischfressens begünstigt hat. Jasmonate können das Schließen der Fallen signalisieren und die Freisetzung von Enzymen und Nährstofftransportern steuern, die für die Verdauung der Pflanze wichtig sind. Allerdings nutzen nicht alle fleischfressenden Pflanzen den Jasmonat-Signalweg in gleicher Weise. Fettkräuter unterscheiden sich deutlich von Venusfliegenfallen und Sonnentau und haben möglicherweise JA-unabhängige Mechanismen zur Regulierung von Verdauungsenzymen entwickelt. [ 14 ] [ 15 ]
Rolle in der Pathogenese
Pseudomonas syringae verursacht die bakterielle Fleckenkrankheit bei Tomaten, indem es den Jasmonat-Signalweg der Pflanze kapert. Dieses Bakterium nutzt ein Typ-III-Sekretionssystem, um einen Cocktail viraler Effektorproteine in die Wirtszellen einzuschleusen.
Eines der in dieser Mischung enthaltenen Moleküle ist das Phytotoxin Coronatin (COR). JA-unempfindliche Pflanzen sind hochresistent gegen P. syringae und reagieren nicht auf COR; zudem reichte die Anwendung von MeJA aus, um die Virulenz in COR-Mutantenbakterien wiederherzustellen. Infizierte Pflanzen exprimierten auch nachgeschaltete JA- und Wundreaktionsgene, jedoch reduzierte Expressionsniveaus von Pathogenese-bezogenen (PR-)Genen. All diese Daten legen nahe, dass COR über den JA-Signalweg in Wirtspflanzen eindringt. Es wird angenommen, dass die Aktivierung einer Wundreaktion auf Kosten der Pathogenabwehr geht. Durch die Aktivierung des JA-Wundreaktionswegs könnte P. syringae Ressourcen vom Immunsystem des Wirts abziehen und so effektiver infizieren. [ 16 ]
Pflanzen produzieren N-Acylamide , die durch Aktivierung der JA-Biosynthese und -Signalübertragung Resistenz gegen nekrotrophe Pathogene vermitteln. Arachidonsäure (AA), das in Metazoen , nicht aber in Pflanzen vorkommende Gegenstück des JA-Vorläufers α-LeA , wird von Pflanzen wahrgenommen und bewirkt einen Anstieg des JA-Spiegels, der mit einer Resistenz gegen nekrotrophe Pathogene einhergeht. AA ist ein evolutionär konserviertes Signalmolekül , das in Pflanzen ähnlich wie in tierischen Systemen auf Stress reagiert. [ 17 ]
Wechselwirkungen mit anderen Verteidigungswegen
Der Jasmonat-Signalweg (JA-Signalweg) ist zwar entscheidend für die Wundheilung, aber nicht der einzige Signalweg, der die Abwehr in Pflanzen vermittelt. Für eine optimale und gleichzeitig effiziente Abwehr müssen die verschiedenen Abwehrwege miteinander interagieren können, um die Reaktionen auf abiotische und biotische Belastungen feinabzustimmen und zu spezifizieren.
Eines der am besten untersuchten Beispiele für die Wechselwirkung von Jasmonsäure (JA) findet sich bei Salicylsäure (SA). SA, ein Hormon, vermittelt die Abwehr gegen Pathogene, indem es sowohl die Expression von Pathogenese-bezogenen Genen als auch die systemische erworbene Resistenz (SAR) induziert, bei der die gesamte Pflanze nach lokaler Exposition gegenüber einem Pathogen eine Resistenz gegen dieses entwickelt.
Wund- und Pathogenreaktionen scheinen sich negativ zu beeinflussen. Beispielsweise reduziert die Hemmung der Phenylalanin-Ammoniak-Lyase (PAL), eines Enzyms, das Vorstufen von Salicylsäure (SA) synthetisiert, die systemisch erworbene Resistenz (SAR), erhöht aber die Resistenz gegen Insektenfraß. Umgekehrt verstärkt die Überexpression von PAL die SAR, verringert aber die Wundreaktion nach Insektenfraß. [ 18 ] Generell wurde festgestellt, dass Pathogene, die in lebenden Pflanzenzellen leben, empfindlicher auf SA-induzierte Abwehrmechanismen reagieren, während pflanzenfressende Insekten und Pathogene, die vom Zelltod profitieren, anfälliger für JA-Abwehrmechanismen sind. Dieser Kompromiss zwischen den Signalwegen optimiert somit die Abwehr und schont Pflanzenressourcen. [ 19 ]
Es besteht auch eine Wechselwirkung zwischen JA und anderen pflanzlichen Hormonwegen, wie beispielsweise denen der Abscisinsäure (ABA) und des Ethylens (ET). Diese Interaktionen optimieren die Abwehr gegen Pathogene und Herbivoren unterschiedlicher Lebensweisen. So kann die MYC2-Aktivität sowohl durch JA- als auch durch ABA-Signalwege stimuliert werden, wodurch Signale beider Wege integriert werden können. Andere Transkriptionsfaktoren wie ERF1 entstehen als Folge der JA- und ET-Signalgebung. Alle diese Moleküle können kombiniert wirken, um spezifische Wundreaktionsgene zu aktivieren. [ 19 ]
Schließlich beschränkt sich die Wechselwirkung nicht nur auf die Abwehr: Auch in der Entwicklung spielen JA- und ET-Interaktionen eine entscheidende Rolle, und ein Gleichgewicht zwischen den beiden Verbindungen ist für die korrekte Entwicklung des apikalen Hakens in Arabidopsis- Keimlingen notwendig. Dennoch ist weitere Forschung erforderlich, um die Moleküle zu identifizieren, die diese Wechselwirkung regulieren. [ 18 ]
Signalmechanismus
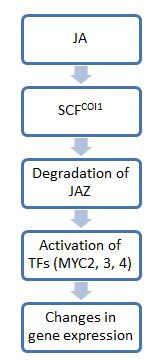
Im Allgemeinen ähneln die Schritte der Jasmonat-(JA)-Signalübertragung denen der Auxin -Signalübertragung: Im ersten Schritt markieren E3-Ubiquitin-Ligase-Komplexe Substrate mit Ubiquitin, um sie für den Abbau durch Proteasomen zu kennzeichnen . Im zweiten Schritt werden Transkriptionsfaktoren genutzt , um physiologische Veränderungen zu bewirken. Eines der Schlüsselmoleküle in diesem Signalweg ist JAZ, das als Ein-/Ausschalter für die JA-Signalübertragung fungiert. In Abwesenheit von JA binden JAZ-Proteine an nachgeschaltete Transkriptionsfaktoren und schränken deren Aktivität ein. In Gegenwart von JA oder seinen bioaktiven Derivaten werden JAZ-Proteine jedoch abgebaut, wodurch Transkriptionsfaktoren für die Expression von Genen freigesetzt werden, die für Stressreaktionen benötigt werden . [ 20 ]
Da JAZ in coi1- Nullmutanten nicht verschwand , konnte gezeigt werden, dass das Protein COI1 den Abbau von JAZ vermittelt. COI1 gehört zur Familie der hochkonservierten F-Box-Proteine und rekrutiert Substrate für die E3-Ubiquitin-Ligase SCF COI1 . Die resultierenden Komplexe werden als SCF-Komplexe bezeichnet . [ 21 ] Diese Komplexe binden JAZ und leiten es zum proteasomalen Abbau. Aufgrund des breiten Spektrums an JA-Molekülen aktivieren jedoch nicht alle JA-Derivate diesen Signalweg, und die Bandbreite der daran beteiligten Moleküle ist unbekannt. [ 5 ] Bisher konnte nur für JA-Ile gezeigt werden, dass es für den COI1-vermittelten Abbau von JAZ11 notwendig ist. JA-Ile und strukturell verwandte Derivate können an COI1-JAZ-Komplexe binden und deren Ubiquitinierung und damit ihren Abbau fördern. [ 5 ]
Dieses mechanistische Modell legt die Möglichkeit nahe, dass COI1 als intrazellulärer Rezeptor für JA-Signale fungiert. Jüngste Forschungsergebnisse bestätigen diese Hypothese, indem sie zeigen, dass der COI1-JAZ-Komplex als Korezeptor für die JA-Wahrnehmung wirkt. JA-Ile bindet sowohl an eine Ligandenbindungsstelle in COI1 als auch an einen 20 Aminosäuren langen Abschnitt des konservierten Jas-Motivs in JAZ. Dieser JAZ-Rest verschließt die Bindungsstelle in COI1 und hält JA-Ile dort gebunden. Darüber hinaus ko-purifizierten und entfernten Sheard et al. 2010 [ 22 ] Inositolpentakisphosphat (InsP₅ ) aus COI1 und wiesen so nach, dass InsP₅ ein notwendiger Bestandteil des Korezeptors ist und dessen Wirkung verstärkt. Die Ergebnisse von Sheard deuten möglicherweise auf eine unterschiedliche Bindungsspezifität verschiedener SCF- COI1 -InsP₅ - JAZ -Komplexe hin. [ 6 ]
Sobald Transkriptionsfaktoren von JAZ freigesetzt werden, können sie Gene aktivieren, die für eine spezifische JA-Antwort benötigt werden. Die am besten untersuchten Transkriptionsfaktoren dieses Signalwegs gehören zur MYC-Familie, die durch ein basisches Helix-Loop-Helix (bHLH)-DNA-Bindungsmotiv charakterisiert ist. Diese Faktoren (es gibt drei: MYC2, 3 und 4) wirken tendenziell additiv. Beispielsweise ist eine Pflanze, die nur ein MYC-Gen verloren hat, anfälliger für Insektenfraß als eine normale Pflanze. Eine Pflanze, die alle drei verloren hat, ist genauso anfällig für Schäden wie coi1-Mutanten, die überhaupt nicht auf JA reagieren und keine Abwehr gegen Pflanzenfresser aufbauen können. Obwohl alle diese MYC-Moleküle ähnliche Funktionen haben, unterscheiden sie sich stark in ihren Expressionsmustern und Transkriptionsfunktionen. So hat MYC2 beispielsweise einen größeren Einfluss auf das Wurzelwachstum als MYC3 oder MYC4. [ 8 ]
Darüber hinaus reguliert MYC2 die JAZ-Expression und führt so zu einer negativen Rückkopplungsschleife . [ 8 ] Diese Transkriptionsfaktoren beeinflussen die JAZ-Konzentration nach JA-Signalisierung auf unterschiedliche Weise. Die JAZ-Konzentration wiederum beeinflusst die Expression von Transkriptionsfaktoren und Genen. Mit anderen Worten: Zusätzlich zur Aktivierung verschiedener Antwortgene können die Transkriptionsfaktoren die JAZ-Konzentration variieren, um eine spezifische Reaktion auf JA-Signale zu erreichen.
Referenzen
- Farmer , E. E .; Ryan, C. A. (1990). „Interplant communication: airborne methyl jasmonate induces synthesis of proteinase inhibitors in plant leaves“ . Proc Natl Acad Sci USA . 87 (19): 7713–7716 . Bibcode : 1990PNAS...87.7713F . doi : 10.1073 / pnas.87.19.7713 . PMC 54818. PMID 11607107 .
- Baldwin , IT; Halitschke, R.; Paschold, A.; von Dahl, CC; Preston, CA (2006). „Flüchtige Signale in Pflanzen-Pflanzen-Interaktionen: „Sprechende Bäume“ im Zeitalter der Genomik“. Science . 311 ( 5762): 812–815 . Bibcode : 2006Sci...311..812B . doi : 10.1126/science.1118446 . PMID 16469918. S2CID 9260593 .
- ^ Demole E; Lederer, E.; Mercier, D. (1962). „Isolierung und Bestimmung der Struktur von Jasmin-Jasmonat, charakteristischer Duftstoffbestandteil der Jasmin-Essenz“. Helv Chim Acta . 45 (2): 675–85 . doi : 10.1002/hlca.19620450233 .
- Per , Tasir S.; Khan, M. Iqbal R.; Anjum, Naser A.; Masood, Asim; Hussain, Sofi Javed; Khan, Nafees A. (2018). „Jasmonate in Pflanzen unter abiotischem Stress: Wechselwirkungen mit anderen Phytohormonen sind wichtig“. Environmental and Experimental Botany . 145. Elsevier : 104–120 . doi : 10.1016 /j.envexpbot.2017.11.004 . ISSN 0098-8472 .
- Katsir , L.; Chung, HS; Koo, AJK ; Howe, GA (2008). „Jasmonat-Signalisierung: Ein konservierter Mechanismus der Hormonwahrnehmung“ . Current Opinion in Plant Biology . 11 ( 4). Elsevier : 428–435 . doi : 10.1016/j.pbi.2008.05.004 . PMC 2560989. PMID 18583180 .
- Schuman , Meredith C .; Baldwin, Ian T. (11.03.2016). „Die Schichten der Pflanzenreaktionen auf pflanzenfressende Insekten“ . Annual Review of Entomology . 61 (1). Annual Reviews : 373–394 . doi : 10.1146/annurev - ento- 010715-023851 . ISSN 0066-4170 . PMID 26651543. S2CID 24720368 .
- Reinbothe , C.; Springer, A.; Samol, I.; Reinbothe, S. (September 2009). „Pflanzliche Oxylipine: Rolle der Jasmonsäure beim programmierten Zelltod, der Abwehr und der Blattseneszenz“ . The FEBS Journal . 276 (17): 4666–81 . doi : 10.1111 / j.1742-4658.2009.07193.x . PMID 19663906. S2CID 1349010 .
- ^ abcFernandez-Calvo, P.; Chini, A.; Fernandez-Barbero, G.; Chico, J.-M.; Gimenez-Ibanez, S.; Geerinck, J.; Eeckhout, D.; Schweizer, F.; Godoy, M.; Franco-Zorrilla, J. M.; Pauwels, L.; Witters, E.; Puga, M. I.; Paz-Ares, J.; Goossens, A.; Reymond, P.; De Jaeger, G.; Solano, R. (18 February 2011). "The Arabidopsis bHLH Transcription Factors MYC3 and MYC4 Are Targets of JAZ Repressors and Act Additively with MYC2 in the Activation of Jasmonate Responses". The Plant Cell Online. 23 (2): 701–715. doi:10.1105/tpc.110.080788. PMC 3077776. PMID 21335373.
- ^ abWasternack, C. (18 May 2007). "Jasmonates: An Update on Biosynthesis, Signal Transduction and Action in Plant Stress Response, Growth and Development". Annals of Botany. 100 (4): 681–697. doi:10.1093/aob/mcm079. PMC 2749622. PMID 17513307.
- ^Creelman, Robert A.; Mullet, John E. (1 June 1997). "Biosynthesis and Action of Jasmonates in Plants". Annual Review of Plant Physiology and Plant Molecular Biology. 48 (1): 355–381. doi:10.1146/annurev.arplant.48.1.355. PMID 15012267.
- ^Anderson, JM. (1988). "Jasmonic acid-dependent increases in the level of specific polypeptides in soybean suspension cultures and seedlings". Journal of Plant Growth and Regulation. 7 (4): 203–11. doi:10.1007/BF02025263. S2CID 37785073.
- ^Pelacho, AM; Mingo-Castel, AM. (1991). "Jasmonic acid induces tuberization of potato stolons cultured in vitro". Plant Physiology. 97 (3): 1253–55. doi:10.1104/pp.97.3.1253. PMC 1081150. PMID 16668517.
- Hause , Bettina; Schaarschmidt, Sara (1. September 2009). „Die Rolle der Jasmonate in mutualistischen Symbiosen zwischen Pflanzen und bodenbürtigen Mikroorganismen“. Phytochemistry . 70 ( 13–14 ): 1589–1599 . doi : 10.1016/j.phytochem.2009.07.003 . PMID 19700177 .
- ^ a b Pain, Stephanie (2. März 2022). „Wie Pflanzen zu Raubtieren wurden“ . Knowable Magazine . doi : 10.1146/knowable-030122-1 . Abgerufen am 11. März 2022 .
- ^ Hedrich, Rainer; Fukushima, Kenji (17. Juni 2021). „Zum Ursprung des Fleischfressens: Molekulare Physiologie und Evolution von Pflanzen mit tierischer Ernährung“ . Annual Review of Plant Biology . 72 (1): 133–153 . doi : 10.1146/annurev-arplant-080620-010429 . ISSN 1543-5008 . PMID 33434053. S2CID 231595236. Abgerufen am 11. März 2022 .
- ^ Zhao, Y.; Thilmony, R.; Bender, C. L.; Schaller, A.; He, S. Y.; Howe, G. A. (November 2003). „Virulenzsysteme von Pseudomonas syringae pv. tomato fördern die bakterielle Fleckenkrankheit in Tomaten durch gezielte Beeinflussung des Jasmonat-Signalwegs“ . The Plant Journal . 36 (4): 485–99 . doi : 10.1046/j.1365-313x.2003.01895.x . PMID 14617079 .
- Wasternack , C.; Hause, B. (Juni 2013). „Jasmonate: Biosynthese, Wahrnehmung, Signaltransduktion und Wirkung in der pflanzlichen Stressreaktion, im Wachstum und in der Entwicklung. Eine Aktualisierung des Übersichtsartikels von 2007 in den Annals of Botany“ . Annals of Botany . 111 (6): 1021–1058 . doi : 10.1093/aob/mct067 . ISSN 0305-7364 . PMC 3662512. PMID 23558912 .
- ^ a b Turner, JG; Ellis, C.; Devoto, A. (2002). „Der Jasmonat - Signalweg“ . Plant Cell . 14 Suppl (7): 153–164 . doi : 10.1105/tpc.000679 . PMC 151253. PMID 12045275 .
- ^ a b Koornneef, A.; Pieterse, CMJ (1. März 2008). „Cross Talk in Defense Signaling“ . Plant Physiology . 146 (3): 839–844 . doi : 10.1104 /pp.107.112029 . PMC 2259093. PMID 18316638 .
- ^ Chini, A.; Fonseca, S.; Fernandez, G.; Adie, B.; Chico, JM; Lorenzo, O.; Garcia-Casado, G.; Lopez-Vidriero, I.; Lozano, FM; Ponce, MR; Micol, J. L; Solano, R. (2007). „Die JAZ-Repressorfamilie ist das fehlende Glied in der Jasmonat-Signalisierung.“ Natur . 448 (7154): 666–671 . Bibcode : 2007Natur.448..666C . doi : 10.1038/nature06006 . PMID 17637675 . S2CID 4383741 .
- ^ Devoto, A.; Nieto-Rostro, M.; Xie, D.; Ellis, C.; Harmston, R.; Patrick, E.; Davis, J.; Sherratt, L.; Coleman, M.; Turner, J. G. (November 2002). „COI1 links jasmonate signalling and fertility to the SCF ubiquitin-ligase complex in Arabidopsis“. The Plant Journal . 32 (4): 457–66 . doi : 10.1046/j.1365-313x.2002.01432.x . PMID 12445118 .
- ^ Sheard, Laura B.; Tan, Xu; Mao, Haibin; Withers, John; Ben-Nissan, Gili; Hinds, Thomas R.; Kobayashi, Yuichi; Hsu, Fong-Fu; Sharon, Michal; Browse, John; He, Sheng Yang; Rizo, Josep; Howe, Gregg A.; Zheng, Ning (6. Oktober 2010). „Jasmonat-Wahrnehmung durch Inositolphosphat-potenzierten COI1–JAZ-Co-Rezeptor“ . Nature . 468 ( 7322): 400–405 . Bibcode : 2010Natur.468..400S . doi : 10.1038/nature09430 . PMC 2988090. PMID 20927106 .