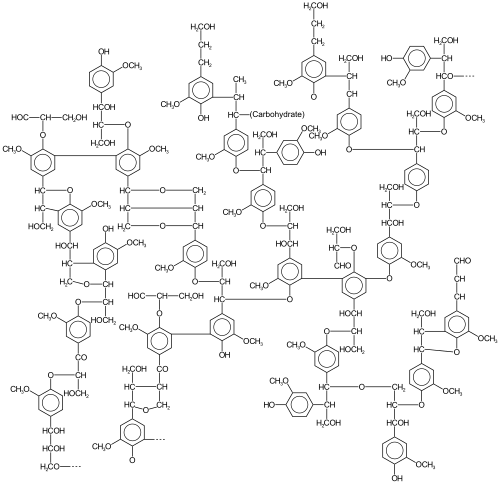
Lignin is a class of complex organic polymers that form key structural materials in the support tissues of most plants.[1] Lignins are particularly important in the formation of cell walls, especially in wood and bark, because they lend rigidity and do not rot easily. Chemically, lignins are polymers made by the cross-linking of phenolic precursors.[2]
History
Lignin was first mentioned in 1813 by the Swiss botanist A. P. de Candolle, who described it as a fibrous, tasteless material, insoluble in water and alcohol but soluble in weak alkaline solutions, and which can be precipitated from solution using acid.[3] He named the substance "lignine", which is derived from the Latin word lignum,[4] meaning wood. It is one of the most abundant organic polymers on Earth, exceeded only by cellulose and chitin. Lignin constitutes 30% of terrestrial non-fossil organic carbon[5] on Earth, and 20 to 35% of the dry mass of wood.[6]
Lignin is present in red algae, which suggest that the common ancestor of plants and red algae may have been pre-adapted to synthesize lignin. This finding also suggests that the original function of lignin may have been structural as it plays this role in the red alga Calliarthron, where it supports joints between calcified segments.[7]
Composition and structure
The composition of lignin varies from species to species. An example of composition from an aspen[8] sample is 63.4% carbon, 5.9% hydrogen, 0.7% ash (mineral components), and 30% oxygen (by difference),[9] corresponding approximately to the formula (C31H34O11)n.
Lignin ist eine Gruppe hochgradig heterogener Polymere, die aus wenigen Vorläufer-Lignolen entstehen. Die Heterogenität resultiert aus der Vielfalt und dem Vernetzungsgrad dieser Lignole. Die vernetzenden Lignole lassen sich in drei Haupttypen einteilen, die alle von Phenylpropan abgeleitet sind: Coniferylalkohol ( 3-Methoxy-4-hydroxyphenylpropan; dessen Rest G wird auch Guaiacyl genannt), Sinapylalkohol (3,5-Dimethoxy-4-hydroxyphenylpropan; dessen Rest S wird auch Syringyl genannt) und Paracoumarylalkohol (4-Hydroxyphenylpropan; dessen Rest H wird auch 4-Hydroxyphenyl genannt).
Die relativen Mengen der Vorläufermonomere (Lignole oder Monolignole) variieren je nach Pflanzenart. [ 5 ] Lignine werden typischerweise nach ihrem Syringyl/Guaiacyl-Verhältnis (S/G-Verhältnis) klassifiziert. Lignin aus Nacktsamern stammt vom Coniferylalkohol , der bei der Pyrolyse Guaiacyl (G) bildet. Bei Bedecktsamern wird ein Teil des Coniferylalkohols in Guaiacyl (S) umgewandelt. Daher enthält Lignin in Bedecktsamern sowohl Guaiacyl- als auch Guaiacyl-Komponenten. [ 10 ] [ 11 ]
Lignin besitzt Molekularmassen von über 10.000 u . Aufgrund seines hohen Anteils an aromatischen Untereinheiten ist es hydrophob . Der Polymerisationsgrad ist aufgrund der Heterogenität des Materials schwer zu bestimmen. Je nach Isolierungsmethode wurden verschiedene Lignintypen beschrieben. [ 12 ]

- Paracumarylalkohol , H
- Coniferylalkohol , G
- Sinapylalkohol , S
Viele Gräser bestehen hauptsächlich aus G, während einige Palmen vorwiegend S enthalten. [ 13 ] Alle Lignine enthalten geringe Mengen an unvollständigen oder modifizierten Monolignolen, und andere Monomere sind in nicht verholzenden Pflanzen prominent. [ 14 ]
Biologische Funktion
Lignin füllt die Zwischenräume in der Zellwand zwischen den Cellulose- , Hemicellulose- und Pektinkomponenten , insbesondere in Gefäß- und Stützgeweben: Xylemtracheiden , Gefäßelementen und Skleridenzellen .
Lignin spielt eine entscheidende Rolle beim Transport von Wasser und gelösten Nährstoffen in Pflanzenstängeln . Die Polysaccharidkomponenten der pflanzlichen Zellwände sind stark hydrophil und somit wasserdurchlässig , während Lignin eher hydrophob ist . Die Vernetzung der Polysaccharide durch Lignin behindert die Wasseraufnahme in die Zellwand. Dadurch ermöglicht Lignin dem Gefäßgewebe der Pflanze einen effizienten Wassertransport. [ 15 ] Lignin kommt in allen Gefäßpflanzen vor , [ 16 ] jedoch nicht in Moosen , was die Annahme stützt, dass die ursprüngliche Funktion von Lignin auf den Wassertransport beschränkt war.
Es ist kovalent an Hemicellulose gebunden und vernetzt dadurch verschiedene pflanzliche Polysaccharide , wodurch die Zellwand und somit die gesamte Pflanze mechanische Festigkeit erhält. [ 17 ] Seine bekannteste Funktion ist die Stützung und Festigung des Holzes (hauptsächlich bestehend aus Xylemzellen und verholzten Sklerenchymfasern ) in Gefäßpflanzen. [ 18 ] [ 19 ] [ 20 ]
Schließlich verleiht Lignin auch Krankheitsresistenz, indem es sich an der Stelle des Pathogeneintritts anreichert und die Pflanzenzelle dadurch weniger zugänglich für den Abbau der Zellwand macht. [ 21 ]
Wirtschaftliche Bedeutung

Die weltweite kommerzielle Ligninproduktion ist eine Folge der Papierherstellung. 1988 wurden weltweit über 220 Millionen Tonnen Papier produziert. [ 22 ] Ein Großteil dieses Papiers wurde delignifiziert; Lignin macht etwa ein Drittel der Masse der Lignocellulose aus, dem Vorprodukt von Papier. Lignin ist ein Hindernis für die Papierherstellung, da es farbig ist, an der Luft vergilbt und das Papier schwächt. Nach der Trennung von der Cellulose wird es als Brennstoff verbrannt. Nur ein Bruchteil findet Verwendung in einer Vielzahl von Anwendungen mit geringem Volumen, bei denen die Form, nicht aber die Qualität, wichtig ist. [ 23 ]
Mechanischer oder Hochleistungszellstoff , der zur Herstellung von Zeitungspapier verwendet wird , enthält noch den Großteil des ursprünglich im Holz vorhandenen Lignins. Dieses Lignin ist für die Vergilbung des Zeitungspapiers mit der Zeit verantwortlich. [ 4 ] Für hochwertiges Papier muss das Lignin aus dem Zellstoff entfernt werden. Diese Delignifizierungsverfahren sind Kerntechnologien der Papierindustrie und gleichzeitig Quelle erheblicher Umweltbedenken.
Bei der Sulfitzellstoffherstellung wird Lignin als Lignosulfonat aus dem Zellstoff entfernt . Für diese Lignosulfonate wurden bereits zahlreiche Anwendungen vorgeschlagen. [ 24 ] Sie werden als Dispergiermittel , Feuchthaltemittel , Emulsionsstabilisatoren und Komplexbildner ( Wasseraufbereitung ) eingesetzt. [ 25 ] Lignosulfonate waren auch die ersten Fließmittel bzw. Superplastifizierer , die in den 1930er Jahren Frischbeton zugesetzt wurden, um das Wasser-Zement-Verhältnis ( w/z ) zu senken. Dieses Verhältnis ist der Hauptparameter, der die Betonporosität und damit seine mechanische Festigkeit , seine Diffusionsfähigkeit und seine hydraulische Leitfähigkeit bestimmt – allesamt Parameter, die für seine Dauerhaftigkeit entscheidend sind. Lignin findet Anwendung als umweltverträgliches Staubbindemittel im Straßenbau. Darüber hinaus kann Lignin zusammen mit Cellulose zur Herstellung biologisch abbaubarer Kunststoffe verwendet werden, als Alternative zu kohlenwasserstoffbasierten Kunststoffen, sofern die Ligningewinnung umweltschonender erfolgt als die herkömmliche Kunststoffherstellung. [ 26 ]
Das beim Kraft-Verfahren abgetrennte Lignin wird üblicherweise wegen seines Brennwerts verbrannt und liefert so Energie für die Papierfabrik. Zwei kommerzielle Verfahren – LignoBoost (Schweden) und LignoForce (Kanada) – dienen der Ligningewinnung aus Schwarzlauge für höherwertige Anwendungen. Hochwertiges Lignin birgt das Potenzial, eine erneuerbare Quelle für aromatische Verbindungen in der chemischen Industrie zu werden, mit einem adressierbaren Marktvolumen von über 130 Milliarden US-Dollar. [ 27 ]
Da Lignin nach Cellulose das am häufigsten vorkommende Biopolymer ist , wurde es als Rohstoff für die Biokraftstoffproduktion untersucht und kann sich zu einem entscheidenden Pflanzenextrakt bei der Entwicklung einer neuen Klasse von Biokraftstoffen entwickeln. [ 28 ] [ 29 ]
Biosynthese
Die Ligninbiosynthese beginnt im Zytosol mit der Synthese glykosylierter Monolignole aus der Aminosäure Phenylalanin . Diese ersten Reaktionen verlaufen parallel zum Phenylpropanoid- Stoffwechselweg. Die angehängte Glucose macht die Monolignole wasserlöslich und verringert ihre Toxizität . Nach dem Transport durch die Zellmembran in den Apoplasten wird die Glucose abgespalten, und die Polymerisation beginnt. [ 30 ] Viele Aspekte des Lignin -Anabolismus sind selbst nach über einem Jahrhundert Forschung noch nicht vollständig verstanden. [ 5 ]

Der Polymerisationsschritt , eine Radikal-Radikal-Kupplung, wird durch oxidative Enzyme katalysiert . Sowohl Peroxidase als auch Laccase sind in den pflanzlichen Zellwänden vorhanden , und es ist nicht bekannt, ob eine oder beide dieser Enzymgruppen an der Polymerisation beteiligt sind. Auch niedermolekulare Oxidationsmittel könnten eine Rolle spielen. Das oxidative Enzym katalysiert die Bildung von Monolignolradikalen . Diese Radikale sollen häufig eine unkatalysierte Kupplung eingehen und so das Ligninpolymer bilden . [ 31 ] Eine alternative Theorie geht von einer nicht näher spezifizierten biologischen Steuerung aus. [ 1 ]
Biologischer Abbau
Im Gegensatz zu anderen Biopolymeren (z. B. Proteinen, DNA und sogar Cellulose) ist Lignin schwer abbaubar. Es ist resistent gegenüber säure- und basenkatalysierter Hydrolyse. Die Abbaubarkeit variiert je nach Pflanzenart und Gewebetyp. So ist beispielsweise Syringyl-(S)-Lignin anfälliger für den Abbau durch Pilze, da es weniger Aryl-Aryl-Bindungen und ein niedrigeres Redoxpotential als Guaiacyl-Einheiten aufweist. [ 32 ] [ 33 ] Durch die Vernetzung mit anderen Zellwandbestandteilen verringert Lignin die Zugänglichkeit von Cellulose und Hemicellulose für mikrobielle Enzyme (z. B. sterische Hinderung ), was zu einer reduzierten Verdaulichkeit der Biomasse führt. [ 15 ]
Zu den ligninabbauenden Enzymen gehören Häm-Peroxidasen wie Lignin-Peroxidasen , Mangan-Peroxidasen , vielseitige Peroxidasen und Farbstoff-entfärbende Peroxidasen sowie kupferbasierte Laccasen . Lignin-Peroxidasen oxidieren nicht-phenolisches Lignin, während Mangan-Peroxidasen ausschließlich phenolische Strukturen oxidieren. Farbstoff-entfärbende Peroxidasen (DyPs) zeigen katalytische Aktivität gegenüber einer Vielzahl von Ligninmodellverbindungen, ihr Substrat in vivo ist jedoch unbekannt. Laccasen oxidieren im Allgemeinen phenolische Substrate, einige Pilzlaccasen können jedoch in Gegenwart synthetischer Redoxmediatoren auch nicht-phenolische Substrate oxidieren. [ 34 ] [ 35 ]
Ligninabbau durch Pilze
Gut untersuchte ligninabbauende Enzyme finden sich in Phanerochaete chrysosporium [ 36 ] und anderen Weißfäulepilzen . Einige Weißfäulepilze, wie beispielsweise Ceriporiopsis subvermispora , können das Lignin in Lignocellulose abbauen , andere hingegen nicht. Der pilzliche Ligninabbau erfolgt größtenteils durch sezernierte Peroxidasen . Viele Pilzlaccasen werden ebenfalls sezerniert und erleichtern den Abbau phenolischer , von Lignin abgeleiteter Verbindungen. Es wurden jedoch auch mehrere intrazelluläre Pilzlaccasen beschrieben. Ein wichtiger Aspekt des pilzlichen Ligninabbaus ist die Aktivität von Hilfsenzymen, die das für die Funktion der Ligninperoxidase und anderer Hämperoxidasen benötigte H₂O₂ produzieren . [ 34 ]
Ligninabbau durch Bakterien
Bakterien fehlen die meisten Enzyme, die Pilze zum Abbau von Lignin nutzen, und Ligninderivate (aliphatische Säuren, Furane und gelöste Phenole) hemmen das Bakterienwachstum. [ 37 ] Dennoch kann der bakterielle Abbau recht umfangreich sein, [ 38 ] insbesondere in aquatischen Systemen wie Seen, Flüssen und Bächen, wo terrestrisches Material (z. B. Laubstreu ) in die Gewässer gelangen kann. Die ligninabbauende Aktivität von Bakterien wurde trotz ihrer Erstbeschreibung im Jahr 1930 noch nicht umfassend untersucht. Viele bakterielle DyPs wurden charakterisiert. Bakterien exprimieren keine der pflanzlichen Peroxidasen (Ligninperoxidase, Manganperoxidase oder vielseitige Peroxidasen), aber drei der vier DyP-Klassen kommen ausschließlich in Bakterien vor. Im Gegensatz zu Pilzen sind die meisten am Ligninabbau beteiligten bakteriellen Enzyme intrazellulär, darunter zwei DyP-Klassen und die meisten bakteriellen Laccasen. [ 35 ]
In der Umwelt kann Lignin entweder biotisch durch Bakterien oder abiotisch durch photochemische Umwandlung abgebaut werden, wobei letztere häufig die erstere unterstützt. [ 39 ] Neben dem Vorhandensein oder Fehlen von Licht beeinflussen verschiedene Umweltfaktoren die biologische Abbaubarkeit von Lignin, darunter die Zusammensetzung der Bakteriengemeinschaft, Mineralassoziationen und der Redoxzustand. [ 40 ] [ 41 ]
Bei Schiffsbohrwürmern wird das aufgenommene Lignin von Bakteriensymbionten der „ Alteromonas -ähnlichen Untergruppe “ im Typhlosol -Suborgan des Blinddarms verdaut . [ 42 ]
Pyrolyse
Die Pyrolyse von Lignin bei der Verbrennung von Holz oder der Holzkohleherstellung liefert eine Reihe von Produkten, von denen die charakteristischsten methoxysubstituierten Phenole sind . Zu den wichtigsten zählen Guajacol und Syringol sowie deren Derivate. Ihr Vorhandensein ermöglicht die Zuordnung einer Rauchquelle zu einem Holzfeuer. Beim Kochen ist Lignin in Form von Hartholz eine wichtige Quelle dieser beiden Verbindungen, die geräucherten Lebensmitteln wie Barbecue ihr charakteristisches Aroma und ihren Geschmack verleihen . Die Hauptaromastoffe von geräuchertem Schinken sind Guajacol und seine 4-, 5- und 6-Methylderivate sowie 2,6-Dimethylphenol. Diese Verbindungen entstehen durch den thermischen Abbau von Lignin im Holz, das in der Räucherei verwendet wird. [ 43 ]
Chemische Analyse
Die konventionelle Methode zur Ligninbestimmung in der Zellstoffindustrie ist der Klason-Lignin- und der säurelösliche Lignintest, ein standardisiertes Verfahren. Die Cellulose wird in Gegenwart von Säure thermisch aufgeschlossen. Der Rückstand wird als Klason-Lignin bezeichnet. Säurelösliches Lignin (ASL) wird mittels UV-Spektroskopie quantifiziert . Die Kohlenhydratzusammensetzung kann ebenfalls aus den Klason-Laugen analysiert werden, obwohl Zuckerabbauprodukte (Furfural und 5-Hydroxymethylfurfural ) vorhanden sein können. [ 44 ]
Zur Ligninbestimmung wird eine Lösung aus Salzsäure und Phloroglucin verwendet (Wiesner-Test). Aufgrund der im Lignin vorhandenen Coniferaldehydgruppen entsteht eine leuchtend rote Färbung. [ 45 ]
Die Thioglykolyse ist eine analytische Technik zur Ligninquantifizierung . [ 46 ] Die Ligninstruktur kann auch mittels Computersimulation untersucht werden. [ 47 ]
Die Thermochemolyse (chemischer Abbau einer Substanz unter Vakuum und bei hoher Temperatur) mit Tetramethylammoniumhydroxid (TMAH) oder Kupfer(II)-oxid [ 48 ] wurde ebenfalls zur Charakterisierung von Ligninen eingesetzt. Das Verhältnis von Syringyl-Lignol (S) zu Vanillyllignol (V) und von Cinnamyl-Lignol (C) zu Vanillyllignol (V) variiert je nach Pflanzenart und kann daher zur Bestimmung der Pflanzenherkunft in aquatischen Systemen (verholzt vs. nicht verholzt und Angiospermen vs. Gymnospermen) verwendet werden. [ 49 ] Das Verhältnis von Carbonsäure- (Ad) zu Aldehydformen (Al) der Lignole (Ad/Al) liefert Informationen zur Diagenese; höhere Verhältnisse deuten auf ein stärker abgebauten Material hin. [ 32 ] [ 33 ] Ein Anstieg des (Ad/Al)-Wertes deutet auf eine oxidative Spaltungsreaktion an der Alkyllignin-Seitenkette hin, die bei vielen Weißfäulepilzen und einigen Weichfäulepilzen als ein Schritt im Holzabbauprozess nachgewiesen wurde . [ 32 ] [ 33 ] [ 50 ] [ 51 ] [ 52 ]
Lignin und seine Modelle wurden eingehend mittels 1H- und 13C-NMR-Spektroskopie untersucht . Aufgrund der strukturellen Komplexität der Lignine sind die Spektren schlecht aufgelöst und die Quantifizierung ist schwierig. [ 53 ]
Siehe auch
Referenzen
- ^ ein b Saake, Bodo; Lehnen, Ralph (2007). "Lignin". Ullmanns Enzyklopädie der industriellen Chemie . Weinheim: Wiley-VCH. doi : 10.1002/14356007.a15_305.pub3 . ISBN 978-3527306732Die
- ^ Lebo, Stuart E. Jr.; Gargulak, Jerry D.; McNally, Timothy J. (2001). „Lignin“ . Kirk-Othmer Encyclopedia of Chemical Technology . John Wiley & Sons, Inc. doi : 10.1002/0471238961.12090714120914.a01.pub2 . ISBN 978-0-471-23896-6Archiviert vom Original am 10.04.2020 . Abgerufen am 14.10.2007 .
- ^ de Candolle, KARTE (1813). Elementare Theorie der Botanik oder Ausstellung der Prinzipien der Klassifikation der Natur und der Kunst des Dekretens und des Studiums der Pflanzen . Paris: Deterville.Siehe S. 417.
- ^ a b E. Sjöström (1993). Holzchemie: Grundlagen und Anwendungen . Academic Press . ISBN 978-0-12-647480-0Die
- ^ a b c W. Boerjan; J. Ralph; M. Baucher (Juni 2003). „Lignin biosynthesis“. Annu. Rev. Plant Biol . 54 (1): 519–549 . doi : 10.1146/annurev.arplant.54.031902.134938 . PMID 14503002 .
- ^ „Lignin“ . Encyclopedia Britannica . 05.10.2023 . Abgerufen am 26.10.2023 .
- ^ Martone, Pt; Estevez, Jm; Lu, F; Ruel, K; Denny, Mw; Somerville, C; Ralph, J (Jan 2009). „Entdeckung von Lignin in Algen offenbart konvergente Evolution der Zellwandarchitektur“ . Current Biology . 19 (2): 169–75 . Bibcode : 2009CBio...19..169M . doi : 10.1016 / j.cub.2008.12.031 . ISSN 0960-9822 . PMID 19167225. S2CID 17409200 .
- ^ Im zitierten Artikel wird die Espenart nicht angegeben, sondern nur, dass sie aus Kanada stammt.
- ^ Hsiang-Hui King; Peter R. Solomon; Eitan Avni; Robert W. Coughlin (Herbst 1983). „Modellierung der Teerzusammensetzung bei der Ligninpyrolyse“ (PDF) . Symposium über die mathematische Modellierung von Biomassepyrolysephänomenen, Washington, DC, 1983. S. 1. Archiviert vom Original (PDF) am 8. August 2017. Abgerufen am 29. Januar 2024 .
- ^ Letourneau, Dane R.; Volmer, Dietrich A. (22.07.2021). „Massenspektrometrische Methoden zur fortgeschrittenen Charakterisierung und Strukturanalyse von Lignin: Ein Überblick“ . Mass Spectrometry Reviews . 42 (1): 144–188 . doi : 10.1002/mas.21716 . ISSN 0277-7037 . PMID 34293221. S2CID 236200196 .
- ^ Li, Laigeng; Cheng, Xiao Fei; Leshkevich, Jacqueline; Umezawa, Toshiaki; Harding, Scott A.; Chiang, Vincent L. (2001). „Der letzte Schritt der Syringylmonolignol-Biosynthese in Angiospermen wird durch ein neuartiges Gen reguliert, das für Sinapylalkohol-Dehydrogenase kodiert“ . The Plant Cell . 13 (7): 1567–1586 . doi : 10.1105/tpc.010111 . PMC 139549. PMID 11449052 .
- ^ „Lignin und seine Eigenschaften: Glossar der Lignin-Nomenklatur“ . Dialogue/Newsletters, Band 9, Nummer 1. Lignin Institute. Juli 2001. Archiviert vom Original am 9. Oktober 2007. Abgerufen am 14. Oktober 2007 .
- ^ Kuroda K, Ozawa T, Ueno T (April 2001). „Charakterisierung von Sagopalmenlignin (Metroxylon sagu) mittels analytischer Pyrolyse“. J Agric Food Chem . 49 (4): 1840–7 . doi : 10.1021 / jf001126i . PMID 11308334. S2CID 27962271 .
- ^ J. Ralph et al. (2001). „Aufklärung neuer Strukturen in Ligninen von CAD- und COMT-defizienten Pflanzen mittels NMR“ . Phytochemistry . 57 (6): 993–1003 . Bibcode : 2001PChem..57..993R . doi : 10.1016/S0031-9422(01)00109-1 . PMID 11423146. Archiviert vom Original am 28.04.2021 . Abgerufen am 29.12.2018 .
- ^ a b K.V. Sarkanen & CH Ludwig, Hrsg. (1971). Lignine: Vorkommen, Bildung, Struktur und Reaktionen . New York: Wiley Intersci.
- ^ Isikgor, Furkan H.; Becer, C. Remzi (2015). „Lignocellulose-Biomasse: eine nachhaltige Plattform für die Produktion biobasierter Chemikalien und Polymere“ . Polymer Chemistry . 6 (25): 4497–4559 . arXiv : 1602.01684 . doi : 10.1039/C5PY00263J . ISSN 1759-9954 .
- ^ Chabannes, M.; et al. (2001). „ In-situ- Analyse von Ligninen in transgenem Tabak zeigt unterschiedliche Auswirkungen einzelner Transformationen auf die räumlichen Muster der Ligninablagerung auf zellulärer und subzellulärer Ebene“ . Plant J. 28 ( 3): 271–282 . doi : 10.1046/j.1365-313X.2001.01159.x . PMID 11722770 .
- ^ Arms, Karen; Camp, Pamela S. (1995). Biologie . Saunders College Pub. ISBN 978-0-03-050003-9Die
- ^ Esau, Katharine (1977). Anatomie der Samenpflanzen . Wiley. ISBN 978-0-471-24520-9Die
- ^ Wardrop; The (1969). " Eryngium sp.;". Aust. J. Bot . 17 (2): 229– 240. doi : 10.1071/bt9690229 .
- ^ Bhuiyan, Nazmul H.; Selvaraj, Gopalan; Wei, Yangdou; King, John (Februar 2009). „Die Rolle der Lignifizierung in der Pflanzenabwehr“ . Plant Signaling & Behavior . 4 (2): 158–159 . Bibcode : 2009PlSiB...4..158B . doi : 10.4161/psb.4.2.7688 . ISSN 1559-2316 . PMC 2637510. PMID 19649200 .
- Rudolf Patt et al . (2005). „Zellstoff“. Papier und Zellstoff . Ullmanns Enzyklopädie der Technischen Chemie . Weinheim: Wiley-VCH. S. 1–92 . doi : 10.1002/14356007.a18_545.pub4 . ISBN 978-3-527-30673-2Die
- ^ Higson, A.; Smith, C. (25. Mai 2011). „NNFCC-Informationsblatt zu erneuerbaren Chemikalien: Lignin“ . Archiviert vom Original am 20. Juli 2011.
- ^ „Verwendung von Lignin aus der Sulfitzellstoffherstellung“ . Archiviert vom Original am 09.10.2007 . Abgerufen am 10.09.2007 .
- ^ Barbara A. Tokay (2000). „Biomass Chemicals“. Ullmanns Enzyklopädie der Technischen Chemie . doi : 10.1002/14356007.a04_099 . ISBN 978-3-527-30673-2Die
- ^ Patt, Rudolf; Kordsachia, Othar; Süttinger, Richard; Ohtani, Yoshito; Hoesch, Jochen F.; Ehrler, Peter; Eichinger, Rudolf; Holik, Herbert; Hamm, Udo; Rohmann, Michael E.; Mummenhoff, Peter; Petermann, Erich; Miller, Richard F.; Frank, Dieter; Wilken, Renke; Baumgarten, Heinrich L.; Rentrop, Gert-Heinz (2000). „Papier und Zellstoff“. Ullmanns Enzyklopädie der industriellen Chemie . Weinheim: Wiley-VCH. doi : 10.1002/14356007.a18_545 . ISBN 3527306730Die
- ^ „Frost & Sullivan: Volle Kraft voraus für den Ligninmarkt mit hochwertigen Chancen bereits ab 2017“ .
- ^ Folkedahl, Bruce (2016), "Cellulosic ethanol: what to do with the lignin" , Biomass , abgerufen am 10.08.2016 .
- ^ Abengoa (2016-04-21), Die Bedeutung von Lignin für die Ethanolproduktion , abgerufen am 10.08.2016 .
- ^ Samuels AL, Rensing KH, Douglas CJ, Mansfield SD, Dharmawardhana DP, Ellis BE (November 2002). „Zellmaschinerie der Holzproduktion: Differenzierung des sekundären Xylems in Pinus contorta var. latifolia“. Planta . 216 (1): 72– 82. Bibcode : 2002Plant.216...72A . doi : 10.1007/s00425-002-0884-4 . PMID 12430016 . S2CID 20529001 .
- ^ Davin, LB; Lewis, NG (2005). „Primärstrukturen und Dirigentstellen von Lignin“. Current Opinion in Biotechnology . 16 (4): 407–415 . doi : 10.1016/j.copbio.2005.06.011 . PMID 16023847 .
- Vane , CH; et al . (2003). „Biologischer Abbau von Eichenholz (Quercus alba) während des Wachstums des Shiitake-Pilzes (Lentinula edodes): Ein molekularer Ansatz“. Journal of Agricultural and Food Chemistry . 51 (4): 947–956 . doi : 10.1021/jf020932h . PMID 12568554 .
- Vane , CH; et al . (2006). „ Rindenzerfall durch den Weißfäulepilz Lentinula edodes: Polysaccharidverlust, Ligninresistenz und die Freilegung von Suberin“. International Biodeterioration & Biodegradation . 57 (1): 14–23 . Bibcode : 2006IBiBi..57...14V . doi : 10.1016/j.ibiod.2005.10.004 .
- ^ a b Gadd, Geoffrey M ; Sariaslani, Sima (2013). Fortschritte in der angewandten Mikrobiologie. Band 82. Oxford: Academic. S. 1–28 . ISBN 978-0-12-407679-2OCLC 841913543 .
- ^ a b de Gonzalo, Gonzalo; Colpa, Dana I.; Habib, Mohamed HM; Fraaije, Marco W. (2016). „Bakterienenzyme, die am Ligninabbau beteiligt sind“ . Zeitschrift für Biotechnologie . 236 : 110–119 . doi : 10.1016/j.jbiotec.2016.08.011 . hdl : 11370/88943b84-8228-4612-8315-daac2b3b31ae . PMID 27544286 .
- ^ Tien, M. (1983). „Ligninabbauendes Enzym aus dem Hymenomyceten Phanerochaete chrysosporium Burds“. Science . 221 ( 4611): 661–663 . Bibcode : 1983Sci...221..661T . doi : 10.1126/science.221.4611.661 . PMID 17787736. S2CID 8767248 .
- ^ Cerisy, Tristan (Mai 2017). „Evolution eines Biomasse-fermentierenden Bakteriums zur Resistenz gegen Lignin-Phenole“ . Applied and Environmental Microbiology . 83 (11). Bibcode : 2017ApEnM..83E.289C . doi : 10.1128/AEM.00289-17 . PMC 5440714. PMID 28363966 .
- Pellerin , Brian A.; Hernes, Peter J.; Saraceno, JohnFranco; Spencer, Robert GM; Bergamaschi, Brian A. (Mai 2010). „Mikrobielle Degradation von Pflanzenleachat verändert Ligninphenole und Trihalomethan-Vorläufer“. Journal of Environmental Quality . 39 (3): 946–954 . Bibcode : 2010JEnvQ..39..946P . doi : 10.2134/jeq2009.0487 . ISSN 0047-2425 . PMID 20400590 .
- ^ Hernes, Peter J. (2003). „Photochemischer und mikrobieller Abbau gelöster Ligninphenole: Implikationen für das Schicksal terrestrischer gelöster organischer Substanz in marinen Umgebungen“ . Journal of Geophysical Research . 108 (C9): 3291. Bibcode : 2003JGRC..108.3291H . doi : 10.1029/2002JC001421 . Abgerufen am 27.11.2018 .
- ^ „Persistenz organischer Bodensubstanz als Ökosystemeigenschaft“ . ResearchGate . Abgerufen am 27.11.2018 .
- ^ Dittmar, Thorsten (01.01.2015). „Gründe für die Langzeitstabilität gelöster organischer Substanz“. Biogeochemie mariner gelöster organischer Substanz . S. 369–388 . doi : 10.1016/B978-0-12-405940-5.00007-8 . ISBN 978-0-12-405940-5Die
- Goodell , Barry; Chambers, James; Ward, Doyle V.; Murphy, Cecelia; Black, Eileen; Mancilio, Lucca Bonjy Kikuti; Perez-Gonzalez, Gabriel; Shipway, J. Reuben (2024). „Erster Bericht über mikrobielle Symbionten im Verdauungssystem von Schiffsbohrwürmern; holzbohrenden Weichtieren“ . International Biodeterioration & Biodegradation . 192 105816. Bibcode : 2024IBiBi.19205816G . doi : 10.1016/j.ibiod.2024.105816 .
- Wittkowski , Reiner; Ruther, Joachim; Drinda, Heike; Rafiei-Taghanaki, Foroozan (1992). Bildung von Raucharomastoffen durch thermischen Ligninabbau . ACS Symposium Series (Flavor Precursors). Band 490. S. 232–243 . ISBN 978-0-8412-1346-3Die
- ^ „TAPPI. T 222 om-02 – Säureunlösliches Lignin in Holz und Zellstoff“ (PDF) . Archiviert vom Original (PDF) am 22.12.2018 . Abgerufen am 19.03.2018 .
- ^ Harkin, John M. (November 1966). „Lignin production and detection in wood“ (PDF) . US Forest Service Research. Note FPL-0148. Archiviert vom Original (PDF) am 05.03.2020 . Abgerufen am 30.12.2012 .
- Lange , B. M.; Lapierre, C.; Sandermann, Jr. (1995). „Elicitor-induziertes Stresslignin in Fichten (strukturelle Ähnlichkeit zu frühen Entwicklungsligninen)“ . Plant Physiology . 108 (3): 1277–1287 . doi : 10.1104/pp.108.3.1277 . PMC 157483. PMID 12228544 .
- ^ Glasser, Wolfgang G.; Glasser, Heidemarie R. (1974). „Simulation von Reaktionen mit Lignin per Computer (Simrel). II. Ein Modell für Nadelholz-Lignin“. Holzforschung . 28 (1): 5–11 , 1974. doi : 10.1515/hfsg.1974.28.1.5 . S2CID 95157574 .
- Hedges , John I.; Ertel, John R. (Februar 1982). „Charakterisierung von Lignin mittels Gaskapillarchromatographie von Kupfer(II)-oxid-Oxidationsprodukten“. Analytical Chemistry . 54 (2): 174–178 . doi : 10.1021/ac00239a007 . ISSN 0003-2700 .
- Hedges , John I.; Mann, Dale C. (1979-11-01). „Die Charakterisierung von Pflanzengeweben anhand ihrer Ligninoxidationsprodukte“. Geochimica et Cosmochimica Acta . 43 (11): 1803–1807 . Bibcode : 1979GeCoA..43.1803H . doi : 10.1016/0016-7037(79)90028-0 . ISSN 0016-7037 .
- ^ Vane, CH; et al. (2001). „Der Einfluss des Pilzbefalls (Agaricus bisporus) auf das Lignin von Weizenstroh mittels Pyrolyse-GC-MS in Gegenwart von Tetramethylammoniumhydroxid (TMAH)“. Journal of Analytical and Applied Pyrolysis . 60 (1): 69–78 . Bibcode : 2001JAAP...60...69V . doi : 10.1016/s0165-2370(00)00156-x .
- ^ Vane, CH; et al. (2001). „Abbau von Lignin in Weizenstroh während des Wachstums des Austernseitlings ( Pleurotus ostreatus ) mittels Offline-Thermochemolyse mit Tetramethylammoniumhydroxid und Festkörper-<sup> 13 </sup> C-NMR“. Journal of Agricultural and Food Chemistry . 49 (6): 2709–2716 . doi : 10.1021/jf001409a . PMID 11409955 .
- ^ Vane, CH; et al. (2005). „Abbau von kultiviertem Aprikosenholz ( Prunus armeniaca ) durch den Ascomyceten Hypocrea sulphurea , untersucht mittels Festkörper-<sup> 13 </sup>C-NMR und Offline-TMAH-Thermochemolyse mit GC–MS“. International Biodeterioration & Biodegradation . 55 (3): 175–185 . doi : 10.1016/j.ibiod.2004.11.004 .
- ^ Ralph, John; Landucci, Larry L. (2010). „NMR von Lignin und Lignanen“. Lignin und Lignane: Fortschritte in der Chemie . Boca Raton, FL: Taylor & Francis. S. 137–244 . ISBN 978-1-57444-486-5Die
Weiterführende Literatur
- Freudenberg, K. & Nash, AC, Hrsg. (1968). Aufbau und Biosynthese von Lignin . Berlin: Springer-Verlag.
- Lignine: Vorkommen, Bildung, Struktur und Reaktionen; herausgegeben von KV Sarkanen und CH Ludwig, John Wiley & Sons, Inc., New York, 1971


