Die Multiregionale Hypothese , auch multiregionale Evolution ( MRE ) oder polyzentrische Hypothese genannt , ist ein wissenschaftliches Modell , das eine alternative Erklärung für das Muster der menschlichen Evolution zum weit verbreiteten „Out-of-Africa“-Modell der Monogenese bietet .
Die Theorie der multiregionalen Evolution besagt, dass die menschliche Spezies vor etwa zwei Millionen Jahren entstand und die weitere Evolution innerhalb einer einzigen, kontinuierlichen Spezies stattfand. Diese Spezies umfasst alle archaischen Menschenformen wie Homo erectus , Denisova-Menschen und Neandertaler sowie moderne Formen und entwickelte sich weltweit zu den vielfältigen Populationen des anatomisch modernen Menschen ( Homo sapiens ).
Die Hypothese besagt, dass der Mechanismus der klinalen Variation durch ein „Zentrum-Rand“-Modell das notwendige Gleichgewicht zwischen Gendrift , Genfluss und Selektion während des gesamten Pleistozäns sowie die Gesamtentwicklung als globale Art ermöglichte, während gleichzeitig regionale Unterschiede in bestimmten morphologischen Merkmalen erhalten blieben. [ 1 ] Befürworter des Multiregionalismus führen Fossilien- und Genomdaten sowie die Kontinuität archäologischer Kulturen als Belege für ihre Hypothese an.
Die Multiregionale Hypothese wurde erstmals 1984 vorgeschlagen und 2003 überarbeitet. In ihrer überarbeiteten Form ähnelt sie dem Assimilationsmodell, das besagt, dass der moderne Mensch seinen Ursprung in Afrika hat und heute überwiegend eine jüngere afrikanische Abstammung aufweist, aber auch in geringem, geografisch variablem Maße genetische Beimischungen von anderen regionalen ( archaischen ) Homininenarten aufgenommen hat. [ 2 ]
Die Multiregionale Hypothese gilt unter Wissenschaftlern derzeit nicht als die am weitesten akzeptierte Theorie zum Ursprung des modernen Menschen. „Das Modell der afrikanischen Verdrängung hat vor allem aufgrund genetischer Daten (insbesondere mitochondrialer DNA) heutiger Populationen die größte Akzeptanz gefunden. Dieses Modell steht im Einklang mit der Erkenntnis, dass sich der moderne Mensch nicht in Unterarten oder Rassen einteilen lässt, und erkennt an, dass alle heutigen menschlichen Populationen das gleiche Entwicklungspotenzial besitzen.“ [ 3 ] Das Modell der afrikanischen Verdrängung ist auch als „Out-of-Africa“-Theorie bekannt und gilt derzeit als das am weitesten verbreitete Modell. Es besagt, dass sich Homo sapiens in Afrika entwickelte, bevor er sich über die Welt ausbreitete.“ [ 4 ] Und: „Die wichtigste konkurrierende wissenschaftliche Hypothese ist derzeit die Theorie des jüngeren afrikanischen Ursprungs des modernen Menschen. Diese besagt, dass der moderne Mensch vor etwa 100.000 bis 200.000 Jahren als neue Art in Afrika entstand und vor etwa 50.000 bis 60.000 Jahren aus Afrika auswanderte, um bestehende Menschenarten wie Homo erectus und die Neandertaler ohne Vermischung zu verdrängen.“ [ 5 ] [ 6 ] [ 7 ] [ 8 ] Dies unterscheidet sich von der multiregionalen Hypothese dadurch, dass das multiregionale Modell eine Vermischung mit bereits bestehenden lokalen menschlichen Populationen bei jeder solchen Migration vorhersagt. [ 8 ] [ 9 ]
Geschichte
−10 — – −9 — – −8 — – −7 — – −6 — – −5 — – −4 — – −3 — – −2 — – −1 — – 0 — | ( O. praegens ) ( O. tugenensis ) ( Ar. kadabba ) ( Ar. ramidus ) H. habilis ( H. rudolfensis )( Au. garhi ) H. erectus ( H. antecessor )( H. ergaster )( Au. sediba ) |
| ||||||||||||||||||||||||||
−4500 — – — – −4000 — – — – −3500 — – — – −3000 — – — – −2500 — – — – -2000 — – — – -1500 — – — – −1000 — – — – −500 — – — – 0 — |
| |||||||||||||||||||||||||
Überblick
Die Multiregionale Hypothese wurde 1984 von Milford H. Wolpoff , Alan Thorne und Xinzhi Wu vorgeschlagen . [ 10 ] [ 11 ] [ 1 ] Wolpoff nennt Franz Weidenreichs „polyzentrische“ Hypothese der menschlichen Ursprünge als wichtigen Einfluss, warnt aber davor, diese mit dem Polygenismus oder Carleton Coons Modell, das den Genfluss minimierte, zu verwechseln . [ 11 ] [ 12 ] [ 13 ] Laut Wolpoff wurde der Multiregionalismus von William W. Howells falsch interpretiert, der Weidenreichs Hypothese in seinen über fünf Jahrzehnte reichenden Publikationen mit einem polygenen „Kandelabermodell“ verwechselte.
Wie kam es, dass die multiregionale Evolution fälschlicherweise als Polygenie bezeichnet wurde? Wir glauben, dass dies auf einer Verwechslung von Weidenreichs Ideen und letztlich unserer eigenen mit denen von Coon beruht. Der historische Grund für die Verknüpfung von Coons und Weidenreichs Ideen liegt in der Fehlinterpretation von Weidenreichs polyzentrischem Modell als Kandelaber (Howells, 1942, 1944, 1959, 1993), wodurch sein polyzentrisches Modell Coons Modell viel ähnlicher erschien, als es tatsächlich war. [ 14 ]
Durch den Einfluss Howells' haben viele Anthropologen und Biologen Multiregionalismus mit Polygenismus verwechselt, also mit der Annahme, dass verschiedene Populationen einen separaten oder mehrfachen Ursprung haben. Alan Templeton merkt beispielsweise an, dass diese Verwechslung zu dem Irrtum geführt hat, der Genfluss zwischen verschiedenen Populationen sei der Multiregionalhypothese als „Sonderbegründung aufgrund aktueller Schwierigkeiten“ hinzugefügt worden, obwohl: „Parallele Evolution war nie Teil des Multiregionalmodells, geschweige denn dessen Kern, während Genfluss keine neuere Ergänzung war , sondern von Anfang an im Modell vorhanden war“ [ 15 ] (Hervorhebung im Original). Trotzdem wird Multiregionalismus weiterhin mit Polygenismus oder Coons Modell der Rassenursprünge verwechselt, von dem sich Wolpoff und seine Kollegen distanziert haben. [ 16 ] [ 17 ] Wolpoff hat auch Wiedenreichs polyzentrische Hypothese gegen die Bezeichnung Polyphylie verteidigt. Weidenreich selbst schrieb 1949: „Ich laufe möglicherweise Gefahr, missverstanden zu werden, nämlich dass ich an die polyphyletische Evolution des Menschen glaube.“ [ 18 ]
1998 begründete Wu ein China-spezifisches Multiregionales Modell mit dem Titel „Kontinuität mit [zufälliger] Hybridisierung“. [ 19 ] [ 20 ] Wus Variante wendet die Multiregionale Hypothese ausschließlich auf den ostasiatischen Fossilienbestand an und ist unter chinesischen Wissenschaftlern populär. [ 21 ] James Leibold, ein Politikhistoriker des modernen China, argumentiert jedoch, dass die Unterstützung für Wus Modell größtenteils im chinesischen Nationalismus begründet liegt . [ 22 ] Außerhalb Chinas findet die Multiregionale Hypothese nur begrenzte Unterstützung und wird lediglich von einer kleinen Anzahl von Paläoanthropologen vertreten. [ 23 ]
„Klassischer“ vs. „schwacher“ Multiregionalismus
Chris Stringer , ein führender Vertreter der neueren, gängigeren Theorie des afrikanischen Ursprungs , debattierte in einer Reihe von Publikationen in den späten 1980er und 1990er Jahren mit Multiregionalisten wie Wolpoff und Thorne. [ 24 ] [ 25 ] [ 26 ] [ 27 ] Stringer beschreibt, wie die ursprüngliche Multiregionalhypothese seiner Ansicht nach im Laufe der Zeit zu einer abgeschwächten Variante modifiziert wurde, die Afrika nun eine deutlich größere Rolle in der menschlichen Evolution zuschreibt, einschließlich der anatomischen Modernität (und folglich einer geringeren regionalen Kontinuität als ursprünglich angenommen). [ 28 ]
Stringer unterscheidet zwischen dem ursprünglichen oder „klassischen“ Multiregionalen Modell, das von 1984 (seiner Formulierung) bis 2003 existierte, und einer „schwachen“ Variante nach 2003, die sich „dem Assimilationsmodell angenähert hat“. [ 29 ] [ 30 ]
Genetische Studien
Die Erkenntnis, dass die „ mitochondriale Eva “ relativ jung und afrikanischen Ursprungs sei, schien den Befürwortern der Out-of-Africa-Hypothese einen Vorteil zu verschaffen. Doch 2002 veröffentlichte Alan Templeton eine genetische Analyse, die auch andere Genorte im Genom einbezog. Diese zeigte, dass einige Varianten, die in modernen Populationen vorkommen, bereits vor Hunderttausenden von Jahren in Asien existierten. [ 31 ] Das bedeutet, dass wir, selbst wenn unsere männliche Linie ( Y-Chromosom ) und unsere weibliche Linie ( mitochondriale DNA ) erst in den letzten etwa 100.000 Jahren aus Afrika kamen, auch Gene von Populationen geerbt haben, die bereits außerhalb Afrikas lebten. Seit dieser Studie wurden weitere Untersuchungen mit deutlich mehr Daten durchgeführt (siehe Phylogeographie ).
Fossilienfunde
Morphologische Kladen
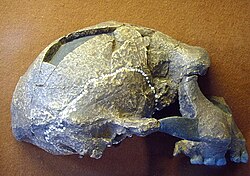

Befürworter der Multiregionalen Hypothese sehen in der regionalen Kontinuität bestimmter morphologischer Merkmale, die sich über das Pleistozän in verschiedenen Regionen der Erde erstreckt, einen Beleg gegen ein einzelnes Verdrängungsmodell aus Afrika. Im Allgemeinen werden drei Hauptregionen unterschieden: Europa , China und Indonesien (oftmals einschließlich Australien ). [ 32 ] [ 33 ] [ 34 ] Wolpoff warnt davor, die Kontinuität bestimmter Skelettmerkmale in diesen Regionen in einem rassischen Kontext zu betrachten, und bezeichnet sie stattdessen als morphologische Kladen ; definiert als Merkmalsgruppen, die „eine geografische Region eindeutig charakterisieren“. [ 35 ] Wolpoff und Thorne (1981) erklären: „Wir betrachten eine morphologische Klade nicht als eine eigenständige Abstammungslinie und halten es auch nicht für notwendig, ihr einen bestimmten taxonomischen Status zuzuschreiben.“ [ 36 ] Kritiker des Multiregionalismus haben darauf hingewiesen, dass kein einzelnes menschliches Merkmal einzigartig für eine geografische Region ist (d. h. auf eine Population beschränkt und in keiner anderen zu finden), aber Wolpoff et al. (2000) merken an, dass regionale Kontinuität nur Kombinationen von Merkmalen, nicht aber einzelne Merkmale erkennt, ein Punkt, den sie an anderer Stelle mit der forensischen Identifizierung eines menschlichen Skeletts vergleichen:
Regionale Kontinuität bedeutet nicht, dass solche Merkmale nicht auch anderswo vorkommen; die genetische Struktur des Menschen macht dies äußerst unwahrscheinlich. Es mag einzigartige Merkmalskombinationen geben , aber kein einzelnes Merkmal dürfte in einem bestimmten Teil der Welt einzigartig gewesen sein, auch wenn dies aufgrund der lückenhaften menschlichen Fossilienfunde den Anschein erwecken mag.
Kombinationen von Merkmalen sind insofern „einzigartig“, als sie entweder nur in einer Region vorkommen oder – schwächer ausgeprägt – mit hoher Frequenz auf eine Region beschränkt sind (und in anderen Regionen sehr selten auftreten). Wolpoff betont, dass regionale Kontinuität mit dem genetischen Austausch zwischen Populationen einhergeht. Langfristige regionale Kontinuität bestimmter morphologischer Merkmale wird durch Alan Thornes populationsgenetisches „Zentrum-und-Rand“ -Modell [ 37 ] erklärt , welches Weidenreichs Paradoxon auflöst: „Wie konnten Populationen geografische Unterschiede beibehalten und sich dennoch gemeinsam weiterentwickeln?“ So veröffentlichten Wolpoff und Kollegen im Jahr 2001 eine Analyse der Merkmale der Schädel frühmoderner menschlicher Fossilien in Australien und Mitteleuropa. Sie kamen zu dem Schluss, dass die Diversität dieser rezenten Menschen nicht „ausschließlich auf eine einzige Ausbreitung im späten Pleistozän zurückzuführen sein kann“ und deuteten auf eine doppelte Abstammung für jede Region hin, die Vermischung mit Afrikanern beinhaltete. [ 38 ]
Indonesien, Australien
Thorne vertrat die Ansicht, dass in Indonesien und Australien eine regionale Kontinuität für eine morphologische Klade bestehe . [ 39 ] [ 40 ] Diese Sequenz soll aus den frühesten Fossilien aus Sangiran (Java) bestehen, die sich über Ngandong zurückverfolgen lassen und bei prähistorischen und rezenten australischen Ureinwohnern zu finden sind . 1991 untersuchte Andrew Kramer 17 vorgeschlagene Merkmale dieser morphologischen Klade. Er fand heraus, dass „eine Mehrheit (acht) der siebzehn nicht-metrischen Merkmale Sangiran mit den heutigen Australiern verbindet“ und dass diese „auf eine morphologische Kontinuität hindeuten, was auf ein genetisches Kontinuum in Australasien schließen lässt, das mindestens eine Million Jahre zurückreicht“ [ 41 ]. Colin Groves kritisierte jedoch Kramers Methodik und wies darauf hin, dass die Polarität der Merkmale nicht untersucht wurde und die Studie daher nicht schlüssig sei. [ 42 ] Phillip Habgood entdeckte, dass die von Thorne als einzigartig für die australasiatische Region bezeichneten Merkmale plesiomorph sind .
Es ist offensichtlich, dass alle vorgeschlagenen Merkmale, die als „Klade-Merkmale“ zwischen indonesischem Homo erectus -Material und australischen Aborigine-Schädeln gelten, erhaltene primitive Merkmale sind, die allgemein bei Homo erectus und archaischen Homo sapiens -Schädeln vorkommen. Viele davon finden sich auch häufig an den Schädeln und Unterkiefern anatomisch moderner Homo sapiens aus anderen geografischen Regionen und sind besonders häufig an den robusten mesolithischen Skelettfunden aus Nordafrika zu finden. [ 43 ]
Trotz dieser Kritikpunkte räumt Habgood (2003) eine begrenzte regionale Kontinuität in Indonesien und Australien ein und identifiziert vier plesiomorphe Merkmale, die in dieser einzigartigen Kombination in Fossilien keiner anderen Region vorkommen: ein sagittal flaches Stirnbein mit minimaler Stirnbreite im hinteren Bereich, ein ausgeprägter Gesichtsprognathismus und Jochbeinhöcker. [ 44 ] Diese Kombination, so Habgood, weise eine „typisch australische“ Eigenschaft auf.
Wolpoff, der Thornes Behauptungen zunächst skeptisch gegenüberstand, wurde überzeugt, als er den Schädel des Homo erectus aus Sangiran 17 in Indonesien rekonstruierte. Er war überrascht, dass der Winkel zwischen Gesicht und Schädeldach dem des australischen modernen Menschenschädels Kow Swamp 1 in Bezug auf den ausgeprägten Prognathismus entsprach. Durband (2007) hingegen stellt fest, dass „Merkmale, die als Beleg für die Kontinuität zwischen Sangiran 17 und dem Kow-Swamp-Fund angeführt wurden, in der kürzlich abgeschlossenen neuen, orthognatheren Rekonstruktion dieses Fossils verschwunden sind.“ [ 45 ] Baba et al., die das Gesicht von Sangiran 17 neu rekonstruierten, kamen zu dem Schluss: „Die regionale Kontinuität in Australasien ist weitaus weniger deutlich, als Thorne und Wolpoff argumentierten.“ [ 46 ]
China

Xinzhi Wu argumentierte für eine morphologische Klade in China, die das Pleistozän umfasst und durch eine Kombination von zehn Merkmalen charakterisiert ist. [ 47 ] [ 48 ] Die Sequenz soll mit Lantian und dem Peking-Menschen beginnen , sich bis nach Dali und zu spätpleistozänen Exemplaren (z. B. Liujiang) und rezenten Chinesen zurückverfolgen lassen. Habgood kritisierte 1992 Wus Liste und wies darauf hin, dass die meisten der zehn Merkmale in Kombination regelmäßig bei Fossilien außerhalb Chinas vorkommen. [ 49 ] Er merkte jedoch an, dass drei Kombinationen – eine nicht eingesenkte Nasenwurzel, nicht vorstehende, senkrecht ausgerichtete Nasenbeine und ein flaches Gesicht – im Fossilienbestand einzigartig für die chinesische Region seien und möglicherweise auf eine begrenzte regionale Kontinuität hindeuten. Laut Chris Stringer litt Habgoods Studie jedoch darunter, dass sie nicht genügend Fossilien aus Nordafrika berücksichtigte, von denen viele die kleine Kombination aufweisen, die er als regionsspezifisch für China betrachtete. [ 27 ]
Die Annahme, dass ein flaches Gesicht ein morphologisches Merkmal einer Gruppe darstellt, wurde von vielen Anthropologen abgelehnt, da es bei vielen frühen afrikanischen Homo erectus -Fossilien vorkommt und daher als plesiomorph gilt [ 50 ]. Wu entgegnete jedoch, dass die Form des flachen Gesichts im chinesischen Fossilienbestand sich deutlich von anderen (d. h. primitiven) Formen unterscheidet. Auch Toetik Koesbardiati fand in ihrer Dissertation „Zur Relevanz regionaler Kontinuitätsmerkmale des Gesichts in Ostasien“ heraus, dass eine Form des flachen Gesichts einzigartig für China ist (d. h. nur dort häufig und anderswo sehr selten auftritt). Sie schränkt jedoch ein, dass dies der einzige verfügbare Beleg für regionale Kontinuität ist: „Nur zwei Merkmale scheinen eine Tendenz aufzuweisen, wie sie das multiregionale Modell nahelegt: ein flaches Gesicht im oberen Bereich, ausgedrückt durch einen stumpfen Nasen-Stirn-Winkel, und ein flaches Gesicht im mittleren Bereich, ausgedrückt durch einen stumpfen Jochbein-Oberkiefer-Winkel.“
Schaufelförmige Schneidezähne werden häufig als Beleg für regionale Kontinuität in China angeführt. [ 51 ] [ 52 ] Stringer (1992) fand jedoch heraus, dass schaufelförmige Schneidezähne in über 70 % der frühholozänen Fossilienfunde aus Wadi Halfa in Nordafrika vorkommen und auch andernorts häufig anzutreffen sind. [ 53 ] Frayer et al. (1993) kritisierten Stringers Methode zur Bewertung schaufelförmiger Schneidezähne. Sie argumentieren, dass es verschiedene Ausprägungsgrade gibt, z. B. Spuren (+), Halbausprägung (++) und deutliche Ausprägung (+++), Stringer diese jedoch irreführend zusammengefasst hat: „…die Zusammenfassung der Schaufelkategorien auf diese Weise ist biologisch bedeutungslos und irreführend, da die Statistik nicht valide mit den sehr hohen Häufigkeiten der Kategorie ‚deutlich ausgeprägt‘ bei Ostasiaten verglichen werden kann.“ [ 33 ] Der Paläoanthropologe Fred H. Smith (2009) betont ebenfalls: „Es ist das Muster der Schaufelbewegung, das als ostasiatisches Regionalmerkmal gilt, nicht bloß das Vorkommen von Schaufelbewegungen jeglicher Art.“ [ 2 ] Vertreter der Multiregionaltheorie argumentieren, dass stark (+++) ausgeprägte, schaufelförmige Schneidezähne nur in China mit hoher Häufigkeit auftreten und andernorts in weniger als 10 % der Fälle vorkommen.
Europa

Seit den frühen 1990er Jahren beschreibt David W. Frayer eine von ihm als morphologisch klassifizierte Gruppe in Europa. [ 54 ] [ 55 ] [ 56 ] Die Abfolge beginnt mit den frühesten datierten Neandertaler- Funden ( Schädel von Krapina und Saccopastore ), die sich vom mittleren bis späten Pleistozän (z. B. La Ferrassie 1 ) bis zur Höhle von Vindija und den Cro-Magnon- Menschen des späten Jungpaläolithikums oder den heutigen Europäern erstrecken. Obwohl viele Anthropologen Neandertaler und Cro-Magnon-Menschen als morphologisch unterschiedlich betrachten, [ 57 ] [ 58 ] vertritt Frayer die gegenteilige Ansicht und verweist auf ihre Ähnlichkeiten, die seiner Meinung nach ein Beleg für regionale Kontinuität sind.
„Im Gegensatz zu Brauers jüngster Aussage, dass es eine große und allgemein anerkannte morphologische Lücke zwischen den Neandertalern und den frühen modernen Menschen gibt, zeigen die tatsächlichen Belege aus dem umfangreichen Fossilienbestand des späten Pleistozäns in Europa eine beträchtliche Kontinuität zwischen Neandertalern und den nachfolgenden Europäern.“ [ 33 ]
Frayer et al. (1993) gehen davon aus, dass mindestens vier Merkmale in Kombination einzigartig für den europäischen Fossilienbestand sind: ein horizontal-ovales Foramen mandibulae , ein vorderer Mastoidhöcker, eine Fossa suprainiacalis und eine Verengung der Nasenbreite in Verbindung mit einer Reduktion der Zahngröße. Bezüglich Letzterer beobachtet Frayer eine Abfolge von Nasenverengungen bei Neandertalern, die sich bis in das späte Jungpaläolithikum und das Holozän (Mesolithikum) fortsetzt. Seine Behauptungen werden von anderen Forschern angezweifelt [ 59 ] , finden aber Unterstützung bei Wolpoff, der späte Neandertaler-Exemplare als Übergangsformen in der Nasenform zwischen frühen Neandertalern und späteren Cro-Magnon-Menschen betrachtet [ 60 ] . Aufgrund weiterer Ähnlichkeiten im Schädel argumentieren Wolpoff et al. (2004) für einen bedeutenden Beitrag der Neandertaler zur genetischen Entwicklung der modernen Europäer [ 61 ] .
Neuere Behauptungen zur Kontinuität der Skelettmorphologie in Europa konzentrieren sich auf Fossilien mit sowohl neandertalerischen als auch modernen anatomischen Merkmalen, um Belege für Vermischung statt für Verdrängung zu liefern. [ 62 ] [ 63 ] [ 64 ] Beispiele hierfür sind das Lapedo-Kind aus Portugal [ 65 ] und der Unterkiefer Oase 1 aus Peștera cu Oase , Rumänien, [ 66 ], wobei die Zuordnung des „Lapedo-Kindes“ von einigen Forschern angezweifelt wird. [ 67 ]
Genetische Beweise

Mitochondriale Eva
Eine 1987 von Cann et al. durchgeführte Analyse der mitochondrialen DNA von 147 Personen aus aller Welt ergab, dass deren mitochondriale Linien alle auf einen gemeinsamen Vorfahren aus Afrika vor 140.000 bis 290.000 Jahren zurückgehen. [ 68 ] Die Analyse legte nahe, dass dies die weltweite Ausbreitung des modernen Menschen als neue Spezies widerspiegelt, der die lokalen archaischen Menschen außerhalb Afrikas verdrängte, anstatt sich mit ihnen zu vermischen. Ein solches Szenario einer kürzlich erfolgten Verdrängung ist mit der Multiregionalen Hypothese nicht vereinbar, und die mtDNA-Ergebnisse führten zu einer größeren Popularität der alternativen Theorie der einmaligen Verdrängung . [ 69 ] [ 70 ] [ 71 ] Laut Wolpoff et al.: [ 72 ]
Als die Ergebnisse der Mitochondrialen Eva-Studie erstmals veröffentlicht wurden, standen sie in klarem Widerspruch zur Multiregionalen Evolutionstheorie, und wir fragten uns, wie sich die beiden Ansätze vereinbaren ließen.
Multiregionalisten haben auf die ihrer Ansicht nach bestehenden Schwächen der Eva-Theorie reagiert [ 73 ] und gegenteilige genetische Beweise vorgelegt [ 74 ] [ 75 ] [ 76 ] . Wu und Thorne stellten die Zuverlässigkeit der molekularen Uhr in Frage , die zur Datierung Evas verwendet wurde [ 77 ] [ 78 ]. Multiregionalisten weisen darauf hin, dass mitochondriale DNA allein eine Vermischung zwischen frühen modernen und archaischen Menschen nicht ausschließen kann, da archaische menschliche mitochondriale Stämme aus solchen Vermischungen durch Gendrift oder Selektion verloren gegangen sein könnten [ 79 ] [ 80 ] . Wolpoff beispielsweise erklärt, dass Eva „nicht die jüngste gemeinsame Vorfahrin aller heute lebenden Menschen“ sei, da „Mitochondriengeschichte nicht Populationsgeschichte ist“ [ 81 ] .
Neandertaler-mtDNA
Die mitochondrialen DNA- Sequenzen ( mtDNA ) von Neandertalern aus der Feldhofer- und der Vindija-Höhle unterscheiden sich deutlich von der mtDNA des modernen Menschen. [ 82 ] [ 83 ] [ 84 ] Vertreter der Multiregionaltheorie argumentieren jedoch, dass der durchschnittliche Unterschied zwischen der Feldhofer-Sequenz und der Sequenz lebender Menschen geringer ist als der zwischen verschiedenen Schimpansenunterarten [ 85 ] [ 86 ] und dass Neandertaler zwar unterschiedliche Unterarten waren , aber dennoch zu den Menschen gehörten und derselben Abstammungslinie angehörten.
Kern-DNA
Erste Analysen der Y-Chromosomen -DNA, die wie die mitochondriale DNA nur von einem Elternteil vererbt wird, stützten ein kürzlich entstandenes Modell der afrikanischen Bevölkerungsverschiebung. Die Daten zur mitochondrialen DNA und zum Y-Chromosom ließen sich jedoch nicht durch dieselbe Ausbreitung des modernen Menschen aus Afrika erklären; die Ausbreitung des Y-Chromosoms hätte eine genetische Vermischung beinhaltet, bei der regional begrenzte mitochondriale Linien erhalten blieben. Darüber hinaus deuteten die Daten zum Y-Chromosom auf eine spätere Rückwanderung aus Asien nach Afrika hin, was belegt, dass der Genfluss zwischen den Regionen nicht unidirektional war. [ 87 ]
Eine frühe Analyse von 15 nicht-kodierenden Stellen auf dem X-Chromosom ergab weitere Unstimmigkeiten mit der Hypothese der rezenten afrikanischen Verdrängung. Die Analyse zeigte eine multimodale Verteilung der Koaleszenzzeiten zum jüngsten gemeinsamen Vorfahren für diese Stellen, entgegen den Vorhersagen für eine rezente afrikanische Verdrängung. Insbesondere gab es mehr Koaleszenzzeiten um die 2 Millionen Jahre vor heute ( Mio. J. ) als erwartet, was auf eine frühe Populationsspaltung um die Zeit des ersten Auftretens des Menschen aus Afrika als Homo erectus hindeutet , und nicht auf eine spätere, wie die mitochondrialen Daten nahelegen. Während die meisten dieser X-Chromosom-Stellen in Afrika eine größere Diversität aufwiesen, was mit einem afrikanischen Ursprung übereinstimmt, zeigten einige Stellen eine größere Diversität in Asien als in Afrika. Bei vier der 15 Genstellen, die in Afrika eine größere Diversität aufwiesen, konnte die regionale Variabilität nicht durch eine einfache Expansion aus Afrika erklärt werden, wie es die Hypothese der rezenten afrikanischen Verdrängung voraussetzt. [ 88 ]
Spätere Analysen der X-Chromosomen- und autosomalen DNA identifizierten weiterhin Regionen mit tiefen Koaleszenzzeiten, die nicht mit einem einzigen Ursprung des modernen Menschen vereinbar sind [ 89 ] [ 90 ] [ 91 ] [ 92 ] [ 93 ], Diversitätsmuster, die nicht mit einer rezenten Ausbreitung aus Afrika vereinbar sind [ 94 ] , oder beides [ 95 ] [ 96 ] . Beispielsweise zeigten Analysen einer Region von RRM2P4 ( Ribonukleotidreduktase- M2-Untereinheit -Pseudogen 4) eine Koaleszenzzeit von etwa 2 Millionen Jahren mit einem klaren Ursprung in Asien [ 97 ] [ 98 ], während der MAPT- Locus auf 17q 21.31 in zwei tiefe genetische Linien aufgespalten ist, von denen eine in der heutigen europäischen Bevölkerung verbreitet und weitgehend auf diese beschränkt ist, was auf eine Vererbung von Neandertalern hindeutet. [ 99 ] [ 100 ] [ 101 ] [ 102 ] Im Fall des Microcephalin- D-Allels deuteten Hinweise auf eine rasche, rezente Ausbreitung auf eine Introgression aus einer archaischen Population hin. [ 103 ] [ 104 ] [ 105 ] [ 106 ] Spätere Analysen, darunter auch von Neandertaler-Genomen, konnten das Microcephalin-D-Allel (in der vorgeschlagenen archaischen Spezies) jedoch weder nachweisen noch Hinweise darauf finden, dass es, wie zuvor angenommen, aus einer archaischen Linie introgressiert war. [ 107 ] [ 108 ] [ 109 ]
Eine DNA- Studie aus dem Jahr 2001 an mehr als 12.000 Männern aus 163 ostasiatischen Regionen zeigte, dass alle eine Mutation tragen, die vor etwa 35.000 bis 89.000 Jahren in Afrika entstanden ist, und diese „Daten stützen nicht einmal einen minimalen Beitrag von Hominiden vor Ort zur Entstehung des anatomisch modernen Menschen in Ostasien“. [ 110 ]
In einer 2005 durchgeführten Überprüfung und Analyse der genetischen Linien von 25 Chromosomenregionen fand Alan Templeton Hinweise auf mehr als 34 Fälle von Genfluss zwischen Afrika und Eurasien. 19 dieser Fälle waren mit einem kontinuierlichen, begrenzten Genaustausch über einen Zeitraum von mindestens 1,46 Millionen Jahren verbunden; nur 5 mit einer rezenten Ausbreitung von Afrika nach Eurasien. Drei Fälle standen im Zusammenhang mit der ursprünglichen Ausbreitung des Homo erectus aus Afrika vor etwa 2 Millionen Jahren, 7 mit einer zwischenzeitlichen Ausbreitung aus Afrika zu einem Zeitpunkt, der mit der Verbreitung der Acheuléen- Werkzeugtechnologie übereinstimmt, und einige weitere mit anderen Genflüssen, wie beispielsweise einer Ausbreitung aus Eurasien und zurück nach Afrika im Anschluss an die jüngste Ausbreitung aus Afrika. Templeton verwarf die Hypothese einer vollständigen Verdrängung des Homo erectus aus Afrika mit einer Wahrscheinlichkeit von über 99 % ( p < 10⁻¹⁷ ) . [ 111 ]
Alte DNA
Jüngste DNA-Analysen von Neandertaler-Proben deuten darauf hin, dass diese oder ihre Vorfahren zum Genom aller Menschen außerhalb Afrikas beigetragen haben, was auf eine gewisse Vermischung mit Neandertalern vor deren Verdrängung schließen lässt. [ 112 ] Es konnte außerdem gezeigt werden, dass Denisova-Homininen durch Vermischung zur DNA von Melanesiern und Australiern beigetragen haben. [ 113 ]
Ab 2006 war die direkte DNA-Extraktion aus einigen archaischen menschlichen Proben möglich. Die ersten Analysen betrafen Neandertaler-DNA und deuteten darauf hin, dass der Beitrag der Neandertaler zur genetischen Vielfalt des modernen Menschen maximal 20 % betrug, höchstwahrscheinlich sogar 0 %. [ 114 ] Bis 2010 ergaben detaillierte DNA-Sequenzierungen von Neandertaler-Proben aus Europa jedoch, dass der Beitrag nicht null war. Neandertaler wiesen 1–4 % mehr genetische Varianten mit heute lebenden Nicht-Afrikanern als mit heute lebenden Menschen in Subsahara-Afrika auf. [ 115 ] [ 116 ] Ende 2010 wurde bei einem kürzlich entdeckten, nicht-neandertalischen archaischen Menschen, dem Denisova-Homininen aus Südwest-Sibirien, festgestellt, dass sein Genom 4–6 % mehr mit dem von heute lebenden Melanesiern als mit jeder anderen lebenden Gruppe übereinstimmt. Dies stützt die Annahme einer Vermischung zwischen zwei Regionen außerhalb Afrikas. [ 117 ] [ 118 ] Im August 2011 wurde festgestellt, dass HLA-Allele (Humanes Leukozytenantigen) aus den archaischen Denisova- und Neandertaler-Genomen in der modernen menschlichen Bevölkerung Muster aufweisen, die auf einen Ursprung in diesen nicht-afrikanischen Populationen hindeuten. Der Anteil dieser archaischen Allele am HLA-A-Locus betrug bei modernen Europäern über 50 %, bei Asiaten 70 % und bei Papua-Neuguineern 95 %. [ 119 ] Befürworter der Multiregionalen Hypothese argumentieren, dass die Kombination aus regionaler Kontinuität innerhalb und außerhalb Afrikas sowie horizontalem Gentransfer zwischen verschiedenen Regionen der Welt diese Hypothese stützt. Die Befürworter der „Out-of-Africa“-Theorie erklären dies jedoch auch damit, dass genetische Veränderungen eher regional als kontinental auftreten und dass nahe beieinander liegende Populationen wahrscheinlich bestimmte regionale SNPs teilen, während sie die meisten anderen Gene gemeinsam haben. [ 120 ] [ 121 ] Die Migrationsmatrixtheorie (A=Mt) besagt, dass wir, abhängig vom potenziellen Beitrag der Neandertaler-Abstammung, den prozentualen Anteil der Neandertaler-mtDNA am menschlichen Erbgut berechnen könnten. Da wir die spezifische Migrationsmatrix nicht kennen, können wir die exakten Daten, die diese Fragen unwiderlegbar beantworten würden, nicht eingeben. [ 85 ]
Siehe auch
Referenzen
- ^ a b Wolpoff, MH; Spuhler, JN; Smith, FH; Radovcic, J; Pope, G; Frayer, DW; Eckhardt, R.; Clark, G. (1988). „Modern Human Origins“. Science . 241 ( 4867): 772–74 . Bibcode : 1988Sci...241..772W . doi : 10.1126/science.3136545 . PMID 3136545. S2CID 5223638 .
- ^ a b Cartmill, M.; Smith, FH (2009). Die menschliche Abstammung . Wiley-Blackwell. S. 450.
- ^ „Menschliche Evolution – Entstehung, Homo sapiens , Bipedalismus“ . Britannica.com . 8. Juni 2024.
- ^ „Evolution des modernen Menschen“ .
- ^ Liu, Hua; et al. (2006). „Ein geographisch explizites genetisches Modell der weltweiten menschlichen Siedlungsgeschichte“. American Journal of Human Genetics 79 (2): 230–237. doi:10.1086/505436. PMID 16826514. [1]
- ^ Weaver, Timothy D.; Roseman, Charles C. (2008). „Neue Entwicklungen in den genetischen Belegen für den Ursprung des modernen Menschen“. Evolutionary Anthropology: Issues, News, and Reviews (Wiley-Liss) 17 (1): 69–80. doi:10.1002/evan.20161. http://www3.interscience.wiley.com/journal/117921411/abstract .
- Fagundes , NJ; Ray, N; Beaumont, M; Neuenschwander, S; Salzano, FM; Bonatto, SL; Excoffier, L. (2007). „Statistische Bewertung alternativer Modelle der menschlichen Evolution“. Proc Natl Acad Sci USA 104 (45): 17614–9. doi:10.1073/pnas.0708280104. PMID 17978179. PMC 2077041. Bibcode: 2007PNAS..10417614F. https://www.pnas.org/doi/10.1073/pnas.0708280104
- ^ a b Wolpoff, Milford und Caspari, Rachel (1997). Race and Human Evolution. Simon & Schuster. S. 42.
- ^ Enzyklopädie der wissenschaftlichen Gemeinschaft.
- ^ Wolpoff, MH; Wu, XZ; Alan, G.; Thorne, G. (1984). „Ursprünge des modernen Homo sapiens : Eine allgemeine Theorie der Hominidenevolution unter Einbeziehung der Fossilienfunde aus Ostasien“. Die Ursprünge des modernen Menschen , New York: Liss, 411–83.
- Wolpoff , M. H.; Hawks , J. D .; Caspari, R. (2000). „Multiregional, not multiple origins“ (PDF) . American Journal of Physical Anthropology . 112 (1): 129–136 . doi : 10.1002/(SICI)1096-8644 ( 200005)112:1<129::AID-AJPA11>3.0.CO;2-K . hdl : 2027.42/34270 . PMID 10766948 .
- ^ Hawks, J. ; Wolpoff, MH (2003). „Sechzig Jahre Forschung zu den Ursprüngen des modernen Menschen in der American Anthropological Association“ (PDF) . American Anthropologist . 105 (1): 89–100 . doi : 10.1525/aa.2003.105.1.89 . hdl : 2027.42/65197 .
- ^ Eckhardt, RB; Wolpoff, MH; Thorne, AG (1993). „Multiregionale Evolution“. Science . 262 (5136): 974. doi : 10.1126/science.262.5136.973.c . PMID 8235634 .
- ^ Caspari, R.; Wolpoff, MH (1996). „Weidenreich, Coon und die multiregionale Evolution“. Human Evolution . 11 ( 3–4 ): 261–68 . doi : 10.1007/bf02436629 . S2CID 84805412 .
- Templeton , AR (2007). „Genetik und die jüngere menschliche Evolution“ . Evolution . 61 (7): 1507–1519 . Bibcode : 2007Evolu..61.1507T . doi : 10.1111/j.1558-5646.2007.00164.x . PMID 17598736 .
- ^ Wolpoff, MH; Caspari, R. 1997. Rasse und menschliche Evolution: Eine fatale Anziehungskraft . New York: Simon and Schuster.
- ^ Wolpoff, MH; Caspari, R. (2000). „ Die vielen Arten der Menschheit “. Przegląd Antropologiczny 63(1): 3–17.
- Weidenreich , F. (1949). „Interpretationen des Fossilmaterials“. In: Der frühe Mensch im Fernen Osten: Studien zur physischen Anthropologie . Howells, W. W. (Hrsg.). Reihe „Studien zur physischen Anthropologie“, Band 1. Detroit: Amerikanische Vereinigung für physische Anthropologie. S. 149–157.
- ^ Wu, X. (1998). „Ursprung des modernen Menschen in China aus der Sicht kraniozentaler Merkmale des späten Homo sapiens “. Acta Anthropologica Sinica . 17 : 276–82 .
- Rosenberg , K. R.; Wu, X. (2013). „Ein Fluss fließt hindurch: Die Ursprünge des modernen Menschen in Ostasien“. In: Die Ursprünge des modernen Menschen: Biologie neu betrachtet . Smith, F. H. (Hrsg.). Wiley-Blackwell. S. 89–122.
- ^ Liu, L.; Chen, X. (2012). Die Archäologie Chinas: Vom späten Paläolithikum bis zur frühen Bronzezeit . Cambridge University Press . S. 14: „Die Mehrheit der chinesischen Archäologen und Paläontologen unterstützt das multiregionale Entwicklungsmodell und schlägt die Hypothese einer regionalen Kontinuität mit Hybridisierung zwischen Einwanderern und einheimischen Bevölkerungsgruppen in der Evolution von H. erectus zu H. sapiens in Ostasien vor.“
- ^ Leibold, J. (2012). „Die Ausfüllung der Nation: Die räumliche Entwicklung der prähistorischen Archäologie im China des 20. Jahrhunderts“, in: Transforming History: The Making of a Modern Academic Discipline in Twentieth Century China , hrsg. von Brian Moloughney und Peter Zarrow, S. 333–71 (Hongkong: Chinese University Press).
- ^ Begun, DR (2013). „Vergangenheit, Gegenwart und Zukunft der Paläoanthropologie“. In: A Companion to Paleoanthropology . Wiley-Blackwell. S. 8: „Es muss jedoch angemerkt werden, dass dieses [multiregionale Modell] eine Minderheitsmeinung unter Paläoanthropologen darstellt, von denen die meisten das Modell der afrikanischen Verdrängung unterstützen.“
- ^ Stringer, CB; Andrews, P. (1988). „Genetische und fossile Belege für den Ursprung des modernen Menschen“. Science . 239 (4845): 1263–68 . Bibcode : 1988Sci...239.1263S . doi : 10.1126/science.3125610 . PMID 3125610 .
- ^ Stringer, C.; Bräuer, G. (1994). „Methoden, Fehlinterpretationen und Voreingenommenheit“. American Anthropologist . 96 (2): 416–24 . doi : 10.1525/aa.1994.96.2.02a00080 .
- ^ Stringer, CB (1992). „Ersatz, Kontinuität und der Ursprung des Homo sapiens “. In: Kontinuität oder Ersatz? Kontroversen in der Evolution des Homo sapiens . FH Smith (Hrsg.). Rotterdam: Balkema. S. 9–24.
- ^ a b Bräuer, G.; Stringer, C. (1997). „Modelle, Polarisierung und Perspektiven der modernen menschlichen Ursprünge“. In: Konzeptuelle Fragen der Forschung zu den modernen menschlichen Ursprüngen . New York: Aldine de Gruyter. S. 191–201.
- ^ Stringer, C. (2001). „Ursprünge des modernen Menschen: Unterscheidung der Modelle“. African Archaeological Review . 18 (2): 67–75 . doi : 10.1023/A:1011079908461 . S2CID 161991922 .
- ^ Stringer, C. (2002). „Die Ursprünge des modernen Menschen: Fortschritt und Perspektiven“ . Philosophical Transactions of the Royal Society of London . 357 (1420): 563–79 . doi : 10.1098/rstb.2001.1057 . PMC 1692961. PMID 12028792 .
- ^ Stringer, C. (2014). „Warum wir nicht alle Multiregionalisten sind“ . Trends in Ecology & Evolution . 29 (5): 248–51 . Bibcode : 2014TEcoE..29..248S . doi : 10.1016/j.tree.2014.03.001 . PMID 24702983 .
- Templeton , AR (2002). „Out of Africa again and again“ (PDF) . Nature . 416 (6876): 45–51 . Bibcode : 2002Natur.416...45T . doi : 10.1038/416045a . PMID 11882887. S2CID 4397398. Archiviert vom Original (PDF) am 12. November 2020.
- ^ Wolpoff, MH (1985). „Die menschliche Evolution an den Peripherien: Das Muster am östlichen Rand“. Hominidenevolution: Vergangenheit, Gegenwart und Zukunft . S. 355–365 .
- Frayer , DW; Wolpoff, MH; Thorne, AG; Smith, FH; Pope, GG (1993). „Theorien zum Ursprung des modernen Menschen: Der paläontologische Test“. American Anthropologist . 95 ( 1 ): 14–50 . Bibcode : 1993AAnth..95 ... 14F . doi : 10.1525/aa.1993.95.1.02a00020 .
- ^ Wolpoff, MH; Thorne, AG; Smith, FH; Frayer, DW; Pope, GG „Multiregionale Evolution: Eine weltweite Quelle für moderne menschliche Populationen“. In: Nitecki, MH; Nitecki, DV (Hrsg.). Ursprünge des anatomisch modernen Menschen . New York: Plenum Press . S. 175–199 .
- ^ Wolpoff, MH (1989). „Multiregionale Evolution: Die fossile Alternative zum Paradies“. Die menschliche Revolution: Verhaltens- und biologische Perspektiven auf die Ursprünge des modernen Menschen . 1 : 62–108 .
- ^ Thorne, AG; Wolpoff, MH (1981). „Regionale Kontinuität in der pleistozänen Hominidenevolution Australasiens“. American Journal of Physical Anthropology . 55 (3): 337–49 . Bibcode : 1981AJPA...55..337T . doi : 10.1002/ajpa.1330550308 . PMID 6791505 .
- ^ Thorne, A. G. (1981). „Das Zentrum und der Rand: Die Bedeutung australischer Hominiden für die afrikanische Paläoanthropologie“. Tagungsband des 8. Panafrikanischen Kongresses für Vorgeschichte (Nairobi) . Nairobi: Nationalmuseen von Kenia. S. 180–181 .
- ^ Wolpoff, Milford H.; Hawks, John D .; Frayer, David W.; Hunley, Keith (2001). „Die Abstammung des modernen Menschen in den Randgebieten: Ein Test der Ersetzungstheorie“. Science . 291 (5502): 293–97 . Bibcode : 2001Sci...291..293W . doi : 10.1126/science.291.5502.293 . PMID 11209077 .
- ^ Thorne, AG (1984). „Australiens menschliche Ursprünge – wie viele Quellen?“. American Journal of Physical Anthropology . 63 (2): 133–242 . doi : 10.1002/ajpa.1330630203 . PMID 6711682 .
- ^ Thorne, AG; Wolpoff, MH (1992). „Die multiregionale Evolution des Menschen“. Scientific American . Band 266, Nr. 4. S. 76–83 . Bibcode : 1992SciAm.266d..76T . doi : 10.1038/scientificamerican0492-76 . PMID 1566033 .
- ^ Kramer, A. (1991). „Ursprünge des modernen Menschen in Australasien: Verdrängung oder Evolution?“. American Journal of Physical Anthropology . 86 (4): 455–73 . Bibcode : 1991AJPA...86..455K . doi : 10.1002/ajpa.1330860403 . PMID 1776654 .
- ^ Groves, CP (1997). „Über evolutionären Wandel nachdenken: Die Polarität unserer Vorfahren“. Konzeptuelle Fragen der modernen Forschung zur menschlichen Herkunft . Transaction Publishers .
- Habgood , PJ (1989). „Der Ursprung des anatomisch modernen Menschen in Australasien“. In: Mellars, P.; Stringer, CB (Hrsg.). Die menschliche Revolution: Verhaltensbiologische und biologische Perspektiven auf den Ursprung des modernen Menschen . S. 245–273 .
- ^ Habgood, PJ (2003). Eine morphometrische Untersuchung der Ursprünge des anatomisch modernen Menschen . Internationale Reihe. Band 1176. Oxford: British Archaeological Reports / Archaeopress .
- ^ Durband, A. (2007). „Die Sicht von unten: Ein Test der multiregionalen Hypothese der Ursprünge des modernen Menschen anhand der Schädelbasisfunde aus Australasien“. Collegium Antropologicum . 31 (3): 651–59 . PMID 18041369 .
- ^ Baba, H.; Aziz, F.; Narasaki, S. (2000). „Wiederherstellung des Gesichts des javanischen Homo erectus Sangiran 17 und Neubewertung der regionalen Kontinuität in Australasien“. Acta Anthropologica Sinica . 19 : 34–40 .
- ^ Wu, X. (1990). „Die Evolution der Menschheit in China“. Acta Anthropologica Sinica . 9 (4): 312–21 .
- ^ Wu, X.; Poirier, FE (1995). Menschliche Evolution in China: Eine metrische Beschreibung der Fossilien und eine Übersicht der Fundstätten . Oxford University Press .
- ^ Habgood, PJ (1992). „Der Ursprung des anatomisch modernen Menschen in Ostasien“. In: G. Bräuer und FH Smith (Hrsg.) Kontinuität oder Ersatz: Kontroversen in der Evolution des Homo sapiens . S. 273–288.
- ^ Groves, CP (1989). „Ein regionaler Ansatz zum Problem des Ursprungs des modernen Menschen in Australasien“. In: P. Mellars & CB Stringer (Hrsg.), Die menschliche Revolution . Princeton University Press . S. 274–285.
- ^ Woo, R (1986). „Chinesische menschliche Fossilien und der Ursprung der mongoloiden Rassengruppe“. Anthropos (Brno) . 23 : 151–55 .
- ^ Wu, X. (2006). „Beweise für die Multiregionale Evolutionshypothese des Menschen aus China“. Quaternary Sciences . 26 (5): 702–70 .
- ^ Stringer, CB (1992). „Ersatz, Kontinuität und der Ursprung des Homo sapiens “. In: Kontinuität oder Ersatz? Kontroversen in der Evolution des Homo sapiens . Rotterdam: AA Balkema. S. 9–24.
- ^ Frayer, DW (1992). „Das Fortbestehen von Neandertalermerkmalen bei europäischen Nachkommen des Neandertalers“. In: Kontinuität oder Verdrängung: Kontroversen in der Evolution des Homo sapiens . Rotterdam: Balkema, S. 179–188.
- ^ Frayer, DW (1992). „Evolution am europäischen Rand: Neandertaler und die Beziehungen im Jungpaläolithikum.“ Préhistoire Européene . 2:9–69.
- ^ Frayer, DW (1997). „Perspektiven auf Neandertaler als Vorfahren“. In: Konzeptuelle Fragen der Forschung zur Entstehung des modernen Menschen . New York: Aldine de Gruyter. S. 220–235.
- ^ Harvati, Katerina; Frost, Stephen R.; McNulty, Kieran P. (2004). „Neandertaler-Taxonomie neu betrachtet: Implikationen von 3D-Primatenmodellen intra- und interspezifischer Unterschiede“ . Proceedings of the National Academy of Sciences of the United States of America . 101 (5): 1147–52 . Bibcode : 2004PNAS..101.1147H . doi : 10.1073/pnas.0308085100 . PMC 337021. PMID 14745010 .
- ^ Pearson, Osbjorn M. (2004). „Hat die Kombination genetischer und fossiler Beweise das Rätsel der Ursprünge des modernen Menschen gelöst?“ Evolutionary Anthropology . 13 (4): 145–59 . doi : 10.1002/evan.20017 . S2CID 31478877 .
- Holton , NE; Franciscus, RG (2008). „Das Paradoxon einer weiten Nasenöffnung bei kälteangepassten Neandertalern: eine kausale Bewertung“. Journal of Human Evolution . 55 (6): 942–51 . Bibcode : 2008JHumE..55..942H . doi : 10.1016/j.jhevol.2008.07.001 . PMID 18842288 .
- ^ Wolpoff, MH (1989). „Die Stellung der Neandertaler in der menschlichen Evolution“. In: Trinkaus, Erik (Hrsg.). Die Entstehung des modernen Menschen: Biokulturelle Anpassungen im späten Pleistozän . Cambridge University Press . S. 97–41 .
- ^ Wolpoff, Milford; Mannheim, Bruce; Mann, Alan; Hawks, John D.; Caspari, Rachel; Rosenberg, Karen R.; Frayer, David W.; Gill, George W.; Clark, Geoffrey (2004). „Warum nicht die Neandertaler?“. World Archaeology . 36 (4): 527–46 . doi : 10.1080/0043824042000303700 . S2CID 2507757 .
- ^ Trinkaus, Erik (Mai 2007). „Europäische frühe moderne Menschen und das Schicksal der Neandertaler“ . Proceedings of the National Academy of Sciences of the United States of America . 104 (18): 7367–7372 . Bibcode : 2007PNAS..104.7367T . doi : 10.1073 / pnas.0702214104 . ISSN 0027-8424 . PMC 1863481. PMID 17452632 .
- ^ Das sich abzeichnende Schicksal der Neandertaler
- ^ Smith, FH; Janković, I.; Karavanić, I. (2005). „Das Assimilationsmodell, der Ursprung des modernen Menschen in Europa und das Aussterben der Neandertaler“. Quaternary International . 137 (1): 7–19 . Bibcode : 2005QuInt.137....7S . doi : 10.1016/j.quaint.2004.11.016 .
- ^ Duarte, C.; Maurício, J.; Pettitt, P.; Souto, P.; Trinkaus, E. ; van der Plicht, H.; Zilhão, J. (1999). „Das frühe Jungpaläolithikum des menschlichen Skeletts aus dem Abrigo do Lagar Velho (Portugal) und die Entstehung des modernen Menschen in Iberien“ . Proc Natl Acad Sci USA . 96 (13): 7604– 09. Bibcode : 1999PNAS...96.7604D . doi : 10.1073/pnas.96.13.7604 . PMC 22133 . PMID 10377462 .
- ^ Trinkaus, E.; Moldovan, O.; Milota, S.; Bîlgăr, A.; Sarcina, L.; Athreya, S.; Bailey, SE; Rodrigo, R.; Mircea, G.; Higham, T.; Ramsey, CB; van der Plicht, J. (September 2003). „Ein frühneuzeitlicher Mensch aus der Oase Peştera cu, Rumänien“ . Tagungsband der National Academy of Sciences der Vereinigten Staaten von Amerika . 100 (20): 11231– 36. Bibcode : 2003PNAS..10011231T . doi : 10.1073/pnas.2035108100 . ISSN 0027-8424 . PMC 208740 . PMID 14504393 .
Werden mehrere Messungen durchgeführt, kann der Mittelwert durch Mittelung der Aktivitätsverhältnisse ermittelt werden. Für Oase 1 ergibt sich daraus ein gewichtetes mittleres Aktivitätsverhältnis von 〈14a〉 = 1,29 ± 0,15 %, woraus sich ein kombiniertes OxA-GrA-14C-Alter von 34.950, +990 und −890 BP ergibt.
- Tattersall , Ian; Schwartz, Jeffrey H. (1999). „Hominiden und Hybriden: Die Stellung der Neandertaler in der menschlichen Evolution“ . Proceedings of the National Academy of Sciences of the United States of America . 96 (13): 7117–19 . Bibcode : 1999PNAS...96.7117T . doi : 10.1073 / pnas.96.13.7117 . PMC 33580. PMID 10377375 .
- ^ Cann, Rebecca L.; Stoneking, Mark; Wilson, Allan C. (1. Januar 1987). „Mitochondriale DNA und die menschliche Evolution“ . Nature . 325 ( 6099): 31–36 . Bibcode : 1987Natur.325...31C . doi : 10.1038/325031a0 . PMID 3025745. S2CID 4285418. Archiviert vom Original am 13. August 2010.
- ^ McBride, B.; Haviland, W. E.; Prins, H. E.; Walrath, D. (2009). Das Wesen der Anthropologie . Belmont, CA: Wadsworth Publishing. S. 90. ISBN 978-0-495-59981-4Die
- ^ Reid, G. R.; Hetherington, R. (2010). Der Zusammenhang zwischen Klima und Mensch: Klimawandel und die Evolution des modernen Menschen . Cambridge University Press . S. 64. ISBN 978-0-521-14723-1Die
- ^ Meredith, M. (2011). Geboren in Afrika: Die Suche nach den Ursprüngen des menschlichen Lebens . New York: PublicAffairs. ISBN 978-1-58648-663-1Die
- ^ Wolpoff, M.; Caspari, R. (1997). Rasse und menschliche Evolution: Eine fatale Anziehungskraft . New York: Simon & Schuster . S. 213.
- ^ Wolpoff, M.; Thorne, A. (1991) „Die Argumente gegen Eva“ New Scientist 130(1774): 37–41
- ^ Curnoe, D.; Thorne, AG (2003). „Anzahl der menschlichen Vorfahrenarten: eine molekulare Perspektive“. Homo: Journal of Comparative Human Biology . 53 (3): 201–24 . doi : 10.1078/0018-442x-00051 . PMID 12733395 .
- ^ Wu, X. (2004). „Diskussion über die Ergebnisse einiger molekularbiologischer Studien zur Herkunft der modernen Chinesen“. Acta Anthropologica Sinica . 24 (4): 259–69 .
- Thorne , AG; Wolpoff, MH; Eckhardt, RB (1993). „Genetische Variation in Afrika“. Science . 261 (5128): 1507–1508 . Bibcode : 1993Sci...261.1507T . doi : 10.1126/science.8372344 . PMID 8372344 .
- Wu , Xinzhi; Gao, Xing; Zhang, X.; Yang, D.; Shen, C. (2010). „Die Ursprünge des modernen Menschen in China und ihre Bedeutung für die globale menschliche Evolution“. Science China Earth Sciences . 53 (12): 1927–40 . Bibcode : 2010ScChD..53.1927G . doi : 10.1007/s11430-010-4099-4 . S2CID 195307737 .
- ^ Thorne, AG; Curnoe, D. (2006). „Was ist das wahre Alter von Adam und Eva? Proceedings of the Australian Society of Human Biology“. Homo: Journal of Comparative Human Biology . 57 : 240.
- ^ Relethford, JH (5. März 2008). „Genetische Beweise und die Debatte um den Ursprung des modernen Menschen“ . Heredity . 100 (6): 555–63 . Bibcode : 2008Hered.100..555R . doi : 10.1038/hdy.2008.14 . PMID 18322457 .
- ^ Hawks, John D. (5. September 2005). „Selektion, nukleäre genetische Variation und mtDNA“ . JohnHawks.net . Abgerufen am 5. Januar 2011 .
- ^ Thorne, AG; Wolpoff, MH (2003). „Die multiregionale Evolution des Menschen“. Scientific American . Bd. 13, Nr. 2. S. 46–53 .
- ^ Krings, M.; Stone, A.; Schmitz, RW; Krainitzki, H.; Stoneking, M.; Pääbo, S. (Juli 1997). „Neandertaler-DNA-Sequenzen und der Ursprung des modernen Menschen“. Cell . 90 (1): 19–30 . doi : 10.1016/S0092-8674(00)80310-4 . hdl : 11858 / 00-001M-0000-0025-0960-8 . PMID 9230299. S2CID 13581775 .
- ^ Krings, M.; Capelli, C.; Tschentscher, F.; Geisert, H.; Meyer, S.; von Haeseler, A.; et al. (2000). „Ein Blick auf die genetische Vielfalt der Neandertaler“. Naturgenetik . 26 (2): 144– 46. Bibcode : 2000NaGen..26..144K . doi : 10.1038/79855 . PMID 11017066 . S2CID 10426584 .
- ^ Wang, CC; Farina, SE; Li, H. (2013). „Neandertaler-DNA und die Ursprünge des modernen Menschen“. Quaternary International . 295 : 126–29 . Bibcode : 2013QuInt.295..126W . doi : 10.1016/j.quaint.2012.02.027 .
- ^ a b Relethford, John H. (12. April 2001). „Das Fehlen regionaler Affinitäten der Neandertaler-DNA mit lebenden Menschen widerlegt nicht die Theorie der multiregionalen Evolution“. American Journal of Physical Anthropology . 115 (1): 95–98 . Bibcode : 2001AJPA..115...95R . doi : 10.1002/ajpa.1060 . PMID 11309754 .
- ^ Wolpoff, M. (1998). „Die Entwicklung einer kontroversen Theorie“ . Evolutionary Anthropology . 7 (1): 1–3 . doi : 10.1002/(sici)1520-6505(1998)7:1<1::aid-evan1>3.3.co;2-w . hdl : 2027.42/38589 .
- ^ Hammer, MF; et al. (1998). „Out of Africa and Back Again: Nested Cladistic Analysis of Human Y Chromosome Variation“ . Molecular Biology and Evolution . 15 (4): 427–441 . doi : 10.1093/oxfordjournals.molbev.a025939 . PMID 9549093 .
- Hammer , MF; Garrigan, D.; Wood, E.; Wilder, JA; Mobasher, Z.; Bigham, A.; Krenz, JG; Nachman, MW (August 2004). „Heterogene Variationsmuster an mehreren X-chromosomalen Loci des Menschen: Die mögliche Rolle der diversitätsreduzierenden Selektion bei Nicht-Afrikanern“ . Genetics . 167 ( 4): 1841–53 . doi : 10.1534/genetics.103.025361 . ISSN 0016-6731 . PMC 1470985. PMID 15342522 . Eine weiterführende Diskussion dieser Ergebnisse findet sich in einem Video einer Präsentation von Hammer unter https://www.youtube.com/watch?v=Ff0jwWaPlnU (Video) ab etwa Minute 40 bis 50.
- Das CMP-N-Acetylneuraminsäure-Hydroxylase- Pseudogen CMAH weist eine Koaleszenzzeit von 2,9 Millionen Jahren auf. Hayakawa, T.; Aki, I.; Varki, A.; Satta, Y.; Takahata, N. (Februar 2006). „ Fixierung des human-spezifischen CMP-N-Acetylneuraminsäure-Hydroxylase-Pseudogens und Implikationen der Haplotypdiversität für die menschliche Evolution“ . Genetics . 172 ( 2): 1139–46 . doi : 10.1534/genetics.105.046995 . ISSN 0016-6731 . PMC 1456212. PMID 16272417 .
- Der PDHA1-Locus ( Pyruvatdehydrogenase ) auf dem X-Chromosom weist eine geschätzte Koaleszenzzeit von 1,86 Millionen Jahren auf, was mit einem rezenten Artenursprung unvereinbar ist. Das weltweite Abstammungsmuster unterscheidet sich jedoch von anderen autosomalen Loci und könnte mit einer rezenten Ausbreitung aus Afrika übereinstimmen. Harding , Rosalind M. (16. März 1999). „More on the X files“ . Proceedings of the National Academy of Sciences of the United States of America . 96 (6): 2582–84 . Bibcode : 1999PNAS...96.2582H . doi : 10.1073 / pnas.96.6.2582 . PMC 33533. PMID 10077551 .
- Eine zweite Gruppe kommt zum selben Schluss, dass PDHA1 einen uralten Ursprung hat, findet aber keine Hinweise auf eine rezente Expansion. Dies steht im Einklang mit anderen autosomalen und X-chromosomalen Genorten und widerspricht mitochondrialen Daten. Harris , EE; Hey, Jody (1999). „ X chromosome evidence for ancient human histories“ . Proceedings of the National Academy of Sciences of the United States of America . 96 (6): 3320–24 . Bibcode : 1999PNAS...96.3320H . doi : 10.1073/pnas.96.6.3320 . PMC 15940. PMID 10077682 .
- Das ASAH1 -Gen weist zwei kürzlich differenzierte Linien mit einer Koaleszenzzeit von 2,4 ± 0,4 Millionen Jahren auf, die nicht durch balancierende Selektion erklärbar ist . Die V-Linie zeigt Anzeichen einer rezenten positiven Selektion. Das Linienmuster könnte auf Hybridisierung während einer kürzlichen Ausbreitung aus Afrika zurückzuführen sein, wobei die V-Linie auf archaische Menschen außerhalb Afrikas zurückgeht. Es ist jedoch auch mit einer Vermischung zweier lange isolierter Gruppen innerhalb Afrikas vereinbar; es ist nicht mit der rezenten Entstehung einer modernen menschlichen Spezies vereinbar, die archaische Formen ohne Vermischung verdrängte. Kim, HL; Satta, Y (März 2008). „Population genetic analysis of the N-acylsphingosine amidohydrolase gene associated with mental activity in humans“ . Genetics . 178 (3): 1505–15 . doi : 10.1534/genetics.107.083691 . ISSN 0016-6731 . PMC 2278054 . PMID 18245333 .
Es wird vermutet, dass es bei der Ausbreitung des modernen Menschen aus Afrika zu einer Vermischung der unterschiedlichen V- und M-Linien kam und dass sich die V-Linie seither durch mögliche positive Selektion in der gesamten Population verbreitet hat.
- ^ Garrigan, Daniel; Mobasher, Zahra; Kingan, Sarah B.; Wilder, Jason A.; Hammer, Michael F. (August 2005). „Tiefe Haplotyp-Divergenz und weitreichende Kopplungsungleichgewichte auf Xp21.1 liefern Hinweise darauf, dass der Mensch von einer strukturierten Vorfahrenpopulation abstammt . “ Genetics . 170 (4): 1849–56 . Bibcode : 2005Genet.170.1849G . doi : 10.1534/genetics.105.041095 . PMC 1449746. PMID 15937130 .
- ^ NAT2- SNP- Linien gruppieren sich in Subsahara-Afrika, Europa und Ostasien, wobei die genetischen Distanzen mit den geografischen Distanzen korrelieren. Sabbagh, A.; Langaney, A.; Darlu, P.; Gérard, N.; Krishnamoorthy, R.; Poloni, ES (Februar 2008). „Weltweite Verteilung der NAT2-Diversität: Implikationen für die Evolutionsgeschichte von NAT2“ . BMC Genetics . 9, 21. doi : 10.1186 /1471-2156-9-21 . PMC 2292740. PMID 18304320 . Siehe auch Karte ; möglicherweise wird das Browserfenster vergrößert oder verkleinert.
- Der Stammbaum der NAT1-Linie hat seinen Ursprung in Eurasien und weist eine Koaleszenzzeit von 2,0 Millionen Jahren auf, die nicht durch balancierende Selektion erklärt werden kann. Der Haplotyp NAT1*11A fehlt in Subsahara-Afrika. Patin , E.; Barreiro, LB; Sabeti, PC; Austerlitz, F.; Luca, F.; Sajantila, A.; et al. (März 2006). „Entschlüsselung der alten und komplexen Evolutionsgeschichte menschlicher Arylamin-N-Acetyltransferase-Gene“ . American Journal of Human Genetics . 78 (3): 423–36 . doi : 10.1086/500614 . ISSN 0002-9297 . PMC 1380286. PMID 16416399 .
- ^ Hawks, John D. (15. Januar 2006). „Variation in NAT1 and NAT2“ . JohnHawks.net . Abgerufen am 4. Januar 2011 .
- ^ Garrigan, D.; Mobasher, Z.; Severson, T.; Wilder, J. A.; Hammer, M. F. (Februar 2005). „Hinweise auf archaische asiatische Abstammung auf dem menschlichen X-Chromosom“ . Molecular Biology and Evolution . 22 (2): 189–192 . doi : 10.1093/molbev/msi013 . ISSN 0737-4038 . PMID 15483323 .
- ^ Cox, MP; Mendez, FL; Karafet, TM; Pilkington, MM; Kingan, SB; Destro-Bisol, G; Strassmann, BI; Hammer, MF (Januar 2008). „Testing for archaic hominin admixture on the X chromosome: Model likelihoods for the modern human RRM2P4 region from summaries of genealogical topology under the structured coalescent“ . Genetics . 178 (1): 427–37 . doi : 10.1534/genetics.107.080432 . ISSN 0016-6731 . PMC 2206091. PMID 18202385 .
- ^ Hardy, J.; Pittman, A.; Myers, A.; Gwinn-Hardy, K.; Fung, HC; de Silva, R. de; Hutton, M.; Duckworth, J. (2005). „Hinweise darauf, dass Homo neanderthalensis den H2 MAPT-Haplotyp zu Homo sapiens beigetragen hat “. Biochemical Society Transactions . 33 (4): 582–85 . doi : 10.1042/bst0330582 . PMID 16042549 .
- ^ Zody, MC; Jiang, Z.; Fung, HC; Antonacci, F.; Hillier, LW; Cardone, MF; et al. (August 2008). „Evolutionäres Umschalten der MAPT - Inversionsregion 17q21.31“ . Nature Genetics . 40 (9): 1076–83 . doi : 10.1038/ng.193 . ISSN 1061-4036 . PMC 2684794. PMID 19165922 .
- ^ Almos, PZ; Horváth, S.; Czibula, A.; Rasko, I.; Sipos, B.; Bihari, P.; Béres, J.; Juhász, A.; Janka, Z.; Kálmán, J. (November 2008). „H1-Tau-Haplotyp-bedingte genomische Variation bei 17q21.3 als asiatisches Erbe der europäischen Zigeunerbevölkerung“ . Vererbung . 101 (5): 416– 19. Bibcode : 2008Hered.101..416A . doi : 10.1038/hdy.2008.70 . ISSN 0018-067X . PMID 18648385 .
- Stefansson , H.; Helgason, A.; Thorleifsson, G.; Steinthorsdottir, V.; Masson, G.; Barnard, J.; et al. (16. Januar 2005). „Eine häufige Inversion unter Selektion bei Europäern“ . Nature Genetics . 37 (2): 129–37 . Bibcode : 2005NaGen..37..129S . doi : 10.1038 / ng1508 . PMID 15654335. S2CID 120515 .
- Evans , P. D.; Mekel-Bobrov, N.; Vallender, E. J.; Hudson, R. R.; Lahn, B. T. (November 2006). „Nachweis, dass das adaptive Allel des Gehirngrößengens Microcephalin aus einer archaischen Homo- Linie in den Homo sapiens eingekreuzt wurde“ . Proceedings of the National Academy of Sciences of the United States of America . 103 (48): 18178–83 . Bibcode : 2006PNAS..10318178E . doi : 10.1073/pnas.0606966103 . ISSN 0027-8424 . PMC 1635020. PMID 17090677 .
- ^ Trinkaus, E. (Mai 2007). „Europäische frühe moderne Menschen und das Schicksal der Neandertaler“ . Proceedings of the National Academy of Sciences of the United States of America . 104 (18): 7367–7372 . Bibcode : 2007PNAS..104.7367T . doi : 10.1073 / pnas.0702214104 . ISSN 0027-8424 . PMC 1863481. PMID 17452632 .
- Evans , PD; Gilbert, SL; Mekel-Bobrov, N; Vallender, EJ; Anderson, JR; Vaez-Azizi, LM; Tishkoff, SA; Hudson, RR; Lahn, BT (September 2005). „Microcephalin, ein Gen, das die Gehirngröße reguliert, entwickelt sich beim Menschen weiterhin adaptiv“. Science . 309 ( 5741): 1717–20 . Bibcode : 2005Sci...309.1717E . doi : 10.1126/science.1113722 . ISSN 0036-8075 . PMID 16151009. S2CID 85864492 .
- ^ Hawks, John D. (8. November 2006). „Introgression und Mikrocephalin – Häufig gestellte Fragen“ . JohnHawks.net . Abgerufen am 5. Januar 2011 .
- ^ Pennisi, E. (Februar 2009). „Neandertaler-Genomik: Geschichten eines prähistorischen menschlichen Genoms“. Science . 323 (5916): 866–71 . doi : 10.1126/science.323.5916.866 . PMID 19213888. S2CID 206584252 .
- ^ Green, R. E.; Krause, J.; Briggs, A. W.; Maricic, T.; Stenzel, U.; Kircher, M.; et al. (Mai 2010). „Entwurf der Sequenz des Neandertaler-Genoms“ . Science . 328 ( 5979): 710–722 . Bibcode : 2010Sci...328..710G . doi : 10.1126/science.1188021 . PMC 5100745. PMID 20448178 .
- ^ Lari, M.; Rizzi, E.; Milani, L.; Corti, G.; Balsamo, C.; Vai, S.; Catalano, G.; Pilli, E.; Longo, L.; Condemi, S.; Giunti, P.; Hänni, C.; De Bellis, G.; Orlando, L.; Barbujani, G.; Caramelli, D. (Mai 2010). „Das Microcephalin-Ahnen-Allel bei einem Neandertaler“ . PLoS One . 5 (5) e10648. Bibcode : 2010PLoSO...510648L . doi : 10.1371/journal.pone.0010648 . PMC 2871044 . PMID 20498832 .
- ^ Ke, Yuehai; et al. (2001). „Afrikanischer Ursprung des modernen Menschen in Ostasien: Eine Geschichte von 12.000 Y-Chromosomen“. Science . 292 ( 5519): 1151–53 . Bibcode : 2001Sci...292.1151K . doi : 10.1126/science.1060011 . PMID 11349147. S2CID 32685801 .
- Templeton , Alan R. (2005). „Haplotype Trees and Modern Human Origins“ (PDF) . Yearbook of Physical Anthropology . 48 (S41): 33–59 . Bibcode : 2005AJPA..128S..33T . doi : 10.1002/ajpa.20351 . PMID 16369961 .
- ^ Yotova, Vania; Lefebvre, Jean-Francois; Moreau, Claudia; Gbeha, Elias; Hovhannesyan, Kristine; Bourgeois, Stephane; et al. (Juli 2011). „Ein X-chromosomaler Haplotyp neandertaler Herkunft ist in allen nicht-afrikanischen Populationen vorhanden“ . Molecular Biology and Evolution . 28 (7): 1957–62 . doi : 10.1093/molbev/msr024 . PMID 21266489 .
- ^ Reich, David; Patterson, Nick; Kircher, Martin; Delfin, Friedrich; Nandineni, Madhusudan R.; Pugach, Irina; Ko, Albert Min-Shan; Ko, Ying-Chin; Jinam, Timothy A.; Phipps, Maude E.; Saitou, Naruya; Wollstein, Andreas; Kayser, Manfred; Pääbo, Svante ; Stoneking, Mark; et al. (2011). „Denisova-Beimischung und die ersten modernen Ausbreitungen des Menschen nach Südostasien und Ozeanien“ (PDF) . Amerikanisches Journal für Humangenetik . 89 (4): 516–528 . doi : 10.1016/j.ajhg.2011.09.005 . PMC 3188841 . PMID 21944045 . Archiviert vom Original (PDF) am 9. Oktober 2014. Abgerufen am 7. September 2013 .
- ^ Noonan, James P.; et al. (17. November 2006). „Sequenzierung und Analyse genomischer DNA des Neandertalers“ . Science . 314 (5802): 1113–1118 . Bibcode : 2006Sci...314.1113N . doi : 10.1126 /science.1131412 . PMC 2583069. PMID 17110569 .
- ^ Green, Richard E.; et al. (7. Mai 2010). „Entwurf der Sequenz des Neandertaler-Genoms“ . Science . 328 (5979): 710–22 . Bibcode : 2010Sci...328..710G . doi : 10.1126 /science.1188021 . PMC 5100745. PMID 20448178 .
- ^ Hawks, John D. (6. Mai 2010). „Neandertaler leben!“ . JohnHawks.net . Abgerufen am 31. Dezember 2010 .
- ^ Reich, David; et al. (23. Dezember 2010). „Genetische Geschichte einer archaischen Homininengruppe aus der Denisova-Höhle in Sibirien“ . Nature . 468 ( 7327): 1053–60 . Bibcode : 2010Natur.468.1053R . doi : 10.1038/nature09710 . PMC 4306417. PMID 21179161 .
- ^ Hawks, John D. (22. Dezember 2010). „Die häufig gestellten Fragen zum Denisova-Genom“ . JohnHawks.net . Abgerufen am 31. Dezember 2010 .
- ^ Abi-Rached, Laurent; et al. (25. August 2011). „Die Gestaltung des modernen menschlichen Immunsystems durch multiregionale Vermischung mit archaischen Menschen“ . Science . 334 ( 6052): 89–94 . Bibcode : 2011Sci...334...89A . doi : 10.1126/science.1209202 . PMC 3677943. PMID 21868630 .
- ^ * Witherspoon, DJ; Wooding, S.; Rogers, AR; Marchani, EE; Watkins, WS; Batzer, MA; Jorde, LB (2007). „Genetische Ähnlichkeiten innerhalb und zwischen menschlichen Populationen“ . Genetics . 176 (1): 351–59 . doi : 10.1534 / genetics.106.067355 . PMC 1893020. PMID 17339205 .
- ^ Witherspoon, DJ; Wooding, S.; Rogers, AR; et al. (Mai 2007). „Genetische Ähnlichkeiten innerhalb und zwischen menschlichen Populationen“ . Genetics . 176 ( 1): 351–59 . doi : 10.1534/genetics.106.067355 . PMC 1893020. PMID 17339205 .
Weiterführende Literatur
- Marwick, Ben (1. Juni 2009) [23. Juli 2008]. „Biogeographie der Homininen des mittleren Pleistozäns auf dem südostasiatischen Festland: Ein Überblick über den aktuellen Forschungsstand“ . Quaternary International . 202 ( 1–2 ): 51–58 . Bibcode : 2009QuInt.202...51M . doi : 10.1016/j.quaint.2008.01.012 . Abgerufen am 4. April 2014 über Academia.edu.
Externe Links
- Templetons Gitterdiagramm veranschaulicht die wichtigsten Genflüsse . Via Conrante.com.
- Anmerkungen zu Gendrift und Migration mit Gleichungen zur Berechnung der Auswirkungen auf die Allelfrequenzen verschiedener Populationen. Via Darwin.EEB.CUonn.edu. Archiviert am 31. Mai 2001 im Internet Archive .
- „ Die menschliche Evolution “ (2011). Britannica.com .
- Mehrere Abstammungslinien im menschlichen mtDNA-Genom . Via Rafonda.com.
- Menschliche Zeitleiste (Interaktiv) (August 2016). Smithsonian Institution , National Museum of Natural History .


