
Ein photosynthetisches Reaktionszentrum ist ein Komplex aus mehreren Proteinen , biologischen Pigmenten und anderen Cofaktoren , die gemeinsam die primären Energieumwandlungsreaktionen der Photosynthese durchführen . Das Reaktionszentrum ist zusammen mit dem Lichtsammelkomplex ein Bestandteil des Photosystems . Molekulare Anregungen, die entweder direkt vom Sonnenlicht stammen oder als Anregungsenergie über Lichtsammelantennen übertragen werden , lösen Elektronentransferreaktionen entlang einer Kette von protein-gebundenen Cofaktoren aus. Diese Cofaktoren sind lichtabsorbierende Moleküle (auch Chromophore oder Pigmente genannt), wie beispielsweise Chlorophyll und Phäophytin , sowie Chinone . Die Energie des Photons wird genutzt, um ein Elektron eines Pigments anzuregen. Die dabei entstehende freie Energie wird dann über eine Kette benachbarter Elektronenakzeptoren für den Transfer von Wasserstoffatomen (als Protonen und Elektronen) von H₂O oder Schwefelwasserstoff auf Kohlendioxid verwendet , wodurch schließlich Glucose entsteht . Diese Elektronentransfer -Schritte führen letztendlich zur Umwandlung der Energie von Photonen in chemische Energie.
Umwandlung von Lichtenergie in Ladungstrennung
Reaktionszentren kommen in allen grünen Pflanzen , Algen und vielen Bakterien vor . Innerhalb der photosynthetischen Arten existiert eine Vielfalt an Lichtsammelkomplexen . Grüne Pflanzen und Algen besitzen zwei verschiedene Arten von Reaktionszentren, die Teil größerer Superkomplexe sind, bekannt als P700 im Photosystem I und P680 im Photosystem II . Die Strukturen dieser Superkomplexe sind groß und umfassen mehrere Lichtsammelkomplexe . Das Reaktionszentrum in Rhodopseudomonas- Bakterien ist derzeit am besten erforscht, da es das erste Reaktionszentrum mit bekannter Struktur war und weniger Polypeptidketten aufweist als die Beispiele in grünen Pflanzen. [ 1 ]
Ein Reaktionszentrum ist so aufgebaut, dass es die Energie eines Photons mithilfe von Pigmentmolekülen einfängt und in eine nutzbare Form umwandelt. Sobald die Lichtenergie direkt von den Pigmentmolekülen absorbiert oder durch Resonanztransfer von einem umgebenden Lichtsammelkomplex auf diese übertragen wurde , geben diese Elektronen an eine Elektronentransportkette ab und übertragen Energie auf einen Wasserstoffdonator wie H₂O, um Elektronen und Protonen zu extrahieren. In grünen Pflanzen verfügt die Elektronentransportkette über zahlreiche Elektronenakzeptoren, darunter Phäophytin , Chinon , Plastochinon , Cytochrom bf₆ und Ferredoxin . Dies führt schließlich zur Reduktion von NADPH , während die zur Wasserspaltung benötigte Energie Sauerstoff freisetzt . Der Elektronentransport durch die Elektronentransportkette führt auch zum Pumpen von Protonen (Wasserstoffionen) aus dem Stroma der Chloroplasten in das Lumen . Dadurch entsteht ein Protonengradient über die Thylakoidmembran , der zur ATP- Synthese mithilfe der ATP-Synthase genutzt werden kann . Sowohl ATP als auch NADPH werden im Calvin-Zyklus verwendet , um Kohlendioxid in Triosezucker zu fixieren.
Einstufung
Man unterscheidet zwei Klassen von Reaktionszentren. Typ I, der in grünen Schwefelbakterien , Heliobakterien und dem pflanzlichen/cyanobakteriellen PS-I vorkommt, nutzt Eisen-Schwefel-Cluster als Elektronenakzeptoren. Typ II, der in Chloroflexus , Purpurbakterien und dem pflanzlichen/cyanobakteriellen PS-II vorkommt, nutzt Chinone. Alle Mitglieder jeder Klasse haben nicht nur einen gemeinsamen Ursprung, sondern die beiden Klassen scheinen aufgrund gemeinsamer Strukturen auch verwandt zu sein. [ 2 ] [ 3 ]
Cyanobakterien, die Vorläufer der in grünen Pflanzen vorkommenden Chloroplasten , besitzen beide Photosysteme mit beiden Arten von Reaktionszentren. Die Kombination der beiden Systeme ermöglicht die Sauerstoffproduktion. [ 3 ]
Bei Purpurbakterien (Typ II)
Dieser Abschnitt befasst sich mit dem Typ-II-System, das in Purpurbakterien vorkommt. [ 3 ]
Struktur

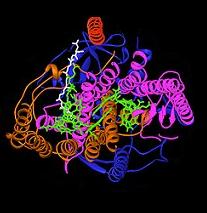
Das bakterielle photosynthetische Reaktionszentrum dient als wichtiges Modell zum Verständnis der Struktur und Chemie des biologischen Prozesses der Lichtenergieaufnahme. In den 1960er Jahren gelang es Roderick Clayton als Erstem, den Reaktionszentrumkomplex aus Purpurbakterien zu isolieren. Die erste Kristallstruktur (Abbildung oben rechts) wurde jedoch erst 1984 von Hartmut Michel , Johann Deisenhofer und Robert Huber [ 4 ] bestimmt , wofür sie 1988 den Nobelpreis erhielten. [ 5 ] Dies war auch deshalb bedeutsam, weil es die erste dreidimensionale Kristallstruktur eines Membranproteinkomplexes überhaupt war.
Vier verschiedene Untereinheiten erwiesen sich als wichtig für die Funktion des photosynthetischen Reaktionszentrums. Die L- und M-Untereinheiten (blau bzw. violett in der Strukturabbildung dargestellt) durchspannen die Lipiddoppelschicht der Plasmamembran. Sie sind strukturell einander ähnlich und besitzen jeweils fünf Transmembran- Alpha-Helices . [ 6 ] Vier Bakteriochlorophyll-b -Moleküle (BChl-b), zwei Bakteriophäophytin-b- Moleküle (BPh), zwei Chinone (Q<sub> A</sub> und Q<sub> B</sub> ) sowie ein Eisen(II)-Ion sind mit den L- und M-Untereinheiten assoziiert. Die H-Untereinheit (gold dargestellt) befindet sich auf der cytoplasmatischen Seite der Plasmamembran. Eine hier nicht dargestellte Cytochrom-Untereinheit enthält vier Häme vom c-Typ und liegt auf der periplasmatischen (äußeren) Seite der Membran. Diese Untereinheit ist kein allgemeines Strukturmotiv photosynthetischer Bakterien. Die Untereinheiten L und M binden die funktionellen und lichtinteragierenden Cofaktoren, die hier grün dargestellt sind.
Reaktionszentren verschiedener Bakterienarten können leicht veränderte Bakteriochlorophyll- und Bakteriophäophytin-Chromophore als funktionelle Cofaktoren enthalten. Diese Veränderungen bewirken Verschiebungen im absorbierbaren Lichtspektrum. Das Reaktionszentrum enthält zwei Pigmente, die der Aufnahme und Weiterleitung der durch Photonenabsorption gewonnenen Energie dienen: BChl und Bph. BChl ähnelt dem Chlorophyllmolekül grüner Pflanzen, jedoch ist seine Absorptionsmaximumwellenlänge aufgrund geringfügiger Strukturunterschiede in den Infrarotbereich verschoben , mit Wellenlängen bis zu 1000 nm. Bph besitzt die gleiche Struktur wie BChl, jedoch ist das zentrale Magnesiumion durch zwei Protonen ersetzt. Diese Veränderung führt sowohl zu einer Verschiebung des Absorptionsmaximums als auch zu einem niedrigeren Redoxpotential.
Mechanismus
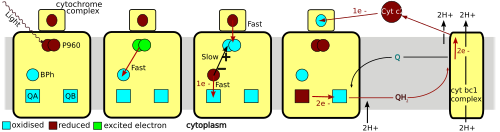
Der Prozess beginnt mit der Absorption von Licht durch zwei BChl-Moleküle, die sich nahe der periplasmatischen Seite der Membran befinden. Dieses Chlorophyllmolekülpaar, oft als „spezielles Paar“ bezeichnet, absorbiert Photonen bei 870 nm oder 960 nm, abhängig von der Spezies, und wird daher als P870 (für Rhodobacter sphaeroides ) oder P960 (für Blastochloris viridis ) bezeichnet, wobei P für „Pigment“ steht. Sobald P ein Photon absorbiert, gibt es ein Elektron ab, das über ein weiteres BChl-Molekül auf das BPh in der L-Untereinheit übertragen wird. Diese anfängliche Ladungstrennung führt zu einer positiven Ladung an P und einer negativen Ladung am BPh. Dieser Prozess dauert 10 Pikosekunden (10⁻¹¹ Sekunden ). [ 1 ]
Die Ladungen von P⁺ und BPh⁻ könnten in diesem Zustand einer Ladungsrekombination unterliegen, wodurch Energie verloren ginge und in Wärme umgewandelt würde . Mehrere Faktoren der Reaktionszentrumsstruktur verhindern dies. Erstens verläuft der Elektronentransfer von BPh⁻ zu P960⁺ im Vergleich zu zwei anderen Redoxreaktionen im Reaktionszentrum relativ langsam. Die schnelleren Reaktionen umfassen den Elektronentransfer von BPh⁻ ( BPh⁻ wird zu BPh oxidiert) zum Elektronenakzeptor Chinon (QA ) und den Elektronentransfer von einem Häm in der Cytochrom-Untereinheit oberhalb des Reaktionszentrums zu P960⁺ ( P960⁺ wird zu P960 reduziert).
Das hochenergetische Elektron des fest gebundenen Chinonmoleküls Q<sub> A </sub> wird auf ein austauschbares Chinonmolekül Q<sub> B</sub> übertragen . Dieses Molekül ist nur schwach an das Protein gebunden und lässt sich relativ leicht ablösen. Zur vollständigen Reduktion von Q<sub> B</sub> zu QH<sub> 2 </sub> werden zwei Elektronen benötigt, wobei zwei Protonen aus dem Zytoplasma aufgenommen werden. Das reduzierte Chinon QH<sub> 2 </sub> diffundiert durch die Membran zu einem weiteren Proteinkomplex ( Cytochrom-bc<sub> 1 </sub>-Komplex ), wo es oxidiert wird. Dabei wird die Reduktionskraft des QH<sub> 2</sub> genutzt, um Protonen durch die Membran in den periplasmatischen Raum zu pumpen. Die Elektronen des Cytochrom-bc <sub> 1 </sub>-Komplexes werden dann über ein lösliches Cytochrom-c-Zwischenprodukt, Cytochrom c<sub> 2 </sub> genannt , im Periplasma zur Cytochrom-Untereinheit übertragen.
In Cyanobakterien und Pflanzen
Cyanobakterien, die Vorläufer der in grünen Pflanzen vorkommenden Chloroplasten , besitzen beide Photosysteme mit beiden Arten von Reaktionszentren. Die Kombination beider Systeme ermöglicht die Sauerstoffproduktion.
Oxygenische Photosynthese
Im Jahr 1772 führte der Chemiker Joseph Priestley eine Reihe von Experimenten zu den Gasen durch, die bei der Atmung und Verbrennung entstehen. In seinem ersten Experiment zündete er eine Kerze an und stellte sie unter ein umgedrehtes Glasgefäß. Nach kurzer Zeit brannte die Kerze ab. Er wiederholte ein ähnliches Experiment mit einer Maus im geschlossenen Raum unter der brennenden Kerze. Dabei stellte er fest, dass die Maus kurz nach dem Erlöschen der Kerze starb. Er konnte die verunreinigte Luft jedoch wiederbeleben, indem er grüne Pflanzen in den Raum stellte und sie dem Licht aussetzte. Priestleys Beobachtungen zählten zu den ersten Experimenten, die die Aktivität eines photosynthetischen Reaktionszentrums nachwiesen.
1779 führte Jan Ingenhousz über vier Monate verteilt mehr als 500 Experimente durch, um den Vorgängen auf den Pflanzen auf den Grund zu gehen. Seine Entdeckungen hielt er in einem Buch mit dem Titel „ Experimente über Gemüse“ fest . Ingenhousz tauchte grüne Pflanzen in Wasser in einem transparenten Behälter. Er beobachtete, wie zahlreiche Blasen von der Blattoberfläche aufstiegen, sobald die Pflanzen dem Licht ausgesetzt waren. Ingenhousz fing das von den Pflanzen abgegebene Gas auf und führte verschiedene Tests durch, um dessen Zusammensetzung zu bestimmen. Der Test, der schließlich die Identität des Gases aufdeckte, bestand darin, eine glimmende Kerze in die Gasprobe zu halten und sie wieder entzünden zu lassen. Dieser Test bewies, dass es sich um Sauerstoff handelte, oder, wie Joseph Priestley es nannte, um „dephlogistisierte Luft “.
1932 nutzten Robert Emerson und sein Student William A. Arnold eine Blitzlichttechnik, um die von Chlorophyll in der Alge Chlorella freigesetzten geringen Sauerstoffmengen präzise zu messen . Ihr Experiment bewies die Existenz einer photosynthetischen Einheit. Gaffron und Wohl interpretierten das Experiment später und erkannten, dass das von der photosynthetischen Einheit absorbierte Licht übertragen wird. [ 7 ] Diese Reaktion findet im Reaktionszentrum des Photosystems II statt und kommt in Cyanobakterien, Algen und grünen Pflanzen vor. [ 8 ]
Photosystem II

Photosystem II erzeugt die zwei Elektronen, die (nach Durchlaufen des PSI-Komplexes) schließlich NADP + in der Ferredoxin-NADP-Reduktase reduzieren. Photosystem II befindet sich in den Thylakoidmembranen der Chloroplasten, dem Ort der Photosynthese in grünen Pflanzen. [ 9 ] Die Struktur von Photosystem II weist bemerkenswerte Ähnlichkeit mit dem bakteriellen Reaktionszentrum auf, und es wird vermutet, dass beide einen gemeinsamen Vorfahren haben.
Das Zentrum des Photosystems II besteht aus zwei Untereinheiten, D1 und D2 . Diese beiden Untereinheiten ähneln den L- und M-Untereinheiten des bakteriellen Reaktionszentrums. Photosystem II unterscheidet sich vom bakteriellen Reaktionszentrum durch zahlreiche zusätzliche Untereinheiten, die weitere Chlorophylle binden und so die Effizienz steigern. Die von Photosystem II katalysierte Gesamtreaktion lautet:
- 2Q + 2H 2 O + hν → O 2 + 2QH 2
Q steht für die oxidierte Form von Plastochinon, während QH₂ die reduzierte Form darstellt. Dieser Reduktionsprozess von Chinon ist vergleichbar mit dem im bakteriellen Reaktionszentrum. Photosystem II gewinnt Elektronen durch die Oxidation von Wasser in einem Prozess namens Photolyse . Molekularer Sauerstoff ist ein Nebenprodukt dieses Prozesses, und diese Reaktion liefert den Sauerstoff für die Atmosphäre . Die Tatsache, dass der Sauerstoff grüner Pflanzen aus Wasser stammt, wurde erstmals von dem in Kanada geborenen amerikanischen Biochemiker Martin David Kamen abgeleitet . Er nutzte ein stabiles Sauerstoffisotop, ¹⁸O , um den Weg des Sauerstoffs vom Wasser zum gasförmigen molekularen Sauerstoff nachzuverfolgen. Diese Reaktion wird durch ein reaktives Zentrum in Photosystem II katalysiert , das vier Manganionen enthält .

The reaction begins with the excitation of a pair of chlorophyll molecules similar to those in the bacterial reaction center. Due to the presence of chlorophyll a, as opposed to bacteriochlorophyll, Photosystem II absorbs light at a shorter wavelength. The pair of chlorophyll molecules at the reaction center are often referred to as P680.[1] When the photon has been absorbed, the resulting high-energy electron is transferred to a nearby pheophytin molecule. This is above and to the right of the pair on the diagram and is coloured grey. The electron travels from the pheophytin molecule through two plastoquinone molecules, the first tightly bound, the second loosely bound. The tightly bound molecule is shown above the pheophytin molecule and is colored red. The loosely bound molecule is to the left of this and is also colored red. This flow of electrons is similar to that of the bacterial reaction center. Two electrons are required to fully reduce the loosely bound plastoquinone molecule to QH2 as well as the uptake of two protons.
The difference between Photosystem II and the bacterial reaction center is the source of the electron that neutralizes the pair of chlorophyll a molecules. In the bacterial reaction center, the electron is obtained from a reduced compound haem group in a cytochrome subunit or from a water-soluble cytochrome-c protein.
Every time the P680 absorbs a photon, it gives off an electron to pheophytin, gaining a positive charge. After this photoinduced charge separation, P680+ is a very strong oxidant of high energy. It passes its energy to water molecules that are bound at the manganese center directly below the pair and extracts an electron from them. This center, below and to the left of the pair in the diagram, contains four manganese ions, a calcium ion, a chloride ion, and a tyrosine residue. Manganese is adept at these reactions because it is capable of existing in four oxidation states: Mn2+, Mn3+, Mn4+ and Mn5+. Manganese also forms strong bonds with oxygen-containing molecules such as water. The process of oxidizing two molecules of water to form an oxygen molecule requires four electrons. The water molecules that are oxidized in the manganese center are the source of the electrons that reduce the two molecules of Q to QH2. To date, this water splitting catalytic center has not been reproduced by any man-made catalyst.
Photosystem I
Nachdem das Elektron das Photosystem II verlassen hat, wird es auf einen Cytochrom-b6f-Komplex und anschließend auf Plastocyanin , ein blaues Kupferprotein und Elektronenträger, übertragen. Der Plastocyanin-Komplex trägt das Elektron, das das Elektronenpaar im nächsten Reaktionszentrum, dem Photosystem I , neutralisiert .
Wie bei Photosystem II und dem bakteriellen Reaktionszentrum initiiert ein Paar Chlorophyll- a- Moleküle die photoinduzierte Ladungstrennung. Dieses Paar wird als P700 bezeichnet, wobei 700 auf die Wellenlänge verweist, bei der die Chlorophyllmoleküle Licht maximal absorbieren. P700 befindet sich im Zentrum des Proteins. Sobald die photoinduzierte Ladungstrennung eingeleitet ist, wandert das Elektron über ein direkt über P700 liegendes Chlorophyll-α-Molekül, über ein direkt darüber liegendes Chinonmolekül, durch drei 4Fe-4S-Cluster und schließlich zu einem austauschbaren Ferredoxin-Komplex. [ 10 ] Ferredoxin ist ein lösliches Protein mit einem 2Fe-2S-Cluster, der von vier Cysteinresten koordiniert wird. Die positive Ladung des energiereichen P700<sup> +</sup> wird durch die Übertragung eines Elektrons von Plastocyanin neutralisiert , das dabei Energie aufnimmt, die schließlich zur Umwandlung von QH<sub> 2 </sub> zurück in Q genutzt wird. Die von Photosystem I katalysierte Gesamtreaktion lautet somit:
- Pc(Cu + ) + Fd [ox] + hν → Pc(Cu 2+ ) + Fd [rot]
Die Kooperation zwischen den Photosystemen I und II erzeugt einen Elektronen- und Protonenfluss von H₂O zu NADP⁺ , wodurch NADPH entsteht, das für die Glucosesynthese benötigt wird. Dieser Stoffwechselweg wird als „ Z-Schema “ bezeichnet, da das Redoxdiagramm von H₂O zu NADP⁺ über P680 und P700 dem Buchstaben Z ähnelt. [ 11 ]
Siehe auch
- Sauerstoff in biologischen Reaktionen (Sauerstoff in biologischen Prozessen)
- Lichtsammelkomplex
- Photosynthese
- Fotosystem
- Phycobilisom
- Familie der photosynthetischen Reaktionszentrumsproteine
Referenzen
- ^ a b c Berg JM, Tymoczko JL, Stryer L (2002). „Kapitel 19: Die Lichtreaktionen der Photosynthese“ . Biochemie (5. Aufl.). New York: WH Freeman.
- ^ Sadekar, S.; Raymond, J.; Blankenship, R. E. (November 2006). „Konservierung entfernt verwandter Membranproteine: Photosynthetische Reaktionszentren teilen einen gemeinsamen Strukturkern“ . Molecular Biology and Evolution . 23 (11): 2001–7 . doi : 10.1093/molbev/msl079 . PMID 16887904 .
- ^ a b c Orf GS, Gisriel C, Redding KE (Oktober 2018). „Evolution von photosynthetischen Reaktionszentren: Erkenntnisse aus der Struktur des heliobakteriellen Reaktionszentrums“. Photosynthesis Research . 138 (1): 11–37 . Bibcode : 2018PhoRe.138...11O . doi : 10.1007/ s11120-018-0503-2 . OSTI 1494566. PMID 29603081. S2CID 4473759 .
- ^ Deisenhofer J, Epp O, Miki K, Huber R, Michel H (Dezember 1984). „Röntgenstrukturanalyse eines Membranproteinkomplexes. Elektronendichtekarte mit einer Auflösung von 3 Å und ein Modell der Chromophore des photosynthetischen Reaktionszentrums von Rhodopseudomonas viridis“. Journal of Molecular Biology . 180 (2): 385–98 . doi : 10.1016/S0022-2836(84)80011-X . PMID 6392571 .
- ^ „Der Nobelpreis für Chemie 1988“ . NobelPrize.org .
- ^ Photosynthetische Reaktionszentren von Purpurbakterien. Archiviert am 14. Mai 2006 im Internet Archive ( Wayback Machine , 2. Februar 1999). Abgerufen am 28. Februar 2010.
- ^ Govindjee R (2000). „Kapitel 1: Meilensteine der Photosynthese“ . In: Yunus M, Pathre U, Mohanty P (Hrsg.). Photosynthese erforschen: Mechanismen, Regulation und Anpassung . London: Taylor & Francis. ISBN 978-0-7484-0821-4Die
- ^ Kaiser GE (24. Februar 2003). „Sauerstoffhaltige Photosynthese: Bakterienwachstum und mikrobieller Stoffwechsel“ . Archiviert vom Original am 4. Mai 2006.
- ^ „Der Chloroplast“ . Ultranet Biology . Archiviert vom Original am 3. August 2003.
- ^ Jagannathan B, Golbeck J (2009). „Photosynthese: mikrobiell“. In: Schaechter M (Hrsg.). Enzyklopädie der Mikrobiologie (3. Aufl.). S. 325–341 . doi : 10.1016/B978-012373944-5.00352-7 . ISBN 978-0-12-373944-5Die
- ^ Govindjee R. „Das Z-Schema-Diagramm der Photosynthese“ . Universität von Illinois in Urbana-Champaign.
Externe Links
- Orr L, Govindjee R ( 2013). „Webressourcen zur Photosynthese“ . Photosynthesis Research . 115 ( 2–3 ). University of Illinois at Urbana-Champaign: 179–214 . Bibcode : 2013PhoRe.115..179O . doi : 10.1007/s11120-013-9840-3 . PMID 23708976. S2CID 254943144 .