|
|---|
Ein Restriktionsenzym ( auch Restriktionsendonuklease , REase , ENase oder Restriktionase genannt) ist ein Enzym , das DNA an oder in der Nähe spezifischer Erkennungsstellen, den sogenannten Restriktionsstellen, in Fragmente spaltet . [ 1 ] [ 2 ] [ 3 ] Restriktionsenzyme sind eine Klasse der umfassenderen Gruppe der Endonukleasen . Sie werden üblicherweise in fünf Typen eingeteilt, die sich in ihrer Struktur und darin unterscheiden, ob sie ihr DNA- Substrat an der Erkennungsstelle schneiden oder ob Erkennungs- und Spaltstelle voneinander getrennt sind. Alle Restriktionsenzyme führen zum Schneiden der DNA zwei Einschnitte durch, jeweils einen durch jeden Zucker-Phosphat-Strang der DNA-Doppelhelix .
Diese Enzyme kommen in Bakterien und Archaeen vor und bilden einen Abwehrmechanismus gegen eindringende Viren . [ 4 ] [ 5 ] In einem Prokaryoten schneiden Restriktionsenzyme selektiv fremde DNA in einem Prozess, der als Restriktionsverdau bezeichnet wird ; gleichzeitig wird die Wirts-DNA durch ein Modifikationsenzym (eine Methyltransferase ) geschützt, das die prokaryotische DNA modifiziert und so die Spaltung verhindert. Zusammen bilden diese beiden Prozesse das Restriktions-Modifikationssystem . [ 6 ]
Es sind mehr als 3.600 Restriktionsendonukleasen bekannt, die über 250 verschiedene Spezifitäten aufweisen. [ 7 ] Über 3.000 davon wurden detailliert untersucht, und mehr als 800 sind kommerziell erhältlich. [ 8 ] Diese Enzyme werden routinemäßig zur DNA-Modifikation in Laboren eingesetzt und sind ein unverzichtbares Werkzeug beim molekularen Klonen . [ 9 ] [ 10 ] [ 11 ]
Geschichte

Der Begriff Restriktionsenzym stammt aus der Erforschung des Phagen λ , eines Bakterien infizierenden Virus , und des Phänomens der wirtsspezifischen Restriktion und Modifikation solcher bakterieller Phagen oder Bakteriophagen . [ 12 ] Dieses Phänomen wurde erstmals in den frühen 1950er Jahren in den Laboren von Salvador Luria , Jean Weigle und Giuseppe Bertani beschrieben. [ 13 ] [ 14 ] Es zeigte sich, dass die Ausbeute eines Bakteriophagen λ, der in einem Stamm von Escherichia coli , beispielsweise E. coli C, gut wächst, in einem anderen Stamm, beispielsweise E. coli K, um bis zu drei bis fünf Größenordnungen sinken kann. Die Wirtszelle, in diesem Beispiel E. coli K, wird als restriktiver Wirt bezeichnet und scheint die Fähigkeit zu besitzen, die biologische Aktivität des Phagen λ zu reduzieren. Etabliert sich ein Phage in einem Stamm, wird sein Wachstum auch in anderen Stämmen eingeschränkt. In den 1960er Jahren wurde in den Laboren von Werner Arber und Matthew Meselson gezeigt , dass die Restriktion durch eine enzymatische Spaltung der Phagen-DNA verursacht wird, und das beteiligte Enzym wurde daher als Restriktionsenzym bezeichnet. [ 4 ] [ 15 ] [ 16 ] [ 17 ]
Die von Arber und Meselson untersuchten Restriktionsenzyme waren Typ-I-Restriktionsenzyme, die DNA zufällig abseits der Erkennungssequenz spalten . [ 7 ] 1970 isolierten und charakterisierten Hamilton O. Smith , Thomas Kelly und Kent Wilcox das erste Typ-II-Restriktionsenzym , HindII, aus dem Bakterium Haemophilus influenzae . [ 18 ] [ 19 ] Restriktionsenzyme dieses Typs sind für Laborarbeiten besser geeignet, da sie DNA an der Stelle ihrer Erkennungssequenz spalten und am häufigsten als molekularbiologisches Werkzeug eingesetzt werden. [ 20 ] Später zeigten Daniel Nathans und Kathleen Danna, dass die Spaltung von SV40 -DNA durch Restriktionsenzyme spezifische Fragmente ergibt, die mittels Polyacrylamid-Gelelektrophorese getrennt werden können . Dies belegt, dass Restriktionsenzyme auch zur DNA-Kartierung verwendet werden können. [ 21 ] Für ihre Arbeiten zur Entdeckung und Charakterisierung von Restriktionsenzymen wurde Werner Arber , Daniel Nathans und Hamilton O. Smith 1978 der Nobelpreis für Physiologie oder Medizin verliehen . [ 22 ] Die Entdeckung von Restriktionsenzymen ermöglicht die Manipulation von DNA und führte zur Entwicklung der rekombinanten DNA -Technologie mit vielfältigen Anwendungsmöglichkeiten, beispielsweise zur großtechnischen Herstellung von Proteinen wie dem von Diabetikern verwendeten Humaninsulin . [ 13 ] [ 23 ]
Ursprünge
Restriktionsenzyme entwickelten sich wahrscheinlich aus einem gemeinsamen Vorfahren und verbreiteten sich durch horizontalen Gentransfer . [ 24 ] [ 25 ] Zudem mehren sich die Hinweise darauf, dass Restriktionsendonukleasen sich als egoistisches genetisches Element entwickelten. [ 26 ]
Anerkennungsstätte

Restriktionsenzyme erkennen eine spezifische Nukleotidsequenz [ 2 ] und erzeugen einen Doppelstrangbruch in der DNA. Die Erkennungssequenzen lassen sich auch anhand der Anzahl der Basen in ihrer Erkennungssequenz klassifizieren, üblicherweise zwischen 4 und 8 Basen. Die Anzahl der Basen in der Sequenz bestimmt, wie häufig die Erkennungssequenz zufällig in einem Genom vorkommt. Beispielsweise würde eine Sequenz aus 4 Basenpaaren theoretisch alle 4⁴ bp (256 Basenpaare) auftreten, eine Sequenz aus 6 Basen alle 4⁶ bp (4.096 Basenpaare) und eine Sequenz aus 8 Basen alle 4⁸ bp (65.536 Basenpaare). [ 27 ] Viele dieser Sequenzen sind palindromisch , d. h. die Basensequenz ist vorwärts und rückwärts gelesen identisch. [ 28 ] Theoretisch sind zwei Arten von palindromischen Sequenzen in der DNA möglich. Das spiegelbildliche Palindrom ähnelt den in gewöhnlichen Texten vorkommenden Sequenzen, bei denen eine Sequenz auf einem einzelnen DNA-Strang vorwärts und rückwärts gleich ist, wie beispielsweise GTAATG. Das invertierte Wiederholungspalindrom ist ebenfalls eine Sequenz, die vorwärts und rückwärts gleich ist, jedoch befinden sich die Vorwärts- und Rückwärtssequenzen auf komplementären DNA-Strängen (d. h. doppelsträngiger DNA), wie beispielsweise GTATAC (GTATAC ist komplementär zu CATATG). [ 29 ] Invertierte Wiederholungspalindrome sind häufiger und von größerer biologischer Bedeutung als spiegelbildliche Palindrome.
Die EcoRI- Verdauung erzeugt "klebrige" Enden .

im Gegensatz dazu erzeugt die Spaltung durch das Restriktionsenzym SmaI „stumpfe“ Enden :
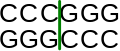
Die Erkennungssequenzen in der DNA unterscheiden sich für jedes Restriktionsenzym, was zu Unterschieden in der Länge, Sequenz und Strangorientierung ( 5'-Ende oder 3'-Ende ) eines klebrigen Endes („Überhang“) der Enzymrestriktion führt. [ 30 ]
Verschiedene Restriktionsenzyme, die dieselbe Sequenz erkennen, werden als Isoschizomere bezeichnet . Verschiedene Enzyme, die dieselbe Stelle erkennen, aber an einer anderen Position schneiden, werden als Neoschizomere bezeichnet . [ 31 ]
Typen
Natürlich vorkommende Restriktionsendonukleasen werden anhand ihrer Zusammensetzung und ihres Bedarfs an Enzym-Cofaktoren , der Art ihrer Zielsequenz und der Position ihrer DNA-Spaltstelle relativ zur Zielsequenz in fünf Gruppen (Typ I, II, III, IV und V) eingeteilt. [ 32 ] [ 33 ] [ 34 ] DNA-Sequenzanalysen von Restriktionsenzymen zeigen jedoch große Variationen, was darauf hindeutet, dass es mehr als vier Typen gibt. [ 35 ] Alle Enzymtypen erkennen spezifische kurze DNA-Sequenzen und führen die endonukleolytische Spaltung der DNA durch, wodurch spezifische Fragmente mit terminalen 5'-Phosphaten entstehen. Sie unterscheiden sich in ihrer Erkennungssequenz, ihrer Untereinheitenzusammensetzung, ihrer Spaltposition und ihrem Bedarf an Cofaktoren, [ 36 ] [ 37 ] wie nachfolgend zusammengefasst:
- Enzyme vom Typ I ( EC 3.1.21.3 ) spalten an Stellen, die von einer Erkennungsstelle entfernt liegen; benötigen sowohl ATP als auch S-Adenosyl-L-Methionin für ihre Funktion; multifunktionelles Protein mit Restriktionsverdau- und Methylase-Aktivität ( EC 2.1.1.72 ).
- Typ-II-Enzyme ( EC 3.1.21.4 ) spalten innerhalb oder in kurzen spezifischen Abständen von einer Erkennungsstelle; die meisten benötigen Magnesium ; Einzelfunktionsenzyme (Restriktionsverdau) unabhängig von Methylasen.
- Enzyme vom Typ III ( EC 3.1.21.5 ) spalten an Stellen, die sich in kurzem Abstand von einer Erkennungsstelle befinden; benötigen ATP (hydrolysieren es aber nicht); S-Adenosyl-L-Methionin stimuliert die Reaktion, ist aber nicht erforderlich; existieren als Teil eines Komplexes mit einer Modifikationsmethylase ( EC 2.1.1.72 ).
- Enzyme des Typs IV zielen auf modifizierte DNA ab, z. B. methylierte, hydroxymethylierte und Glucosyl-hydroxymethylierte DNA.
- Enzyme vom Typ V nutzen Leit-RNAs (gRNAs).
Typ l
Restriktionsenzyme vom Typ I wurden als erste identifiziert und zwar in zwei verschiedenen Stämmen (K-12 und B) von E. coli . [ 38 ] Diese Enzyme schneiden an einer Stelle, die sich von ihrer Erkennungssequenz unterscheidet und in zufälliger Entfernung (mindestens 1000 bp) liegt. Die Spaltung an diesen zufälligen Stellen erfolgt im Rahmen einer DNA-Translokation, was zeigt, dass diese Enzyme auch als molekulare Motoren fungieren. Die Erkennungssequenz ist asymmetrisch und besteht aus zwei spezifischen Abschnitten – einem mit 3–4 Nukleotiden und einem mit 4–5 Nukleotiden –, die durch einen unspezifischen Spacer von etwa 6–8 Nukleotiden getrennt sind. Diese Enzyme sind multifunktionell und können je nach Methylierungsstatus der Ziel-DNA sowohl Restriktionsverdau als auch Modifikationen durchführen. Die Cofaktoren S -Adenosylmethionin (AdoMet), hydrolysiertes Adenosintriphosphat ( ATP ) und Magnesiumionen (Mg²⁺ ) sind für ihre volle Aktivität erforderlich. Restriktionsenzyme vom Typ I bestehen aus drei Untereinheiten, HsdR, HsdM und HsdS. HsdR ist für den Restriktionsverdau erforderlich; HsdM ist für die Anlagerung von Methylgruppen an die Wirts-DNA (Methyltransferase-Aktivität) notwendig , und HsdS ist neben der Restriktionsverdauung (DNA-Spaltung) und der Modifikationsaktivität (DNA-Methyltransferase-Aktivität) wichtig für die Spezifität der Erkennungsstelle (DNA-Bindungsstelle). [ 32 ] [ 38 ]
Typ II
Typische Restriktionsenzyme vom Typ II unterscheiden sich in mehreren Punkten von Restriktionsenzymen vom Typ I. Sie bilden Homodimere mit Erkennungssequenzen, die üblicherweise ungeteilt, palindromisch und 4–8 Nukleotide lang sind. Sie erkennen und spalten DNA an derselben Stelle und benötigen für ihre Aktivität weder ATP noch AdoMet – in der Regel genügt Mg²⁺ als Cofaktor. [ 28 ] Diese Enzyme spalten die Phosphodiesterbindung der DNA-Doppelhelix. Die Spaltung kann entweder in der Mitte beider Stränge erfolgen und ein glattes Ende erzeugen oder versetzt, wodurch Überhänge, sogenannte klebrige Enden, entstehen. [ 40 ] Dies sind die am häufigsten verfügbaren und verwendeten Restriktionsenzyme. In den 1990er und frühen 2000er Jahren wurden neue Enzyme dieser Familie entdeckt, die nicht alle klassischen Kriterien dieser Enzymklasse erfüllten. Daraufhin wurde eine neue Subfamiliennomenklatur entwickelt , um diese große Familie anhand von Abweichungen von den typischen Eigenschaften von Typ-II-Enzymen in Unterkategorien zu unterteilen. [ 28 ] Diese Untergruppen werden durch einen Buchstabensuffix definiert.
Restriktionsenzyme vom Typ IIB (z. B. BcgI und BplI) sind Multimere und bestehen aus mehreren Untereinheiten. [ 28 ] Sie spalten die DNA beidseitig ihrer Erkennungssequenz, um diese herauszuschneiden. Sie benötigen die Cofaktoren AdoMet und Mg²⁺ . Restriktionsendonukleasen vom Typ IIE (z. B. NaeI) spalten die DNA nach Interaktion mit zwei Kopien ihrer Erkennungssequenz. [ 28 ] Eine Erkennungssequenz dient als Zielsequenz, während die andere als allosterischer Effektor die Spaltung beschleunigt oder effizienter gestaltet. Ähnlich wie Enzyme vom Typ IIE interagieren Restriktionsendonukleasen vom Typ IIF (z. B. NgoMIV) mit zwei Kopien ihrer Erkennungssequenz, spalten aber beide Sequenzen gleichzeitig. [ 28 ] Restriktionsendonukleasen vom Typ IIG (z. B. RM.Eco57I) besitzen wie klassische Restriktionsenzyme vom Typ II zwar nur eine Untereinheit, benötigen aber den Cofaktor AdoMet für ihre Aktivität. [ 28 ] Restriktionsendonukleasen vom Typ IIM, wie z. B. DpnI , können methylierte DNA erkennen und schneiden. [ 28 ] [ 41 ] [ 42 ] Restriktionsendonukleasen vom Typ IIS (z. B. FokI) spalten DNA in einem definierten Abstand von ihren nicht-palindromischen, asymmetrischen Erkennungssequenzen; [ 28 ] diese Eigenschaft wird häufig für In-vitro-Klonierungstechniken wie das Golden-Gate-Klonieren genutzt . Diese Enzyme können als Dimere fungieren . Auch Restriktionsenzyme vom Typ IIT (z. B. Bpu10I und BslI) bestehen aus zwei verschiedenen Untereinheiten. Einige erkennen palindromische Sequenzen, während andere asymmetrische Erkennungssequenzen besitzen. [ 28 ]
Typ III
Restriktionsenzyme vom Typ III (z. B. EcoP15) erkennen zwei separate, nicht-palindromische Sequenzen, die invers orientiert sind. Sie schneiden die DNA etwa 20–30 Basenpaare nach der Erkennungssequenz. [ 43 ] Diese Enzyme bestehen aus mehreren Untereinheiten und benötigen die Cofaktoren AdoMet und ATP für ihre Funktionen bei der DNA-Methylierung bzw. dem Restriktionsverdau . [ 44 ] Sie sind Bestandteile prokaryotischer DNA-Restriktions-Modifikationsmechanismen , die den Organismus vor eindringender fremder DNA schützen. Typ-III-Enzyme sind hetero-oligomere, multifunktionelle Proteine, die aus zwei Untereinheiten, Res ( P08764 ) und Mod ( P08763 ), bestehen. Die Mod-Untereinheit erkennt die für das System spezifische DNA-Sequenz und ist eine Modifikationsmethyltransferase ; als solche ist sie funktionell äquivalent zu den M- und S-Untereinheiten der Typ-I-Restriktionsendonuklease. Res ist für den Restriktionsverdau erforderlich, besitzt aber selbst keine enzymatische Aktivität. Typ-III-Enzyme erkennen kurze, 5–6 bp lange, asymmetrische DNA-Sequenzen und spalten diese 25–27 bp stromabwärts , wodurch kurze, einzelsträngige 5'-Überhänge entstehen. Für die Restriktionsverdauung benötigen sie zwei invers orientierte, unmethylierte Erkennungssequenzen. Diese Enzyme methylieren nur einen DNA-Strang an der N-6-Position der Adeninreste, sodass neu replizierte DNA nur einen methylierten Strang aufweist, was zum Schutz vor Restriktionsverdauung ausreicht. Typ-III-Enzyme gehören zur β-Unterfamilie der N6-Adenin-Methyltransferasen und enthalten die neun für diese Familie charakteristischen Motive , darunter Motiv I, die AdoMet- Bindungstasche (FXGXG), und Motiv IV, die katalytische Region (S/D/N (PP) Y/F). [ 36 ] [ 45 ]
Typ IV
Typ-IV-Enzyme erkennen modifizierte, typischerweise methylierte DNA und werden beispielsweise durch die McrBC- und Mrr-Systeme von E. coli repräsentiert . [ 35 ]
Typ V
Restriktionsenzyme vom Typ V (z. B. der Cas9 -gRNA-Komplex aus CRISPR [ 46 ] ) nutzen Leit-RNAs , um spezifische, nicht-palindromische Sequenzen auf eindringenden Organismen zu erkennen. Sie können DNA variabler Länge schneiden, sofern eine geeignete Leit-RNA vorhanden ist. Die Flexibilität und einfache Anwendung dieser Enzyme machen sie vielversprechend für zukünftige Anwendungen in der Gentechnik . [ 46 ] [ 47 ]
Künstliche Restriktionsenzyme
Künstliche Restriktionsenzyme lassen sich durch Fusion einer natürlichen oder gentechnisch veränderten DNA-Bindungsdomäne mit einer Nukleasedomäne (häufig der Spaltungsdomäne des Typ-IIS-Restriktionsenzyms FokI ) erzeugen. [ 48 ] Solche künstlichen Restriktionsenzyme können große DNA-Abschnitte (bis zu 36 bp) erkennen und so konstruiert werden, dass sie an gewünschte DNA-Sequenzen binden. [ 49 ] Zinkfingernukleasen sind die am häufigsten verwendeten künstlichen Restriktionsenzyme und werden im Allgemeinen in gentechnischen Anwendungen eingesetzt, [ 50 ] [ 51 ] [ 52 ] [ 53 ] können aber auch für Standardanwendungen der Genklonierung verwendet werden . [ 54 ] Andere künstliche Restriktionsenzyme basieren auf der DNA-Bindungsdomäne von TAL-Effektoren . [ 55 ] [ 56 ]
Im Jahr 2013 wurde die neue Technologie CRISPR-Cas9 , basierend auf einem prokaryotischen viralen Abwehrsystem, zur Genomeditierung entwickelt und fand rasch Anwendung in Laboren. [ 57 ] Weitere Informationen finden Sie unter CRISPR (Clustered regular interspaced short palindromic repeats).
Im Jahr 2017 berichtete eine Gruppe der University of Illinois über die Verwendung eines aus Pyrococcus furiosus gewonnenen Argonaute -Proteins (PfAgo) zusammen mit einer Leit-DNA zur In-vitro -Editierung von DNA als künstliche Restriktionsenzyme. [ 58 ]
Es wurden auch künstliche Ribonukleasen entwickelt , die als Restriktionsenzyme für RNA fungieren. Ein PNA -basiertes System, PNAzym genannt, besitzt eine Cu(II) -2,9-Dimethylphenanthrolin- Gruppe, die Ribonukleasen für spezifische RNA-Sequenzen nachahmt und an einer nicht-basengepaarten Region (RNA-Ausbuchtung) der Ziel-RNA spaltet, die sich bei der Bindung des Enzyms an die RNA bildet. Dieses Enzym zeigt Selektivität, indem es nur an einer Stelle spaltet, die entweder keine Fehlpaarung aufweist oder kinetisch von zwei möglichen Spaltstellen bevorzugt ist. [ 59 ]
Nomenklatur
| Herleitung des Namens EcoRI | ||
|---|---|---|
| Abkürzung | Bedeutung | Beschreibung |
| E | Escherichia | Gattung |
| co | coli | spezifische Arten |
| R | RY13 | Beanspruchung |
| ICH | Zuerst identifiziert | Reihenfolge der Identifizierung im Bakterium |
Seit ihrer Entdeckung in den 1970er Jahren wurden zahlreiche Restriktionsenzyme identifiziert; so wurden beispielsweise mehr als 3500 verschiedene Restriktionsenzyme vom Typ II charakterisiert. [ 60 ] Jedes Enzym wird nach dem Bakterium benannt , aus dem es isoliert wurde. Die Benennung basiert auf Gattung , Art und Stamm des Bakteriums . [ 61 ] [ 62 ] Der Name des Restriktionsenzyms EcoRI leitet sich beispielsweise wie im Kasten dargestellt ab.
Anwendungen
Isolierte Restriktionsenzyme werden zur Manipulation von DNA für verschiedene wissenschaftliche Anwendungen eingesetzt.
Sie dienen der Unterstützung des Einfügens von Genen in Plasmidvektoren bei Genklonierungs- und Proteinproduktionsexperimenten . Für eine optimale Nutzung werden die üblicherweise für die Genklonierung verwendeten Plasmide so modifiziert, dass sie eine kurze Polylinkersequenz (die sogenannte multiple Klonierungsstelle , MCS) mit vielen Restriktionserkennungssequenzen enthalten . Dies ermöglicht Flexibilität beim Einfügen von Genfragmenten in den Plasmidvektor. Die natürlich in Genen vorhandenen Restriktionsstellen beeinflussen die Wahl der Endonuklease für den DNA-Verdau, da beim gezielten Schneiden der DNA-Enden eine Restriktion der gewünschten DNA vermieden werden muss. Um ein Genfragment in einen Vektor zu klonieren, werden sowohl die Plasmid-DNA als auch das Geninsert typischerweise mit denselben Restriktionsenzymen geschnitten und anschließend mithilfe einer DNA-Ligase miteinander verbunden . [ 63 ] [ 64 ]
Restriktionsenzyme können auch zur Unterscheidung von Genallelen eingesetzt werden, indem sie spezifisch Einzelbasenveränderungen in der DNA, sogenannte Einzelnukleotid-Polymorphismen (SNPs), erkennen. [ 65 ] [ 66 ] Dies ist jedoch nur möglich, wenn ein SNP die Restriktionsstelle im Allel verändert. Mit dieser Methode kann das Restriktionsenzym zur Genotypisierung einer DNA-Probe verwendet werden, ohne dass eine aufwendige Gensequenzierung erforderlich ist . Die Probe wird zunächst mit dem Restriktionsenzym verdaut, um DNA-Fragmente zu erzeugen. Anschließend werden die unterschiedlich großen Fragmente mittels Gelelektrophorese getrennt . Im Allgemeinen erzeugen Allele mit korrekten Restriktionsstellen zwei sichtbare DNA-Banden im Gel, während Allele mit veränderten Restriktionsstellen nicht geschnitten werden und nur eine einzige Bande erzeugen. Durch Restriktionsverdau kann auch eine DNA-Karte erstellt werden, die die relative Position der Gene angibt . [ 67 ] Die durch Restriktionsverdau erzeugten DNA-Fragmente unterschiedlicher Länge ergeben nach der Gelelektrophorese ein spezifisches Bandenmuster und können für den genetischen Fingerabdruck verwendet werden .
In ähnlicher Weise werden Restriktionsenzyme verwendet, um genomische DNA für die Genanalyse mittels Southern Blot zu verdauen . Diese Technik ermöglicht es Forschern, die Anzahl der Kopien (oder Paraloge ) eines Gens im Genom eines Individuums oder die Anzahl der Genmutationen ( Polymorphismen ) innerhalb einer Population zu bestimmen. Letzteres wird als Restriktionsfragmentlängenpolymorphismus (RFLP) bezeichnet. [ 68 ]
Künstliche Restriktionsenzyme, die durch Verknüpfung der FokI-DNA-Spaltungsdomäne mit einer Reihe von DNA-bindenden Proteinen oder Zinkfinger-Arrays entstehen und als Zinkfinger-Nukleasen (ZFN) bezeichnet werden, sind aufgrund ihrer erhöhten Sequenzspezifität ein leistungsstarkes Werkzeug für die Genomeditierung. ZFN arbeiten paarweise, wobei ihre Dimerisierung in situ durch die FokI-Domäne vermittelt wird. Jedes Zinkfinger-Array ( ZFA ) kann 9–12 Basenpaare erkennen, sodass das Paar insgesamt 18–24 Basenpaare umfasst. Ein 5–7 bp langer Spacer zwischen den Spaltstellen erhöht die Spezifität der ZFN zusätzlich und macht sie zu einem sicheren und präzisen Werkzeug, das auch beim Menschen angewendet werden kann. Kürzlich wurde eine klinische Phase-I-Studie mit ZFN zur gezielten Ausschaltung des CCR5-Korezeptors für HIV-1 durchgeführt. [ 69 ]
Andere schlugen vor, das bakterielle RM-System als Modell für die Entwicklung antiviraler Gen- oder Genomimpfstoffe und Therapien beim Menschen zu nutzen, da das RM-System in Bakterien eine angeborene Abwehrfunktion erfüllt, indem es den Tropismus von Bakteriophagen einschränkt . [ 70 ] Es gibt Forschungen zu Restriktionsenzymen (REasen) und Zinkfingerproteinen (ZFN), die die DNA verschiedener humaner Viren, darunter HSV-2 , Hochrisiko- HPV und HIV-1, spalten können, mit dem Ziel, gezielte Mutationen und Aberrationen humanpathogener Viren hervorzurufen. [ 71 ] [ 72 ] [ 73 ] Das menschliche Genom enthält bereits Überreste von inaktivierten Retrovirusgenomen , die für den eigenen Vorteil genutzt wurden. Tatsächlich scheinen die Mechanismen zur Stilllegung aktiver L1-Genom-Retroelemente durch die Three-Prime-Reparatur-Exonuklease 1 ( TREX1 ) und das Exzisionsreparatur-Kreuzkomplementierungsprotein 1 (ERCC) die Wirkung von RM-Systemen in Bakterien sowie die nicht-homologe Endverknüpfung (NHEJ) nachzuahmen , die auf die Verwendung von ZFN ohne Reparaturvorlage folgt. [ 74 ] [ 75 ]
Beispiele
Beispiele für Restriktionsenzyme sind: [ 76 ]
| Enzym | Quelle | Erkennungssequenz | Schneiden |
|---|---|---|---|
| EcoRI | Escherichia coli | 5'GAATTC 3'CTTAAG | 5'---G AATTC---3' 3'---CTTAA G---5' |
| EcoRII | Escherichia coli | 5'CCWGG 3'GGWCC | 5'--- CCWGG---3' 3'---GGWCC ---5' |
| BamHI | Bacillus amyloliquefaciens | 5'GGATCC 3'CCTAGG | 5'---G GATCC---3' 3'---CCTAG G---5' |
| HindIII | Haemophilus influenzae | 5'AAGCTT 3'TTCGAA | 5'---A AGCTT---3' 3'---TTCGA A---5' |
| TaqI | Thermus aquaticus | 5'TCGA 3'AGCT | 5'---T CGA---3' 3'---AGC T---5' |
| NotI | Nocardia otitidis | 5'GCGGCCGC 3'CGCCGGCG | 5'---GC GGCCGC---3' 3'---CGCCGG CG---5' |
| HinFI | Haemophilus influenzae | 5'GANTC 3'CTNAG | 5'---G ANTC---3' 3'---CTNA G---5' |
| Sau3AI | Staphylococcus aureus | 5'GATC 3'CTAG | 5'--- GATC---3' 3'---CTAG ---5' |
| PvuII* | Proteus vulgaris | 5'CAGCTG 3'GTCGAC | 5'---CAG CTG---3' 3'---GTC GAC---5' |
| Klein* | Serratia marcescens | 5'CCCGGG 3'GGGCCC | 5'---CCC GGG---3' 3'---GGG CCC---5' |
| HaeIII* | Haemophilus aegyptius | 5'GGCC 3'CCGG | 5'---GG CC---3' 3'---CC GG---5' |
| HgaI [ 77 ] | Haemophilus gallinarum | 5'GACGC 3'CTGCG | 5'---NN NN---3' 3'---NN NN---5' |
| AluI* | Arthrobacter luteus | 5'AGCT 3'TCGA | 5'---AG CT---3' 3'---TC GA---5' |
| EcoRV* | Escherichia coli | 5'GATATC 3'CTATAG | 5'---GAT ATC---3' 3'---CTA TAG---5' |
| EcoP15I | Escherichia coli | 5'CAGCAGN 25 NN 3'GTCGTCN 25 NN | 5'---CAGCAGN 25 NN---3' 3'---GTCGTCN 25 NN ---5' |
| KpnI [ 78 ] | Klebsiella pneumoniae | 5'GGTACC 3'CCATGG | 5'---GGTAC C---3' 3'---C CATGG---5' |
| PstI [ 78 ] | Providencia stuartii | 5'CTGCAG 3'GACGTC | 5'---CTGCA G---3' 3'---G ACGTC---5' |
| SacI [ 78 ] | Streptomyces achromogenes | 5'GAGCTC 3'CTCGAG | 5'---GAGCT C---3' 3'---C TCGAG---5' |
| SalI [ 78 ] | Streptomyces albus | 5'GTCGAC 3'CAGCTG | 5'---G TCGAC---3' 3'---CAGCT G---5' |
| ScaI* [ 78 ] | Streptomyces caespitosus | 5'AGTACT 3'TCATGA | 5'---AGT ACT---3' 3'---TCA TGA---5' |
| SpeI | Sphaerotilus natans | 5'ACTAGT 3'TGATCA | 5'---A CTAGT---3' 3'---TGATC A---5' |
| SphI [ 78 ] | Streptomyces phaeochromogenes | 5'GCATGC 3'CGTACG | 5'---GCATG C---3' 3'---C GTACG---5' |
| StuI* [ 79 ] [ 80 ] | Streptomyces tubercidicus | 5'AGGCCT 3'TCCGGA | 5'---AGG CCT---3' 3'---TCC GGA---5' |
| XbaI [ 78 ] | Xanthomonas badrii | 5'TCTAGA 3'AGATCT | 5'---T CTAGA---3' 3'---AGATC T---5' |
Legende: * = stumpfe Enden N = C oder G oder T oder A W = A oder T
Siehe auch
- BglII – Ein Restriktionsenzym
- EcoRI – Ein Restriktionsenzym
- HindIII – Ein Restriktionsenzym
- Homing-Endonuklease
- Liste der Schnittstellen von Homing-Endonuklease
- Liste der Schnittstellen von Restriktionsenzymen
- Molekulargewichts-Größenmarker
- REBASE (Datenbank)
- Sternaktivität
Referenzen
- ^ Roberts RJ (November 1976). „Restriktionsendonukleasen“. CRC Critical Reviews in Biochemistry . 4 (2): 123–64 . doi : 10.3109/10409237609105456 . PMID 795607 .
- ^ a b Kessler C, Manta V (August 1990). „Spezifität von Restriktionsendonukleasen und DNA-Modifikationsmethyltransferasen – eine Übersicht (3. Auflage)“. Gene . 92 ( 1–2 ): 1–248 . doi : 10.1016/0378-1119(90)90486-B . PMID 2172084 .
- ^ Pingoud A, Alves J, Geiger R (1993). „Kapitel 8: Restriktionsenzyme“. In: Burrell M (Hrsg.). Enzyme der Molekularbiologie . Methoden der Molekularbiologie. Band 16. Totowa, NJ: Humana Press. S. 107–200 . ISBN 0-89603-234-5Die
- ^ a b Arber W, Linn S (1969). „DNA-Modifikation und -Restriktion“. Annual Review of Biochemistry . 38 : 467–500 . doi : 10.1146/annurev.bi.38.070169.002343 . PMID 4897066 .
- ^ Krüger DH, Bickle TA (September 1983). „Überleben von Bakteriophagen: Multiple Mechanismen zur Umgehung der DNA-Restriktionssysteme ihrer Wirte“ . Microbiological Reviews . 47 (3): 345–60 . doi : 10.1128/MMBR.47.3.345-360.1983 . PMC 281580. PMID 6314109 .
- ^ Kobayashi I (September 2001). „Verhalten von Restriktions-Modifikationssystemen als egoistische mobile Elemente und deren Einfluss auf die Genom-Evolution“ . Nucleic Acids Research . 29 (18): 3742–56 . doi : 10.1093 / nar/29.18.3742 . PMC 55917. PMID 11557807 .
- Roberts RJ (April 2005). „Wie Restriktionsenzyme zu den Arbeitspferden der Molekularbiologie wurden“ . Proceedings of the National Academy of Sciences of the United States of America . 102 ( 17): 5905–8 . Bibcode : 2005PNAS..102.5905R . doi : 10.1073 / pnas.0500923102 . PMC 1087929. PMID 15840723 .
- ^ Roberts RJ, Vincze T, Posfai J, Macelis D (Januar 2007). „REBASE – Enzyme und Gene für DNA-Restriktion und -Modifikation“ . Nucleic Acids Research . 35 (Datenbankausgabe): D269–70. doi : 10.1093/nar/gkl891 . PMC 1899104. PMID 17202163 .
- ^ Primrose SB, Old RW (1994). Grundlagen der Genmanipulation: Eine Einführung in die Gentechnik . Oxford: Blackwell Scientific. ISBN 0-632-03712-1Die
- ^ Micklos DA, Bloom MV, Freyer GA (1996). Laboratory DNA science: an introduction to recombinant DNA techniques and methods of genome analysis . Menlo Park, Calif: Benjamin/Cummings Pub. Co. ISBN 0-8053-3040-2Die
- ^ Massey A, Kreuzer H (2001). Rekombinante DNA und Biotechnologie: Ein Leitfaden für Studierende . Washington, DC: ASM Press. ISBN 1-55581-176-0Die
- ^ Winnacker EL (1987). „Kapitel 2: Isolierung, Identifizierung und Charakterisierung von DNA-Fragmenten“ . Von Genen zu Klonen . VCH. ISBN 0-89573-614-4Die
- ^ a b Luria SE, Human ML (Oktober 1952). „Eine nicht- hereditäre , wirtinduzierte Variation von Bakterienviren“ . Journal of Bacteriology . 64 (4): 557–69 . doi : 10.1128/JB.64.4.557-569.1952 . PMC 169391. PMID 12999684 .
- ^ Bertani G, Weigle JJ (Februar 1953). „ Wirtsspezifische Variation bei Bakterienviren“ . Journal of Bacteriology . 65 (2): 113–21 . doi : 10.1128/JB.65.2.113-121.1953 . PMC 169650. PMID 13034700 .
- ^ Meselson M, Yuan R (März 1968). „DNA - Restriktionsenzym aus E. coli“. Nature . 217 (5134): 1110–4 . Bibcode : 1968Natur.217.1110M . doi : 10.1038/2171110a0 . PMID 4868368. S2CID 4172829 .
- ^ Dussoix D, Arber W (Juli 1962). „Wirtsspezifität der von Escherichia coli produzierten DNA. II. Kontrolle der Aufnahme von DNA des infizierenden Phagen Lambda“. Journal of Molecular Biology . 5 (1): 37–49 . doi : 10.1016/S0022-2836(62)80059-X . PMID 13888713 .
- ^ Lederberg S, Meselson M (Mai 1964). „Abbau nicht-replizierender Bakteriophagen-DNA in nicht-akzeptierenden Zellen“. Journal of Molecular Biology . 8 (5): 623–8 . doi : 10.1016/S0022-2836(64)80112-1 . PMID 14187389 .
- ^ Smith HO, Wilcox KW (Juli 1970). „Ein Restriktionsenzym aus Haemophilus influenzae. I. Reinigung und allgemeine Eigenschaften“. Journal of Molecular Biology . 51 (2): 379–91 . doi : 10.1016/0022-2836(70)90149-X . PMID 5312500 .
- ^ Kelly TJ, Smith HO (Juli 1970). „Ein Restriktionsenzym aus Haemophilus influenzae. II“. Journal of Molecular Biology . 51 (2): 393–409 . doi : 10.1016/0022-2836(70)90150-6 . PMID 5312501 .
- ^ Loenen WA, Dryden DT, Raleigh EA, Wilson GG, Murray NE (Januar 2014). „Highlights of the DNA cutters: a short history of the restriction enzymes“ . Nucleic Acids Research . 42 (1): 3–19 . doi : 10.1093 / nar/gkt990 . PMC 3874209. PMID 24141096 .
- Danna K, Nathans D (Dezember 1971). „Spezifische Spaltung der Simianvirus-40-DNA durch Restriktionsendonuklease von Haemophilus influenzae“ . Proceedings of the National Academy of Sciences of the United States of America . 68 (12): 2913–7 . Bibcode : 1971PNAS...68.2913D . doi : 10.1073 / pnas.68.12.2913 . PMC 389558. PMID 4332003 .
- ^ „Nobelpreis für Physiologie oder Medizin“ . Die Nobelstiftung. 1978. Abgerufen am 7. Juni 2008.
Für die Entdeckung von Restriktionsenzymen und deren Anwendung auf Probleme der Molekulargenetik
. - Villa-Komaroff L, Efstratiadis A, Broome S, Lomedico P, Tizard R, Naber SP, et al. (August 1978). „Ein bakterieller Klon, der Proinsulin synthetisiert“ . Proceedings of the National Academy of Sciences of the United States of America . 75 (8): 3727–3731 . Bibcode : 1978PNAS...75.3727V . doi : 10.1073 / pnas.75.8.3727 . PMC 392859. PMID 358198 .
- ^ Jeltsch A, Kröger M, Pingoud A (Juli 1995). „Hinweise auf eine evolutionäre Verwandtschaft zwischen Typ-II-Restriktionsendonukleasen“. Gene . 160 (1): 7–16 . doi : 10.1016/0378-1119(95)00181-5 . PMID 7628720 .
- ^ Jeltsch A, Pingoud A (Februar 1996). „Horizontaler Gentransfer trägt zur weiten Verbreitung und Evolution von Restriktions-Modifikationssystemen des Typs II bei“. Journal of Molecular Evolution . 42 (2): 91–96 . Bibcode : 1996JMolE..42...91J . doi : 10.1007/BF02198833 . PMID 8919860. S2CID 19989648 .
- ^ Naito T, Kusano K, Kobayashi I (Februar 1995). „Egoistisches Verhalten von Restriktions-Modifikationssystemen“. Science . 267 (5199): 897–9 . Bibcode : 1995Sci...267..897N . doi : 10.1126 / science.7846533 . PMID 7846533. S2CID 31128438 .
- ^ Cooper S (2003). „Restriction Map“ . bioweb.uwlax.edu . Universität von Wisconsin. Archiviert vom Original am 21. Oktober 2014. Abgerufen am 10. Mai 2021 .
- Pingoud A, Jeltsch A ( September 2001). „ Struktur und Funktion von Restriktionsendonukleasen des Typs II“ . Nucleic Acids Research . 29 ( 18 ): 3705–27 . doi : 10.1093 / nar /29.18.3705 . PMC 55916. PMID 11557805 .
- ^ Clark DP (2005). Molekularbiologie . Amsterdam: Elsevier Academic Press. ISBN 0-12-175551-7Die
- ^ Goodsell DS (2002). „Die molekulare Perspektive: Restriktionsendonukleasen“ ( PDF) . Stem Cells . 20 (2): 190–191 . doi : 10.1634/stemcells.20-2-190 . PMID 11897876. S2CID 222199041. Archiviert vom Original (PDF) am 21.09.2019 . Abgerufen am 21.09.2019 .
- ^ „Isoschizomere | NEB“ . www.neb.com . Abgerufen am 13.05.2025 .
- ^ a b Bickle TA, Krüger DH (Juni 1993). „ Biology of DNA restriction“ . Microbiological Reviews . 57 (2): 434–50 . doi : 10.1128/MMBR.57.2.434-450.1993 . PMC 372918. PMID 8336674 .
- ^ Boyer HW (1971). „DNA-Restriktions- und Modifikationsmechanismen in Bakterien“. Annual Review of Microbiology . 25 : 153–76 . doi : 10.1146/annurev.mi.25.100171.001101 . PMID 4949033 .
- ^ Yuan R (1981). „Struktur und Mechanismus multifunktioneller Restriktionsendonukleasen“. Annual Review of Biochemistry . 50 : 285–319 . doi : 10.1146/annurev.bi.50.070181.001441 . PMID 6267988 .
- ^ a b Arten von Restriktionsendonukleasen | NEB
- ^ a b Sistla S, Rao DN (2004). „S-Adenosyl-L-Methionin-abhängige Restriktionsenzyme“. Critical Reviews in Biochemistry and Molecular Biology . 39 (1): 1–19 . doi : 10.1080/10409230490440532 . PMID 15121719. S2CID 1929381 .
- ^ Williams RJ (März 2003). „Restriktionsendonukleasen: Klassifizierung, Eigenschaften und Anwendungen“. Molecular Biotechnology . 23 (3): 225–43 . doi : 10.1385/MB:23:3: 225 . PMID 12665693. S2CID 29672999 .
- ^ a b Murray NE (Juni 2000). „Typ-I-Restriktionssysteme: Hochentwickelte molekulare Maschinen (ein Vermächtnis von Bertani und Weigle)“ . Microbiology and Molecular Biology Reviews . 64 (2): 412–34 . doi : 10.1128 / MMBR.64.2.412-434.2000 . PMC 98998. PMID 10839821 .
- ^ PDB : 1qps Gigorescu A, Morvath M, Wilkosz PA, Chandrasekhar K, Rosenberg JM (2004). „Die Integration von Erkennung und Spaltung: Röntgenstrukturen des Prä-Übergangszustandskomplexes, des Post-Reaktionskomplexes und der DNA-freien Endonuklease“. In: Alfred M. Pingoud (Hrsg.). Restriktionsendonukleasen (Nucleic Acids and Molecular Biology, Band 14) . Berlin: Springer. S. 137–178 . ISBN 3-540-20502-0Die
- ^ Ninfa JP, Balou DP, Benore M (2010). Fundamentale Labormethoden für Biochemie und Biotechnologie . Hoboken, NJ: John Wiley & Sons. S. 341. ISBN 978-0-470-08766-4Die
- ^ Siwek W, Czapinska H, Bochtler M, Bujnicki JM, Skowronek K (August 2012). „Kristallstruktur und Wirkungsmechanismus der N6-Methyladenin-abhängigen Typ-IIM-Restriktionsendonuklease R.DpnI“ . Nucleic Acids Research . 40 (15): 7563–7572 . doi : 10.1093 / nar/gks428 . PMC 3424567. PMID 22610857 .
- ^ Mierzejewska K, Siwek W, Czapinska H, Kaus-Drobek M, Radlinska M, Skowronek K, et al. (Juli 2014). „Strukturelle Basis der Methylierungsspezifität von R.DpnI“ . Nukleinsäureforschung . 42 (13): 8745– 54. doi : 10.1093/nar/gku546 . PMC 4117772 . PMID 24966351 .
- ^ Dryden DT, Murray NE, Rao DN (September 2001). „Nucleoside triphosphate-dependent restriction enzymes“ . Nucleic Acids Research . 29 (18): 3728–41 . doi : 10.1093 / nar/29.18.3728 . PMC 55918. PMID 11557806 .
- Meisel A, Bickle TA, Krüger DH, Schroeder C (Januar 1992). „Restriktionsenzyme vom Typ III benötigen zwei invers orientierte Erkennungssequenzen für die DNA-Spaltung“. Nature . 355 ( 6359): 467–9 . Bibcode : 1992Natur.355..467M . doi : 10.1038/355467a0 . PMID 1734285. S2CID 4354056 .
- ^ Bourniquel AA, Bickle TA (November 2002). „Komplexe Restriktionsenzyme: NTP-getriebene molekulare Motoren“. Biochimie . 84 (11): 1047–59 . doi : 10.1016/S0300-9084(02)00020-2 . PMID 12595133 .
- ^ a b Barrangou R, Fremaux C, Deveau H, Richards M, Boyaval P, Moineau S, et al. (März 2007). „CRISPR provides acquired resistance against viruses in prokaryotes“. Science . 315 (5819): 1709– 12. Bibcode : 2007Sci...315.1709B . doi : 10.1126/science.1138140 . hdl : 20.500.11794/38902 . PMID 17379808 . S2CID 3888761 .
- ^ Horvath P, Barrangou R (Januar 2010). „CRISPR/Cas, das Immunsystem von Bakterien und Archaeen“. Science . 327 (5962): 167–70 . Bibcode : 2010Sci...327..167H . doi : 10.1126 / science.1179555 . PMID 20056882. S2CID 17960960 .
- ^ Kim YG, Cha J, Chandrasegaran S (Februar 1996). „Hybride Restriktionsenzyme: Zinkfingerfusionen an die FokI-Spaltungsdomäne“ . Proceedings of the National Academy of Sciences of the United States of America . 93 (3): 1156–60 . Bibcode : 1996PNAS...93.1156K . doi : 10.1073/pnas.93.3.1156 . PMC 40048. PMID 8577732 .
- ^ Urnov FD, Rebar EJ, Holmes MC, Zhang HS, Gregory PD (September 2010). „Genomeditierung mit gentechnisch veränderten Zinkfingernukleasen“. Nature Reviews Genetics . 11 (9): 636–46 . doi : 10.1038/nrg2842 . PMID 20717154. S2CID 205484701 .
- Townsend JA, Wright DA, Winfrey RJ, Fu F, Maeder ML, Joung JK, Voytas DF (Mai 2009). „ Hochfrequente Modifikation von Pflanzengenen mittels gentechnisch veränderter Zinkfinger-Nukleasen“ . Nature . 459 (7245): 442–5 . Bibcode : 2009Natur.459..442T . doi : 10.1038/nature07845 . PMC 2743854. PMID 19404258 .
- ^ Shukla VK, Doyon Y, Miller JC, DeKelver RC, Moehle EA, Worden SE, et al. (Mai 2009). „Präzise Genommodifikation in der Kulturpflanze Zea mays mittels Zinkfinger-Nukleasen“. Nature . 459 (7245): 437–441 . Bibcode : 2009Natur.459..437S . doi : 10.1038 / nature07992 . PMID 19404259. S2CID 4323298 .
- ^ Ekker SC (2008). „Zinkfingerbasierte Knockout-Punches für Zebrafischgene“ . Zebrafish . 5 ( 2): 121–123 . doi : 10.1089/zeb.2008.9988 . PMC 2849655. PMID 18554175 .
- Geurts AM, Cost GJ, Freyvert Y, Zeitler B, Miller JC, Choi VM et al. (Juli 2009). „Knockout-Ratten durch Embryo - Mikroinjektion von Zinkfinger-Nukleasen“ . Science . 325 (5939): 433. Bibcode : 2009Sci...325..433G . doi : 10.1126/science.1172447 . PMC 2831805. PMID 19628861 .
- ^ Tovkach A, Zeevi V, Tzfira T (Januar 2011). „Expression, Reinigung und Charakterisierung einer Zinkfinger-Nuklease in Klonierungsqualität“. Journal of Biotechnology . 151 (1): 1–8 . doi : 10.1016/j.jbiotec.2010.10.071 . PMID 21029755 .
- ^ Christian M, Cermak T, Doyle EL, Schmidt C, Zhang F, Hummel A, et al. (Oktober 2010). „ Targeting DNA double-strand breaks with TAL effector nucleases“ . Genetics . 186 (2): 757–61 . doi : 10.1534/genetics.110.120717 . PMC 2942870. PMID 20660643 .
- ^ Li T, Huang S, Jiang WZ, Wright D, Spalding MH, Weeks DP, Yang B (Januar 2011). „TAL-Nukleasen (TALNs): Hybridproteine aus TAL-Effektoren und der FokI-DNA-Spaltungsdomäne“ . Nucleic Acids Research . 39 (1): 359–72 . doi : 10.1093 / nar/gkq704 . PMC 3017587. PMID 20699274 .
- ^ Hsu PD, Lander ES, Zhang F (Juni 2014). „Entwicklung und Anwendungen von CRISPR-Cas9 für das Genome Engineering“ . Cell . 157 ( 6): 1262–78 . doi : 10.1016/j.cell.2014.05.010 . PMC 4343198. PMID 24906146 .
- ^ „Revolutionierung der Biotechnologie durch künstliche Restriktionsenzyme“ . Nachrichten zu Gentechnik und Biotechnologie . 10. Februar 2017. Abgerufen am 27. Mai 2021 .(Berichterstattung über programmierbare DNA-gesteuerte künstliche Restriktionsenzyme )
- ^ Murtola M, Wenska M, Strömberg R (Juli 2010). „PNAzyme: Künstliche RNA-Restriktionsenzyme“. Journal of the American Chemical Society . 132 (26): 8984–90 . Bibcode : 2010JAChS.132.8984M . doi : 10.1021/ja1008739 . PMID 20545354 .
- ^ A. Pingoud (2004). Restriktionsendonukleasen (Nucleic Acids and Molecular Biology) . Springer. S. 3. ISBN 9783642188510Die
- ^ Smith HO, Nathans D (Dezember 1973). „Brief: Ein Vorschlag für eine Nomenklatur bakterieller Wirtsmodifikations- und Restriktionssysteme und ihrer Enzyme“. Journal of Molecular Biology . 81 (3): 419–23 . doi : 10.1016/0022-2836(73)90152-6 . PMID 4588280 .
- ^ Roberts RJ, Belfort M, Bestor T, Bhagwat AS, Bickle TA, Bitinaite J, et al. (April 2003). „Eine Nomenklatur für Restriktionsenzyme, DNA-Methyltransferasen, Homing-Endonukleasen und ihre Gene“ . Nucleic Acids Research . 31 (7): 1805–1812 . doi : 10.1093 / nar/gkg274 . PMC 152790. PMID 12654995 .
- ^ Geerlof A. „Klonen mit Restriktionsenzymen“ . Europäisches Laboratorium für Molekularbiologie – Hamburg . Abgerufen am 7. Juni 2008 .
- Russell DW, Sambrook J (2001). Molekulares Klonen: Ein Laborhandbuch . Cold Spring Harbor, NY: Cold Spring Harbor Laboratory. ISBN 0-87969-576-5Die
- ^ Wolff JN, Gemmell NJ (Februar 2008). „Kombination allelspezifischer Fluoreszenzsonden und Restriktionsanalyse in der Echtzeit-PCR zur SNP-Bestimmung jenseits von Allelverhältnissen von 1:1000“ . BioTechniques . 44 (2): 193–194 , 196, 199. doi : 10.2144/000112719 . PMID 18330346 .
- ^ Zhang R, Zhu Z, Zhu H, Nguyen T, Yao F, Xia K, et al. (Juli 2005). „SNP Cutter: ein umfassendes Werkzeug für das Design von SNP-PCR-RFLP-Assays“ . Nucleic Acids Research . 33 (Webserver-Ausgabe): W489–92. doi : 10.1093/nar/gki358 . PMC 1160119. PMID 15980518 .
- ^ „Kartierung“ . Natur .
- ^ Stryer L, Berg JM, Tymoczko JL (2002). Biochemie (Fünfte Ausgabe). San Francisco: WH Freeman. P. 122. ISBN 0-7167-4684-0Die
- ^ Tebas P, Stein D, Tang WW, Frank I, Wang SQ, Lee G, et al. (März 2014). „ Genomeditierung von CCR5 in autologen CD4-T-Zellen von HIV-infizierten Personen“ . The New England Journal of Medicine . 370 (10): 901–10 . doi : 10.1056/NEJMoa1300662 . PMC 4084652. PMID 24597865 .
- ^ Wayengera M (2003). „HIV und Gentherapie: Das vorgeschlagene [RM-enzymatische] Modell für eine Gentherapie gegen HIV“. Makerere Med J. 38 : 28–30 .
- ^ Wayengera M, Kajumbula H, Byarugaba W (2007). „Häufigkeits- und Lokalisierung der Spaltung von HIV-1/SIVcpz-, HIV-2/SIVsmm- und anderen SIV-Gensequenzen durch verschiedene bakterielle Restriktionsenzyme: Vorstufen für ein neuartiges HIV-Inhibitorprodukt“. Afr J Biotechnol . 6 (10): 1225–1232 .
- Schiffer JT, Aubert M, Weber ND, Mintzer E, Stone D, Jerome KR (September 2012). „Gezielte DNA-Mutagenese zur Heilung chronischer Virusinfektionen“ . Journal of Virology . 86 (17): 8920–36 . doi : 10.1128/JVI.00052-12 . PMC 3416169. PMID 22718830 .
- ^ Manjunath N, Yi G, Dang Y, Shankar P (November 2013). „Neuere Genomeditierungstechnologien für die HIV-Gentherapie“ . Viruses . 5 (11): 2748–66 . doi : 10.3390 / v5112748 . PMC 3856413. PMID 24284874 .
- ^ Stetson DB, Ko JS, Heidmann T, Medzhitov R (August 2008). „Trex1 verhindert die zellintrinsische Initiierung von Autoimmunität“ . Cell . 134 ( 4): 587–98 . doi : 10.1016/j.cell.2008.06.032 . PMC 2626626. PMID 18724932 .
- ^ Gasior SL, Roy-Engel AM, Deininger PL (Juni 2008). „ERCC1/XPF limits L1 retrotransposition“ . DNA Repair . 7 (6): 983–989 . doi : 10.1016/ j.dnarep.2008.02.006 . PMC 2483505. PMID 18396111 .
- ^ Roberts RJ (Januar 1980). „Restriktions- und Modifikationsenzyme und ihre Erkennungssequenzen“ . Nucleic Acids Research . 8 (1): r63– r80 . doi : 10.1093/nar/8.1.197-d . PMC 327257. PMID 6243774 .
- ^ Roberts RJ (1988). „Restriktionsenzyme und ihre Isoschizomere“ . Nucleic Acids Research . 16 Suppl (Suppl): r271-313. doi : 10.1093/nar/ 16.suppl.r271 . PMC 340913. PMID 2835753 .
- Krieger M, Scott MP, Matsudaira PT, Lodish HF, Darnell JE, Zipursky L, Kaiser C, Berk A (2004). Molekulare Zellbiologie ( 5. Aufl . ) . New York: WH Freeman and Company. ISBN 0-7167-4366-3Die
- ^ „Stu I aus Streptomyces tubercidicus“ . Sigma-Aldrich . Abgerufen am 7. Juni 2008 .
- ^ Shimotsu H, Takahashi H, Saito H (November 1980). „Eine neue ortsspezifische Endonuklease StuI aus Streptomyces tubercidicus“. Gene . 11 ( 3–4 ): 219–225 . doi : 10.1016/0378-1119(80)90062-1 . PMID 6260571 .
Externe Links
- DNA-Restriktionsenzyme in den Medical Subject Headings (MeSH) der US National Library of Medicine
- Firman K (24.11.2007). „Restriktions-Modifikation Typ I“ . Universität Portsmouth. Archiviert vom Original am 06.07.2008 . Abgerufen am 06.06.2008 .
- Goodsell DS (01.08.2000). „Restriktionsenzyme“ . Molekül des Monats. RCSB Proteindatenbank. Archiviert vom Original am 31.05.2008 . Abgerufen am 06.06.2008 .
- Simmer M, Secko D (1. August 2003). „Restriktionsendonukleasen: Molekulare Scheren zum spezifischen Schneiden von DNA“ . The Science Creative Quarterly . Abgerufen am 6. Juni 2008 .
- Roberts RJ, Vincze T, Posfai J, Macelis D. „REBASE“ . Archiviert vom Original am 16.02.2015 . Abgerufen am 06.06.2008 .
Datenbank für Restriktionsenzyme .
Die