In der Biologie bezeichnet man als Ringart eine zusammenhängende Reihe benachbarter Populationen, die sich jeweils mit nahe verwandten Populationen fortpflanzen. Innerhalb dieser Reihe existieren jedoch mindestens zwei Endpopulationen, die zu weit voneinander entfernt sind, um sich miteinander fortzupflanzen, obwohl ein potenzieller Genfluss zwischen verbundenen benachbarten Populationen besteht . [ 1 ] Solche nicht fortpflanzungsfähigen, aber genetisch verbundenen Endpopulationen können im selben Gebiet koexistieren ( Sympatrie ) und so einen Ring schließen . Der deutsche Begriff „ Rassenkreis “ wird ebenfalls verwendet.
Ringarten repräsentieren die Artbildung und gelten als Beleg für die Evolution . Sie veranschaulichen die genetische Divergenz von Populationen im Laufe der Zeit, insbesondere weil sie in lebenden Populationen den natürlichen Wandel zwischen längst ausgestorbenen Vorfahrenpopulationen und heutigen Populationen darstellen, in denen die Zwischenformen ausgestorben sind . Der Evolutionsbiologe Richard Dawkins bemerkt dazu, dass Ringarten „uns in der räumlichen Dimension lediglich etwas zeigen, was in der zeitlichen Dimension immer geschehen muss“. [ 2 ]
Formal gesehen liegt das Problem darin, dass die Interfertilität (die Fähigkeit zur Fortpflanzung untereinander) keine transitive Relation ist ; wenn sich A mit B und B mit C fortpflanzt, bedeutet dies nicht, dass sich A mit C fortpflanzt, und definiert daher keine Äquivalenzrelation . Eine Ringart ist eine Art, die ein Gegenbeispiel zur Transitivität der Interfertilität aufweist. [ 3 ] Es ist jedoch unklar, ob eines der von Wissenschaftlern angeführten Beispiele für Ringarten tatsächlich einen Genfluss von einem Ende zum anderen ermöglicht, da viele dieser Beispiele umstritten sind. [ 4 ]
Geschichte
 Die Larusmöwen kreuzen sich in einem Ring rund um die Arktis. 1: L. fuscus , 2: Sibirische Population von L. fuscus , 3: L. heuglini , 4: L. vegae birulai , 5: L. vegae , 6: L. smithsonianus , 7: L. argentatus
 Silbermöwe ( Larus argentatus ) (vorne) und Heringsmöwe ( Larus fuscus ) (hinten) in Norwegen: zwei Phänotypen mit deutlichen Unterschieden
Die klassische Ringart ist die Larus- Möwe. 1925 entdeckte Jonathan Dwight , dass die Gattung eine Artkette um den Polarkreis bildet. Es bestehen jedoch Zweifel, ob es sich dabei tatsächlich um eine Ringart handelt. [ 5 ] 1938 argumentierte Claud Buchanan Ticehurst , dass sich der Grünlaubsänger von Nepal aus über das Tibetische Plateau ausgebreitet und sich dabei an die jeweilige Umgebung angepasst habe, um sich schließlich in Sibirien wieder zu treffen, wo sich die beiden Arten nicht mehr miteinander fortpflanzen. [ 6 ] Diese und weitere Entdeckungen veranlassten Mayr 1942 in seiner Studie „Systematics and the Origin of Species“ erstmals eine Theorie zu Ringarten zu formulieren . Ebenfalls in den 1940er Jahren beschrieb Robert C. Stebbins die Ensatina- Salamander im kalifornischen Central Valley als Ringart; [ 7 ] [ 8 ] doch auch diese Klassifizierung wird von einigen Autoren, wie beispielsweise Jerry Coyne, als falsch angesehen. [ 4 ] Schließlich wurde 2012 das erste Beispiel einer ringförmigen Pflanzenart in einer Wolfsmilch entdeckt , die einen Ring um das Karibische Meer bildet. [ 9 ]
Artbildung
Der Evolutionsbiologe Ernst Mayr vertrat das Konzept der Ringarten und erklärte, es belege eindeutig den Prozess der Artbildung. [ 10 ] Eine Ringart ist ein alternatives Modell zur allopatrischen Artbildung und veranschaulicht, wie neue Arten durch „zirkuläre Überlappung“ entstehen können, ohne dass der Genfluss durch dazwischenliegende Populationen unterbrochen wird. [ 11 ] Jerry Coyne und H. Allen Orr weisen jedoch darauf hin, dass Ringarten eher die parapatrische Artbildung modellieren . [ 4 ]
Ringarten wecken häufig das Interesse von Evolutionsbiologen, Systematikern und Artbildungsforschern und führen sowohl zu anregenden Überlegungen als auch zu Verwirrung hinsichtlich ihrer Definition. [ 1 ] Heutige Wissenschaftler erkennen an, dass Beispiele in der Natur aufgrund verschiedener Faktoren selten sind, etwa aufgrund von Einschränkungen in der taxonomischen Abgrenzung [ 12 ] oder „taxonomischem Eifer“ [ 10 ] – was dadurch erklärt wird, dass Taxonomen Organismen in „Arten“ einteilen, Ringarten dieser Definition jedoch oft nicht entsprechen. [ 1 ] Weitere Gründe, wie die Unterbrechung des Genflusses durch „vikariatische Divergenz“ und fragmentierte Populationen aufgrund von Klimainstabilität, wurden ebenfalls angeführt. [ 10 ]
Ringarten stellen ein interessantes Beispiel für das Artenproblem dar, insbesondere für diejenigen, die die belebte Welt in einzelne Arten unterteilen möchten . Eine Ringart unterscheidet sich von zwei getrennten Arten lediglich durch die Existenz der verbindenden Populationen. Sterben genügend dieser Populationen innerhalb des Rings aus, um die Fortpflanzungsverbindung zu unterbrechen, so werden die entfernten Populationen der Ringart als zwei verschiedene Arten anerkannt. Das Problem besteht darin, ob der gesamte Ring als eine einzige Art betrachtet werden soll (obwohl sich nicht alle Individuen untereinander fortpflanzen) oder ob jede Population als eigenständige Art klassifiziert werden soll (obwohl sie sich mit ihren nahen Nachbarn fortpflanzt). Ringarten veranschaulichen, dass Artgrenzen allmählich entstehen und oft fließend sind. [ 10 ]
Beispiele
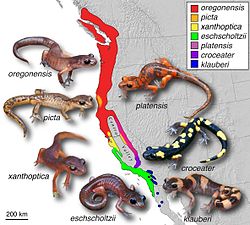

Zahlreiche Beispiele wurden in der Natur dokumentiert. Viele Forschungsergebnisse sind umstritten, und einige Autoren führen Belege an, die gegen ihre Existenz sprechen. [ 4 ] [ 13 ] Die folgenden Beispiele belegen, dass – trotz der begrenzten Anzahl konkreter, idealisierter Beispiele in der Natur – Artenkontinua existieren und in biologischen Systemen vorkommen. [ 10 ] Diese werden häufig durch Klassifizierungen auf Unterartenebene wie Klinen, Ökotypen , Komplexe und Varietäten charakterisiert . Viele Beispiele wurden von Forschern angezweifelt, und ebenso „haben viele der [vorgeschlagenen] Fälle nur wenig Beachtung gefunden, was es schwierig macht zu beurteilen, ob sie die Merkmale idealer Ringarten aufweisen.“ [ 1 ]
Die folgende Liste enthält Beispiele für in der Natur vorkommende Ringelblumenarten. Einige dieser Beispiele, wie etwa der Larus -Möwenkomplex, der Grünlaubsänger Asiens und die Ensatina- Salamander Amerikas, sind umstritten. [ 13 ] [ 14 ] [ 15 ] [ 16 ]
- Acanthiza pusilla und A. ewingii [ 17 ]
- Acacia karroo [ 1 ] [ 18 ]
- Alauda- Feldlerchen ( Alauda arvensis , A. japonica und A. gulgula ) [ 1 ]
- Alophoixus [ 10 ] [ 19 ]
- Aulostomus (Trompetenfisch) [ 20 ]
- Camarhynchus psittacula und C. pauper [ 1 ]
- Chaerephon pumilus -Artenkomplex [ 21 ]
- Ensatina- Salamander [ 22 ] [ 23 ]
- Euphorbia tithymaloides ist eine Gruppe innerhalb der Wolfsmilchgewächse , die sich ringförmig in Mittelamerika und der Karibik ausgebreitet und weiterentwickelt hat und sich auf den Jungferninseln trifft , wo sie sich morphologisch und ökologisch zu unterscheiden scheinen. [ 9 ]
- Kohlmeise [ 1 ] (allerdings bestreiten einige Studien dieses Beispiel [ 24 ] [ 25 ] ).
- Der Grünlaubsänger ( Phylloscopus trochiloides ) bildet einen Artenring um den Himalaya . [ 26 ] [ 27 ] [ 14 ] Man nimmt an, dass er sich von Nepal aus über das unwirtliche Tibetische Plateau ausbreitete , um sich in Sibirien wieder mit dem Grünlaubsänger zu vereinen , wo sich der Grünlaubsänger (Phylloscopus plumbeitarsus) und der Grünlaubsänger (Phylloscopus viridanus) anscheinend nicht mehr gegenseitig fortpflanzten.
- Hoplitis producta [ 1 ]
- Hausmaus [ 1 ]
- Junonia coenia und J. genoveva / J. evarete [ 1 ]
- Lalage leucopygialis , L. nigra und L. sueurii [ 1 ]
- Die Silbermöwen (Larus ) bilden einen zirkumpolaren Ring um den Nordpol . Die Silbermöwe ( L. argentatus argenteus ), die hauptsächlich in Großbritannien und Irland vorkommt , kann sich mit der Amerikanischen Silbermöwe ( L. smithsonianus ) (die in Nordamerika lebt ) kreuzen. Diese kann sich wiederum mit der Vega- oder Ostsibirischen Silbermöwe ( L. vegae ) kreuzen, deren westliche Unterart, die Birulamöwe ( L. vegae birulai ), sich mit der Heuglinmöwe ( L. heuglini ) kreuzen kann. Diese kann sich schließlich mit der Sibirischen Heringsmöwe ( L. fuscus ) kreuzen. Alle vier Arten leben im Norden Sibiriens . Die letztgenannte ist der östliche Vertreter der Heringsmöwe in Nordwesteuropa , einschließlich Großbritannien. Die Heringsmöwe und die Silbermöwe unterscheiden sich so stark, dass sie sich normalerweise nicht kreuzen; daher bildet die Gruppe der Möwen ein Kontinuum, außer dort, wo die beiden Linien in Europa aufeinandertreffen. Eine genetische Studie aus dem Jahr 2004 mit dem Titel „Der Silbermöwenkomplex ist keine Ringart“ hat jedoch gezeigt, dass dieses Beispiel weitaus komplexer ist als hier dargestellt (Liebers et al., 2004): [ 28 ] Dieses Beispiel bezieht sich lediglich auf den Artenkomplex von der klassischen Silbermöwe bis zur Heringsmöwe. Es gibt mehrere weitere taxonomisch unklare Beispiele, die zum selben Artenkomplex gehören , wie die Mittelmeermöwe ( L. michahellis ), die Eismöwe ( L. hyperboreus ) und die Raubmöwe ( L. cachinnans ).
- Pelophylax nigromaculatus und P. porosus/P. porosus brevipodus [ 1 ] (Die Namen und die Klassifizierung dieser Arten haben sich seit der Veröffentlichung geändert, was auf eine Ringart hindeutet.)
- Pernis ptilorhynchus und P. celebensis [ 1 ]
- Perognathus amplus und P. longimembris [ 1 ]
- Peromyscus maniculatus [ 29 ]
- Phellinus [ 30 ]
- Platycercus elegans ( Crimson rosella ) complex [ 31 ] [ 32 ]
- Drosophila paulistorum [ 33 ]
- Phylloscopus collybita und P. sindianus [ 1 ]
- Phylloscopus ( Weidenlaubsänger ) [ 34 ] [ 35 ]
- Powelliphanta [ 36 ]
- Rhymogona silvatica und R. cervina [ 1 ] (die Namen und die Klassifizierung dieser Arten haben sich seit der Veröffentlichung geändert, was auf eine Ringart hindeutet)
- Melospiza melodia , ein Singsperling , bildet einen Ring um die Sierra Nevada in Kalifornien [ 37 ], wobei sich die Unterarten Heermanni und Fallax in der Nähe des San-Gorgonio-Passes treffen .
- Todiramphus chloris und T. cinnamominus [ 1 ]
Siehe auch
- Dialektkontinuum , ein ähnliches Konzept in der Linguistik
- Integration
Referenzen
- Irwin, Darren E.; Irwin, Jessica H.; Price, Trevor D. ( 2001 ) . „ Ringarten als Brücken zwischen Mikroevolution und Artbildung “ . Genetica . 112/113 : 223–243 . doi : 10.1023 / A : 1013319217703 . PMID 11838767. S2CID 7108000 .
- ^ Dawkins, Richard ; Wong, Yan (2016). Die Geschichte der Vorfahren: Eine Pilgerreise zum Anbeginn des Lebens . Houghton Mifflin Harcourt. S. 398. ISBN 978-0544859937Die
- ^ Brown, Rob. "„Gleiche Art“ vs. „Untereinander fruchtbar: Eine prägnante Formulierung kann Verwirrung bei der Diskussion über Evolution vermeiden“ .
- ^ a b c d Coyne, Jerry A.; Orr, H. Allen (2004). Speciation . Sinauer Associates. S. 102–105 . ISBN 0-87893-091-4Die
- ^ Liebers, D.; De Knijff, P.; Helbig, AJ (2004). „Der Silbermöwenkomplex ist keine Ringart“ . Proceedings of the Royal Society B: Biological Sciences . 271 (1542): 893–901 . doi : 10.1098/rspb.2004.2679 . PMC 1691675. PMID 15255043 .
- ^ Irwin, Darren. "Die Ringarten des Grünen Waldsängers" .
- ^ „Ein genauerer Blick auf eine klassische Ringart: Die Arbeit von Tom Devitt“ . Understanding Evolution . 29. April 2021.
- ^ Dieser Artenring ist Gegenstand der Geschichte „Der Salamander“ in Richard Dawkins ' Roman „ Die Geschichte unserer Vorfahren “ (2004).
- ^ a b Cacho, N. Ivalú; Baum, David A. (7. September 2012). „Die karibische Pantoffel-Wolfsmilch Euphorbia tithymaloides: das erste Beispiel einer Ringart bei Pflanzen“ . Proceedings of the Royal Society B: Biological Sciences . 279 (1742): 3377–3383 . doi : 10.1098 / rspb.2012.0498 . PMC 3396892. PMID 22696529 .
- ^ a b c d e f Pereira, Ricardo J.; Wake, David B. (November 2015). „Ringarten als Belege für das Kontinuum der Artenbildung“ . Molecular Ecology . 24 (21): 5312–5314 . Bibcode : 2015MolEc..24.5312P . doi : 10.1111/mec.13412 . PMID 26509692. S2CID 206182763 .
- ^ Helbig, AJ (August 2005). „Evolutionsgenetik: Ein Ring von Arten“ . Heredity . 95 ( 2): 113–114 . Bibcode : 2005Hered..95..113H . doi : 10.1038/sj.hdy.6800679 . PMID 15999143. S2CID 29782163 .
- ^ Irwin, Darren E (Dezember 2012). „Ein neuartiger Ansatz zur Entdeckung von Ringarten: Suche nach Barrieren statt nach Ringen“ . BMC Biology . 10 (1) 21. doi : 10.1186/1741-7007-10-21 . PMC 3299606. PMID 22410355 .
- ^ a b Coyne, Jerry (16. Juli 2014). „Es gibt keine Ringarten“ . Warum die Evolution wahr ist.
- ^ a b Alcaide, Miguel; Scordato, Elizabeth SC; Price, Trevor D.; Irwin, Darren E. (Juli 2014). „Genomische Divergenz in einem Ringartenkomplex“. Nature . 511 (7507): 83–85 . Bibcode : 2014Natur.511...83A . doi : 10.1038/ nature13285 . hdl : 10261/101651 . PMID 24870239. S2CID 4458956 .
- ^ Liebers, Dorit; Knijff, Peter de; Helbig, Andreas J. (2004). „Der Silbermöwenkomplex ist keine Ringart“ . Proc Biol Sci . 271 (1542): 893–901 . doi : 10.1098/rspb.2004.2679 . PMC 1691675. PMID 15255043 .
- ^ Highton, R. (1998). „Ist Ensatina eschscholtzii eine Ringart?“. Herpetologica . 54 (2): 254– 278. JSTOR 3893431 .
- ^ Simpson, K.; Day, N.; Trusler, P. (1999), Birds of Australia (6. Aufl.), Princeton University Press
- ^ Ward, David (Dezember 2011). „Population differentiation in a purported ring species, Acacia karroo (Mimosoideae)“ . Biological Journal of the Linnean Society . 104 (4): 748–755 . doi : 10.1111/j.1095-8312.2011.01757.x .
- Fuchs , Jérôme; Ericson, Per GP; Bonillo, Céline; Couloux, Arnaud; Pasquet, Eric (November 2015). „Die komplexe Phylogeographie der indomalaiischen Alophoixus-Bülbüls mit der Beschreibung eines mutmaßlichen neuen Ringartenkomplexes“. Molecular Ecology . 24 (21): 5460–5474 . Bibcode : 2015MolEc..24.5460F . doi : 10.1111/mec.13337 . PMID 26224534. S2CID 44672012 .
- Bowen , BW; Bass, AL; Rocha, LA; Grant, WS; Robertson, DR (2001). „Phytogeographie der Trompetenfische ( Aulostomus ): Ringartenkomplex auf globaler Ebene“. Evolution . 55 (5): 1029–1039 . doi : 10.1554/0014-3820(2001)055[1029:pottar]2.0.co; 2 . PMID 11430639. S2CID 221735739 .
- ^ Naidoo, Theshnie; Goodman, Steven M.; Schoeman, M. Corrie; Taylor, Peter J.; Lamb, Jennifer M. (1. Januar 2016). „Teilweise Unterstützung der klassischen Ringartenhypothese im Chaerephon pumilus -Artenkomplex (Chiroptera: Molossidae) aus Südostafrika und den westlichen Inseln des Indischen Ozeans“. Mammalia . 80 (6). doi : 10.1515/mammalia-2015-0062 . S2CID 89517662 .
- ^ Moritz, C.; Schneider, CJ; Wake, DB (1. September 1992). „Evolutionäre Beziehungen innerhalb des Ensatina Eschscholtzii-Komplexes bestätigen die Ringarteninterpretation“. Systematic Biology . 41 (3): 273–291 . doi : 10.1093/sysbio/41.3.273 . S2CID 49267121 .
- ^ Moritz, Craig; Schneider, Christopher J.; Wake, David B. (September 1992). „Evolutionäre Beziehungen innerhalb des Ensatina eschscholtzii-Komplexes bestätigen die Ringarteninterpretation“. Systematic Biology . 41 (3): 273–291 . doi : 10.2307/2992567 . JSTOR 2992567 .
- ^ Päckert, Martin; Martens, Jochen; Eck, Siegfried; Nazarenko, Alexander A.; Valchuk, Olga P.; Petri, Bernd; Veith, Michael (27. September 2005). „Die Kohlmeise (Parus major) – eine falsch klassifizierte Ringart“. Biological Journal of the Linnean Society . 86 (2): 153–174 . doi : 10.1111/j.1095-8312.2005.00529.x .
- ^ Kvist, Laura; Martens, Jochen; Higuchi, Hiroyoshi; Nazarenko, Alexander A.; Valchuk, Olga P.; Orell, Markku (22. Juli 2003). „Evolution und genetische Struktur des Kohlmeisenkomplexes ( Parus major )“ . Proceedings of the Royal Society of London. Series B: Biological Sciences . 270 (1523): 1447–1454 . doi : 10.1098/ rspb.2002.2321 . PMC 1691391. PMID 12965008 .
- ^ Alström, Per (2006). „Artkonzepte und ihre Anwendung: Erkenntnisse aus den Gattungen Seicercus und Phylloscopus “ (PDF) . Acta Zoologica Sinica . 52 (Suppl): 429–434 . S2CID 145032793. Archiviert vom Original (PDF) am 21. Juli 2011.
- ^Irwin, D. E.; Bensch, S; Irwin, JH; Price, TD (21 January 2005). "Speciation by Distance in a Ring Species". Science. 307 (5708): 414–416. Bibcode:2005Sci...307..414I. doi:10.1126/science.1105201. PMID 15662011. S2CID 18347146.
- ^Liebers, Dorit; de Knijff, Peter; Helbig, Andreas J. (7 May 2004). "The herring gull complex is not a ring species". Proceedings of the Royal Society of London. Series B: Biological Sciences. 271 (1542): 893–901. doi:10.1098/rspb.2004.2679. PMC 1691675. PMID 15255043.
- ^Caire, W.; Zimmerman, E. G. (1 March 1975). "Chromosomal and Morphological Variation and Circular Overlap in the Deer Mouse, Peromyscus Maniculatus, in Texas and Oklahoma". Systematic Biology. 24 (1): 89–95. doi:10.1093/sysbio/24.1.89.
- ^Parmasto, Erast (2007). "Phellinus laevigatus s. l. (Hymenochaetales): a ring species". Folia Cryptogamica Estonica. 43: 39–49.
- ^Joseph, Leo; Dolman, Gaynor; Donnellan, Stephen; Saint, Kathleen M; Berg, Mathew L; Bennett, Andrew T.D (7 November 2008). "Where and when does a ring start and end? Testing the ring-species hypothesis in a species complex of Australian parrots". Proceedings of the Royal Society B: Biological Sciences. 275 (1650): 2431–2440. doi:10.1098/rspb.2008.0765. PMC 2603204. PMID 18664434.
- ^Eastwood, Justin R.; Berg, Mathew L.; Ribot, Raoul F. H.; Raidal, Shane R.; Buchanan, Katherine L.; Walder, Ken R.; Bennett, Andrew T. D. (30 September 2014). "Phylogenetic analysis of beak and feather disease virus across a host ring-species complex". Proceedings of the National Academy of Sciences. 111 (39): 14153–14158. Bibcode:2014PNAS..11114153E. doi:10.1073/pnas.1403255111. PMC 4191811. PMID 25225394.
- ^ Dobzhansky, T.; Spassky, B. (1. März 1959). „Drosophila Paulistorum, eine Gruppe von Arten im Stadium Nascendi“ . Proceedings of the National Academy of Sciences . 45 (3): 419–428 . Bibcode : 1959PNAS...45..419D . doi : 10.1073/pnas.45.3.419 . PMC 222578. PMID 16590403 .
- Bensch , Staffan; Grahn, Mats; Müller, Nils; Gay, Laurene; Åkesson, Susanne (Juli 2009). „Genetische, morphologische und federisotopische Variationen von wandernden Fitislaubsängern zeigen eine allmähliche Divergenz innerhalb eines Rings“. Molecular Ecology . 18 (14): 3087–3096 . Bibcode : 2009MolEc..18.3087B . doi : 10.1111/ j.1365-294X.2009.04210.x . PMID 19457197. S2CID 205361829 .
- ^ Irwin, Darren E. (Juli 2009). „Anfängliche Ringspeziesbildung durch eine Wanderungsteilung nachgewiesen“ . Molecular Ecology . 18 (14): 2923–2925 . Bibcode : 2009MolEc..18.2923I . doi : 10.1111/ j.1365-294X.2009.04211.x . PMID 19457189. S2CID 13601570 .
- ^ Climo, FM (Juni 1978). „Die Powelliphanta gilliesi – traversi – hochstetteri – rossiana – lignaria – superba-Ringart (Mollusca: Pulmonata)“. New Zealand Journal of Zoology . 5 (2): 289–294 . doi : 10.1080/03014223.1978.10428318 .
- ^ Patten, Michael A.; Pruett, Christin L. (März 2009). „Die Singammer, Melospiza melodia, als Ringart: Muster geografischer Variation, eine Revision der Unterarten und Implikationen für die Artbildung“. Systematics and Biodiversity . 7 (1): 33–62 . Bibcode : 2009SyBio...7...33P . doi : 10.1017/S1477200008002867 . S2CID 154943 .