Aktivitätsbasierte Proteomik oder aktivitätsbasiertes Proteinprofiling ( ABPP ) ist eine chemoproteomische Strategie, die modulare Sonden einsetzt, um den Funktionszustand von Enzymen in komplexen Proteomen direkt zu bestimmen. [ 1 ] Im Gegensatz zur expressionsbasierten Proteomik, die die Proteinmenge misst, liefert ABPP Informationen über die katalytische Aktivität und ermöglicht es Forschern somit, zwischen aktiven und inaktiven Enzymformen zu unterscheiden. Diese funktionelle Perspektive hat sich als wertvoll erwiesen, um Wirkstoffziele zu identifizieren, Ligandenbindungsstellen zu kartieren und die Enzymregulation in physiologischen und pathologischen Kontexten zu verstehen. [ 2 ] [ 3 ] [ 4 ] [ 5 ] Durch kovalente Modifizierung aktiver Zentren ermöglichen aktivitätsbasierte Sonden ( ABPs ) die selektive Markierung, Anreicherung und Isolierung von Proteinen, wodurch die Komplexität proteomischer Proben reduziert und nachfolgende Analysen erleichtert werden. [ 6 ] ABPP wurde in verschiedenen biologischen Systemen, darunter Zellen, Gewebe und ganze Organismen, angewendet und hat zu Fortschritten in der Biomarker-Entdeckung, der Wirkstoffentwicklung und der In-vivo-Bildgebung beigetragen. [ 2 ] [ 7 ] [ 8 ]
Historische Entwicklung
Erste Experimente, die dem aktivitätsbasierten Profiling ähnelten, wurden in den 1970er Jahren durchgeführt, als kleine Moleküle zur Untersuchung des Wirkmechanismus des Serin-modifizierenden Antibiotikums Penicillin eingesetzt wurden . [ 9 ] Die moderne Ära des ABPP begann in den 1990er Jahren mit der Entwicklung von ABPs, die mit proteomischen Arbeitsabläufen kompatibel sind. Die ersten Anwendungen von ABPP wurden in diesem Jahrzehnt in Studien zu Proteasen beschrieben. [ 10 ] [ 11 ] 1999 prägte das Cravatt-Labor den Begriff „aktivitätsbasiertes Proteinprofiling“ und schuf damit einen Rahmen für die systematische funktionelle Proteomik. [ 12 ] Weiterführende Arbeiten von Ben Cravatt am Scripps Research Institute , Matthew Bogyo an der Stanford University und Herman S. Overkleeft an der Universität Leiden trugen maßgeblich zur Definition des Forschungsfeldes bei, indem sie Sonden für Serinhydrolasen [ 12 ] , Cysteinproteasen [ 13 ] , Oxidoreduktasen [ 14 ] , humane Cytochrom P450 [ 15 ] und andere Enzymfamilien entwickelten. Seit seinen Anfängen hat sich ABPP rasant verbreitet. Bibliometrische Analysen belegen ein exponentielles Wachstum der Publikationen und eine breite Anwendung in Nordamerika, Europa und Asien. [ 16 ] Fortschritte in der Massenspektrometrie und Proteintrennungstechnologien beschleunigten die Integration von ABPP in die Proteomforschung zusätzlich und ermöglichten die Charakterisierung der Enzymaktivität im globalen Maßstab. Dadurch etablierte sich ABPP als Eckpfeiler der funktionellen Proteomik .
Sondenkonstruktion
Die Grundeinheit von ABPP ist die aktivitätsbasierte Sonde (ABP). Dabei handelt es sich um niedermolekulare Sonden, die so konstruiert sind, dass sie die enzymatischen Aktivitäten einer Reihe verwandter Enzyme innerhalb eines komplexen Proteoms profilieren. Obwohl die spezifischen Architekturen variieren, weisen die meisten ABPs drei modulare Komponenten auf: (1) eine reaktive Gruppe (RG, manchmal auch „Wirkstoff“ genannt), (2) einen Linker oder ein Bindungselement und (3) ein Tag zur Detektion oder Anreicherung. Diese Modularität ermöglicht es den Sonden, eine breite und dennoch mechanistisch aussagekräftige Abdeckung einer Enzymklasse zu erreichen und gleichzeitig Off-Target-Reaktionen zu minimieren. [ 6 ]
Reaktive Gruppe
Die reaktive Gruppe, oft auch als „Sprengkopf“ bezeichnet, bindet kovalent an konservierte Aminosäurereste im aktiven Zentrum von Enzymen . Sie ist der entscheidende Faktor für die Selektivität des Enzyms. Sie vermittelt die irreversible oder photoinduzierte kovalente Bindung an Aminosäurereste im aktiven Zentrum . Im Allgemeinen lassen sich diese in zwei funktionelle Klassen einteilen: elektrophile und photoreaktive Sprengköpfe. Elektrophile Sprengköpfe reagieren mit konservierten Nukleophilen . Beispielsweise werden Fluorophosphonate häufig zur gezielten Aktivierung von Serinhydrolasen eingesetzt [ 12 ] , während Epoxide und Vinylsulfone bei Cysteinproteasen Anwendung finden [ 13 ]. Photoreaktive Sprengköpfe werden verwendet, wenn einer Enzymklasse ein katalytisches Nukleophil fehlt , wie beispielsweise bei Metalloproteasen [ 17 ] oder Histon-Deacetylasen . [ 18 ] Diese Sonden enthalten Benzophenon- [ 19 ] oder Diazirin- Gruppen [ 20 ] , die bei UV-Bestrahlung Radikalzwischenprodukte erzeugen, welche kovalente Quervernetzungen mit benachbarten Resten im aktiven Zentrum des Enzyms bilden .
Bei Enzymklassen wie den Serinhydrolasen [ 12 ] und Metalloproteasen [ 17 ] , die häufig mit endogenen Inhibitoren interagieren oder als inaktive Zymogene vorliegen , bietet ABPP einen wertvollen Vorteil gegenüber traditionellen Techniken, die auf der Konzentration anstatt auf der Aktivität basieren. Da enzymatische Aktivität für die produktive Reaktion mit der reaktiven Gruppe erforderlich ist, bleiben inaktive Vorstufen und inhibitorgebundene Enzymformen typischerweise unmarkiert [ 21 ] . Da die Photovernetzung jedoch keinen katalytischen Umsatz erfordert, können inaktive Proteasen dennoch markiert werden, wodurch die intrinsische Aktivitätsabhängigkeit photoreaktiver Sonden reduziert wird. Diese Einschränkung hat die Integration selektivitätssteigernder funktioneller Gruppen direkt in das Sondendesign motiviert. Im Fall von Metalloproteasen koordinieren aktive Enzyme ein katalytisches Metallion. Durch die Anbindung einer metallchelatierenden Gruppe an das Sondengerüst können photoreaktive ABPs gezielt in Richtung der katalytisch aktiven, metallgebundenen Form des Enzyms gelenkt werden, wodurch die Unterscheidung zwischen aktiver und inaktiver Form verbessert wird. [ 17 ] [ 20 ] Eine weitere große Herausforderung bei der Entwicklung solcher Sonden besteht darin, eine ausreichende Reaktivität zu erreichen, um das gewünschte Enzym zu markieren, ohne dabei unspezifische Modifikationen an anderen Proteinen vorzunehmen. Strategien wie maskierte Moleküle, die nur in Gegenwart des Zielenzyms aktiviert werden, wurden entwickelt, um die Spezifität zu verbessern. [ 22 ]
Linker
Zwischen der reaktiven Gruppe und dem Tag enthalten ABPs häufig einen Linker / Spacer / Biorecognitions-Element , der die Löslichkeit der Sonde, die sterische Zugänglichkeit und die Substratnachahmung beeinflussen kann. Einfache Linker können aus Alkylketten oder Polyethylenglykol (PEG)-Spacern bestehen, welche die Hydrophobizität anpassen und die Markierung in verschiedenen Proteomen verbessern . Komplexere Designs beinhalten Biorecognitions-Elemente, die die Selektivität für Enzymfamilien oder -subfamilien ermöglichen. Beispielsweise wurden substratmimetische Phosphonate zur gezielten Markierung spezifischer Serinproteasen eingesetzt [ 23 ] , und optimierte Peptidsequenzen können Caspase-Isoformen unterscheiden [ 24 ] . Bindungs- oder Zielmotive innerhalb des Linkers können die Interaktionen mit Enzymen, deren aktive Zentren strukturelle Einschränkungen bedingen, weiter verstärken und dadurch die Sondenspezifität verbessern [ 25 ] . Darüber hinaus können Linkerlänge und -zusammensetzung die Permeabilität und Verteilung der Sonde in zellulären oder in vivo-Kontexten modulieren. Diese Komponente ermöglicht es Sondenentwicklern, ein Gleichgewicht zwischen Breite (Profilierung einer gesamten Enzymklasse) und Spezifität (Gezielte Untersuchung einzelner Mitglieder) zu finden.
Etikett
Das Tag kann entweder ein direkter Reporter wie ein Fluorophor oder ein Affinitätslabel wie Biotin sein oder aus einer latenten Gruppe wie einem Alkin oder Azid für die Huisgen-1,3-dipolare Cycloaddition (auch bekannt als Click-Chemie ) bestehen. [ 26 ] Reporter-Tags erleichtern den Nachweis und die Isolierung markierter Proteine. Gängige Beispiele sind Fluorophore zur Visualisierung mittels In- Gel -Fluoreszenz und Hochdurchsatz-Gel-basierten Screenings, Biotin zur Streptavidin -basierten Anreicherung mit anschließender Massenspektrometrie sowie Isotopenmarkierungen [ 27 , 28 ] für die quantitative Massenspektrometrie. Alternativ können Alkine oder Azide als bioorthogonale Gruppen für die Konjugation nach der Markierung mittels Click-Chemie eingebaut werden, was die modulare Anlagerung von Fluorophoren , Affinitäts-Tags oder Isotopenmarkierungen [ 27 , 28 ] nach der Proteommarkierung ermöglicht. [ 26 ] [ 29 ] Diese „klickbaren“ Designs minimieren die sterische Hinderung am aktiven Zentrum und erweitern die analytische Flexibilität, insbesondere für hochauflösende Flüssigkeitschromatographie-Massenspektrometrie- Methoden.
Detektionsmethoden
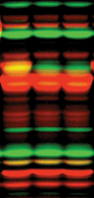
ABPP kann mithilfe verschiedener, sich ergänzender Detektionsstrategien analysiert werden, die jeweils für unterschiedliche experimentelle Kontexte geeignet sind. Diese Methoden visualisieren oder reichern im Allgemeinen das Enzym-Sonden-Addukt an und ermöglichen so eine qualitative Beurteilung, einen quantitativen Vergleich oder die Proteinidentifizierung mittels Massenspektrometrie .
Eines der frühesten und am weitesten verbreiteten ABPP-Verfahren nutzt die direkte Visualisierung auf SDS-PAGE-Gelen . [ 12 ] Sonden mit fluoreszierenden Reportermarkierungen (z. B. Rhodamin) erzeugen distinkte Banden, die markierten Enzymen entsprechen und so eine schnelle Aktivitätsbestimmung in verschiedenen Proben oder unter verschiedenen Behandlungsbedingungen ermöglichen. Dieser Ansatz wird häufig für breite Enzymfamilien wie Serinhydrolasen [ 12 ] oder Cysteinproteasen [ 13 ] verwendet und ist mit dem Hochdurchsatz-Screening von Inhibitoren kompatibel. Da die Auswertung auf der Fluoreszenz im Gel und nicht auf der Proteinmenge basiert, kann das gelbasierte ABPP aktive von inaktiven Enzymspezies unterscheiden.
Ein wesentlicher Nachteil der gelbasierten Detektion ist jedoch ihr geringes Auflösungsvermögen, das die Identifizierung von Proteinen mit niedriger Konzentration verhindert. In den letzten Jahren wurde die ABPP mit der Tandem-Massenspektrometrie kombiniert , wodurch die Identifizierung hunderter aktiver Enzyme aus einer einzigen Probe ermöglicht wird. Diese Technik, bekannt als ABPP-MudPIT (multidimensionale Proteinidentifizierungstechnologie), ist besonders nützlich für die Profilierung der Selektivität von Inhibitoren, da die Wirksamkeit eines Inhibitors gleichzeitig gegen hunderte von Zielproteinen getestet werden kann. [ 30 ] Für die proteomweite Analyse ermöglichen ABPs mit Affinitätsmarkierungen (z. B. Biotin ) oder klickbaren Gruppen ( Azide oder Alkine ) die Anreicherung markierter Enzyme vor der Identifizierung mittels Flüssigkeitschromatographie-Tandem-Massenspektrometrie (LC-MS/MS). Nach kovalenter Markierung in Zellen oder Lysaten werden Enzym-Sonden-Addukte mit Streptavidin oder anderen Affinitätsmatrizen gebunden, gewaschen, um unmarkierte Proteine zu entfernen, und für die MS-basierte Peptididentifizierung verdaut. [ 31 ] Diese Strategie bietet eine hohe Sensitivität und Abdeckungstiefe, was die Entdeckung neuer Enzymziele, den Nachweis von Enzymen mit geringer Häufigkeit und die Analyse komplexer Enzymfamilien erleichtert.
Um die Enzymaktivität unter verschiedenen biologischen Bedingungen zu vergleichen, kann ABPP mit quantitativen Proteomik-Technologien kombiniert werden , um die relative Enzymaktivität in verschiedenen Proben zu messen. [ 32 ] Techniken wie SILAC ( Stable Isotope Labeling by Amino acids in Cell culture ) integrieren Aminosäuren mit schweren oder leichten Isotopen in zelluläre Proteine und ermöglichen so den direkten MS-basierten Vergleich von markierten Peptiden aus verschiedenen Proben. [ 33 ] TMT ( Tandem Mass Tagging ), das isobare Massenmarkierungen verwendet, erlaubt die gleichzeitige Multiplexierung und Quantifizierung markierter Peptide aus mehreren Proben. [ 34 ] Diese Strategien wurden bereits umfassend eingesetzt, um die Selektivität kovalenter Inhibitoren und genomweite Veränderungen der Enzymaktivität zu untersuchen. isoTOP-ABPP (Isotopenmarkierung optimierter Sonden für aktivitätsbasiertes Proteinprofiling) [ 27 ] ist ein spezieller Arbeitsablauf, der entwickelt wurde, um einige Einschränkungen des konventionellen ABPP zu beheben, darunter geringe Spezifität, begrenzte Sensitivität und das Fehlen selektiver chemischer Liganden für viele humane Enzyme. Diese Methode nutzt stabile Isotope in Sonden-basierten Markierungen, um die Sensitivität und Selektivität des ABPP zu verbessern und gleichzeitig die genaue Quantifizierung von Proteininteraktionen in komplexen biologischen Proben zu ermöglichen.
Darüber hinaus können fluoreszierende und photoaffine Sonden in situ oder in vivo eingesetzt werden, um die Enzymaktivität in Zellen, Geweben oder ganzen Organismen sichtbar zu machen. Diese Ansätze liefern räumliche Informationen über die Enzymfunktion und wurden bereits zur Untersuchung von Prozessen wie der Proteaseaktivität in Krebs- und Infektionsmodellen verwendet. Neuere Entwicklungen zielen darauf ab, die Enzymaktivität in lebenden Systemen in Echtzeit und ohne invasive Eingriffe darzustellen. [ 35 ]
Vorteile und Einschränkungen
Ein wesentlicher Vorteil von ABPP ist die Möglichkeit, die Verfügbarkeit des aktiven Zentrums eines Enzyms direkt zu überwachen, anstatt sich auf die Protein- oder mRNA-Menge zu beschränken. Ideale ABPs würden eine große, aber überschaubare Anzahl von Enzymen (zehn bis hunderte) anvisieren, um Forschern einen umfassenden Überblick über den Funktionszustand des Proteoms zu ermöglichen. [ 6 ] Diese Zielpromiskuität muss durch minimale Kreuzreaktivität mit nicht verwandten Proteinen ausgeglichen werden. Die meisten ABPs erreichen diese Kombination aus intraklassenspezifischer Abdeckung und begrenzter extraklassenspezifischer Reaktivität, indem sie geeignete reaktive Gruppen mit Bindungselementen koppeln, die konservierte mechanistische oder strukturelle Merkmale innerhalb der aktiven Zentren von Enzymen erkennen. Darüber hinaus könnten ABPPs zur gezielten Untersuchung spezifischer Proteine eingesetzt werden, die zuvor als nicht medikamentös angreifbar galten. [ 36 ]
Ein Nachteil von ABPs besteht darin, dass ihr Design durch die Notwendigkeit der Anbindung eines Elektrophils oder Photovernetzers eingeschränkt ist, was die chemische Vielfalt begrenzen kann. Ein weiterer potenzieller Nachteil ist, dass die kovalente Modifizierung des aktiven Zentrums das Zielenzym irreversibel hemmt. In vielen Fällen ist es jedoch möglich, ABP-Konzentrationen zu verwenden, sodass nur ein kleiner Teil des aktiven Enzympools markiert wird, wodurch die Beeinträchtigung der Gesamtenzymaktivität minimiert wird. [ 37 ] [ 38 ]
Siehe auch
- Massenspektrometrie
- Proteomik
- Verwandte Inhibitoren MAFP und DIFP
- Chemoproteomik
- Thermische Proteomprofilierung
Referenzen
- ^ Berger AB, Vitorino PM, Bogyo M (2004). „Aktivitätsbasiertes Proteinprofiling: Anwendungen zur Biomarker-Entdeckung, In-vivo-Bildgebung und Wirkstoffforschung“. American Journal of Pharmacogenomics . 4 (6): 371–81 . doi : 10.2165/00129785-200404060-00004 . PMID 15651898. S2CID 18637390 .
- Killinger , Bryan J.; Whidbey, Christopher; Sadler, Natalie C.; DeLeon, Adrian J.; Munoz, Nathalie; Kim, Young-Mo; Wright, Aaron T. (2022-07-20). „ Aktivitätsbasierte Proteinprofilierung identifiziert alternierende Aktivierung von Enzymen, die am Bifidobakterien-Shunt-Weg oder am Mucinabbau in der Darmmikrobiom-Reaktion auf lösliche Ballaststoffe beteiligt sind“ . npj Biofilms and Microbiomes . 8 (1): 60. doi : 10.1038/s41522-022-00313-z . ISSN 2055-5008 . PMC 9300575. PMID 35858888 .
- ^ Crews, Craig M. (25.06.2010). „ Das unzugängliche Proteom im Fokus: Die kleinen Moleküle meiner Träume“ . Chemistry & Biology . 17 (6): 551–555 . doi : 10.1016/j.chembiol.2010.05.011 . ISSN 1074-5521 . PMC 2925121. PMID 20609404 .
- ^ Wang, Shan; Tian, Yu; Wang, Min; Sun, Gui-bo; Sun, Xiao-bo (09.04.2018). „Fortgeschrittene aktivitätsbasierte Proteinprofilierungs-Anwendungsstrategien für die Arzneimittelentwicklung“ . Frontiers in Pharmacology . 9, 353. doi : 10.3389/fphar.2018.00353 . ISSN 1663-9812 . PMC 5900428. PMID 29686618 .
- ^Navarrete, Mario; Wilkins, John A.; Lao, Ying; Rush, David N.; Nickerson, Peter W.; Ho, Julie (September 2019). "Activity-based Protein Profiling Approaches for Transplantation". Transplantation. 103 (9): 1790–1798. doi:10.1097/TP.0000000000002752. hdl:1993/35051. ISSN 0041-1337. PMID 30985576.
- ^ abcCravatt, Benjamin F.; Wright, Aaron T.; Kozarich, John W. (2008-07-07). "Activity-Based Protein Profiling: From Enzyme Chemistry to Proteomic Chemistry". Annual Review of Biochemistry. 77 (1): 383–414. Bibcode:2008ARBio..77..383C. doi:10.1146/annurev.biochem.75.101304.124125. ISSN 0066-4154. PMID 18366325.
- ^Agost-Beltrán, Laura; Canseco-Rodríguez, Ania; Schirmeister, Tanja; Rodríguez, Santiago; Sánchez-Pérez, Ana María; González, Florenci V. (2025). "Profiling Cysteine Proteases Activities in Neuroinflammatory Cells". ChemMedChem. 20 (3) e202400520. doi:10.1002/cmdc.202400520. ISSN 1860-7187. PMC 11793851. PMID 39475209.
- ^Ishikawa, Fumihiro; Konno, Sho; Uchida, Chiharu; Suzuki, Takehiro; Takashima, Katsuki; Dohmae, Naoshi; Kakeya, Hideaki; Tanabe, Genzoh (2022-01-20). "Chemoproteomics profiling of surfactin-producing nonribosomal peptide synthetases in living bacterial cells". Cell Chemical Biology. 29 (1): 145–156.e8. doi:10.1016/j.chembiol.2021.05.014. ISSN 2451-9456. PMID 34133952.
- ^Blumberg, P M; Strominger, J L (September 1974). "Interaction of penicillin with the bacterial cell: penicillin-binding proteins and penicillin-sensitive enzymes". Bacteriological Reviews. 38 (3): 291–335. doi:10.1128/br.38.3.291-335.1974. PMC 413858. PMID 4608953.
- ^ Kam CM, Abuelyaman AS, Li Z, Hudig D, Powers JC (1993). „Biotinylierte Isocumarine, neue Inhibitoren und Reagenzien zum Nachweis, zur Lokalisierung und zur Isolierung von Serinproteasen“. Bioconjugate Chemistry . 4 (6): 560–7 . doi : 10.1021/bc00024a021 . PMID 8305526 .
- ^ Abuelyaman AS, Hudig D, Woodard SL, Powers JC (1994). „Fluoreszierende Derivate von Diphenyl[1-(N-Peptidylamino)alkyl]phosphonatestern: Synthese und Anwendung zur Hemmung und zellulären Lokalisierung von Serinproteasen“. Bioconjugate Chemistry . 5 (5): 400–5 . doi : 10.1021/bc00029a004 . PMID 7849068 .
- ^ a b c d e f Liu Y, Patricelli MP, Cravatt BF (Dezember 1999). „Aktivitätsbasiertes Proteinprofiling: die Serinhydrolasen“ . Proceedings of the National Academy of Sciences of the United States of America . 96 (26): 14694–9 . Bibcode : 1999PNAS...9614694L . doi : 10.1073 / pnas.96.26.14694 . PMC 24710. PMID 10611275 .
- ^ a b c Greenbaum, Doron; Baruch, Amos; Hayrapetian, Linda; Darula, Zsuzsanna; Burlingame, Alma; Medzihradszky, Katlin F.; Bogyo, Matthew (2002-01-01). „Chemische Ansätze zur funktionellen Untersuchung des Proteoms*“ . Molecular & Cellular Proteomics . 1 (1): 60–68 . doi : 10.1074/mcp.T100003-MCP200 . ISSN 1535-9476 . PMID 12096141 .
- ^ Fuerst, Rita; Breinbauer, Rolf (2021). „Aktivitätsbasiertes Proteinprofiling (ABPP) von Oxidoreduktasen“ . ChemBioChem . 22 ( 4): 630–638 . doi : 10.1002/cbic.202000542 . ISSN 1439-7633 . PMC 7894341. PMID 32881211 .
- ^ Wright, Aaron T.; Song, Joongyu D.; Cravatt, Benjamin F. (05.08.2009). „ Eine Reihe aktivitätsbasierter Sonden für humane Cytochrom-P450-Enzyme“ . Journal of the American Chemical Society . 131 (30): 10692–10700 . Bibcode : 2009JAChS.13110692W . doi : 10.1021/ja9037609 . ISSN 0002-7863 . PMC 2737065. PMID 19583257 .
- ^ Porta, Exequiel Oscar Jesus (2023-05-20). „Mapping the Evolution of Activity-Based Protein Profiling: A Bibliometric Review“ . Advanced Pharmaceutical Bulletin . 13 (4): 639–645 . doi : 10.34172/apb.2023.082 . ISSN 2228-5881 . PMC 10676541. PMID 38022804 .
- Saghatelian A, Jessani N, Joseph A, Humphrey M, Cravatt BF (Juli 2004). „ Aktivitätsbasierte Sonden für das proteomische Profiling von Metalloproteasen“ . Proceedings of the National Academy of Sciences of the United States of America . 101 (27): 10000–5 . Bibcode : 2004PNAS..10110000S . doi : 10.1073/pnas.0402784101 . PMC 454150. PMID 15220480 .
- ^ Salisbury, Cleo M.; Cravatt, Benjamin F. (23.01.2007). „Aktivitätsbasierte Sonden für die proteomische Profilierung von Histon-Deacetylase-Komplexen“ . Proceedings of the National Academy of Sciences . 104 (4): 1171–1176 . Bibcode : 2007PNAS..104.1171S . doi : 10.1073/pnas.0608659104 . PMC 1783107. PMID 17227860 .
- ^ Salisbury, Cleo M.; Cravatt, Benjamin F. (1. Februar 2008). „Optimierung aktivitätsbasierter Sonden für die proteomische Profilierung von Histon-Deacetylase-Komplexen“. Journal of the American Chemical Society . 130 (7): 2184–2194 . Bibcode : 2008JAChS.130.2184S . doi : 10.1021/ja074138u . ISSN 0002-7863 . PMID 18217751 .
- ^ a b Chan, Elaine WS; Chattopadhaya, Souvik; Panicker, Resmi C.; Huang, Xuan; Yao, Shao Q. (2004-11-01). „Entwicklung photoaktiver Affinitätssonden für die proteomische Profilierung: Hydroxamatbasierte Sonden für Metalloproteasen“ . Journal of the American Chemical Society . 126 (44): 14435–14446 . Bibcode : 2004JAChS.12614435C . doi : 10.1021/ja047044i . ISSN 0002-7863 . PMID 15521763 .
- Jessani , Nadim; Liu, Yongsheng; Humphrey, Mark; Cravatt, Benjamin F. (06.08.2002). „Enzymaktivitätsprofile des sezernierten und Membranproteoms zur Darstellung der Invasivität von Krebszellen“ . Proceedings of the National Academy of Sciences . 99 (16): 10335–10340 . Bibcode : 2002PNAS...9910335J . doi : 10.1073/pnas.162187599 . PMC 124915. PMID 12149457 .
- Eaton , John K.; Ruberto, Richard A.; Kramm, Anneke; Viswanathan, Vasanthi S.; Schreiber, Stuart L. (26.12.2019). „Diacylfuroxane sind maskierte Nitriloxide, die GPX4 kovalent hemmen“ . Journal of the American Chemical Society . 141 (51): 20407–20415 . Bibcode : 2019JAChS.14120407E . doi : 10.1021/jacs.9b10769 . ISSN 0002-7863 . PMID 31841309 .
- ^ Mahrus, Sami; Craik, Charles S. (01.05.2005). „Selektive chemische Funktionssonden von Granzym A und B zeigen, dass Granzym B ein wichtiger Effektor der natürlichen Killerzellen-vermittelten Lyse von Zielzellen ist“ . Chemistry & Biology . 12 (5): 567–577 . doi : 10.1016/j.chembiol.2005.03.006 . ISSN 1074-5521 . PMID 15911377 .
- ^ Berger, Alicia B.; Witte, Martin D.; Denault, Jean-Bernard; Sadaghiani, Amir Masoud; Sexton, Kelly MB; Salvesen, Guy S.; Bogyo, Matthew (18.08.2006). „Identifizierung früher Zwischenprodukte der Caspase-Aktivierung mittels selektiver Inhibitoren und aktivitätsbasierter Sonden“ . Molecular Cell . 23 (4): 509–521 . doi : 10.1016/j.molcel.2006.06.021 . hdl : 11370/1556432a-189a-4c2e-860e-02c9af08c3ac . ISSN 1097-2765 . PMID 16916639 .
- ^ Sanman, Laura E.; Bogyo, Matthew (2014-06-02). „Aktivitätsbasierte Profilierung von Proteasen“ . Annual Review of Biochemistry . 83 : 249–273 . doi : 10.1146/annurev-biochem-060713-035352 . ISSN 0066-4154 . PMID 24905783 .
- ^ a b Speers AE, Adam GC, Cravatt BF (April 2003). „Aktivitätsbasierte Proteinprofilierung in vivo mittels einer kupfer(I)-katalysierten Azid-Alkin-[3+2]-Cycloaddition“. Journal of the American Chemical Society . 125 (16): 4686–7 . Bibcode : 2003JAChS.125.4686S . doi : 10.1021/ja034490h . PMID 12696868 .
- ^ a b c Weerapana, Eranthie; Wang, Chu; Simon, Gabriel M.; Richter, Florian; Khare, Sagar; Dillon, Myles BD; Bachovchin, Daniel A.; Mowen, Kerri; Baker, David; Cravatt, Benjamin F. (Dezember 2010). „Quantitative Reaktivitätsprofilierung sagt funktionelle Cysteine in Proteomen voraus“ . Nature . 468 ( 7325): 790–795 . Bibcode : 2010Natur.468..790W . doi : 10.1038/nature09472 . ISSN 1476-4687 . PMC 3058684. PMID 21085121 .
- ^ a b Zanon, Patrick RA; Lewald, Lisa; Hacker, Stephan M. (2020). „Isotopisch markierte Desthiobiotin-Azid (isoDTB)-Tags ermöglichen die globale Profilierung des bakteriellen Cysteinoms“ . Angewandte Chemie International Edition . 59 (7): 2829–2836 . Bibcode : 2020ACIE...59.2829Z . doi : 10.1002 / anie.201912075 . ISSN 1521-3773 . PMC 7027453. PMID 31782878 .
- ^ Speers, Anna E.; Cravatt, Benjamin F. (01.04.2004). „Profilierung von Enzymaktivitäten in vivo mittels Click-Chemie“ . Chemistry & Biology . 11 (4): 535–546 . doi : 10.1016/j.chembiol.2004.03.012 . ISSN 1074-5521 . PMID 15123248 .
- ^ Speers, Anna E.; Cravatt, Benjamin F. (2009). Aktivitätsbasierte Proteinprofilierung (ABPP) und Click-Chemie (CC)–ABPP mittels MudPIT-Massenspektrometrie . Band 1, S. 29–41 . doi : 10.1002 /9780470559277.ch090138 . ISSN 2160-4762 . PMC 3119539. PMID 21701697 .
{{cite book}}:|journal=ignoriert ( Hilfe ) - ^ van Esbroeck, Annelot CM; Janssen, Antonius PA; Cognetta, Armand B.; Ogasawara, Daisuke; Shpak, Guy; van der Kroeg, Mark; Kantae, Vasudev; Baggelaar, Marc P.; de Vrij, Femke MS; Deng, Hui; Allarà, Marco; Fezza, Filomena; Lin, Zhanmin; van der Wel, Tom; Soethoudt, Marjolein (09.06.2017). „Aktivitätsbasiertes Proteinprofiling deckt Off-Target-Proteine des FAAH-Inhibitors BIA 10-2474 auf“ . Wissenschaft . 356 (6342): 1084–1087 . Bibcode : 2017Sci...356.1084V . doi : 10.1126/science.aaf7497 . PMC 5641481 . PMID 28596366 .
- ^ Chen, Xiao; Wong, Yin Kwan; Wang, Jigang; Zhang, Jianbin; Lee, Yew-Mun; Shen, Han-Ming; Lin, Qingsong; Hua, Zi-Chun (2017). „Zielidentifizierung mit quantitativer aktivitätsbasierter Proteinprofilierung (ABPP)“ . Proteomik . 17 ( 3–4 ) 1600212. doi : 10.1002/pmic.201600212 . ISSN 1615-9861 . PMID 27723264 .
- ^ Lanning, Bryan R.; Whitby, Landon R.; Dix, Melissa M.; Douhan, John; Gilbert, Adam M.; Hett, Erik C.; Johnson, Theodore O.; Joslyn, Chris; Kath, John C.; Niessen, Sherry; Roberts, Lee R.; Schnute, Mark E.; Wang, Chu; Hulce, Jonathan J.; Wei, Baoxian (September 2014). „ Ein Leitfaden zur Bewertung der proteomweiten Selektivität kovalenter Kinaseinhibitoren“ . Nature Chemical Biology . 10 (9): 760–767 . doi : 10.1038/nchembio.1582 . ISSN 1552-4469 . PMC 4138289. PMID 25038787 .
- ^ Burton, Nikolas R.; Backus, Keriann M. (10.04.2024). „Funktionalisierung von Tandem-Massentags zur Optimierung der Click-basierten quantitativen Chemoproteomik“ . Communications Chemistry . 7 (1): 80. Bibcode : 2024CmChe...7...80B . doi : 10.1038/s42004-024-01162- x . ISSN 2399-3669 . PMC 11006884. PMID 38600184 .
- ^ Blum, Galia; von Degenfeld, Georges; Merchant, Milton J.; Blau, Helen M.; Bogyo, Matthew (Oktober 2007). „Nichtinvasive optische Bildgebung der Cysteinproteaseaktivität mittels fluoreszenzgelöschter, aktivitätsbasierter Sonden“ . Nature Chemical Biology . 3 (10): 668–677 . doi : 10.1038/nchembio.2007.26 . ISSN 1552-4469 . PMID 17828252 .
- ^ Deng, Hui; Lei, Qian; Wu, Yangping; He, Yang; Li, Weimin (2020). „Aktivitätsbasiertes Proteinprofiling: Jüngste Fortschritte in der medizinischen Chemie“. European Journal of Medicinal Chemistry . 191 112151. doi : 10.1016/j.ejmech.2020.112151 . PMID 32109778 .
- ^ Edgington, Laura E.; Verdoes, Martijn; Bogyo, Matthew (01.12.2011). „Funktionelle Bildgebung von Proteasen: Aktuelle Fortschritte im Design und der Anwendung substrat- und aktivitätsbasierter Sonden“ . Current Opinion in Chemical Biology . Molecular Imaging. 15 (6): 798–805 . doi : 10.1016/ j.cbpa.2011.10.012 . ISSN 1367-5931 . PMC 3237724. PMID 22098719 .
- ^ Puri, Aaron W.; Broz, Petr; Shen, Aimee; Monack, Denise M.; Bogyo, Matthew (September 2012). „Caspase-1-Aktivität ist erforderlich , um die Makrophagen-Apoptose nach einer Salmonella-Infektion zu umgehen“ . Nature Chemical Biology . 8 (9): 745–747 . doi : 10.1038/nchembio.1023 . ISSN 1552-4469 . PMC 3461347. PMID 22797665 .