Candida albicans is an opportunistic pathogenic yeast[5] that is a common member of the human gut flora. It can also survive outside the human body.[6][7] It is detected in the gastrointestinal tract and mouth in 40–60% of healthy adults.[8][9] It is usually a commensal organism, but it can become pathogenic in immunocompromised individuals under a variety of conditions.[9][10] It is one of the few species of the genus Candida that cause the human infection candidiasis, which results from an overgrowth of the fungus.[9][10] Candidiasis is, for example, often observed in HIV-infected patients.[11]C. albicans is the most common fungal species isolated from biofilms either formed on (permanent) implanted medical devices or on human tissue.[12][13]C. albicans, C. tropicalis, C. parapsilosis, and C. glabrata are together responsible for 50–90% of all cases of candidiasis in humans.[10][14][15] A mortality rate of 40% has been reported for patients with systemic candidiasis due to C. albicans.[16] By one estimate, invasive candidiasis contracted in a hospital causes 2,800 to 11,200 deaths yearly in the US.[14]
Candida albicans wird häufig als Modellorganismus für pathogene Pilze verwendet. [ 17 ] Er wird allgemein als dimorpher Pilz bezeichnet, da er sowohl als Hefe als auch als filamentöse Zelle wächst . Allerdings weist er verschiedene morphologische Phänotypen auf, darunter opake, GUT- und pseudohyphale Formen. [ 18 ] [ 19 ] Lange Zeit galt C. albicans als obligat diploider Organismus ohne haploides Stadium. Dies trifft jedoch nicht zu. Neben einem haploiden Stadium kann C. albicans auch in einem tetraploiden Stadium existieren. Letzteres entsteht durch die Paarung diploider C. albicans -Zellen in der opaken Form. [ 20 ] Die Größe des diploiden Genoms beträgt etwa 29 Mb, und bis zu 70 % der proteinkodierenden Gene sind noch nicht charakterisiert. [ 21 ] Candida albicans lässt sich leicht im Labor kultivieren und kann sowohl in vivo als auch in vitro untersucht werden . Je nach Nährmedium sind unterschiedliche Untersuchungen möglich, da das Medium den morphologischen Zustand von C. albicans beeinflusst . Ein spezielles Nährmedium ist CHROMagar Candida , mit dem verschiedene Candida- Arten identifiziert werden können . [ 22 ] [ 23 ]
Etymologie
„ Candida albicans “ kann als Tautologie gelesen werden . „ Candida “ stammt vom lateinischen Wort „ candidus “ ab, was „strahlend weiß“ bedeutet. „ Albicans “ selbst ist das Partizip Präsens des lateinischen Wortes „ albicō “, was „weiß werdend“ bedeutet. Dies führt zu einer möglichen Interpretation als der redundanten Formulierung „reinweiß wird weiß“.
Es wird oft kurz als Soor, Candidiasis oder Candida bezeichnet. Mehr als hundert Synonyme wurden verwendet, um C. albicans zu beschreiben . [ 2 ] [ 24 ] Über 200 Arten wurden innerhalb der Gattung Candida beschrieben. Die älteste Erwähnung von Soor, höchstwahrscheinlich verursacht durch C. albicans , stammt aus dem Jahr 400 v. Chr. und findet sich in Hippokrates ' Werk „De epidemicas“, in dem er orale Candidiasis beschreibt. [ 2 ] [ 25 ]
Genom


Das Genom von Candida albicans ist haploid fast 16 Mb groß (diploid 28 Mb) und besteht aus acht Chromosomenpaaren: chr1A, chr2A, chr3A, chr4A, chr5A, chr6A, chr7A und chrRA. Die Chromosomenpaare des zweiten Satzes ( C. albicans ist diploid) tragen ähnliche Namen, jedoch mit einem angehängten „B“: chr1B, chr2B, ... und chrRB. Das gesamte Genom enthält 6.198 offene Leserahmen (ORFs). Siebzig Prozent dieser ORFs sind noch nicht charakterisiert. Die vollständige Sequenzierung des Genoms macht Candida albicans zu einem der ersten Pilze, dessen Genom vollständig sequenziert wurde (neben Saccharomyces cerevisiae und Schizosaccharomyces pombe ). [ 11 ] [ 21 ] Alle offenen Leserahmen (ORFs) sind auch in Gateway-adaptierten Vektoren verfügbar . Zusätzlich zu diesem ORFeom steht eine GRACE-Bibliothek (Genersatz und konditionelle Expression) zur Verfügung, um essentielle Gene im Genom von C. albicans zu untersuchen . [ 26 ] [ 27 ] Die am häufigsten verwendeten Stämme zur Untersuchung von C. albicans sind WO-1 und SC5314. Der Stamm WO-1 wechselt bekanntermaßen häufiger zwischen einer weißen und einer opaken Form, während der Stamm SC5314 als Referenzstamm für die Gensequenz verwendet wird. [ 28 ]
Eine der wichtigsten Eigenschaften des C. albicans- Genoms ist seine hohe Heterozygotie. Diese Heterozygotie beruht auf numerischen und strukturellen Chromosomenumlagerungen und -veränderungen, die durch Chromosomenlängenpolymorphismen (Verkürzung/Verlängerung von Repeats), reziproke Translokationen , Chromosomen- Deletionen , nicht-synonyme Einzelnukleotid-Polymorphismen und Trisomie einzelner Chromosomen zur genetischen Diversität beitragen. Diese karyotypischen Veränderungen führen zu Veränderungen des Phänotyps, was eine Anpassungsstrategie dieses Pilzes darstellt. Mit der Verfügbarkeit der vollständigen Genomanalyse von C. albicans werden diese Mechanismen weiter erforscht . [ 29 ] [ 30 ] [ 31 ]
Eine Besonderheit der Gattung Candida ist, dass in vielen ihrer Arten (darunter C. albicans und C. tropicalis , aber beispielsweise nicht C. glabrata ) das CUG- Codon , das normalerweise Leucin codiert, in diesen Arten Serin codiert. Dies ist ein ungewöhnliches Beispiel für eine Abweichung vom Standard -Genetischen Code ; die meisten dieser Abweichungen betreffen Startcodons oder, bei Eukaryoten , mitochondriale Gencodes . [ 32 ] [ 33 ] [ 34 ] Diese Veränderung kann in bestimmten Umgebungen diesen Candida- Arten helfen, indem sie eine permanente Stressreaktion auslöst, eine allgemeinere Form der Hitzeschockreaktion . [ 35 ] Diese abweichende Codonverwendung erschwert jedoch die Untersuchung von Protein-Protein-Interaktionen von C. albicans im Modellorganismus S. cerevisiae . Um dieses Problem zu lösen, wurde ein C. albicans -spezifisches Zwei-Hybrid-System entwickelt. [ 36 ]
Das Genom von C. albicans ist aufgrund der unterschiedlichen Translation des CUG-Gens hochdynamisch. Diese Variabilität wurde für molekularepidemiologische und populationsbiologische Studien an dieser Spezies vorteilhaft genutzt. Die Genomsequenz ermöglichte die Identifizierung eines parasexuellen Zyklus (ohne nachweisbare meiotische Teilung ) in C. albicans . [ 37 ] Eine Studie zur Evolution der sexuellen Fortpflanzung in sechs Candida -Arten fand kürzliche Verluste von Komponenten des Hauptwegs der meiotischen Crossover-Bildung, jedoch den Erhalt eines Nebenwegs. [ 37 ] Die Autoren vermuteten, dass Candida- Arten, falls sie Meiose durchlaufen, dies mit einem reduzierten oder veränderten Mechanismus tun, und wiesen darauf hin, dass in vielen Arten unerkannte meiotische Zyklen existieren könnten. In einer weiteren Evolutionsstudie führte die Einführung einer partiellen Neudefinition der CUG-Identität (aus Candida -Arten) in Saccharomyces cerevisiae -Klone zu einer Stressreaktion, die die sexuelle Fortpflanzung negativ beeinflusste. Diese Neudefinition der CUG-Identität, die bei Vorfahren der Candida -Arten auftrat, führte vermutlich dazu, dass diese Arten in einem diploiden oder polyploiden Zustand fixiert wurden, was möglicherweise die sexuelle Fortpflanzung blockierte. [ 38 ]
Morphologie
Candida albicans weist aufgrund von Phänotypwechseln und dem Übergang von der Spross- zur Hyphenform eine große Bandbreite morphologischer Phänotypen auf . Der Übergang von der Hefe- zur Hyphenform (Filamentbildung) ist ein schneller, durch Umweltfaktoren induzierter Prozess. Phänotypwechsel erfolgen spontan, jedoch langsamer; bei bestimmten Stämmen sind bis zu sieben verschiedene Phänotypen bekannt. Der am besten untersuchte Wechselmechanismus ist der Übergang von weiß zu opak (ein epigenetischer Prozess). Weitere Systeme wurden ebenfalls beschrieben. Zwei Systeme (das Hochfrequenz-Wechselsystem und der Übergang von weiß zu opak) wurden von David R. Soll und Kollegen entdeckt. [ 39 ] [ 40 ] Der Wechsel in C. albicans wird häufig, aber nicht immer, durch Umweltbedingungen wie den CO₂-Gehalt, anaerobe Bedingungen, das verwendete Medium und die Temperatur beeinflusst . [ 41 ] In seiner Hefeform erreicht C. albicans eine Größe von 10 bis 12 Mikrometern . [ 42 ] Auf den Pseudohyphen können sich Sporen bilden, sogenannte Chlamydosporen , die auch unter ungünstigen Bedingungen wie Trockenheit oder Hitze überleben können. [ 43 ]

Hefe-zu-Hyphen-Umstellung
Obwohl Candida albicans oft als dimorph bezeichnet wird , ist es tatsächlich polyphenisch (oft auch als pleomorph bezeichnet ). [ 44 ] In Standard-Hefekulturmedium wächst C. albicans als ovale „Hefezellen“. Geringfügige Veränderungen der Umgebungsbedingungen wie Temperatur, CO₂- Gehalt , Nährstoffe und pH-Wert können jedoch zu einem morphologischen Wechsel hin zu filamentösem Wachstum führen. [ 45 ] [ 46 ] Filamentöse Zellen weisen viele Ähnlichkeiten mit Hefezellen auf. Beide Zelltypen scheinen eine spezifische Rolle für das Überleben und die Pathogenität von C. albicans zu spielen . Hefezellen scheinen besser für die Ausbreitung im Blutkreislauf geeignet zu sein, während Hyphenzellen als Virulenzfaktor gelten. Hyphenzellen sind invasiv und spielen vermutlich eine wichtige Rolle für das Eindringen in Gewebe, die Besiedlung von Organen sowie das Überleben und Entkommen vor Makrophagen. [ 47 ] [ 48 ] [ 49 ] Der Übergang von Hefezellen zu Hyphenzellen gilt als einer der Schlüsselfaktoren für die Virulenz von C. albicans ; er wird jedoch nicht als notwendig erachtet. [ 50 ] Werden C. albicans -Zellen in einem Medium kultiviert, das die physiologische Umgebung eines menschlichen Wirts nachahmt, wachsen sie als fadenförmige Zellen (sowohl echte Hyphen als auch Pseudohyphen). C. albicans kann auch Chlamydosporen bilden , deren Funktion noch unbekannt ist. Es wird jedoch vermutet, dass sie eine Rolle beim Überleben in widrigen Umgebungen spielen, da sie meist unter ungünstigen Bedingungen gebildet werden. [ 51 ]
Die cAMP-PKA-Signalkaskade ist entscheidend für die Morphogenese, und EFG1 ist ein wichtiger Transkriptionsregulator für den Übergang von hefeartigen Zellen zu filamentösen Zellen. [ 52 ] [ 53 ]


Hochfrequenzschaltung
Neben dem gut untersuchten Übergang von der Hefe- zur Hyphenphase wurden weitere Schaltsysteme beschrieben. [ 54 ] Ein solches System ist das „Hochfrequenz-Schaltsystem“. Während dieses Schaltvorgangs entstehen spontan unterschiedliche Zellmorphologien ( Phänotypen ). Diese Art des Schaltens tritt nicht massenhaft auf, stellt ein Variabilitätssystem dar und erfolgt unabhängig von den Umweltbedingungen. [ 41 ] Der Stamm 3153A bildet mindestens sieben verschiedene Koloniemorphologien aus. [ 55 ] [ 40 ] [ 56 ] Bei vielen Stämmen wandeln sich die verschiedenen Phasen mit geringer Frequenz spontan ineinander um. Der Schaltvorgang ist reversibel, und der Kolonietyp kann von einer Generation zur nächsten vererbt werden. Die Fähigkeit, so viele verschiedene (morphologische) Phänotypen zu durchlaufen, ermöglicht es C. albicans , in unterschiedlichen Umgebungen sowohl als Kommensale als auch als Pathogen zu wachsen. [ 57 ]
Im Stamm 3153A wurde ein Gen namens SIR2 (für Silent Information Regulator) gefunden, das offenbar für den Phänotypwechsel wichtig ist. [ 58 ] [ 59 ] SIR2 wurde ursprünglich in Saccharomyces cerevisiae (Brauhefe) entdeckt, wo es an der chromosomalen Inaktivierung beteiligt ist – einer Form der Transkriptionsregulation , bei der Genombereiche durch Veränderungen der Chromatin- Struktur (Chromatin ist der Komplex aus DNA und Proteinen, aus denen Chromosomen bestehen ) reversibel inaktiviert werden. In Hefe befinden sich Gene, die an der Kontrolle des Paarungstyps beteiligt sind, in diesen stillgelegten Bereichen, und SIR2 unterdrückt deren Expression, indem es in diesem Bereich eine inaktivierungsfähige Chromatin-Struktur aufrechterhält. [ 60 ] Die Entdeckung eines an Phänotypwechseln beteiligten SIR2 in C. albicans legt nahe, dass auch dieser Organismus stillgelegte Bereiche besitzt, die von SIR2 kontrolliert werden und in denen sich die phänotypspezifischen Gene befinden könnten. Wie SIR2 selbst in S. cerevisiae reguliert wird, könnte noch weitere Hinweise auf die Schaltmechanismen von C. albicans liefern .
Weiß-undurchsichtiges Umschalten
Neben dem Dimorphismus und dem ersten beschriebenen Hochfrequenz-Umschaltsystem durchläuft C. albicans einen weiteren Hochfrequenz-Umschaltprozess, den sogenannten Weiß-Opak-Wechsel. Dieser stellt einen weiteren phänotypischen Umschaltprozess bei C. albicans dar und war das zweite entdeckte Hochfrequenz-Umschaltsystem . [ 39 ] Der Weiß-Opak-Wechsel ist ein epigenetisches Umschaltsystem. [ 61 ] Der Begriff „phänotypischer Wechsel“ wird häufig synonym für den Weiß-Opak-Wechsel verwendet. Dieser besteht aus zwei Phasen: einer Phase, in der die Zellen rund sind und glatte, weiße Kolonien bilden (weiße Form), und einer Phase, in der sie stäbchenförmig sind und flache, graue Kolonien bilden (opake Form). Dieser Wechsel zwischen weißen und opaken Zellen ist wichtig für die Virulenz und den Paarungsprozess von C. albicans , da die opake Form die paarungsfähige Form ist und sich millionenfach effizienter fortpflanzen kann als die weiße Form. [ 61 ] [ 62 ] [ 63 ] Dieser Wechsel zwischen weißer und opaker Form wird durch den Regulator WOR1 (White to Opaque Regulator 1) reguliert, dessen Expression durch den Repressor des Paarungstyp- Locus (MTL) (α1-α2) gehemmt wird. [ 64 ] Neben der weißen und der opaken Phase existiert ein dritter Phänotyp: der graue. Dieser Phänotyp weist die höchste Fähigkeit zur Auslösung von Hautinfektionen auf. Die weißen, opaken und grauen Phänotypen bilden ein System des phänotypischen Umschaltvorgangs, in dem weiße Zellen zwischen der opaken und der grauen Phase wechseln können, weiße Zellen irreversibel in die graue Phase übergehen können und sowohl weiße als auch graue Zellen zwischen der opaken bzw. einer opaken Phase wechseln können. [ 57 ] [ 65 ] Da die Unterscheidung zwischen weißen, opaken und grauen Zellen oft schwierig ist, kann dem Medium der Farbstoff Phloxin B zugesetzt werden. [ 57 ]
Ein potenzielles regulatorisches Molekül beim Übergang von weißen zu undurchsichtigen Zellen ist Efg1p , ein Transkriptionsfaktor des WO-1-Stamms, der den Dimorphismus reguliert und neuerdings auch als möglicher Regulator des Phänotypwechsels diskutiert wird. Efg1p wird ausschließlich in weißen, nicht aber in grauen Zellen exprimiert, und eine Überexpression von Efg1p in der grauen Form führt zu einer raschen Umwandlung in die weiße Form. [ 66 ] [ 67 ] [ 65 ]
Umweltstress
Glukosemangel ist wahrscheinlich ein häufiger Umweltstressfaktor, dem C. albicans in seinem natürlichen Lebensraum ausgesetzt ist. [ 68 ] Glukosemangel führt zu einem Anstieg reaktiver Sauerstoffspezies in den Zellen . Dieser Stress kann zur Paarung zweier Individuen desselben Paarungstyps führen, eine Interaktion, die unter Stressbedingungen in der Natur häufig vorkommen kann. [ 68 ]
White-GUT-Schalter
Ein ganz besonderer Phänotypwechsel ist der Wechsel von weißen zu Darmzellen (gastrointestinal induzierter Übergang). Darmzellen sind durch metabolische Anpassungen an die im Verdauungstrakt verfügbaren Nährstoffe optimal an das Überleben im Verdauungstrakt angepasst. Sie leben als Kommensalen und verdrängen andere Phänotypen. Der Übergang von weißen zu Darmzellen wird durch die Darmpassage ausgelöst, wobei Umweltfaktoren diesen Übergang durch eine erhöhte WOR1-Expression induzieren. [ 69 ] [ 70 ]
Rolle bei der Krankheit
Candida kommt weltweit vor, befällt aber am häufigsten immungeschwächte Personen mit schweren Erkrankungen wie HIV und Krebs. Candida zählt zu den häufigsten Erregern von Krankenhausinfektionen . Besonders gefährdet sind Patienten nach Operationen, Transplantationen oder auf Intensivstationen [ 71 ] . Infektionen mit C. albicans sind die häufigste Ursache für Pilzinfektionen bei schwerkranken oder anderweitig immungeschwächten Patienten [72]. Diese Patienten entwickeln überwiegend oropharyngeale Candidiasis (Soor), die zu Mangelernährung führen und die Medikamentenaufnahme beeinträchtigen kann [ 73 ] . Die Übertragung erfolgt von der Mutter auf das Kind während der Geburt, durch direkten Kontakt von Mensch zu Mensch, vor allem im Krankenhaus, wo sich immungeschwächte Patienten bei medizinischem Personal anstecken (Inzidenzrate: 40 %). Eine Ansteckung ist auch durch Geschlechtsverkehr mit einer Frau möglich, die bereits eine vaginale Pilzinfektion hat. [ 71 ] Häufig betroffene Körperteile sind Haut, Genitalien, Rachen, Mund und Blut. [ 74 ] Zu den charakteristischen Merkmalen einer vaginalen Infektion gehören Ausfluss sowie ein trockenes und gerötetes Aussehen der Vaginalschleimhaut oder -haut. Candida ist weiterhin der vierthäufigste Erreger bei Blutstrominfektionen. [ 75 ] Gesunde Menschen leiden in der Regel nicht (schwer) unter oberflächlichen Infektionen, die durch eine lokale Veränderung der zellulären Immunität verursacht werden, wie sie beispielsweise bei Asthmapatienten unter oraler Kortikosteroidtherapie auftreten.
Oberflächliche und lokale Infektionen
Sie tritt häufig als oberflächliche Infektion der Schleimhäute in Mund oder Vagina auf. Etwa 75 % der Frauen erkranken im Laufe ihres Lebens mindestens einmal an Vulvovaginalkandidose (VVC) , und in etwa 90 % dieser Fälle wird Candida albicans verursacht . Auch andere Körperregionen können betroffen sein . So wurde beispielsweise eine höhere Prävalenz der C. -albicans -Besiedlung bei jungen Menschen mit Zungenpiercing im Vergleich zu nicht gepiercten, altersgleichen Personen festgestellt [ 76 ] , nicht jedoch bei gesunden jungen Menschen mit intraoralen kieferorthopädischen Apparaturen aus Acryl [ 77 ] . Um Wirtsgewebe zu infizieren, reagiert die üblicherweise einzellige, hefeartige Form von C. albicans auf Umweltreize und wandelt sich in eine invasive, mehrzellige, filamentöse Form um – ein Phänomen, das als Dimorphismus bezeichnet wird [ 78 ] . Eine übermäßige Vermehrung von C. albicans wird als Superinfektion bezeichnet. Dieser Begriff wird üblicherweise verwendet, wenn eine Infektion opportunistisch wird und eine hohe Resistenz gegenüber Antimykotika entwickelt . Sie lässt sich dann durch Antibiotika unterdrücken. Die Infektion verlängert sich, wenn der ursprünglich empfindliche Stamm durch den antimykotikaresistenten Stamm ersetzt wird. [ 79 ]
Candidiasis ist bekannt dafür, gastrointestinale (GI) Symptome zu verursachen, insbesondere bei immungeschwächten Patienten oder solchen, die Steroide (z. B. zur Behandlung von Asthma ) oder Antibiotika einnehmen. Jüngste Forschungsergebnisse deuten darauf hin, dass eine Pilzüberwucherung im Dünndarm auch bei immunkompetenten Personen zu unerklärlichen GI-Symptomen führen kann. Die Dünndarmpilzüberwucherung (SIFO) ist durch eine übermäßige Anzahl von Pilzorganismen im Dünndarm gekennzeichnet und geht mit gastrointestinalen Symptomen einher. Die häufigsten Symptome bei diesen Patienten sind Aufstoßen, Blähungen, Verdauungsstörungen, Übelkeit, Durchfall und Blähbauch. Die zugrunde liegenden Mechanismen, die zu SIFO prädisponieren, sind unklar. Weitere Studien sind erforderlich, um diese Beobachtungen zu bestätigen und die klinische Relevanz der Pilzüberwucherung zu untersuchen. [ 9 ] [ 10 ] [ 80 ]
Systemische Infektionen
Systemische Pilzinfektionen ( Fungämien ), einschließlich solcher durch Candida albicans, haben sich zu wichtigen Ursachen für Morbidität und Mortalität bei immungeschwächten Patienten (z. B. AIDS , Chemotherapie , Organ- oder Knochenmarktransplantation ) entwickelt. C. albicans bildet häufig Biofilme im Körper. Solche Biofilme können sich auf der Oberfläche implantierbarer Medizinprodukte oder Organe bilden. In diesen Biofilmen tritt C. albicans oft zusammen mit Staphylococcus aureus auf . [ 12 ] [ 13 ] [ 81 ] [ 82 ] Solche Infektionen mit mehreren Erregern führen zu einer höheren Mortalität. [ 83 ] Auch nosokomiale Infektionen mit C. albicans stellen ein ernstes Gesundheitsproblem dar. [ 11 ] [ 84 ] Gelangen Candida-Zellen in die Blutbahn, kann es zu einer hohen Mortalität von bis zu 40–60 % kommen. [ 11 ] [ 85 ]
Obwohl Candida albicans die häufigste Ursache für Candidämie ist, ist in den letzten Jahren ein Rückgang der Inzidenz und eine Zunahme der Isolierung von Nicht-albicans- Candida- Arten zu verzeichnen. [ 86 ] Zu den präventiven Maßnahmen gehören eine gute Mundhygiene, ein gesunder Lebensstil mit ausgewogener Ernährung, der umsichtige Einsatz von Antibiotika, die Behandlung infizierter Bereiche sowie das Trockenhalten und Sauberhalten der Haut ohne offene Wunden. [ 87 ] [ 88 ]
Diagnose
Eine US-amerikanische Studie aus dem Jahr 2022 zeigte, dass die meisten Fälle von Candidiasis empirisch behandelt werden (ohne Kultur, bis zum Ergebnis der Kultur oder anhand der Symptome, wenn die Kultur keinen Candida-Nachweis erbrachte), sodass der Subtyp – Candida albicans oder eine andere Candida-Spezies – unbekannt bleibt. [ 89 ] Zur Subtypisierung der Candidiasis kann eine Pilzkultur angelegt werden, gefolgt von einem Keimschlauchtest . Dabei wird eine Probe von Pilzsporen in Tierserum suspendiert und mikroskopisch auf Keimschläuche untersucht . [ 90 ] Weiße oder cremefarbene Kolonien in der Pilzkultur mit positivem Keimschlauchtest deuten stark auf Candida albicans hin . [ 90 ]
 Agarplattenkultur von C. albicans
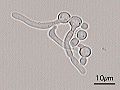 Keimschläuche von Candida albicans
 Gram-Färbung von Candida albicans aus einem Vaginalabstrich; die kleinen, ovalen Chlamydosporen haben einen Durchmesser von 2–4 μm.
 Chromogener Agar kann helfen, die Hauptarten von Candida von ähnlichen Pilzen zu unterscheiden. (Abbildung: CHROMAgar)
 Algorithmus zur Diagnose von Candida albicans im Vergleich zu Differenzialdiagnosen
Behandlung
Es gibt relativ wenige Medikamente, die Candidiasis erfolgreich behandeln können. [ 91 ] [ 92 ] Die Behandlung umfasst üblicherweise: [ 93 ]
- Amphotericin B , Echinocandin oder Fluconazol bei systemischen Infektionen
- Nystatin zur Behandlung von Infektionen im Mund- und Rachenraum
- Clotrimazol zur Behandlung von Haut- und Genitalpilzinfektionen [ 94 ]
Ähnlich wie bei Antibiotikaresistenzen stellt auch die Resistenz gegen viele Antimykotika ein zunehmendes Problem dar. Da nur eine begrenzte Anzahl von Antimykotika zur Verfügung steht, müssen neue entwickelt werden, um diesem Problem zu begegnen. [ 91 ] [ 95 ] Ein generelles Problem besteht darin, dass Pilze im Gegensatz zu Bakterien oft als potenzielles Gesundheitsrisiko übersehen werden. [ 96 ]
Wirtschaftliche Auswirkungen
Da Candidiasis weltweit die viert- bis dritthäufigste im Krankenhaus erworbene Infektion ist, verursacht sie immense finanzielle Kosten. Allein in den USA führen jährlich etwa 60.000 Fälle von systemischer Candidiasis zu Kosten zwischen 2 und 4 Milliarden US-Dollar. [ 97 ] Aufgrund der hohen Prävalenz zählen die Gesamtkosten für Candidiasis zu den höchsten im Vergleich zu anderen Pilzinfektionen. [ 98 ] Die immensen Kosten lassen sich teilweise durch längere Aufenthalte auf der Intensivstation oder im Krankenhaus allgemein erklären. Ein um bis zu 21 Tage verlängerter Aufenthalt im Vergleich zu nicht infizierten Patienten ist keine Seltenheit. [ 99 ]
Biofilmentwicklung
Schritte der Biofilmbildung
Der Biofilm von C. albicans bildet sich in vier Schritten. Zunächst erfolgt die initiale Adhäsion, bei der sich die hefeförmigen Zellen an das Substrat anheften. Im zweiten Schritt, dem Intermediärschritt, vermehren sich die Zellen zu Mikrokolonien und bilden Keimschläuche, aus denen Hyphen entstehen. Im Reifungsschritt wächst die Biofilmmasse, die extrazelluläre Matrix reichert sich an und die Antibiotikaresistenz nimmt zu. Im letzten Schritt der Biofilmbildung werden die hefeförmigen Zellen freigesetzt und besiedeln die Umgebung (Dispersion). Aus einem Biofilm freigesetzte Hefezellen weisen neue Eigenschaften auf, darunter erhöhte Virulenz und Antibiotikaresistenz. [ 100 ] [ 101 ] [ 102 ]
Zap1
Zap1, auch bekannt als Csr1 und Sur1 (Zink-responsives Aktivatorprotein), ist ein Transkriptionsfaktor, der für die Hyphenbildung von C. albicans in Biofilmen benötigt wird. Zap1 reguliert das Gleichgewicht zwischen Hefezellen und Hyphenzellen, den Zinktransportern und zinkregulierten Genen in Biofilmen von C. albicans . [ 103 ]
Zink
Zink (Zn²⁺ ) ist für die Zellfunktion von C. albicans wichtig , und Zap1 reguliert den Zinkspiegel in den Zellen über die Zinktransporter Zrt1 und Zrt2. Die Regulierung der Zinkkonzentration ist für die Zelllebensfähigkeit entscheidend; ein zu hoher Zinkspiegel wirkt toxisch. Zrt1 transportiert Zinkionen mit hoher, Zrt2 hingegen mit niedriger Affinität. [ 104 ]
Mechanismen und Proteine, die für die Pathogenese wichtig sind
Filamentierung
Die Fähigkeit, zwischen Hefezellen und Hyphenzellen zu wechseln, ist ein wichtiger Virulenzfaktor. Zahlreiche Proteine spielen in diesem komplexen Prozess eine Rolle. [ 105 ] Die Bildung von Hyphen kann beispielsweise Candida albicans helfen , Makrophagen im menschlichen Körper zu entkommen. [ 106 ] Darüber hinaus durchläuft C. albicans innerhalb des sauren Makrophagen-Phagosoms einen Übergang von der Hefe- zur Hyphenform. Dies führt zunächst zu einer Dehnung der Phagosomenmembran, die schließlich durch physikalische Ruptur zur Alkalisierung des Phagosoms und anschließend zur Freisetzung führt. [ 107 ]
Hwp1
Hwp1 steht für Hyphenwandprotein 1. Hwp1 ist ein Mannoprotein, das sich auf der Oberfläche der Hyphen in der Hyphenform von C. albicans befindet . Hwp1 ist ein Substrat der Säugetier -Transglutaminase . Dieses Wirtsenzym ermöglicht Candida albicans die stabile Anheftung an Epithelzellen des Wirts. [ 108 ] Die Adhäsion von C. albicans an Wirtszellen ist ein essenzieller erster Schritt im Infektionsprozess für die Kolonisierung und die anschließende Induktion einer Schleimhautinfektion.
Slr1
Das RNA-bindende Protein Slr1 spielt eine Rolle bei der Einleitung der Hyphenbildung und der Virulenz von C. albicans . [ 109 ]
Candidalysin
Candidalysin ist ein zytolytisches 31 Aminosäuren langes α-helikales Peptidtoxin, das von C. albicans während der Hyphenbildung freigesetzt wird. Es trägt zur Virulenz bei Schleimhautinfektionen bei. [ 110 ]
PRA1
Bei vaginalen Infektionen wird das PRA1-Gen (pH-reguliertes Antigen) hochreguliert. Seine Expression korreliert mit der Konzentration proinflammatorischer Zytokine . [ 111 ]
Genetische und genomische Werkzeuge
Aufgrund seiner Eignung als Modellorganismus, seiner Bedeutung als humanpathogener Erreger und der alternativen Codonverwendung (CUG wird in Serin statt in Leucin übersetzt) wurden mehrere spezifische Projekte und Werkzeuge zur Untersuchung von C. albicans entwickelt . [ 11 ] Die diploide Natur und das Fehlen eines sexuellen Zyklus erschweren die Untersuchung des Organismus, doch wurden in den letzten 20 Jahren zahlreiche Systeme zur Erforschung seiner Genetik entwickelt. [ 17 ]
Selektionsmarker
Die am häufigsten verwendeten Selektionsmarker bei C. albicans sind der CaNAT1-Resistenzmarker (verleiht Resistenz gegen Nourseothricin ) und MPAr oder IMH3r (verleiht Resistenz gegen Mycophenolsäure ). [ 112 ] Neben den oben genannten Selektionsmarkern wurden einige auxotrophe Stämme generiert, um mit auxotrophen Markern zu arbeiten. Der URA3- Marker (URA3-Blaster-Methode) ist eine häufig verwendete Strategie bei uridinauxotrophen Stämmen; Studien haben jedoch gezeigt, dass Unterschiede in der URA3-Position im Genom die Pathogenität von C. albicans beeinflussen können . [ 113 ] Neben der URA3-Selektion kann auch die Histidin-, Leucin- und Arginin-Autotrophie genutzt werden. Der Vorteil dieser Autotrophien liegt darin, dass sie im Mausmodell im Vergleich zum URA3-System eine Wildtyp- oder nahezu Wildtyp-Virulenz aufweisen. [ 114 ] Eine Anwendung der Leucin-, Arginin- und Histidin-Autotrophie ist beispielsweise das Candida-Zwei-Hybrid-System. [ 36 ]
Vollständige Genomsequenz
Das vollständige Genom von C. albicans wurde sequenziert und in einer Candida-Datenbank öffentlich zugänglich gemacht . Der für dieses Genomsequenzierungsprojekt verwendete heterozygote diploide Stamm ist der Laborstamm SC5314. Die Sequenzierung erfolgte mittels Whole-Genome-Shotgun-Sequenzierung. [ 115 ]
ORFeome-Projekt
Alle vorhergesagten ORFs wurden in einem Gateway-adaptierten Vektor (pDONR207) erstellt und öffentlich zugänglich gemacht. Die Vektoren ( Plasmide ) können in E. coli vermehrt und auf LB- Medium mit Gentamicin kultiviert werden . Dadurch ist jeder ORF in einem einfach zu handhabenden Vektor leicht verfügbar. Mithilfe des Gateway-Systems kann der gewünschte ORF für weiterführende Untersuchungen in jeden anderen Gateway-adaptierten Vektor transferiert werden. [ 27 ] [ 116 ]
CIp10 integratives Plasmid
Im Gegensatz zu den episomalen Plasmiden der Hefe S. cerevisiae sind diese in C. albicans nicht stabil . Um mit Plasmiden in C. albicans zu arbeiten , ist daher ein integrativer Ansatz (Plasmidintegration in das Genom) erforderlich. Ein weiteres Problem besteht darin, dass die meisten Plasmidtransformationen in C. albicans eher ineffizient sind . Das Plasmid CIp10 umgeht diese Probleme jedoch und ermöglicht eine einfache und sehr effiziente Transformation von C. albicans . Es integriert sich in den RP10-Locus, da die Deletion eines RP10-Allels die Lebensfähigkeit und das Wachstum von C. albicans nicht zu beeinträchtigen scheint . Nach der Verfügbarkeit des ursprünglichen Plasmids wurden mehrere Modifikationen vorgenommen. [ 117 ] [ 118 ]
Candida-Zwei-Hybrid-System (C2H)
Aufgrund der abweichenden Codonverwendung von C. albicans ist die Verwendung des üblichen Wirtsorganismus ( Saccharomyces cerevisiae ) für Zwei-Hybrid-Studien weniger praktikabel . Um dieses Problem zu lösen, wurde ein C. albicans Zwei-Hybrid-System (C2H) entwickelt. Der für Leucin, Arginin und Histidin auxotrophe Stamm SN152 diente als Grundlage für dieses System. Es wurde durch Integration eines HIS1-Reportergens, dem fünf LexAOp-Sequenzen vorangestellt sind, angepasst. Im C2H-System enthält das Köderplasmid (pC2HB) die LexA-BD von Staphylococcus aureus , während das Beuteplasmid (pC2HP) das virale AD VP16 trägt. Beide Plasmide sind integrative Plasmide, da episomale Plasmide in C. albicans nicht stabil sind . Das im System verwendete Reportergen ist das HIS1- Gen. Durch die Aktivierung des Reportergens HIS1 können Zellen auf histidinfreiem Medium wachsen, wenn Proteine interagieren . [ 11 ] [ 36 ] Mit diesem System wurden bisher mehrere Interaktionen in einem kleinen Versuchsaufbau nachgewiesen. [ 36 ] [ 119 ] Ein erstes Hochdurchsatz-Screening wurde ebenfalls durchgeführt. [ 120 ] [ 121 ] Interagierende Proteine sind in der BioGRID-Datenbank zu finden . [ 122 ]
Bimolekulare Fluoreszenzkomplementation (BiFC)
Neben dem C2H-System wurde ein BiFC- System zur Untersuchung von Protein-Protein-Interaktionen in C. albicans entwickelt . Mit diesem System können Proteininteraktionen in ihrem natürlichen subzellulären Raum untersucht werden, im Gegensatz zum C2H-System, bei dem die Proteine in den Zellkern verdrängt werden. Mit BiFC lassen sich beispielsweise Proteininteraktionen an der Zellmembran oder der Vakuolenmembran untersuchen. [ 121 ] [ 123 ] [ 124 ]
Mikroarrays
Sowohl DNA- als auch Protein-Microarrays wurden entwickelt, um DNA-Expressionsprofile und die Antikörperproduktion gegen Zellwandproteine von C. albicans bei Patienten zu untersuchen. [ 118 ] [ 125 ]
GRACE-Bibliothek
Mithilfe eines Tetracyclin-regulierbaren Promotorsystems wurde eine GRACE-Bibliothek (Gene Replacement and Conditional Expression) für 1152 Gene erstellt. Durch die Verwendung des regulierbaren Promotors und die Deletion eines Allels des jeweiligen Gens konnten nicht-essentielle und essentielle Gene unterschieden werden. Von den 1152 getesteten Genen erwiesen sich 567 als essentiell. Die Erkenntnisse über essentielle Gene können zur Entdeckung neuer Antimykotika genutzt werden. [ 26 ]
CRISPR/Cas9
CRISPR/Cas9 wurde für die Anwendung in C. albicans adaptiert . [ 126 ] Mit diesem System wurden bereits mehrere Studien durchgeführt. [ 127 ] [ 128 ]
Anwendung im Ingenieurwesen
C. albicans wurde in Kombination mit Kohlenstoffnanoröhren (CNT) verwendet, um stabile, elektrisch leitfähige Bio-Nanokomposit-Gewebematerialien herzustellen, die als Temperatursensorelemente eingesetzt wurden. [ 129 ]
Namhafte C. albicans -Forscher
Siehe auch
- Darmpermeabilität
- Torula-Hefe ( Candida utilis )
- Neugeboreneninfektion
- Codonverwendung
Referenzen
- ^ Candida albicans im NCBI Taxonomy Browser. Archiviert am 15.12.2018 in der Wayback Machine , URL aufgerufen am 26.12.2006.
- ^ a b c Kurtzman CP, Fell JW (1998). Die Hefen, eine taxonomische Studie (4. Aufl.). Elsevier. ISBN 978-0-444-81312-1Die
- ^ McClary DO (Mai 1952). „Faktoren, die die Morphologie von Candida albicans beeinflussen“ . Annals of the Missouri Botanical Garden . 39 (2): 137–164 . Bibcode : 1952AnMBG..39..137M . doi : 10.2307/2394509 . JSTOR 2394509 .
- ^ „Synonymie von Candida albicans“ . speciesfungorum.org . Archiviert vom Original am 8. Dezember 2021. Abgerufen am 8. Dezember 2021 .
- ^ Gow NA, Yadav B (August 2017). „Mikrobenprofil: Candida albicans: ein formveränderlicher, opportunistischer pathogener Pilz des Menschen“ . Microbiology . 163 (8): 1145–1147 . doi : 10.1099/mic.0.000499 . hdl : 2164/12360 . PMID 28809155 .
- ^ Bensasson D, Dicks J, Ludwig JM, Bond CJ, Elliston A, Roberts IN, James SA (Januar 2019). „ Diverse Linien von Candida albicans leben auf alten Eichen“ . Genetics . 211 (1): 277–288 . doi : 10.1534/genetics.118.301482 . PMC 6325710. PMID 30463870 .
- ^ Odds FC (1988). Candida und Candidose: Eine Übersicht und Bibliographie (2. Aufl.). London; Philadelphia: Bailliere Tindall. ISBN 978-0-7020-1265-5Die
- ^ Kerawala C, Newlands C, Hrsg. (2010). Mund-, Kiefer- und Gesichtschirurgie . Oxford: Oxford University Press. S. 446, 447. ISBN 978-0-19-920483-0Die
- ^ a b c d Erdogan A, Rao SS (April 2015). „Pilzüberwucherung im Dünndarm“. Current Gastroenterology Reports . 17 (4) 16. doi : 10.1007/s11894-015-0436-2 . PMID 25786900. S2CID 3098136 .
- Martins N, Ferreira IC, Barros L, Silva S, Henriques M ( Juni 2014). „Candidiasis: prädisponierende Faktoren, Prävention, Diagnose und alternative Behandlung“. Mycopathologia . 177 ( 5–6 ) : 223–240. doi : 10.1007 / s11046-014-9749-1 . hdl : 10198/10147 . PMID 24789109. S2CID 795450. Candida -
Arten und andere Mikroorganismen sind an dieser komplexen Pilzinfektion beteiligt, wobei Candida albicans weiterhin am häufigsten vorkommt. In den letzten zwei Jahrzehnten wurde ein abnormes Pilzwachstum im Magen-Darm-Trakt, den Harnwegen und den Atemwegen beobachtet, nicht nur bei immungeschwächten Patienten, sondern auch im Zusammenhang mit Krankenhausinfektionen und sogar bei gesunden Menschen. Es gibt eine Vielzahl von Ursachen, die zu einer Pilzinfektion beitragen, weshalb die Candidiasis ein gutes Beispiel für ein multifaktorielles Syndrom darstellt.
- ^ a b c d e f Calderone A, Clancy CJ, Hrsg. (2012). Candida und Candidiasis (2. Aufl.). ASM-Presse. ISBN 978-1-55581-539-4Die
- ^ a b Kumamoto CA (Dezember 2002). „Candida-Biofilme“. Current Opinion in Microbiology . 5 (6): 608–611 . doi : 10.1016/s1369-5274(02)00371-5 . PMID 12457706 .
- ^ a b Donlan RM (Oktober 2001). „Biofilmbildung: ein klinisch relevanter mikrobiologischer Prozess“ . Clinical Infectious Diseases . 33 (8): 1387–1392 . Bibcode : 2001CliID..33.1387D . doi : 10.1086/322972 . PMID 11565080 .
- ^ a b Pfaller MA, Diekema DJ (Januar 2007). „Epidemiologie der invasiven Candidiasis: ein anhaltendes Problem der öffentlichen Gesundheit“ . Clinical Microbiology Reviews . 20 (1): 133–163 . doi : 10.1128/CMR.00029-06 . PMC 1797637. PMID 17223626 .
- ^ Schlecht LM, Peters BM, Krom BP, Freiberg JA, Hänsch GM, Filler SG, et al. (Januar 2015). „Systemische Staphylococcus-aureus-Infektion durch Invasion von Candida-albicans-Hyphen in Schleimhautgewebe“ . Microbiology . 161 (Pt 1): 168–181 . doi : 10.1099/mic.0.083485-0 . PMC 4274785. PMID 25332378 .
- ^ Singh R, Chakrabarti A (2017). „Invasive Candidiasis in der südostasiatischen Region“. In: Prasad R (Hrsg.). Candida albicans: Zell- und Molekularbiologie (2. Aufl.). Schweiz: Springer International Publishing AG. S. 27. ISBN 978-3-319-50408-7Die
- ^ a b Kabir MA, Hussain MA, Ahmad Z (2012). „Candida albicans: Ein Modellorganismus zur Untersuchung von Pilzpathogenen“ . ISRN Microbiology . 2012 538694. doi : 10.5402/2012/538694 . PMC 3671685. PMID 23762753 .
- ^ Kadosh D (Dezember 2019). „Regulatorische Mechanismen, die Morphologie und Pathogenese von Candida albicans steuern“ . Current Opinion in Microbiology . 52 : 27–34 . doi : 10.1016/j.mib.2019.04.005 . PMC 6874724. PMID 31129557 .
- Basso V, d'Enfert C, Znaidi S, Bachellier-Bassi S (2019). „Von Genen zu Netzwerken: Die regulatorischen Schaltkreise, die die Morphogenese von Candida albicans steuern“. Fungal Physiology and Immunopathogenesis . Current Topics in Microbiology and Immunology. Band 422. S. 61–99 . doi : 10.1007/82_2018_144 . ISBN 978-3-030-30236-8PMID 30368597 .
- ^ Hickman MA, Zeng G, Forche A, Hirakawa MP, Abbey D, Harrison BD, et al. (Februar 2013). „Der ‚obligate Diploid‘ Candida albicans bildet paarungsfähige Haploide“ . Nature . 494 (7435): 55–59 . Bibcode : 2013Natur.494...55H . doi : 10.1038/nature11865 . PMC 3583542. PMID 23364695 .
- ^ a b „Candida albicans SC5314 Genom-Snapshot/Übersicht“ . www.candidagenome.org . Archiviert vom Original am 16. November 2018. Abgerufen am 27. März 2018 .
- Sevilla MJ, Odds FC (November 1986). „Entwicklung von Candida albicans-Hyphen in verschiedenen Wachstumsmedien – Variationen in Wachstumsraten, Zelldimensionen und Zeitpunkt morphogenetischer Ereignisse“ . Journal of General Microbiology . 132 (11): 3083–3088 . doi : 10.1099/00221287-132-11-3083 . PMID 3305781 .
- Odds FC, Bernaerts R (August 1994). „CHROMagar Candida, ein neues Differenzierungsmedium zur vorläufigen Identifizierung klinisch relevanter Candida-Spezies“ . Journal of Clinical Microbiology . 32 (8): 1923–1929 . doi : 10.1128/JCM.32.8.1923-1929.1994 . PMC 263904. PMID 7989544 .
- ^ Simi V. „Ursprung der Namen von Candida-Arten“ (PDF) . Archiviert (PDF) vom Original am 21.06.2015 . Abgerufen am 17.05.2017 .
- ^ McCool L. „Die Entdeckung und Benennung von Candida albicans“ (PDF) . Archiviert (PDF) vom Original am 05.05.2018 . Abgerufen am 17.05.2017 .
- ^ a b Roemer T, Jiang B, Davison J, Ketela T, Veillette K, Breton A, et al. (Oktober 2003). „Groß angelegte Identifizierung essentieller Gene in Candida albicans und Anwendungen in der Entwicklung antimykotischer Wirkstoffe“. Molecular Microbiology . 50 (1): 167–181 . doi : 10.1046/j.1365-2958.2003.03697.x . PMID 14507372. S2CID 6773779 .
- ^ a b „Candida Community News“ . www.candidagenome.org . Archiviert vom Original am 27. Oktober 2018. Abgerufen am 27. März 2018 .
- ^ „Candida-Stämme“ . www.candidagenome.org . Archiviert vom Original am 27. Oktober 2018. Abgerufen am 27. März 2018 .
- ^ Rustchenko-Bulgac EP (Oktober 1991). „Variationen der elektrophoretischen Karyotypen von Candida albicans“ . Journal of Bacteriology . 173 (20): 6586–6596 . doi : 10.1128/jb.173.20.6586-6596.1991 . PMC 208996. PMID 1917880 .
- Holmes AR, Tsao S, Ong SW, Lamping E, Niimi K, Monk BC et al. (Oktober 2006). „Heterozygotie und funktionelle Allelvariation in den Effluxpumpengenen CDR1 und CDR2 von Candida albicans“. Molecular Microbiology . 62 (1): 170–186 . doi : 10.1111/j.1365-2958.2006.05357.x . PMID 16942600. S2CID 11838673 .
- ^ Jones T, Federspiel NA, Chibana H, Dungan J, Kalman S, Magee BB, et al. (Mai 2004). „ Die diploide Genomsequenz von Candida albicans“ . Proceedings of the National Academy of Sciences of the United States of America . 101 (19): 7329–7334 . Bibcode : 2004PNAS..101.7329J . doi : 10.1073/pnas.0401648101 . PMC 409918. PMID 15123810 .
- Ohama T, Suzuki T, Mori M, Osawa S, Ueda T, Watanabe K, Nakase T (August 1993). „Nicht - universelle Dekodierung des Leucin-Codons CUG in verschiedenen Candida-Arten“ . Nucleic Acids Research . 21 (17): 4039–4045 . doi : 10.1093/nar/21.17.4039 . PMC 309997. PMID 8371978 .
- ^ Arnaud, MB, Costanzo, MC, Inglis, DO, Skrzypek, MS, Binkley, J, Shah, P, Binkley, G, Miyasato, SR, Sherlock, G. „CGD-Hilfe: Nicht-standardmäßige genetische Codes“ . Candida Genome Database . Archiviert vom Original am 1. November 2018. Abgerufen am 30. Oktober 2011 .
- ^ Andrzej (Anjay) Elzanowski und Jim Ostell (7. Juli 2010). „Der alternative nukleare Code der Hefe“ . Die genetischen Codes . Bethesda, Maryland, USA: National Center for Biotechnology Information (NCBI). Archiviert vom Original am 13. Mai 2011. Abgerufen am 30. Oktober 2011 .
- ^ Santos MA, Cheesman C, Costa V, Moradas-Ferreira P, Tuite MF (Februar 1999). „Selektive Vorteile durch Codon-Ambiguität ermöglichten die Evolution eines alternativen genetischen Codes in Candida spp . “ Molecular Microbiology . 31 (3): 937–947 . doi : 10.1046/j.1365-2958.1999.01233.x . PMID 10048036. S2CID 28572737 .
- ^ a b c d Stynen B, Van Dijck P, Tournu H (Oktober 2010). „Ein an das CUG-Codon angepasstes Zwei-Hybrid-System für den pathogenen Pilz Candida albicans“ . Nukleinsäureforschung . 38 (19): e184. doi : 10.1093/nar/gkq725 . PMC 2965261 . PMID 20719741 .
- ^ a b Butler G, Rasmussen MD, Lin MF, Santos MA, Sakthikumar S, Munro CA, et al. (Juni 2009). „Evolution of pathogenicity and sexual reproduction in eight Candida genomes“ . Nature . 459 (7247): 657–662 . Bibcode : 2009Natur.459..657B . doi : 10.1038 / nature08064 . PMC 2834264. PMID 19465905 .
- ^ Silva RM, Paredes JA, Moura GR, Manadas B, Lima-Costa T, Rocha R, et al. (Oktober 2007). „Entscheidende Rollen für eine Veränderung des genetischen Codes in der Evolution der Gattung Candida“ . Das EMBO Journal . 26 (21): 4555–4565 . doi : 10.1038/sj.emboj.7601876 . PMC 2063480 . PMID 17932489 .
- ^ a b Slutsky B, Staebell M, Anderson J, Risen L, Pfaller M, Soll DR (Januar 1987). "„Weiß-opak - Übergang“: Ein zweites Hochfrequenz-Schaltsystem in Candida albicans . Journal of Bacteriology . 169 (1): 189–197 . doi : 10.1128/jb.169.1.189-197.1987 . PMC 211752. PMID 3539914 .
- ^ a b Slutsky B, Buffo J, Soll DR (November 1985). „Hochfrequenter Wechsel der Koloniemorphologie bei Candida albicans“. Science . 230 (4726): 666–669 . Bibcode : 1985Sci...230..666S . doi : 10.1126/science.3901258 . PMID 3901258 .
- ^ a b Soll DR (April 1992). „Hochfrequente Typwechsel bei Candida albicans“ . Clinical Microbiology Reviews . 5 (2): 183–203 . doi : 10.1128/cmr.5.2.183 . PMC 358234. PMID 1576587 .
- ^ Reiss E, DiSalvo A (2018). „Mykologie – Hefen“. In: Hunt RC (Hrsg.). Microbiology and Immunology On-line . Archiviert vom Original am 3. Januar 2021. Abgerufen am 7. September 2020 .
- ^ Foss S (22. Juli 2013). „Candida albicans“ . Archiviert vom Original am 18. November 2023. Abgerufen am 24. Oktober 2017 .
- Staniszewska M, Bondaryk M, Siennicka K, Kurzatkowski W (2012). „Ultrastruktur pleomorpher Formen von Candida albicans: Phasenkontrastmikroskopie, Raster- und Transmissionselektronenmikroskopie“ . Polish Journal of Microbiology . 61 (2): 129–135 . doi : 10.33073/pjm-2012-016 . PMID 23163212 .
- ^ Si H, Hernday AD, Hirakawa MP, Johnson AD, Bennett RJ (März 2013). „Weiße und opake Zellen von Candida albicans durchlaufen unterschiedliche Programme des filamentösen Wachstums“ . PLOS Pathogens . 9 (3) e1003210. doi : 10.1371/journal.ppat.1003210 . PMC 3591317. PMID 23505370 .
- ^ Sudbery PE (August 2011). „Wachstum von Candida albicans-Hyphen“. Nature Reviews Microbiology . 9 (10): 737–748 . doi : 10.1038/nrmicro2636 . PMID 21844880. S2CID 205498076 . Siehe Abbildung 2. Archiviert am 15.12.2018 in der Wayback Machine .
- ^ Sudbery P, Gow N, Berman J (Juli 2004). „Die verschiedenen morphogenen Zustände von Candida albicans“. Trends in Microbiology . 12 (7): 317–324 . Bibcode : 2004TrMic..12..317S . doi : 10.1016/j.tim.2004.05.008 . PMID 15223059 .
- ^ Jiménez-López C, Lorenz MC (2013). „Pilzbedingte Immunflucht in einem Modell der Wirt-Pathogen-Interaktion: Candida albicans versus Makrophagen“ . PLOS Pathogens . 9 (11) e1003741. doi : 10.1371/journal.ppat.1003741 . PMC 3836912. PMID 24278014 .
- ^ Berman J, Sudbery PE (Dezember 2002). „Candida albicans: Eine molekulare Revolution basierend auf Erkenntnissen aus der Hefeforschung“. Nature Reviews Genetics . 3 (12): 918–930 . doi : 10.1038/nrg948 . PMID 12459722. S2CID 29341377 .
- Shareck J, Belhumeur P (August 2011). „Modulation der Morphogenese in Candida albicans durch verschiedene kleine Moleküle“ . Eukaryotic Cell . 10 (8): 1004–1012 . doi : 10.1128/EC.05030-11 . PMC 3165445. PMID 21642508 .
- ^ Staib P, Morschhäuser J (Januar 2007). „Chlamydosporenbildung bei Candida albicans und Candida dubliniensis – ein rätselhaftes Entwicklungsprogramm“. Mycoses . 50 ( 1): 1–12 . doi : 10.1111/j.1439-0507.2006.01308.x . PMID 17302741. S2CID 7387908 .
- ^ Sohn K, Urban C, Brunner H, Rupp S (Januar 2003). „EFG1 ist ein wichtiger Regulator der Zellwanddynamik in Candida albicans, wie durch DNA-Microarrays gezeigt wurde“ . Molecular Microbiology . 47 (1): 89–102 . doi : 10.1046/j.1365-2958.2003.03300.x . PMID 12492856. S2CID 23743789 .
- ^ Shapiro RS, Robbins N, Cowen LE (Juni 2011). „Regulatorische Schaltkreise, die die Pilzentwicklung, Arzneimittelresistenz und Krankheit steuern“ . Microbiology and Molecular Biology Reviews . 75 (2): 213–267 . doi : 10.1128/MMBR.00045-10 . PMC 3122626. PMID 21646428 .
- Soll DR (Januar 2014). „Die Rolle des Phänotypwechsels in der Grundlagenbiologie und Pathogenese von Candida albicans“ . Journal of Oral Microbiology . 6 (2): 895–9 . doi : 10.3402/jom.v6.22993 . PMC 3895265. PMID 24455104 .
- ^ Alby K, JR (November 2009). „Phänotypischer Wechsel oder nicht?: Phänotypischer Wechsel reagiert empfindlich auf multiple Einflüsse bei einem pathogenen Pilz“ . Communicative & Integrative Biology . 2 (6): 509–511 . doi : 10.4161/cib.2.6.9487 . PMC 2829826. PMID 20195457 .
- ^ Vargas K, Wertz PW, Drake D, Morrow B, Soll DR (April 1994). „Unterschiede in der Adhäsion von Candida albicans 3153A-Zellen mit Switch-Phänotypen an Mundschleimhautepithel und Stratum corneum“ . Infection and Immunity . 62 (4): 1328–1335 . doi : 10.1128/IAI.62.4.1328-1335.1994 . PMC 186281. PMID 8132340 .
- ^ a b c Tao L, Du H, Guan G, Dai Y, Nobile CJ, Liang W, et al. (April 2014). „Entdeckung eines tristabilen phänotypischen Schaltsystems mit den Farbumfängen „weiß-grau-opak“ in Candida albicans: Rolle der nicht-genetischen Diversität bei der Wirtsanpassung“ . PLOS Biology . 12 (4) e1001830. doi : 10.1371/journal.pbio.1001830 . PMC 3972085. PMID 24691005 .
- ^ Pérez-Martín J, Uría JA, Johnson AD (Mai 1999). „Phänotypischer Wechsel bei Candida albicans wird durch ein SIR2-Gen kontrolliert“ . The EMBO Journal . 18 (9): 2580–2592 . doi : 10.1093/emboj/18.9.2580 . PMC 1171338. PMID 10228170 .
- ^ Dean L, McEntyre J (24. November 1999). „Wie Candida albicans den Phänotyp ändert – und wieder zurück“ . Coffee Break: Tutorials for NCBI Tools . National Center for Biotechnology Information (USA). Archiviert vom Original am 8. Juli 2022. Abgerufen am 7. Januar 2020 .
- ^ "SIR2 | SGD" . www.yeastgenome.org . Archiviert vom Original am 18.11.2023 . Abgerufen am 7.01.2020 .
- ^ a b Rikkerink EH, Magee BB, Magee PT (Februar 1988). „Übergang vom opaken zum weißen Phänotyp: ein programmierter morphologischer Übergang bei Candida albicans“ . Journal of Bacteriology . 170 (2): 895–899 . doi : 10.1128/jb.170.2.895-899.1988 . PMC 210739. PMID 2828333 .
- ^ Lohse MB, Johnson AD (Dezember 2009). „Weiß-opake Farbumschaltung bei Candida albicans“ . Current Opinion in Microbiology . 12 (6): 650–654 . doi : 10.1016/j.mib.2009.09.010 . PMC 2812476. PMID 19853498 .
- ^ Hnisz D, Tscherner M, Kuchler K (2011). „Morphologische und molekulargenetische Analyse epigenetischer Schaltvorgänge des humanpathogenen Pilzes Candida albicans“. Yeast Genetic Networks . Methods in Molecular Biology. Band 734. S. 303–315 . doi : 10.1007/978-1-61779-086-7_15 . ISBN 978-1-61779-085-0PMID 21468996 .
- ^ Morschhäuser J (August 2010). „Regulation des Weiß-Opak-Übergangs bei Candida albicans“. Medical Microbiology and Immunology . 199 (3): 165–172 . doi : 10.1007/s00430-010-0147-0 . PMID 20390300. S2CID 8770123 .
- ^ a b SLiang SH, Anderson MZ, Hirakawa MP, Wang JM, Frazer C, Alaalm LM, Thomson GJ, Ene IV, Bennett RJ (März 2019). „Hemizygosität ermöglicht einen Mutationsübergang, der die Virulenz und den Kommensalismus von Pilzen steuert“ . Cell Host Microbe . 25 (3): 418–431.e6. doi : 10.1016/j.chom.2019.01.005 . PMC 6624852. PMID 30824263 .
- Sonneborn A, Tebarth B, Ernst JF (September 1999). „Kontrolle des Weiß-Opak-Phänotypwechsels bei Candida albicans durch den morphogenetischen Regulator Efg1p“ . Infection and Immunity . 67 (9): 4655–4660 . doi : 10.1128/IAI.67.9.4655-4660.1999 . PMC 96790. PMID 10456912 .
- ^ Srikantha T, Tsai LK, Daniels K, Soll DR (März 2000). „EFG1-Nullmutanten von Candida albicans wechseln den Phänotyp, können ihn aber nicht vollständig in den Sprosszellen der weißen Phase ausbilden“ . Journal of Bacteriology . 182 (6): 1580–1591 . doi : 10.1128/JB.182.6.1580-1591.2000 . PMC 94455. PMID 10692363 .
- Guan G, Tao L, Yue H, Liang W, Gong J, Bing J et al. (März 2019). „Umweltinduzierte gleichgeschlechtliche Paarung in der Hefe Candida albicans über den Hsf1-Hsp90-Signalweg“ . PLOS Biology . 17 (3) e2006966. doi : 10.1371/ journal.pbio.2006966 . PMC 6415874. PMID 30865631 .
- ^ Pande K, Chen C, Noble SM (September 2013). „Die Passage durch den Säugetierdarm löst einen phänotypischen Wechsel aus, der den Kommensalismus von Candida albicans fördert“ . Nature Genetics . 45 (9): 1088–1091 . doi : 10.1038/ng.2710 . PMC 3758371. PMID 23892606 .
- ^ Noble SM, Gianetti BA, Witchley JN (Februar 2017). „Zelltypwechsel und funktionelle Plastizität von Candida albicans im Säugetierwirt“ . Nature Reviews Microbiology . 15 (2): 96–108 . doi : 10.1038/nrmicro.2016.157 . PMC 5957277. PMID 27867199 .
- ^ a b Brosnahan M (22. Juli 2013). „Candida albicans“ . MicrobeWiki . Kenyon College. Archiviert vom Original am 18. November 2023. Abgerufen am 24. Oktober 2016 .
- ^ Sydnor ER, Perl TM (Januar 2011). „Krankenhaushygiene und Infektionskontrolle in Akutversorgungseinrichtungen“ . Clinical Microbiology Reviews . 24 (1): 141–173 . Bibcode : 2011CliMR..24..141S . doi : 10.1128 / CMR.00027-10 . PMC 3021207. PMID 21233510 .
- ^ Sardi JC, Scorzoni L, Bernardi T, Fusco-Almeida AM, Mendes Giannini MJ (Januar 2013). „Candida-Arten: Aktuelle Epidemiologie, Pathogenität, Biofilmbildung, natürliche Antimykotika und neue Therapieoptionen“ . Journal of Medical Microbiology . 62 (Teil 1): 10–24 . doi : 10.1099/jmm.0.045054-0 . PMID 23180477 .
- ^ Tortora, Funke, Case. Mikrobiologie, eine Einführung. 10. Auflage. Pearson Benjamin Cummings. 2004, 2007, 2010.
- ^ Vazquez J (16.04.2016). „Epidemiologie, Management und Prävention invasiver Candidiasis“ . Medscape.org . Medscape. Archiviert vom Original am 08.03.2014 . Abgerufen am 16.04.2016 .
- ^ Zadik Y, Burnstein S, Derazne E, Sandler V, Ianculovici C, Halperin T (März 2010). „Besiedlung mit Candida: Prävalenz bei immunkompetenten Erwachsenen mit und ohne Zungenpiercing“ . Oral Diseases . 16 (2): 172–175 . doi : 10.1111/j.1601-0825.2009.01618.x . PMID 19732353 .
- ^ Yitschaky O, Katorza A, Zini A, Yitschaky M, Zadik Y (Januar 2016). „Acryl-Retainer für die Kieferorthopädie sind kein Risikofaktor für eine fokale Candida-Kolonisation bei jungen, gesunden Patienten: eine Pilotstudie“. Oral Surgery, Oral Medicine, Oral Pathology and Oral Radiology . 121 (1): 39–42 . doi : 10.1016/j.oooo.2015.10.001 . PMID 26679358 .
- ^ Ryan KJ, Ray CG, Hrsg. (2004). Sherris Medical Microbiology (4. Aufl.). McGraw Hill. ISBN 978-0-8385-8529-0Die
- ^ Tortora GJ (2010). Mikrobiologie: Eine Einführung . San Francisco, CA: Pearson Benjamin Cummings. S. 759 .
- ^ Mukherjee PK, Sendid B, Hoarau G, Colombel JF, Poulain D, Ghannoum MA (Februar 2015). „Mykobiota bei gastrointestinalen Erkrankungen“. Nature Reviews Gastroenterology & Hepatology . 12 (2): 77–87 . doi : 10.1038/nrgastro.2014.188 . PMID 25385227. S2CID 5370536 .
- ^ Peters BM, Jabra-Rizk MA, Scheper MA, Leid JG, Costerton JW, Shirtliff ME (August 2010). „Mikrobielle Interaktionen und differentielle Proteinexpression in Staphylococcus aureus-Candida albicans-Biofilmen mit zwei Spezies“ . FEMS Immunology and Medical Microbiology . 59 (3): 493–503 . doi : 10.1111/j.1574-695X.2010.00710.x . PMC 2936118. PMID 20608978 .
- ^ Jey Lin Y (2013). „Wechselwirkungen zwischen Candida albicans und Staphylococcus aureus in Biofilmen mit gemischten Arten“. BIOS . 84 : 30–39 . doi : 10.1893/0005-3155-84.1.30 .
- ^ Zago CE, Silva S, Sanitá PV, Barbugli PA, Dias CM, Lordello VB, Vergani CE (2015). „Dynamik der Biofilmbildung und die Interaktion zwischen Candida albicans und Methicillin-sensiblen (MSSA) und -resistenten Staphylococcus aureus (MRSA)“ . PLOS ONE . 10 (4) e0123206. Bibcode : 2015PLoSO..1023206Z . doi : 10.1371/ journal.pone.0123206 . PMC 4395328. PMID 25875834 .
- ^ Tortora GJ (2010). Mikrobiologie: Eine Einführung . San Francisco, CA: Pearson Benjamin Cummings. S. 758.
- Weinberger M, Leibovici L, Perez S, Samra Z, Ostfeld I, Levi I, et al. (Oktober 2005). „Charakteristika der Candidämie mit Candida albicans im Vergleich zu anderen Candida-Spezies und Prädiktoren der Mortalität“. The Journal of Hospital Infection . 61 (2): 146–154 . doi : 10.1016/j.jhin.2005.02.009 . PMID 16009456 .
- ^ Yapar N (16.04.2016). „ Epidemiologie und Risikofaktoren für invasive Candidiasis“ . Therapeutics and Clinical Risk Management . 10 : 95–105 . doi : 10.2147/TCRM.S40160 . PMC 3928396. PMID 24611015 .
- ^ „Pilzerkrankungen.“ Centers for Disease Control and Prevention, Centers for Disease Control and Prevention, 12. Juni 2015, www.cdc.gov/fungal/diseases/candidiasis/invasive/diagnosis.html.
- ^ „Hefen“ . www.microbiologybook.org . Archiviert vom Original am 14. März 2018. Abgerufen am 27. März 2018 .
- ^ Eguiguren L, Lee BR, Newland JG, Kronman MP, Hersh AL, Gerber JS, et al. (2022). „Charakteristika der Anwendung von Antimykotika bei hospitalisierten Kindern in den Vereinigten Staaten“ . Antimicrob Steward Healthc Epidemiol . 2 (1) e190. doi : 10.1017/ash.2022.338 . PMC 9726632. PMID 36505943 .
{{cite journal}}: CS1 Wartung: Mehrere Namen: Autorenliste ( Link ) - ^ a b Kapitel IV. Keimschlauchtest in HEFEIDENTIFIZIERUNG. Archiviert am 27.09.2011 im Wayback Machine- Dokument auf doctorfungus.org. Abgerufen im Juli 2011.
- Sellam A, Whiteway M (2016). „ Aktuelle Fortschritte in der Biologie und Virulenz von Candida albicans“ . F1000Research . 5 : 2582. doi : 10.12688 /f1000research.9617.1 . PMC 5089126. PMID 27853524 .
- ^ „Hört auf, Pilze zu vernachlässigen“ . Nature Microbiology . 2 (8) 17120. Juli 2017. Bibcode : 2017NatMb...217120 . doi : 10.1038/nmicrobiol.2017.120 . PMID 28741610 .
- ^ Rambach G, Oberhauser H, Speth C, Lass-Flörl C (November 2011). „Empfindlichkeit von Candida-Arten und verschiedenen Schimmelpilzen gegenüber Antimykotika: Anwendung epidemiologischer Grenzwerte gemäß EUCAST und CLSI in einer 8-jährigen Studie“ . Medical Mycology . 49 (8): 856–863 . doi : 10.3109/13693786.2011.583943 . PMID 21619497 .
- ^ Tortora GJ, Funke BR, Case CL (2002). Microbiology an Introduction (10. Aufl.). San Francisco, CA.: Pearson Benjamin Cummings. S. 759 .
- ^ „Antimykotische Resistenz – Pilzerkrankungen – CDC“ . www.cdc.gov . 26. Juni 2017. Archiviert vom Original am 19. Mai 2017. Abgerufen am 27. März 2018 .
- ^ „Hört auf, Pilze zu vernachlässigen“ . Leitartikel. Nature Microbiology . 2 (8) 17120. Juli 2017. Bibcode : 2017NatMb...217120. doi : 10.1038 /nmicrobiol.2017.120 . PMID 28741610 .
- ^ Uppuluri P, Khan A, Edwards JE (2017). „Aktuelle Trends in der Candidiasis“. In: Prasad R (Hrsg.). Candida albicans: Zell- und Molekularbiologie . Schweiz: Springer International Publishing AG. S. 6. ISBN 978-3-319-50408-7Die
- ^ Wilson LS, Reyes CM, Stolpman M, Speckman J, Allen K, Beney J (2002). „Die direkten Kosten und die Inzidenz systemischer Pilzinfektionen“ . Value in Health . 5 (1): 26–34 . doi : 10.1046/j.1524-4733.2002.51108.x . PMID 11873380 .
- ^ Rentz AM, Halpern MT, Bowden R (Oktober 1998). „Der Einfluss von Candidämie auf die Krankenhausverweildauer, den Krankheitsverlauf und die Gesamtkosten der Erkrankung“ . Clinical Infectious Diseases . 27 (4): 781–788 . doi : 10.1086/514955 . PMID 9798034 .
- ^ McCall AD, Pathirana RU, Prabhakar A, Cullen PJ, Edgerton M (23. August 2019). „ Die Biofilmbildung von Candida albicans wird durch kooperative Anheftungs- und Adhäsionserhaltungsproteine gesteuert . “ npj Biofilms and Microbiomes . 5 (1) 21. doi : 10.1038/s41522-019-0094-5 . PMC 6707306. PMID 31452924 .
- ^ Chandra J, Kuhn DM, Mukherjee PK, Hoyer LL, McCormick T, Ghannoum MA (September 2001). „Biofilmbildung durch den Pilzpathogen Candida albicans: Entwicklung, Architektur und Arzneimittelresistenz“ . Journal of Bacteriology . 183 (18): 5385–5394 . doi : 10.1128/jb.183.18.5385-5394.2001 . PMC 95423. PMID 11514524 .
- ^ Gulati M, Nobile CJ (Mai 2016). „Candida albicans Biofilme: Entwicklung, Regulation und molekulare Mechanismen“ . Microbes and Infection . 18 (5): 310–321 . doi : 10.1016/j.micinf.2016.01.002 . PMC 4860025. PMID 26806384 .
- ^ Finkel JS, Mitchell AP (Februar 2011). „Genetische Kontrolle der Biofilmbildung von Candida albicans“ . Nature Reviews Microbiology . 9 (2): 109–118 . doi : 10.1038/nrmicro2475 . PMC 3891587. PMID 21189476 .
- Claus J, Chavarría-Krauser A (08.06.2012). „Modellierung der Regulation der Zinkaufnahme über ZIP-Transporter in Hefe und Pflanzenwurzeln“ . PLOS ONE . 7 (6) e37193. arXiv : 1202.4335 . Bibcode : 2012PLoSO...737193C . doi : 10.1371/journal.pone.0037193 . PMC 3371047. PMID 22715365 .
- ^ Azadmanesh J, Gowen AM, Creger PE, Schafer ND, Blankenship JR (November 2017). „Filamentbildung umfasst zwei sich überschneidende, aber unterschiedliche Filamentationsprogramme im pathogenen Pilz Candida albicans “ . G3 . 7 (11): 3797–3808 . doi : 10.1534 / g3.117.300224 . PMC 5677161. PMID 28951491 .
- ^ Lorenz MC, Bender JA, Fink GR (Oktober 2004). „Transkriptionelle Antwort von Candida albicans nach Internalisierung durch Makrophagen“ . Eukaryotic Cell . 3 (5): 1076–1087 . doi : 10.1128 / EC.3.5.1076-1087.2004 . PMC 522606. PMID 15470236 .
- ^ Westman J, Moran G, Mogavero S, Hube B, Grinstein S (September 2018). „Candida albicans Hyphenwachstum verursacht Schäden an der Phagosomenmembran und Alkalisierung des Lumens“ . mBio . 9 ( 5) e01226-18: e01226–18. doi : 10.1128/mBio.01226-18 . PMC 6134096. PMID 30206168 .
- ^ Staab JF, Bradway SD, Fidel PL, Sundstrom P (März 1999). „Adhäsive und Substrateigenschaften der Säugetier-Transglutaminase von Candida albicans Hwp1“. Science . 283 (5407): 1535–1538 . Bibcode : 1999Sci...283.1535S . doi : 10.1126/science.283.5407.1535 . PMID 10066176 .
- ^ Ariyachet C, Solis NV, Liu Y, Prasadarao NV, Filler SG, McBride AE (April 2013). „SR-ähnliches RNA-bindendes Protein Slr1 beeinflusst die Filamentbildung und Virulenz von Candida albicans“ . Infection and Immunity . 81 (4): 1267–1276 . doi : 10.1128/IAI.00864-12 . PMC 3639594. PMID 23381995 .
- ^ Wilson D, Naglik JR, Hube B (Oktober 2016). „Das fehlende Bindeglied zwischen der Hyphenmorphogenese von Candida albicans und der Schädigung von Wirtszellen“ . PLOS Pathogens . 12 (10) e1005867. doi : 10.1371/journal.ppat.1005867 . PMC 5072684. PMID 27764260 .
- Roselletti E, Pericolini E, Nore A, Takacs P, Kozma B, Sala A, De Seta F, Comar M, Usher J, Brown GD, Wilson D (06.12.2023). „Zink beugt vaginaler Candidiasis durch Hemmung der Expression eines entzündlichen Pilzproteins vor“ . Science Translational Medicine . 15 (725) eadi3363. doi : 10.1126/scitranslmed.adi3363 . hdl : 10871/134775 . ISSN 1946-6234 . PMC 7616067. PMID 38055800 .
- ^ Shen J, Guo W, Köhler JR (Februar 2005). „CaNAT1, ein heterologer dominanter selektierbarer Marker für die Transformation von Candida albicans und anderen pathogenen Candida-Spezies“ . Infection and Immunity . 73 (2): 1239–1242 . doi : 10.1128 / IAI.73.2.1239-1242.2005 . PMC 547112. PMID 15664973 .
- ^ Cheng S, Nguyen MH, Zhang Z, Jia H, Handfield M, Clancy CJ (Oktober 2003). „Evaluation der Rolle von vier Candida albicans-Genen in der Virulenz mithilfe von Gen-Disruptionsstämmen, die URA3 vom nativen Locus exprimieren“ . Infection and Immunity . 71 (10): 6101–6103 . doi : 10.1128/IAI.71.10.6101-6103.2003 . PMC 201070. PMID 14500538 .
- ^ Noble SM, Johnson AD (Februar 2005). „Stämme und Strategien für groß angelegte Gen-Deletionsstudien des diploiden humanpathogenen Pilzes Candida albicans“ . Eukaryotic Cell . 4 (2): 298–309 . doi : 10.1128 / EC.4.2.298-309.2005 . PMC 549318. PMID 15701792 .
- ^ van het Hoog M, Rast TJ, Martchenko M, Grindle S, Dignard D, Hogues H, et al. (2007). „ Assembly of the Candida albicans genome into sixteen supercontigs aligned on the eight chromosomes“ . Genome Biology . 8 (4) R52. doi : 10.1186/gb-2007-8-4-r52 . PMC 1896002. PMID 17419877 .
- ^ Cabral V, Chauevl M, Firon A, Legrand M, Nesseir A, Bachellier-Bassi S, et al. (2012). „Modulare Genüberexpressionsstrategien für Candida albicans“. In: Brand AC, MacCallum DM (Hrsg.). Wirt-Pilz-Interaktionen . Methoden der Molekularbiologie. Band 845. S. 227–244 . doi : 10.1007/978-1-61779-539-8_15 . ISBN 978-1-61779-538-1PMID 22328378 .
- ^ Chauvel M, Nesseir A, Cabral V, Znaidi S, Goyard S, Bachellier-Bassi S, et al. (2012). „Eine vielseitige Überexpressionsstrategie in der pathogenen Hefe Candida albicans: Identifizierung von Regulatoren der Morphogenese und Fitness“ . PLOS ONE . 7 (9) e45912. Bibcode : 2012PLoSO...745912C . doi : 10.1371/ journal.pone.0045912 . PMC 3457969. PMID 23049891 .
- ^ a b Walker LA, Maccallum DM, Bertram G, Gow NA, Odds FC, Brown AJ (Februar 2009). „Genomweite Analyse der Genexpressionsmuster von Candida albicans während der Infektion der Säugetierniere“ . Fungal Genetics and Biology . 46 (2): 210–219 . doi : 10.1016/j.fgb.2008.10.012 . PMC 2698078. PMID 19032986 .
- ^ Legrand M, Bachellier-Bassi S, Lee KK, Chaudhari Y, Tournu H, Arbogast L, et al. (August 2018). „Generierung genomischer Plattformen zur Untersuchung der Pathogenese von Candida albicans“ . Nucleic Acids Research . 46 (14): 6935–6949 . doi : 10.1093/nar/gky594 . PMC 6101633. PMID 29982705 .
- ^ Schoeters F, Munro CA, d'Enfert C, Van Dijck P (August 2018). „Ein Hochdurchsatz -Zwei-Hybrid-System für Candida albicans“ . mSphere . 3 ( 4 ) e00391-18. doi : 10.1128/mSphere.00391-18 . PMC 6106057. PMID 30135223 .
- ^ a b Schoeters F, Van Dijck P (2019). „Protein-Protein-Wechselwirkungen bei Candida albicans “ . Grenzen in der Mikrobiologie . 10 1792. doi : 10.3389/fmicb.2019.01792 . PMC 6693483 . PMID 31440220 .
- ^ Tyers M. „BioGRID – Datenbank für Protein-, chemische und genetische Interaktionen“ . thebiogrid.org . Archiviert vom Original am 11.09.2017 . Abgerufen am 25.08.2018 .
- ^ Subotić A, Swinnen E, Demuyser L, De Keersmaecker H, Mizuno H, Tournu H, Van Dijck P (Oktober 2017). „Ein bimolekulares Fluoreszenzkomplementationstool zur Identifizierung von Protein-Protein-Wechselwirkungen in Candida albicans “ . G3 . 7 (10): 3509–3520 . doi : 10.1534/g3.117.300149 . PMC 5633398 . PMID 28860184 .
- ^ Mamouei Z, Zeng G, Wang YM, Wang Y (Dezember 2017). „Candida albicans besitzt ein äußerst vielseitiges und dynamisches Eisentransportsystem mit hoher Affinität, das für seinen kommensal-pathogenen Lebensstil von Bedeutung ist . “ Molecular Microbiology . 106 (6): 986–998 . doi : 10.1111/mmi.13864 . PMID 29030877 .
- ^ Mochon AB, Jin Y, Kayala MA, Wingard JR, Clancy CJ, Nguyen MH, et al. (März 2010). „ Serologische Profilierung eines Candida albicans-Protein-Microarrays zeigt permanente Wirt-Pathogen-Interaktionen und stadienspezifische Reaktionen während einer Candidämie“ . PLOS Pathogens . 6 (3) e1000827. doi : 10.1371/journal.ppat.1000827 . PMC 2845659. PMID 20361054 .
- ^ Dean N , Ng H (April 2018). „Methode zur CRISPR/Cas9-Mutagenese in Candida albicans “ . Bio-Protocol . 8 (8) e2814. doi : 10.21769/BioProtoc.2814 . PMC 8275232. PMID 34286028. S2CID 90620202 .
- ^ Vyas VK, Barrasa MI, Fink GR (2015). „Ein CRISPR-System von Candida albicans ermöglicht die genetische Veränderung essentieller Gene und Genfamilien“ . Science Advances . 1 (3) e1500248. Bibcode : 2015SciA....1E0248V . doi : 10.1126/sciadv.1500248 . PMC 4428347. PMID 25977940 .
- ^ Min K, Ichikawa Y, Woolford CA, Mitchell AP (2016). „Candida albicans Gen-Deletion mit einem transienten CRISPR-Cas9-System“ . mSphere . 1 ( 3) e00130-16. doi : 10.1128/mSphere.00130-16 . PMC 4911798. PMID 27340698 .
- ^ Di Giacomo R (2013). „Candida albicans/MWCNTs: Ein stabiler leitfähiger Bio-Nanokomposit und seine temperatursensitiven Eigenschaften“. IEEE Transactions on Nanotechnology . 12 (2): 111–114 . Bibcode : 2013ITNan..12..111D . doi : 10.1109/TNANO.2013.2239308 .


