The Galápagos tortoise (Chelonoidis niger), also called the Galápagos giant tortoise, is a very large species of tortoise in the genusChelonoidis (which also contains three smaller species from mainland South America). The species comprises 15 subspecies (12 extant and 3 extinct). It is the largest living species of tortoise, and can weigh up to 417 kg (919 lb).[2] They are also the largest extant terrestrial cold-blooded animals (ectotherms).[3]
With lifespans in the wild of over 100 years, it is one of the longest-lived vertebrates. Captive Galapagos tortoises can live up to 177 years.[4] For example, a captive individual, Harriet, lived for at least 175 years. Spanish explorers, who discovered the islands in the 16th century, named them after the Spanish galápago, meaning "tortoise".[5]
Galápagos tortoises are native to seven of the Galápagos Islands. Shell size and shape vary between subspecies and populations. On islands with humid highlands and abundant low vegetation, the tortoises are larger, with domed shells and short necks; on islands with dry lowlands and less ground-level vegetation,[6] the tortoises are smaller, with "saddleback" shells and long necks. Charles Darwin's observations of these differences on the second voyage of the Beagle in 1835 contributed to the development of his theory of evolution.

Tortoise numbers declined from over 250,000 in the 16th century to a low of around 15,000 in the 1970s.[7] This decline was caused by overexploitation of the subspecies for meat and oil, habitat clearance for agriculture, and introduction of non-native animals to the islands, such as rats, goats, and pigs. The extinction of most giant tortoise lineages is thought to have also been caused by predation by humans or human ancestors, as the tortoises themselves have no natural predators. Tortoise populations on at least three islands have become extinct in historical times due to human activities. Specimens of these extinct taxa exist in several museums and also are being subjected to DNA analysis. 12 subspecies of the original 14–15 survive in the wild; a 13th subspecies (C. n. abingdonii) had only a single known living individual, kept in captivity and nicknamed Lonesome George until his death in June 2012. Two other subspecies, C. n. niger (the type subspecies of Galápagos tortoise) from Floreana Island and an undescribed subspecies from Santa Fe Island are known to have gone extinct in the mid-late 19th century. Conservation efforts, beginning in the 20th century, have resulted in thousands of captive-bred juveniles being released onto their ancestral home islands, and the total number of the subspecies is estimated to have exceeded 19,000 at the start of the 21st century. Despite this rebound, all surviving subspecies are classified as Threatened by the International Union for Conservation of Nature.
The Galápagos tortoises are one of two insular radiations of giant tortoises that still survive to the modern day; the other is Aldabrachelys gigantea of Aldabra and the Seychelles in the Indian Ocean, 700 km (430 mi) east of Tanzania. While giant tortoise radiations were common in prehistoric times, humans have wiped out the majority of them worldwide; the only other radiation of tortoises to survive to historic times, Cylindraspis of the Mascarenes, was driven to extinction by the 19th century, and other giant tortoise radiations such as a Centrochelys radiation on the Canary Islands and another Chelonoidis radiation in the Caribbean were driven to extinction prior to that.
Taxonomy
Early classification
The Galápagos Islands were discovered in 1535, but first appeared on the maps of Gerardus Mercator and Abraham Ortelius around 1570.[8] The islands were named "Insulae de los Galopegos" (Islands of the Tortoises) in reference to the giant tortoises found there.[9][10][nb 1]
Initially, the giant tortoises of the Indian Ocean and those from the Galápagos were thought to be the same subspecies. Naturalists thought that sailors had transported the tortoises there.[11] In 1676, the pre-Linnaean authority Claude Perrault referred to both subspecies as Tortue des Indes.[12] In 1783, Johann Gottlob Schneider classified all giant tortoises as Testudo indica ("Indian tortoise").[13] In 1812, August Friedrich Schweigger named them Testudo gigantea ("gigantic tortoise").[14] In 1834, André Marie Constant Duméril and Gabriel Bibron classified the Galápagos tortoises as a separate subspecies, which they named Testudo nigrita ("black tortoise").[15]

Recognition of subpopulations
The first systematic survey of giant tortoises was by the zoologist Albert Günther of the British Museum, in 1875.[16] Günther identified at least five distinct populations from the Galápagos, and three from the Indian Ocean islands. He expanded the list in 1877 to six from the Galápagos, four from the Seychelles, and four from the Mascarenes. Günther hypothesized that all the giant tortoises descended from a single ancestral population which had spread by sunken land bridges.[17] This hypothesis was later disproven by the understanding that the Galápagos, the atolls of Seychelles, and the Mascarene islands are all of recent volcanic origin and have never been linked to a continent by land bridges. Galápagos tortoises are now thought to have descended from a South American ancestor,[18] while the Indian Ocean tortoises derived from ancestral populations on Madagascar.[19][20]
Ende des 19. Jahrhunderts erkannten Georg Baur [ 21 ] und Walter Rothschild [ 22 ] [ 23 ] [ 24 ] fünf weitere Populationen der Galápagos-Riesenschildkröte. 1905/06 sammelte eine Expedition der California Academy of Sciences unter der Leitung von Joseph R. Slevin (Reptilienexperte) Exemplare, die vom Herpetologen der Akademie, John Van Denburgh , untersucht wurden . Er identifizierte vier weitere Populationen [ 25 ] und schlug die Existenz von 15 Unterarten vor. [ 26 ] Van Denburghs Liste ist bis heute maßgeblich für die Taxonomie der Galápagos-Riesenschildkröte, obwohl man heute von zehn Populationen ausgeht. [ 27 ]
Aktuelle Arten- und Gattungsnamen
Die heutige Artbezeichnung * niger* (ursprünglich von Quoy & Gaimard 1824 [ 28 ] als *nigra * – „schwarz“ – beschrieben, da sie zur weiblichen Gattung *Testudo* gehörte) wurde 1984 [ 29 ] als gültiger Artname wiederhergestellt, nachdem festgestellt worden war, dass es sich um das ältere Synonym (ein taxonomisches Synonym mit historischer Priorität) des damals gebräuchlichen Unterartnamens * elephantopus * („Elefantenfußschildkröte“ – Harlan , 1827 [ 30 ] ) handelte. Die lateinische Beschreibung von Quoy und Gaimard erklärt die Verwendung von *nigra*: „Testudo toto corpore nigro“ bedeutet „Schildkröte mit vollständig schwarzem Körper“. Quoy und Gaimard beschrieben die Art anhand eines lebenden Exemplars, doch es gibt keine Hinweise darauf, dass sie ihren genauen Fundort innerhalb der Galápagos-Inseln kannten – als Fundort wurde tatsächlich Kalifornien angegeben. Garman schlug vor, die Art mit der ausgestorbenen Unterart *Floreana* zu synonymisieren . [ 31 ] Später hielt Pritchard es für zweckmäßig, diese Bezeichnung trotz ihrer Unsicherheit zu akzeptieren, um die ohnehin schon verwirrende Nomenklatur der Unterart nicht weiter zu stören. Das noch ältere Synonym der Unterart californiana („californian“ – Quoy & Gaimard , 1824 [ 32 ] ) gilt als Nomen oblitum („vergessener Name“). [ 33 ]
Im Großteil des 20. Jahrhunderts wurde die Galápagos-Riesenschildkröte der Gattung Geochelone zugeordnet , die als „typische Landschildkröten“ oder „Landschildkröten“ bekannt ist. In den 1980er Jahren wurde die frühere Untergattung Chelonoidis in den Rang einer eigenständigen Gattung erhoben [ 34 ]. Diese Schlussfolgerung wurde später durch phylogenetische Erkenntnisse gestützt, die die südamerikanischen Vertreter von Geochelone in einen unabhängigen Zweig des Lebensbaums einordneten [ 35 ] . Diese Nomenklatur wurde von mehreren Experten übernommen [ 1 , 27, 36 , 37 ] . Die Namen einiger Arten der Gattung Chelonoidis , einschließlich dieser, wurden häufig falsch geschrieben. Dies begann in den 1980er Jahren, als Chelonoidis in den Gattungsrang erhoben und fälschlicherweise als weiblich statt männlich behandelt wurde – ein Fehler, der 2017 erkannt und korrigiert wurde [ 38 ].
Unterart

Within the archipelago, 14-15 subspecies of Galápagos tortoises have been identified, although only 12 survive to this day. Five are found on separate islands; five of them on the volcanoes of Isabela Island. Several of the surviving subspecies are seriously endangered.[18] A 13th subspecies, C. n. abingdonii from Pinta Island, is extinct since 2012. The last known specimen, named Lonesome George, died in captivity on 24 June 2012; George had been mated with female tortoises of several other subspecies, but none of the eggs from these pairings hatched. The subspecies inhabiting Floreana Island (C. niger)[39] is thought to have been hunted to extinction by 1850,[40][41] only 15 years after Charles Darwin's landmark visit of 1835, when he saw shells, but no live tortoises there.[42] However, recent DNA testing shows that an intermixed, non-native population currently existing on the island of Isabela is of genetic resemblance to the subspecies native to Floreana, suggesting that C. niger has not gone entirely extinct.[39] The existence of the C. n. phantastica subspecies of Fernandina Island was disputed, as it was described from a single specimen that may have been an artificial introduction to the island; however, a live female was found in 2019, likely confirming the subspecies' validity.[43][44][45][46][47]
Prior to widespread knowledge of the differences between the populations (sometimes called races) from different islands and volcanoes, captive collections in zoos were indiscriminately mixed. Fertile offspring resulted from pairings of animals from different races. However, captive crosses between tortoises from different races have lower fertility and higher mortality than those between tortoises of the same race,[48][49] and captives in mixed herds normally direct courtship only toward members of the same race.[49]
The valid scientific names of each of the individual populations are not universally accepted,[50][44][51][52] and some researchers still consider each subspecies to be distinct species.[53][54] Prior to 2021, all subspecies were classified as distinct species from one another, but a 2021 study analyzing the level of divergence within the extinct West Indian Chelonoidis radiation and comparing it to the Galápagos radiation found that the level of divergence within both clades may have been significantly overestimated, and supported once again reclassifying all Galápagos tortoises as subspecies of a single species, C. niger.[55] This was followed by the Turtle Taxonomy Working Group and the Reptile Database later that year.[56][57] The taxonomic status of the various races is not fully resolved.[58]
- Testudo californianaQuoy & Gaimard, 1824a[32] (nomen oblitum)
- Testudo nigraQuoy & Gaimard, 1824b[28] (nomen novum)
- Testudo elephantopusHarlan, 1827[30] (nomen dubium)
- Testudo nigritaDuméril and Bibron, 1834[15] (nomen dubium)
- Testudo planicepsGray, 1853[59] (nomen dubium)
- Testudo clivosaGarman, 1917[31] (nomen dubium)
- Testudo typicaGarman, 1917[31] (nomen dubium)
- Testudo (Chelonoidis) elephantopusWilliams, 1952[60]
- Geochelone (Chelonoidis) elephantopusPritchard, 1967[61]
- Chelonoidis elephantopusBour, 1980[62]
C. n. nigra ( Nominatform )
- Testudo californiana Quoy & Gaimard , 1824a [ 32 ] ( nomen oblitum )
- Testudo nigra Quoy & Gaimard , 1824b [ 28 ] ( nomen novum )
- Testudo galapagoensis Baur 1889 [ 21 ]
C. n. abingdoni
- Testudo ephippium Günther , 1875 [ 16 ] (partim, falsch identifiziertes Typusexemplar, das einst irrtümlicherweise der heutigen Art C. n. duncanensis zugeschrieben wurde )
- Testudo abingdoni Günther , 1877 [ 63 ]
C. n. becki
- Testudo becki Rothschild , 1901 [ 22 ]
C. n. chathamensis
- Testudo wallacei Rothschild 1902 [ 24 ] ( partim , nomen dubium )
- Testudo chathamensis Van Denburgh , 1907 [ 25 ]
C. n. darwini
- Testudo wallacei Rothschild 1902 [ 24 ] ( partim , nomen dubium )
- Testudo darwini Van Denburgh , 1907 [ 25 ]
C. n. duncanensis
- Testudo ephippium Günther , 1875 [ 16 ] ( partim , falsch identifizierter Typ)
- Geochelone nigra duncanensis Garman , 1917 [ 31 ] in Pritchard , 1996 [ 50 ] ( nomen nudum )
C. n. hoodensis
- Testudo hoodensis Van Denburgh , 1907 [ 25 ]
C. n. phantastica
- Testudo phantasticus Van Denburgh , 1907 [ 25 ]
C. n. porteri
- Testudo nigrita Duméril und Bibron , 1834 [ 15 ] ( nomen dubium )
- Testudo porteri Rothschild , 1903 [ 23 ]
C. n. vicina
- Chelonoidis nigra nigra
- Testudo nigraQuoy & Gaimard, 1824
- Testudo californianaQuoy & Gaimard, 1824
- Testudo galapagoensisBaur, 1889
- Testudo elephantopus galapagoensisMertens & Wermuth, 1955
- Geochelone elephantopus galapagoensisPritchard, 1967
- Chelonoidis galapagoensisBour, 1980
- Chelonoidis nigraBour, 1985
- Chelonoidis elephantopus galapagoensisObst, 1985
- Geochelone nigraPritchard, 1986
- Geochelone nigra nigraStubbs, 1989
- Chelonoidis nigra galapagoensisDavid, 1994
- Chelonoidis nigra nigraDavid, 1994
- Geochelone elephantopus nigraBonin, Devaux & Dupré, 1996
- Testudo californiaPaull, 1998 (ex errore)
- Testudo californiananaPaull, 1999 (ex errore)
- Testudo ephippiumGünther, 1875
- Testudo abingdoniiGünther, 1877
- Testudo abingdoniVan Denburgh, 1914 (ex errore)
- Testudo elephantopus abingdoniiMertens & Wermuth, 1955
- Testudo elephantopus ephippiumMertens & Wermuth, 1955
- Geochelone abingdoniiPritchard, 1967
- Geochelone elephantopus abingdoniPritchard, 1967
- Geochelone elephantopus ephippiumPritchard, 1967
- Geochelone ephippiumPritchard, 1967
- Chelonoidis abingdoniiBour, 1980
- Chelonoidis ephippiumBour, 1980
- Geochelone elephantopus abingdoniiGroombridge, 1982
- Geochelone abingdoniFritts, 1983
- Geochelone epphipiumFritts, 1983 (ex errore)
- Chelonoidis nigra ephippiumPritchard, 1984
- Chelonoidis elephantopus abingdoniObst, 1985
- Chelonoidis elephantopus ephippiumObst, 1985
- Geochelone nigra abingdoniStubbs, 1989
- Chelonoidis nigra abingdoniiDavid, 1994
- Chelonoidis elephantopus abingdoniiRogner, 1996
- Chelonoidis nigra abingdoniiBonin, Devaux & Dupré, 1996
- Chelonoidis nigra abdingdoniiObst, 1996 (ex errore)
- Geochelone abdingdoniiObst, 1996
- Geochelone nigra abdingdoniObst, 1996 (ex errore)
- Geochelone nigra ephyppiumCaccone, Gibbs, Ketmaier, Suatoni & Powell, 1999 (ex errore)
- Chelonoidis nigra ahingdoniiArtner, 2003 (ex errore)
- Chelonoidis abingdoniJoseph-Ouni, 2004
- Testudo beckiRothschild, 1901
- Testudo bedsiHeller, 1903 (ex errore)
- Geochelone beckiPritchard, 1967
- Geochelone elephantopus beckiPritchard, 1967
- Chelonoidis beckiBour, 1980
- Chelonoidis elephantopus beckiObst, 1985
- Chelonoidis nigra beckiiDavid, 1994 (ex errore)
- Chelonoidis elephantopus beckiiRogner, 1996
- Chelonoidis nigra beckiObst, 1996
- Chelonoidis nigra chathamensis
- Testudo wallaceiRothschild, 1902
- Testudo chathamensisVan Denburgh, 1907
- Testudo elephantopus chathamensisMertens & Wermuth, 1955
- Testudo elephantopus wallaceiMertens & Wermuth, 1955
- Testudo chatamensisSlevin & Leviton, 1956 (ex errore)
- Geochelone chathamensisPritchard, 1967
- Geochelone elephantopus chathamensisPritchard, 1967
- Geochelone elephantopus wallaceiPritchard, 1967
- Geochelone wallaceiPritchard, 1967
- Chelonoidis chathamensisBour, 1980
- Chelonoidis elephantopus chathamensisObst, 1985
- Chelonoidis elephantopus wallaceiObst, 1985
- Chelonoidis elephantopus chatamensisGosławski & Hryniewicz, 1993
- Chelonoidis nigra chathamensisDavid, 1994
- Chelonoidis nigra wallaceiBonin, Devaux & Dupré, 1996
- Geochelone cathamensisObst, 1996 (ex errore)
- Geochelone elephantopus chatamensisPaull, 1996
- Testudo chathamensis chathamensisPritchard, 1998
- Cherlonoidis nigra wallaceiWilms, 1999
- Geochelone nigra chatamensisCaccone, Gibbs, Ketmaier, Suatoni & Powell, 1999
- Geochelone nigra wallaceiChambers, 2004
- Chelonoidis nigra darwini
- Testudo wallaceiRothschild, 1902
- Testudo darwiniVan Denburgh, 1907
- Testudo elephantopus darwiniMertens & Wermuth, 1955
- Testudo elephantopus wallaceiMertens & Wermuth, 1955
- Geochelone darwiniPritchard, 1967
- Geochelone elephantopus darwiniPritchard, 1967
- Geochelone elephantopus wallaceiPritchard, 1967
- Geochelone wallaceiPritchard, 1967
- Chelonoidis darwiniBour, 1980
- Chelonoidis elephantopus darwiniObst, 1985
- Chelonoidis elephantopus wallaceiObst, 1985
- Chelonoidis nigra darwiniiDavid, 1994 (ex errore)
- Chelonoidis elephantopus darwiniiRogner, 1996
- Chelonoidis nigra darwiniBonin, Devaux & Dupré, 1996
- Chelonoidis nigra wallaceiBonin, Devaux & Dupré, 1996
- Cherlonoidis nigra wallaceiWilms, 1999
- Geochelone nigra darwinii Ferri, 2002
- Geochelone nigra wallacei Chambers, 2004
- Testudo duncanensis Garman, 1917 ( nomen nudum )
- Geochelone nigra duncanensis Stubbs, 1989
- Geochelone nigra duncanensis Garman, 1996
- Chelonoidis nigra duncanensis Artner, 2003
- Chelonoidis duncanensis Joseph-Ouni, 2004
- Chelonoidis nigra hoodensis
- Testudo hoodensis Van Denburgh, 1907
- Testudo Elephantopus Hoodensis Mertens & Wermuth, 1955
- Geochelone elephantopus hoodensis Pritchard, 1967
- Geochelone hoodensis Pritchard, 1967
- Chelonoidis hoodensis Bour, 1980
- Chelonoidis elephantopus hoodensis Obst, 1985
- Chelonoidis nigra Hoodensis David, 1994
- Testudo phantasticus Van Denburgh, 1907
- Testudo phantastica Siebenrock, 1909
- Testudo Elephantopus Phantastica Mertens & Wermuth, 1955
- Geochelone elephantopus phantastica Pritchard, 1967
- Geochelone phantastica Pritchard, 1967
- Chelonoidis phantastica Bour, 1980
- Geochelone phantasticus Crumly, 1984
- Chelonoidis Elephantopus phantastica Obst, 1985
- Chelonoidis nigra phantastica David, 1994
- Chelonoidis nigra porteri
- Testudo nigrita Duméril & Bibron, 1835
- Testudo porteri Rothschild, 1903
- Testudo Elephantopus Nigrita Mertens & Wermuth, 1955
- Geochelone elephantopus porteri Pritchard, 1967
- Geochelone nigrita Pritchard, 1967
- Chelonoidis nigrita Bour, 1980
- Geochelone elephantopus nigrita Honegger, 1980
- Geochelone porteri Fritts, 1983
- Chelonoidis elephantopus nigrita Obst, 1985
- Geochelone nigra porteri Stubbs, 1989
- Chelonoidis Elephantopus Porteri Gosławski & Hryniewicz, 1993
- Chelonoidis nigra nigrita David, 1994
- Geochelone nigra perteri Müller & Schmidt, 1995 ( ex errore )
- Chelonoidis nigra porteri Bonin, Devaux & Dupré, 1996
- Chelonoidis nigra vicina
- Testudo Elephantopus Harlan, 1827
- Testudo microphyes Günther, 1875
- Testudo vicina Günther, 1875
- Testudo Macrophyes Garman, 1917
- Testudo vandenburghi de Sola, 1930
- Testudo Elephantopus Elephantopus Mertens & Wermuth, 1955
- Geochelone elephantopus Williams, 1960
- Geochelone elephantopus elephantopus Pritchard, 1967
- Geochelone elephantopus guentheri Pritchard, 1967
- Geochelone elephantopus guntheri Pritchard, 1967 ( ex errore )
- Geochelone elephantopus microphyes Pritchard, 1967
- Geochelone elephantopus vandenburgi Pritchard, 1967 ( ex errore )
- Geochelone guntheri Pritchard, 1967
- Geochelone microphyes Pritchard, 1967
- Geochelone vandenburghi Pritchard, 1967
- Geochelone vicina Pritchard, 1967
- Geochelone elephantopus microphys Arnold, 1979 ( ex errore )
- Geochelone elephantopus vandenburghi Pritchard, 1979
- Chelonoides elephantopus Obst, 1980
- Chelonoidis elephantopus Bour, 1980
- Chelonoidis guentheri Bour, 1980
- Chelonoidis microphyes Bour, 1980
- Chelonoidis vandenburghi Bour, 1980
- Geochelone guentheri Fritts, 1983
- Chelonoidis elephantopus elephantopus Obst, 1985
- Chelonoidis elephantopus guentheri Obst, 1985
- Chelonoidis elephantopus microphyes Obst, 1985
- Chelonoidis elephantopus vandenburghi Obst, 1985
- Geochelone elephantopus vicina Swingland, 1989
- Geochelone Elephantopus vicini Swingland, 1989 ( ex Fehler )
- Chelonoidis Elephantopus guntheri Gosławski & Hryniewicz, 1993
- Chelonoidis nigra guentheri David, 1994
- Chelonoidis nigra microphyes David, 1994
- Chelonoidis nigra vandenburghi David, 1994
- Geochelone nigra elephantopus Müller & Schmidt, 1995
- Chelonoidis elephantopus vicina Rogner, 1996
- Geochelone Elephantopus vandenburghii Obst, 1996 ( ex Fehler )
- Geochelone vandenburghii Obst, 1996
- Chelonoidis nigra microphyies Bonin, Devaux & Dupré, 1996 ( ex errore )
- Geochelone elephantopus microphytes Paull, 1996 ( ex errore )
- Geochelone elephantopus vandenbergi Paull, 1996 ( ex errore )
- Testudo Elephantopus Guntheri Paull, 1999
- Chelonoidis nigra vicina Artner, 2003
- Chelonoidis vicina Joseph-Ouni, 2004
- Geochelone nigra guentheri Chambers, 2004
Moderne DNA-Methoden haben neue Erkenntnisse über die Verwandtschaftsverhältnisse zwischen den Unterarten geliefert:
Insel Isabela
Die fünf Populationen auf der größten Insel Isabela sind Gegenstand der meisten Debatten darüber, ob es sich um eigenständige Unterarten oder lediglich um verschiedene Populationen einer Unterart handelt. Es gilt als weitgehend anerkannt, dass die Population auf dem nördlichsten Vulkan, dem Volcán Wolf, genetisch unabhängig von den vier südlich gelegenen Populationen ist und somit eine eigene Unterart darstellt. [ 18 ] Man geht davon aus, dass sie auf eine andere Besiedlungswelle zurückgeht als die anderen. Eine Besiedlung von der Insel Santiago führte offenbar zur Entstehung der Unterart Volcán Wolf ( C. n. becki ), während die vier südlichen Populationen vermutlich von einer zweiten Besiedlung von der südlicher gelegenen Insel Santa Cruz abstammen. [ 18 ] Schildkröten von Santa Cruz besiedelten vermutlich zuerst den Vulkan Sierra Negra, den ersten Vulkan der Insel. Von dort breiteten sie sich nach Norden zu den neu entstandenen Vulkanen aus, woraus die Populationen auf dem Volcán Alcedo und später dem Volcán Darwin entstanden. Jüngste genetische Untersuchungen zeigen, dass sich diese beiden Populationen genetisch voneinander und von der Population auf der Sierra Negra ( C. guentheri ) unterscheiden und daher die Unterarten C. n. vandenburghi (Alcedo) und C. n. microphyes (Darwin) bilden. [ 66 ] Die fünfte Population auf dem südlichsten Vulkan ( C. n. vicina ) hat sich vermutlich erst später von der Population auf der Sierra Negra abgespalten und ist daher genetisch weniger verschieden als die beiden anderen. [ 66 ] Isabela ist die jüngste Inselgruppe, die von Schildkröten bewohnt wird. Ihre Populationen hatten daher weniger Zeit, sich unabhängig voneinander zu entwickeln als Populationen auf anderen Inseln. Einigen Forschern zufolge sind sie jedoch alle genetisch unterschiedlich und sollten jeweils als separate Unterarten betrachtet werden. [ 66 ]
Insel Floreana
Phylogenetic analysis may help to "resurrect" the extinct subspecies of Floreana (C. n. niger)—a subspecies known only from subfossil remains.[41] Some tortoises from Isabela were found to be a partial match for the genetic profile of Floreana specimens from museum collections, possibly indicating the presence of hybrids from a population transported by humans from Floreana to Isabela,[54] resulting either from individuals deliberately transported between the islands,[67] or from individuals thrown overboard from ships to lighten the load.[21] Nine Floreana descendants have been identified in the captive population of the Fausto Llerena Breeding Center on Santa Cruz; the genetic footprint was identified in the genomes of hybrid offspring. This allows the possibility of re-establishing a reconstructed subspecies from selective breeding of the hybrid animals.[68] Furthermore, individuals from the subspecies possibly are still extant. Genetic analysis from a sample of tortoises from Volcan Wolf found 84 first-generation C. n. niger hybrids, some less than 15 years old. The genetic diversity of these individuals is estimated to have required 38 C. n. niger parents, many of which could still be alive on Isabela Island.[69]
Pinta Island

The Pinta Island subspecies (C. n. abingdonii, now extinct) has been found to be most closely related to the subspecies on the islands of San Cristóbal (C. n. chathamensis) and Española (C. n. hoodensis) which lie over 300 km (190 mi) away,[18] rather than that on the neighbouring island of Isabela as previously assumed. This relationship is attributable to dispersal by the strong local current from San Cristóbal towards Pinta.[70] This discovery informed further attempts to preserve the C. n. abingdonii lineage and the search for an appropriate mate for Lonesome George, which had been penned with females from Isabela.[71] Hope was bolstered by the discovery of a C. n. abingdonii hybrid male in the Volcán Wolf population on northern Isabela, raising the possibility that more undiscovered living Pinta descendants exist.[72]
Santa Cruz Insel
Untersuchungen der mitochondrialen DNA von Schildkröten auf Santa Cruz zeigen bis zu drei genetisch unterschiedliche Linien mit sich nicht überschneidenden Populationsverbreitungen in den Regionen um Cerro Montura, Cerro Fatal und La Caseta. [ 73 ] Obwohl sie traditionell zu einer einzigen Unterart ( C. n. porteri ) zusammengefasst wurden, sind die Linien alle enger mit Schildkröten anderer Inseln verwandt als untereinander: [ 74 ] Die Schildkröten von Cerro Montura sind am engsten mit C. n. duncanensis von Pinzón verwandt, [ 75 ] die von Cerro Fatal mit C. n. chathamensis von San Cristóbal, [ 75 ] [ 76 ] [ 77 ] und die von La Caseta mit den vier südlichen Unterarten von Isabela [ 75 ] [ 77 ] sowie mit den Schildkröten von Floreana. [ 77 ]
Im Jahr 2015 wurden die Cerro-Fatal-Schildkröten als eigenständiges Taxon, *donfaustoi* , beschrieben . [ 77 ] [ 78 ] Bereits vor der Identifizierung dieser Unterart durch genetische Analysen wurden Unterschiede im Panzer der Cerro-Fatal-Schildkröten im Vergleich zu anderen Schildkrötenarten auf Santa Cruz festgestellt. [ 79 ] Laut Adalgisa Caccone, Mitglied des Teams, das diese Klassifizierung vornahm, kann durch die Einordnung der Cerro-Fatal-Schildkröten in ein neues Taxon dem Schutz ihres Lebensraums mehr Aufmerksamkeit gewidmet werden. [ 77 ] [ 79 ]
Pinzón-Insel
Als man feststellte, dass es auf der kleinen Zentralinsel Pinzón nur noch 100 bis 200 sehr alte Exemplare gab und seit über 70 Jahren keine Jungtiere mehr das Erwachsenenalter erreicht hatten, initiierten die dort ansässigen Wissenschaftler das spätere Zucht- und Aufzuchtprogramm für Riesenschildkröten. In den folgenden 50 Jahren trug dieses Programm maßgeblich zur Erholung der Riesenschildkrötenpopulationen im gesamten Archipel bei.
1965 wurden die ersten Schildkröteneier, die auf der Insel Pinzón in natürlichen Nestern gefunden wurden, zur Charles-Darwin-Forschungsstation gebracht. Dort überstanden sie die Brutzeit und schlüpften – die ersten in Gefangenschaft aufgezogenen Jungtiere. Die Einschleppung von Hausratten nach Pinzón in der zweiten Hälfte des 19. Jahrhunderts hatte zur vollständigen Ausrottung aller Jungtiere geführt. Die Ratten fraßen sowohl Eier als auch Jungtiere und zerstörten so die Zukunft der Schildkrötenpopulation. Nur die Langlebigkeit der Riesenschildkröten ermöglichte ihr Überleben bis 2012, als der Galápagos-Nationalpark, Island Conservation , die Charles-Darwin-Stiftung, das Raptor Center und die Bell Laboratories die eingeschleppten Ratten entfernten. 2013, ein wichtiger Schritt für die Erholung der Pinzón-Riesenschildkrötenpopulation, schlüpften Jungtiere aus den Nestern einheimischer Pinzón-Schildkröten auf der Insel, und der Galápagos-Nationalpark setzte 118 Jungtiere erfolgreich auf ihrer Heimatinsel aus. Ende 2014 kehrten die Partner nach Pinzón zurück und beobachteten weiterhin die (mittlerweile älteren) Jungtiere, was darauf hindeutet, dass die natürliche Reproduktion auf der Insel ungehindert stattfindet. Sie entdeckten außerdem eine der Wissenschaft neue Schneckenunterart. Diese vielversprechenden Ergebnisse unterstreichen den Wert dieser wichtigen Managementmaßnahme für den Naturschutz. Anfang 2015 bestätigten die Partner nach umfangreichem Monitoring, dass die Inseln Pinzón und Plaza Sur nun frei von Nagetieren sind. [ 80 ]
Insel Española
Auf der südlichen Insel Española wurden nur 14 ausgewachsene Schildkröten gefunden, zwei Männchen und zwölf Weibchen. Die Tiere begegneten sich offenbar nicht, sodass keine Fortpflanzung stattfand. Zwischen 1963 und 1974 wurden alle 14 auf der Insel entdeckten ausgewachsenen Schildkröten in das Schildkrötenzentrum auf Santa Cruz gebracht und ein Zuchtprogramm gestartet. 1977 wurde eine dritte männliche Schildkröte von Española aus dem Zoo von San Diego nach Galapagos zurückgebracht und in die Zuchtgruppe aufgenommen. [ 81 ] Nach 40 Jahren der Wiedereinführung von Tieren aus Gefangenschaft bestätigte eine detaillierte Studie des Ökosystems der Insel, dass es dort eine stabile, sich fortpflanzende Population gibt. Wo einst nur 15 Tiere bekannt waren, leben heute über 1.000 Riesenschildkröten auf der Insel Española. Ein Forschungsteam hat herausgefunden, dass mehr als die Hälfte der seit den ersten Wiederansiedlungen freigelassenen Schildkröten noch leben und sich so gut fortpflanzen, dass sich die Population ohne weitere Hilfe entwickeln kann. [ 82 ] Im Januar 2020 wurde vielfach berichtet, dass Diego , eine 100-jährige männliche Schildkröte, 40 % der Schildkrötenpopulation auf der Insel wiederhergestellt hat und als „Playboy-Schildkröte“ bekannt ist. [ 83 ]
Fernandina-Insel
Die Unterart C. n. phantasticus von Fernandina war ursprünglich nur von einem einzigen Exemplar bekannt – einem alten Männchen von der Expedition 1905/06. [ 26 ] Lange Zeit nach der Sichtung wurden keine weiteren Schildkröten oder Überreste auf der Insel gefunden, was die Vermutung nahelegte, dass es sich um eine künstliche Einschleppung von anderswo handelte. [ 44 ] [ 45 ] [ 67 ] Auf Fernandina gibt es weder menschliche Siedlungen noch verwilderte Säugetiere. Sollte diese Unterart jemals existiert haben, wäre ihr Aussterben daher auf natürliche Weise, beispielsweise durch vulkanische Aktivität, erfolgt. [ 44 ] Dennoch gab es vereinzelt Sichtungen von Fernandina. [ 84 ] Im Jahr 2019 wurde schließlich ein älteres Weibchen auf Fernandina entdeckt und in eine Aufzuchtstation gebracht. Spurenfunde der Expedition deuten darauf hin, dass wahrscheinlich weitere Exemplare in freier Wildbahn existieren. Es wurde die Theorie aufgestellt, dass die Seltenheit der Unterart auf den rauen Lebensraum zurückzuführen sein könnte, in dem sie überlebt, wie beispielsweise die Lavaströme , die die Insel bekanntermaßen häufig bedecken. [ 46 ]
Santa Fe Insel
Die ausgestorbene Santa-Fe-Unterart ist noch nicht beschrieben und hat daher keinen binären Namen . Sie wurde anhand weniger Knochenfragmente (aber ohne Panzer, den haltbarsten Teil) von 14 Individuen, alten Eiern und altem Kot identifiziert, die 1905–06 auf der Insel gefunden wurden. [ 26 ] Die Insel war nie von Menschen bewohnt und hatte keine eingeschleppten Raubtiere. Es gibt jedoch Berichte über Walfänger, die Schildkröten von der Insel abtransportierten. [ 67 ] [ 85 ] Spätere genetische Untersuchungen der Knochenfragmente deuten darauf hin, dass die Santa-Fe-Unterart eigenständig war und am engsten mit C. n. hoodensis verwandt war . [ 85 ] Eine Population von C. n. hoodensis wurde inzwischen auf der Insel wiederangesiedelt und etabliert, um die ökologische Lücke der Santa-Fe-Schildkröte zu schließen. [ 86 ]
Unterarten von zweifelhafter Existenz
Die vermeintliche Unterart der Insel Rábida ( C. n. wallacei ) wurde anhand eines einzigen Exemplars beschrieben, das im Dezember 1905 von der California Academy of Sciences gesammelt wurde [ 26 ] , aber seither verloren gegangen ist. Dieses Individuum war wahrscheinlich eine künstliche Einsetzung von einer anderen Insel und wurde ursprünglich in der Nähe eines guten Ankerplatzes auf Rábida eingepfercht, da in keinem zeitgenössischen Walfang- oder Robbenfangprotokoll die Entnahme von Schildkröten von dieser Insel erwähnt wird. [ 45 ]
Beschreibung
Schildkröten besitzen einen großen, knöchernen Panzer von stumpfbrauner oder grauer Farbe. Die Panzerplatten sind mit den Rippen zu einer starren Schutzstruktur verwachsen, die integraler Bestandteil des Skeletts ist. Flechten können auf den Panzern dieser langsam kriechenden Tiere wachsen. [ 87 ] Schildkröten behalten ihr charakteristisches Schuppenmuster (Panzersegmentmuster) zeitlebens bei, wobei die jährlichen Wachstumsringe jedoch nicht zur Altersbestimmung geeignet sind, da sich die äußeren Schichten mit der Zeit abnutzen. Eine Schildkröte kann Kopf, Hals und Vorderbeine zum Schutz in ihren Panzer zurückziehen. Die Beine sind groß und stämmig, mit trockener, schuppiger Haut und harten Schuppen . Die Vorderbeine haben fünf Krallen, die Hinterbeine vier. [ 26 ]
Gigantismus
Der Entdecker der Galápagos-Inseln, Fray Tomás de Berlanga, Bischof von Panama, schrieb 1535 von „solch großen Schildkröten, dass jede einen Mann auf sich tragen könnte.“ [ 88 ] Der Naturforscher Charles Darwin bemerkte nach seiner Reise drei Jahrhunderte später, im Jahr 1835: „Diese Tiere erreichen eine immense Größe … einige sind so groß, dass sechs oder acht Männer nötig waren, um sie vom Boden zu heben.“ [ 89 ] Die größten jemals gemessenen Exemplare erreichten ein Gewicht von über 400 kg [ 2 ] [ 90 ] und eine Länge von 1,87 Metern. [ 28 ] [ 91 ] Die Größenverhältnisse überschneiden sich weitgehend mit denen der Aldabra-Riesenschildkröte . Betrachtet man die Galápagos-Schildkröte jedoch als Unterart, scheint sie im Durchschnitt etwas größer zu sein, wobei Gewichte von über 185 kg etwas häufiger vorkommen. [ 92 ] Das Gewicht der größeren Unterarten liegt bei ausgewachsenen Männchen zwischen 272 und 317 kg und bei Weibchen zwischen 136 und 181 kg. [ 26 ] Die Größe variiert jedoch zwischen den Inseln und Unterarten; die Exemplare der Insel Pinzón sind mit einem maximal bekannten Gewicht von 76 kg und einer Panzerlänge von etwa 61 cm relativ klein, verglichen mit 75 bis 150 cm bei Schildkröten der Insel Santa Cruz . [ 93 ] Der Gigantismus der Schildkröten war wahrscheinlich ein Merkmal, das auf Kontinenten von Vorteil war und sich zufällig als hilfreich für die erfolgreiche Besiedlung dieser abgelegenen ozeanischen Inseln erwies, und ist kein Beispiel für einen evolutionär bedingten Inselgigantismus . Große Schildkröten hätten eine höhere Überlebenschance bei der Überfahrt vom Festland, da sie ihren Kopf höher über die Wasseroberfläche halten könnten und ein geringeres Verhältnis von Oberfläche zu Volumen aufweisen, was den osmotischen Wasserverlust reduziert . Ihre beträchtlichen Wasser- und Fettreserven würden es ihnen ermöglichen, lange Ozeanüberquerungen ohne Nahrung oder Süßwasser zu überstehen und dem trockenen Klima der Inseln zu trotzen. Ihre größere Körpergröße ermöglichte es ihnen dank der Gigantothermie , extreme Temperaturen besser zu tolerieren . [ 94 ] Fossile Riesenschildkröten vom südamerikanischen Festland wurden beschrieben, die diese Hypothese des Gigantismus stützen, der bereits vor der Besiedlung der Inseln existierte. [ 95 ]
Muschelform


Die Galápagos-Riesenschildkröten besitzen zwei Hauptformen des Panzers, die mit der biogeografischen Geschichte der Unterartengruppe korrelieren. Sie weisen ein Spektrum an Panzermorphologien auf, das von „sattelförmig“ (mit einer nach oben gewölbten Vorderkante, die einem Sattel ähnelt) bis „kuppelförmig“ (mit einer abgerundeten, konvexen Oberfläche, die einer Kuppel ähnelt) reicht. Wenn eine sattelförmige Schildkröte Kopf und Vorderbeine in ihren Panzer zurückzieht, bleibt eine große, ungeschützte Lücke über dem Hals bestehen – ein Hinweis darauf, dass diese Struktur während der Evolution nicht von Fressfeinden bedroht war. Größere Inseln mit feuchten Hochländern in über 800 m Höhe, wie beispielsweise Santa Cruz, weisen eine üppige Vegetation in Bodennähe auf. [ 52 ] Schildkröten, die in diesen Gebieten heimisch sind, haben tendenziell kuppelförmige Panzer und sind größer, mit kürzeren Hälsen und Gliedmaßen. Die Sattelrücken-Schildkröte stammt von kleinen Inseln unter 500 m Höhe mit trockenen Lebensräumen (z. B. Española und Pinzón), die nur über begrenzte Nahrungsquellen und andere Ressourcen verfügen. [ 75 ] Zwei Linien der Galápagos-Schildkröte leben auf der Insel Santa Cruz. Beobachtungen zeigen, dass sich die beiden Linien und Geschlechter trotz ähnlicher Wachstumsmuster und morphologischer Veränderungen während des Wachstums anhand deutlicher Merkmale des Panzers unterscheiden lassen. Die Linien unterscheiden sich in der Form der Wirbel- und Brustschilde. Weibchen haben einen länglicheren und breiteren Panzer als Männchen. Die Panzerform verändert sich mit dem Wachstum: Die Wirbelschilde werden schmaler, die Brustschilde hingegen größer im späteren Entwicklungsstadium .
- Evolutionäre Implikationen
In Kombination mit proportional längeren Hälsen und Gliedmaßen [ 26 ] wird die ungewöhnliche Sattelrückenstruktur des Panzers als Anpassung an eine größere vertikale Reichweite angesehen, die es der Schildkröte ermöglicht, hohe Vegetation wie den in trockenen Gebieten wachsenden Feigenkaktus ( Opuntia ) zu fressen. [ 96 ] Sattelrückenschildkröten sind territorialer [ 91 ] [ 97 ] und kleiner als gewölbte Arten, möglicherweise Anpassungen an begrenzte Ressourcen. Alternativ könnten größere Schildkröten besser an höhere Lagen angepasst sein, da sie den kühleren Temperaturen bei Bewölkung oder Nebel besser widerstehen können. [ 51 ]
A competing hypothesis is that, rather than being principally a feeding adaptation, the distinctive saddle shape and longer extremities might have been a secondary sexual characteristic of saddleback males. Male competition over mates is settled by dominance displays on the basis of vertical neck height rather than body size[51] (see below). This correlates with the observation that saddleback males are more aggressive than domed males.[98] The shell distortion and elongation of the limbs and neck in saddlebacks is probably an evolutionary compromise between the need for a small body size in dry conditions and a high vertical reach for dominance displays.[51]
The saddleback carapace probably evolved independently several times in dry habitats,[91] since genetic similarity between populations does not correspond to carapace shape.[99] Saddleback tortoises are, therefore, not necessarily more closely related to each other than to their domed counterparts, as shape is not determined by a similar genetic background, but by a similar ecological one.[51]
- Sexual dimorphism
Sexual dimorphism is most pronounced in saddleback populations in which males have more angled and higher front openings, giving a more extreme saddled appearance.[98] Males of all varieties generally have longer tails and shorter, concave plastrons with thickened knobs at the back edge to facilitate mating. Males are larger than females—adult males weigh around 272–317 kg (600–699 lb) while females are 136–181 kg (300–399 lb).[51]
Behavior

Routine
The tortoises are ectothermic (cold-blooded), so they bask for 1–2 hours after dawn to absorb the sun's heat through their dark shells before actively foraging for 8–9 hours a day.[44] They travel mostly in the early morning or late afternoon between resting and grazing areas. They have been observed to walk at a speed of 0.3 km/h (0.2 mph).[89]
On the larger and more humid islands, the tortoises seasonally migrate between low elevations, which become grassy plains in the wet season, and meadowed areas of higher elevation (up to 2,000 ft (610 m)[26]) in the dry season. The same routes have been used for many generations, creating well-defined paths through the undergrowth known as "tortoise highways".[52] On these wetter islands, the domed tortoises are gregarious and often found in large herds, in contrast to the more solitary and territorial disposition of the saddleback tortoises.
Tortoises sometimes rest in mud wallows or rain-formed pools, which may be both a thermoregulatory response during cool nights, and a protection from parasites such as mosquitoes and ticks.[52] Parasites are countered by taking dust baths in loose soil. Some tortoises have been noted to shelter at night under overhanging rocks.[100] Others have been observed sleeping in a snug depression in the earth or brush called a "pallet". Local tortoises using the same pallet sites, such as on Volcán Alcedo, results in the formation of small, sandy pits.[101]
Diet

The tortoises are herbivores that consume a diet of cacti, grasses, leaves, lichens, berries, melons, oranges and milkweed.[102] They have been documented feeding on Hippomane mancinella (poison apple), the endemic guavaPsidium galapageium, the water fernAzolla microphylla, bromeliadTillandsia insularis and the Galápagos tomatoSolanum cheesmaniae.[103] Juvenile tortoises eat an average of 16.7% of their own body weight in dry matter per day, with a digestive efficiency roughly equal to that of hindgut-fermenting herbivorous mammals such as horses and rhinos.[104]
Schildkröten beziehen den Großteil ihres Wassers aus Tau und Pflanzensaft (insbesondere dem Opuntienkaktus ), wodurch sie mehr als sechs Monate ohne Trinken überleben können. Sie können bis zu einem Jahr ohne Nahrung und Wasser auskommen [ 105 ] , indem sie ihr Körperfett abbauen und dabei Wasser als Nebenprodukt gewinnen. Schildkröten haben zudem einen sehr langsamen Stoffwechsel [ 106 ] . Bei Durst trinken sie große Mengen Wasser sehr schnell und speichern es in ihrer Blase und im Herzbeutel [ 44 ] , was sie auf Schiffen zu nützlichen Wasserspendern machte [ 105 ] . Auf trockenen Inseln lecken Schildkröten Morgentau von Felsen, und diese wiederholte Handlung hat über viele Generationen halbkugelförmige Vertiefungen im Gestein geformt [ 44 ] .
Sinne
Bezüglich ihrer Sinne bemerkte Charles Darwin: „Die Einheimischen glauben, diese Tiere seien völlig taub; ganz sicher hören sie nicht, wenn jemand dicht hinter ihnen geht. Ich amüsierte mich immer, wenn ich eines dieser großen Ungetüme überholte, während es ruhig dahinschritt, und sah, wie es im selben Augenblick, in dem ich vorbeiging, Kopf und Beine einzog, ein tiefes Zischen ausstieß und mit einem dumpfen Geräusch zu Boden fiel, als wäre es tot.“ [ 89 ] Obwohl sie nicht taub sind, [ 26 ] verlassen sich Schildkröten als Sinnesreize weitaus stärker auf Sehen und Riechen als auf Hören. [ 52 ]
Mutualismus
Schildkröten leben in einer mutualistischen Beziehung mit einigen Unterarten des Galapagosfinken und der Spottdrossel. Die Vögel profitieren von der Nahrungsquelle, und die Schildkröten werden lästige Ektoparasiten los . [ 107 ]
Kleine Gruppen von Finken leiten das Spiel ein, indem sie übertrieben hüpfend vor der Schildkröte auf dem Boden herumlaufen. Die Schildkröte signalisiert ihre Bereitschaft, indem sie sich aufrichtet und Hals und Beine ausstreckt. Dadurch können die Vögel sonst unzugängliche Stellen am Körper der Schildkröte erreichen, wie Hals, Hinterbeine, Kloakenöffnung und die Haut zwischen Bauch- und Rückenpanzer.
Es wurde beobachtet, dass einige Schildkröten diese mutualistische Beziehung ausnutzen, um Vögel zu fressen, die sie putzen wollen. Nachdem der Vogel sich aufgerichtet und seine Gliedmaßen ausgestreckt hat, kriecht er möglicherweise unter die Schildkröte, um sie zu untersuchen. Daraufhin zieht die Schildkröte plötzlich ihre Gliedmaßen ein, lässt sich flach auf den Boden fallen und tötet den Vogel. Anschließend tritt sie zurück, um den Vogel zu fressen, vermutlich um ihre Ernährung mit Proteinen zu ergänzen. [ 108 ]

Paarung
Die Paarung findet ganzjährig statt, erreicht aber zwischen Februar und Juni in den feuchten Hochlagen während der Regenzeit ihren Höhepunkt. [ 52 ] Treffen geschlechtsreife Männchen in der Paarungszeit aufeinander, zeigen sie ein ritualisiertes Dominanzverhalten: Sie richten sich auf und strecken ihre Hälse mit weit geöffnetem Maul. Gelegentlich kommt es zu Kopfbissen, doch meist weicht die kleinere Schildkröte zurück und überlässt dem Sieger das Paarungsrecht. Dieses Verhalten ist bei den Sattelrücken-Unterarten, die aggressiver sind und längere Hälse besitzen, am deutlichsten ausgeprägt. [ 98 ]
Die Paarung kann sehr aggressiv verlaufen, da das Männchen den Panzer des Weibchens mit seinem eigenen rammt und ihr in die Beine zwickt. [ 64 ] Das Aufreiten ist ein unbeholfener Vorgang, bei dem das Männchen sich strecken und anspannen muss, um in der schrägen Position das Gleichgewicht zu halten. Die konkave Unterseite seines Panzers hilft ihm, das Gleichgewicht zu halten, wenn er über dem Panzer des Weibchens sitzt, und bringt seine Kloakenöffnung (in der sich der Penis befindet) näher an die erweiterte Kloake des Weibchens. Während der Paarung stößt das Männchen heisere Rufe und Grunzlaute aus, [ 100 ] die als „rhythmisches Stöhnen“ beschrieben werden. [ 52 ] Dies ist eine der wenigen Lautäußerungen der Schildkröte; andere Geräusche entstehen bei aggressiven Auseinandersetzungen, beim Versuch, sich wieder aufzurichten, und beim Zischen, wenn sie sich aufgrund des kraftvollen Luftausstoßes in ihren Panzer zurückzieht. [ 109 ]

Eiablage
Weibchen legen von Juli bis November bis zu mehrere Kilometer zurück, um ihre Nistplätze an trockenen, sandigen Küsten zu erreichen. Das Graben des Nestes ist eine anstrengende und aufwendige Aufgabe, die das Weibchen über viele Tage hinweg mehrere Stunden täglich in Anspruch nehmen kann. [ 52 ] Blindlings gräbt die Schildkröte mit den Hinterbeinen ein 30 cm tiefes, zylindrisches Loch, in das sie bis zu 16 kugelförmige, hartschalige Eier mit einem Gewicht von 82 bis 157 Gramm [ 44 ] und der Größe einer Billardkugel [ 87 ] legt. Beobachtungen deuten darauf hin, dass die durchschnittliche Gelegegröße bei gewölbten Schildkrötenpopulationen (9,6 Eier pro Gelege bei C. porteri auf Santa Cruz) größer ist als bei Sattelschildkröten (4,6 Eier pro Gelege bei C. duncanensis auf Pinzón). [ 45 ] Das Weibchen verschließt die Nisthöhle mit einem Schlammpfropfen aus Erde und Urin, drückt diesen fest mit ihrem Bauchpanzer zu und überlässt die Brut der Sonne. Weibchen legen ein bis vier Gelege pro Saison. Die Temperatur beeinflusst das Geschlecht der Jungvögel : In kälteren Nestern schlüpfen mehr Männchen, in wärmeren mehr Weibchen. Dies hängt eng mit der Brutdauer zusammen: Früh gelegte Gelege werden in der kühlen Jahreszeit bebrütet und haben eine längere Brutzeit (wodurch mehr Männchen schlüpfen), während später gelegte Eier in der warmen Jahreszeit kürzer bebrütet werden (wodurch mehr Weibchen schlüpfen). [ 110 ]
Frühes Leben und Reifung
Young animals emerge from the nest after four to eight months and may weigh only 50 g (1.8 oz) and measure 6 cm (2.4 in).[52] When the young tortoises emerge from their shells, they must dig their way to the surface, which can take several weeks, though their yolk sac can sustain them up to seven months.[87] In particularly dry conditions, the hatchlings may die underground if they are encased by hardened soil, while flooding of the nest area can drown them. Subspecies are initially indistinguishable as they all have domed carapaces. The young stay in warmer lowland areas for their first 10–15 years,[44] encountering hazards such as falling into cracks, being crushed by falling rocks, or excessive heat stress. The Galápagos hawk was formerly the sole native predator of the tortoise hatchlings; Darwin wrote: "The young tortoises, as soon as they are hatched, fall prey in great numbers to the buzzard".[89] The hawk is now much rarer, but introduced feral pigs, dogs, cats, and black rats have become predators of eggs and young tortoises.[111] The adult tortoises have no natural predators apart from humans; Darwin noted: "The old ones seem generally to die from accidents, as from falling down precipices. At least several of the inhabitants told me, they had never found one dead without some such apparent cause".[89]
Sexual maturity is reached at around 20–25 years in captivity, possibly 40 years in the wild.[112] Life expectancy in the wild is thought to be over 100 years,[113][114] making it one of the longest-lived species in the animal kingdom. Harriet, a specimen kept in Australia Zoo, was the oldest known Galápagos tortoise, having reached an estimated age of more than 170 years before her death in 2006.[115] Chambers notes that Harriet was probably 169 years old in 2004, although media outlets claimed the greater age of 175 at death based on a less reliable timeline.[116]
Evolutionary history
Alle Unterarten der Galápagos-Schildkröten stammen von gemeinsamen Vorfahren ab, die durch Ausbreitung über das Meer vom südamerikanischen Festland einwanderten . Genetische Studien haben gezeigt, dass die Chaco-Schildkröte aus Argentinien und Paraguay ihr nächster lebender Verwandter ist. [ 18 ] Die kleinste Gründerpopulation bestand aus einem trächtigen Weibchen oder einem Brutpaar. [ 18 ] Das Überleben auf der 1000 km langen Ozeanreise lässt sich dadurch erklären, dass die Schildkröten schwimmfähig sind, durch Ausstrecken des Halses über Wasser atmen können und monatelang ohne Nahrung und Süßwasser auskommen. [ 35 ] Da sie schlechte Schwimmer sind, erfolgte die Reise wahrscheinlich passiv, begünstigt durch den Humboldtstrom , der vom Festland westwärts in Richtung der Galápagos-Inseln fließt. [ 75 ] Man geht davon aus, dass sich die Vorfahren der Gattung Chelonoidis im Oligozän auf ähnliche Weise von Afrika nach Südamerika ausbreiteten . [ 35 ]
Die nächste lebende Verwandte (wenn auch keine direkte Vorfahrin) der Galápagos-Riesenschildkröte ist die Chaco-Schildkröte ( Chelonoidis chilensis ), eine deutlich kleinere Art aus Südamerika. Die Aufspaltung zwischen C. chilensis und C. niger erfolgte vermutlich vor 11,95–25 Millionen Jahren, ein evolutionäres Ereignis, das der vulkanischen Entstehung der ältesten heutigen Galápagos-Inseln vor 5 Millionen Jahren vorausging. [ 117 ] [ 118 ] [ 119 ] Analysen der mitochondrialen DNA deuten darauf hin, dass die ältesten existierenden Inseln (Española und San Cristóbal) zuerst besiedelt wurden und dass diese Populationen die jüngeren Inseln durch Ausbreitung über lokale Strömungen besiedelten. [ 120 ] [ 121 ] Der eingeschränkte Genfluss zwischen isolierten Inseln führte dann zur unabhängigen Evolution der Populationen hin zu den unterschiedlichen Formen, die in den heutigen Unterarten beobachtet werden. Die evolutionären Verwandtschaftsverhältnisse zwischen den Unterarten spiegeln somit die vulkanische Geschichte der Inseln wider. [ 18 ]
Darwins Entwicklung der Evolutionstheorie
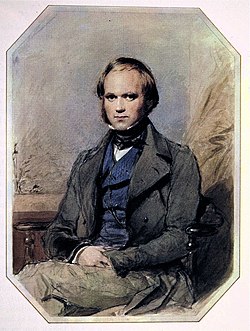
Charles Darwin visited the Galápagos for five weeks on the second voyage of HMS Beagle in 1835 and saw Galápagos tortoises on San Cristobal (Chatham) and Santiago (James) Islands.[122] They appeared several times in his writings and journals, and played a role in the development of the theory of evolution.
Darwin wrote in his account of the voyage:
I have not as yet noticed by far the most remarkable feature in the natural history of this archipelago; it is, that the different islands to a considerable extent are inhabited by a different set of beings. My attention was first called to this fact by the Vice-Governor, Mr. Lawson, declaring that the tortoises differed from the different islands, and that he could with certainty tell from which island any one was brought ... The inhabitants, as I have said, state that they can distinguish the tortoises from the different islands; and that they differ not only in size, but in other characters. Captain Porter has described* those from Charles and from the nearest island to it, namely, Hood Island, as having their shells in front thick and turned up like a Spanish saddle, while the tortoises from James Island are rounder, blacker, and have a better taste when cooked.[123]
The significance of the differences in tortoises between islands did not strike him as important until it was too late, as he continued,
I did not for some time pay sufficient attention to this statement, and I had already partially mingled together the collections from two of the islands. I never dreamed that islands, about fifty or sixty miles apart, and most of them in sight of each other, formed of precisely the same rocks, placed under a quite similar climate, rising to a nearly equal height, would have been differently tenanted.[123]
Though the Beagle departed from the Galápagos with over 30 adult tortoises on deck, these were not for scientific study, but a source of fresh meat for the Pacific crossing. Their shells and bones were thrown overboard, leaving no remains with which to test any hypotheses.[124] It has been suggested[125] that this oversight was made because Darwin only reported seeing tortoises on San Cristóbal[126] (C. chathamensis) and Santiago[127] (C. darwini), both of which have an intermediate type of shell shape and are not particularly morphologically distinct from each other. Though he did visit Floreana, the C. niger subspecies found there was already nearly extinct and he was unlikely to have seen any mature animals.[42]

However, Darwin did have four live juvenile specimens to compare from different islands. These were pet tortoises taken by himself (from San Salvador), his captain FitzRoy (two from Española) and his servant Syms Covington (from Floreana).[128] Unfortunately, they could not help to determine whether each island had its own variety because the specimens were not mature enough to exhibit morphological differences.[129] Although the British Museum had a few specimens, their provenance within the Galápagos was unknown.[130] However, conversations with the naturalist Gabriel Bibron, who had seen the mature tortoises of the Paris Natural History Museum confirmed to Darwin that distinct varieties occurred.[131]
Darwin later compared the different tortoise forms with those of mockingbirds, in the first[132] tentative statement linking his observations from the Galapagos with the possibility of subspecies transmuting:
Wenn ich bedenke, dass die Spanier anhand der Körperform, der Schuppengestalt und der allgemeinen Größe sofort erkennen können, von welcher Insel eine Schildkröte stammt; wenn ich sehe, dass diese Inseln einander zugewandt sind und nur eine geringe Anzahl von Tieren beherbergen, die von diesen Vögeln bewohnt werden, sich aber in ihrer Struktur leicht unterscheiden und denselben Lebensraum bewohnen; dann muss ich vermuten, dass es sich lediglich um Varietäten handelt ... Sollte an diesen Bemerkungen auch nur der geringste Grund bestehen, so wäre die Zoologie der Archipele eine eingehendere Untersuchung wert; denn solche Tatsachen würden die Stabilität der Unterarten infrage stellen. [ 133 ]
Seine Ansichten zur Veränderlichkeit von Unterarten wurden in seinen Notizbüchern wiederholt: „Tiere auf verschiedenen Inseln müssten sich unterscheiden, wenn sie lange genug getrennt und unter leicht unterschiedlichen Bedingungen gehalten werden. – Galapagos-Schildkröten, Spottdrosseln, Falklandfuchs, Chiloefuchs, Englischer und Irischer Hase.“ [ 134 ] Diese Beobachtungen dienten als Gegenbeispiele zur damals vorherrschenden Ansicht, dass Unterarten individuell entstehen.
Darwin fand diese „vorsintflutlichen Tiere“ [ 126 ] auch eine Quelle der Zerstreuung: „Ich setzte mich oft auf ihren Rücken, und wenn ich dann ein paar Mal auf den hinteren Teil ihres Panzers klopfte, erhoben sie sich und gingen weg; – aber ich fand es sehr schwierig, das Gleichgewicht zu halten.“ [ 89 ]
Erhaltung
Mehrere Wellen der menschlichen Nutzung der Schildkröten als Nahrungsquelle führten zu einem Rückgang des gesamten Wildbestands von etwa 250.000 [ 114 ] bei ihrer ersten Entdeckung im 16. Jahrhundert auf einen Tiefstand von 3.060 Individuen bei einer Zählung im Jahr 1974. Moderne Schutzbemühungen haben den Bestand anschließend wieder auf 19.317 Tiere ansteigen lassen (Schätzung für den Zeitraum 1995–2009). [ 135 ]
Die Unterart C. n. niger starb im 19. Jahrhundert durch menschliche Nutzung aus. Eine weitere Unterart, C. n. abingdonii , starb am 24. Juni 2012 mit dem Tod des letzten Exemplars in Gefangenschaft aus. Dieses Männchen, Lonesome George, galt als das „seltenste Lebewesen der Welt“. [ 136 ] Alle anderen überlebenden Unterarten werden von der IUCN als mindestens „gefährdet“, wenn nicht sogar noch stärker, eingestuft. [ 137 ]

Historische Ausbeutung
Schätzungsweise 200.000 Tiere wurden vor dem 20. Jahrhundert gefangen. [ 44 ] Die relativ unbeweglichen und wehrlosen Schildkröten wurden lebend an Bord von Schiffen transportiert, wo sie mindestens ein Jahr ohne Nahrung und Wasser überleben konnten (einige Berichte sprechen sogar von zwei Jahren [ 138 ] ). Sie lieferten wertvolles Frischfleisch, während ihr verdünnter Urin und das in ihren Nackenbeuteln gespeicherte Wasser als Trinkwasser dienten. Der englische Pirat, Entdecker und Naturforscher William Dampier schrieb im 17. Jahrhundert: „Sie sind so außerordentlich groß und fett und so süß, dass kein Huhn angenehmer frisst.“ [ 139 ] Kapitän James Colnett von der Royal Navy schrieb über „die Landschildkröte, die, wie auch immer sie zubereitet wurde, von uns allen als das köstlichste Essen galt, das wir je gekostet hatten.“ [ 140 ] Der US-Marinekapitän David Porter erklärte: „Nachdem wir einmal die Galapagos-Schildkröten gekostet hatten, sank unser Wert für alle anderen tierischen Nahrungsmittel erheblich … Das Fleisch dieses Tieres ist äußerst leicht verdaulich, und man kann eine größere Menge davon essen, als von jedem anderen Lebensmittel, ohne die geringsten Beschwerden zu verspüren.“ [ 105 ] Darwin war von dem Fleisch weniger begeistert und schrieb: „Das gebratene Brustbein (wie die Gauchos es „Carne con Cuero“ machen) mit dem Fleisch daran ist sehr gut; und die jungen Schildkröten ergeben eine ausgezeichnete Suppe; aber ansonsten ist das Fleisch für meinen Geschmack mittelmäßig.“ [ 141 ]
Im 17. Jahrhundert begannen Piraten , die Galápagos-Inseln als Basis für die Versorgung ihrer Schiffe zu nutzen. Dort konnten sie ihre Vorräte an Nahrung und Wasser auffüllen und Schiffe reparieren, bevor sie spanische Kolonien auf dem südamerikanischen Festland angriffen. Die Galápagos-Schildkröten hatten zu diesem Zeitpunkt jedoch keine Überlebensängste, da die Inseln abseits der stark befahrenen Schifffahrtsrouten lagen und nur wenige wertvolle Bodenschätze besaßen. Daher blieben sie unbewohnt, unerschlossen und unkartiert. Im Vergleich dazu waren die Schildkröten der Inseln im Indischen Ozean bereits Ende des 17. Jahrhunderts vom Aussterben bedroht. [ 142 ] Zwischen den 1790er und 1860er Jahren fingen Walfangschiffe und Robbenfänger systematisch Schildkröten in weitaus größerer Zahl als die Freibeuter vor ihnen. [ 143 ] Einige wurden als Nahrungsmittel verwendet, und viele weitere wurden ab dem späten 19. Jahrhundert wegen des hochwertigen „Schildkrötenöls“ getötet, das gewinnbringend auf dem ecuadorianischen Festland verkauft wurde. [ 144 ] In den Logbüchern von Walfangschiffen sind zwischen 1831 und 1868 insgesamt über 13.000 Schildkröten verzeichnet, und schätzungsweise 100.000 wurden vor 1830 gefangen. [ 138 ] Da das Fangen von Schildkröten in Küstennähe am einfachsten war, waren die Weibchen während der Brutzeit besonders gefährdet. Die Jagd durch Walfänger kam schließlich zum Erliegen, da die von ihnen selbst verursachte Verknappung der Schildkrötenbestände und die Konkurrenz durch Rohöl als billigere Energiequelle die Situation verschärften. [ 145 ]
Die Nutzung der Galápagos-Schildkröte nahm mit dem Beginn des kalifornischen Goldrausches im Jahr 1849 dramatisch zu. [ 146 ] Schildkröten und Meeresschildkröten wurden nach San Francisco, Sacramento und in verschiedene andere Goldgräberstädte in Alta California importiert, um die Bevölkerung der Goldgräber zu ernähren. Knochen von Galápagos-Schildkröten und Meeresschildkröten wurden auch an der archäologischen Stätte Thompson’s Cove (CA-SFR-186H) aus der Zeit des Goldrausches in San Francisco, Kalifornien, gefunden. [ 147 ]
Mit der frühen Besiedlung der Inseln im frühen 19. Jahrhundert beschleunigte sich der Bevölkerungsrückgang. Dies führte zu unkontrollierter Jagd, zur Rodung von Lebensräumen für die Landwirtschaft und zur Einführung fremder Säugetierarten. [ 45 ] Wildschweine, Hunde, Katzen und Hausratten fressen Eier und Jungtiere von Schildkröten, während Ziegen, Esel und Rinder um Weideflächen konkurrieren und Nester zertrampeln. Das Aussterben der Floreana-Unterart Mitte des 19. Jahrhunderts wird auf den kombinierten Druck der Jagd für die Strafkolonie auf der relativ kleinen Insel, die Umwandlung der Weideflächen im Hochland in Ackerland und Obstplantagen sowie die Einführung verwilderter Säugetiere zurückgeführt. [ 148 ]
Im Rahmen wissenschaftlicher Expeditionen wurden zwischen 1888 und 1930 661 Schildkröten gesammelt, und seit 1990 fielen Wilderern über 120 Schildkröten zum Opfer. Die Bedrohungen bestehen bis heute durch die rasante Ausbreitung des Tourismus und die zunehmende Besiedlung der Inseln. [ 149 ] Die Anzahl der Schildkrötenunterarten ist von 15, als Darwin die Inseln erreichte, auf heute 11 gesunken. [ 150 ]
Bedrohungen
- Eingeführte Säugetiere
- Wilderer
- Zerstörung des Lebensraums
- Merkmale, die Schildkröten anfällig machen
- Langsames Wachstum
- Späte Geschlechtsreife
- Kann nur auf den Galapagos-Inseln gefunden werden
- Groß und langsam [ 150 ]
- Sammlung
- Die Schildkröten der Galápagos-Inseln wurden nicht nur wegen des in ihnen enthaltenen Öls gejagt, das als Brennstoff diente, sondern als sie immer seltener wurden, begannen Menschen auch, Geld dafür zu bezahlen, sie in Sammlungen aufzunehmen oder in Museen auszustellen. [ 151 ]
Moderne Konservierung
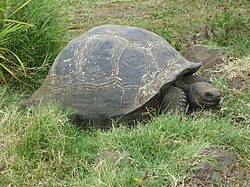

Die übrigen Unterarten der Riesenschildkröte reichen laut IUCN-Klassifizierung von „ in freier Wildbahn ausgestorben“ bis „gefährdet“ . Langsames Wachstum, späte Geschlechtsreife und die Tatsache, dass sie nur auf Inseln vorkommen, machen sie ohne die Unterstützung von Naturschützern besonders anfällig für das Aussterben. [ 74 ] Die Riesenschildkröte der Galápagos-Inseln hat sich zu einer Symbolart für die Naturschutzbemühungen auf den gesamten Galápagos-Inseln entwickelt.

- Rechtsschutz
Die Galápagos-Riesenschildkröte steht heute unter strengem Schutz und ist in Anhang I des Washingtoner Artenschutzübereinkommens (CITES) aufgeführt. [ 37 ] Die Aufnahme in die Liste verpflichtet die Vertragsstaaten, den Handel mit dieser Art und ihren Produkten streng zu regulieren; der internationale Handel zu vorwiegend kommerziellen Zwecken ist verboten. 1936 nahm die ecuadorianische Regierung die Riesenschildkröte in die Liste der geschützten Unterarten auf. 1959 erklärte sie alle unbewohnten Gebiete der Galápagosinseln zum Nationalpark [ 152 ] und gründete die Charles-Darwin-Stiftung . 1970 wurde das Fangen und Entfernen vieler Unterarten von den Inseln (einschließlich Schildkröten und ihrer Eier) verboten. [ 153 ] Um den Handel mit den Schildkröten vollständig zu unterbinden, wurde der Export von Schildkröten aus Ecuador – unabhängig davon, ob sie in Gefangenschaft oder in freier Wildbahn gehalten wurden und ob sie vom Festland oder von den Inseln stammten – untersagt. Das Ausfuhrverbot führte gemäß Public Law 91-135 (1969) automatisch zu einem Einfuhrverbot in die Vereinigten Staaten. [ 154 ] Ein ecuadorianisches Dekret aus dem Jahr 1971 verbot es, Organismen, Gesteine oder andere natürliche Objekte im Nationalpark zu beschädigen, zu entfernen, zu verändern oder zu stören. [ 155 ]
Zucht in Gefangenschaft
Mit der Gründung des Galapagos-Nationalparks und des CDF im Jahr 1959 begann eine Überprüfung des Zustands der Riesenschildkrötenpopulationen. Nur noch 11 der ursprünglich 14 Populationen existierten, und die meisten davon waren gefährdet oder standen bereits kurz vor dem Aussterben. Das Zucht- und Aufzuchtprogramm für Riesenschildkröten wurde als Reaktion auf den Zustand der Population auf Pinzón ins Leben gerufen, wo weniger als 200 alte, ausgewachsene Tiere gefunden wurden. Alle Jungtiere waren seit über einem Jahrhundert von eingeschleppten Ratten getötet worden. Ohne Hilfe wäre diese Population schließlich ausgestorben. Einzig die Langlebigkeit der Schildkröte bewahrte sie vor dem Aussterben. [ 156 ] Ihre genetische Resistenz gegen die negativen Auswirkungen von Inzucht spielte dabei eine weitere Rolle. [ 151 ]
Zucht- und Auswilderungsprogramme begannen 1965 und haben sieben der acht gefährdeten Unterarten erfolgreich auf ein weniger gefährdendes Populationsniveau gebracht. Junge Schildkröten werden in mehreren Zuchtzentren auf den Inseln aufgezogen, um ihr Überleben während ihrer empfindlichen frühen Entwicklungsphase zu verbessern. Eier werden an bedrohten Nistplätzen gesammelt, und die geschlüpften Jungtiere erhalten einen Vorsprung, indem sie vier bis fünf Jahre in Gefangenschaft gehalten werden, um eine Größe zu erreichen, die ihnen eine deutlich höhere Überlebenschance bis zum Erwachsenenalter bietet, bevor sie in ihre natürlichen Lebensräume ausgewildert werden. [ 111 ] [ 135 ]
Die bedeutendste Populationserholung betraf die Spanische Landschildkröte ( C. n. hoodensis ), die vor dem sicheren Aussterben gerettet wurde. Der Bestand war auf drei Männchen und zwölf Weibchen dezimiert, die so weit verstreut waren, dass keine Paarung in freier Wildbahn stattfand. [ 157 ] Die erfolglosen Versuche, eine der Schildkröten, beispielsweise Lonesome George, zu züchten, werden vermutlich auf fehlende postnatale Signale [ 158 ] und Unklarheiten darüber zurückgeführt, welche genetische Unterart für eine Paarung auf den Inseln am besten geeignet wäre. [ 18 ] Die 15 verbliebenen Schildkröten wurden 1971 für ein Zuchtprogramm in die Charles-Darwin-Forschungsstation gebracht [ 159 ] und brachten in den folgenden 33 Jahren über 1200 Nachkommen zur Welt, die auf ihrer Heimatinsel freigelassen wurden und sich seitdem auf natürliche Weise fortpflanzen. [ 160 ] [ 161 ] Eine der Schildkröten, Diego, ist einer der Hauptakteure bei der bemerkenswerten Erholung der Unterart hoodensis ; er hat zwischen 350 und 800 Nachkommen gezeugt. [ 162 ]
Inselwiederherstellung
Der Nationalparkdienst der Galápagos-Inseln dezimiert systematisch verwilderte Raubtiere und Konkurrenten. Die Ausrottung der Ziegenpopulation auf den Inseln, darunter auch Pinta, erfolgte durch den Einsatz von sogenannten „ Judasziegen “, die mit Peilsendern versehen wurden, um die Herden aufzuspüren. Schützen erlegten dann alle Ziegen bis auf die Judasziege und kehrten Wochen später zurück, um die Judasziege zu finden und die Herde zu erlegen, zu der sie umgezogen war. Nach einer 30-jährigen Ausrottungskampagne wurden die Ziegen von der Insel Pinta entfernt – die größte jemals mit bodengestützten Methoden durchgeführte Dezimierung einer Inselziegenpopulation. Über 41.000 Ziegen wurden während der ersten Jagdaktion (1971–1982) erlegt. [ 163 ] Dieser Prozess wurde so lange wiederholt, bis nur noch die Judasziege übrig war, die dann getötet wurde. [ 164 ] Weitere Maßnahmen umfassten die Ausrottung von Hunden auf San Cristóbal und das Einzäunen von Nestern zum Schutz vor Wildschweinen. [ 111 ]
Derzeit laufen Bemühungen, ehemals von Schildkröten bewohnte Inseln wieder zu besiedeln und ihre Ökosysteme ( Inselrestaurierung ) in ihren Zustand vor der Ankunft des Menschen zurückzuversetzen. Die Schildkröten sind eine Schlüsselart und fungieren als Ökosystemingenieure [ 164 ] , die zur Verbreitung von Pflanzensamen beitragen , Unterholz niedertreten und die Vegetation ausdünnen (wodurch Licht eindringen und die Keimung ermöglichen). Vögel wie Fliegenschnäpper sitzen auf den Schildkröten und fliegen um sie herum, um die Insekten zu jagen, die diese aus dem Unterholz vertreiben. [ 87 ] Im Mai 2010 wurden 39 sterilisierte Schildkröten hybrider Herkunft auf der Insel Pinta ausgesetzt – die ersten Schildkröten dort seit der Evakuierung von Lonesome George 38 Jahre zuvor. [ 165 ] Sterile Schildkröten wurden freigelassen, um das Problem der Kreuzung zwischen Unterarten zu vermeiden, falls in Zukunft fruchtbare Schildkröten freigelassen werden sollten. Man hofft, dass mit der kürzlich erfolgten Identifizierung einer Hybrid- Schildkröte der Art C. n. abingdonii die genetische Zusammensetzung der ursprünglichen Bewohner von Pinta durch die Identifizierung und Umsiedlung geeigneter Exemplare auf diese Insel wiederhergestellt werden kann. [ 72 ] Dieser Ansatz könnte zukünftig auch für die Wiederansiedlung von Floreana-Schildkröten genutzt werden, da in Gefangenschaft gehaltene Tiere nachweislich vom ausgestorbenen ursprünglichen Bestand abstammen. [ 68 ] Ein von Conservation International Ecuador durchgeführtes Projekt der Globalen Umweltfazilität (GEF) mit Schwerpunkt auf Biosicherheit und Ökosystemwiederherstellung umfasst die Umsiedlung von Schildkröten auf die Insel Santa Fe . [ 166 ]
Angewandte Wissenschaft
Das Galapagos-Riesenschildkröten-Bewegungsökologieprogramm ist ein Kooperationsprojekt unter der Leitung von Dr. Stephen Blake vom Max-Planck-Institut für Ornithologie. Ziel ist es, den Galapagos-Nationalpark bei der effektiven Erhaltung der Riesenschildkröten zu unterstützen, indem innovative angewandte Forschung betrieben und ein inspirierendes, auf Schildkröten basierendes Öffentlichkeits- und Bildungsprogramm entwickelt wird. Seit 2009 analysiert das Projektteam die Wanderungen der Riesenschildkröten mithilfe von Satellitensendern. Bis November 2014 wurden 83 Schildkröten aus vier Unterarten auf drei Inseln markiert. Die Forscher stellten fest, dass Riesenschildkröten Wanderungen entlang von Vulkanen unternehmen, vor allem als Reaktion auf saisonale Veränderungen in der Verfügbarkeit und Qualität der Vegetation. [ 167 ] Im Jahr 2015 begann das Team, die Wanderungen von Jungtieren und jungen Schildkröten zu verfolgen, unterstützt vom britischen Galapagos Conservation Trust . [ 168 ]
Siehe auch
Anmerkungen
- Die erste Seekarte, auf der die einzelnen Inseln verzeichnet waren, wurde 1684 von dem Piraten Ambrose Cowley erstellt . Er benannte sie nach Piratenkameraden oder englischen Adligen. Später gab die ecuadorianische Regierung den meisten Inseln spanische Namen. Obwohl die spanischen Namen offiziell sind, verwenden viele Forscher weiterhin die älteren englischen Namen, insbesondere da diese auch zu Darwins Zeiten gebräuchlich waren. Dieser Artikel verwendet die spanischen Inselnamen.
Referenzen
- ^ a b Tortoise & Freshwater Turtle Specialist Group. (2016). Chelonoidis nigra . The IUCN Red List of Threatened Species doi : 10.2305/IUCN.UK.2016-1.RLTS.T9023A97224409.en
- ^ a b White Matt (14. März 2025). „2002: Größte Schildkröte“ . Offizielles Guinness-Buch der Rekorde . Abgerufen am 14. März 2025 .
- ^ Blake, Stephen; Wikelski, Martin; Cabrera, Fredy; Guezou, Anne; Silva, Miriam; Sadeghayobi, E.; Yackulic, Charles B.; Jaramillo, Patricia (2012). „Samenverbreitung durch Galápagos-Schildkröten“ . Zeitschrift für Biogeographie . 39 (11): 1961–1972 . Bibcode : 2012JBiog..39.1961B . doi : 10.1111/j.1365-2699.2011.02672.x . S2CID 52209043 .
- ^ Galapagos-Schildkröte in der Datenbank AnAge
- ^ Woram, John (o. J.). „Über den Ursprung der
Arten'Galápago'“" . Las Encantadas: Human and Cartographic History of the Galápagos Islands . Rockville Press, Inc . Abgerufen am 21. September 2016 . - ^ Blake, Stephen; Yackulic, Charles; Cabrera, Fredy; Tapia, Washington; Gibbs, James; Kummeth, Franz; Wikelski, Martin (21. November 2012). „Vegetationsdynamik treibt die Trennung nach Körpergröße bei Galapagos-Schildkröten an, die über Höhengradienten wandern“ . Journal of Animal Ecology . 82 (2): 310–321 . doi : 10.1111/1365-2656.12020 . PMID 23171344 .
- ^ MacFarland, CG; Villa, J.; Toro, B. (April 1974). „Die Galápagos-Riesenschildkröten (Geochelone elephantopus) Teil 1: Status der überlebenden Populationen“. Biological Conservation . 6 (2): 118–133 . doi : 10.1016/0006-3207(74)90024-X – via Elsevier Science Direct.
- ^ Stewart, P. D. (2006). Galápagos: Die Inseln, die die Welt veränderten . New Haven: Yale University Press. S. 43. ISBN 978-0-300-12230-5Die
- ^ Pritchard 1996 , S. 17
- ^ Jackson , Michael Hume (1993). Galápagos, eine Naturgeschichte . Calgary: University of Calgary Press. S. 1. ISBN 978-1-895176-07-0Die
- ^ Chambers 2004 , S. 27
- ^ Perrault, Claude (1676). Suite des Memoires pour servir a l'histoire naturelle des animaux (auf Französisch). Paris: Académie de Sciences. S. 92–205 .
- ^ Schneider, Johann Gottlob (1783). Allgemeine Naturgeschischte der Schildkröten nebs einem systematischen Verzeichnisse der einzelnen Arten und zwei Kupfen (auf Deutsch). Leipzig. S. 355–356 . Abgerufen am 11. Januar 2012 .
- ^ Schweigger, August Friedrich (1812). „Prodromi monographiae chelonorum sectio prima“. Archiv für Naturwissenschaft und Mathematik (in Latein). 1 : 271–368 , 406–462 .
- ^ a b c Duméril, André Marie Constant ; Bibron, Gabriel (1834). Erpétologie générale; ou, histoire naturelle complète des reptiles (auf Französisch). Frankreich: Librarie Encyclopédique de Roret.
- Günther , Albert ( 1875 ). „Beschreibung der lebenden und ausgestorbenen Rassen der Riesenschildkröten. Teil I und II. Einleitung und die Schildkröten der Galapagosinseln“ . Philosophical Transactions of the Royal Society B. 165 ( 165 ): 251–284 . Bibcode : 1875RSPT..165..251G . doi : 10.1098/rstl.1875.0007 . JSTOR 109147 .
- ^ Günther 1877 , S. 9
- Caccone , A.; Gibbs, J. P.; Ketmaier , V.; Suatoni, E.; Powell, J. R. (1999). „ Ursprung und evolutionäre Verwandtschaftsverhältnisse der Riesenschildkröten von Galapagos“ . Proceedings of the National Academy of Sciences . 96 (23): 13223–13228 . Bibcode : 1999PNAS...9613223C . doi : 10.1073 / pnas.96.23.13223 . JSTOR 49147. PMC 23929. PMID 10557302 .
- ^ Austin, Jeremy; Arnold, E. Nicholas (2001). „Mitochondriale DNA und Morphologie der Urzeit erhellen eine ausgestorbene Inselradiation der Riesenschildkröten (Cylindraspis) im Indischen Ozean“ . Philosophical Transactions of the Royal Society B. 268 ( 1485 ): 2515–2523 . Bibcode : 2001PBioS.268.2515A . doi : 10.1098 / rspb.2001.1825 . PMC 1088909. PMID 11749704 .
- Austin , Jeremy; Arnold, E. Nicholas; Bour, Roger (2003). „Gab es eine zweite adaptive Radiation von Riesenschildkröten im Indischen Ozean? Untersuchung der Artbildung und Biogeographie von Aldabrachelys anhand mitochondrialer DNA . “ Molecular Ecology . 12 (6): 1415–1424 . doi : 10.1046/j.1365-294X.2003.01842.x . PMID 12755871. S2CID 1518514 .
- ^ a b c d Baur, G. (1889). „Die gigantischen Landschildkröten der Galapagosinseln“ (PDF) . The American Naturalist . 23 (276): 1039–1057 . Bibcode : 1889ANat...23.1039B . doi : 10.1086/275045 . S2CID 85198605. Abgerufen am 11. Januar 2012 .
- ^ a b Rothschild, Walter (1901). „Über eine neue Landschildkröte von den Galapagosinseln“ . Novitates Zoologicae . 8 : 372. Abgerufen am 11. Januar 2012 .
- ^ a b Rothschild, Walter (1903). „Beschreibung einer neuen Art von Riesenschildkröte von der Insel Indefatigable“ . Novitates Zoologicae . 10 : 119. Abgerufen am 11. Januar 2012 .
- ^ a b c Rothschild, Walter (1902). „Beschreibung einer neuen Art von Riesenschildkröten von den Galápagos-Inseln“ . Novitates Zoologicae . 9 : 619. Abgerufen am 11. Januar 2012 .
- Van Denburgh, John (1907). „ Vorläufige Beschreibungen von vier neuen Rassen gigantischer Landschildkröten von den Galapagosinseln“ . Proceedings of the California Academy of Sciences . Serie 4. 1 : 1–6 . Abgerufen am 12. Januar 2012 .
- ^ a b c d e f g h i Van Denburgh, John (1914). „Die gigantischen Landschildkröten des Galapagos-Archipels“ . Proceedings of the California Academy of Sciences . Serie 4. 2 (1): 203–374 .
- ^ a b c Rhodin, AGJ; van Dijk, PP (2010). Iverson, JB; Shaffer, HB (Hrsg.). Turtles of the World, 2010 update: Annotated checklist of taxonomy, synonymy, distribution and conservation status . Turtle Taxonomy Working Group . Chelonian Research Foundation. S. 33–34 . doi : 10.3854/crm.5.000.checklist.v3.2010 . ISBN 978-0-9653540-9-7Die
- ^ a b c d Quoy, GFS; Gaimard, JP (1824). „Sous-genre tortue de terre – Testudo . brongn. tortue noire – Testudo nigra . N.“ In de Freycinet, ML (Hrsg.). Voyage autour du Monde ... erstellt auf den Korvetten des LM „L'Uranie“ und „La Physicienne“, anlässlich der Jahre 1817, 1818, 1819 und 1820 (auf Französisch). Paris. S. 174–175 .
- ^ Pritchard, Peter Charles Howard (1984). „Weitere Gedanken zu Lonesome George“. Noticias de Galápagos . 39 : 20–23 .
- ^ a b Harlan, Richard (1827). „Beschreibung einer Landschildkröte von den Galápagos-Inseln, die gemeinhin als „Elefantenschildkröte“ bekannt ist“" . Journal of the Academy of Natural Sciences of Philadelphia . 5 : 284– 292 . Abgerufen am 11. Januar 2012 .
- ^ a b c d e Garman, Samuel (1917). „Die Galapagos-Schildkröten“. Memoiren des Museums für Vergleichende Zoologie am Harvard College . 30 (4): 261–296 .
- ^ a b c Quoy, GFS; Gaimard, JP (1824). „Beschreibung einer neuen Spezialität der Tortue und der drei neuen Spezialeinheiten der Krim“. Bulletin des Sciences Naturelles et de Géologie (auf Französisch). 1 : 90–91 .
- ^ Pritchard, Peter Charles Howard (1997). „Galapagos-Schildkröten-Nomenklatur: eine Antwort“. Chelonian Conservation and Biology . 2 : 619.
- ^ Obst, FJ 1986. Schildkröten, Landschildkröten und Wasserschildkröten. St. Martins, New York. 231 S.
- Le , Minh; Raxworthy, Christopher J.; McCord, William P .; Mertz, Lisa (2006). „ Eine molekulare Phylogenie der Schildkröten (Testudines: Testudinidae) basierend auf mitochondrialen und nukleären Genen“ (PDF) . Molecular Phylogenetics and Evolution . 40 (2): 517–531 . Bibcode : 2006MolPE..40..517L . doi : 10.1016/j.ympev.2006.03.003 . PMID 16678445. Archiviert vom Original (PDF) am 16. März 2012. Abgerufen am 11. April 2012 .
- ^ Fritz, U.; Havaš, P. (2007). „Checkliste der Schildkröten der Welt“ . Vertebrate Zoology . 57 (2): 149–368 . doi : 10.3897/vz.57.e30895 . S2CID 87809001 .
- ^ a b „CITES-Anhänge I, II und III 2011“ . 22. Dezember 2011. Abgerufen am 11. Januar 2012 .
- ^ Arbeitsgruppe Schildkröten-Taxonomie ; Rhodin, AGJ; Iverson, JB; Bour, R.; Fritz, U.; Georges, A.; Shaffer, HB; van Dijk, PP (2017). „Schildkröten der Welt: Kommentierte Checkliste und Atlas der Taxonomie, Synonymie, Verbreitung und des Schutzstatus“ (PDF) . In: Rhodin, AGJ; Iverson, JB; van Dijk, PP; Saumure, RA; Buhlmann, KA; Pritchard, PCH; Mittermeier, RA (Hrsg.). Schutzbiologie von Süßwasserschildkröten: Ein Kompilationsprojekt der IUCN/SSC-Fachgruppe für Schildkröten und Süßwasserschildkröten. Chelonian Research Monographs . 7 (8. Aufl.). S. 1–292 . doi : 10.3854/crm.7.checklist.atlas.v8.2017 . ISBN 978-1-5323-5026-9Abgerufen am 14. Oktober 2017 .
- ^ a b Poulakakis, Nikos; Glaberman, Scott; Russello, Michael; Beheregaray, Luciano B.; Ciofi, Claudio; Powell, Jeffrey R.; Caccone, Adalgisa (2008). „Historische DNA-Analyse enthüllt lebende Nachkommen einer ausgestorbenen Galapagos-Schildkrötenart“ . Proceedings of the National Academy of Sciences . 105 (40): 15464–15469 . Bibcode : 2008PNAS..10515464P . doi : 10.1073/pnas.0805340105 . PMC 2563078. PMID 18809928 .
- ^ Broom, R. (1929). „Über die ausgestorbene Galápagos-Schildkröte, die Charles Island bewohnte“. Zoologica . 9 (8): 313–320 .
- ^ a b Steadman, David W. (1986). „Holozäne Wirbeltierfossilien von Isla Floreana, Galápagos“. Smithsonian Contributions to Zoology . 413 (413): 1–103 . Bibcode : 1986SCZoo.413....1S . doi : 10.5479/si.00810282.413 . S2CID 129836489 .
- ^ a b Sulloway, FJ (1984). Berry, RJ (Hrsg.). „Evolution in the Galápagos Islands: Darwin and the Galápagos“. Biological Journal of the Linnean Society . 21 ( 1–2 ): 29–60 . doi : 10.1111/j.1095-8312.1984.tb02052.x .
- ^ Pritchard 1996 , S. 63
- Swingland, IR ( 1989 ). Geochelone elephantopus. Galapagos - Riesenschildkröten . In: Swingland IR und Klemens MW (Hrsg.) Die Naturschutzbiologie der Schildkröten . Gelegentliche Veröffentlichungen der IUCN Species Survival Commission ( SSC ), Nr. 5, S. 24–28. Gland , Schweiz: IUCN. ISBN 2-88032-986-8Die
- ^ a b c d e MacFarland; Craig G.; Villa, José; Toro, Basilio (1974). „Die Galápagos-Riesenschildkröten ( Geochelone elephantopus ). I. Status der überlebenden Populationen“ . Biological Conservation . 6 (2): 118–133 . doi : 10.1016/0006-3207(74)90024-X .
- ^ a b „Schildkröte, die als ausgestorben galt, auf abgelegener Galapagosinsel entdeckt“ . The New York Times . Associated Press. 20. Februar 2019. ISSN 0362-4331 . Abgerufen am 21. Februar 2019 .
- ^ „Lebend gefundene Galapagos-Schildkröte gehört einer als ausgestorben geltenden Art an“ . 26. Mai 2021. Abgerufen am 26. Mai 2021 .
- ^ MacFarland, Craig G.; Villa, José; Toro, Basilio (1974b). „Die Galápagos-Riesenschildkröten ( Geochelone elephantopus ). Teil II: Schutzmaßnahmen“ . Biological Conservation . 6 (3): 198–212 . Bibcode : 1974BCons...6..198M . doi : 10.1016/0006-3207(74)90068-8 .
- ^ ein b Márquez, Cruz; Fritts, Thomas H.; Köster, Friedmann; Rea, Solanda; Cepeda, Fausto; Llerena & Fausto (1995). „Comportamiento de apareamiento al azar en tortugas gigantes. Juveniles en cautiverio el las Islas Galápagos“ (PDF) . Revista de Ecología Latinoamericana (auf Spanisch). 3 : 13–18 . Archiviert vom Original (PDF) am 11. Februar 2006 . Abgerufen am 11. Januar 2012 .
- ^ a b c Pritchard 1996 , S. 49
- Fritts , Thomas H. (1984). „ Evolutionäre Divergenz der Riesenschildkröten auf Galapagos“. Biological Journal of the Linnean Society . 21 ( 1–2 ): 165–176 . Bibcode : 1984BJLS...21..165F . doi : 10.1111/ j.1095-8312.1984.tb02059.x .
- ^ a b c d e f g h i De Vries, TJ (1984). „Die Riesenschildkröten: Eine vom Menschen gestörte Naturgeschichte“. Schlüsselumgebungen: Galapagos . Oxford: Pergamon Press. S. 145–156 . ISBN 978-0-08-027996-1Die
- ^ Ernst, Carl H.; Barbour, Roger (1989). Turtles of the World . Washington, DC: Smithsonian Institution Press. ISBN 978-0-87474-414-9Die
- ^ a b Poulakakis, Nikos; Glaberman, Scott; Russello, Michael; Beheregaray, Luciano B.; Ciofi, Claudio; Powell, Jeffrey R.; Caccone, Adalgisa (2008). „Historische DNA-Analyse enthüllt lebende Nachkommen einer ausgestorbenen Galapagos-Schildkrötenart“ . Proceedings of the National Academy of Sciences . 105 (40): 15464–15469 . Bibcode : 2008PNAS..10515464P . doi : 10.1073/pnas.0805340105 . PMC 2563078. PMID 18809928 .
- ^ Kehlmaier, Christian; Albury, Nancy A.; Steadman, David W.; Graciá, Eva; Franz, Richard; Fritz, Uwe (9. Februar 2021). „Mitogenomische Untersuchungen an alten Tieren entschlüsseln die Diversität ausgestorbener westindischer Schildkröten“ . Scientific Reports . 11 (1): 3224. Bibcode : 2021NatSR..11.3224K . doi : 10.1038/s41598-021-82299-w . ISSN 2045-2322 . PMC 7873039. PMID 33564028 .
- ^ „Tortoise and Freshwater Turtle Specialist Group“ . Abgerufen am 24. März 2022 .
- ^ „Chelonoidis niger“ . The Reptile Database . Abgerufen am 24. März 2022 .
- ^ Zug, George R. (1997). „Die Nomenklatur der Galapagos-Schildkröten: noch immer ungelöst“. The Journal of Chelonian Conservation and Biology . 2 (4): 618–619 . hdl : 10088/11695 .
- ^ Gray, John Edward (1853). „Beschreibung einer neuen Schildkrötenart ( Testudo planiceps ) von den Galapagosinseln“ . Proceedings of the Zoological Society of London . 21 (1): 12–13 . doi : 10.1111/j.1469-7998.1853.tb07165.x . Abgerufen am 11. Januar 2012 .
- ^ Williams, Ernest E.; Anthony, Harold Elmer; Goodwin, George Gilbert (1952). „Eine neue fossile Schildkröte von Mona Island, Westindische Inseln, und eine vorläufige Einteilung der Schildkröten der Welt“. Bulletin of the American Museum of Natural History . 99 (9): 541–560 . hdl : 2246/418 .
- ^ Pritchard, Peter Charles Howard (1967). Lebende Schildkröten der Welt . New Jersey: TFH Publications. S. 156.
- ^ Bour, R. (1980). „Essai sur la taxomie des Testudinidae actuels (Reptilia, Chelonii)“. Bulletin du Muséum National d'Histoire Naturelle (auf Französisch). 4 (2): 546.
- ^ Günther 1877 , S. 85
- ^ ein b DeSola, Ralph (1930). „Das Liebesspiel von Testudo vandenburghi , ein neuer Name für die Galápagos-Schildkröte der mittleren Albemarle-Insel“. Copeia . 1930 (3): 79–80 . doi : 10.2307/1437060 . JSTOR 1437060 .
- ^ Fritz Uwe; Peter Havaš (2007). „Checkliste der Schildkröten der Welt“ . Vertebrate Zoology . 57 (2): 271–276 . doi : 10.3897/vz.57.e30895 . ISSN 1864-5755 . S2CID 87809001 .
- Ciofi , Claudio; Wilson, Gregory A.; Beheregaray, Luciano B.; Marquez, Cruz; Gibbs, James P.; Tapia, Washington; Snell, Howard L.; Caccone, Adalgisa; Powell, Jeffrey R. (2006). „ Phylogeographische Geschichte und Genfluss bei Riesenschildkröten der Galápagos-Inseln im Süden der Insel Isabela“ . Genetics . 172 (3): 1727–1744 . Bibcode : 2006Genet.172.1727C . doi : 10.1534/genetics.105.047860 . PMC 1456292. PMID 16387883 .
- ^ a b c Pritchard 1996 , S. 65
- Russello , Michael A.; Poulakakis, Nikos; Gibbs, James P.; Tapia, Washington; Benavides, Edgar; Powell, Jeffrey R.; Caccone, Adalgisa (2010). „ DNA aus der Vergangenheit informiert über Ex-situ-Erhaltung für die Zukunft: Eine ausgestorbene Galapagos-Schildkrötenart in Gefangenschaft identifiziert“ . PLOS ONE . 5 (1) e8683. Bibcode : 2010PLoSO...5.8683R . doi : 10.1371/journal.pone.0008683 . PMC 2800188. PMID 20084268 .
- ^ Garrick, Ryan; Benavides, Edgar; Russello, Michael A.; Gibbs, James P.; Poulakakis, Nikos; Dion, Kirstin B.; Hyseni, Chaz; Kajdacsi, Brittney; Márquez, Lady; Bahan, Sarah; Ciofi, Claudio; Tapia, Washington; Caccone, Adalgisa (2012). „Genetische Wiederentdeckung einer ‚ausgestorbenen‘ Riesenschildkrötenart der Galápagos-Inseln“ . Current Biology . 22 (1): R10–1. Bibcode : 2012CBio...22..R10G . doi : 10.1016/j.cub.2011.12.004 . PMID 22240469 .
- ^ Pak, Hasong; Zaneveld, JRV (1973). „Der Cromwellstrom an der Ostseite der Galapagosinseln“ (PDF) . Journal of Geophysical Research . 78 (33): 7845–7859 . Bibcode : 1973JGR....78.7845P . doi : 10.1029/JC078i033p07845 . Archiviert vom Original (PDF) am 24. Dezember 2016.
- ^ Nicholls 2006 , S. 161
- Russello , Michael A.; Beheregaray, Luciano B.; Gibbs, James P.; Fritts, Thomas; Havill, Nathan; Powell, Jeffrey R.; Caccone, Adalgisa (2007). „Lonesome George is not alone among Galapagos tortoises“ (PDF) . Current Biology . 17 (9): R317– R318 . Bibcode : 2007CBio...17.R317R . doi : 10.1016 / j.cub.2007.03.002 . PMID 17470342. S2CID 3055405 .
- Russello, Michael A.; Glaberman, Scott; Gibbs, James P.; Marquez, Cruz; Powell, Jeffrey R.; Caccone, Adalgisa (2005). „Ein kryptisches Taxon der Galapagos - Schildkröte in Gefahr“ . Biology Letters . 1 (3): 287–290 . Bibcode : 2005BiLet ...1..287R . doi : 10.1098/rsbl.2005.0317 . PMC 1617146. PMID 17148189 .
- ^ a b Chiari, Ylenia; Hyseni, Chaz; Fritts, Tom H.; Glaberman, Scott; Marquez, Cruz; Gibbs, James P.; Claude, Julien; Caccone, Adalgisa (2009). „Morphometrie parallel zur Genetik bei einem neu entdeckten und gefährdeten Taxon der Galápagos -Schildkröte“ . PLOS ONE . 4 (7) e6272. Bibcode : 2009PLoSO...4.6272C . doi : 10.1371/journal.pone.0006272 . PMC 2707613. PMID 19609441 .
- Caccone , A.; Gentile, G.; Gibbs, JP; Fritts, TH; Snell, HL; Betts, J.; Powell, JR (Oktober 2002). „ Phylogeographie und Geschichte der Riesenschildkröten von Galapagos“ . Evolution . 56 ( 10 ): 2052–2066 . doi : 10.1111/j.0014-3820.2002.tb00131.x . JSTOR 3094648. PMID 12449492. S2CID 9149151 .
- ^ Ciofi, Claudio; Milinkovitch, Michel C.; Gibbs, James P.; Caccone, Adalgisa; Powell, Jeffrey R. (2002). „Mikrosatellitenanalyse der genetischen Divergenz zwischen Populationen der Riesenschildkröten der Galápagosinseln“. Molecular Ecology . 11 (11): 2265–2283 . Bibcode : 2002MolEc..11.2265C . doi : 10.1046/ j.1365-294X.2002.01617.x . PMID 12406238. S2CID 30172900 .
- ^ a b c d e Poulakakis, N.; Edwards, DL; Chiari, Y.; Garrick, RC; Russello, MA; Benavides, E.; Watkins-Colwell, GJ; Glaberman, S.; Tapia, W.; Gibbs, JP; Cayot, LJ; Caccone, A. (21. Oktober 2015). „Beschreibung einer neuen Galapagos-Riesenschildkrötenart (Chelonoidis; Testudines: Testudinidae) vom Cerro Fatal auf der Insel Santa Cruz“ . PLUS EINS . 10 (10) e0138779. Bibcode : 2015PLoSO..1038779P . doi : 10.1371/journal.pone.0138779 . PMC 4619298 . PMID 26488886 .
- ^ Marris, E. (21. Oktober 2015). „Genetische Untersuchung identifiziert neue Galapagos-Schildkrötenart“ . Nature . doi : 10.1038/nature.2015.18611 . S2CID 182351587 .
- ^ a b „Yale-Team identifiziert neue Riesenschildkrötenart auf den Galapagosinseln“ . Yale News . 21. Oktober 2015. Abgerufen am 27. Oktober 2015 .
- ^ „Insel Pinzón, Galápagos“ . Inselschutz . Abgerufen am 7. März 2018 .
- ^ „Webcam-Projekt für Riesenschildkröten“ . Galapagos Conservancy. Archiviert vom Original am 4. Mai 2015. Abgerufen am 4. Mai 2015 .
- ^ Webb, Jonathan (28. Oktober 2014). „Riesenschildkröte erholt sich auf wundersame Weise“ . BBC News . Abgerufen am 9. Juni 2015 .
- ^ Picheta, Rob (11. Januar 2020). „Diese Schildkröte hatte so viel Sex, dass sie ihre Art rettete. Jetzt geht sie nach Hause .“ CNN . Abgerufen am 12. Januar 2020 .
- ^ „Galapagos: ‚Ausgestorbene‘ Riesenschildkröte entdeckt“ . NewsComAu . Deutsche Presse-Agentur. 20. Februar 2019 – via news.com.au.
- ^ ein b „Santa Fé“ . Galapagos Conservancy, Inc. Abgerufen am 29. März 2021 .
- ^ Tapia A., Washington; Goldspiel, Harrison; Sevilla, Christian; Málaga, Jeffreys; Gibbs, James P. (1. Januar 2021), „Kapitel 24 – Santa Fe Island: Rückkehr der Schildkröten durch eine Ersatzart“ , in Gibbs, James P.; Cayot, Linda J.; Aguilera, Washington Tapia (Hrsg.), Galapagos Giant Tortoises , Biodiversity of World: Conservation from Genes to Landscapes, Academic Press, S. 483–499 , ISBN 978-0-12-817554-5abgerufen am 29. März 2021
- ^ a b c d MacFarland, CG (1972). „Riesenschildkröten, Goliaths der Galapagosinseln“. National Geographic Magazine . 142 : 632–649 .
- ^ de Berlanga, Tomás (1535). „Brief an Seine Majestät … mit der Beschreibung seiner Reise von Panama nach Puerto Viejo“. Coleccion de Documentos Ineditos relativos al Descubrimiento, Conquista y Organizacion de las Antiguas Posesiones Españolas de América y Oceania (auf Spanisch). Bd. 41. Madrid: Manuel G. Hernandez. S. 538–544 .
- ^ a b c d e f Darwin 1839 , S. 462–466
- ^ Ebersbach, VK (2001). Zur Biologie und Haltung der Aldabra-Riesenschildkröte (Geochelone gigantea) und der Galapagos-Riesenschildkröte (Geochelone Elephantopus) in menschlicher Obhut unter besonderer Berücksichtigung der Fortpflanzung (PDF) (Doktorarbeit) (auf Deutsch). Hannover: Tierärztliche Hochschule.
- Fritts , T. H. (1983). „ Morphometrie von Galapagos-Schildkröten: evolutionäre Implikationen“. In: Bowman, I. R.; Berson, M.; Leviton, A. E. (Hrsg.). Evolutionsmuster bei Organismen der Galapagosinseln . San Francisco: American Association for the Advancement of Science. S. 107–122 . ISBN 978-0-934394-05-5Die
- ^ McAllister, CT; Duszynski, DW; Roberts, DT (2014). „Ein neues Kokzidien (Apicomplexa: Eimeriidae) von der Galápagos-Schildkröte, Chelonoidis sp. (Testudines: Testudinidae), aus dem Dallas Zoo“. Zeitschrift für Parasitologie . 100 (1): 128–132 . doi : 10.1645/13-307.1 . PMID 24006862 . S2CID 25989466 .
- ^ Caporaso, F. Das Galápagos-Schildkrötenschutzprogramm: die Notlage und die Zukunft der Pinzón-Inselschildkröte .
- ^ Pritchard 1996 , S. 18
- ^ Auffenberg, Walter (1971). „Eine neue fossile Schildkröte mit Bemerkungen zum Ursprung der südamerikanischen Testudininen“. Copeia . 1971 (1): 106–117 . doi : 10.2307/1441604 . JSTOR 1441604 .
- ^ Dawson, EY (1966). „Kakteen auf den Galápagos-Inseln, insbesondere in Bezug auf ihre Beziehungen zu Schildkröten“ . In: Bowman, RI (Hrsg.). Die Galápagos- Inseln. Berkeley: University of California Press. S. 209–214 .
- ^ de Neira, Lynn E. Fowler; Roe, John H. (1984). „Schlüpferfolg von Schildkrötennestern und der Einfluss verwilderter Esel auf den Nesterfolg auf dem Vulkan Alcedo, Galapagos“. Copeia . 1984 (3): 702–707 . doi : 10.2307/1445152 . JSTOR 1445152 .
- Schafer , Susan F.; Krekorian, C. O'Neill (1983). „ Agonistisches Verhalten der Galapagos-Riesenschildkröte, Geochelone elephantopus , mit Schwerpunkt auf dessen Beziehung zur sattelförmigen Panzerform“. Herpetologica . 39 ( 4 ): 448–456 . JSTOR 3892541 .
- ^ Marlow, Ronald William; Patton, James L. (1981). „Biochemische Verwandtschaftsverhältnisse der Galápagos-Riesenschildkröten ( Geochelone elephantopus )“ . Journal of Zoology . 195 (3): 413–422 . doi : 10.1111/j.1469-7998.1981.tb03474.x .
- ^ a b Carpenter, Charles C. (1966). „Notes on the behavior and ecology of the Galapagos tortoise on Santa Cruz island“. Proceedings of the Oklahoma Academy of Science . 46 : 28–32 .
- ^ Jackson , MH (1993). Galápagos, eine Naturgeschichte . University of Calgary Press. S. 107. ISBN 978-1-895176-07-0Die
- ^ Daggett, Frank S. (1. Januar 1915). „Eine Galapagos-Schildkröte“ . Science . 42 ( 1096 ): 933–934 . Bibcode : 1915Sci....42..933D . doi : 10.1126/science.42.1096.933-a . JSTOR 1640003. PMID 17800728. S2CID 5198874 .
- ^ Cayot, Linda Jean (1987). Ökologie der Riesenschildkröten ( Geochelone elephantopus ) auf den Galápagos-Inseln (Dissertation). Syracuse University .
- ^ Hatt, Jean-Michel; Class, Marcus; Gisler, Ricarda; Liesegang, Annette; Wanner, Marcel (2005). „Faserverdaulichkeit bei jungen Galapagos-Riesenschildkröten ( Geochelone nigra ) und ihre Bedeutung für die Entwicklung von Tieren in Gefangenschaft“. Zoo Biology . 24 (2): 185–191 . doi : 10.1002/zoo.20039 .
- ^ a b c Porter, David (1815). Journal of the cruise made to the Pacific Ocean by Captain Porter in the United States Frigate Essex in the years 1812, 1813, 1814 . New York: Wiley & Halsted. p. 151 .
- ^ National Geographic Society (10. September 2010). „Galapagos-Schildkröten, Bilder von Galapagos-Schildkröten, Fakten über Galapagos-Schildkröten – National Geographic“ . National Geographic . Archiviert vom Original am 7. Februar 2010.
- ^ MacFarland, Craig G.; Reeder, WG (1974). „Reinigungssymbiose zwischen Galápagos-Schildkröten und zwei Arten von Darwinfinken“. Zeitschrift für Tierpsychologie . 34 (5): 464–483 . doi : 10.1111/j.1439-0310.1974.tb01816.x . PMID 4454774 .
- Bonin , Franck; Devaux, Bernard; Dupré, Alain (2006). Turtles of the World . Pritchard, Peter Charles Howard. Baltimore: Johns Hopkins University Press. ISBN 978-0-8018-8496-2Die
- ^ Hayes, Floyd E.; Beaman, Kent R. Beaman; Hayes, William K.; Harris, Lester E. Jr. (1988). „Defensives Verhalten bei der Galapagos-Riesenschildkröte ( Geochelone elephantopus ) mit Anmerkungen zur Evolution des Inselgigantismus“. Herpetologica . 44 (1): 11–17 . JSTOR 3892193 .
- ^ Ciofi, Claudio; Swingland, Ian R. (1995). „Umweltbedingte Geschlechtsbestimmung bei Reptilien“. Applied Animal Behaviour Science . 51 (3): 251–265 . doi : 10.1016/S0168-1591(96)01108-2 .
- ^ a b c Cayot, Linda J (1994). Haltung und Schutz von Amphibien und Reptilien in Gefangenschaft . Beiträge zur Herpetologie. Band 11. Ithaca : Gesellschaft für das Studium von Amphibien und Reptilien. S. 297–305 . ISBN 978-0-916984-33-5Die
- ^ „Galapagos-Riesenschildkröte, Chelonoidis nigra “ . San Diego Zoo . Mai 2010. Archiviert vom Original am 21. März 2016. Abgerufen am 9. März 2016 .
- ^ „Galápagos-Riesenschildkröte Geochelone elephantophus “ . National Geographic Society . 10. September 2010. Archiviert vom Original am 7. Februar 2010. Abgerufen am 12. Januar 2012 .
- ^ a b „Riesenschildkröten der Galápagos-Inseln“ . American Museum of Natural History . Archiviert vom Original am 21. Dezember 2011. Abgerufen am 12. Januar 2012 .
- ^ Chambers, Paul (2004). „Die Entstehungsgeschichte von Harriet“ . New Scientist (2464) . Abgerufen am 12. Januar 2012 .
- ^ „Schildkröte Harriet stirbt“ . ABC News Online . 23. Juni 2006. Archiviert vom Original am 24. Juni 2006. Abgerufen am 12. Januar 2012 .
- ^ White, William M.; McBirney, Alexander R.; Duncan, Robert A. (1993). „Petrologie und Geochemie der Galápagos-Inseln: Porträt eines pathologischen Mantelplumes“ . Journal of Geophysical Research . 98 (B11): 19533–19564 . Bibcode : 1993JGR....9819533W . doi : 10.1029/93JB02018 .
- ^ Kehlmaier, C.; Barlow, A.; Hastings, A.K.; Vamberger, M.; Paijmans, J.L.; Steadman, D.W.; Fritz, U. (2017). „Tropische alte DNA enthüllt Verwandtschaftsverhältnisse der ausgestorbenen Bahama-Riesenschildkröte Chelonoidis alburyorum“ . Proceedings of the Biological Sciences . 284 (1846). doi : 10.1098/rspb.2016.2235 . PMC 5247498. PMID 28077774 .
- ^ Pereira, AG; Sterli, J.; Moreira, FRR; Schrago, CG (2017). „Multilocus-Phylogenie und statistische Biogeographie klären die Evolutionsgeschichte wichtiger Schildkrötenlinien“. Molecular Phylogenetics . 113 : 59–66 . Bibcode : 2017MolPE.113...59P . doi : 10.1016/j.ympev.2017.05.008 . hdl : 11336/41137 . PMID 28501611 .
- ^ Nicholls 2006 , S. 68
- ^ Beheregaray, Luciano B.; Gibbs, James P.; Havill, Nathan ; Fritts, Thomas H.; Powell, Jeffrey R.; Caccone, Adalgisa (2004). „Riesenschildkröten sind gar nicht so langsam: Rasante Diversifizierung und biogeographischer Konsens auf den Galápagos-Inseln“ . Proceedings of the National Academy of Sciences . 101 (17): 6514–6519 . Bibcode : 2004PNAS..101.6514B . doi : 10.1073/pnas.0400393101 . PMC 404076. PMID 15084743 .
- ^ Grant, KT; Estes, GB (2009). Darwin auf den Galapagosinseln: Schritte in eine neue Welt . Princeton: Princeton University Press. ISBN 978-0-691-14210-4Die
- ^ a b Darwin, C. R. (1845). Journal of researches into the natural history and geology of the countries visited during the voyage of HMS Beagle round the world, under the Command of Capt. Fitz Roy (2. Aufl.). London: John Murray. S. 393–394 .
- ^ Chambers 2004 , S. 51
- ^ Nicholls 2006 , S. 62
- ^ a b Darwin 1839 , S. 456
- ^ Keynes, R. D. (2001). Charles Darwins Beagle-Tagebuch . Cambridge: Cambridge University Press. S. 362. ISBN 978-0-521-00317-9Die
- ^ Chambers 2004 , S. 41
- ^ Chambers 2004 , S. 52
- ^ Vgl. beispielsweise Günther 1877 , S. 62.
- ^ Darwin, C. R. (März 1827) [Notizbuch umfasst 1827; 1828–1829; 1837–1839]. Edinburgher Notizbuch . Bd. CUL-DAR118. Darwin Online . S. 99. Abgerufen am 31. August 2016 .
- ^ Chambers 2004 , S. 47
- ^ Barlow, N. (1963). „Darwins ornithologische Notizen“ . Bulletin of the British Museum (Natural History), Historical Series . 2 (7): 262. doi : 10.5962/p.310422 .
- ^ Darwin, CR (1837–1838). „Notebook B: [Transmutation of species]“ . S. 7.
- ^ a b „Fortpflanzung, Zucht, Rückführung und Überwachung von Schildkröten“ . Galapagos-Nationalpark. 29. Juni 2009. Abgerufen am 4. September 2010 .
- ^ Footman , T. (2000). Guinness World Records 2001. Guinness Records. S. 182. ISBN 978-0-85112-102-4Die
- ^ „Chelonoidis – Gattung entfernen“ . Rote Liste gefährdeter Arten der IUCN . Internationale Union für Naturschutz und natürliche Ressourcen. 2019. ISSN 2307-8235 . Abgerufen am 24. Dezember 2019 .
- ^ a b Townsend, Charles Haskins (1925). „Die Galapagos-Schildkröten in ihrer Beziehung zur Walfangindustrie: eine Studie alter Logbücher“ . Zoologica . 4 : 55–135 .
- ^ Dampier, William (2007) [1697]. „Kapitel 5“ . Eine neue Weltreise . Dampier: Dover Publications. ISBN 978-1-933698-04-5Archiviert vom Original am 27. November 2010.
- ^ Colnett, J. (1968) [1798]. Eine Reise in den Südatlantik . USA: Da Capo Press. S. 158. ISBN 978-0-665-33242-5Die
- ^ Darwin 1839 , S. 459
- ^ Chambers 2004 , S. 85
- ^ Chambers 2004 , S. 94
- ^ Beck, RH. (1903). „Im Zuhause der Riesenschildkröte“. 7. Jahresbericht der New York Zoological Society : 1–17 .
- ^ Chambers 2004 , S. 104
- ^ Conrad, Cyler; Pastron, Allen (2014). „Galapagos-Schildkröten und Meeresschildkröten im Kalifornien der Goldrauschzeit“. California History . 91 (2): 20–39 . doi : 10.1525/ch.2014.91.2.20 .
- ^ Conrad, Cyler; Gobalet, Kenneth W.; Bruner, Kale; Pastron, Allen G. (2015). „Haut, Talg und Wasserschildkröte: Zooarchäologie der Goldrauschzeit in Thompson’s Cove (CA-SFR-186H), San Francisco, Kalifornien“. International Journal of Historical Archaeology . 19 (3): 502–551 . doi : 10.1007/s10761-015-0297-2 . S2CID 143269035 .
- ^ Hoeck, H. N. (1984). „Eingeführte Fauna“. In: Perry, R. (Hrsg.). Schlüsselumgebungen. Galápagos . Pergamon Press. S. 233–245 . ISBN 978-0-08-027996-1Die
- ^ Watkins, Graham; Cruz, Felipe (2007). „Galapagos in Gefahr: Eine sozioökonomische Analyse“ (PDF) . Charles-Darwin-Stiftung. Archiviert vom Original (PDF) am 26. September 2010.
- ^ a b „Galapagos-Schildkröten-Informationsblatt“ . library.sandiegozoo.org . Archiviert vom Original am 21. März 2016. Abgerufen am 22. Juli 2016 .
- ^ a b Foote, Nicola; Gunnels, Charles W. IV (2015). „Exploring Early Human-Animal Encounters in the Galapagos Islands Using a Historical Zoology Approach“. In Nance, Susan (Hrsg.). The Historical Animal . Syracuse University Press. S. 218. ISBN 978-0-8156-3428-7Die
- ^ Ecuador (1959). Decreto ley de Emergency, por el cual se declaran parques nacionales de reserva de exclusivo dominio del estado, for the preservación de la Fauna y Flora, Todas la tierras que forman las del Archipiélago de Colón o Galápagos, Registro Oficial No. 873 (1959) Quito, 20. Juli, 1959 (auf Spanisch) .
- ^ Ecuador (1970). Ley de Protección de la Fauna Silvestre y de los Recursos Ictiológicos, Registro Oficial Nr. 104 (1970) Quito, 20. November 1970 (auf Spanisch) .
- ^ Vereinigte Staaten 1969. Endangered Species Conservation Act . 83 Stat. 275; 16 USC 668 cc-1 bis 668 cc-6 (1969)
- ^ Ecuador (1971). Decreto Supremo Nr. 1306 (1971) Quito, 27. August 1971 (auf Spanisch) .
- ^ Cayot, Linda J (Dezember 2008). „Die Wiederherstellung der Populationen von Riesenschildkröten und Landleguanen auf den Galapagosinseln“ . Galapagos Research . 65 (65): 39–43 . Abgerufen am 31. August 2016 .
- ^ Corley Smith, GT (1977). „Der gegenwärtige Status der Riesenschildkröte Geochelone elephantopus auf den Galapagosinseln“. International Zoo Yearbook . 17 (1): 109–112 . doi : 10.1111/j.1748-1090.1977.tb00877.x .
- ^ Mathew, John (2007). „Rezension zu: Lonesome George. The Lives and Loves of a Conservation Icon von Henry Nicholls“. History and Philosophy of the Life Sciences . 29 (1): 99–101 . JSTOR 23334203 .
- ^ Caporaso, Fred ( 1991). „Das Galápagos-Schildkröten-Schutzprogramm: Die Notlage und Zukunft der Pinzón-Schildkröte“ . Tagungsband des ersten internationalen Symposiums über Schildkröten: Schutz und Haltung in Gefangenschaft . Chapman University . S. 113–116 . Abgerufen am 11. Januar 2012 .
- ^ Pritchard 1996 , S. 59
- Milinkovitch , Michel C.; Monteyne, Daniel; Gibbs, James P.; Fritts, Thomas H.; Tapia, Washington; Snell, Howard L.; Tiedemann, Ralph; Caccone, Adalgisa; Powell, Jeffrey R. (2004). „ Genetische Analyse eines erfolgreichen Rückführungsprogramms: Riesenschildkröten der Galapagosinseln“ . Proceedings of the Royal Society of London B. 271 ( 1537): 341–345 . Bibcode : 2004PBioS.271..341M . doi : 10.1098/rspb.2003.2607 . PMC 1691607. PMID 15101691 .
- ^ Casey, Nicholas (11. März 2017). „Lernen Sie Diego kennen, den Hundertjährigen, dessen Sexualtrieb seine Art rettete“ . The New York Times . Abgerufen am 11. März 2017 .
- ^ Campbell, Karl; Donlan, C. Josh; Cruz, Felipe; Carrion, Victor (2004). „Ausrottung verwilderter Ziegen (Capra hircus) von der Insel Pinta, Galápagos, Ecuador“ . Oryx . 38 (3): 328–333 . doi : 10.1017/S0030605304000572 .
- ^ a b Carroll, R. (26. Juni 2010). „Galápagos-Riesenschildkröte durch Zuchtprogramm vor dem Aussterben gerettet“ . The Observer . Abgerufen am 11. Januar 2012 .
- ^ „Projekt Pinta: Restaurierung des Geburtsortes von Lonesome George“ . Galapagos Conservancy. Archiviert vom Original am 24. Juli 2011. Abgerufen am 11. Januar 2012 .
- ^ GEF-Projektdokument: Schutz der Biodiversität auf den Galapagosinseln durch Verbesserung der Biosicherheit und Schaffung günstiger Rahmenbedingungen für die Wiederherstellung der Ökosysteme der Galapagosinseln (PDF) (Bericht). Conservation International (CI-GEF-Projektagentur). September 2018. S. 1–2 , 6.
- ^ „GTMEP: Was wir tun“ . Galapagos Tortoise Movement Ecology Programme. Archiviert vom Original am 10. Februar 2015. Abgerufen am 23. Dezember 2014 .
- ^ „Galapagos Conservation Trust“ . Abgerufen am 23. Dezember 2014 .
Weiterführende Literatur
- Chambers, Paul (2004). Ein behütetes Leben: Die unerwartete Geschichte der Riesenschildkröte . London: John Murray. ISBN 978-0-7195-6528-1Die
- Darwin, Charles (2009) [1839]. Bericht über die Vermessungsreisen der Schiffe Seiner Majestät Adventure und Beagle zwischen 1826 und 1836, der ihre Erkundung der Südküste Südamerikas und die Weltumsegelung der Beagle beschreibt. Tagebuch und Anmerkungen (Faksimile-Ausgabe). General Books LLC. ISBN 978-1-151-09182-6Die
- Günther, Albert Carl Ludwig Gotthilf (2010) [1877]. Die Riesenschildkröten (lebende und ausgestorbene) in der Sammlung des Britischen Museums (Faksimile-Nachdruck). Nabu Press. ISBN 978-1-141-78978-8Die
- Nicholls, Henry (2006). Lonesome George: Das Leben und die Lieben einer Ikone des Naturschutzes . Hampshire, England: Palgrave Macmillan. ISBN 978-1-4039-4576-1Die
- Pritchard, Peter Charles Howard (1996). Die Galapagos-Schildkröten: Nomenklatur und Überlebensstatus . Chelonian Research Foundation. ISBN 978-0-9653540-0-4Die
Externe Links
 Medien zu Chelonoidis niger auf Wikimedia Commons


