Genkonversion ist der Prozess, bei dem eine DNA- Sequenz eine homologe Sequenz ersetzt , sodass die Sequenzen nach der Konversion identisch sind. [ 1 ] Genkonversion kann entweder allelisch sein , d. h. ein Allel desselben Gens ersetzt ein anderes Allel, oder ektopisch , d. h. eine paraloge DNA-Sequenz konvertiert eine andere. [ 2 ]
Allelische Genkonversion
Die allelische Genkonversion findet während der Meiose statt , wenn homologe Rekombination zwischen heterozygoten Stellen zu einer Fehlpaarung der Basen führt. Diese Fehlpaarung wird dann von den zellulären Mechanismen erkannt und korrigiert, wodurch eines der Allele in das andere umgewandelt wird. Dies kann zu einer nicht-mendelschen Segregation der Allele in den Keimzellen führen. [ 3 ]
Nicht-allelische/ektopische Genkonversion
Rekombination findet nicht nur während der Meiose statt, sondern dient auch als Reparaturmechanismus für Doppelstrangbrüche (DSBs), die durch DNA-Schäden verursacht werden. Diese DSBs werden üblicherweise mithilfe der Schwesterchromatide des gebrochenen DNA-Doppelstrangs und nicht mithilfe des homologen Chromosoms repariert , sodass keine Allelkonversion stattfindet. Rekombination tritt auch zwischen homologen Sequenzen an verschiedenen genomischen Loci (paralogen Sequenzen) auf, die aus früheren Genduplikationen hervorgegangen sind. Es wird vermutet, dass die Genkonversion zwischen paralogen Sequenzen ( ektopische Genkonversion ) für die konzertierte Evolution von Genfamilien verantwortlich ist. [ 3 ] [ 4 ] [ 5 ]
Mechanismus
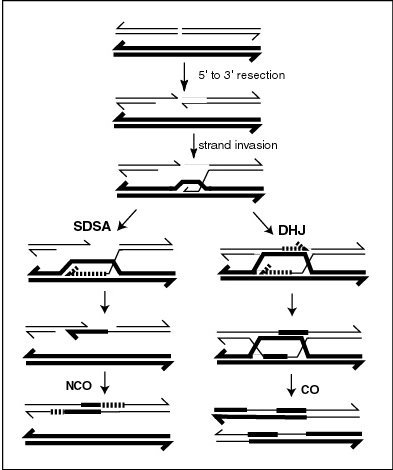
Die Umwandlung eines Allels in das andere ist häufig auf die Basenfehlpaarungsreparatur während der homologen Rekombination zurückzuführen : Wenn sich während der Meiose eines der vier Chromatiden mit einem anderen Chromatid paart, was aufgrund von Sequenzhomologie vorkommen kann , kann ein DNA-Strangtransfer mit anschließender Fehlpaarungsreparatur erfolgen. Dies kann die Sequenz eines der Chromosomen so verändern, dass sie mit der des anderen identisch ist.
Die meiotische Rekombination beginnt mit der Entstehung eines Doppelstrangbruchs (DSB). Die 5'-Enden des Bruchs werden abgebaut, wodurch lange 3'-Überhänge von mehreren hundert Nukleotiden entstehen. Eines dieser 3'-einzelsträngigen DNA-Segmente dringt dann in eine homologe Sequenz auf dem homologen Chromosom ein und bildet ein Zwischenprodukt, das über verschiedene Wege repariert werden kann, was entweder zu Crossovers (CO) oder Non-Crossovers (NCO) führt. In verschiedenen Schritten des Rekombinationsprozesses entsteht Heteroduplex-DNA (doppelsträngige DNA, bestehend aus Einzelsträngen von jedem der beiden homologen Chromosomen, die perfekt komplementär sein können oder nicht). Treten Fehlpaarungen in der Heteroduplex-DNA auf, wird die Sequenz eines Strangs repariert, sodass sie perfekt komplementär an den anderen Strang bindet, was zur Umwandlung einer Sequenz in eine andere führt. Dieser Reparaturprozess kann, wie in der Abbildung dargestellt, einem von zwei alternativen Wegen folgen. Über einen Reparaturweg entsteht eine Struktur namens Doppel -Holliday-Struktur (DHJ), die zum Austausch von DNA-Strängen führt. Über den anderen Reparaturweg, die sogenannte syntheseabhängige Strangannealierung (SDSA), findet ein Informationsaustausch, aber kein physikalischer Austausch statt. Bei der SDSA kommt es zu einer Genkonversion, wenn die beiden DNA-Moleküle an der Stelle der Rekombinationsreparatur heterozygot sind. Auch bei der Rekombinationsreparatur einer DHJ kann eine Genkonversion auftreten, die mit einer physikalischen Rekombination der DNA-Doppelstränge beidseits der DHJ einhergehen kann.
Voreingenommene vs. unvoreingenommene Genkonversion
Eine verzerrte Genkonversion (BGC) liegt vor, wenn ein Allel bei einer Genkonversion mit höherer Wahrscheinlichkeit als Spender fungiert als das andere. Beispielsweise wird bei einer T:G-Fehlpaarung diese eher zu einem C:G-Paar als zu einem T:A-Paar korrigiert. Dadurch erhöht sich die Wahrscheinlichkeit, dass dieses Allel an die nächste Generation weitergegeben wird. Bei einer unverzerrten Genkonversion treten beide Möglichkeiten mit gleicher Wahrscheinlichkeit auf.
GC-bevorzugte Genkonversion
GC-bedingte Genkonversion (gBGC) ist der Prozess, bei dem der GC-Gehalt der DNA durch Genkonversion während der Rekombination ansteigt. [ 4 ] Belege für gBGC existieren für Hefen und Menschen, und die Theorie wurde kürzlich auch in anderen eukaryotischen Abstammungslinien untersucht. [ 6 ] In analysierten menschlichen DNA-Sequenzen korreliert die Crossover-Rate positiv mit dem GC-Gehalt. [ 4 ] Die pseudoautosomalen Regionen (PAR) der X- und Y-Chromosomen des Menschen, die bekanntermaßen hohe Rekombinationsraten aufweisen, besitzen ebenfalls hohe GC-Gehalte. [ 3 ] Bestimmte Säugetiergene, die einer konzertierten Evolution unterliegen (z. B. ribosomale Operons, tRNAs und Histon-Gene), sind sehr GC-reich. [ 3 ] Es wurde gezeigt, dass der GC-Gehalt in paralogen humanen und Maus-Histon-Genen, die großen Unterfamilien angehören (und vermutlich einer konzertierten Evolution unterliegen), höher ist als in paralogen Histon-Genen mit relativ einzigartigen Sequenzen. [ 7 ] Es gibt auch Hinweise auf eine GC-Präferenz im Mismatch-Reparaturprozess. [ 3 ] Man vermutet, dass dies eine Anpassung an die hohe Rate der Methylcytosin-Desaminierung sein könnte, die zu C→T-Transitionen führen kann.
BGC des Fxy-Gens in Mus musculus
Das Fxy- oder Mid1-Gen einiger Säugetiere, die eng mit Hausmäusen verwandt sind (Menschen, Ratten und andere Mus-Arten), befindet sich im geschlechtsgebundenen Bereich des X-Chromosoms. Bei Mus musculus hat es sich jedoch kürzlich so verlagert, dass das 3'-Ende des Gens mit der PAR-Region des X-Chromosoms überlappt, die als Rekombinations-Hotspot bekannt ist. In diesem Genabschnitt ist der GC-Gehalt und die Substitutionsrate an der dritten Codonposition sowie in den Introns dramatisch angestiegen, während der X-chromosomal gebundene 5'-Bereich des Gens davon unberührt bleibt. Da dieser Effekt nur in dem Bereich des Gens mit erhöhter Rekombinationsrate auftritt, muss er auf eine ungerichtete Genkonversion und nicht auf Selektionsdruck zurückzuführen sein. [ 4 ]
Auswirkungen der GC-bevorzugten Genkonversion auf menschliche Genommuster
Der GC-Gehalt im menschlichen Genom variiert stark (40–80 %), doch scheinen große Bereiche zu existieren, in denen der GC-Gehalt im Durchschnitt höher oder niedriger ist als in anderen Regionen. [ 3 ] Diese Bereiche, deren Grenzen nicht immer klar definiert sind, werden als Isochoren bezeichnet. Eine mögliche Erklärung für das Vorhandensein GC-reicher Isochoren ist deren Entstehung durch GC-lastige Genkonversion in Regionen mit hoher Rekombinationsrate.
Evolutionäre Bedeutung
Adaptive Funktion der Rekombination
Studien zur Genkonversion haben wesentlich zu unserem Verständnis der adaptiven Funktion der meiotischen Rekombination beigetragen. Das übliche Segregationsmuster eines Allelpaares (Aa) unter den vier Produkten der Meiose ist 2A:2a. Der Nachweis seltener Genkonversionsereignisse (z. B. 3:1- oder 1:3-Segregationsmuster während einzelner Meiosevorgänge) ermöglicht Einblicke in alternative Rekombinationswege, die entweder zu Crossover- oder Nicht-Crossover-Chromosomen führen. Man geht davon aus, dass Genkonversionsereignisse dort auftreten, wo sich die Allele „A“ und „a“ in unmittelbarer Nähe eines molekularen Rekombinationsereignisses befinden. Somit lässt sich die Häufigkeit messen, mit der Genkonversionsereignisse mit Crossover oder Nicht-Crossover von Chromosomenregionen assoziiert sind, die an das unmittelbare Konversionsereignis angrenzen, aber außerhalb dieses liegen. Zahlreiche Studien zur Genkonversion in verschiedenen Pilzen (die sich besonders für solche Untersuchungen eignen) wurden durchgeführt, und die Ergebnisse dieser Studien wurden von Whitehouse zusammenfassend dargestellt. [ 8 ] Aus dieser Übersicht geht klar hervor, dass die meisten Genkonversionsereignisse nicht mit einem Austausch von Markern außerhalb des Konversionsereignisses verbunden sind. Die meisten Genkonversionsereignisse in den untersuchten Pilzen sind mit dem Nicht-Crossover externer Marker verbunden. Diese Genkonversionsereignisse entstehen hauptsächlich durch syntheseabhängiges Strangannealing (SDSA) [ 9 ] . Dabei findet nur ein begrenzter Informationsaustausch, aber kein physischer DNA-Austausch zwischen den beiden beteiligten homologen Chromosomen am Ort der Konversion statt, wodurch nur geringe genetische Variation entsteht. Erklärungen für die adaptive Funktion der meiotischen Rekombination, die sich ausschließlich auf den adaptiven Nutzen der Erzeugung neuer genetischer Variation oder des physischen Austauschs konzentrieren, scheinen daher unzureichend, um die Mehrheit der Rekombinationsereignisse während der Meiose zu erklären. Die meisten meiotischen Rekombinationsereignisse lassen sich jedoch durch die Annahme erklären, dass sie eine Anpassung zur Reparatur von DNA-Schäden darstellen, die an die Gameten weitergegeben werden sollen [ 10 ] .
Von besonderem Interesse, da Rekombination eine Anpassung zur DNA-Reparatur darstellt, sind die Studien an Hefe, die zeigen, dass die Genkonversion in mitotischen Zellen durch UV-Strahlung [ 11 ] [ 12 ] und ionisierende Strahlung [ 13 ] erhöht wird.
Evolution des Menschen

In the discussions of genetic diseases in humans, pseudogene mediated gene conversions that introduce pathogenic mutations into functional genes is a well known mechanism of mutation. In contrast, it is possible that pseudogenes could serve as templates. During the course of evolution, functional source genes which are potentially advantageous have been derived from multiple copies in their single source gene. The pseudogene-templated changes might eventually become fixed as long as they did not possess deleterious effects.[14] So, in fact, pseudogenes can act as sources of sequence variants which can be transferred to functional genes in novel combinations and can be acted upon by selection. Lectin 11 (SIGLEC11), a human immunoglobulin that binds to sialic acid, can be considered an example of such a gene conversion event which has played a significant role in evolution. While comparing the homologous genes of human SIGLEC11 and its pseudogene in the chimpanzee, gorilla and orangutan, it appears that there was gene conversion of the sequence of 5' upstream regions and the exons that encode the sialic acid recognition domain, approximately 2kbp from the closely flanking hSIGLECP16 pseudogene (Hayakawa et al., 2005). The three pieces of evidence concerning this event have together suggested this as an adaptive change which is very evolutionarily important in genusHomo. These include that only in human lineage this gene conversion happened, the brain cortex has acquired an important expression of SIGLEC11 specifically in human lineage and the exhibition of a change in substrate binding in human lineage when compared to that of its counterpart in chimpanzees. Of course the frequency of the contribution of this pseudogene-mediated gene conversion mechanism to functional and adaptive changes in evolution of human is still unknown and so far it has been scarcely explored.[15] In spite of that, the introduction of positively selective genetic changes by such mechanism can be put forward for consideration by the example of SIGLEC11. Sometimes due to interference of transposable elements in to some members of a gene family, it causes a variation among them and finally it may also cease the rate of gene conversion due to lack of sequence similarity which leads to divergent evolution.
Genomic analysis
Aus verschiedenen Genomanalysen wurde geschlossen, dass Doppelstrangbrüche (DSB) durch homologe Rekombination über mindestens zwei verschiedene, aber verwandte Wege repariert werden können. [ 14 ] Im Hauptweg werden homologe Sequenzen beidseits des DSB verwendet, was analog zum konservativen DSB-Reparaturmodell [ 16 ] erscheint , das ursprünglich für die meiotische Rekombination in Hefe vorgeschlagen wurde. [ 17 ] Der Nebenweg hingegen ist, wie im nicht-konservativen Modell der einseitigen Invasion postuliert, auf nur eine Seite des DSB beschränkt. [ 18 ] In beiden Fällen ist die Sequenz der Rekombinationspartner jedoch absolut konserviert. Aufgrund ihres hohen Homologiegrades neigen die nach der Genduplikation entstandenen neuen Genkopien naturgemäß entweder zu ungleichem Crossing-over oder zu unidirektionalen Genkonversionsereignissen. Bei letzterem Prozess existieren Akzeptor- und Donorsequenzen, wobei die Akzeptorsequenz durch eine vom Donor kopierte Sequenz ersetzt wird, während die Donorsequenz unverändert bleibt. [ 15 ]
Die effektive Homologie zwischen den interagierenden Sequenzen ermöglicht eine erfolgreiche Genkonversion. Darüber hinaus ist die Häufigkeit der Genkonversion umgekehrt proportional zum Abstand zwischen den interagierenden Sequenzen in cis [ 19 , 14 ] , und die Konversionsrate ist üblicherweise direkt proportional zur Länge des ununterbrochenen Sequenzabschnitts in der angenommenen konvertierten Region. Konversionsabschnitte mit Crossover sind offenbar länger (mittlere Länge = ~460 bp) als Konversionsabschnitte ohne Crossover (mittlere Länge = 55–290 bp) [ 20 ] . Studien an menschlichen Globulin-Genen haben seit Langem gezeigt , dass Genkonversionen oder Strangmigrationen durch spezifische Motive in der Nähe der DNA-Sequenz gefördert oder gehemmt werden können [ 21 , 14 ] . Eine weitere grundlegende Klassifizierung von Genkonversionen unterscheidet zwischen interlokus- (auch nicht-allelische) und interallelischen Genkonversionen. Nicht-allelische oder interlokuläre Genkonversionen (cis oder trans) finden zwischen nicht-allelischen Genkopien auf Schwesterchromatiden oder homologen Chromosomen statt. Im Falle interallelischer Genkonversionen erfolgt die Konversion zwischen Allelen auf homologen Chromosomen. [ 15 ] [ 14 ] Vergleicht man interlokuläre Genkonversionen, zeigt sich häufig eine bestimmte Richtung. Manchmal, wie beispielsweise bei menschlichen Globingenen, [ 21 ] [ 14 ] korreliert die Konversionsrichtung mit der relativen Expressionsstärke der beteiligten Gene. Dabei konvertiert das stärker exprimierte Gen, das sogenannte „Master-Gen“, das schwächer exprimierte Gen, das sogenannte „Slave-Gen“. Die ursprünglich im evolutionären Kontext formulierte „Master/Slave-Gen“-Regel sollte mit Vorsicht interpretiert werden. Tatsächlich erhöht eine gesteigerte Gentranskription nicht nur die Wahrscheinlichkeit, dass ein Gen als Donor, sondern auch als Akzeptor fungiert. [ 14 ] [ 22 ]
Wirkung
Normalerweise wird ein Organismus, der von jedem Elternteil eine andere Kopie eines Gens geerbt hat, als heterozygot bezeichnet. Dies wird allgemein als Genotyp Aa dargestellt (d. h. eine Kopie des Allels A und eine Kopie des Allels a). Wenn ein Heterozygot durch Meiose Gameten bildet , verdoppeln sich die Allele normalerweise und liegen in den vier entstehenden Zellen, den direkten Produkten der Meiose, im Verhältnis 2:2 vor. Bei der Genkonversion wird jedoch ein anderes Verhältnis als das erwartete 2A:2a beobachtet, bei dem A und a die beiden Allele sind. Beispiele hierfür sind 3A:1a und 1A:3a. Mit anderen Worten: Es können beispielsweise dreimal so viele A-Allele wie a-Allele in den Tochterzellen exprimiert werden, wie es bei 3A:1a der Fall ist. [ 23 ]
Medizinische Relevanz
Eine Genkonversion, die zu einer Mutation des CYP21A2- Gens [ 24 ] führt , ist eine häufige genetische Ursache der kongenitalen Nebennierenhyperplasie . [ 25 ] Somatische Genkonversion ist einer der Mechanismen, die zu familiärem Retinoblastom , einem angeborenen Netzhautkrebs, führen können . [ 26 ]
Referenzen
- ^ Hastings, PJ (29.11.2010). „Mechanismen der ektopischen Genkonversion“ . Genes . 1 ( 3): 427–439 . doi : 10.3390/genes1030427 . ISSN 2073-4425 . PMC 3758752. PMID 24000309 .
- ^ Trombetta, Beniamino; Fantini, Gloria; D'Atanasio, Eugenia; Sellitto, Daniele; Cruciani, Fulvio (27.06.2016). „Hinweise auf eine umfassende nicht-allelische Genumwandlung zwischen LTR-Elementen im menschlichen Genom“ . Wissenschaftliche Berichte . 6 (1) 28710. Bibcode : 2016NatSR...628710T . doi : 10.1038/srep28710 . ISSN 2045-2322 . PMC 4921805 . PMID 27346230 .
- ^ a b c d e f Galtier N, Piganeau G, Mouchiroud D, Duret L (Oktober 2001). „Entwicklung des GC-Gehalts in Säugetiergenomen: die voreingenommene Genkonvertierungshypothese“ . Genetik . 159 (2): 907–911 . doi : 10.1093/genetics/159.2.907 . PMC 1461818 . PMID 11693127 .
- ^ a b c d Duret L, Galtier N (2009). „Verzerrte Genkonversion und die Evolution genomischer Landschaften von Säugetieren“. Annual Review of Genomics and Human Genetics . 10 : 285–311 . doi : 10.1146/annurev-genom-082908-150001 . PMID 19630562 .
- ^ Harpak A, Lan X, Gao Z, Pritchard JK (November 2017). „Häufige nicht-allelische Genkonversion in der menschlichen Abstammungslinie und ihre Auswirkung auf die Divergenz von Genduplikaten“ . Proceedings of the National Academy of Sciences of the United States of America . 114 (48): 12779–12784 . Bibcode : 2017PNAS..11412779H . doi : 10.1073/pnas.1708151114 . PMC 5715747. PMID 29138319 .
- ^ Pessia E, Popa A, Mousset S, Rezvoy C, Duret L, Marais GA (2012). „Evidenz für weitverbreitete GC-bevorzugte Genkonversion in Eukaryoten“ . Genome Biology and Evolution . 4 (7): 675–682 . doi : 10.1093 / gbe/evs052 . PMC 5635611. PMID 22628461 .
- ^ Galtier N (Februar 2003). „Genkonversion treibt die Evolution des GC-Gehalts in Säugetierhistonen an“. Trends in Genetics . 19 (2): 65–68 . doi : 10.1016/s0168-9525(02)00002-1 . PMID 12547511 .
- ^ Whitehouse HL (1982). Genetische Rekombination: Die Mechanismen verstehen . Wiley. S. 321 & Tabelle 38. ISBN 978-0-471-10205-2Die
- ^ McMahill MS, Sham CW, Bishop DK (November 2007). „Syntheseabhängiges Strangannealing in der Meiose“ . PLOS Biology . 5 (11) e299. doi : 10.1371/ journal.pbio.0050299 . PMC 2062477. PMID 17988174 .
- Bernstein H, Bernstein C, Michod RE (2011). „19. Meiose als evolutionäre Anpassung zur DNA-Reparatur“. In: Kruman I (Hrsg.). DNA-Reparatur . InTech. doi : 10.5772/25117 . ISBN 978-953-307-697-3S2CID 32156088 .
- ^ Ito T, Kobayashi K (Oktober 1975). „Untersuchungen zur Induktion mitotischer Genkonversion durch ultraviolette Bestrahlung. II. Wirkungsspektren“. Mutation Research . 30 (1): 43–54 . Bibcode : 1975MRFMM..30...43I . doi : 10.1016/0027-5107(75)90251-1 . PMID 1101053 .
- ^ Hannan MA, Calkins J, Lasswell WL (1980). „Rekombinogene und mutagene Effekte der UV-B-Bestrahlung in Saccharomyces cerevisiae“. Molecular & General Genetics . 177 (4): 577–580 . doi : 10.1007/bf00272666 . PMID 6991864. S2CID 31023471 .
- ^ Raju MR, Gnanapurani M, Stackler B, Martins BI, Madhvanath U, Howard J, et al. (September 1971). „Induktion heteroallelischer Reversionen und Letalität in Saccharomyces cerevisiae nach Bestrahlung mit unterschiedlichen LET-Werten (<sup>60</sup>Co-Strahlen, schwere Ionen und β-Mesonen) in Luft- und Stickstoffatmosphäre“. Radiation Research . 47 (3): 635–643 . Bibcode : 1971RadR...47..635R . doi : 10.2307/ 3573356 . JSTOR 3573356. PMID 5119583 .
- ^ a b c d e f g Chen JM (2001). Genkonversion in Evolution und Krankheit . Wiley. ISBN 978-0-470-01590-2Die
- ^ a b c Chen JM, Cooper DN, Chuzhanova N, Férec C, Patrinos GP (Oktober 2007). „Genkonversion: Mechanismen, Evolution und menschliche Krankheiten“. Nature Reviews Genetics . 8 (10): 762–775 . doi : 10.1038/nrg2193 . PMID 17846636. S2CID 205484180 .
- ^ Szostak JW, Orr-Weaver TL, Rothstein RJ, Stahl FW (Mai 1983). „Das Doppelstrangbruch-Reparaturmodell für die Rekombination“. Cell . 33 ( 1): 25–35 . doi : 10.1016/0092-8674(83)90331-8 . PMID 6380756. S2CID 39590123 .
- ^ Ota T, Nei M (Januar 1995). „Evolution von Immunglobulin-VH-Pseudogenen bei Hühnern“ . Molecular Biology and Evolution . 12 (1): 94–102 . doi : 10.1093/oxfordjournals.molbev.a040194 . PMID 7877500 .
- ^ Belmaaza A, Chartrand P (Mai 1994). „Einseitige Invasionsereignisse bei homologer Rekombination an Doppelstrangbrüchen“. Mutation Research . 314 (3): 199–208 . doi : 10.1016/0921-8777(94)90065-5 . PMID 7513053 .
- Schildkraut E, Miller CA, Nickoloff JA (2005). „Genkonversions- und Deletionsfrequenzen während der Reparatur von Doppelstrangbrüchen in menschlichen Zellen werden durch den Abstand zwischen direkten Wiederholungen kontrolliert“ . Nucleic Acids Research . 33 (5): 1574–1580 . doi : 10.1093/nar/gki295 . PMC 1065255. PMID 15767282 .
- ^ Jeffreys AJ, May CA (Februar 2004). „Intensive und hochgradig lokalisierte Genkonversionsaktivität in menschlichen meiotischen Crossover-Hotspots“ . Nature Genetics . 36 (2): 151–156 . doi : 10.1038/ng1287 . PMID 14704667 .
- ^ a b Papadakis MN, Patrinos GA (Februar 1999). „Beitrag der Genkonversion zur Evolution der menschlichen Beta-ähnlichen Globin-Genfamilie“. Hum Genet . 104 (2): 117–125 . doi : 10.1007/s004390050923 . PMID 10190321 .
- Schildkraut E, Miller CA, Nickoloff JA (April 2006). „Die Transkription eines Donors verstärkt dessen Verwendung während der durch Doppelstrangbrüche induzierten Genkonversion in menschlichen Zellen“ . Molecular and Cellular Biology . 26 (8): 3098–3105 . doi : 10.1128/MCB.26.8.3098-3105.2006 . PMC 1446947. PMID 16581784 .
- ^ Korunes, Katharine L.; Noor, Mohamed AF (2017). „Genkonversion und -kopplung: Auswirkungen auf die Genom-Evolution und Artbildung“ . Molecular Ecology . 26 (1): 351–364 . doi : 10.1111/mec.13736 . ISSN 1365-294X .
- ^ Baş, Firdevs; Kayserili, Hülya; Darendeliler, Feyza; Uyguner, Oya; Günöz, Hülya; Yüksel Apak, Memnune; Atalar, Fatmahan; Bundak, Rüveyde; Wilson, Robert C.; Neu, Maria I.; Wollnik, Bernd; Saka, Nurçin (2009). „CYP21A2-Genmutationen bei angeborener Nebennierenhyperplasie: Genotyp-Phänotyp-Korrelation bei türkischen Kindern“ . Zeitschrift für klinische Forschung in der pädiatrischen Endokrinologie . 1 (3): 116–128 . doi : 10.4008/jcrpe.v1i3.49 . ISSN 1308-5735 . PMC 3005650 . PMID 21274396 .
- ^ Krone, Nils; Arlt, Wiebke (April 2009). „Genetik der kongenitalen Nebennierenhyperplasie“ . Best Practice & Research. Clinical Endocrinology & Metabolism . 23 ( 2): 181–192 . doi : 10.1016/j.beem.2008.10.014 . ISSN 1878-1594 . PMC 5576025. PMID 19500762 .
- ^ Pareek, Ashutosh; Kumar, Deepanjali; Pareek, Aaushi; Gupta, Madan Mohan; Jeandet, Philippe; Ratan, Yashumati; Jain, Vivek; Kamal, Mohammad Amjad; Saboor, Muhammad; Ashraf, Ghulam MD; Chuturgoon, Anil (30.06.2024). „Retinoblastom: Ein Update zum genetischen Ursprung, zur Klassifizierung und zu konventionellen bis hin zu Behandlungsstrategien der nächsten Generation“ . Heliyon . 10 (12) e32844. Bibcode : 2024Heliy..1032844P . doi : 10.1016/j.heliyon.2024.e32844 . ISSN 2405-8440 . PMC 11226919 . PMID 38975183 .
Externe Links
- Gen+Konversion in den Medical Subject Headings (MeSH) der US National Library of Medicine
- Bilder: http://www.web-books.com/MoBio/Free/Ch8D4.htm (Archiviert am 20.03.2022 in der Wayback Machine) und http://www.web-books.com/MoBio/Free/Ch8D2.htm (Archiviert am 27.01.2022 in der Wayback Machine)


