Ein Paarungssystem beschreibt die Struktur einer Gruppe in Bezug auf ihr Sexualverhalten. Die genaue Bedeutung hängt vom Kontext ab. Bei Tieren beschreibt der Begriff, welche Männchen und Weibchen sich unter welchen Umständen paaren . Zu den anerkannten Systemen gehören Monogamie , Polygamie (einschließlich Polygynie , Polyandrie und Polygynandrie ) und Promiskuität . Sie alle führen zu unterschiedlichen Ergebnissen bei der Partnerwahl und beeinflussen somit die sexuelle Selektion in den jeweiligen Arten. Bei Pflanzen bezeichnet der Begriff den Grad und die Umstände der Fremdbestäubung . In der menschlichen Soziobiologie wurde der Begriff erweitert und umfasst nun auch die Entstehung von Beziehungen wie der Ehe .
Bei Pflanzen
Die primären Fortpflanzungssysteme bei Pflanzen sind Fremdbestäubung (Kreuzbefruchtung), Autogamie (Selbstbefruchtung) und Apomixis (ungeschlechtliche Fortpflanzung ohne Befruchtung, jedoch nur, wenn sie durch Modifikation der Geschlechtsfunktion entsteht). Gemischte Fortpflanzungssysteme , bei denen Pflanzen zwei oder sogar alle drei Fortpflanzungssysteme nutzen, sind nicht selten. [ 1 ]
Zur Beschreibung der Parameter von Pflanzenpaarungssystemen wurden verschiedene Modelle verwendet. Das Basismodell ist das gemischte Paarungsmodell , das auf der Annahme beruht, dass jede Befruchtung entweder Selbstbefruchtung oder eine völlig zufällige Fremdbefruchtung ist. Komplexere Modelle lockern diese Annahme; beispielsweise berücksichtigt das effektive Selbstungsmodell , dass die Paarung zwischen eng verwandten Pflanzen häufiger vorkommen kann als zwischen entfernt verwandten Pflanzen. [ 1 ]
Bei Tieren
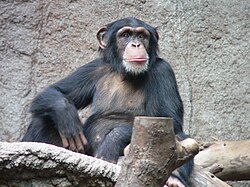

Im Folgenden werden einige der allgemein anerkannten Paarungssysteme bei Tieren aufgeführt:
- Monogamie : Ein Männchen und ein Weibchen bilden eine exklusive Paarbeziehung. Der Begriff „ Paarbindung “ impliziert dies häufig. Sie ist mit Gruppen verbunden, die aus einem Männchen und einem Weibchen bestehen. Es gibt zwei Arten von Monogamie: Typ 1, die fakultative, und Typ 2, die obligate Monogamie. Fakultative Monogamie tritt bei sehr geringer Populationsdichte auf. Das bedeutet, dass die Paarung nur mit einem einzigen Mitglied des anderen Geschlechts stattfindet, da Männchen und Weibchen weit voneinander entfernt leben. Benötigt ein Weibchen die Unterstützung von Artgenossen, um Junge zu bekommen, spricht man von obligater Monogamie. In diesem Fall ist die Tragfähigkeit des Lebensraums jedoch gering, sodass sich nur ein Weibchen innerhalb des Lebensraums fortpflanzen kann. [ 2 ]
- Polygamie : Es werden drei Arten unterschieden:
- Polygynie (das bisher am häufigsten untersuchte polygame Paarungssystem bei Wirbeltieren ): Ein Männchen unterhält eine exklusive Beziehung zu zwei oder mehr Weibchen. Dies ist typisch für Gruppen mit einem Männchen und mehreren Weibchen. Viele mehrjährige Kolonien der Gemeinen Wespe ( Vespula squamosa ) sind polygyn. [ 3 ] Es gibt verschiedene Formen der Polygynie, wie beispielsweise Lek-Polygynie und Ressourcenverteidigungs-Polygynie. Graue Schmetterlinge ( Hipparchia semele ) praktizieren Ressourcenverteidigungs-Polygynie, bei der die Weibchen ein territoriales Männchen anhand des besten Eiablageplatzes auswählen. [ 4 ] Obwohl die meisten Tiere nur eine dieser Strategien anwenden, zeigen einige, wie beispielsweise die Bienenart Xylocopa micans , hybride Strategien . [ 5 ]
- Polyandrie : Ein Weibchen unterhält eine exklusive Beziehung zu zwei oder mehr Männchen. Dies ist sehr selten und tritt vor allem bei Gruppen mit mehreren Männchen und Weibchen auf. Genetische Polyandrie findet sich bei einigen Insektenarten, wie beispielsweise der Westlichen Honigbiene ( Apis mellifera ). Hierbei paart sich eine unbegattete Königin während ihres Hochzeitsfluges mit mehreren Drohnen, wobei jede Drohne nach der einmaligen Paarung stirbt. Die Königin speichert die bei diesen Paarungen gesammelten Spermien in ihrer Spermatheka, um damit während ihres gesamten Fortpflanzungslebens Eier zu befruchten.
- Polygynandrie : Polygynandrie ist eine leichte Abwandlung davon, bei der zwei oder mehr Männchen eine exklusive Beziehung zu zwei oder mehr Weibchen unterhalten; die Anzahl der Männchen und Weibchen muss nicht gleich sein, und bei den bisher untersuchten Wirbeltierarten ist die Anzahl der Männchen in der Regel geringer. Dies steht im Zusammenhang mit Gruppen, die aus mehreren Männchen und Weibchen bestehen.
- Promiskuität : Ein Mitglied einer sozialen Gruppe hat Beziehungen mit beliebigen Mitgliedern des anderen Geschlechts. Dies tritt häufiger in Gruppen mit mehreren Männern und Frauen auf.
Diese Paarbeziehungen können mit sozialen Beziehungen einhergehen, müssen es aber nicht. In diesen Beziehungen bleiben die Sexualpartner zusammen und übernehmen die gemeinsame Aufzucht der Jungen. Wie der alternative Begriff „Paarbindung“ andeutet, ist dies in monogamen Gesellschaften üblich. In vielen polyandrischen Systemen bleiben Männchen und Weibchen zusammen, um die Jungen aufzuziehen. In polygynen Systemen, in denen die Anzahl der Weibchen pro Männchen gering ist, bleibt das Männchen oft bei einem Weibchen, um bei der Aufzucht zu helfen, während die anderen Weibchen ihre Jungen allein aufziehen. In der Polygynandrie kann jedes Männchen ein Weibchen unterstützen; wenn alle Erwachsenen bei der Aufzucht aller Jungen helfen, spricht man üblicherweise von „ gemeinschaftlicher Brutpflege “. In stark polygynen und promiskuitiven Systemen ist die väterliche Fürsorge selten oder findet gar nicht statt.
Diese Beschreibungen sind idealisiert, und die sozialen Partnerschaften sind oft leichter zu beobachten als die Paarungsbeziehungen. Insbesondere:
- Die Beziehungen sind selten exklusiv für alle Individuen einer Art. DNA-Fingerprinting- Studien haben gezeigt, dass selbst bei Paarbindungen Paarungen außerhalb der Paarbeziehung ( außerpaarliche Kopulationen ) relativ häufig vorkommen und ein signifikanter Anteil der Nachkommen daraus resultiert. Die Nachkommen aus außerpaarlichen Kopulationen weisen jedoch in der Regel vorteilhaftere Gene auf. Diese Gene können mit Verbesserungen im Aussehen, im Paarungsverhalten und in der Funktion innerer Körpersysteme in Verbindung gebracht werden. [ 6 ] [ 7 ]
- Manche Arten zeigen unter verschiedenen Umständen unterschiedliche Paarungssysteme, beispielsweise in verschiedenen Teilen ihres Verbreitungsgebiets oder unter verschiedenen Bedingungen der Nahrungsverfügbarkeit.
- Es können Mischungen der oben beschriebenen einfachen Systeme auftreten.
Sexueller Konflikt entsteht zwischen Individuen unterschiedlichen Geschlechts, die unterschiedliche oder widersprüchliche Anforderungen für einen optimalen Paarungserfolg haben. Dieser Konflikt kann zu konkurrierenden Anpassungen und Koanpassungen eines oder beider Geschlechter führen, um für dieses Geschlecht vorteilhafte Paarungsprozesse aufrechtzuerhalten. [ 8 ] [ 9 ] Intralokulärer und interlokaler sexueller Konflikt beschreiben den genetischen Einfluss hinter sexuellem Konflikt und gelten derzeit als die grundlegendsten Formen des sexuellen Konflikts. [ 9 ]
Beim Menschen
Im Vergleich zu anderen Wirbeltieren , bei denen eine Art in der Regel ein einziges Paarungssystem aufweist, zeigen Menschen eine große Vielfalt. Menschen unterscheiden sich auch durch ihre formellen Eheschließungen , die in manchen Kulturen Verhandlungen und Vereinbarungen zwischen älteren Verwandten beinhalten. Bezüglich des Geschlechtsdimorphismus (siehe den Abschnitt über Tiere oben) befinden sich Menschen in einer Zwischengruppe mit moderaten Geschlechtsunterschieden in der Körpergröße, aber relativ kleinen Hoden [ 10 ] , was auf eine relativ geringe Spermienkonkurrenz in sozial monogamen und polygynen menschlichen Gesellschaften hindeutet. Schätzungen zufolge sind 83 % der menschlichen Gesellschaften polygyn, 0,05 % polyandrisch und der Rest monogam. Selbst die letztgenannte Gruppe könnte zumindest teilweise genetisch polygyn sein. [ 11 ]
Aus evolutionärer Sicht neigen Frauen eher zur Monogamie , da ihr Fortpflanzungserfolg auf den Ressourcen beruht, die sie durch die Fortpflanzung erwerben, und nicht auf der Anzahl ihrer Nachkommen. Männer hingegen praktizieren eher Polygamie , da ihr Fortpflanzungserfolg auf der Anzahl ihrer Nachkommen basiert und nicht auf einem Nutzen aus elterlicher Fürsorge. [ 12 ]
Polygynie geht mit einer verstärkten Aufteilung der von Frauen bereitgestellten Nahrungsmittel einher. Dies steht im Einklang mit der Theorie, dass Männer sich auf die Fortpflanzung konzentrieren können, wenn Frauen die Kinder allein erziehen. Polygynie ist zudem mit einer größeren Umweltvariabilität, beispielsweise in Form von Niederschlagsschwankungen, verbunden . Dies kann die Unterschiede in den für Männer verfügbaren Ressourcen vergrößern. Ein wichtiger Zusammenhang besteht darin, dass Polygynie mit einer höheren Krankheitserregerbelastung in einem Gebiet einhergeht, wodurch gute Gene bei einem Mann zunehmend an Bedeutung gewinnen können. Eine hohe Krankheitserregerbelastung verringert außerdem die relative Bedeutung der Sororalpolygynie, was darauf zurückzuführen sein könnte, dass genetische Variabilität bei den Nachkommen an Bedeutung gewinnt (siehe Haupthistokompatibilitätskomplex und sexuelle Selektion ). [ 11 ]
Nahezu alle Begriffe zur Beschreibung tierischer Paarungssysteme stammen aus der Sozialanthropologie , wo sie ursprünglich zur Beschreibung von Ehesystemen entwickelt wurden . Dies zeigt, dass menschliches Sexualverhalten ungewöhnlich flexibel ist, da bei den meisten Tierarten ein einziges Paarungssystem vorherrscht. Obwohl enge Analogien zwischen tierischen Paarungssystemen und menschlichen Eheinstitutionen bestehen, sollten diese nicht überstrapaziert werden, da Ehen in menschlichen Gesellschaften in der Regel von der gesamten sozialen Gruppe anerkannt werden müssen, während es in Tiergesellschaften kein entsprechendes Verfahren gibt. Man sollte der Versuchung widerstehen, aus Beobachtungen tierischer Paarungssysteme Rückschlüsse auf das „Natürliche“ menschlichen Sexualverhalten zu ziehen: Ein Soziobiologe, der das Verhalten von Menschen bei einer anderen Spezies beobachtet, würde schlussfolgern, dass alle bekannten Paarungssysteme für diese Spezies natürlich sind, abhängig von den Umständen oder individuellen Unterschieden. [ 12 ]
Da die Kultur zunehmend Einfluss auf die Partnerwahl des Menschen nimmt, wird es immer schwieriger, aus zoologischer Sicht das „natürliche“ Paarungssystem des Menschen zu bestimmen. Einige Hinweise lassen sich aus der menschlichen Anatomie gewinnen, die sich seit der prähistorischen Zeit im Wesentlichen nicht verändert hat:
- Der Mensch hat im Vergleich zu den meisten Primaten eine relativ geringe Hodengröße im Verhältnis zur Körpermasse; [ 10 ].
- Der Mensch hat im Vergleich zu anderen Primaten ein geringes Ejakulatvolumen und eine geringe Spermienzahl; [ 10 ] [ 13 ]
- Im Vergleich zu den meisten Primaten verbringen Menschen mehr Zeit mit der Paarung;
- Im Vergleich zu den meisten Primaten paaren sich Menschen seltener; [ 10 ].
- Die äußeren Anzeichen der Brunst bei Frauen (z. B. höhere Körpertemperatur, Brustschwellung, Zuckergelüste usw.) werden im Vergleich zu den äußeren Anzeichen des Eisprungs bei den meisten anderen Säugetieren oft als weniger offensichtlich wahrgenommen;
- Bei den meisten Säugetieren führt der Östruszyklus und seine äußeren Anzeichen zur Paarungsaktivität; die Mehrzahl der von Frauen initiierten Paarungen beim Menschen fällt mit dem Östrus zusammen, [ 14 ] aber Menschen kopulieren während des gesamten Fortpflanzungszyklus;
- Nach der Ejakulation/dem Orgasmus wird beim Menschen, sowohl bei Männern als auch bei Frauen, ein Hormon freigesetzt, das eine beruhigende Wirkung hat; [ 15 ].
Einige Forscher vermuten, dass diese anatomischen Faktoren auf eine gewisse Spermienkonkurrenz hindeuten , während andere anatomische Belege dafür liefern, dass das Risiko einer Spermienkonkurrenz beim Menschen gering ist; [ 10 ] [ 13 ]
- Menschen haben im Vergleich zu anderen Primaten ein geringes Ejakulatvolumen und eine geringe Spermienzahl, [ 10 ] [ 13 ] obwohl der Grad der genetischen und gesellschaftlichen Promiskuität in den verschiedenen Kulturen sehr unterschiedlich ist, [ 16 ].
Genetische Ursachen und Auswirkungen
Monogamie hat sich bei Tieren mehrfach unabhängig voneinander entwickelt, wobei homologe Hirnstrukturen die von ihnen angewandten Paarungs- und Brutpflegestrategien vorhersagen. Diese homologen Strukturen entstanden durch ähnliche Mechanismen. Obwohl es viele verschiedene evolutionäre Wege zur Monogamie gab, exprimieren alle untersuchten Organismen ihre Gene im Vorder- und Mittelhirn sehr ähnlich, was auf einen universellen Mechanismus für die Evolution der Monogamie bei Wirbeltieren hindeutet. [ 17 ] Genetik ist zwar nicht die alleinige Ursache für Paarungssysteme bei Tieren, aber sie beeinflusst viele Tiere, insbesondere Nagetiere , die am intensivsten erforscht wurden. Bestimmte Paarungssysteme von Nagetieren – monogam, polygyn oder sozial monogam mit häufiger Promiskuität – korrelieren mit vorgeschlagenen evolutionären Stammbäumen , wobei genetisch enger verwandte Nagetiere mit größerer Wahrscheinlichkeit ein ähnliches Paarungssystem verwenden, was auf eine evolutionäre Grundlage hindeutet. Diese Unterschiede in der Paarungsstrategie lassen sich auf einige wenige wichtige Allele zurückführen , die Verhaltensweisen beeinflussen, welche das Paarungssystem maßgeblich prägen. Dazu gehören beispielsweise die Allele, die für den Grad der elterlichen Fürsorge, die Partnerwahl und die sexuelle Konkurrenz verantwortlich sind – allesamt zumindest teilweise genetisch bedingt. [ 18 ] Auch wenn diese Gene nicht perfekt mit dem von den Tieren angewandten Paarungssystem korrelieren, ist die Genetik ein Faktor, der dazu führen kann, dass sich eine Art oder Population mit einem bestimmten Paarungssystem fortpflanzt oder sogar potenziell mit mehreren an verschiedenen Orten oder zu verschiedenen Zeiten.
Paarungssysteme können auch einen großen Einfluss auf die Genetik einer Population haben und die natürliche Selektion sowie die Artbildung stark beeinflussen. Bei Regenpfeifernpopulationen neigen polygame Arten dazu, sich langsamer zu differenzieren als monogame. Dies liegt wahrscheinlich daran, dass polygame Tiere tendenziell größere Entfernungen zurücklegen, um Partner zu finden, was zu einem hohen Genfluss beiträgt und viele benachbarte Teilpopulationen genetisch homogenisieren kann. Monogame Tiere hingegen bleiben tendenziell näher an ihrem Ausgangspunkt und breiten sich weniger aus. [ 19 ] Da monogame Tiere nicht so weit wandern, isolieren sich geografisch näher beieinander liegende monogame Populationen leichter voneinander, wodurch sich jede Teilpopulation im Vergleich zu polygamen Populationen eher diversifiziert oder neue Arten bildet. Bei polygamen Arten hingegen neigen die männlichen Partner bei polygynen und die weiblichen Partner bei polyandrischen Arten dazu, sich weiter auszubreiten, um Partner zu finden, möglicherweise um mehr oder bessere Partner zu finden. Die erhöhte Mobilität zwischen Populationen führt zu einem verstärkten Genfluss und kann geografisch getrennte Populationen durch Kreuzung genetisch angleichen. [ 20 ] Dies wurde bei einigen Nagetierarten beobachtet, wo sich zuvor promiskuitiv lebende Arten durch die Einführung monogamer Verhaltensweisen in einigen Populationen rasch in monogame und polygame Taxa differenzierten. Dies verdeutlicht die schnellen evolutionären Auswirkungen unterschiedlicher Paarungssysteme. Konkret spalteten sich monogame Populationen bis zu 4,8-mal schneller auf und wiesen geringere Aussterberaten auf als nicht-monogame Populationen. [ 18 ] Ein weiterer Grund für das Potenzial der Monogamie, die Artbildung zu beschleunigen, liegt in der höheren Selektivität der Individuen bei der Partnerwahl und der Konkurrenz. Dies führt dazu, dass sich benachbarte Populationen derselben Art weniger häufig miteinander fortpflanzen, was letztendlich die Artbildung begünstigt. [ 20 ]
Ein weiterer potenzieller Effekt der Polyandrie ist insbesondere die Steigerung der Nachkommenqualität und die Verringerung der Wahrscheinlichkeit von Fortpflanzungsversagen. [ 21 ] Dafür gibt es viele mögliche Gründe. Einer davon ist die größere genetische Vielfalt innerhalb von Familien, da die meisten Nachkommen einer Familie entweder eine andere Mutter oder einen anderen Vater haben. [ 22 ] Dies verringert den potenziellen Schaden durch Inzucht, da Geschwister weniger eng verwandt und genetisch vielfältiger sind. Aufgrund der erhöhten genetischen Vielfalt zwischen den Generationen ist zudem die reproduktive Fitness variabler, wodurch sich positive Merkmale schneller durchsetzen können, da der Fitnessunterschied zwischen Mitgliedern derselben Generation größer ist. Wenn viele Männchen aktiv Paarungen durchführen, kann Polyandrie auch das Aussterberisiko verringern, da sie die effektive Populationsgröße erhöhen kann . Größere effektive Populationen sind stabiler und weniger anfällig für die Ansammlung schädlicher Mutationen durch Gendrift. [ 22 ]
In Mikroorganismen
Bakterien
Die Paarung von Bakterien beinhaltet den Transfer von DNA von einer Zelle zur anderen und die Integration der übertragenen DNA in das Genom der Empfängerbakterien durch homologe Rekombination . Der DNA-Transfer zwischen Bakterienzellen kann auf drei Hauptwegen erfolgen. Erstens kann ein Bakterium exogene DNA aufnehmen, die von einem anderen Bakterium in das umgebende Medium freigesetzt wird – ein Prozess, der als Transformation bezeichnet wird . DNA kann auch durch Transduktion von einem Bakterium auf ein anderes übertragen werden . Dieser Prozess wird durch einen infizierenden Virus (Bakteriophagen) vermittelt. Die dritte Methode des DNA-Transfers ist die Konjugation , bei der ein Plasmid den Transfer durch direkten Zellkontakt zwischen den Zellen vermittelt.
Die Transformation, anders als Transduktion oder Konjugation, beruht auf zahlreichen bakteriellen Genprodukten, die spezifisch interagieren, um diesen komplexen Prozess zu ermöglichen [ 23 ]. Daher ist die Transformation eindeutig eine bakterielle Anpassung an den DNA-Transfer. Damit ein Bakterium Spender-DNA binden, aufnehmen und in sein eigenes Chromosom rekombinieren kann, muss es zunächst einen speziellen physiologischen Zustand erreichen, die sogenannte natürliche Kompetenz . Bei Bacillus subtilis sind etwa 40 Gene für die Entwicklung der Kompetenz und die DNA-Aufnahme erforderlich [ 24 ] . Die Länge der während der Transformation von B. subtilis übertragenen DNA kann bis zu einem Drittel und bis zum gesamten Chromosom betragen [25, 26 ] . Transformation scheint unter Bakterienarten weit verbreitet zu sein, und mindestens 60 Arten sind bekannt für ihre natürliche Fähigkeit, transformationskompetent zu werden [ 27 ] . Die Entwicklung der Kompetenz in der Natur ist üblicherweise mit stressigen Umweltbedingungen verbunden und scheint eine Anpassung zur Erleichterung der Reparatur von DNA-Schäden in Empfängerzellen zu sein [ 28 ] .
Archaeen
Bei einigen Archaeenarten erfolgt die Paarung durch die Bildung zellulärer Aggregate. Halobacterium volcanii , ein extrem halophiles Archaebakterium, bildet zytoplasmatische Brücken zwischen den Zellen, die offenbar dem DNA-Transfer von einer Zelle zur anderen in beide Richtungen dienen. [ 29 ]
Wenn die hyperthermophilen Archaeen Sulfolobus solfataricus [ 30 ] und Sulfolobus acidocaldarius [ 31 ] den DNA-schädigenden Substanzen UV- Strahlung, Bleomycin oder Mitomycin C ausgesetzt werden , kommt es zu einer artspezifischen Zellaggregation. Die Aggregation in S. solfataricus konnte nicht durch andere physikalische Stressoren wie pH-Wert- oder Temperaturänderungen induziert werden [ 30 ] , was darauf hindeutet, dass die Aggregation spezifisch durch DNA-Schäden ausgelöst wird. Ajon et al. [ 31 ] zeigten, dass die UV-induzierte Zellaggregation in S. acidocaldarius einen häufigen Austausch von Chromosomenmarkern vermittelt . Die Rekombinationsraten überstiegen die von nicht-induzierten Kulturen um bis zu drei Größenordnungen. Frols et al. [ 30 ] und Ajon et al. [ 31 ] vermuteten, dass die Zellaggregation den artspezifischen DNA-Transfer zwischen Sulfolobus- Zellen verstärkt, um die Reparatur beschädigter DNA durch homologe Rekombination zu verbessern . Diese Reaktion scheint eine primitive Form der sexuellen Interaktion zu sein, ähnlich den besser untersuchten bakteriellen Transformationssystemen, die ebenfalls mit artspezifischem DNA-Transfer zwischen Zellen und der daraus resultierenden homologen Rekombinationsreparatur von DNA-Schäden einhergehen.
Protisten
Protisten sind eine große Gruppe vielfältiger eukaryotischer Mikroorganismen , hauptsächlich einzellige Tiere und Pflanzen, die keine Gewebe bilden . Eukaryoten entstanden vor mehr als 1,5 Milliarden Jahren. [ 32 ] Die frühesten Eukaryoten waren wahrscheinlich Protisten. Paarung und sexuelle Fortpflanzung sind unter den heute lebenden Eukaryoten weit verbreitet. Basierend auf einer phylogenetischen Analyse schlugen Dacks und Roger [ 33 ] vor, dass fakultative sexuelle Fortpflanzung bereits beim gemeinsamen Vorfahren aller Eukaryoten vorhanden war.
Bis vor Kurzem hielten es viele Biologen für unwahrscheinlich, dass Paarung und Sexualität ein ursprüngliches und grundlegendes Merkmal von Eukaryoten sein könnten. Ein Hauptgrund für diese Ansicht war, dass Paarung und Sexualität bei bestimmten pathogenen Protisten, deren Vorfahren sich früh vom eukaryotischen Stammbaum abspalteten, scheinbar fehlten. Inzwischen ist jedoch bekannt, dass einige dieser Protisten zur Meiose fähig sind oder diese Fähigkeit kürzlich besaßen und sich somit paaren können. Ein Beispiel hierfür ist der weit verbreitete Darmparasit Giardia intestinalis , der einst als Nachkomme einer Protistenlinie galt, die vor dem Auftreten von Meiose und Sexualität existierte. Kürzlich wurde jedoch festgestellt, dass G. intestinalis über einen Kernsatz von Genen verfügt, die in der Meiose eine Rolle spielen und bei sexuell reproduzierenden Eukaryoten weit verbreitet sind. [ 34 ] Diese Ergebnisse legen nahe, dass G. intestinalis zur Meiose und somit zur Paarung und sexuellen Fortpflanzung fähig ist. Darüber hinaus wurden auch bei G. intestinalis direkte Hinweise auf meiotische Rekombination gefunden, die auf Paarung und sexuelle Fortpflanzung hindeuten . [ 35 ] Weitere Protisten, für die kürzlich Hinweise auf Paarung und sexuelle Fortpflanzung beschrieben wurden, sind parasitäre Protozoen der Gattung Leishmania [ 36 ] , Trichomonas vaginalis [ 37 ] und Acanthamoeba [ 38 ] .
Protisten vermehren sich im Allgemeinen ungeschlechtlich unter günstigen Umweltbedingungen, neigen aber dazu, sich unter Stressbedingungen wie Hunger oder Hitzeschock geschlechtlich fortzupflanzen.
Viren
Sowohl tierische Viren als auch Bakterienviren ( Bakteriophagen ) können sich paaren. Wird eine Zelle von zwei genetisch markierten Viren infiziert, entstehen häufig rekombinante Virusnachkommen, was auf eine Paarungsinteraktion auf DNA-Ebene hindeutet. Eine weitere Manifestation der Paarung viraler Genome ist die Multiplizitätsreaktivierung (MR). MR ist der Prozess, bei dem mindestens zwei Virusgenome, die jeweils inaktivierende Genomschäden aufweisen, in einer infizierten Zelle miteinander interagieren und lebensfähige Nachkommenviren bilden. Die für die MR im Bakteriophagen T4 benötigten Gene sind weitgehend identisch mit den Genen, die für die allelische Rekombination erforderlich sind. [ 39 ] Beispiele für MR bei tierischen Viren werden in den Artikeln Herpes-simplex-Virus , Influenza-A-Virus , Adenoviridae , Simianvirus 40 , Vacciniavirus und Reoviridae beschrieben .
Siehe auch
- Assortative Paarung – Bevorzugtes Paarungsmuster zwischen Individuen mit ähnlichen Phänotypen
- Dating-Präferenzen – Vorlieben bei romantischen Partnern
- Heterosexualität – Anziehung zwischen Menschen des anderen Geschlechts
- Fortpflanzung der Monokotyledonen – Fortpflanzungssystem der Blütenpflanzen
- r/K-Selektionstheorie – Ökologische Theorie zur Selektion von Lebenszyklusmerkmalen
- Sexuelle Fortpflanzung – Biologischer Prozess
Referenzen
- ^ a b Brown, AHD; et al. (1989). „Isozymanalyse von pflanzlichen Paarungssystemen“. In: Soltis, DE; Soltis, PS (Hrsg.). Isozyme in der Pflanzenbiologie . Portland: Dioscorides Press. S. 73–86 .
- ^ Kleiman, Devra G (1977). „Monogamie bei Säugetieren“. The Quarterly Review of Biology . 52 (1): 39–69 . doi : 10.1086 / 409721 . PMID 857268. S2CID 25675086 .
- ^ Pickett, KM, Osborne, DM, Wahl, D. und Wenzel, JW (2001). „Ein riesiges Nest von Vespula squamosa aus Florida, das größte jemals in Nordamerika gemeldete soziale Nest, mit Anmerkungen zum Koloniezyklus und zur Fortpflanzung“, „Journal of the New York Entomological Society“, 2001.
- Dreisig , H. (1995-02-01). „Thermoregulation und Flugaktivität bei territorialen männlichen Äschen, Hipparchia semele (Satyridae), und Dickkopffaltern, Ochlodes venata (Hesperiidae)“. Oecologia . 101 ( 2): 169–176 . Bibcode : 1995Oecol.101..169D . doi : 10.1007/BF00317280 . ISSN 0029-8549 . PMID 28306787. S2CID 22413242 .
- ^ McAuslane, HJ; Vinson, SB; Williams, HJ (1990-06-01). „Veränderungen des Inhalts der Mandibular- und Mesosomendrüsen männlicher Xylocopa micans (Hymenoptera: Anthophoridae) in Abhängigkeit vom Paarungssystem“. Journal of Chemical Ecology . 16 (6): 1877–1885 . Bibcode : 1990JCEco..16.1877M . doi : 10.1007/BF01020501 . ISSN 0098-0331 . PMID 24263991. S2CID 35733229 .
- ^ Bekoff, Marc (2004). Encyclopedia of Animal Behavior . Westport: Greenwood Press. S. 889–891 . ISBN 978-0-313-32747-6Die
- ^ Howie, James (Januar 2017). „Weibliche heimliche Kopulation: In: Encyclopedia of Evolutionary Psychological Science“ . Researchgate . Abgerufen am 20. Oktober 2017 .
- ^ Parker, GA (28. Februar 2006). „Sexueller Konflikt um Paarung und Befruchtung: ein Überblick“ . Philosophical Transactions of the Royal Society B: Biological Sciences . 361 (1466): 235–259 . doi : 10.1098 / rstb.2005.1785 . PMC 1569603. PMID 16612884 .
- ^ a b Yasukawa, Ken; Tang-Martínez, Zuleyma (2014). Tierverhalten: Wie und warum Tiere die Dinge tun, die sie tun . Kalifornien, USA: Praeger. S. 174. ISBN 978-0-313-39870-4Die
- ^ a b c d e f Dixson, Alan (Mai 2018). „Kopulatorische und postkopulatorische sexuelle Selektion bei Primaten“ . Folia Primatologica . 89 ( 3–4 ): 258–286 . doi : 10.1159/000488105 . PMID 29804108. Abgerufen am 31. Juli 2023 .
- ^ a b Das Oxford Handbook of Evolutionary Psychology, herausgegeben von Robin Dunbar und Louise Barret, Oxford University Press, 2007, Kapitel 30 Ökologische und soziokulturelle Einflüsse auf Paarungs- und Heiratssysteme von Bobbi S. Low
- ^ a b Cartwright, John H. (2002). Evolutionäre Erklärungen menschlichen Verhaltens . New York, NY: Taylor and Francis e-Library. S. 19. ISBN 978-0-203-47064-0Die
- ^ a b c Van der Horst, Gerhard; Maree, Liana (November 2013). „Spermienform und -funktion in Abwesenheit von Spermienkonkurrenz“ . Molecular Reproduction and Development . 81 (3): 204–216 . doi : 10.1002/mrd.22277 . PMID 24273026. S2CID 43821455. Abgerufen am 31. Juli 2023 .
- ^ Beach, Frank (1976) . „Sexuelle Attraktivität, Prozeptivität und Receptivität bei weiblichen Säugetieren“. Hormones and Behavior . 7 (1): 105–138 . doi : 10.1016/0018-506x(76)90008-8 . PMID 819345. S2CID 5469783 .
- ^ Esch, Tobias; Stefano, George (Juni 2005). „Die Neurobiologie der Liebe“. Neuro Endocrinology Letters . 26 (3): 175–92 . PMID 15990719 .
- ^ Marlowe, Frank W. (August 2003). „Das Paarungssystem von Sammlern in der Standard-Kreuzkulturstichprobe“ (PDF) . Cross-Cultural Research . 37 (3): 282–306 . doi : 10.1177/1069397103254008 . S2CID 145482562. Archiviert vom Original (PDF) am 2. März 2014. Abgerufen am 26. Februar 2014 .
- ^ Young, Rebecca L.; Ferkin, Michael H.; Ockendon-Powell, Nina F.; Orr, Veronica N.; Phelps, Steven M.; Pogány, Ákos; Richards-Zawacki, Corinne L.; Summers, Kyle; Székely, Tamás; Trainor, Brian C.; Urrutia, Araxi O.; Zachar, Gergely; O'Connell, Lauren A.; Hofmann, Hans A. (22. Januar 2019). „Konservierte Transkriptomprofile untermauern die Monogamie bei Wirbeltieren“ . Proceedings of the National Academy of Sciences . 116 (4): 1331–1336 . Bibcode : 2019PNAS..116.1331Y . doi : 10.1073/pnas.1813775116 . PMC 6347671 . PMID 30617061 .
- ^ a b Sinervo, Barry; Chaine, Alexis S.; Miles, Donald B. (Februar 2020). „Soziale Spiele und genetische Selektion treiben die Evolution und Artbildung von Säugetier-Paarungssystemen an“ (PDF) . The American Naturalist . 195 (2): 247–274 . Bibcode : 2020ANat..195..247S . doi : 10.1086/706810 . PMID 32017620. S2CID 208584558 .
- ^ D'Urban Jackson, Josephine; Dos Remedios, Natalie; Maher, Kathryn H.; Zefania, Sama; Haig, Susan; Oyler-McCance, Sara; Blomqvist, Donald; Burke, Terry; Bruford, Michael W.; Székely, Tamás; Küpper, Clemens (Mai 2017). „Polygamie verlangsamt die Populationsdivergenz bei Watvögeln“ . Evolution . 71 ( 5): 1313–1326 . Bibcode : 2017Evolu..71.1313J . doi : 10.1111/evo.13212 . PMC 5484996. PMID 28233288 .
- ^ a b Ritchie, Michael G. (1. Dezember 2007). „Sexuelle Selektion und Artbildung“. Annual Review of Ecology, Evolution, and Systematics . 38 (1): 79–102 . doi : 10.1146/annurev.ecolsys.38.091206.095733 .
- ^ Holman, Luke; Kokko, Hanna (5. März 2013). „Die Folgen der Polyandrie für die Überlebensfähigkeit von Populationen, das Aussterberisiko und den Naturschutz“ . Philosophical Transactions of the Royal Society B: Biological Sciences . 368 (1613). doi : 10.1098/rstb.2012.0053 . PMC 3576587. PMID 23339244 .
- ^ a b Firman, Renée C.; Simmons, Leigh W. (Januar 2012). „Männliche Hausmäuse, die sich durch postkopulatorische sexuelle Selektion entwickeln, zeugen Embryonen mit erhöhter Lebensfähigkeit: Postkopulatorische sexuelle Selektion und Embryonenlebensfähigkeit bei Mäusen“. Ecology Letters . 15 (1): 42–46 . doi : 10.1111/j.1461-0248.2011.01706.x . PMID 22011211 .
- ^ Chen I, Dubnau D (2004). „DNA-Aufnahme während der bakteriellen Transformation“. Nat . Rev. Microbiol . 2 (3): 241–9 . doi : 10.1038/nrmicro844 . PMID 15083159. S2CID 205499369 .
- ^ Solomon JM, Grossman AD (1996). „Wer ist kompetent und wann: Regulation der natürlichen genetischen Kompetenz in Bakterien“. Trends Genet . 12 (4): 150–5 . doi : 10.1016/0168-9525(96)10014-7 . PMID 8901420 .
- ^ Akamatsu T, Taguchi H (2001). „Einbau der gesamten chromosomalen DNA aus Protoplastenlysaten in kompetente Zellen von Bacillus subtilis“ . Biosci. Biotechnol. Biochem . 65 (4): 823–9 . doi : 10.1271 / bbb.65.823 . PMID 11388459. S2CID 30118947 .
- ^ Saito Y, Taguchi H, Akamatsu T (2006). „Schicksal des transformierenden bakteriellen Genoms nach Einbau in kompetente Zellen von Bacillus subtilis: eine kontinuierliche Länge eingebauter DNA“. J. Biosci. Bioeng . 101 (3): 257–62 . doi : 10.1263/jbb.101.257 . PMID 16716928 .
- ^ Johnsborg O, Eldholm V, Håvarstein LS (2007). „Natürliche genetische Transformation: Prävalenz, Mechanismen und Funktion“ . Res. Microbiol . 158 (10): 767–78 . doi : 10.1016/j.resmic.2007.09.004 . PMID 17997281 .
- Bernstein H, Bernstein C, Michod RE (2012). DNA-Reparatur als primäre adaptive Funktion von Sex bei Bakterien und Eukaryoten. Kapitel 1: S. 1–49 in: DNA-Reparatur: Neue Forschung, herausgegeben von Sakura Kimura und Sora Shimizu. Nova Sci. Publ., Hauppauge, NY. ISBN 978-1-62100-808-8https://www.novapublishers.com/catalog/product_info.php?products_id=31918 (Archiviert am 29.10.2013 im Internet Archive)
- Rosenshine I, Tchelet R, Mevarech M (1989). „Der Mechanismus des DNA-Transfers im Paarungssystem eines Archaebakteriums“. Science . 245 (4924): 1387–9 . Bibcode : 1989Sci...245.1387R . doi : 10.1126/science.2818746 . PMID 2818746 .
- Fröls S, Ajon M, Wagner M, Teichmann D, Zolghadr B, Folea M, Boekema EJ, Driessen AJ, Schleper C, Albers SV (2008). „ UV-induzierbare zelluläre Aggregation des hyperthermophilen Archaebakteriums Sulfolobus solfataricus wird durch die Bildung von Pili vermittelt“ (PDF) . Mol. Microbiol . 70 (4): 938–52 . doi : 10.1111/j.1365-2958.2008.06459.x . PMID 18990182 .
- Ajon M, Fröls S, van Wolferen M, Stoecker K , Teichmann D, Driessen AJ, Grogan DW, Albers SV, Schleper C (2011). „ UV - induzierbarer DNA-Austausch in hyperthermophilen Archaeen, vermittelt durch Typ-IV-Pili“ (PDF) . Mol. Microbiol . 82 (4): 807–17 . doi : 10.1111/j.1365-2958.2011.07861.x . PMID 21999488 .
- ^ Javaux EJ, Knoll AH, Walter MR (2001). „Morphologische und ökologische Komplexität in frühen eukaryotischen Ökosystemen“. Nature . 412 (6842): 66–9 . Bibcode : 2001Natur.412...66J . doi : 10.1038 / 35083562 . PMID 11452306. S2CID 205018792 .
- ^ Dacks J, Roger AJ (1999). „Die erste sexuelle Linie und die Relevanz des fakultativen Geschlechts“. J. Mol. Evol . 48 (6): 779–83 . Bibcode : 1999JMolE..48..779D . doi : 10.1007 / pl00013156 . PMID 10229582. S2CID 9441768 .
- ^ Ramesh MA, Malik SB, Logsdon JM (2005). „Eine phylogenomische Bestandsaufnahme meiotischer Gene; Hinweise auf Sex bei Giardia und einen frühen eukaryotischen Ursprung der Meiose“ . Curr . Biol . 15 (2): 185–91 . Bibcode : 2005CBio...15..185R . doi : 10.1016/j.cub.2005.01.003 . PMID 15668177. S2CID 17013247 .
- Cooper MA, Adam RD, Worobey M, Sterling CR (2007). „Populationsgenetik liefert Hinweise auf Rekombination bei Giardia“ . Curr. Biol . 17 (22): 1984–8 . Bibcode : 2007CBio...17.1984C . doi : 10.1016 / j.cub.2007.10.020 . PMID 17980591. S2CID 15991722 .
- ^ Akopyants NS, Kimblin N, Secundino N, Patrick R, Peters N, Lawyer P, Dobson DE, Beverley SM, Sacks DL (2009). „Nachweis des genetischen Austauschs während der zyklischen Entwicklung von Leishmania im Sandmückenvektor“ . Science . 324 (5924): 265–268 . Bibcode : 2009Sci...324..265A . doi : 10.1126/science.1169464 . PMC 2729066. PMID 19359589 .
- ^ Malik SB, Pightling AW, Stefaniak LM, Schurko AM, Logsdon JM (2008). „Eine erweiterte Liste konservierter meiotischer Gene liefert Hinweise auf Sex bei Trichomonas vaginalis“ . PLOS ONE . 3 (8) : e2879. Bibcode : 2008PLoSO...3.2879M . doi : 10.1371/journal.pone.0002879 . PMC 2488364. PMID 18663385 .
- ^ Khan NA, Siddiqui R (2015). „Gibt es Hinweise auf sexuelle Fortpflanzung (Meiose) bei Acanthamoeba?“ . Pathog Glob Health . 109 (4): 193– 5. doi : 10.1179/2047773215Y.0000000009 . PMC 4530557 . PMID 25800982 .
- Bernstein C (1981). „Reparatur der DNA in Bakteriophagen“ . Microbiol. Rev. 45 ( 1): 72–98 . doi : 10.1128/MMBR.45.1.72-98.1981 . PMC 281499. PMID 6261109 .
Weiterführende Literatur
- Marlowe, FW (2003). „Das Paarungssystem von Sammlern in der Standard-Kreuzkulturstichprobe“ (PDF) . Cross-Cultural Research . 37 (3): 282–306 . doi : 10.1177/1069397103254008 . S2CID 145482562. Archiviert vom Original (PDF) am 1. September 2006.


