| Sexuelle Orientierung |
|---|
 |
|


Das Sexualverhalten von Tieren ist vielfältig, auch innerhalb derselben Art . Gängige Paarungssysteme , die der Fortpflanzung dienen, sind Monogamie , Polygynie , Polyandrie , Polygamie und Promiskuität . Andere Formen des Sexualverhaltens können ebenfalls reproduktiv motiviert sein (z. B. Sex unter Zwang oder Nötigung und situationsbedingtes Sexualverhalten ) oder nicht (z. B. homosexuelles , bisexuelles , artübergreifendes Sexualverhalten , sexuelle Erregung durch Objekte oder Orte , Sex mit toten Tieren usw.).
Wenn tierisches Sexualverhalten der Fortpflanzung dient, spricht man oft von Paarung oder Kopulation . Bei den meisten nicht-menschlichen Säugetieren findet Paarung und Kopulation während der Brunst (der fruchtbarsten Phase im Fortpflanzungszyklus des Weibchens) statt, was die Chancen auf eine erfolgreiche Befruchtung erhöht . [ 1 ] [ 2 ] Manche Formen tierischen Sexualverhaltens beinhalten Konkurrenz , mitunter auch Kämpfe, zwischen mehreren Männchen. Weibchen wählen Männchen zur Paarung oft nur dann aus, wenn diese stark erscheinen und sich verteidigen können. Das Männchen, das einen Kampf gewinnt, hat möglicherweise auch die Chance, sich mit einer größeren Anzahl von Weibchen zu paaren und gibt somit seine Gene an seine Nachkommen weiter. [ 3 ]
Historisch gesehen ging man davon aus, dass nur Menschen und wenige andere Arten sexuelle Handlungen jenseits der Fortpflanzung vollziehen und dass die Sexualität von Tieren instinktiv und ein einfaches Reiz-Reaktions -Verhalten sei. Neben homosexuellen Verhaltensweisen masturbieren jedoch auch verschiedene Arten und nutzen dabei mitunter Objekte als Hilfsmittel . Sexuelles Verhalten ist möglicherweise stärker mit dem Aufbau und der Aufrechterhaltung komplexer sozialer Bindungen innerhalb einer Population verknüpft, die deren Überleben auch außerhalb der Fortpflanzung sichern. Sowohl reproduktives als auch nicht-reproduktives Verhalten kann mit dem Ausdruck von Dominanz über andere Tiere oder dem Überleben in Stresssituationen zusammenhängen (wie beispielsweise Sex unter Zwang oder Nötigung).
Paarungssysteme

In der Soziobiologie und Verhaltensökologie beschreibt der Begriff „ Paarungssystem “ die Strukturierung von Tiergesellschaften in Bezug auf das Sexualverhalten. Das Paarungssystem legt fest, welche Männchen sich mit welchen Weibchen paaren und unter welchen Umständen. Es gibt vier grundlegende Systeme:
| Die vier grundlegenden Paarungssysteme [ 4 ] : 160–161 [ 5 ] | ||
|---|---|---|
| Alleinstehende Frau | Mehrere Weibchen | |
| Single Mann | Monogamie | Polygynie |
| Mehrere Männchen | Polyandrie | Polygynandrie |
Monogamie
Monogamie liegt vor , wenn sich ein Männchen und ein Weibchen ausschließlich miteinander paaren. In einem monogamen Paarungssystem bilden Individuen dauerhafte Paare und arbeiten bei der Aufzucht der Nachkommen zusammen. Diese Paare können ein Leben lang bestehen, wie beispielsweise bei Tauben [ 6 ] , oder sich gelegentlich von einer Paarungszeit zur nächsten ändern, wie bei Kaiserpinguinen [ 7 ] . Im Gegensatz zu Arten mit Konkurrenzkampf weisen diese paarbindenden Arten ein geringeres Maß an männlicher Aggression und Konkurrenz sowie einen geringen Geschlechtsdimorphismus auf . Zoologen und Biologen haben inzwischen Hinweise darauf gefunden, dass monogame Tierpaare nicht immer sexuell exklusiv sind. Viele Tiere, die Paare zur Paarung und Aufzucht der Nachkommen bilden, haben regelmäßig sexuelle Kontakte mit Partnern außerhalb der Paarbeziehung [ 8 ] [ 9 ] [ 10 ] [ 11 ] . Dies schließt bereits erwähnte Beispiele wie Schwäne ein . Manchmal führen diese außerehelichen sexuellen Aktivitäten zu Nachkommen. Genetische Tests zeigen häufig, dass einige der Nachkommen monogamer Paare aus Paarungen des Weibchens mit einem außerehelichen Männchen stammen. [ 9 ] [ 12 ] [ 13 ] [ 14 ] Diese Erkenntnisse haben Biologen dazu veranlasst, neue Wege zu finden, über Monogamie zu sprechen. Laut Ulrich Reichard (2003):
Soziale Monogamie bezeichnet die soziale Lebensweise eines Mannes und einer Frau (z. B. gemeinsame Nutzung eines Territoriums, Verhalten, das auf ein soziales Paar hindeutet, und/oder räumliche Nähe), ohne daraus sexuelle Interaktionen oder Fortpflanzungsmuster abzuleiten. Beim Menschen manifestiert sich soziale Monogamie in der monogamen Ehe. Sexuelle Monogamie ist definiert als eine ausschließliche sexuelle Beziehung zwischen einer Frau und einem Mann, basierend auf Beobachtungen sexueller Interaktionen. Der Begriff genetische Monogamie wird verwendet, wenn DNA-Analysen bestätigen, dass sich ein Paar ausschließlich miteinander fortpflanzt. Eine Kombination der Begriffe kennzeichnet Beispiele, in denen verschiedene Beziehungsebenen übereinstimmen. So beschreiben beispielsweise soziosexuelle und sozogenetische Monogamie jeweils entsprechende soziale und sexuelle bzw. soziale und genetische Monogamie. [ 15 ]
Was ein Tierpaar sozial monogam macht, bedeutet nicht zwangsläufig auch sexuelle oder genetische Monogamie. Soziale, sexuelle und genetische Monogamie können in unterschiedlichen Kombinationen auftreten.
Soziale Monogamie ist im Tierreich relativ selten. Ihre Häufigkeit variiert stark innerhalb der verschiedenen Zweige des Stammbaums. Über 90 % der Vogelarten leben sozial monogam. [ 10 ] [ 16 ] Dies steht im Gegensatz zu Säugetieren. Nur 3 % der Säugetierarten sind sozial monogam, während es bei Primaten bis zu 15 % sind. [ 10 ] [ 16 ] Soziale Monogamie wurde auch bei Reptilien , Fischen und Insekten beobachtet .
Sexuelle Monogamie ist auch im Tierreich selten. Viele sozial monogame Arten praktizieren Kopulationen außerhalb der Paarbeziehung und sind somit sexuell nicht monogam. Beispielsweise sind zwar über 90 % der Vögel sozial monogam, doch „im Durchschnitt stammen 30 % oder mehr der Jungvögel in einem Nest von einem anderen Vater als dem ansässigen Männchen.“ [ 17 ] Patricia Adair Gowaty schätzt, dass von 180 verschiedenen Arten sozial monogamer Singvögel nur 10 % sexuell monogam sind. [ 18 ]
Die Häufigkeit genetischer Monogamie, ermittelt durch DNA-Fingerprinting, variiert stark zwischen den Arten. Bei einigen wenigen seltenen Arten liegt sie bei 100 %, wobei alle Nachkommen genetisch mit dem sozial monogamen Paar verwandt sind. Bei anderen Arten ist die genetische Monogamie jedoch auffallend gering. Barash und Lipton merken dazu an:
Die höchste bekannte Häufigkeit von Kopulationen außerhalb der Paarbeziehung findet sich bei den Zaunkönigen , den wunderschönen tropischen Vögeln, die botanisch als Malurus splendens und Malurus cyaneus bekannt sind . Mehr als 65 % aller Zaunkönig-Küken stammen von Männchen außerhalb der vermeintlichen Brutgruppe. [ 16 ] S. 12
Solch niedrige Raten genetischer Monogamie haben Biologen und Zoologen überrascht und sie gezwungen, die Rolle der sozialen Monogamie in der Evolution neu zu überdenken. Sie können nicht länger davon ausgehen, dass die soziale Monogamie die Genverteilung innerhalb einer Art bestimmt. Je niedriger die Raten genetischer Monogamie bei sozial monogamen Paaren sind, desto geringer ist der Einfluss der sozialen Monogamie auf die Genverteilung unter den Nachkommen.
Polygamie
Der Begriff Polygamie ist ein Oberbegriff für nicht-monogame Paarungen. Polygame Beziehungen können daher polygyn, polyandrisch oder polygynandrisch sein. Bei einigen Arten können Individuen je nach Umweltbedingungen entweder polygames oder monogames Verhalten zeigen. Ein Beispiel hierfür ist die soziale Wespe Apoica flavissima . Bei manchen Arten praktizieren beide Geschlechter Polygynie und Polyandrie. Polygamie beider Geschlechter wurde beim Roten Reismehlkäfer ( Tribolium castaneum ) beobachtet. Auch bei vielen Schmetterlingsarten , darunter Mythimna unipuncta (Echte Heerwurm-Motte), kommt Polygamie vor . [ 19 ]
Eine Art, die sich durch ein ausgeprägtes Turnierverhalten auszeichnet, ist dadurch gekennzeichnet, dass die Paarung häufig polygam ist und mit starker Aggression und Konkurrenz zwischen den Männchen einhergeht. [ 20 ] Dieses Turnierverhalten korreliert oft mit einem hohen Grad an Geschlechtsdimorphismus ; Beispiele hierfür sind Schimpansen und Paviane . Die meisten polygamen Arten zeigen ein hohes Maß an Turnierverhalten; eine bemerkenswerte Ausnahme bilden die Bonobos .
Polygynie
Polygynie liegt vor, wenn ein Männchen das ausschließliche Paarungsrecht mit mehreren Weibchen besitzt. Bei manchen Arten, insbesondere solchen mit haremähnlichen Strukturen, paart sich nur eines von wenigen Männchen in einer Gruppe von Weibchen. Streng genommen wird Polygynie in der Soziobiologie und Zoologie als ein System definiert, in dem ein Männchen eine Beziehung zu mehr als einem Weibchen unterhält, die Weibchen aber überwiegend an ein einziges Männchen gebunden sind. Wird das aktive Männchen vertrieben, getötet oder auf andere Weise aus der Gruppe entfernt, sorgt das neue Männchen bei einigen Arten dafür, dass die Fortpflanzungsressourcen nicht an die Jungen eines anderen Männchens verschwendet werden. [ 21 ] Dies kann das neue Männchen auf verschiedene Weise erreichen, unter anderem:
- Konkurrenzbedingter Kindstötung : Bei Löwen , Flusspferden und einigen Affenarten tötet das neue Männchen die Nachkommen des vorherigen Alphamännchens, um die Mütter für seine sexuellen Avancen empfänglich zu machen, da diese nicht mehr gesäugt werden . Um dies zu verhindern, zeigen viele weibliche Primaten Ovulationssignale gegenüber allen Männchen und eine situationsabhängige Empfänglichkeit. [ 22 ]
- Belästigung bis zur Fehlgeburt : Bei Wildpferden und Pavianen attackiert das Männchen trächtige Weibchen so lange, bis diese eine Fehlgeburt erleiden.
- Pheromonbedingte Spontanaborte
- Bei einigen Nagetieren wie Mäusen führt ein neues Männchen mit einem anderen Geruch dazu, dass trächtige Weibchen die Einnistung frisch befruchteter Eizellen spontan unterbrechen. Dies geschieht ohne direkten Kontakt; der Effekt wird allein durch den Geruch vermittelt . Er ist als Bruce-Effekt bekannt .
Von Haartman beschrieb das Paarungsverhalten des Trauerschnäppers als sukzessive Polygynie. [ 23 ] In diesem System verlassen die Männchen ihr angestammtes Revier, sobald das Weibchen ihr erstes Ei gelegt hat. Anschließend errichten sie ein zweites Revier, vermutlich um ein zweites Weibchen zur Paarung anzulocken. Selbst wenn sie ein zweites Weibchen gewinnen, kehren die Männchen in der Regel zum ersten Weibchen zurück, um ausschließlich für sie und ihren Nachwuchs zu sorgen. [ 24 ]
Schätzungen zufolge kommen polygyne Paarungsstrukturen bei bis zu 90 % der Säugetierarten vor. [ 25 ] Da Polygynie die häufigste Form der Polygamie bei Wirbeltieren (einschließlich des Menschen) ist, wurde sie weitaus umfassender untersucht als Polyandrie oder Polygynandrie.
Polyandrie

Polyandrie liegt vor, wenn ein Weibchen das ausschließliche Paarungsrecht mit mehreren Männchen erhält. Bei einigen Arten, wie beispielsweise den Rotlippen-Schleimfischen , kommen sowohl Polygynie als auch Polyandrie vor. [ 26 ]
Bei einigen Tiefsee- Anglerfischen sind die Männchen deutlich kleiner als die Weibchen. Sobald sie ein Weibchen gefunden haben, beißen sie sich in dessen Haut und setzen dabei ein Enzym frei , das die Haut ihres Mundes und ihres Körpers auflöst. Anschließend verschmelzen die beiden bis auf die Ebene der Blutgefäße. Das Männchen verkümmert daraufhin langsam und verliert zunächst seine Verdauungsorgane, dann sein Gehirn, sein Herz und seine Augen. Am Ende bleibt nur noch ein Paar Gonaden übrig, die Spermien freisetzen, sobald Hormone im Blutkreislauf des Weibchens den Eisprung auslösen. Dieser extreme Geschlechtsdimorphismus stellt sicher, dass dem Weibchen sofort ein Partner zur Verfügung steht, wenn es laichbereit ist. [ 27 ] Ein einzelnes Anglerfischweibchen kann sich auf diese Weise mit mehreren Männchen paaren.
Polygynandrie
Polygynandrie liegt vor, wenn mehrere Männchen sich wahllos mit mehreren Weibchen paaren. Die Anzahl der Männchen und Weibchen muss nicht gleich sein, und bei den bisher untersuchten Wirbeltierarten gibt es in der Regel weniger Männchen. Zwei Beispiele für solche Systeme bei Primaten sind die promiskuitiven Paarungspraktiken von Schimpansen und Bonobos . Diese Arten leben in sozialen Gruppen, die aus mehreren Männchen und Weibchen bestehen. Jedes Weibchen kopuliert mit vielen Männchen und umgekehrt. Bei Bonobos ist das Ausmaß der Promiskuität besonders auffällig, da sie Sex sowohl zur Bewältigung sozialer Konflikte als auch zur Fortpflanzung nutzen. [ 28 ] Diese gegenseitige Promiskuität ist die am häufigsten angewandte Methode bei laichenden Tieren und gilt als das „ursprüngliche Paarungssystem der Fische“. [ 4 ] : 161 Häufige Beispiele sind Futterfische wie Heringe , die in flachen Gewässern riesige Laichschwärme bilden . Das Wasser trübt sich milchig vor Sperma, und der Meeresboden ist mit Millionen befruchteter Eier bedeckt. [ 4 ] : 161
Elterliche Investition und reproduktiver Erfolg

Das Sexualverhalten von Weibchen und Männchen unterscheidet sich bei vielen Arten. Männchen sind oft aktiver bei der Paarungsinitiierung und tragen auffälligere Geschlechtsmerkmale wie Geweihe und farbenprächtiges Gefieder. Dies ist eine Folge der Anisogamie , bei der Spermien kleiner und deutlich weniger energieaufwendig zu produzieren sind als Eier . Dieser Unterschied im physiologischen Aufwand bedeutet, dass die Anzahl der Weibchen, die Männchen gewinnen können, stärker begrenzt ist, während die Weibchen durch die Genqualität ihrer Partner eingeschränkt sind – ein Phänomen, das als Bateman-Prinzip bekannt ist . [ 29 ] Viele Weibchen tragen zudem eine zusätzliche reproduktive Last, da die Brutpflege oft hauptsächlich oder ausschließlich ihnen obliegt. Daher ist ihr potenzieller Fortpflanzungserfolg eingeschränkt . [ 30 ] Bei Arten, bei denen die Männchen einen größeren Teil der Fortpflanzungskosten tragen, wie beispielsweise bei Seepferdchen und Blatthühnchen , ist das Verhältnis umgekehrt: Die Weibchen sind größer, aggressiver und farbenprächtiger als die Männchen.
Bei zwittrigen Tieren, wie beispielsweise Regenwürmern , können die Kosten der Brutpflege gleichmäßig zwischen den Geschlechtern verteilt sein . Bei einigen Planarienarten äußert sich das Sexualverhalten in Form eines Penisfechtens . Bei dieser Kopulationsform zwingt das Individuum, das zuerst mit dem Penis in das andere eindringt, dieses zur weiblichen Funktion und trägt somit den Großteil der Fortpflanzungskosten. [ 31 ] Nach der Paarung nagen Bananenschnecken manchmal den Penis ihres Partners ab, um im Rahmen der Spermienkonkurrenz , der sogenannten Apophallation, gegeneinander anzutreten. [ 32 ] Dies ist kostspielig, da die Schnecken heilen müssen und mehr Energie für die Balz von Artgenossen aufwenden müssen, die sowohl männliche als auch weibliche Funktionen übernehmen können. Eine Hypothese besagt, dass diese Schnecken den Verlust der männlichen Funktion kompensieren können, indem sie die dafür aufgewendete Energie in die weibliche Funktion investieren. [ 33 ] Bei der Grauen Nacktschnecke führt die Kostenteilung zu einem spektakulären Balzritual, bei dem sich die Partner an einem Schleimfaden hoch über dem Boden aufhängen, um sicherzustellen, dass keiner von ihnen sich der Übernahme der Kosten des Eiertragens entziehen kann. [ 34 ]
Saisonalität

Viele Tierarten haben spezifische Paarungs- (oder Fortpflanzungs-)perioden (z. B. saisonale Fortpflanzung ), damit der Nachwuchs zum optimalen Zeitpunkt geboren wird oder schlüpft. Bei Meerestieren mit eingeschränkter Beweglichkeit und externer Befruchtung wie Korallen , Seeigeln und Muscheln ist der Zeitpunkt des gemeinsamen Laichens die einzige äußerlich sichtbare Form des Sexualverhaltens. In Gebieten mit konstant hoher Primärproduktion haben einige Arten über das Jahr verteilt mehrere Fortpflanzungsperioden. Dies trifft auf die meisten Primaten zu (die vorwiegend in den Tropen und Subtropen leben). Manche Tiere ( opportunistische Brüter ) pflanzen sich abhängig von anderen Umweltbedingungen fort, die über die Jahreszeit hinausgehen.
Säugetiere
Paarungszeiten gehen oft mit Veränderungen der Herden- oder Gruppenstruktur und Verhaltensänderungen, einschließlich Territorialverhalten einzelner Tiere, einher. Diese können jährlich (z. B. bei Wölfen ), zweijährlich (z. B. bei Hunden ) oder häufiger (z. B. bei Pferden) auftreten. Während dieser Zeiträume sind Weibchen der meisten Säugetierarten mental und physisch empfänglicher für sexuelle Annäherungsversuche. Wissenschaftlich wird diese Phase als Östrus bezeichnet , umgangssprachlich jedoch als „in der Brunst“ oder „in der Brunst“ bekannt. Sexuelles Verhalten kann auch außerhalb des Östrus auftreten [ 35 ] , und solche Handlungen sind nicht zwangsläufig schädlich. [ 36 ]
Einige Säugetiere (z. B. Hauskatzen, Kaninchen und Kameliden) werden als „induzierte Ovulatoren“ bezeichnet . Bei diesen Arten findet der Eisprung des Weibchens aufgrund eines äußeren Reizes während oder kurz vor der Paarung statt, anstatt zyklisch oder spontan. Zu den Reizen, die einen induzierten Eisprung auslösen, gehören das Sexualverhalten beim Geschlechtsverkehr, Spermien und Pheromone. Hauskatzen besitzen Stacheln am Penis . Beim Zurückziehen des Penis streifen diese Stacheln die Wände der Vagina des Weibchens , was einen Eisprung auslösen kann. [ 37 ] [ 38 ]
Amphibien
Viele Amphibien durchlaufen einen jährlichen Fortpflanzungszyklus, der typischerweise durch Umgebungstemperatur, Niederschlag, Oberflächenwasserverfügbarkeit und Nahrungsangebot reguliert wird. In gemäßigten Regionen ist diese Fortpflanzungszeit ausgeprägt, in borealen Klimazonen konzentriert sie sich in der Regel auf wenige kurze Tage im Frühling. Einige Arten, wie beispielsweise der Grüne Frosch ( Rana clamitans ), verbringen die Jahre von Juni bis August mit der Verteidigung ihres Territoriums. Zur Verteidigung dieser Territorien nutzen sie fünf verschiedene Lautäußerungen. [ 39 ]
Fisch
Wie viele Korallenriffbewohner laichen auch Clownfische in freier Wildbahn um die Zeit des Vollmonds. Innerhalb einer Clownfischgruppe herrscht eine strenge Rangordnung. Das größte und aggressivste Weibchen steht an der Spitze. Nur zwei Clownfische einer Gruppe, ein Männchen und ein Weibchen, pflanzen sich durch äußere Befruchtung fort. Clownfische sind sequentielle Hermaphroditen, das heißt, sie entwickeln sich zunächst zu Männchen und werden mit Erreichen der Geschlechtsreife zu Weibchen. Stirbt das Weibchen aus der Gruppe, beispielsweise durch Tod, wird eines der größten und dominantesten Männchen zum Weibchen. Die verbleibenden Männchen rücken in der Rangordnung eine Stufe auf.
Motivation
Verschiedene Neurohormone stimulieren das sexuelle Verlangen bei Tieren. Studien deuten im Allgemeinen darauf hin, dass Dopamin an der sexuellen Anreizmotivation, Oxytocin und Melanocortine an der sexuellen Anziehung und Noradrenalin an der sexuellen Erregung beteiligt sind. [ 40 ] Auch Vasopressin spielt bei einigen Tieren eine Rolle im Sexualverhalten. [ 41 ]
Neurohormone in den Paarungssystemen von Wühlmäusen
Das Paarungssystem der Präriewühlmäuse ist monogam ; nach der Paarung entsteht eine lebenslange Bindung. Im Gegensatz dazu weisen Bergwühlmäuse ein polygames Paarungssystem auf. Bei der Paarung von Bergwühlmäusen entwickeln sie keine starke Bindung und trennen sich nach der Kopulation. Untersuchungen [ 42 ] an den Gehirnen dieser beiden Arten haben gezeigt, dass zwei Neurohormone und ihre jeweiligen Rezeptoren für diese Unterschiede in den Paarungsstrategien verantwortlich sind. Männliche Präriewühlmäuse setzen nach der Kopulation Vasopressin frei, woraufhin sich eine Bindung zum Partner entwickelt. Weibliche Präriewühlmäuse setzen nach der Kopulation Oxytocin frei und entwickeln ebenfalls eine Bindung zu ihrem Partner.
Weder männliche noch weibliche Bergwühlmäuse setzen bei der Paarung hohe Mengen an Oxytocin oder Vasopressin frei. Selbst nach Injektion dieser Neurohormone ändert sich ihr Paarungssystem nicht. Im Gegensatz dazu können Präriewühlmäuse nach Injektion der Neurohormone lebenslange Bindungen eingehen, selbst wenn sie sich nicht gepaart haben. Die unterschiedliche Reaktion der beiden Arten auf die Neurohormone beruht auf einer unterschiedlichen Anzahl von Oxytocin- und Vasopressinrezeptoren. Präriewühlmäuse besitzen im Vergleich zu Bergwühlmäusen mehr Oxytocin- und Vasopressinrezeptoren und reagieren daher empfindlicher auf diese beiden Neurohormone. Man geht davon aus, dass die Anzahl der Rezeptoren und nicht die Hormonmenge das Paarungssystem und die Bindungsbildung beider Arten bestimmt.
Oxytocin und das Sexualverhalten von Ratten
Rattenmütter erleben nach der Geburt einen Östrus , der sie stark zur Paarung motiviert. Gleichzeitig haben sie jedoch ein starkes Bedürfnis, ihre neugeborenen Jungen zu schützen. Daher lockt die Rattenmutter Männchen ins Nest, verhält sich ihnen gegenüber aber gleichzeitig aggressiv, um ihren Nachwuchs zu verteidigen. Werden der Rattenmutter Oxytocin -Rezeptorantagonisten injiziert , verschwinden diese mütterlichen Instinkte. [ 43 ]
Prolaktin beeinflusst die soziale Bindung bei Ratten. [ 43 ]
Oxytocin und das Sexualverhalten von Primaten
Oxytocin spielt bei nicht-menschlichen Primaten eine ähnliche Rolle wie beim Menschen.
Die Häufigkeit von Körperpflege, Sex und Kuscheln korreliert positiv mit dem Oxytocinspiegel. Mit steigendem Oxytocinspiegel nimmt auch die sexuelle Motivation zu. Oxytocin spielt eine wichtige Rolle in der Eltern-Kind-Beziehung, aber auch in sexuellen Beziehungen Erwachsener. Seine Ausschüttung beeinflusst die Art der Beziehung oder ob überhaupt eine Beziehung zustande kommt. [ 44 ]
Studien haben gezeigt, dass der Oxytocinspiegel bei Affen in lebenslangen monogamen Beziehungen höher ist als bei alleinstehenden Affen. Darüber hinaus korreliert der Oxytocinspiegel der Paare positiv: Steigt die Oxytocinausschüttung eines Partners, steigt sie auch beim anderen. Höhere Oxytocinwerte gehen mit vermehrtem Verhalten wie Kuscheln, gegenseitiger Fellpflege und Sex einher, während niedrigere Werte die Motivation für diese Aktivitäten verringern.
Forschungen zur Rolle von Oxytocin im Tiergehirn deuten darauf hin, dass es bei Liebes- und Zuneigungsverhalten eine geringere Rolle spielt als bisher angenommen. „Als Oxytocin 1909 entdeckt wurde, nahm man an, es beeinflusse hauptsächlich die Wehen und den Milcheinschuss der Mutter. In den 1990er-Jahren zeigte eine Studie mit Präriewühlmäusen jedoch, dass die Gabe von Oxytocin die Bildung einer Bindung zu ihrem zukünftigen Partner förderte (Azar, 40).“ Seitdem wird Oxytocin in den Medien als alleiniger Faktor im „Liebes- und Paarungsverhalten“ von Säugetieren dargestellt. Diese Ansicht erweist sich jedoch als falsch, da „die meisten Hormone das Verhalten nicht direkt beeinflussen. Vielmehr wirken sie auf Denken und Emotionen auf unterschiedliche Weise ein (Azar, 40).“ Das Sexualverhalten von Säugetieren ist weitaus komplexer, als Oxytocin und Vasopressin erklären können. [ 45 ] [ 46 ] [ 47 ] [ 48 ] [ 49 ] [ 50 ] [ 51 ] [ 52 ] [ 53 ] [ 54 ]
Vergnügen
Oft wird angenommen, dass Tiere keinen Sex zum Vergnügen haben, oder alternativ, dass nur Menschen , Schweine , Bonobos (und vielleicht Delfine sowie ein oder zwei weitere Primatenarten) dies tun. Dies wird mitunter als „Tiere paaren sich nur zur Fortpflanzung“ formuliert. Diese Ansicht wird von einigen Wissenschaftlern als Irrtum betrachtet. [ 55 ] [ 56 ] Jonathan Balcombe argumentiert, dass die Häufigkeit nicht-reproduktiven Sexualverhaltens bei bestimmten Arten darauf hindeutet, dass sexuelle Stimulation lustvoll ist. Er verweist zudem auf das Vorhandensein der Klitoris bei einigen weiblichen Säugetieren und auf Hinweise auf weibliche Orgasmen bei Primaten. [ 57 ] Andererseits ist es unmöglich, die subjektiven Gefühle von Tieren zu kennen, [ 40 ] und die Vorstellung, dass nicht-menschliche Tiere ähnliche Emotionen wie Menschen empfinden, ist ein umstrittenes Thema. [ 58 ] [ 59 ] [ 60 ] [ 61 ]
Ein Bericht des Dänischen Tierethikrats aus dem Jahr 2006 [ 62 ] , der den aktuellen Kenntnisstand über die Sexualität von Tieren im Kontext von Rechtsfragen zu sexuellen Handlungen von Menschen untersuchte, enthält folgende Anmerkungen, die sich hauptsächlich auf Haustiere beziehen:
Auch wenn der evolutionär bedingte Zweck der Paarung in der Fortpflanzung liegt, ist es nicht die Zeugung von Nachkommen, die die Tiere ursprünglich zur Paarung veranlasst. Wahrscheinlich paaren sie sich, weil sie den eigentlichen Geschlechtsakt wollen und dieser mit einem positiven Erlebnis verbunden ist. Daher ist anzunehmen, dass der Akt eine Form von Lust oder Befriedigung mit sich bringt. Diese Annahme wird durch das Verhalten der Männchen bestätigt, die bei vielen Arten bereit sind, sich Zugang zu Weibchen zu verschaffen, insbesondere wenn diese paarungsbereit sind. Männchen, die es gewohnt sind, dass ihnen zu Fortpflanzungszwecken Sperma entnommen wird, reagieren sehr eifrig, wenn die dafür benötigten Organe hervorgeholt werden. … Nichts in der Anatomie oder Physiologie weiblicher Säugetiere spricht dagegen, dass die Stimulation der Geschlechtsorgane und die Paarung ein positives Erlebnis sein können. Die Klitoris funktioniert beispielsweise ähnlich wie bei Frauen, und wissenschaftliche Studien haben gezeigt, dass die Stimulation der Klitoris bei Kühen und Stuten (unter anderem) im Zusammenhang mit der Besamung den Fortpflanzungserfolg steigert, da sie durch Kontraktionen der inneren Geschlechtsorgane den Spermientransport verbessert. Dies trifft vermutlich auch auf weibliche Tiere anderer Arten zu, und Kontraktionen der inneren Geschlechtsorgane treten beispielsweise auch beim Orgasmus von Frauen auf. Daher ist anzunehmen, dass Geschlechtsverkehr für weibliche Tiere mit einem positiven Erlebnis verbunden sein kann.
Koinophilie
Koinophilie bezeichnet die Vorliebe für das „Normale“ oder phänotypisch Häufige (vom griechischen κοινός , koinós , was „üblich“ oder „gewöhnlich“ bedeutet). [ 63 ] Der Begriff wurde 1990 in die wissenschaftliche Literatur eingeführt und beschreibt die Tendenz von Tieren, bei der Partnersuche einen Partner ohne ungewöhnliche, eigentümliche oder abweichende Merkmale zu bevorzugen. [ 63 ] Ebenso bevorzugen Tiere Partner mit geringer fluktuierender Asymmetrie . [ 64 ] Allerdings können sich sexuelle Merkmale bei Tieren auch durch unkontrollierte Selektion entwickeln, die durch (meist weibliche) Selektion nicht-standardmäßiger Merkmale angetrieben wird. [ 65 ]
Interpretationsverzerrung
Die Erforschung der Sexualität nicht-menschlicher Arten war lange Zeit ein Tabu . [ 66 ] In der Vergangenheit beobachteten, kategorisierten oder beschrieben Forscher sexuelles Verhalten, das nicht ihren Vorstellungen entsprach , mitunter falsch – ihre Voreingenommenheit stützte tendenziell das, was heute als konservative Sexualmoral bezeichnet würde. Ein Beispiel für das Übersehen von Verhalten sind Beschreibungen der Paarung von Giraffen :
Wenn neun von zehn Paarungen zwischen Männchen stattfinden, „wurde jedes Männchen, das an einem Weibchen schnüffelte, als Geschlechtsverkehr gemeldet, während Analverkehr mit Orgasmus zwischen Männchen nur als ‚um Dominanz , Konkurrenz oder Begrüßung kreisend‘ kategorisiert wurde .“ [ 66 ]
Im 21. Jahrhundert werden liberale soziale oder sexuelle Ansichten häufig auf Tiere als Forschungsobjekte übertragen. Populäre Diskussionen über Bonobos sind ein häufig zitiertes Beispiel. Aktuelle Forschungsergebnisse bringen oft Ansichten zum Ausdruck, wie sie beispielsweise das Naturhistorische Museum der Universität Oslo vertritt , das 2006 eine Ausstellung zur Tiersexualität veranstaltete.
Viele Forscher haben Homosexualität als etwas völlig anderes als Sex beschrieben. Sie müssen erkennen, dass Tiere Sex haben können, mit wem sie wollen, wann sie wollen und ohne Rücksicht auf die ethischen Prinzipien eines Forschers. [ 66 ]
Andere Verhaltensweisen von Tieren können aufgrund der Häufigkeit und des Kontextes, in dem sie auftreten, falsch interpretiert werden. Beispielsweise zeigen Hauswiederkäuer Verhaltensweisen wie Aufreiten und Kopfstoßen. Dies geschieht oft, wenn die Tiere Rangordnungen etablieren und ist nicht unbedingt sexuell motiviert. Eine sorgfältige Analyse ist erforderlich, um zu interpretieren, welche Motivationen die Tiere durch diese Verhaltensweisen ausdrücken. [ 67 ]
Arten von Sexualverhalten
Fortpflanzungsverhalten
Kopulation
Bei der Kopulation handelt es sich um die Vereinigung der männlichen und weiblichen Geschlechtsorgane , eine sexuelle Aktivität, die speziell darauf ausgerichtet ist, männliche Spermien in den Körper der Frau zu übertragen. [ 68 ]
Ehebruch

Alternative Strategien , die es kleineren Männchen ermöglichen, sich an der Fremdlaicherei zu beteiligen , können sich bei Arten wie Fischen entwickeln, bei denen das Laichen von großen und aggressiven Männchen dominiert wird. Fremdlaicherei ist eine Variante der Polyandrie und kann bei sogenannten Schleichlaichern auftreten . Ein Schleichlaicher ist ein Männchen, das sich dem Laichrausch eines laichenden Paares anschließt. [ 69 ] Ein Laichrausch entsteht, wenn ein Fisch einen Geschwindigkeitsschub hinlegt, meist an einer fast senkrechten Stelle, dabei seine Gameten am Scheitelpunkt abgibt und anschließend schnell zum See- oder Meeresgrund oder zur Fischansammlung zurückkehrt. [ 70 ] Schleichlaicher nehmen nicht an der Balz teil. Bei Lachsen und Forellen beispielsweise sind sogenannte „Jack“-Männchen häufig. Dies sind kleine, silbrige Männchen, die zusammen mit den üblichen, großen Männchen mit Hakennase flussaufwärts wandern und laichen, indem sie sich in Laichgruben schleichen , um gleichzeitig mit einem verpaarten Paar Spermien abzugeben. Dieses Verhalten ist eine evolutionär stabile Fortpflanzungsstrategie, da es, genau wie die „Standardstrategie“ großer Männchen, von der natürlichen Selektion begünstigt wird. [ 71 ]
Hermaphroditismus
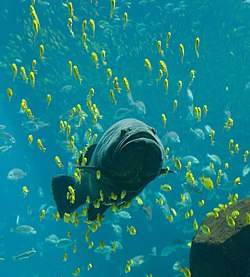
Hermaphroditismus liegt vor, wenn ein Individuum einer Art sowohl männliche als auch weibliche Geschlechtsorgane besitzt oder zwischen dem Vorhandensein des einen und des anderen wechseln kann. Hermaphroditismus ist bei Wirbellosen häufig, bei Wirbeltieren jedoch selten. Er steht im Gegensatz zur Getrenntgeschlechtlichkeit (Gonochorismus) , bei der jedes Individuum einer Art entweder männlich oder weiblich ist und dies zeitlebens beibehält. Die meisten Fische sind getrenntgeschlechtlich, Hermaphroditismus kommt jedoch in 14 Familien von Knochenfischen vor . [ 72 ]
Hermaphroditen sind üblicherweise sequenziell , d. h., sie können ihr Geschlecht wechseln , meist von weiblich zu männlich ( Protogynie ). Dies kann geschehen, wenn ein dominantes Männchen aus einer Gruppe von Weibchen entfernt wird. Das größte Weibchen im Harem kann innerhalb weniger Tage das Geschlecht wechseln und das dominante Männchen ersetzen. [ 72 ] Dieses Phänomen findet sich bei Korallenfischen wie Zackenbarschen , Papageifischen und Lippfischen . Beispielsweise sind die meisten Lippfische protogyne Hermaphroditen innerhalb eines Haremsystems. [ 73 ] [ 74 ] Es ist seltener, dass ein Männchen zum Weibchen wechselt ( Protandrie ). [ 4 ] : 162 Ein häufiges Beispiel für eine protandrische Art sind Clownfische – stirbt das größere, dominante Weibchen, nimmt in vielen Fällen das fortpflanzungsfähige Männchen an Gewicht zu und wird zum Weibchen. [ 75 ] [ 76 ] Hermaphroditismus ermöglicht komplexe Paarungssysteme. Lippfische weisen drei verschiedene Paarungssysteme auf: polygyne, lekartige und promiskuitive Paarungssysteme. [ 77 ]
Sexueller Kannibalismus
Sexueller Kannibalismus ist ein Verhalten, bei dem ein weibliches Tier das Männchen vor, während oder nach der Paarung tötet und verspeist. Sexueller Kannibalismus verschafft sowohl dem Männchen als auch dem Weibchen einen Überlebensvorteil. [ 78 ] Sexueller Kannibalismus ist weit verbreitet bei Insekten, Spinnentieren [ 79 ] und Flohkrebsen . [ 79 ] Auch bei Schnecken und Ruderfußkrebsen gibt es Hinweise auf sexuellen Kannibalismus . [ 80 ]
Sexuelle Nötigung
Sexueller Zwang während der Paarung wurde bei einer Vielzahl von Arten dokumentiert. Bei einigen pflanzenfressenden Herdenarten oder Arten, bei denen sich Männchen und Weibchen stark in ihrer Größe unterscheiden, dominiert das Männchen sexuell durch Kraft und Größe.
Bei einigen Vogelarten wurde beobachtet, dass sie Geschlechtsverkehr mit Gewalt verbinden; dazu gehören Enten [ 81 ] [ 82 ] und Gänse [ 83 ] . Weibliche Weißstirnbienenfresser werden zur Kopulation gezwungen. Wenn die Weibchen ihre Nester verlassen, zwingen die Männchen sie manchmal zu Boden und paaren sich mit ihnen. Dieser sexuelle Zwang wird bevorzugt an Weibchen verübt, die brüten und daher möglicherweise vom Männchen befruchtete Eier legen [ 84 ] .
Es wurde berichtet, dass junge männliche Elefanten in Südafrika Nashörner sexuell genötigt und getötet haben. [ 85 ] Diese Interpretation des Elefantenverhaltens wurde von einem der Autoren der Originalstudie bestritten, der sagte, dass „diese Angriffe nichts Sexuelles an sich hatten“. [ 86 ]
Bei der Paarung von See-Elefanten ist bekannt, dass männliche Tiere Pinguine begatten und versuchen, sich mehrmals mit ihnen zu paaren, unterbrochen von Ruhepausen. Die Vögel bleiben dabei währenddessen festgehalten. Weibliche See-Elefanten erleiden dabei häufig Verletzungen. Bei der Paarung stirbt etwa eines von 1.000 weiblichen See-Elefanten.
Parthenogenese
Parthenogenese ist eine Form der ungeschlechtlichen Fortpflanzung, bei der Wachstum und Entwicklung der Embryonen ohne Befruchtung erfolgen. [ 87 ] Streng genommen ist Parthenogenese kein Verhalten, jedoch können sexuelle Verhaltensweisen eine Rolle spielen.
Weibliche Peitschenschwanzleguane können sich parthenogenetisch fortpflanzen, weshalb Männchen selten sind und die sexuelle Fortpflanzung nicht dem Standard entspricht. Die Weibchen betreiben eine Art „Pseudokopulation“ [ 88 ] , um den Eisprung anzuregen . Ihr Verhalten folgt dabei ihrem Hormonzyklus: Bei niedrigem Östrogenspiegel zeigen diese Echsen „männliche“ Sexualrollen, während Tiere mit hohem Östrogenspiegel „weibliche“ Rollen einnehmen. Echsen, die das Balzritual vollziehen, sind fruchtbarer als isoliert gehaltene Tiere, da die sexuellen Verhaltensweisen einen Hormonanstieg auslösen. Obwohl es in den Populationen der asexuellen Peitschenschwanzleguane keine Männchen gibt, erhöhen sexuelle Reize dennoch den Fortpflanzungserfolg. Aus evolutionärer Sicht geben diese Weibchen ihren gesamten genetischen Code an alle Nachkommen weiter, anstatt der 50 %, die bei der sexuellen Fortpflanzung vererbt würden.
Echte Parthenogenese, bei der Weibchen ausschließlich weibliche Nachkommen ohne Beteiligung von Männchen erzeugen, ist bei Fischen selten. Zu den rein weiblichen Arten zählen der Texas- Silberfisch ( Menidia clarkhubbsi) [ 89 ] und eine Gruppe mexikanischer Mollys [ 4 ] : 162
Parthenogenese wurde bei 70 Wirbeltierarten [ 90 ] nachgewiesen, darunter Hammerhaie [ 91 ] , Schwarzspitzenhaie [ 92 ] , Amphibien [ 93 ] und Eidechsen [ 94 ] .
Unisexualität
Unisexualität liegt vor, wenn eine Art ausschließlich männlich oder ausschließlich weiblich ist. Sie tritt bei einigen Fischarten auf und kann komplexe Formen annehmen. Der in mehreren Flussbecken Portugals und Spaniens vorkommende Elritzenfisch *Squalius alburnoides* scheint eine rein männliche Art zu sein. Die Existenz dieser Art verdeutlicht die potenzielle Komplexität von Paarungssystemen bei Fischen. Die Art entstand als Hybrid zweier Arten und ist diploid , aber nicht zwittrig. Sie kann triploide und tetraploide Formen aufweisen, darunter auch rein weibliche Formen, die sich hauptsächlich durch Hybridogenese fortpflanzen . [ 95 ]
Andere

- Kreuzung : Hybridnachkommen können aus der Paarung zweier Organismen verschiedener, aber eng verwandter Elternarten entstehen, wobei die Nachkommen nicht immer fruchtbar sind . Laut Alfred Kinsey haben genetische Studien an Wildtierpopulationen eine „große Anzahl“ von Artenhybriden gezeigt. [ 96 ]
- Prostitution: Es gibt Berichte, wonach Tiere gelegentlich Prostitution betreiben . Einige wenige Weibchen einer Pinguingruppe, die in Paarbindung lebten, nahmen Nistmaterial (Steine) an sich, nachdem sie sich mit einem fremden Männchen gepaart hatten. Der Forscher erklärte: „Ich habe dies nur zufällig beobachtet, daher kann ich keine genaue Zahl nennen, wie häufig das tatsächlich vorkommt.“ [ 97 ] Es wurde berichtet, dass „der Tausch von Fleisch gegen Sex … Teil des Sozialgefüges einer Gruppe wilder Schimpansen im Tai-Nationalpark an der Elfenbeinküste ist.“ [ 98 ]
- Pawlowsche Konditionierung: Die Sexualisierung von Objekten oder Orten ist in der Tierzucht bekannt. So können beispielsweise männliche Tiere sexuell erregt werden , wenn sie einen Ort aufsuchen, an dem sie zuvor Sex haben durften, oder wenn sie einen Reiz sehen, der zuvor mit sexueller Aktivität assoziiert wurde, wie etwa eine künstliche Vagina . [ 99 ] Sexuelle Präferenzen für bestimmte Reize lassen sich bei Ratten künstlich induzieren, indem man Gerüche oder Objekte mit ihren frühen sexuellen Erfahrungen verknüpft. [ 100 ] Die primäre Motivation für dieses Verhalten ist die pawlowsche Konditionierung , und die Assoziation beruht auf einer konditionierten Reaktion (oder Assoziation), die mit einer bestimmten „Belohnung“ verbunden ist. [ 100 ]
- Bildbetrachtung: Eine Studie mit vier erwachsenen männlichen Rhesusaffen ( Macaca mulatta ) zeigte, dass diese sogar Saft, eine begehrte Nahrungsquelle , opfern, um Bilder von Gesichtern oder dem Perineum hochrangiger Weibchen zu sehen. [ 101 ] Die Paarung von Pandas in Gefangenschaft zu fördern, ist problematisch. Die Präsentation von „ Panda-Pornografie “ für junge männliche Pandas wird für den jüngsten Populationsanstieg unter in Gefangenschaft lebenden Pandas in China verantwortlich gemacht. Ein Forscher führte den Erfolg auf die Geräusche in den Aufnahmen zurück. [ 102 ]
- Kopulationsverletzungen und traumatische Besamung : Verletzungen des Genitaltrakts eines Partners während der Paarung kommen bei mindestens 40 Taxa vor, von Fruchtfliegen bis hin zu Menschen. Sie bleiben jedoch aufgrund ihrer verborgenen Natur und der äußerlich nicht sichtbaren inneren Wunden oft unbemerkt. [ 103 ]
Nicht-reproduktives Sexualverhalten
Es gibt eine Reihe von Verhaltensweisen bei Tieren, die sexuell motiviert erscheinen, aber nicht zur Fortpflanzung führen können. Dazu gehören:
- Masturbation : Einige Arten, sowohl Männchen als auch Weibchen, masturbieren, sowohl wenn Partner verfügbar sind als auch sonst. [ 104 ] [ 105 ] [ 106 ]
- Oralsex : Mehrere Arten praktizieren sowohl Selbstbefriedigung als auch Oralsex. Dies wurde bei Braunbären [ 107 ] , Tibetmakaken [ 108 ] , Wölfen [ 109 ] , Ziegen , Primaten , Fledermäusen [ 110 , 111 ] , Kap-Erdhörnchen [ 112 ] und Schafen dokumentiert . Bei der Großen Kurznasenfledermaus erfolgt die Kopulation der Männchen dorsoventral . Die Weibchen lecken den Schaft oder die Basis des Penis, jedoch nicht die Eichel , die bereits in die Vagina eingedrungen ist. Währenddessen wird der Penis nicht zurückgezogen. Untersuchungen haben einen positiven Zusammenhang zwischen der Dauer des Leckens und der Dauer der Kopulation gezeigt. Auch die Genitalpflege nach der Kopulation wurde beobachtet. [ 113 ]
- Homosexualität : Gleichgeschlechtliches Sexualverhalten kommt in einer Reihe von Arten vor, insbesondere bei sozialen Arten, vor allem bei Seevögeln und Säugetieren, Affen und Menschenaffen . Bis 1999 enthielt die wissenschaftliche Literatur Berichte über homosexuelles Verhalten bei mindestens 471 Wildtierarten. [ 114 ] Die Organisatoren der Ausstellung „ Gegen die Natur?“ gaben an, dass „Homosexualität bei 1.500 Arten beobachtet wurde und bei 500 davon gut dokumentiert ist.“ [ 115 ] Neben dem Menschen sind Schafe die einzigen bekannten Säugetiere, die ausschließlich homosexuelles Verhalten zeigen. [ 116 ]

- Genital-Genital-Reibung : Hierbei handelt es sich um eine sexuelle Aktivität, bei der ein Tier seine Genitalien an den Genitalien eines anderen Tieres reibt. Dies gilt als das „typischste Sexualverhalten des Bonobos, das bei keinem anderen Primaten dokumentiert ist“. [ 118 ] [ 119 ]
- Paarung zwischen verschiedenen Arten : Manche Tiere paaren sich opportunistisch mit Individuen einer anderen Art. [ 120 ]
- Sexuelles Verhalten von Jungtieren : Männliche Hermeline ( Mustela erminea ) paaren sich gelegentlich mit jungen Weibchen ihrer Art. [ 121 ] Dies ist ein natürlicher Bestandteil ihrer Fortpflanzungsbiologie – sie haben eine verzögerte Tragzeit , sodass diese Weibchen erst im Folgejahr, wenn sie ausgewachsen sind, Junge zur Welt bringen. Es wurde beobachtet, wie junge männliche Schimpansen junge Schimpansen bestiegen und sich mit ihnen paarten. Auch Jungtiere in Bonobo -Gesellschaften sind häufig in sexuelles Verhalten involviert. [ 122 ]
- Nekrophilie : Darunter versteht man den sexuellen Akt eines Tieres mit einem toten Tier. Dieses Phänomen wurde bei Säugetieren, Vögeln, Reptilien und Fröschen beobachtet. [ 123 ]
- Bisexualität : Dies beschreibt das Verhalten eines Tieres gegenüber sowohl Männchen als auch Weibchen.
- Erweiterte weibliche Sexualität : Dies bezeichnet den Fall, dass sich Weibchen außerhalb ihrer fruchtbaren Phase mit Männchen paaren. [ 124 ] [ 22 ]
Seepferdchen
Seepferdchen , die einst als monogame Arten galten, deren Paare lebenslang zusammenblieben, wurden in einer Studie aus dem Jahr 2007 als „promiskuitiv, flatterhaft und nicht ganz unproblematisch“ beschrieben. [ 125 ] Wissenschaftler untersuchten in 15 Aquarien 90 Seepferdchen dreier Arten. Von 3.168 sexuellen Begegnungen waren 37 % gleichgeschlechtliche Akte. Flirten war weit verbreitet (bis zu 25 potenzielle Partner pro Tag beider Geschlechter); nur eine Art (das Britische Stachelseepferdchen) wies treue Vertreter auf, und von diesen waren 5 von 17 treu, 12 nicht. Bisexuelles Verhalten war weit verbreitet und wurde als „große Überraschung und Schock“ zugleich betrachtet, wobei Seepferdchen mit großem Bauch beider Geschlechter keine Partnerpräferenz zeigten. 1.986 Kontakte waren zwischen Männchen und Weibchen, 836 zwischen Weibchen und Weibchen und 346 zwischen Männchen. [ 125 ]
Bonobo
Bei Bonobos zeigen Männchen und Weibchen sexuelles Verhalten sowohl mit dem gleichen als auch mit dem anderen Geschlecht. Weibchen sind besonders dafür bekannt, sexuelle Kontakte untereinander zu pflegen, wobei bis zu 75 % der sexuellen Aktivität nicht reproduktiv ist, da sexuelle Aktivität nicht zwangsläufig mit dem Ovulationszyklus zusammenhängt. [ 118 ] Sexuelle Aktivität findet in Bonobo-Gesellschaften fast aller Altersgruppen und Geschlechter statt. [ 126 ] [ 127 ] Der Primatologe Frans de Waal vermutet, dass Bonobos sexuelle Aktivität nutzen, um Konflikte zwischen Individuen zu lösen. [ 28 ] [ 128 ] Unreife Bonobos hingegen praktizieren Genitalkontakt, wenn sie entspannt sind. [ 127 ]
Makake
Ähnliche gleichgeschlechtliche Sexualpraktiken kommen sowohl bei männlichen als auch bei weiblichen Makaken vor. [ 129 ] Man geht davon aus, dass sie der Lust dienen, indem ein erigiertes Männchen ein anderes Männchen besteigt und in es eindringt. [ 129 ] [ 130 ] Sexuelle Empfänglichkeit kann auch durch rote Gesichter und Schreie angezeigt werden. [ 129 ] Gegenseitige Ejakulation nach einer Kombination aus Analverkehr und Masturbation wurde ebenfalls beobachtet, ist aber vermutlich selten. [ 130 ] Im Vergleich zu sozial-sexuellen Verhaltensweisen wie Dominanzverhalten dauern homosexuelle Reitakte länger, finden in Serien statt und beinhalten in der Regel Beckenstöße. [ 129 ]
Es wird angenommen, dass auch Weibchen aus Lustgründen teilnehmen, da die Stimulation von Vulva, Perineum und Anus Teil dieser Interaktionen ist. Die Stimulation kann durch ihren eigenen Schwanz, das Besteigen des Partners, Stöße oder eine Kombination dieser Faktoren erfolgen. [ 131 ]
Delphin
Männliche Große Tümmler wurden dabei beobachtet, wie sie paarweise über Wochen hinweg Weibchen verfolgten oder deren Bewegungsfreiheit einschränkten, bis diese paarungsbereit waren. Dieselben Paare wurden auch bei intensivem sexuellem Spiel miteinander beobachtet . Janet Mann, Professorin für Biologie und Psychologie an der Georgetown University, argumentiert [ 132 ] , dass das häufige gleichgeschlechtliche Verhalten männlicher Delfinkälber der Bindungsbildung dient und evolutionär vorteilhaft für die Art ist. Studien haben gezeigt, dass die Delfine später bisexuell sind und die durch Homosexualität geknüpften männlichen Bindungen sowohl dem Schutz als auch der Suche nach Weibchen zur Fortpflanzung dienen. [ 132 ]
1991 wurde ein Engländer angeklagt, weil er angeblich sexuellen Kontakt mit einem Delfin gehabt hatte. [ 133 ] Der Mann wurde freigesprochen, nachdem im Prozess bekannt wurde, dass der Delfin dafür bekannt war, Badende durchs Wasser zu ziehen, indem er seinen Penis um sie schlang. [ 133 ]
Hyäne
Die weibliche Tüpfelhyäne besitzt ein einzigartiges Harn- und Geschlechtsorgan , das dem Penis des Männchens stark ähnelt und als Pseudopenis bezeichnet wird . Dominanzverhältnisse mit ausgeprägten sexuellen Elementen sind zwischen verwandten Weibchen häufig zu beobachten. Sie sind dafür bekannt, dass sie sichtbare sexuelle Erregung als Zeichen der Unterwerfung, nicht aber der Dominanz, sowohl bei Männchen als auch bei Weibchen einsetzen (Weibchen besitzen eine große, erigierbare Klitoris ). [ 134 ] Es wird vermutet, dass zur Ermöglichung dieses Verhaltens ihr sympathisches und parasympathisches Nervensystem in Bezug auf ihre Fortpflanzungsorgane teilweise umgekehrt sein könnte. [ 135 ]
Paarungsverhalten
Wirbeltiere
Säugetiere
Säugetiere paaren sich durch vaginale Kopulation. Dazu besteigt das Männchen das Weibchen üblicherweise von hinten. [ 136 ] Das Weibchen kann eine Lordose aufweisen , bei der es seinen Rücken ventral wölbt, um das Eindringen des Penis zu erleichtern. Dieses Verhalten ist besonders bei Elefanten, Katzen und Nagetieren zu beobachten. Unter den Landsäugetieren, mit Ausnahme des Menschen, paaren sich nur Bonobos in einer Position, in der sie einander zugewandt sind, [ 137 ] was die Anatomie der Weibchen zu bestätigen scheint, [ 118 ] obwohl auch bei Rhabdomys ventroventrale Kopulation beobachtet wurde . [ 138 ] Einige Meeressäugetiere kopulieren in einer Position, in der sie Bauch an Bauch liegen. [ 139 ] [ 140 ] Einige Kameliden paaren sich in liegender Position. [ 141 ] Bei den meisten Säugetieren erfolgt die Ejakulation nach mehreren Intromissionen, [ 142 ] bei den meisten Primaten besteht die Kopulation jedoch aus einer einzigen kurzen Intromission. [ 143 ] Bei den meisten Wiederkäuerarten erfolgt während der Kopulation ein einzelner Beckenstoß . [ 144 ] [ 145 ] Bei den meisten Hirscharten findet zusätzlich ein Kopulationssprung statt. [ 146 ] [ 147 ]
Während der Paarung kommt es bei Säugetieren wie Fossas [ 148 ] , Hundeartigen mit Ausnahme der Afrikanischen Wildhunde [ 149 ] und Japanischen Marder [ 150 ] zu einer „Kopulationsverbindung“ . Eine „Kopulationsverriegelung“ tritt auch bei einigen Primatenarten auf, beispielsweise beim Galago senegalensis [ 151 ] .
Das Paarungsverhalten vieler Säugetierarten wird durch Spermienkonkurrenz beeinflusst . [ 152 ]
Manche Weibchen haben ihre Fruchtbarkeit verborgen, was es Männchen erschwert, die Fruchtbarkeit eines Weibchens einzuschätzen – der Mensch gehört zu diesen Spezies. Dies ist aufwändig, da die Ejakulation viel Energie verbraucht. [ 22 ]
Wirbellosen


Wirbellose Tiere sind oft Zwitter . Einige zwittrige Landschnecken beginnen die Paarung mit einem aufwendigen Balzritual. Die beiden Schnecken umkreisen sich bis zu sechs Stunden lang, berühren sich mit ihren Fühlern und beißen sich in die Lippen und den Bereich der Geschlechtsöffnung, wo erste Anzeichen der Penisstülpung erkennbar sind. Kurz vor der Paarung baut sich in den Blutgefäßen um ein Organ, das einen scharfen Pfeil enthält, ein hydraulischer Druck auf. Dieser Pfeil besteht aus Kalziumkarbonat oder Chitin und wird Liebespfeil genannt . Jede Schnecke positioniert ihre Geschlechtsöffnung so, dass sie möglichst nah am Körper der anderen ist. Sobald der Körper der einen Schnecke die Geschlechtsöffnung der anderen berührt, wird der Liebespfeil abgefeuert. [ 153 ] Nachdem die Schnecken ihre Liebespfeile abgefeuert haben, paaren sie sich und tauschen Spermien aus – ein separater Teil des Paarungsvorgangs. Die Liebespfeile sind mit einem Schleim überzogen, der eine hormonähnliche Substanz enthält, welche das Überleben der Spermien fördert. [ 154 ] [ 155 ]
Penisfechten ist ein Paarungsverhalten, das bei bestimmten Plattwurmarten , wie beispielsweise Pseudobiceros bedfordi , vorkommt . Diese Arten sind zwittrig und besitzen sowohl Eier als auch Spermien produzierende Hoden. [ 156 ] Beim „Fechten“ nutzen sie zweiköpfige, dolchartige, spitze und weiße Penisse. Ein Organismus befruchtet den anderen. Die Spermien werden durch Poren in der Haut aufgenommen und führen zur Befruchtung.
Korallen können sowohl getrenntgeschlechtlich (gonochoristisch) als auch zwittrig sein , wobei sich beide Formen sexuell und asexuell fortpflanzen können. Die Fortpflanzung ermöglicht es Korallen auch, neue Gebiete zu besiedeln. Korallen vermehren sich überwiegend sexuell . 25 % der zwittrigen Korallen (Steinkorallen) bilden getrenntgeschlechtliche Kolonien , während die übrigen zwittrig sind . [ 157 ] Etwa 75 % aller zwittrigen Korallen verbreiten ihren Nachwuchs durch Freisetzung von Gameten – Eiern und Spermien – ins Wasser. Die Gameten verschmelzen bei der Befruchtung zu einer mikroskopisch kleinen Larve , der Planula , die typischerweise rosa und elliptisch ist. [ 158 ] Synchrones Laichen ist im Korallenriff sehr häufig, und oft laichen alle Korallen in derselben Nacht, selbst wenn mehrere Arten vorhanden sind. Diese Synchronität ist wichtig, damit die männlichen und weiblichen Gameten aufeinandertreffen können. Korallen sind auf Umweltreize angewiesen, die je nach Art variieren, um den richtigen Zeitpunkt für die Freisetzung ihrer Gameten ins Wasser zu bestimmen. Zu diesen Reizen gehören Mondphasen, Sonnenuntergang und möglicherweise chemische Signale. [ 157 ] Synchrones Laichen kann zur Entstehung von Hybriden führen und ist möglicherweise an der Artbildung von Korallen beteiligt . [ 159 ]
Schmetterlinge verbringen viel Zeit mit der Partnersuche. Sobald das Männchen ein Weibchen entdeckt, fliegt es näher heran und setzt Pheromone frei . Anschließend führt es einen speziellen Balztanz auf , um das Weibchen anzulocken. Gefällt dem Weibchen der Tanz, schließt es sich ihm möglicherweise an. Dann verschmelzen ihre Körper mit ihren Hinterleibern . Hier überträgt das Männchen sein Sperma in die Eileiter des Weibchens, die kurz darauf befruchtet werden. [ 160 ]
Viele Tiere bilden nach der Paarung Schleimpfropfen, um die Geschlechtsöffnung des Weibchens zu verschließen . Normalerweise werden diese Pfropfen vom Männchen abgesondert, um weitere Paarungen zu verhindern. Bei Spinnen kann das Weibchen diesen Vorgang unterstützen. [ 161 ] Die Paarung bei Spinnen ist insofern ungewöhnlich, als die Männchen ihr Sperma mit kleinen Gliedmaßen, den sogenannten Pedipalpen, auf das Weibchen übertragen. Sie nutzen diese, um ihr Sperma von ihren Geschlechtsorganen aufzunehmen und in die Geschlechtsöffnung des Weibchens einzuführen, anstatt sich direkt zu paaren. [ 161 ] In den 14 Fällen, in denen ein solcher Pfropfen gebildet wurde, produzierte das Weibchen ihn ohne Hilfe des Männchens. In zehn dieser Fälle schienen die Pedipalpen des Männchens während der Spermaübertragung stecken zu bleiben (was bei anderen Spinnenarten selten vorkommt), und es hatte große Mühe, sich zu befreien. In zwei dieser zehn Fälle wurde es deshalb gefressen. [ 161 ]
Bei der Radnetzspinne Zygiella x-notata zeigen die Individuen eine Vielzahl von Sexualverhaltensweisen, darunter die Partnerwahl der Männchen, die Bewachung des Weibchens und die Vibrationssignalisierung während der Balz. [ 162 ] [ 163 ]
Genetische Beweise für sexuelle Aktivität zwischen verschiedenen Arten beim Menschen
Forschungen zur menschlichen Evolution bestätigen, dass in einigen Fällen sexuelle Aktivität zwischen verschiedenen Arten für die Entstehung neuer Arten ( Artbildung ) verantwortlich gewesen sein könnte. Analysen von Tiergenen lieferten Hinweise darauf, dass auch nach der Abspaltung des Menschen von anderen Affen die Paarung zwischen verschiedenen Arten regelmäßig genug stattfand, um bestimmte Gene im neuen Genpool zu verändern . [ 164 ] Forscher fanden heraus, dass sich die X-Chromosomen von Menschen und Schimpansen etwa 1,2 Millionen Jahre nach den anderen Chromosomen auseinanderentwickelt haben könnten . Eine mögliche Erklärung ist, dass der moderne Mensch aus einer Hybridpopulation von Menschen und Schimpansen hervorgegangen ist. [ 165 ] Eine Studie aus dem Jahr 2012 stellte diese Erklärung in Frage und kam zu dem Schluss, dass „es keinen triftigen Grund gibt, komplizierte Faktoren zur Erklärung der autosomalen Daten heranzuziehen“. [ 166 ]
Inzuchtvermeidung
Bei der Paarung naher Verwandter können die Nachkommen die schädlichen Auswirkungen der Inzuchtdepression zeigen . Diese wird vorwiegend durch die homozygote Expression rezessiver, schädlicher Allele verursacht. [ 167 ] Im Laufe der Zeit kann Inzuchtdepression zur Evolution von Inzuchtvermeidungsverhalten führen . Im Folgenden werden einige Beispiele für Tierverhalten beschrieben, das die Paarung naher Verwandter und damit die Inzuchtdepression reduziert.
Fortpflanzungsaktive weibliche Nacktmulle suchen tendenziell die Nähe zu unbekannten Männchen (meist nicht zur Familie gehörend), während fortpflanzungsinaktive Weibchen keine Unterscheidung treffen. [ 168 ] Die Präferenz fortpflanzungsaktiver Weibchen für unbekannte Männchen wird als Anpassung zur Vermeidung von Inzucht interpretiert.
Wenn Mäuse in ihrem natürlichen Lebensraum Inzucht mit nahen Verwandten betreiben, hat dies erhebliche negative Auswirkungen auf das Überleben der Nachkommen. [ 169 ] Bei der Hausmaus liefert der Gencluster für das wichtigste Harnprotein (MUP) ein hochpolymorphes Duftsignal der genetischen Identität, das offenbar der Verwandtenerkennung und der Vermeidung von Inzucht zugrunde liegt . Daher finden weniger Paarungen zwischen Mäusen mit gleichen MUP- Haplotypen statt , als bei zufälliger Paarung zu erwarten wäre. [ 170 ]
Weibliche Erdmännchen scheinen den Geruch ihrer Verwandten von dem ihrer Nichtverwandten unterscheiden zu können. [ 171 ] Die Verwandtschaftserkennung ist eine nützliche Fähigkeit, die sowohl die Kooperation zwischen Verwandten als auch die Vermeidung von Inzucht fördert. Wenn es dennoch zur Paarung zwischen verwandten Erdmännchen kommt, führt dies häufig zu Inzuchtdepression . Inzuchtdepression zeigte sich bei verschiedenen Merkmalen: dem Gewicht der Jungtiere beim Verlassen des Geburtsbaus, der Hinterfußlänge, dem Wachstum bis zur Selbstständigkeit und der Überlebensrate der Jungtiere. [ 172 ]
Die Grauseitenwühlmaus ( Myodes rufocanus ) zeigt eine Männchen-dominierte Ausbreitung, um Inzucht zu vermeiden. [ 173 ] Bei Paarungen, die Inzucht beinhalten, ist die Anzahl der entwöhnten Jungtiere in Würfen signifikant geringer als in Würfen nicht-inzestuöser Elterntiere, was auf Inzuchtdepression hindeutet.
In natürlichen Populationen der Kohlmeise ( Parus major ) wird Inzucht wahrscheinlich durch die Abwanderung der Individuen von ihrem Geburtsort vermieden, wodurch die Wahrscheinlichkeit einer Paarung mit einem nahen Verwandten sinkt. [ 174 ] Die Abwanderung zur Vermeidung von Inzucht ist ein weit verbreitetes Verhalten bei Tieren wie Katzen und Hundeartigen , obwohl Inzucht – wenn auch selten – dennoch vorkommen kann.
Kröten zeigen , wie viele Amphibien, Treue zu ihren Laichplätzen . Individuen, die zur Fortpflanzung in ihre Geburtsgewässer zurückkehren, treffen dort mit hoher Wahrscheinlichkeit auf Geschwister als potenzielle Partner. Obwohl Inzest möglich ist, paaren sich Geschwister der Amerikanischen Kröte (Bufo americanus) selten. Diese Kröten erkennen und meiden vermutlich aktiv nahe Verwandte als potenzielle Partner. Balzrufe der Männchen scheinen als Hinweise zu dienen, anhand derer Weibchen ihre Verwandten erkennen. [ 175 ]
Siehe auch
- Präkopulatorische Isolationsmechanismen bei Tieren
- Biologie und sexuelle Orientierung
- Green Porno , eine Reihe von Kurzfilmen über Tierpaarungen, dargestellt von Menschen, wird auf dem Sundance Channel ausgestrahlt.
- Liste von Tieren, die homosexuelles Verhalten zeigen
- r/K-Selektionstheorie
- Hausmaus § Sozialverhalten umfasst Polygamie
- Sexualverhalten von Hunden
- Sexualverhalten von Pferden
- Nicht-reproduktives Sexualverhalten bei Tieren
- Sequenzieller Hermaphroditismus – Geschlechtswechsel als Teil des normalen Lebenszyklus einer Art
Referenzen
- ^ Kent, Michael (2000). Fortgeschrittene Biologie . Oxford University Press . S. 250–253 . ISBN 978-0-19-914195-1Die
- ^ Thorpe, Showick; Thorpe, Edgar (2009). General Studies Manual . Pearson Education India . S. 17. ISBN 978-81-317-2133-9Die
- ^ Wickler, Wolfgang; Lorenz; Konrad; Kacher, Hermann (1974). „Der Sexualcode: das Sozialverhalten von Tieren und Menschen“.
{{cite journal}}: Zeitschrift zitieren erfordert|journal=( Hilfe ) - ^ a b c d e Moyle PB und Cech JJ (2004) Fische, Eine Einführung in die Ichthyologie. 5. Auflage, Benjamin Cummings. ISBN 978-0-13-100847-2
- ^ Berglund A (1997) „Paarungssysteme und Geschlechtsverteilung“ Seiten 237–265 in JJ Godon, Hrsg. Verhaltensökologie der Knochenfische . Oxford University Press. ISBN 0-19-850503-5Die
- ^ „Taube“ . Encyclopædia Britannica . Abgerufen am 26. August 2014 .
- ^ Lily Whiteman (13. Februar 2013). „Tierische Anziehung: Die vielen Formen der Monogamie im Tierreich“ . National Science Foundation . Archiviert vom Original am 25. Juli 2014. Abgerufen am 26. August 2014 .
- Ågren , G.; Zhou, Q.; Zhong, W. (1989). „Ökologie und Sozialverhalten der Mongolischen Rennmaus, Meriones unguiculatus , in Xilinhot, Innere Mongolei, China“. Animal Behaviour . 37 : 11–27 . Bibcode : 1989AnBeh..37...11A . doi : 10.1016/0003-3472(89)90002-X . S2CID 53152632 .
- ^ a b Birkhead, TR; Møller, AP (1995). „Extra-pair copulations and extra-pair paternity in birds“. Animal Behaviour . 49 (3): 843– 848. Bibcode : 1995AnBeh..49..843B . doi : 10.1016/0003-3472(95)80217-7 . S2CID 53156057 .
- ^ a b c Reichard, UH (2002). „Monogamie – eine variable Beziehung“ (PDF) . Max Planck Research . 3 : 62–67 . Archiviert vom Original (PDF) am 14. Mai 2011. Abgerufen am 24. April 2013 .
- ^ Westneat, DF; Stewart, IRK (2003). „Vaterschaft außerhalb der Paarbeziehung bei Vögeln: Ursachen, Korrelate und Konflikte“. Annual Review of Ecology, Evolution, and Systematics . 34 : 365–396 . doi : 10.1146/annurev.ecolsys.34.011802.132439 .
- ^ Birkhead, TR & Møller, AP (1996) „Monogamie und Spermienkonkurrenz bei Vögeln“. In: JM Black (Hrsg.), Partnerschaften bei Vögeln: Die Erforschung der Monogamie , S. 323–343 , Oxford: Oxford University Press . ISBN 0-19-854860-5Die
- ^ Owens, IPF; Hartley, IR (1998). „Geschlechtsdimorphismus bei Vögeln: Warum gibt es so viele verschiedene Formen des Dimorphismus?“ Proceedings of the Royal Society B: Biological Sciences . 265 (1394): 397–407 . doi : 10.1098/rspb.1998.0308 . JSTOR 50849. PMC 1688905 .
- Solomon , N. G.; Keane, B.; Knoch, L. R.; Hogan, P. J. (2004). „Mehrfache Vaterschaft bei sozial monogamen Präriewühlmäusen (Microtus ochrogaster)“. Canadian Journal of Zoology . 82 (10): 1667–1671 . Bibcode : 2004CaJZ...82.1667S . doi : 10.1139/z04-142 .
- ^ Reichard, UH (2003). Monogamie: Vergangenheit und Gegenwart. In: UH Reichard und C. Boesch (Hrsg.), Monogamie: Paarungsstrategien und Partnerschaften bei Vögeln, Menschen und anderen Säugetieren, S. 3–25, Cambridge: Cambridge University Press, ISBN 0521819733Die
- ^ a b c Barash, DP & Lipton, JE (2001). Der Mythos der Monogamie. New York, NY: WH Freeman and Company, ISBN 0805071369Die
- ^ Angier, Natalie (21. August 1990). „Partnerschaft fürs Leben? Nichts für Bienen . “ The New York Times . Archiviert vom Original am 5. November 2007. Abgerufen am 14. Februar 2017 .
- ^ Morell, V. (1998). „Evolution des Geschlechts: Ein neuer Blick auf die Monogamie“. Science . 281 ( 5385): 1982–1983 . doi : 10.1126/science.281.5385.1982 . PMID 9767050. S2CID 31391458 .
- ^ McNeil, Jeremy N. (1986). „Rufverhalten: Kann es zur Identifizierung wandernder Mottenarten verwendet werden?“ The Florida Entomologist . 69 (1): 78–84 . doi : 10.2307/3494746 . JSTOR 3494746 .
- ^ Robert Sapolsky (2005). „Biologie und menschliches Verhalten: Die neurologischen Ursprünge der Individualität, 2. Auflage“ . The Teaching Company. Archiviert vom Original am 16. Februar 2014. Abgerufen am 10. November 2010 .
- ^ Dieser Abschnitt und die Beispiele stammen aus Robert Sapolsky (1998) Warum Zebras keine Magengeschwüre bekommen , WH Freeman and Co., ISBN 0-7167-3210-6, S. 140–141.
- Fürtbauer , Ines ; Heistermann, Michael; Schülke, Oliver ; Ostner, Julia (10. August 2011). „Verborgene Fruchtbarkeit und erweiterte weibliche Sexualität bei einem nicht-menschlichen Primaten ( Macaca assamensis )“ . PLOS ONE . 6 ( 8) e23105. Bibcode : 2011PLoSO...623105F . doi : 10.1371/ journal.pone.0023105 . ISSN 1932-6203 . PMC 3154278. PMID 21853074 .
- ^ Haartman, LV (1951). „Sukzessive Polygamie“. Behaviour . 3 : 256–273 . Bibcode : 1951Behav...3..256V . doi : 10.1163/156853951X00296 .
- ^ Silverin, B. (1979). „Auswirkungen der Verabreichung von langwirksamem Testosteron auf die Hoden freilebender Trauerschnäpper (Ficedula hypoleuca ).“ Endokrinologie . 74 (2): 141–146 . PMID 583410 .
- ^ Aloise King, Edith D.; Banks, Peter B.; Brooks, Robert C. (2011). „Sexual conflict in mammals: consequences for mating systems and life history“. Mammal Review . 43 (1) (veröffentlicht im Januar 2013): 47–58 . doi : 10.1111/j.1365-2907.2011.00200.x .
- ^ Marraro, CH; Nursall JR (1983). „Die Fortpflanzungsperiodizität und das Verhalten von Ophioblennius atlanticus auf Barbados“. J Zool . 61 (2): 317–325 . doi : 10.1139/z83-042 .
- ^ Theodore W. Pietsch (1975). „Frühe sexuelle Parasitierung beim Tiefsee-Anglerfisch Cryptopsaras couesi Gill“. Nature . 256 (5512): 38–40 . Bibcode : 1975Natur.256...38P . doi : 10.1038/256038a0 . S2CID 4226567 .
- ^ a b „Homosexuelle Aktivität bei Tieren löst Debatte aus“ . 23. Juli 2004. Archiviert vom Original am 13. November 2015. Abgerufen am 18. November 2018 .
- ^ Bateman, AJ (1948), „Intrasexuelle Selektion bei Drosophila“, Heredity , 2 (Teil 3): 349–368 , Bibcode : 1948Hered...2..349B , doi : 10.1038/hdy.1948.21 , PMID 18103134
- ^ Trivers, R. L. (1972). Elterliche Investition und sexuelle Selektion. In: B. Campbell (Hrsg.), Sexuelle Selektion und die Abstammung des Menschen , 1871–1971 (S. 136–179). Chicago, IL: Aldine. ISBN 0-435-62157-2
- ^ Hermaphroditen kämpfen um Männlichkeit. Archiviert am 26. März 2008 in der Wayback Machine , Science News Online . Abgerufen am 14. März 2009.
- ^ Miller, Brooke L. W (2007). Sexueller Konflikt und Partnermanipulation bei der Bananenschnecke, Ariolimax dolichophallusSanta Cruz: University of California. Archiviert vom Original am 13. Februar 2015. Abgerufen am 13. Februar 2015 .
- ^ Backeljau, Thierry; Jordaens, Kurt; Dillen, Lobke (2007). „Einfluss von Paarung, Brutsystem und Parasiten auf die Fortpflanzung bei Hermaphroditen: Lungenschnecken (Mollusca)“ . Animal Biology . 57 (2): 137–195 . doi : 10.1163/157075607780377965 . Abgerufen am 18. November 2018 .
- ^ Leonard, JL (5. Mai 2006). „Sexuelle Selektion: Lehren aus den Paarungssystemen von Hermaphroditen“ . Integrative and Comparative Biology . 46 (4): 349–367 . doi : 10.1093/icb/icj041 . PMID 21672747 .
- ^ Beispielsweise werden Masturbation, Probeaufreiten und andere Verhaltensweisen regelmäßig bei männlichen Tieren außerhalb der Brunftzeit beobachtet.
- ^ Dänemark, Det Dyreetiske Råd, Udtalelse om menneskers seksuelle omgang med dyr Archiviert am 4. Oktober 2021 bei der Wayback Machine (Kopenhagen: Justitsministeriet, November 2006), S. 24. „Schlankheitsgefühle in der Vagina und in den Drüsen sind unter dem Gesichtspunkt dieser Brunstzyklus zu finden. Das bedeutet, dass sie nur körperlich und mental aktiv sind, um die sexuelle Aktivität auf diese Weise auf andere Weise zu aktivieren. Das ist jedoch nicht der Fall Sexuelle Aktivitäten werden mit Skandal, Angst und Unzufriedenheit verbunden sein, wenn der Verlierer eine Brunstperiode braucht.“ (Übersetzung: „Die Schleimhaut in der Vagina des weiblichen Tieres und das Verhalten des Tieres werden von seinem Brunftzyklus beeinflusst. Das bedeutet, dass das Tier zu bestimmten Zeiten körperlich und geistig besser auf sexuelle Aktivitäten vorbereitet ist als zu anderen. Dies bedeutet jedoch nicht, dass sexuelle Aktivität zu Verletzungen, Angst oder Leiden führt, wenn sie außerhalb der Brunftzeit stattfindet.“)
- ^ Virginia Douglass Hayssen; Ari Van Tienhoven (1993). Asdells Muster der Säugetierreproduktion: Ein Kompendium artenspezifischer Daten . Cornell University Press. ISBN 978-0-8014-1753-5Abgerufen am 27. September 2013 .
- ^ Aronson, LR ; Cooper, ML (1967). „Penile spines of the domestic cat: their endocrine-behavior relations“ (PDF) . Anatomical Record . 157 (1): 71–78 . doi : 10.1002/ar.1091570111 . PMID 6030760. S2CID 13070242. Archiviert vom Original (PDF) am 19. März 2015.
- ^ Wells, Kentwood D (November 1978). „Territorialität beim Grünen Frosch (Rana clamitans): Lautäußerungen und agonistisches Verhalten“. Animal Behaviour . 26 (4): 1051–1054 . Bibcode : 1978AnBeh..2611055W . doi : 10.1016/0003-3472(78)90094-5 . S2CID 54344542 .
- ^ a b Georgiadis, JR; Kringelbach, ML & Pfaus, JG (2012). „Sex for fun: a synthesis of human and animal neurobiology“ . Nature Reviews Urology . 9 (9): 486–498 . doi : 10.1038/nrurol.2012.151 . PMID 22926422. S2CID 13813765 .
- ^ Bear, Mark F. (2007). Neurowissenschaften: Erforschung des Gehirns . Baltimore, MD: Lippincott Williams and Wilkins. S. 544–545 . ISBN 978-0-7817-6003-4Die
- Inoue , K.; Burkett, J. P.; Young, L. J. (2013). „Neuroanatomische Verteilung der μ-Opioidrezeptor-mRNA und -Bindung bei monogamen Präriewühlmäusen (Microtus ochrogaster) und nicht-monogamen Wiesenwühlmäusen (Microtus pennsylvanicus)“ . Neuroscience . 244 : 122–133 . doi : 10.1016 /j.neuroscience.2013.03.035 . PMC 4327842. PMID 23537838 .
- ^ a b Kennett, JE; McKee, DT (2012). „Oxytocin: Ein neuartiger Regulator der Prolaktinsekretion bei weiblichen Ratten“ . Journal of Neuroendocrinology . 24 (3): 403–412 . doi : 10.1111/j.1365-2826.2011.02263.x . PMC 3288386. PMID 22129099 .
- Snowdon , Charles T.; Pieper, Bridget A.; Boe, Carla Y.; Cronin, Katherine A.; Kurian, Aimee V.; Ziegler, Toni E. (2010). „Variationen des Oxytocinspiegels korrelieren mit Variationen im Bindungsverhalten monogamer, paarweise gebundener Tamarinen“ . Hormones and Behavior . 58 (4): 614–618 . doi : 10.1016/j.yhbeh.2010.06.014 . hdl : 11858 / 00-001M-0000-0012-2863-F . PMC 2933949. PMID 20600045 .
- ^ Lambert, K. (2011). Die Laborratten-Chroniken . New York: Penguin Group. S. 151–172 .
- ^ Azar, B. (März 2011). „Die andere Seite des Oxytocins“ . Science Watch . 42 (3): 40. Archiviert vom Original am 14. November 2012. Abgerufen am 4. November 2012 .
- Aubert , Y.; Gustison, ML; Gardner, LA; Bohl, MA; Lange, JR; Allers, KA; Sommer, B.; Datson, NA; Abbott, DH (2012). „Flibanserin und 8-OH-DPAT deuten auf eine Beteiligung von Serotonin an der Verbindung zwischen dem Sexualverhalten weiblicher Weißbüschelaffen und Veränderungen der Paarbindungsqualität hin“ . The Journal of Sexual Medicine . 9 (3): 694–707 . doi : 10.1111/j.1743-6109.2011.02616.x . PMC 5898967. PMID 22304661 .
- ^ Gil, M.; Bhatt, R.; Picotte, KB; Hull, EM (2011). „Oxytocin im medialen präoptischen Bereich erleichtert das männliche Sexualverhalten bei der Ratte“ . Hormones and Behavior . 59 (4): 435–443 . doi : 10.1016/j.yhbeh.2010.12.012 . PMC 3081415. PMID 21195714 .
- ^ Scott, Graham (2004). Essential Animal Behavior . Wiley-Blackwell. S. 166–197 . ISBN 978-0-632-05799-3Die
- ^ Agrati, D.; Fernández-Guasti, A.; Ferreño, M.; Ferreira, A. (2011). „Koexpression von Sexualverhalten und mütterlicher Aggression: Die Ambivalenz sexuell aktiver Mutterratten gegenüber männlichen Eindringlingen“. Verhaltensneurowissenschaften . 125 (3): 446–451 . doi : 10.1037/a0023085 . PMID 21517149 .
- ^ McHenry, JA; Bell, GA; Parrish, BP; Hull, EM (2012). „Dopamin-D1-Rezeptoren und die Phosphorylierung von Dopamin- und cAMP-reguliertem Phosphoprotein-32 im medialen präoptischen Bereich sind an der erfahrungsinduzierten Steigerung des männlichen Sexualverhaltens bei Ratten beteiligt“ . Behavioral Neuroscience . 126 (4): 523–529 . doi : 10.1037/a0028707 . PMC 3409344. PMID 22708956 .
- ^ Matsushita, Hiroaki; Tomizawa, Kazuhito; Okimoto, Naoki; Nishiki, Tei-ichi; Ohmori, Iori; Matsui, Hideki (1. Oktober 2010). „ Oxytocin vermittelt die antidepressive Wirkung des Paarungsverhaltens bei männlichen Mäusen“ . Neuroscience Research . 68 (2): 151–153 . doi : 10.1016/j.neures.2010.06.007 . ISSN 0168-0102 . PMID 20600375. S2CID 207152048 .
- ^ Phan, Joseph; Alhassen, Lamees; Argelagos, Allan; Alhassen, Wedad; Vachirakorntong, Benjamin; Lin, Zitong; Sanathara, Nayna; Alachkar, Amal (12. August 2020). „Mating and parenting experiences sculpture mood-modulating effects of oxytocin-MCH signaling“ . Scientific Reports . 10 (1): 13611. Bibcode : 2020NatSR..1013611P . doi : 10.1038/s41598-020-70667- x . ISSN 2045-2322 . PMC 7423941. PMID 32788646 .
- ^ Matsushita, Hiroaki; Sasaki, Yuya; Yunoki, Aya; Matsuji, Ayuka; Latt, Hein Min; Onishi, Kazunari; Tomizawa, Kazuhito; Matsui, Hideki (1. August 2022). „Antidepressiva-ähnliche Wirkung des Paarungsverhaltens von Männchen durch Oxytocin-induzierte CREB-Signalgebung“ . Neuroscience Research . 181 : 74–78 . doi : 10.1016/j.neures.2022.04.002 . ISSN 0168-0102 . PMID 35421523. S2CID 248089550 .
- ^ Hull, Elaine M.; Meisel, RL; Sachs, BD (2002). „Männliches Sexualverhalten“ (PDF) . Hormones, Brain and Behavior . 1 : 3–137 . doi : 10.1016/B978-012532104-4/50003-2 . ISBN 978-0-12-532104-4Archiviert ( PDF) vom Original am 1. August 2016. Abgerufen am 13. August 2016 .
- ^ Jeffrey Moussaieff Masson (21. Oktober 2009). Wenn Elefanten weinen: Das Gefühlsleben der Tiere . Random House Publishing Group. ISBN 978-0-307-57420-6Abgerufen am 28. Mai 2013 .
- ^ Balcombe, J. (2009). „Tierisches Vergnügen und seine moralische Bedeutung“ . Applied Animal Behaviour Science . 118 (3): 212. doi : 10.1016/j.applanim.2009.02.012 . S2CID 16847348. Archiviert vom Original am 2. Mai 2020. Abgerufen am 6. Juli 2019 .
- ^ Dawkins, M. (2000). „Tierisches Denken und tierische Emotionen“ . American Zoologist . 40 (6): 883–888 . doi : 10.1668/0003-1569(2000)040[0883:amaae]2.0.co;2 . S2CID 86157681. Archiviert vom Original am 20. März 2020.
- ^ Panksepp, J. (1982). „Toward a general psychobiological theory of emotions“. Behavioral and Brain Sciences . 5 (3): 407–422 . doi : 10.1017/S0140525X00012759 . S2CID 145746882 .
- ^ „Emotionen helfen Tieren bei Entscheidungen (Pressemitteilung)“ . Universität Bristol. 2010. Archiviert vom Original am 4. Oktober 2021. Abgerufen am 26. Oktober 2013 .
- ^ Jacky Turner; Joyce D'Silva (Hrsg.). (2006). Tiere, Ethik und Handel: Die Herausforderung der Tierempfindungsfähigkeit . Earthscan. ISBN 978-1-84407-254-5Abgerufen am 26. Oktober 2013 .
- ^ Dänemark, Det Dyreetiske Råd, Udtalelse om menneskers seksuelle omgang med dyr Archiviert am 4. Oktober 2021 bei der Wayback Machine (Kopenhagen: Justitsministeriet, November 2006), S. 23–24. „Selbst wenn die formelle Entwicklung mit der Parre-Signatur zu einer Reproduktion führen kann, ist es nicht die erste, die es braucht, um mit der Parre-Signatur zu beginnen. Es ist nicht einfach, sie zu reproduzieren Die Motive für sich selbst, und diese sind mit einer positiven Wirkung verbunden, und es ist eine andere Form, sie mit Akten zu bestrafen til at arbejde für at Für den Übergang zu 100 Jahren ist es so, dass 100 Jahre alt sind, und der Handwerker, der mir zur Seite steht, hat die Gelegenheit, den Hund zu klopfen – der Besucher muss sich um etwas kümmern, das mit den neuesten Erkenntnissen verbunden ist, Tage ab. . . . Der Zweck besteht darin, die Anatomie oder die Physiologie des Körpers zu verbessern, die Muskeln zu stimulieren und den Schädel zu parieren. Sie können eine positive Wirkung erzielen – FX macht die Klitoris auf die gleiche Weise wie ihre eigenen. Videnskabelige undersøgelser har vist, at reproduktionssuccesen forbedres ved stimulation of klitoris på bl.a. køer og Hopper verbietet die Befruchtung und fordert den Transport von Tieren. sammentrækninger af de indre kønsdele. Dies war vor hundert Jahren von Andre Dyrearter der Fall, und die beiden waren sich einig, dass er auch unter dem Orgasmus seines Sohnes leiden musste. Das ist der Grund dafür, dass der Sex-Sammler mit einem positiven Oplevel für Hunderttausende verboten werden kann.
- ^ a b Koeslag, JH (1990). „Koinophilie gruppiert sexuell reproduzierende Lebewesen in Arten, fördert Stasis und stabilisiert soziales Verhalten“. Journal of Theoretical Biology . 144 (1): 15–35 . Bibcode : 1990JThBi.144...15K . doi : 10.1016/S0022-5193(05)80297-8 . PMID 2200930 .
- ^ Moller, AP; Pomiankowski, A (1993). „Fluctuating asymmetry and sexual selection“. Genetica . 89 ( 1–3 ): 267–279 . doi : 10.1007/bf02424520 . S2CID 40071460 .
- ^ Dawkins, Richard (1986). Der blinde Uhrmacher. Longman, London. Erschienen bei Penguin Books 1988, 1991 und 2006. Kapitel 8, Explosionen und Spiralen.
- ^ a b c „1.500 Tierarten praktizieren Homosexualität“ . News-medical.net. 23. Oktober 2006. Archiviert vom Original am 8. August 2014. Abgerufen am 19. Februar 2007 .
- ^ Katz, LS; McDonald, TJ (1992). „Sexualverhalten von Nutztieren“. Theriogenology . 38 (2): 239–253 . doi : 10.1016/0093-691X(92)90233-H . PMID 16727133 .
- ^ Knobil E., Neill JD (Hrsg.). Die Physiologie der Fortpflanzung . Academic Press, 3. Auflage, 2005
- ^ Streifenlaichen. Archiviert am 10. Februar 2015 im Internetarchiv (Wayback Machine) . Fishbase-Glossar. Abgerufen am 11. Februar 2011.
- ^ Laichrausch. Archiviert am 10. Februar 2015 im Internetarchiv Wayback Machine. Fishbase-Glossar. Abgerufen am 11. Februar 2011.
- ^ Gross MR (1984) „Sonnenbarsche, Lachse und die Evolution alternativer Fortpflanzungsstrategien und -taktiken bei Fischen“. S. 55–75 in: GW Potts und RJ Wotton (Hrsg.), Fischreproduktion: Strategien und Taktiken . Academic Press.
- ^ a b Shapiro DY (1984) „Sex reversal and sociodemographics processes in coral reef fishes“ Seiten 103–116 in GW Potts und RK Wootoon, Hrsg., Fish reproduction: Strategies and tactics , Academic Press.
- ^ Robertson, DR; RR Warner (1978). „Sexual patterns in the Labroid fishes of the Western Caribbean II: the parotfishes (Scaridae)“. Smithsonian Contributions to Zoology . 255 (255): 1–26 . doi : 10.5479/si.00810282.255 .
- ^ Kazancioglu, E.; SH Alonzo (August 2010). „Eine vergleichende Analyse des Geschlechtswechsels bei Lippfischen stützt die Hypothese des Größenvorteils“ . Evolution . 64 ( 8): 2254–2264 . doi : 10.1111/j.1558-5646.2010.01016.x . PMID 20394662. S2CID 8184412 .
- ^ Buston, Peter M. (Mai 2004). „Territory Inheritance in Clownfish“ . Proceedings of the Royal Society B. 271 ( Suppl 4): S252– S254 . Bibcode : 2004PBioS.271.0156B . doi : 10.1098/rsbl.2003.0156 . PMC 1810038. PMID 15252999 .
- ^ Buston, P. (2004). „Verbessert die Anwesenheit von Nichtbrütern die Fitness von Brütern? Eine experimentelle Analyse am Clown-Anemonenfisch Amphiprion percula “. Behavioral Ecology and Sociobiology . 57 (1): 23–31 . Bibcode : 2004BEcoS..57...23B . doi : 10.1007/s00265-004-0833-2 . S2CID 24516887 .
- ^ Colin, PL; LJ Bell (1992). „Aspekte des Laichverhaltens von Lippfischen und Rotaugen (Pisces, Labroidei) im Enewetak-Atoll, Marshallinseln, mit Anmerkungen zu anderen Familien (korrigierter Nachdruck) . “ Environmental Biology of Fishes . 33 (3): 330–345 . doi : 10.1007/BF00005881 .
- ^ Zuk, Marlene (Dezember 2016). „Partner mit Vorteilen: Wann und wie sexueller Kannibalismus adaptiv ist“ . Current Biology . 26 (23): R1230– R1232. Bibcode : 2016CBio...26R1230Z . doi : 10.1016/j.cub.2016.10.017 . PMID 27923131 .
- ^ a b Polis, GA (1981). „Die Evolution und Dynamik intraspezifischer Prädation“. Annual Review of Ecology and Systematics . 51 (1): 225–251 . Bibcode : 1981AnRES..12..225P . doi : 10.1146/annurev.es.12.110181.001301 . S2CID 86286304 .
- ^ Bilde, T.; Tuni, C.; Elsayed, R.; Pekár, S.; Toft, S. (2006). „ Todesvortäuschung angesichts sexuellen Kannibalismus“ . Biology Letters . 2 (1): 23–25 . Bibcode : 2006BiLet...2...23B . doi : 10.1098/rsbl.2005.0392 . PMC 1617195. PMID 17148316 .
- ^ Bailey, RO ; Seymour, NR; Stewart, GR (1978). „Rape behaviour in blue-winged teal“ (PDF) . Auk . 95 (1): 188–90 . doi : 10.2307/4085514 . JSTOR 4085514. Archiviert (PDF) vom Original am 29. November 2014. Abgerufen am 5. März 2013 .
- ^ Barash, DP (1977). „Soziobiologie der Vergewaltigung bei Stockenten ( Anas platyrhynchos ): Reaktionen des verpaarten Männchens“. Science . 197 (4305): 788–789 . Bibcode : 1977Sci...197..788B . doi : 10.1126 / science.197.4305.788 . PMID 17790773. S2CID 34257131 .
- ^ Mineau, Pierre; Cooke, Fred (1979). „Vergewaltigung bei der Kleinen Schneegans“. Behaviour . 70 (3): 280–291 . doi : 10.1163/156853979x00098 . ISSN 0005-7959 .
- ^ Emlen, ST; Wrege, PH (2010). „Erzwungene Kopulationen und intraspezifischer Parasitismus: Zwei Kosten des Soziallebens beim Weißstirn-Bienenfresser“. Ethology . 71 : 2–29 . doi : 10.1111/j.1439-0310.1986.tb00566.x .
- ^ Siebert, Charles. (8. Oktober 2006) Ein Elefanten-Crackup? , Charles Siebert, New York Times Magazine, 8. Oktober 2006. Archiviert am 14. November 2012 in der Wayback Machine . Nytimes.com. Abgerufen am 22. Dezember 2011.
- ^ „Haben Elefanten begonnen, Nashörner in freier Wildbahn zu vergewaltigen?“ The Straight Dope . 25. Juli 2008. Archiviert vom Original am 27. Dezember 2012. Abgerufen am 5. März 2013 .
- ^ Wininger, J. David (2004), „Parthenogenetische Stammzellen“, Handbuch der Stammzellen , Elsevier, S. 635–637 , doi : 10.1016/b978-012436643-5/50072-9 , ISBN 978-0-12-436643-5
- ^ Hiskey, D. (31. Mai 2011). „Die Peitschenschwanz-Eidechsen in New Mexico sind alle weiblich“ . Archiviert vom Original am 13. Februar 2015. Abgerufen am 13. Februar 2015 .
- ^ Echelle AA, Echelle AF, Crozier CD (1983). „Entwicklung eines rein weiblichen Fisches, Menidia clarkhubbsi (Atherinidae)“. Entwicklung . 37 (4): 772–784 . doi : 10.2307/2407918 . JSTOR 2407918 . PMID 28568119 .
- ^ Harmon, K. (2010). „Kein Sex nötig: Rein weibliche Eidechsenarten kreuzen ihre Chromosomen, um Nachkommen zu zeugen“ . Scientific American . Abgerufen am 13. Februar 2015 .
- ^ „Gefangener Hai hatte ‚Jungfrauengeburt‘“" . BBC News . 23. Mai 2007. Archiviert vom Original am 17. Dezember 2008 . Abgerufen am 23. Dezember 2008 ."
- ^ "„Jungfrauengeburt“ für Aquariumhai . Metro.co.uk . 10. Oktober 2008. Archiviert vom Original am 11. Oktober 2008. Abgerufen am 10. Oktober 2008 .
- ^ Halliday, Tim R.; Adler, Kraig (Hrsg.). (1986). Reptilien und Amphibien . Torstar Books. S. 101. ISBN 978-0-920269-81-7Die
- ^ Walker, Brian (11. November 2010). „Wissenschaftler entdecken unbekannte Eidechsenart am Mittagsbuffet“ . CNN . Archiviert vom Original am 13. September 2018. Abgerufen am 11. November 2010 .
- ^ Alves MJ, Collarea-Pereira MJ, Dowling TE, Coelho MM (2002). „Die Genetik der Erhaltung einer rein männlichen Linie im Squalius alburnoides -Komplex“. Journal of Fish Biology . 60 (3): 649–662 . Bibcode : 2002JFBio..60..649A . doi : 10.1111/j.1095-8649.2002.tb01691.x .
- ^ Kinsey, Alfred (1953). Das Sexualverhalten der Frau . WB Saunders Company. S. 504 .
- ^ „Pinguine wenden sich der Prostitution zu“ . BBC. 26. Februar 1998. Archiviert vom Original am 6. August 2017. Abgerufen am 12. Juni 2008 .
- ^ Connor, Steve (8. April 2009). „Sex gegen Fleisch – wie Schimpansen ihre Partner verführen“ . The Independent . London. Archiviert vom Original am 7. Mai 2022.
- ^ Det Dyreetiske Råd (2006). „Udtalelse om menneskers sexy omgang med dyr“ (PDF) . Justitsministeriet. Archiviert vom Original (PDF) am 27. Februar 2012.
„Selbst wenn die formelle Entwicklung mit der Parre-Signatur zu einer Reproduktion führen kann, ist das nicht der Fall, und zwar vor allem, weil ich als Erstes mit der Parre-Signatur rechnen muss.“ Es ist wichtig, dass Sie sich mit dem Gespräch einverstanden erklären, und zwar aus Gründen der Selbstgespräche, und das ist mit einer positiven Einstellung verboten. Das ist der Grund dafür, dass es zu einem späteren Zeitpunkt erforderlich ist, dass es sich um ein anderes Formular handelt, das mit den Akten verbunden ist. Diese Anträge sind auf den Vorteil seines Handwerkers gerichtet, der für viele Arten, die er erhalten hat, bis zu einem Jahr später arbeiten muss, und das heißt, er ist ein Hundertjähriger, und der Handwerker, der ihm geholfen hat, kann schon bald darauf warten, bis er den Hund gefunden hat. når det udstyr, de forbinder med sædopsamlingen, tages frem.' [Übersetzung ins Englische] „Obwohl man sagen kann, dass der evolutionäre Zweck der Paarung die Fortpflanzung ist, ist es nicht die bloße Tatsache, dass Tiere Nachkommen haben, die sie überhaupt zur Paarung veranlasst.“ Vielmehr ist es wahrscheinlich, dass sie sich paaren, weil sie durch den Akt der Paarung selbst motiviert sind und dieser mit einem positiven Erlebnis verbunden ist. Es ist daher vernünftig anzunehmen, dass mit der Handlung irgendeine Form von Vergnügen oder Befriedigung verbunden ist. Diese Annahme wird durch das Verhalten männlicher Tiere bestätigt, die bei vielen Arten bereit sind, sich den Zugang zu Weibchen zu erkämpfen, insbesondere wenn das Weibchen paarungsbereit ist, und männliche Tiere, die zu Fortpflanzungszwecken daran gewöhnt sind, dass ihr Sperma entnommen wird – sie zeigen große Eifer, wenn die Geräte, die sie mit der Spermagewinnung verbinden, hervorgeholt werden.
{{cite journal}}: Zeitschrift zitieren erfordert|journal=( Hilfe ) - Pfaus , JG; Kippin, TE; Coria - Avila, GA; Gelez, H.; Afonso, VM; Ismail, N.; Parada, M. (2012). „Wer, was, wo, wann (und vielleicht sogar warum)? Wie das Erleben sexueller Belohnung sexuelles Verlangen, Präferenz und Leistung verbindet“. Archives of Sexual Behavior . 41 (1): 31–62 . doi : 10.1007 / s10508-012-9935-5 . PMID 22402996. S2CID 12421026 .
- ^ Deaner MO; Khera AV; Platt ML (2005). „Affen zahlen pro Ansicht: Adaptive Bewertung sozialer Bilder durch Rhesusaffen“ . Current Biology . 15 (6): 543–548 . Bibcode : 2005CBio...15..543D . doi : 10.1016 / j.cub.2005.01.044 . PMID 15797023. S2CID 1746276 .
- ^ Gray, Denis D. (27. November 2006) Pornografie löst Panda-Babyboom in China aus: Forschung – und Pornofilme – tragen zu Rekordgeburtenrate im Jahr 2006 bei. Archiviert am 4. Mai 2020 im Internet Archive . Associated Press (via NBC News). Abgerufen am 22. Dezember 2011.
- ^ Klaus Reinhardt, Nils Anthes und Rolanda Lange (2015) „Kopulatorische Verletzungen und traumatische Insemination“ Archiviert am 11. Januar 2016 bei der Wayback Machine Cold Spring Harb Perspect Biol 2015; 7: a017582
- Würsig , Bernd; Orbach, Dara N. (25. September 2023). Sex bei Walen: Morphologie, Verhalten und die Evolution sexueller Strategien . Springer Nature. ISBN 978-3-031-35651-3Die
- ^ Watson, P. F. (1978). Künstliche Zucht von Wildtieren: (Die Tagungsbände eines Symposiums der Zoological Society of London am 7. und 8. September 1977) . Academic Press für die Zoological Society of London. ISBN 978-0-12-613343-1Abgerufen am 9. Februar 2013 .
- ^ Balcombe, Jonathan P. (2011). Die jubelnde Arche: Eine Bildreise durch die Welt der Tierlust . University of California Press. S. 89–. ISBN 978-0-520-26024-5Die
- ^ Diese Bären haben viel Oralsex, und Wissenschaftler glauben, den Grund dafür zu kennen (The Huffington Post) Archiviert am 14. Juli 2014 in der Wayback Machine Von: Grenoble, Ryan.
- ^ Hideshi Ogawa (2006). Schlaue Affen: Soziale Intelligenz tibetischer Makaken . Kyoto University Press. S. 4–. ISBN 978-1-920901-97-4Die
- ^ Fox, MW (1972). „Die soziale Bedeutung des Genitalleckens beim Wolf, Canis lupus “. Journal of Mammalogy . 53 (3): 637–640 . doi : 10.2307/1379064 . JSTOR 1379064 .
- ^ Sugita, Norimasa. „Homosexuelle Fellatio: Lecken erigierter Penisse zwischen männlichen Bonin-Flughunden Pteropus pselaphon.“ Archiviert am 6. November 2017 in der Wayback Machine. PLOS One 11.11 (2016): e0166024.
- ^ Tan, M.; Jones, G.; Zhu, G.; Ye, J.; Hong, T.; Zhou, S.; Zhang, S.; Zhang, L. (2009). Hosken, David (Hrsg.). „Fellatio by Fruit Bats Prolongs Copulation Time“ . PLOS ONE . 4 (10) e7595. Bibcode : 2009PLoSO...4.7595T . doi : 10.1371/journal.pone.0007595 . PMC 2762080. PMID 19862320 .
- ^ Waterman, JM (2010). Briffa, Mark (Hrsg.). „Die adaptive Funktion der Masturbation bei einem promiskuitiven afrikanischen Erdhörnchen“ . PLOS ONE . 5 (9) e13060. Bibcode : 2010PLoSO...513060W . doi : 10.1371/journal.pone.0013060 . PMC 2946931. PMID 20927404 .
- ^ Tan, Min; Gareth Jones; Guangjian Zhu; Jianping Ye; Tiyu Hong; Shanyi Zhou; Shuyi Zhang; Libiao Zhang (28. Oktober 2009). Hosken, David (Hrsg.). „Fellatio by Fruit Bats Prolongs Copulation Time“ . PLOS ONE . 4 (10) e7595. Bibcode : 2009PLoSO...4.7595T . doi : 10.1371/ journal.pone.0007595 . PMC 2762080. PMID 19862320 .
- ^ Bagemihl, Bruce (1999). Biologische Überschwänglichkeit: Tierische Homosexualität und natürliche Vielfalt . St. Martin's Press. S. 673 .
- ^ „Schwulen-Tierschau in Oslo lockt viele Besucher an“ . BBC News . 19. Oktober 2006. Archiviert vom Original am 29. Oktober 2006. Abgerufen am 19. Oktober 2006 .
- ^ Poiani, Aldo; Dixson, A. F. (2010). Tierhomosexualität: Eine biosoziale Perspektive . Cambridge, England: Cambridge University Press . S. 179. ISBN 978-1-139-49038-2Damit
ist O. aries (Widder) erst das zweite bekannte Säugetier neben dem Menschen, das ausschließlich Homosexualität zeigen kann.
- ^ Sazima, I. (2015). „Unwiderstehliche Leichenbraut: Eine tote Teju-Eidechse ( Salvator merianae ) wurde zwei Tage lang von Männchen in einem Stadtpark im Südosten Brasiliens umworben“ . Herpetology Notes . 8 : 15–18 . Archiviert vom Original am 23. Februar 2015. Abgerufen am 24. Februar 2015 .
- ^ a b c de Waal FB (1995). „Bonobo sex and society“. Scientific American . 272 (3): 82–88 . Bibcode : 1995SciAm.272c..82W . doi : 10.1038/scientificamerican0395-82 . PMID 7871411. Das wohl typischste Sexualverhalten des Bonobos, das bei keinem anderen Primaten dokumentiert ist, ist das Reiben der Genitalien (
oder GG-Reiben) zwischen erwachsenen Weibchen. Ein Weibchen klammert sich mit Armen und Beinen an ein anderes, das sich auf Hände und Füße stützt und es vom Boden abhebt.
- ^ Paoli, T.; Palagi, E.; Tacconi, G.; Tarli, SB (2006). „Perineale Schwellung, intermenstrueller Zyklus und weibliches Sexualverhalten bei Bonobos ( Pan paniscus )“. American Journal of Primatology . 68 (4): 333–347 . doi : 10.1002 / ajp.20228 . PMID 16534808. S2CID 25823290 .
- ^ Walker, Matt (2. Mai 2008) Science/Nature „Sexueller Schädling“: Robbe greift Pinguin an . BBC News. Abgerufen am 15. Februar 2011.
- ^ Doncarlos, Michael W.; Petersen, Jay S.; Tilson, Ronald L. (1986). „Biologie eines asozialen Marders in Gefangenschaft; Mustela erminea “. Zoo Biology . 5 (4): 363–370 . doi : 10.1002/zoo.1430050407 .
- ^ Dawkins, Richard (2004). „Schimpansen“. Die Geschichte unserer Vorfahren . Houghton Mifflin. ISBN 978-1-155-16265-2Die
- ^ de Mattos Brito, LB; Joventino, IR; Ribeiro, SC; Cascon, P. (2012). „Nekrophiles Verhalten bei der „Cururu“-Kröte, Rhinella jimi Steuvax, 2002, (Anura, Bufonidae) aus dem Nordosten Brasiliens“ (PDF) . Nordwestliches Journal für Zoologie . 8 (2): 365. Archiviert (PDF) vom Original am 5. Februar 2015 . Abgerufen am 5. Februar 2015 .
- ^ Thornhill, R.; Gangestad, SW (2008). Die Evolutionsbiologie der weiblichen Sexualität beim Menschen . USA: Oxford University Press. S. 37–55 .
- ^ a b Simon De Bruxelles Promiskuitiv und bisexuell – das „treue“ Seepferdchen hat ein geheimes Sexleben . Timesonline.co.uk. 31. Januar 2007. Abgerufen am 22. Dezember 2011.
- ^ Zihlman, AL; Hunter, WS (1972). „Eine biomechanische Interpretation des Beckens von Australopithecus“. Folia Primatologica . 18 (1): 1–19 . doi : 10.1159/000155465 . PMID 4658666 .
- ^ a b Hashimoto, Chie (1997). „Kontext und Entwicklung des Sexualverhaltens wilder Bonobos ( Pan paniscus ) in Wamba, Zaire“. International Journal of Primatology . 18 (1): 1–21 . doi : 10.1023/a:1026384922066 . ISSN 0164-0291 . S2CID 22744816 .
- ^ Clay, Zanna; de Waal, Frans BM (2014). „Sex and strife: post-conflict sexual contacts in bonobos“ (PDF) . Behaviour . 152 ( 3–4 ): 313–334 . doi : 10.1163/1568539X-00003155 . Archiviert (PDF) vom Original am 5. Februar 2018. Abgerufen am 18. November 2018 .
- Leca , Jean - Baptiste; Gunst, Noëlle; Vasey, Paul L. (28. Mai 2014). „Männliches homosexuelles Verhalten in einer freilebenden, rein männlichen Gruppe japanischer Makaken in Minoo, Japan“. Archives of Sexual Behavior . 43 ( 5): 853–861 . doi : 10.1007/s10508-014-0310-6 . ISSN 0004-0002 . PMID 24867180. S2CID 30375191 .
- ^ a b Wallen, K.; Parsons, WA (1997). „Sexual behavior in same-sexed nonhuman primates: Is it relevant to understanding human homosexuality?" . Annual Review of Sex Research . 8 : 195–223 . doi : 10.1080/10532528.1997.10559922 . PMID 10051894 . Abgerufen am 18. November 2018 .
- Vasey , Paul L.; Duckworth, Nadine (2006). „Sexuelle Belohnung durch Vulva-, Perineal- und Analstimulation: Ein unmittelbarer Mechanismus für das homosexuelle Aufreiten weiblicher Japanmakaken | PDF anfordern“ . Archives of Sexual Behavior . 35 (5): 523–532 . doi : 10.1007/s10508-006-9111-x . PMID 17048107. S2CID 24498074. Abgerufen am 18. November 2018 .
- ^ a b Die schwulen Pinguine im Central Park Zoo entfachen eine Debatte. Archiviert am 12. Juni 2012 in der Wayback Machine . Sfgate.com (7. Februar 2004). Abgerufen am 22. Dezember 2011.
- ^ a b Unwin, Brian (22. Januar 2008). "„Strengere Gesetze zum Schutz freundlicher Delfine“ . The Telegraph . London. Archiviert vom Original am 27. Dezember 2012. Abgerufen am 4. April 2018 .
- ^ East, Marion L.; Hofer, Heribert; Wickler, Wolfgang (1993). „Der erigierte ‚Penis‘ als Zeichen der Unterwerfung in einer weiblich dominierten Gesellschaft: Begrüßungen bei Serengeti-Tüpfelhyänen“. Behavioral Ecology and Sociobiology . 33 (6): 355–370 . Bibcode : 1993BEcoS..33..355E . doi : 10.1007/BF00170251 . S2CID 23727803 .
- ^ Sapolsky (1998), Warum Zebras keine Magengeschwüre bekommen, WH Freeman and Co., ISBN 0-7167-3210-6, S. 127–129.
- ^ Dewsbury, Donald A. „Muster des Kopulationsverhaltens bei männlichen Säugetieren.“ Quarterly Review of Biology (1972): 1-33.
- ^ Fortey, I. (2008). „Die 15 bizarrsten Paarungsrituale der Tiere“ . Archiviert vom Original am 18. Februar 2015. Abgerufen am 18. Februar 2015 .
- ^ Dufour, Claire M.-S.; Pillay, Neville; Ganem, Guila (2015). „Ventro-ventrale Kopulation bei einem Nagetier: eine weibliche Initiative? | Journal of Mammalogy | Oxford Academic“ . Journal of Mammalogy . 96 (5): 1017–1023 . doi : 10.1093/jmammal/gyv106 .
- ^ Diaz, K. „ Tursiops aduncus Indo-Pazifischer Großer Tümmler“ . Animal Diversity Web. Archiviert vom Original am 20. Oktober 2016. Abgerufen am 19. Oktober 2016 .
- ^ Adulyanukosol, K.; Thongsukdee, S.; Hara, T.; Arai, N.; Tsuchiya, M. (2007). „Beobachtungen des Fortpflanzungsverhaltens von Dugongs in der Provinz Trang, Thailand: Weitere Belege für intraspezifische Variationen im Verhalten von Dugongs“. Marine Biology . 151 (5): 1887–1891 . Bibcode : 2007MarBi.151.1887A . doi : 10.1007/s00227-007-0619-y . S2CID 86253387 .
- ^ „Baktrische Kamele und Dromedare“ . Informationsblätter . San Diego Zoo Global Library. März 2009. Archiviert vom Original am 22. September 2012. Abgerufen am 4. Dezember 2012 .
- ^ Enzyklopädie der Verhaltensneurowissenschaften . Elsevier Science. 16. April 2010. ISBN 978-0-08-091455-8Die
- ^ L. Alterman; Gerald A. Doyle; MK Izard (9. März 2013). Kreaturen der Dunkelheit . Springer Science & Business Media. ISBN 978-1-4757-2405-9Die
- ^ David E. Noakes (23. April 2009). Arthur's Veterinary Reproduction and Obstetrics . Elsevier Health Sciences UK. S. 714–. ISBN 978-0-7020-3990-4Die
- ^ Donald M. Broom; Andrew Ferguson Fraser (1. Januar 2007). Verhalten und Wohlbefinden von Haustieren . CABI. S. 156–. ISBN 978-1-84593-287-9Die
- ^ Valerius Geist (Januar 1998). Hirsche der Welt: Ihre Evolution, ihr Verhalten und ihre Ökologie . Stackpole Books. S. 72–. ISBN 978-0-8117-0496-0Die
- ^ David M. Shackleton; Royal British Columbia Museum (1999). Huftiere von British Columbia . UBC Press. ISBN 978-0-7748-0728-9Die
- Lührs , Mia-Lana; Kappeler, Peter M. (2014). „Polyandrische Paarung in Baumkronen: Wie männliche Konkurrenz und weibliche Partnerwahl ein ungewöhnliches Paarungssystem bei Fleischfressern bestimmen“. Behavioral Ecology and Sociobiology . 68 (6): 879–889 . Bibcode : 2014BEcoS..68..879L . doi : 10.1007/s00265-014-1701-3 . S2CID 7995708 .
- ^ Dixson, A. F. (1995). „Baculumlänge und Kopulationsverhalten bei Fleischfressern und Robben (Grand Order Ferae)“ . Journal of Zoology . 235 (1): 67–76 . Bibcode : 1995JZoo..235...67D . doi : 10.1111/j.1469-7998.1995.tb05128.x . Archiviert (PDF) vom Original am 3. Juni 2016. Abgerufen am 27. August 2020 .
- ^ Tatara, Masaya (1994). „Notes on the breeding ecology and behavior of Japanese martens on Tsushima Islands, Japan“ . Journal of the Mammalogical Society of Japan . 19 (1): 67–74 . Archiviert vom Original am 8. Mai 2022. Abgerufen am 27. Juni 2017 .
- ^ Dixson, Alan F (1987). „ Baculumlänge und Kopulationsverhalten bei Primaten“ . American Journal of Primatology . 13 (1): 51–60 . doi : 10.1002/ajp.1350130107 . PMID 31973483. S2CID 84028737 .
- ^ Møller, AP; Birkhead, TR (1989). „Kopulationsverhalten bei Säugetieren: Hinweise auf weit verbreitete Spermienkonkurrenz“ (PDF) . Biological Journal of the Linnean Society . 38 (2): 119–131 . doi : 10.1111/j.1095-8312.1989.tb01569.x .
- ^ Rogers, David; Chase, Ronald (2001). „Dart receipt promotes sperm storage in the garden snail Helix aspersa“. Behavioral Ecology and Sociobiology . 50 (2): 122–7 . Bibcode : 2001BEcoS..50..122R . doi : 10.1007/s002650100345 . S2CID 813656 .
- Chase , R. (2007). „Die Funktion des Pfeilschießens bei Heliciden-Schnecken“. American Malacological Bulletin . 23 (1): 183–189 . Bibcode : 2007AMalB..23..183C . doi : 10.4003/0740-2783-23.1.183 . S2CID 7562144 .
- Chase , R.; Blanchard, KC (2006). „Der Liebespfeil der Schnecke gibt Schleim ab, um die Vaterschaft zu erhöhen“ . Proceedings of the Royal Society of London B: Biological Sciences . 273 ( 1593): 1471–1475 . Bibcode : 2006PBioS.273.1471C . doi : 10.1098/rspb.2006.3474 . PMC 1560308. PMID 16777740. Archiviert vom Original am 18. November 2010. Abgerufen am 24. August 2017 .
- ^ Newman, Leslie. „Kampf um die Paarung: Penisfechten bei Plattwürmern“ . PBS . Archiviert vom Original am 14. November 2013. Abgerufen am 24. August 2017 .
- ^ a b Veron, JEN (2000). Korallen der Welt. Band 3 (3. Aufl.). Australien: Australian Institute of Marine Sciences und CRR Qld Pty Ltd. ISBN 978-0-642-32236-4Die
- Barnes , R. und Hughes, R. (1999). Einführung in die Meeresökologie (3. Aufl.). Malden, MA: Blackwell Science, Inc. S. 117–141 . ISBN 978-0-86542-834-8Die
- Hatta , M.; Fukami, H.; Wang, W.; Omori, M.; Shimoike, K.; Hayashibara, T.; Ina, Y.; Sugiyama, T. (1999). „Reproduktive und genetische Belege für eine retikuläre Evolutionstheorie massenlaichender Korallen“ . Molecular Biology and Evolution . 16 (11): 1607–1613 . doi : 10.1093/oxfordjournals.molbev.a026073 . PMID 10555292 .
- ^ Davidson, Chris. „Chan Lee Peng, August 2008“ . Scienceray . Scienceray.com. Archiviert vom Original am 1. Februar 2013. Abgerufen am 5. März 2013 .
- ^ a b c „Sexual Appetite and Animal behaviour – Sex and the single spider“ . The Economist . Band 400, Nr. 8742. 14. Juli 2011. Archiviert vom Original am 4. Juni 2013. Abgerufen am 3. Mai 2013 .
- ^ Bel-Venner, Mc; Dray, S; Allainé, D; Menu, F; Venner, S (7. Januar 2008). „Unerwartete Partnerwahl bei Spinnenmännchen“ . Proceedings of the Royal Society B: Biological Sciences . 275 (1630): 77–82 . doi : 10.1098 / rspb.2007.1278 . PMC 2562406. PMID 17956845 .
- Bel -Venner, MC; Venner, S. (1. Juni 2006). „Partnerbewachungsstrategien und Konkurrenzfähigkeit von Männchen bei einer Radnetzspinne: Ergebnisse einer Feldstudie“ . Animal Behaviour . 71 (6): 1315–1322 . Bibcode : 2006AnBeh..71.1315B . doi : 10.1016/j.anbehav.2005.08.010 . ISSN 0003-3472 . S2CID 53195526 .
- ^ Patterson, Nick; Daniel J. Richter; Sante Gnerre; Eric S. Lander; David Reich (29. Juni 2006). „Genetische Hinweise auf eine komplexe Artbildung bei Menschen und Schimpansen“. Nature . 441 ( 7097): 1103–1108 . Bibcode : 2006Natur.441.1103P . doi : 10.1038/nature04789 . ISSN 0028-0836 . PMID 16710306. S2CID 2325560 .
- ^ Wade, Nicholas (18. Mai 2006) Zwei Splits zwischen menschlichen und Schimpansenlinien vorgeschlagen Archiviert am 18. Mai 2022 in der Wayback Machine , New York Times .
- ^ Yamamichi, M.; Gojobori, J.; Innan, H. (Januar 2012). „Eine autosomale Analyse liefert keine genetischen Hinweise auf eine komplexe Artbildung von Menschen und Schimpansen“ . Mol Biol Evol . 29 (1): 145–156 . doi : 10.1093/molbev / msr172 . PMC 3299331. PMID 21903679 .
- ^ Charlesworth D, Willis JH (2009). „ Die Genetik der Inzuchtdepression“. Nature Reviews Genetics . 10 (11): 783–96 . doi : 10.1038/nrg2664 . PMID 19834483. S2CID 771357 .
- ^ Clarke FM, Faulkes CG (1999). „Verwandtenerkennung und Partnerwahl bei weiblichen Nacktmullen Heterocephalus glaber“ . Proc. Biol. Sci . 266 (1432): 1995–2002 . Bibcode : 1999PBioS.266.1995C . doi : 10.1098/ rspb.1999.0877 . PMC 1690316. PMID 10584337 .
- ^ Jiménez JA, Hughes KA , Alaks G, Graham L, Lacy RC (1994). „Eine experimentelle Studie zur Inzuchtdepression in einem natürlichen Lebensraum“. Science . 266 (5183): 271–3 . Bibcode : 1994Sci...266..271J . doi : 10.1126/science.7939661 . PMID 7939661 .
- ^ Sherborne AL, Thom MD, Paterson S, Jury F, Ollier WE, Stockley P, Beynon RJ, Hurst JL (2007). „ Die genetische Grundlage der Inzuchtvermeidung bei Hausmäusen“ . Curr. Biol . 17 (23): 2061–6 . Bibcode : 2007CBio...17.2061S . doi : 10.1016/j.cub.2007.10.041 . PMC 2148465. PMID 17997307 .
- ^ Leclaire S, Nielsen JF, Thavarajah NK, Manser M, Clutton-Brock TH (2013). „Geruchsbasierte Verwandtschaftsunterscheidung beim kooperativ brütenden Erdmännchen“ . Biology Letters . 9 (1) 20121054. Bibcode : 2013BiLet...921054L . doi : 10.1098/rsbl.2012.1054 . PMC 3565530. PMID 23234867 .
- ^ Nielsen JF, English S, Goodall-Copestake WP, Wang J, Walling CA, Bateman AW, Flower TP, Sutcliffe RL, Samson J, Thavarajah NK, Kruuk LE, Clutton-Brock TH, Pemberton JM (2012). „Inzucht und Inzuchtdepression von Merkmalen im frühen Lebensabschnitt bei einem kooperativen Säugetier“. Mol. Ecol . 21 (11): 2788–2804 . Bibcode : 2012MolEc..21.2788N . doi : 10.1111/j.1365-294X.2012.05565.x . hdl : 2263/19269 . PMID: 22497583. S2CID : 36059683 .
- ^ Ishibashi Y, Saitoh T (2008). „Die Rolle der männchenzentrierten Ausbreitung bei der Vermeidung von Inzucht bei der Grauseitenwühlmaus (Myodes rufocanus)“. Mol. Ecol . 17 (22): 4887–96 . Bibcode : 2008MolEc..17.4887I . doi : 10.1111 / j.1365-294X.2008.03969.x . PMID 19140979. S2CID 44992920 .
- ^ Szulkin M, Sheldon BC (2008). „Dispersion as a means of inbreeding avoidance in a wild bird population“ . Proc. Biol. Sci . 275 (1635): 703–11 . doi : 10.1098 / rspb.2007.0989 . PMC 2596843. PMID 18211876 .
- ^ Waldman, B; Rice, JE; Honeycutt, RL (1992). „Verwandtenerkennung und Inzestvermeidung bei Kröten“ . Am. Zool . 32 : 18–30 . doi : 10.1093/icb/32.1.18 .
Bibliographie
- Bagemihl, Bruce (1999). Biologische Exuberanz: Tierhomosexualität und natürliche Vielfalt . St. Martin's Press. ISBN 978-0-312-19239-6Die
- Schaller, GB (1972). Der Löwe der Serengeti . University of Chicago Press. ISBN 978-0-226-73660-0Die
Weiterführende Literatur
- RF Ewer (11. Dezember 2013). Ethologie der Säugetiere . Springer. ISBN 978-1-4899-4656-0Die
- Nadler, Ronald D. (1980). „Reproduktionsphysiologie und -verhalten von Gorillas“. In: Short, R. V.; Weir, Barbara J. (Hrsg.). Die Menschenaffen Afrikas . Bd. Suppl. 28. Cambridge: Journals of Reproduction and Fertility Ltd., S. 59–70 . ISBN 978-0-906545-04-1PMID 6934312 .
{{cite book}}:|journal=ignoriert ( Hilfe ) - Richard Estes (1991). Verhaltensführer für afrikanische Säugetiere: Huftiere, Raubtiere und Primaten . University of California Press. ISBN 978-0-520-08085-0Die
- William F. Perrin, Bernd Wursig, JGM 'Hans' Thewissen (26. Februar 2009). Enzyklopädie der Meeressäugetiere . Academic Press. ISBN 978-0-08-091993-5Die
- Roughgarden, Joan (2013). Evolutionsregenbogen: Vielfalt, Geschlecht und Sexualität in Natur und Mensch . University of California Press. ISBN 978-0-520-28045-8Die
- John Vandenbergh (28. August 1983). Pheromone und Fortpflanzung bei Säugetieren . Elsevier. ISBN 978-0-323-15651-6Die
- Temple Grandin; Mark J. Deesing (22. April 2013). Genetik und Verhalten von Haustieren . Academic Press. ISBN 978-0-12-405508-7Die
- Menna Jones, Chris R. Dickman und Michael Archer (2003). Raubtiere mit Beuteln: Die Biologie fleischfressender Beuteltiere . Csiro Publishing. ISBN 978-0-643-06634-2Die
- Ernst Knobil (2006). Knobil und Neills Physiologie der Fortpflanzung . Gulf Professional Publishing. ISBN 978-0-12-515402-4Die
- Sexualverhalten von Pferden
- Morel, MCGD (2008). Equine Reproduktionsphysiologie, Zucht und Gestütsmanagement . CABI. ISBN 978-1-78064-073-0Die
- D. S. Mills; S. M. McDonnell (10. März 2005). Das Hauspferd: Ursprung, Entwicklung und Management seines Verhaltens . Cambridge University Press. S. 110–. ISBN 978-0-521-89113-4Die
- Jonathan Pycock, Juan C. Samper, Angus O. McKinnon (23. November 2006). Aktuelle Therapien in der Pferdereproduktion (E-Book) . Elsevier Health Sciences. ISBN 978-1-4377-1300-8Die
Externe Links
 Medien zum Thema Sex zwischen verschiedenen Arten auf Wikimedia Commons
- Medien zum Thema Säugetiersex auf Wikimedia Commons
- National Geographic
- Der Zoo von San Francisco hat am Valentinstag eine „Sex-Tour“ zum Thema Tiersexualität veranstaltet .
- Ein wildes und schwules Königreich Weltwissenschaft
- Ist es relevant, das Tierreich zu betrachten, um festzustellen, ob gleichgeschlechtliches Verhalten beim Menschen „natürlich“ ist?