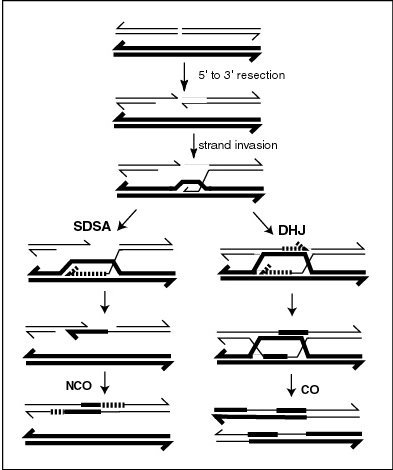
Mitotische Rekombination ist eine Form der genetischen Rekombination , die in somatischen Zellen während ihrer Vorbereitung auf die Mitose sowohl bei sexuell als auch asexuell fortpflanzenden Organismen auftreten kann. Bei asexuellen Organismen ist die Untersuchung der mitotischen Rekombination eine Möglichkeit, genetische Kopplung zu verstehen , da sie die einzige Rekombinationsquelle innerhalb eines Individuums darstellt. [ 1 ] Darüber hinaus kann mitotische Rekombination zur Expression rezessiver Allele in einem ansonsten heterozygoten Individuum führen. Diese Expression hat wichtige Implikationen für die Erforschung der Tumorentstehung und letaler rezessiver Allele. [ 1 ] [ 2 ] Mitotische homologe Rekombination findet hauptsächlich zwischen Schwesterchromatiden nach der Replikation (aber vor der Zellteilung) statt. Homologe Rekombination zwischen Schwesterchromatiden ist normalerweise genetisch stumm. Während der Mitose beträgt die Häufigkeit der Rekombination zwischen nicht-schwesterlichen homologen Chromatiden nur etwa 1 % derjenigen zwischen Schwesterchromatiden. [ 3 ]
Entdeckung
Die Entdeckung der mitotischen Rekombination beruht auf der Beobachtung von Zwillingsflecken bei Drosophila melanogaster . Diese Zwillingsflecken, auch Mosaikflecken genannt, wurden bereits 1925 bei D. melanogaster beobachtet , doch erst 1936 erklärte Curt Stern sie als Folge mitotischer Rekombination. Vor Sterns Arbeit ging man davon aus, dass Zwillingsflecken entstehen, weil bestimmte Gene die Fähigkeit besitzen, das Chromosom, auf dem sie sich befinden, zu eliminieren. [ 4 ] Spätere Experimente klärten auf, wann im Zellzyklus mitotische Rekombination stattfindet und welche Mechanismen ihr zugrunde liegen.

Auftreten
Mitotische Rekombination kann an jedem Genort auftreten, ist aber nur bei Individuen beobachtbar, die an einem bestimmten Genort heterozygot sind. Wenn ein Crossing-over zwischen Nicht-Schwesterchromatiden diesen Genort betrifft, enthält jedes homologe Chromosom ein Chromatid mit jedem Genotyp. Der resultierende Phänotyp der Tochterzellen hängt davon ab, wie sich die Chromosomen in der Metaphasenplatte anordnen . Liegen die Chromatiden mit unterschiedlichen Allelen auf derselben Seite der Platte, erscheinen die Tochterzellen trotz des Crossing-overs heterozygot und sind nicht nachweisbar. Liegen hingegen Chromatiden mit gleichen Allelen auf derselben Seite, sind die Tochterzellen an diesem Genort homozygot. Dies führt zu einer sogenannten Zwillingsfleckenbildung , bei der eine Zelle den homozygot rezessiven und die andere den homozygoten Wildtyp-Phänotyp aufweist. Teilen sich diese Tochterzellen weiter, wachsen die Zwillingsflecken und spiegeln den unterschiedlichen Phänotyp wider.
Die mitotische Rekombination findet während der Interphase statt . Es wird angenommen, dass die Rekombination während der G1-Phase erfolgt, wenn die DNA in ihrer zweisträngigen Phase vorliegt und während der DNA-Synthese repliziert wird. [ 5 ] Es ist auch möglich, dass der DNA-Bruch, der zur mitotischen Rekombination führt, während der G1-Phase auftritt, die Reparatur jedoch erst nach der Replikation erfolgt. [ 6 ] [ 7 ]
Reaktion auf DNA-Schäden
In der Bäckerhefe Saccharomyces cerevisiae führen Mutationen in mehreren Genen, die für die mitotische (und meiotische) Rekombination benötigt werden, zu einer erhöhten Empfindlichkeit gegenüber der Inaktivierung durch Strahlung und/oder genotoxische Chemikalien . [ 8 ] Beispielsweise ist das Gen rad52 sowohl für die mitotische [ 9 ] als auch für die meiotische Rekombination erforderlich. [ 10 ] Rad52 -Mutanten der Hefe zeigen eine erhöhte Empfindlichkeit gegenüber der Abtötung durch Röntgenstrahlen , Methylmethansulfonat und das DNA-vernetzende Agens 8-Methoxypsoralen in Kombination mit UV-Licht. Dies deutet darauf hin, dass die mitotische Rekombinationsreparatur für die Beseitigung der verschiedenen DNA-Schäden, die durch diese Substanzen verursacht werden, notwendig ist.
Mechanismen
Die Mechanismen der mitotischen Rekombination ähneln denen der meiotischen Rekombination. Dazu gehören der Schwesterchromatidenaustausch und Mechanismen der DNA-Doppelstrangbruchreparatur durch homologe Rekombination, wie z. B. Einzelstrang-Annealing , syntheseabhängiges Strang-Annealing ( SDSA ) und Genkonversion über ein Doppel-Holliday-Junction -Intermediat oder SDSA. Darüber hinaus ist nicht-homologe mitotische Rekombination möglich und kann häufig auf nicht-homologe Endverknüpfung zurückgeführt werden . [ 6 ] [ 7 ] [ 11 ] [ 12 ]
Verfahren
Es gibt verschiedene Theorien zum Ablauf des mitotischen Crossing-overs. Im einfachen Crossing-over-Modell überlappen sich die beiden homologen Chromosomen an oder in der Nähe einer gemeinsamen chromosomalen fragilen Stelle (CFS). Dies führt zu einem Doppelstrangbruch [ 13 ] , der anschließend mithilfe eines der beiden Stränge repariert wird. Dadurch können die beiden Chromatiden ihre Plätze tauschen. In einem anderen Modell bilden zwei überlappende Schwesterchromatiden an einer gemeinsamen repetitiven Stelle eine doppelte Holliday-Struktur und werden später so geschert, dass sie ihre Plätze tauschen. In beiden Modellen ist ein gleichmäßiger Austausch der Chromosomen oder gar deren Wiedervereinigung an gegenüberliegenden Seiten nicht garantiert, sodass die meisten Teilungsmuster zu keinem Crossing-over führen. Dieser ungleichmäßige Austausch ist für viele der schädlichen Auswirkungen des mitotischen Crossing-overs verantwortlich.
Alternativ kann es während der DNA-Reparatur zu einem Crossing-over kommen [ 14 ] , wenn aufgrund umfangreicher Schäden das homologe Chromosom anstelle der Schwesterchromatide als Matrize dient. Dies führt zur Gensynthese, da eine Kopie des Allels vom homologen Chromosom kopiert und in die Lücke des beschädigten Chromosoms eingebaut wird. Das Ergebnis ist ein heterozygoter und ein homozygoter Chromosom.
Vor- und Nachteile
Mitotisches Crossing-over tritt bekanntermaßen bei Drosophila melanogaster , einigen asexuell reproduzierenden Pilzen und in normalen menschlichen Zellen auf. Dort kann es dazu führen, dass normalerweise rezessive, krebsverursachende Allele exprimiert werden und die betroffene Zelle somit für die Krebsentstehung prädisponieren . Alternativ kann eine Zelle homozygot für ein Tumorsuppressorgen werden, was zum gleichen Ergebnis führt. [ 2 ] Beispielsweise wird das Bloom-Syndrom durch eine Mutation in der RecQ-Helikase verursacht , die eine Rolle bei der DNA-Replikation und -Reparatur spielt. Diese Mutation führt bei Mäusen zu einer hohen Rate an mitotischer Rekombination, die wiederum für die Tumoranfälligkeit dieser Mäuse verantwortlich ist. [ 15 ] Gleichzeitig kann mitotische Rekombination auch vorteilhaft sein: Sie kann eine wichtige Rolle bei der Reparatur von Doppelstrangbrüchen spielen und für den Organismus von Vorteil sein, wenn homozygot dominante Allele funktionaler sind als der heterozygote Zustand. [ 2 ] Für Experimente mit Genomen in Modellorganismen wie Drosophila melanogaster kann die mitotische Rekombination mittels Röntgenstrahlung und dem FLP-FRT-Rekombinationssystem induziert werden . [ 16 ]
Referenzen
- ^ a b Hartl, Daniel L. und Maryellen Ruvolo (2012). Genetik: Analyse von Genetik und Genomen . Burlington: Jones & Bartlett.
- Tischfield , Jay A. (November 1997). „ Verlust der Heterozygotie oder: Wie ich lernte, mir keine Sorgen mehr zu machen und die mitotische Rekombination zu lieben“ . American Journal of Human Genetics . 61 (5): 995–999 . doi : 10.1086/301617 . PMC 1716040. PMID 9345110 .
- ^ Moynahan ME, Jasin M (2010). „Mitotische homologe Rekombination erhält die genomische Stabilität aufrecht und unterdrückt die Tumorentstehung“ . Nat . Rev. Mol. Cell Biol . 11 (3): 196–207 . doi : 10.1038/nrm2851 . PMC 3261768. PMID 20177395 .
- ^ Stern, Curt (1936). „Somatisches Crossing - Over und Segregation bei Drosophila melanogaster“ . Genetics . 21 (6): 625–730 . doi : 10.1093/genetics/21.6.625 . PMC 1208727. PMID 17246815 .
- ^ Esposito, Michael S. (September 1978). „Nachweis spontaner mitotischer Rekombination im Zwei-Strang-Stadium“ . Proceedings of the National Academy of Sciences of the USA . 75 (9): 4436–4440 . Bibcode : 1978PNAS...75.4436E . doi : 10.1073 / pnas.75.9.4436 . PMC 336130. PMID 360220 .
- ^ a b Lee, Phoebe S.; Greenwell, Patricia W.; Dominska, Margaret; Gawel, Malgorzata; Hamilton, Monica; Petes, Thomas D. (2009). „Eine Feinstrukturkarte spontaner mitotischer Crossover in der Hefe Saccharomyces cerevisiae“ . PLOS Genet . 5 (3) e1000410. doi : 10.1371/ journal.pgen.1000410 . PMC 2646836. PMID 19282969 .
- ^ a b LaFave, MC; J Sekelsky (2009). „Mitotische Rekombination: Warum? Wann? Wie? Wo?“ . PLOS Genet . 5 (3) e1000411. doi : 10.1371/journal.pgen.1000411 . PMC 2648873 . PMID 19282976 .
- ^ Haynes, RH & Kunz, BA (1981). DNA-Reparatur und Mutagenese in Hefe. In: Strathern, J; Jones, E; Broach J. (Hrsg.). Die Molekularbiologie der Hefe Saccharomyces. Lebenszyklus und Vererbung. Cold Spring Harbor, NY, Cold Spring Harbor Laboratory, S. 371–414.
- ^ Malone RE, Esposito RE (1980). „Das RAD52 -Gen ist für die homothallische Interkonversion von Paarungstypen und die spontane mitotische Rekombination in Hefe erforderlich“ . Proc . Natl. Acad. Sci. USA . 77 (1): 503–7 . Bibcode : 1980PNAS...77..503M . doi : 10.1073/pnas.77.1.503 . PMC 348300. PMID 6987653 .
- ^ Game JC, Zamb TJ, Braun RJ, Resnick M, Roth RM (1980). „Die Rolle von Strahlungsgenen (rad) bei der meiotischen Rekombination in Hefe“ . Genetics . 94 ( 1): 51–68 . doi : 10.1093/genetics/94.1.51 . PMC 1214137. PMID 17248996 .
- ^ Helleday, Thomas (2003). „Wege der mitotischen homologen Rekombination in Säugetierzellen“. Mutation Research . 532 ( 1–2 ): 103–115 . Bibcode : 2003MRFMM.532..103H . doi : 10.1016/j.mrfmmm.2003.08.013 . PMID 14643432 .
- ^ Pâques, Frédéric; James E. Haber (1999). „Multiple Wege der Rekombination, induziert durch Doppelstrangbrüche in Saccharomyces cerevisiae “ . Microbiology and Molecular Biology Reviews . 63 (2): 349–404 . doi : 10.1128/MMBR.63.2.349-404.1999 . PMC 98970. PMID 10357855 .
- ^ Helleday, T. (20. November 2018). "Doppelstrangbruchreparatur mittels doppelter Holliday-Verbindungen (Szostak-Modell)" . Animation . MIT.
- ^ Helleday, Thomas (27. November 2003). „Wege der mitotischen homologen Rekombination in Säugetierzellen“ (PDF) . Mutation Research . 532 ( 1–2 ): 103–115 . Bibcode : 2003MRFMM.532..103H . doi : 10.1016/j.mrfmmm.2003.08.013 . PMID 14643432. Archiviert vom Original (PDF) am 24. Mai 2014. Abgerufen am 26. Dezember 2012 .
- ^ Luo, Guangbin; et al. (2000). „Krebsprädisposition durch erhöhte mitotische Rekombination bei Bloom-Mäusen“. Nature Genetics . 26 (4): 424–429 . doi : 10.1038/82548 . PMID 11101838. S2CID 21218975 .
- Xu , T.; Rubin, G. M. (April 1993). „Analyse genetischer Mosaike in sich entwickelnden und adulten Drosophila-Geweben“. Development . 117 (4): 1223–12237 . doi : 10.1242/dev.117.4.1223 . PMID 8404527 .
- Griffiths et al. 1999. Moderne genetische Analyse . WH Freeman and Company.