Mosasaurus ( / ˌ m oʊ z ə ˈ s ɔːr ə s / ; „Echse der Maas “) ist die Typusgattung (das definierende Beispiel) der Mosasauridae , einer ausgestorbenen Gruppe aquatischer Schuppenkriechtiere . Sie lebte vor etwa 82 bis 66 Millionen Jahren während des Campaniums und Maastrichtiums der Oberkreide . Die Gattung war eines der ersten mesozoischen Meeresreptilien, die der Wissenschaft bekannt wurden – die ersten Fossilien von Mosasaurus wurden Ende des 18. Jahrhunderts als Schädel in einem Kreidebruch nahe der niederländischen Stadt Maastricht gefunden und zunächst für Krokodile oder Wale gehalten. Ein 1778 entdeckter Schädel erhielt den berühmten Beinamen „das große Tier von Maastricht“. Im Jahr 1808 kam der Naturforscher Georges Cuvier zu dem Schluss, dass es sich um eine riesige Meeresechse handelte, die Ähnlichkeiten mit Waranen aufwies , ansonsten aber keinem bekannten lebenden Tier ähnelte. Diese Erkenntnis war damals revolutionär und trug zur Untermauerung der aufkommenden Theorien über das Aussterben von Arten bei . Cuvier selbst gab dem Tier keinen wissenschaftlichen Namen; dies tat William Daniel Conybeare im Jahr 1822, indem er es Mosasaurus nannte,in Anlehnung an seinen Fundort in Fossilienablagerungen nahe der Maas. Die genaue Verwandtschaft des Mosasaurus innerhalb der Schuppenkriechtiere ist weiterhin umstritten, und Wissenschaftler diskutieren nach wie vor, ob seine nächsten lebenden Verwandten Warane oder Schlangen sind .
Die größte Art, M. hoffmannii , erreichte schätzungsweise eine maximale Länge von bis zu 12 Metern. Der Schädel des Mosasaurus besaß robuste Kiefer und kräftige Muskeln, die mit Dutzenden großer, zum Zerteilen von Beute angepasster Zähne kraftvolle Bisse ermöglichten . Seine vier Gliedmaßen waren paddelförmig, um das Tier unter Wasser zu steuern. Der Schwanz war lang und endete in einer nach unten gebogenen, paddelartigen Schwanzflosse. Der Mosasaurus besaß ein ausgezeichnetes Sehvermögen, um seinen schwachen Geruchssinn auszugleichen, und einen hohen Stoffwechsel, was darauf hindeutet, dass er endotherm („warmblütig“) war – eine Anpassung, die bei Schuppenkriechtieren nur bei Mosasauriern vorkommt. Es gibt eine beträchtliche morphologische Variabilität innerhalb der derzeit anerkannten Mosasaurus -Arten – vom robust gebauten M. hoffmannii bis zum schlanken und schlangenartigen M. lemonnieri –, doch eine unklare Diagnose (Beschreibung der Unterscheidungsmerkmale) der Typusart M. hoffmannii führte zu einer historisch problematischen Klassifizierung. Infolgedessen wurden in der Vergangenheit mehr als fünfzig Arten der Gattung zugeordnet. Eine Neubeschreibung des Typusexemplars im Jahr 2017 trug zur Klärung der taxonomischen Frage bei und bestätigte die Zugehörigkeit von mindestens fünf Arten zur Gattung. Fünf weitere Arten, die nominell noch zu Mosasaurus gezählt werden , sollen neu bewertet werden.
Fossilienfunde deuten darauf hin, dass der Mosasaurus weite Teile des Atlantischen Ozeans und der angrenzenden Meeresgebiete bewohnte. Mosasaurus- Fossilien wurden in Nord- und Südamerika, Europa, Afrika, Westasien und der Antarktis gefunden. Seine Verbreitung umfasste ein breites Spektrum an Meeresklimata, darunter tropische, subtropische, gemäßigte und subpolare. Der Mosasaurus war ein häufiges großes Raubtier in diesen Ozeanen und stand an der Spitze der Nahrungskette . Paläontologen gehen davon aus, dass seine Nahrung praktisch alle Tiere umfasste; er jagte wahrscheinlich Knochenfische, Haie, Kopffüßer , Vögel und andere Meeresreptilien, darunter Meeresschildkröten und andere Mosasaurier. Vermutlich jagte er bevorzugt im offenen Wasser nahe der Oberfläche. Aus ökologischer Sicht hatte der Mosasaurus wahrscheinlich einen tiefgreifenden Einfluss auf die Strukturierung mariner Ökosysteme; sein Auftreten an einigen Orten, wie beispielsweise im Western Interior Seaway in Nordamerika, fällt mit einem vollständigen Wandel der Tierarten und der Artenvielfalt zusammen. Der Mosasaurus stand in Konkurrenz zu anderen großen Raubsauriern wie Prognathodon und Tylosaurus , die ähnliche Beutetiere jagten. Durch die Aufteilung ihrer ökologischen Nischen konnten sie jedoch im selben Ökosystem koexistieren . Konflikte gab es dennoch, wie ein dokumentierter Fall eines Tylosaurus- Angriffs auf einen Mosasaurus belegt. Mehrere Fossilien dokumentieren gezielte Angriffe von Artgenossen auf Mosasaurus . Die Kämpfe fanden vermutlich in Form von Schnauzenringen statt, ähnlich wie bei heutigen Krokodilen.
Forschungsgeschichte
Entdeckung und Identifizierung

Das erste der Wissenschaft bekannte Mosasaurus- Fossil wurde 1764 in einem Kreidebruch bei Maastricht in den Niederlanden entdeckt. Es handelte sich um einen Schädel, der zunächst für einen Wal gehalten wurde . [ 11 ] Dieses Exemplar, katalogisiert als TM 7424, ist heute im Teylers Museum in Haarlem ausgestellt . [ 12 ] [ 13 ] [ 14 ] Später, im Jahr 1778, [ a ] förderte der Steinbruch einen zweiten Schädel zutage, der die Aufmerksamkeit von Johann Leonard Hoffmann erregte , der ihn für ein Krokodil hielt . Er kontaktierte daraufhin Petrus Camper , und der Schädel erlangte internationale Aufmerksamkeit, nachdem Camper ihn 1786 in einer Studie als Wal identifiziert hatte. [ 13 ] [ 16 ] [ 17 ] Dies weckte das Interesse französischer Revolutionäre , die das Fossil nach der Belagerung von Maastricht während der Revolutionskriege 1794 plünderten. Nach der Beschlagnahmung wurde das Exemplar 1795 an das Nationale Naturhistorische Museum in Frankreich geschickt und später unter der Signatur MNHN AC 9648 registriert. [ 17 ] [ 14 ] In einem Bericht von Barthélemy Faujas de Saint-Fond aus dem Jahr 1799 wird behauptet, der Schädel sei von zwölf Grenadieren im Tausch gegen 600 Flaschen Wein geborgen worden. [ 18 ] Diese Geschichte trug zur kulturellen Berühmtheit des Fossils bei, doch Historiker sind sich einig, dass die Erzählung übertrieben ist. [ 17 ] [ 14 ]


Um 1800 kam Campers Sohn Adriaan Gilles Camper zu dem Schluss, dass der zweite Schädel, der inzwischen den Beinamen „großes Tier von Maastricht“ trug, zu einem Meeresreptil gehörte , das Ähnlichkeiten mit Waranen aufwies. [ 19 ] Diese Interpretation wurde von Georges Cuvier in einer detaillierteren, 1808 veröffentlichten Studie bestätigt. Darin stellte er jedoch fest, dass es sich um eine ausgestorbene Form handelte, die keinem bekannten lebenden Saurier entsprach . [ 20 ] [ 12 ] [ 13 ] Der Schädel wurde Teil von Cuviers ersten Überlegungen zum Konzept des Aussterbens , die später zu seiner Theorie des Katastrophismus führten , einem Vorläufer der Evolutionstheorie . Damals glaubte man nicht, dass eine Art aussterben könne, und Tierfossilien wurden oft als Überreste einer noch existierenden Art interpretiert. [ 21 ] Cuviers Idee, dass es ein Tier gäbe, das anders sei als alle heute existierenden, war zu seiner Zeit revolutionär, und 1812 verkündete er:
Die genaue Bestimmung des berühmten Tieres aus Maastricht erscheint uns vor allem für die Theorie der zoologischen Gesetze ebenso wichtig wie für die Geschichte der Erde.
In einem 1822 erschienenen Buch von James Parkinson prägte William Daniel Conybeare den Gattungsnamen Mosasaurus. Er leitet sich vom lateinischen Wort Mosa („ Maas “) und dem altgriechischen σαῦρος ( saûros , „Echse“) ab und bezog sich damit auf den Fluss, in dessen Nähe die Fossilien entdeckt wurden. [ 22 ] [ 12 ] [ 23 ] 1829 fügte Gideon Mantell das Artepitheton hoffmannii zu Ehren von Hoffmann hinzu. [ 24 ] [ b ] Später wurde der zweite Schädel als Holotypus (definierendes Exemplar) der neuen Art festgelegt. [ 25 ] [ 5 ]
Spätere Entdeckungen und andere Arten

Im Jahr 1804 entdeckte die Lewis-und-Clark-Expedition am Ufer des Missouri ein heute verschollenes Fossilskelett , das als das eines 15 Meter langen Fisches identifiziert wurde. [ 26 ] [ 27 ] Richard Ellis vermutete 2003, dass dies die früheste Entdeckung der zweiten Art, M. missouriensis , gewesen sein könnte , [ 28 ] obwohl es auch andere Vermutungen gibt. [ 29 ] Im Jahr 1818 wurde ein Fossil aus Monmouth County, New Jersey, als erstes nordamerikanisches Exemplar von Wissenschaftlern der damaligen Zeit korrekt als Mosasaurus erkannt . [ c ] [ 30 ]
Das Typusexemplar von M. missouriensis wurde 1834 von Richard Harlan anhand eines Schnauzenfragments beschrieben, das in der Nähe der Big Bend des Mississippi in South Dakota gefunden wurde . [ 27 ] In Anlehnung an den Fundort im Fluss prägte er das Art-Epitheton und ordnete es zunächst der Gattung Ichthyosaurus zu [ 34 ] , später jedoch dem Amphibium Batrachiosaurus . [ 35 ] Der Rest des Schädels war zuvor von einem Pelzjäger entdeckt worden und gelangte zwischen 1832 und 1834 in den Besitz von Prinz Maximilian von Weid-Neuwied. Der fossile Schädel, heute unter der Katalognummer RFWUIP 1327 geführt, [ 8 ] wurde Georg August Goldfuss in Bonn zu Forschungszwecken übergeben, der 1845 eine Studie darüber veröffentlichte. [ 36 ] Im selben Jahr vermutete Christian Erich Hermann von Meyer , dass der Schädel und Harlans Schnauze zu ein und demselben Individuum gehörten. [ 37 ] Obwohl die Schnauze damals als verloren galt, [ 27 ] stellte Joseph Leidy 1857 nach diesem Vorschlag die neue Kombination M. missouriensis auf, [ 38 ] die seither allgemein gebräuchlich ist. [ 33 ] : 79 Die Schnauze wurde schließlich 2004 in den Sammlungen des MNHN unter der Katalognummer MNHN 9587 gefunden, was den anfänglichen Verdacht von von Meyer und anderen Autoren bestätigte. [ 8 ] [ 9 ] [ 27 ]
M. conodon wurde 1881 von Edward Drinker Cope indirekt erstmals beschrieben, basierend auf einem fragmentarischen Skelett, das in New Jersey entdeckt und heute unter der Katalognummer AMNH 1380 geführt wird. [ 39 ] [ 40 ] : 132–133 [ 10 ] Aufgrund der grazilen Morphologie der darin enthaltenen Fossilien hielt Cope diese Überreste für eine neue, große Art der Gattung Clidastes , die er Clidastes conodon nannte . [ 39 ] Diese Zuordnung blieb bis 1966 in Gebrauch, als Donald Baird und Gerard R. Case die Art aufgrund einer damals unveröffentlichten Interpretation von Dale A. Russell [ 41 ] [ 33 ] : 119 in die Gattung Mosasaurus überführten . Russell bestätigte diese Interpretation später in seiner im darauffolgenden Jahr erschienenen Monographie. [ 40 ] : 132–135 Obwohl Cope die Etymologie des Art-Epithetons conodon nicht angab , wird vermutet, dass es sich um ein Kofferwort mit der Bedeutung „konischer Zahn“ handeln könnte, abgeleitet vom Altgriechischen κῶνος ( kônos , „Kegel“) und ὀδών ( odṓn , „Zahn“), wahrscheinlich in Bezug auf die kegelförmigen, glatten Zähne der Art. [ 23 ]


M. lemonnieri wurde 1889 von Louis Dollo anhand eines relativ vollständigen Schädels erstmals beschrieben, der in einem Steinbruch der Firma Solvay SA im Ciply-Becken bei Mesvin , Belgien , entdeckt worden war . [ 42 ] Dieser Schädel, der seither die Nummer IRSNB R28 trägt, [ 43 ] ist eines der vielen Fossilien, die der damalige Direktor des Unternehmens, Alfred Lemonnier, gestiftet hatte. Dollo benannte die Art ihm zu Ehren. [ 42 ] [ 23 ] Weitere Ausgrabungen im Steinbruch in den folgenden Jahren brachten viele weitere gut erhaltene Fossilien zutage, darunter mehrere Teilskelette, die zusammen fast das gesamte Skelett der Art repräsentierten. Sie wurden von Dollo in späteren Publikationen beschrieben. [ 43 ] [ 33 ] : 136 Obwohl M. lemonnieri zu den anatomisch am besten dokumentierten Arten zählt, wurde sie in der wissenschaftlichen Literatur weitgehend ignoriert. Theagarten Lingham-Soliar nannte zwei Gründe für diese Vernachlässigung. Erstens sind Fossilien von M. lemonnieri häufig in Belgien und den Niederlanden bekannt, was trotz der berühmten Entdeckung des Holotyps von M. hoffmannii bei Mosasaurier-Paläontologen wenig Beachtung fand. Zweitens wurde die Art von der bekannteren und geschichtlich reichhaltigeren Typusart überschattet . [ 43 ]
M. lemonnieri ist ein umstrittenes Taxon, und es besteht Uneinigkeit darüber, ob es sich um eine eigenständige Art handelt. [ 44 ] 1967 argumentierte Russell, dass M. lemonnieri und M. conodon dieselbe Art seien und bezeichnete erstere gemäß dem Prioritätsprinzip als jüngeres Synonym . [ 40 ] : 132–135 In einer Studie aus dem Jahr 2000 widerlegte Lingham-Soliar dies anhand einer umfassenden Untersuchung existierender M. lemonnieri- Exemplare [ 43 ] , was durch eine Studie am Schädel von M. conodon von Takehito Ikejiri und Spencer G. Lucas im Jahr 2015 bestätigt wurde. [ 10 ] 2004 schlugen Eric Mulder, Dirk Cornelissen und Louis Verding vor, dass M. lemonnieri eine juvenile Form von M. hoffmannii sein könnte , da signifikante Unterschiede durch altersbedingte Variationen erklärt werden könnten. [ 45 ] Es wurde jedoch der Bedarf an weiterer Forschung zur Bestätigung etwaiger Synonymiehypothesen geäußert. [ 44 ] [ 46 ]
M. beaugei wurde 1952 von Camille Arambourg im Rahmen eines seit 1934 laufenden großangelegten Forschungsprogramms zu den Phosphatvorkommen Marokkos benannt. Die Art wurde zunächst anhand von neun isolierten Zähnen beschrieben, die in den Phosphatbecken von Oulad Abdoun und Ganntour entdeckt worden waren . Die Beschreibung wurde Alfred Beaugé gewidmet, dem damaligen Generaldirektor der OCP-Gruppe , der Arambourgs Forschung unterstützt hatte. [ 47 ] [ 48 ] Der Holotypus-Zahn trägt die Nummer MNHN PMC 7. Im Jahr 2004 untersuchten Nathalie Bardet und Kollegen Arambourgs Originalmaterial erneut und kamen zu dem Schluss, dass nur drei dieser Zähne mit Sicherheit M. beaugei zugeordnet werden konnten . Sie beschrieben außerdem weitere Fossilien der Art, darunter zwei relativ gut erhaltene Schädel aus dem Oulad-Abdoun-Becken. [ 49 ]
Frühe Darstellungen

Wissenschaftler des frühen und mittleren 19. Jahrhunderts stellten sich den Mosasaurus zunächst als amphibisches Meeresreptil mit Schwimmhäuten an Füßen und Gliedmaßen zum Laufen vor . Diese Annahme basierte auf Fossilien wie dem Holotypus von M. missouriensis , der eine elastische Wirbelsäule aufwies. Goldfuss interpretierte dies 1845 als Beweis für die Fähigkeit zu laufen und deutete einige Phalangen als Krallen. [ 36 ] 1854 bewies Hermann Schlegel , dass der Mosasaurus tatsächlich vollständig an das Wasserleben angepasste Flossen besaß. Er stellte klar, dass frühere Interpretationen von Krallen fehlerhaft waren und zeigte, dass die Phalangen keinerlei Anzeichen für Muskel- oder Sehnenansätze aufweisen, was das Laufen unmöglich gemacht hätte. Sie sind zudem breit, flach und bilden eine Art Paddel. [ 50 ] [ 51 ] Schlegels Hypothese wurde von zeitgenössischen Wissenschaftlern weitgehend ignoriert, fand aber in den 1870er Jahren breite Akzeptanz, als Othniel Charles Marsh und Cope in Nordamerika vollständigere Mosasaurier-Fossilien entdeckten. [ 13 ] [ 51 ]
Eine der frühesten Darstellungen des Mosasaurus in der Paläokunst ist eine lebensgroße Betonskulptur von Benjamin Waterhouse Hawkins [ 52 ], die zwischen 1852 und 1854 [ 53 ] als Teil der Sammlung prähistorischer Tierskulpturen im Crystal Palace Park in London entstand . Die Rekonstruktion basierte hauptsächlich auf Richard Owens Interpretation des Holotyps von M. hoffmannii und der Anatomie von Waranen. Hawkins stellte das Tier daher im Wesentlichen als einen im Wasser lebenden Waran dar. Es erhielt einen kastenförmigen Kopf, seitlich am Schädel liegende Nasenlöcher, große Weichteilmengen um die Augen, an Warane erinnernde Lippen , Schuppen, die denen großer Warane wie des Komodowarans ähneln , und eine Flosse. Das Modell wurde bewusst unvollständig gestaltet, was laut Mark Witton wahrscheinlich Zeit und Geld sparte. Viele Elemente der Skulptur können selbst für die damalige Zeit als ungenau gelten. Dabei wurde Golduss' Studie von 1845 über M. missouriensis nicht berücksichtigt, die stattdessen einen schmaleren Schädel, Nasenlöcher am oberen Schädelrand und amphibische, terrestrische Gliedmaßen vorschrieb (letzteres entspricht nicht den heutigen Standards [ 52 ] ). [ 36 ]
Beschreibung

Der Mosasaurus war ein abgeleiteter Mosasaurier, ein spätes Mitglied mit fortgeschrittenen evolutionären Merkmalen wie einer vollständig aquatischen Lebensweise. Er besaß einen stromlinienförmigen Körper, einen verlängerten Schwanz mit einer nach unten gebogenen Schwanzflosse, an der eine zweilappige Flosse saß, und zwei Paar Flossen. Während abgeleitete Mosasaurier früher als riesige, flossenbewehrte Seeschlangen dargestellt wurden, weiß man heute, dass sie durch konvergente Evolution eher anderen großen Meereswirbeltieren wie Ichthyosauriern, marinen Krokodilartigen und Urwalen ähnelten . [ 54 ] [ 55 ] [ 56 ]
Größe

Die Typusart, M. hoffmannii , ist eines der größten bekannten Meeresreptilien [ 25 , 57 ], obwohl die Kenntnisse über ihr Skelett unvollständig sind, da es hauptsächlich durch Schädelfunde bekannt ist [ 33 : 100 ]. Russell (1967) schrieb, dass die Kieferlänge bei dieser Art einem Zehntel der Körperlänge entsprach [ 40 : 210 ] . Basierend auf diesem Verhältnis nutzte Grigoriev (2014) den größten M. hoffmannii zugeschriebenen Unterkiefer (CCMGE 10/2469, auch bekannt als das Penza- Exemplar; 171 Zentimeter lang), um eine maximale Länge von 17,1 Metern zu schätzen. [ 57 ] Anhand eines kleineren Teilkiefers ( NHMM 009002) von 90 cm (35 Zoll), dessen Gesamtlänge zuverlässig auf 160 cm (63 Zoll) geschätzt wurde, ermittelte Lingham-Soliar (1995) mit demselben Verhältnis eine größere Maximallänge von 17,6 m (58 Fuß). [ d ] [ 25 ] Russell (1967) lieferte keine explizite Begründung für das Verhältnis 1:10, und Cleary et al. (2018) halten es für wahrscheinlich überschätzt. [ 58 ] Federico Fanti und Kollegen argumentierten 2014 alternativ, dass die Gesamtlänge von M. hoffmannii eher dem Siebenfachen der Schädellänge entspräche. Diese Annahme basierte auf einem nahezu vollständigen Skelett der verwandten Art Prognathodon overtoni . Die Studie schätzte, dass ein M. hoffmannii- Individuum mit einem Schädel von mehr als 145 cm Länge eine Länge von bis zu 11 Metern und ein Körpergewicht von 10 Tonnen erreicht haben könnte. [ 59 ] Unter Verwendung desselben Verhältnisses berechneten Gayford et al. (2024) die Gesamtlänge des Penza-Exemplars auf 12 Meter. [ 60 ]

Einzelne Knochen deuten darauf hin, dass einige Exemplare von M. hoffmannii die Länge des Penza-Exemplars übertroffen haben könnten. Ein solcher Knochen ist ein Quadratbein (NHMM 003892), das 150 % größer als der Durchschnitt ist. Everhart et al. berichteten 2016, dass sich daraus eine Länge von etwa 18 Metern (59 Fuß) ableiten lässt. Es wurde nicht erwähnt, ob sie Russells Verhältnis von 1967 [ 61 ] anwendeten, obwohl Gayford et al. (2024) dies für wahrscheinlich hielten. [ 60 ]
M. missouriensis und M. lemonnieri sind kleiner als M. hoffmannii , aber durch vollständigere Fossilien bekannt. [ 5 ] Basierend auf Messungen verschiedener belgischer Skelette schätzte Dollo die Länge von M. lemonnieri auf etwa 7 bis 10 Meter. [ 62 ] [ 40 ] : 210 Er maß auch die Abmessungen von IRSNB 3119 und stellte fest, dass der Schädel etwa ein Elftel des gesamten Körpers ausmachte. [ 62 ] Polcyn et al. (2014) schätzten, dass M. missouriensis bis zu 8–9 Meter lang geworden sein könnte. [ 63 ] [ 64 ] Street (2016) bemerkte, dass große M. missouriensis- Individuen typischerweise Schädel mit einer Länge von über einem Meter aufwiesen. [ 33 ] : 288 Ein nahezu vollständiges Skelett von M. missouriensis soll eine Gesamtlänge von 6,5 Metern (21 Fuß) und einen Schädel von fast einem Meter (3,3 Fuß) Länge aufweisen. [ 65 ] Basierend auf eigenen Beobachtungen verschiedener unveröffentlichter Fossilien aus Marokko schätzten Bardet et al. (2015), dass M. beaugei eine Gesamtlänge von 8–10 Metern (26–33 Fuß) erreichte, wobei der Schädel typischerweise etwa einen Meter (3,3 Fuß) lang war. [ 66 ] Mit einem zugeordneten Schädel von 97,7 Zentimetern (38,5 Zoll) Länge gilt M. conodon als kleiner bis mittelgroßer Vertreter der Gattung. [ 10 ]
Schädel

Der Schädel des Mosasaurus ist kegelförmig und verjüngt sich zu einer kurzen Schnauze , die etwas über die vordersten Zähne hinausragt. [ 5 ] [ 25 ] Bei M. hoffmannii ist diese Schnauze stumpf, [ 5 ] während sie bei M. lemonnieri spitz zuläuft. [ 43 ] Oberhalb des Zahnfleischrandes verläuft in beiden Kiefern eine Reihe kleiner Gruben, die Foramina genannt werden und parallel zur Kieferlinie verlaufen. Sie dienen der Aufnahme der Endäste der Kiefernerven. Die Foramina entlang der Schnauze bilden ein ähnliches Muster wie die Foramina in den Schädeln von Clidastes . [ 25 ] Die Oberkiefer sind bei den meisten Arten kräftig gebaut, breit und tief, außer bei M. conodon , wo sie schlank sind. [ 10 ] Diese Unterschiede spiegeln sich auch im Dentale , dem Unterkieferknochen, wider, [ 43 ] obwohl alle Arten ein langes und gerades Dentale gemeinsam haben. Bei M. hoffmannii ist der obere Rand des Unterkiefers leicht nach oben gebogen; [ 5 ] dies trifft auch auf die größten Exemplare von M. lemonnieri zu , obwohl typischere Schädel dieser Art eine nahezu perfekt gerade Kieferlinie aufweisen. [ 43 ] Der Prämaxillarbogen [ e ], der lange Abschnitt des Prämaxillarknochens, der sich hinter den Prämaxillarzähnen erstreckt, ist schmal und verengt sich bei M. hoffmannii [ 25 ] und M. lemonnieri [ 43 ] in der Mitte , wie bei typischen Mosasauriern. [ 8 ] Bei M. missouriensis ist der Bogen robust und verengt sich nicht. [ 8 ] Die äußeren Nasenöffnungen sind mittelgroß und messen bei M. hoffmannii etwa 21–24 % der Schädellänge . Sie liegen weiter hinten am Schädel als bei fast allen anderen Mosasauriern (nur Goronyosaurus ist noch weiter entfernt ) und beginnen oberhalb des vierten oder fünften Oberkieferzahns. [ 25 ] Daher fehlt den hinteren Abschnitten des Oberkiefers (des wichtigsten zahntragenden Knochens des Oberkiefers) die dorsale Vertiefung, die bei typischen Mosasauriern die Nasenlöcher aufnehmen würde. [ 5 ]


Der Gaumen , bestehend aus den Flügelbeinen, dem Gaumenbein und benachbarten Knochenfortsätzen , ist dicht angeordnet, um eine hohe Schädelstabilität zu gewährleisten. Das Neurocranium beherbergte ein Gehirn, das im Vergleich zu anderen Mosasauriern schmal und relativ klein war. So bot beispielsweise der Hirnschädel des Mosasauriers Plioplatecarpus marshi Platz für ein etwa doppelt so großes Gehirn wie der von M. hoffmannii, obwohl er nur halb so lang war. Die Hohlräume im Hirnschädel für den Okzipitallappen und die Großhirnhemisphäre sind schmal und flach, was darauf hindeutet, dass diese Hirnregionen relativ klein waren. Das Scheitelbeinloch (Foramen parietale ) des Mosasaurus , das mit dem Scheitelauge in Verbindung steht , ist das kleinste aller Mosasauriden . [ 25 ] Das Quadratbein, das den Unterkiefer mit dem restlichen Schädel verband und das Kiefergelenk bildete, ist hoch und annähernd rechteckig geformt und unterscheidet sich damit von den runderen Quadratbeinen typischer Mosasaurier. [ 5 ] Im Quadratbein befanden sich auch die Hörstrukturen ; das Trommelfell lag in einer runden, konkaven Vertiefung der Außenfläche, der sogenannten Paukenflügel. [ 67 ] Die Luftröhre erstreckte sich wahrscheinlich von der Speiseröhre bis unterhalb des hinteren Endes des Processus coronoideus des Unterkiefers , wo sie sich in kleinere Bronchienpaare aufteilte, die parallel zueinander verliefen. [ 9 ]
Zähne

Die Zähne von Mosasaurus weisen je nach Art unterschiedliche Merkmale auf. Zu den gemeinsamen Merkmalen zählen jedoch eine auf das Zerkleinern von Beute spezialisierte Form, stark prismatische Oberflächen (der Zahnschmelzumfang wird durch flache Seiten, sogenannte Prismen, geformt) und zwei gegenüberliegende Schneidekanten. [ 10 ] [ 49 ] [ 68 ] [ 69 ] Die Zähne von Mosasaurus sind groß und robust, mit Ausnahme derer von M. conodon und M. lemonnieri , die schlankere Zähne besitzen. [ 10 ] [ 49 ] Die Schneidekanten von Mosasaurus unterscheiden sich je nach Art. Die Schneidekanten von M. hoffmannii und M. missouriensis sind fein gesägt, [ 5 ] [ 8 ] während bei M. conodon und M. lemonnieri keine Sägezähne vorhanden sind. [ f ] [ 46 ] Die Schneidekanten von M. beaugei sind weder gesägt noch glatt, sondern weisen winzige Falten, sogenannte Kerben, auf. [ 49 ] Die Anzahl der Prismen in den Zähnen von Mosasaurus kann je nach Zahntyp leicht variieren, und die allgemeinen Muster unterscheiden sich zwischen den Arten [ g ] – M. hoffmannii hatte zwei bis drei Prismen auf der Labialseite (der den Lippen zugewandten Seite) und keine Prismen auf der Lingualseite (der der Zunge zugewandten Seite), M. missouriensis hatte vier bis sechs Labialprismen und acht Lingualprismen, M. lemonnieri hatte acht bis zehn Labialprismen und M. beaugei hatte drei bis fünf Labialprismen und acht bis neun Lingualprismen. [ 49 ]

Wie alle Mosasaurier besaß auch der Mosasaurus vier Zahntypen, die anhand der Kieferknochen, an denen sie sich befanden, klassifiziert wurden. Im Oberkiefer gab es drei Typen: die Prämaxillarzähne, die Maxillarzähne und die Pterygoidzähne. Im Unterkiefer war nur ein Typ vorhanden, die Dentalzähne. In jeder Kieferreihe, von vorn nach hinten, hatte der Mosasaurus im Oberkiefer zwei Prämaxillarzähne, zwölf bis sechzehn Maxillarzähne und acht bis sechzehn Pterygoidzähne sowie im Unterkiefer vierzehn bis siebzehn Dentalzähne. Die Zähne waren in Größe und Form weitgehend einheitlich, mit nur geringfügigen Unterschieden innerhalb der Kiefer ( homodont ), mit Ausnahme der kleineren Pterygoidzähne. [ 9 ] [ 10 ] [ 49 ] [ 70 ] Die Anzahl der Zähne in den Oberkiefern, Flügelbeinen und Unterkiefern variiert zwischen den Arten und manchmal sogar zwischen den Individuen – M. hoffmannii hatte vierzehn bis sechzehn Oberkieferzähne, vierzehn bis fünfzehn Unterkieferzähne und acht Flügelbeinzähne; [ 10 ] [ 57 ] [ 25 ] M. missouriensis hatte vierzehn bis fünfzehn Oberkieferzähne, vierzehn bis fünfzehn Unterkieferzähne und acht bis neun Flügelbeinzähne; [ 9 ] [ 49 ] [ 71 ] M. conodon hatte vierzehn bis fünfzehn Oberkieferzähne, sechzehn bis siebzehn Unterkieferzähne und acht Flügelbeinzähne; [ 10 ] [ 49 ] M. lemonnieri besaß fünfzehn Oberkieferzähne, vierzehn bis siebzehn Unterkieferzähne und elf bis zwölf Flügelzähne; [ 43 ] [ 10 ] [ 49 ] und M. beaugei besaß zwölf bis dreizehn Oberkieferzähne, vierzehn bis sechzehn Unterkieferzähne und sechs oder mehr Flügelzähne. [ 49 ] Ein nicht näher bestimmtes Exemplar eines Mosasaurus, ähnlich M. conodon, aus dem Pembina Gorge State Recreation Area in North Dakota wies eine ungewöhnliche Anzahl von sechzehn Flügelzähnen auf, weit mehr als bei bekannten Arten. [ 70 ]
Das Gebiss war thekodont (die Zahnwurzeln waren tief im Kieferknochen verankert). Die Zähne wurden ständig ausgetauscht, wobei sich der Ersatzzahn in der Wurzel des ursprünglichen Zahns entwickelte und diesen dann aus dem Kiefer schob. [ 72 ] Chemische Untersuchungen an einem Oberkieferzahn von M. hoffmannii ergaben eine durchschnittliche Ablagerungsrate von Odontoblasten (den für die Dentinbildung verantwortlichen Zellen) von 10,9 Mikrometern (0,00043 Zoll) pro Tag. Dies wurde durch Beobachtung der von-Ebner-Linien , der sich täglich bildenden Zuwachsspuren im Dentin, ermittelt. Es wurde geschätzt, dass die Odontoblasten etwa 511 Tage und das Dentin etwa 233 Tage benötigten, um den im Zahn beobachteten Entwicklungsstand zu erreichen. [ h ] [ 73 ]
Postkraniales Skelett

Eines der vollständigsten Mosasaurus- Skelette hinsichtlich der Wirbeldarstellung ( Mosasaurus sp.; SDSM 452) [ 10 ] weist sieben Halswirbel , 38 Rückenwirbel (einschließlich Brust- und Lendenwirbel ) und acht Pygalwirbel (vordere Schwanzwirbel ohne Hämalbögen) auf, gefolgt von 68 Schwanzwirbeln . Alle Mosasaurus -Arten besitzen sieben Halswirbel, die Anzahl der übrigen Wirbel variiert jedoch. Verschiedene Teilskelette von M. conodon , M. hoffmannii und M. missouriensis deuten darauf hin, dass M. conodon wahrscheinlich bis zu 36 Rückenwirbel und neun Pygalwirbel besaß. M. hoffmannii besaß vermutlich bis zu 32 Rückenwirbel und zehn Nebenwirbel; [ i ] [ 10 ] [ 43 ] und M. missouriensis etwa 33 Rückenwirbel, elf Nebenwirbel und mindestens 79 Schwanzwirbel. M. lemonnieri wies die meisten Wirbel innerhalb der Gattung auf, mit bis zu 40 Rückenwirbeln, 22 Nebenwirbeln und 90 Schwanzwirbeln. [ 43 ] [ 33 ] : 155 Im Vergleich zu anderen Mosasauriern ist der Brustkorb des Mosasaurus ungewöhnlich tief und bildet einen nahezu perfekten Halbkreis, wodurch er eine tonnenförmige Brustform erhält. Anstatt miteinander verwachsen zu sein, verband vermutlich ausgedehnter Knorpel die Rippen mit dem Brustbein , was die Atmung und die Kompression in tieferen Gewässern erleichtert haben dürfte. [ 25 ] Die Knochenstruktur ist nahezu identisch mit der von modernen Walen, was darauf hindeutet, dass der Mosasaurus über eine hohe Anpassungsfähigkeit an das Leben im Wasser und einen neutralen Auftrieb wie bei Walen verfügte. [ 56 ]

Die Schwanzstruktur des Mosasaurus ähnelt der von Verwandten wie Prognathodon , bei denen Weichteilgewebe auf einen zweilappigen Schwanz hindeutet. [ 74 ] Die Schwanzwirbel verkürzen sich im Bereich der Schwanzmitte allmählich und verlängern sich dahinter wieder, was auf eine gewisse Steifigkeit im Bereich der Schwanzmitte und eine ausgezeichnete Flexibilität dahinter schließen lässt. Wie bei den meisten fortgeschrittenen Mosasauriern biegt sich der Schwanz zur Mitte hin leicht nach unten, diese Biegung ist jedoch geringfügig von der Dorsalebene abgesetzt. Der Mosasaurus besitzt zudem große Hämalbögen am unteren Ende jedes Schwanzwirbels, die sich in der Nähe der Schwanzmitte biegen. Dies steht im Gegensatz zur Reduktion der Hämalbögen bei anderen Meeresreptilien wie den Ichthyosauriern . Diese und weitere Merkmale deuten auf eine große und kräftige, paddelartige Schwanzflosse beim Mosasaurus hin . [ 56 ]
Die Vordergliedmaßen des Mosasaurus sind breit und kräftig. [ 10 ] [ 25 ] Schulterblatt und Oberarmknochen sind fächerförmig und breiter als hoch. Speiche und Elle sind kurz, wobei die Speiche höher und größer als die Elle ist. [ 10 ] Das Darmbein ist stabförmig und schlank; bei M. missouriensis ist es etwa 1,5-mal länger als der Oberschenkelknochen . Der Oberschenkelknochen selbst ist etwa doppelt so lang wie breit und endet distal in zwei deutlich voneinander abgegrenzten Gelenkflächen (von denen eine mit dem Darmbein und die andere mit den Flossenknochen verbunden ist), die in einem Winkel von etwa 120° aufeinandertreffen. [ 9 ] Fünf Sätze von Mittelhandknochen und Fingerknochen umschlossen und stützten die Flossenknochen, wobei der fünfte Satz kürzer und von den übrigen versetzt war. Die Gesamtstruktur des Paddels ist, ähnlich wie bei Plotosaurus , komprimiert und war für schnelleres Schwimmen gut geeignet. [ 10 ] [ 25 ] An den Hinterbeinen wird das Paddel von vier Zehenpaaren gestützt. [ 9 ]

Interaktive Skelettrekonstruktion von M. hoffmannii (fahren Sie mit der Maus über die einzelnen Skelettkomponenten oder klicken Sie darauf, um die Struktur zu identifizieren)
Einstufung
Geschichte der Taxonomie

Da die Nomenklaturregeln damals noch nicht eindeutig definiert waren, gaben Wissenschaftler des 19. Jahrhunderts Mosasaurus bei seinen ersten Beschreibungen keine korrekte Diagnose , was zu Unklarheiten in der Definition der Gattung führte. Dadurch wurde Mosasaurus zu einer Sammelbezeichnung für bis zu fünfzig verschiedene Arten. Eine Studie von Hallie Street und Michael Caldwell aus dem Jahr 2017 lieferte die erste korrekte Diagnose und Beschreibung des Holotypus von M. hoffmannii . Dies ermöglichte eine umfassende taxonomische Bereinigung, die fünf Arten als wahrscheinlich gültig bestätigte: M. hoffmannii , M. missouriensis , M. conodon , M. lemonnieri und M. beaugei . Die Studie hielt außerdem vier weitere Arten aus pazifischen Ablagerungen – M. mokoroa , M. hobetsuensis , M. flemingi und M. prismaticus – für möglicherweise gültig, vorbehaltlich einer zukünftigen formalen Neubewertung. [ j ] [ 5 ] Street & Caldwell (2017) basiert auf Streets Dissertation von 2016, die eine phylogenetische Studie enthielt. Darin wurde vorgeschlagen, Mosasaurus auf vier Arten zu beschränken – M. hoffmannii , M. missouriensis , M. lemonnieri und die vorgeschlagene neue Art „ M. glycys “ – , wobei M. conodon und die pazifischen Taxa anderen Gattungen zugeordnet und M. beaugei als jüngeres Synonym [ k ] von M. hoffmannii angesehen wurde . [ l ] [ 33 ] : 300
Systematik und Evolution


Als Typusgattung der Familie Mosasauridae und der Unterfamilie Mosasaurinae gehört Mosasaurus zur Ordnung der Schuppenkriechtiere ( Squamata ), zu der Echsen und Schlangen zählen . Die Verwandtschaftsverhältnisse zwischen Mosasauriern und den heute lebenden Schuppenkriechtieren sind weiterhin umstritten, da Wissenschaftler noch immer heftig darüber debattieren, ob die nächsten lebenden Verwandten der Mosasaurier Warane oder Schlangen sind. [ 55 ] [ 77 ] Mosasaurus bildet zusammen mit den Mosasauriergattungen Eremiasaurus , Plotosaurus [ 78 ] und Moanasaurus [ m ] [ 80 ] traditionell einen Tribus innerhalb der Mosasaurinae, der unterschiedlich als Mosasaurini oder Plotosaurini bezeichnet wird . [ 40 ] : 145–148 [ 81 ] [ 78 ]
Phylogenie und Evolution der Gattung


Einer der frühesten relevanten Versuche einer Evolutionsstudie des Mosasaurus wurde 1967 von Russell unternommen. [ 40 ] [ 81 ] Er schlug vor, dass sich der Mosasaurus aus einem Clidastes -ähnlichen Mosasaurier entwickelte und sich in zwei Linien aufspaltete : eine, aus der M. conodon hervorging , und eine andere, die eine Chronospezies- Sequenz hervorbrachte, welche in der Reihenfolge M. ivoensis , M. missouriensis und M. maximus-hoffmanni umfasste . [ n ] [ o ] [ 40 ] : 202 Russell verwendete jedoch eine frühe Methode der Phylogenetik und keine Kladistik. [ 81 ]
1997 veröffentlichte Bell die erste kladistische Studie nordamerikanischer Mosasaurier. Er bezog die Arten M. missouriensis , M. conodon , M. maximus und ein unbestimmtes Exemplar ( UNSM 77040) mit ein. Einige seiner Ergebnisse stimmten mit Russell (1967) überein, beispielsweise die Abstammung von Mosasaurus von einer Stammgruppe, die Clidastes umfasste , und die Annahme, dass M. conodon die basalste Art der Gattung ist. Im Gegensatz zu Russell (1967) stellte Bell jedoch auch fest, dass Mosasaurus eine Schwestergruppe zu einer anderen Gruppe bildet, zu der Globidens und Prognathodon gehören , und dass M. maximus die Schwesterart von Plotosaurus ist . Letzteres führte zu einer Paraphylie (einer unnatürlichen Gruppierung), dennoch erkannte Bell (1997) Plotosaurus als eigenständige Gattung an. [ 81 ]
Bells Studie diente als Präzedenzfall für spätere Untersuchungen, die die Systematik von Mosasaurus größtenteils unverändert ließen [ 9 ] [ 33 ] : 214–215. Allerdings identifizierten einige spätere Studien , je nach verwendeter Dateninterpretationsmethode, Eremiasaurus oder Plesiotylosaurus als Schwestergruppe von Mosasaurus und Plotosaurus [ 78 ] [ 79 ] [ 82 ]. Mindestens eine Studie ermittelte zudem M. missouriensis als basalste Art der Gattung anstelle von M. conodon [ 83 ] . Im Jahr 2014 äußerten Konishi und Kollegen Bedenken hinsichtlich der Verwendung von Bells Studie. Erstens sei die Gattung stark unterrepräsentiert, da nur die drei nordamerikanischen Arten M. hoffmannii/M. maximus , M. missouriensis und M. conodon berücksichtigt wurden . Dadurch wurden andere Arten wie M. lemonnieri , eine der am besten erforschten Arten der Gattung, vernachlässigt, was die phylogenetischen Ergebnisse beeinflusste. Zweitens basierten die Studien aufgrund des Fehlens einer eindeutigen Holotypus-Diagnose auf einer ungenauen und unsicheren Taxonomie der Gattung Mosasaurus , was möglicherweise den paraphyletischen Status der Gattung erklärt. [ 33 ] : 214–215 [ 9 ] Drittens fehlten zu dieser Zeit noch vergleichende Studien zur Skelettanatomie großer Mosasaurier. [ 9 ] Diese Probleme wurden in Streets Dissertation von 2016 in einer aktualisierten phylogenetischen Analyse behandelt. [ 33 ] : 214–215
Conrad verwendete in seiner phylogenetischen Analyse von 2008 als Einziger ausschließlich *M. hoffmannii* und *M. lemonnieri* . Dabei stellte er *M . hoffmannii * als basale Art einer Vielzahl von Nachkommenkladen fest, die (in absteigender Reihenfolge ihrer Basalität) *Globidens* , *M. lemonnieri* , *Goronyosaurus* und *Plotosaurus* umfassen . Dieses Ergebnis deutete darauf hin, dass *M. hoffmannii * und *M. lemonnieri* nicht zur selben Gattung gehören. [ 84 ] : 81 Die Studie verwendete jedoch eine für traditionelle phylogenetische Untersuchungen von Mosasaurierarten unkonventionelle Methode, da sie sich auf die Verwandtschaftsverhältnisse ganzer Schuppenkriechtiergruppen und nicht auf die Klassifizierung der Mosasaurier konzentrierte. Daher weisen einige Paläontologen darauf hin, dass die Ergebnisse der Klassifizierung niedrigerer Ordnung aus Conrads Studie von 2008, wie beispielsweise die genaue Einordnung von *Mosasaurus* , technische Probleme aufweisen und somit ungenau sein könnten. [ 82 ]
Das folgende Kladogramm links (Topologie A) basiert auf einem Maximum-Clade-Credibility-Baum, der mittels Bayes’scher Analyse in der jüngsten umfassenden phylogenetischen Untersuchung der Unterfamilie Mosasaurinae von Madzia & Cau (2017) erstellt wurde. Diese Untersuchung wurde als Verfeinerung einer größeren Studie von Simões et al. (2017) beschrieben. [ 79 ] Das Kladogramm rechts (Topologie B) basiert auf Streets Dissertation von 2016, in der er eine Revision der Mosasaurinae vorschlägt. Neue Taxa und Umbenennungen sind in einfachen Anführungszeichen angegeben. [ 33 ] : 267
| Maximum Clade Credibility Tree von Madzia & Cau (2017) [ 79 ] | |||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
Positionen der Gruppen Mosasaurus- Klade Nominelle Pazifikarten Positionen einzelner Taxa Arten, die traditionell als Mosasaurus conodon bezeichnet werden Arten, die traditionell als Plotosaurus bennisoni bezeichnet werden |
| Vorgeschlagene Überarbeitung von Street (2016) [ 33 ] : 267 | |||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
|
Paläobiologie
Kopfmuskulatur und -mechanik
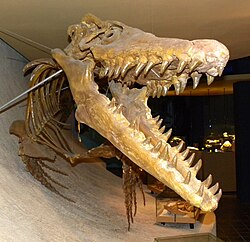
1995 untersuchte Lingham-Soliar die Kopfmuskulatur von M. hoffmannii . Da Weichteile wie Muskeln nicht leicht fossilieren, basierte die Rekonstruktion der Muskulatur größtenteils auf der Schädelstruktur, Muskelnarben am Schädel und der Muskulatur rezenter Warane. [ 25 ]
Bei modernen Eidechsen zeichnet sich der Schädel durch eine viergelenkige geometrische Struktur aus, die eine flexible Kieferbewegung ermöglicht. Dies erlaubt den Tieren möglicherweise eine bessere Positionierung des Kiefers und verhindert so die Flucht der Beute bei der Jagd. Im Gegensatz dazu überlappen sich die Stirn- und Scheitelbeine , die bei modernen Eidechsen einen flexiblen Drehpunkt bilden, im Schädel von M. hoffmannii . Dadurch entsteht eine starre, dreigelenkige Schädelstruktur. Diese Schädelstrukturen sind durch starke, ineinandergreifende Nähte verbunden, die den Druck- und Scherkräften widerstehen, die durch den nach unten gerichteten Schub der Unterkiefermuskulatur oder den nach oben gerichteten Schub der Beute entstehen. Diese starre, aber stark stoßdämpfende Schädelstruktur ermöglichte wahrscheinlich eine hohe Beißkraft . [ 25 ]
Wie alle Mosasaurier konnte auch der Unterkiefer des Mosasaurus vor- und zurückschwingen. Bei vielen Mosasauriern wie Prognathodon und M. lemonnieri diente diese Funktion hauptsächlich der sogenannten Ratschenfütterung, bei der Flügelbein und Kiefer die erbeutete Beute wie auf einem Förderband ins Maul beförderten. Im Vergleich zu denen von M. lemonnieri sind die Flügelbeinzähne von M. hoffmannii jedoch relativ klein, was darauf hindeutet, dass die Ratschenfütterung für seine Jagd und Nahrungsaufnahme eine eher untergeordnete Rolle spielte. [ 25 ] [ 43 ] Vielmehr nutzte M. hoffmannii wahrscheinlich die Trägheitsfütterung (bei der das Tier Kopf und Hals nach hinten schiebt, um ein Beutetier loszulassen, und sofort wieder nach vorne, um die Kiefer um das Beutetier zu schließen [ 85 ] ) und setzte die Kieferadduktion ein, um beim Beutefang den Biss zu unterstützen. Die Magnusadduktoren , die die Unterkiefer am Schädel verbinden und eine wichtige Rolle beim Zubeißen spielen, sind massiv, was darauf hindeutet, dass M. hoffmannii zu enormen Beißkräften fähig war. Die lange, schmale und schwere Beschaffenheit der Unterkiefer sowie der Sehnenansatz am Processus coronoideus ermöglichten ein schnelles Öffnen und Schließen des Mauls mit geringem Energieaufwand unter Wasser. Dies trug ebenfalls zur starken Beißkraft von M. hoffmannii bei und lässt vermuten, dass er die bei manchen Plesiosauriern vorkommenden kräftigen Magnusdepressoren (Kieferöffnungsmuskeln) nicht benötigte. [ 25 ]
Mobilität und Thermoregulation

Der Mosasaurus schwamm mit seinem Schwanz. Sein Schwimmstil war wahrscheinlich subcarangiform , wie er heute noch bei Makrelen vorkommt . [ 56 ] [ 86 ] Seine verlängerten, paddelartigen Gliedmaßen dienten als Tragflügel zur Fortbewegung. Die Steuerfunktion der Paddel wurde durch große Muskelansätze an der Außenseite des Oberarmknochens (Humerus) und an Speiche (Radius) und Elle (Ulna) ermöglicht. Modifizierte Gelenke erlaubten eine verbesserte Rotationsfähigkeit der Flossen . Die beim Einsatz der Paddel entstehenden starken Kräfte führten möglicherweise zu Knochenschäden, wie ein Darmbein von M. hoffmannii zeigt, bei dem der Kopf des Knochens deutlich vom restlichen Knochen abgetrennt ist. Dies ist wahrscheinlich auf häufige Scherkräfte im Gelenk zurückzuführen. [ 25 ]
The tissue structure of Mosasaurus' bones suggests it had a metabolic rate much higher than modern squamates and its resting metabolic rate was between that of the leatherback sea turtle and that of ichthyosaurs and plesiosaurs.[87]Mosasaurus was likely endothermic and maintained a constant body temperature independent of the external environment. Although there is no direct evidence specific to the genus, studies on the biochemistry of related mosasaur genera such as Clidastes suggests that endothermy was likely present in all mosasaurs.[p] Such a trait is unique among squamates, the only known exception being the Argentine black and white tegu, which can maintain partial endothermy.[89] This adaptation would have given several advantages to Mosasaurus, including increased stamina when foraging across larger areas and pursuing prey.[90] It may have also been a factor that allowed Mosasaurus to thrive in the colder climates of locations such as Antarctica.[90][91][92][93]
Sensory functions

Mosasaurus had relatively large eye sockets[25] with large scleral rings occupying much of the sockets' diameter;[43] the latter is correlated with eye size and suggests it had good vision. The eye sockets were located at the sides of the skull, which created a narrow field of binocular vision at around 28.5°[25][94] but alternatively allowed excellent processing of a two-dimensional environment, such as the near-surface waters inhabited by Mosasaurus.[25]
Gehirnabgüsse von Mosasaurus- Fossilien zeigen, dass der Bulbus olfactorius und das Vomeronasalorgan , die beide den Geruchssinn steuern, bei M. hoffmannii nur schwach entwickelt sind und einige Strukturen fehlen ; dies deutet darauf hin, dass die Art einen schwachen Geruchssinn besaß. Bei M. lemonnieri sind diese Riechorgane zwar ebenfalls klein, aber besser entwickelt und weisen einige Komponenten auf, die bei M. hoffmannii fehlen . Der schwach ausgeprägte Geruchssinn lässt vermuten, dass dieser für Mosasaurus keine besonders wichtige Rolle spielte ; stattdessen könnten andere Sinne wie das Sehvermögen von größerer Bedeutung gewesen sein. [ 25 ]
Fütterung
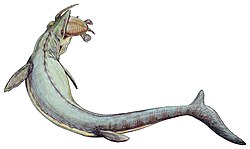
Paläontologen sind sich im Allgemeinen einig, dass der Mosasaurus wahrscheinlich ein aktiver Jäger verschiedener Meerestiere war. [ 25 ] [ 68 ] Zu den Beutetieren dieser Gattung zählten vermutlich Knochenfische, Haie, Kopffüßer, Vögel und Meeresreptilien wie andere Mosasaurier [ 68 ] und Schildkröten. [ 25 ] Es ist unwahrscheinlich, dass der Mosasaurus ein Aasfresser war, da sein Geruchssinn schwach ausgeprägt war. Der Mosasaurus gehörte zu den größten Meerestieren seiner Zeit [ 25 ] , und mit seinen großen, kräftigen Schneidezähnen konnten größere Vertreter der Gattung nach Ansicht von Wissenschaftlern praktisch jedes Tier erlegen. [ 68 ] Lingham-Soliar (1995) vermutete, dass der Mosasaurus ein eher „wildes“ Fressverhalten an den Tag legte, was durch große Zahnabdrücke auf den Schuppen der Riesenschildkröte Allopleuron hoffmannii und Fossilien wiederverheilter Kieferbrüche bei M. hoffmannii belegt wird . Die Art jagte vermutlich nahe der Meeresoberfläche als Lauerjäger und nutzte ihre großen, zweidimensional angepassten Augen, um Beute effektiver zu entdecken und zu fangen. [ 25 ] Neuere Forschungen aus dem Jahr 2024 berechneten jedoch mithilfe eines Modells die Beschleunigungsfähigkeit von M. hoffmannii . Die Forscher kamen zu dem Schluss, dass die Lauerjagd möglicherweise nicht die einzige Jagdstrategie von M. hoffmannii ist . [ 95 ] Chemische und strukturelle Daten in den Fossilien von M. lemonnieri und M. conodon deuten darauf hin, dass diese Arten möglicherweise auch in tieferen Gewässern gejagt haben. [ 96 ] : 152
Kohlenstoffisotopenuntersuchungen an Fossilien mehrerer Individuen von M. hoffmannii ergaben extrem niedrige δ¹³C - Werte – die niedrigsten aller Mosasaurier bei den größten Exemplaren. Mosasaurier mit niedrigeren δ¹³C - Werten bekleideten tendenziell höhere trophische Ebenen. Ein Grund dafür war die Ernährung: Eine fettreiche Beute wie Meeresschildkröten und andere große Meeresreptilien kann die δ¹³C-Werte senken . Die niedrigen δ¹³C - Werte von M. hoffmannii untermauern seine wahrscheinliche Position als Spitzenprädator. [ 68 ] Auch die Analyse des Zahnabriebs zeigte, dass M. hoffmannii eine generalistische Ernährung hatte, [ 97 ] was offenbar auch bei M. missouriensis der Fall ist . [ 98 ]
Derzeit sind nur zwei Mosasaurier mit erhaltenem Mageninhalt bekannt. Das erste ist ein gut erhaltenes Teilskelett eines kleinen M. missouriensis, das auf etwa 75 Millionen Jahre datiert ist und in dessen Darm zerstückelte und durchbohrte Überreste eines etwa 1 Meter langen Fisches gefunden wurden. Dieser Fisch war deutlich länger als der Schädel des Mosasauriers, der 66 Zentimeter lang war. Dies bestätigt, dass M. missouriensis Beutetiere, die größer als sein Kopf waren, zerstückelte und stückweise fraß. Da er mit anderen großen Mosasauriern wie Prognathodon zusammenlebte , die sich auf robuste Beute spezialisiert hatten, spezialisierte sich M. missouriensis wahrscheinlich stärker auf Beute, die sich am besten mit schneidefähigen Zähnen zerlegen ließ – ein Beispiel für Nischenaufteilung . [ 9 ] Das zweite Beispiel ist ein Teilskelett eines subadulten M. hoffmannii, das am selben Fundort wie der Holotypus der Art bei Maastricht entdeckt wurde und den Spitznamen „Lars“ trägt. Dieses Exemplar enthielt laut einer Konferenz im Jahr 2024 säurekorrodierte Knochen einer jungen Schildkröte, die an Ctenochelys erinnerten , sowie Knochen anderer, nicht identifizierter Tiere im Darmbereich. Knochen eines nicht näher bestimmten Vogels oder vogelähnlichen Dinosauriers wurden ebenfalls in Verbindung mit dem Mosasaurier gefunden; auch diese könnten Darminhalt dargestellt haben. [ 99 ]
Mosasaurier könnten ihren Nachkommen das Jagen beigebracht haben, wie ein fossiler Nautiloid (Argonautilus catarinae) mit Bissspuren zweier Artgenossen nahelegt – eine von einem Jungtier, die andere von einem ausgewachsenen. Eine Analyse der Bissspuren durch Kauffman aus dem Jahr 2004 kam zu dem Schluss, dass es sich bei den Mosasauriern entweder um Mosasaurus oder Platecarpus handelte . Die Bissspuren zeigen in die Richtung, in die der Kopf des Nautiloiden gerichtet gewesen wäre. Dies deutet darauf hin, dass das Tier nicht fliehen konnte und somit zum Zeitpunkt der Angriffe bereits krank oder tot war. Es ist möglich, dass ein Elterntier seinen Nachkommen Kopffüßer als alternative Beutequelle und deren Jagdtechniken beibrachte. Eine andere Erklärung besagt, dass die Bissspuren von einem einzelnen Mosasaurier stammen, der den Nautiloiden zunächst leicht und dann mit größerer Kraft biss. Allerdings weisen die unterschiedlichen Zahnabstände zwischen den beiden Bissen auf verschiedene Kiefergrößen hin. [ 100 ]
Verhalten und Paläopathologie
Innerartlicher Kampf

Fossilien belegen, dass Mosasaurier aggressive und tödliche Kämpfe mit Artgenossen austrugen. Ein Teilskelett von M. conodon weist zahlreiche Schnitte, Brüche und Einstiche an verschiedenen Knochen auf, insbesondere im hinteren Bereich des Schädels und des Halses. Ein Zahn eines anderen M. conodon durchbohrt das Quadratbein. An dem Fossil sind keine Anzeichen von Heilung zu erkennen, was darauf hindeutet, dass der Mosasaurier durch einen tödlichen Schlag auf den Schädel getötet wurde. [ 101 ] Ebenso findet sich in einem Skelett von M. missouriensis ein Zahn eines anderen M. missouriensis, der im Unterkiefer unterhalb des Auges eingebettet ist. In diesem Fall zeigten sich Anzeichen von Heilung um die Wunde herum, was auf ein Überleben des Tieres schließen lässt. [ 65 ] Takuya Konishi schlug als alternative Erklärung für dieses Beispiel Kopfbeißen während der Balz vor , wie es bei heutigen Echsen zu beobachten ist. [ 65 ] [ 102 ] Angriffe anderer Mosasaurier sind eine mögliche Ursache für die an anderen Schädeln festgestellten Verletzungen . Diese könnten aber auch durch andere Ereignisse wie den Versuch, in harte Schildkrötenpanzer zu beißen, entstanden sein. Lingham-Soliar beobachtete 2004, dass Verletzungen, falls sie tatsächlich auf einen innerartlichen Angriff zurückzuführen sind, gehäuft im Schädelbereich auftreten. Moderne Krokodile greifen einander häufig an, indem sie den Kopf des Gegners mit ihren Kiefern packen. Lingham-Soliar vermutete, dass Mosasaurier ein ähnliches Verhalten beim innerartlichen Kampf an den Tag legten. Viele der Fossilien mit Verletzungen, die möglicherweise auf innerartliche Kämpfe zurückzuführen sind, stammen von jungen oder halbwüchsigen Mosasauriern . Dies legt die Vermutung nahe, dass Angriffe auf kleinere, schwächere Individuen häufiger vorkamen. [ 103 ] Die angreifenden Mosasaurier der Exemplare von M. conodon und M. missouriensis waren jedoch wahrscheinlich ähnlich groß wie ihre Opfer. [ 65 ] [ 101 ] Im Jahr 2006 vermuteten Schulp und Kollegen, dass Mosasaurier aufgrund innerartlicher Aggression gelegentlich Kannibalismus betrieben haben könnten . [ 104 ]
Krankheiten

Einige Kiefer von M. hoffmannii weisen Spuren von Infektionskrankheiten infolge von Verletzungen auf. Zwei Beispiele hierfür sind IRSNB R25 und IRSNB R27, die beide Frakturen und andere Pathologien im Unterkiefer aufweisen. IRSNB R25 zeigt eine vollständige Fraktur nahe der Alveole des sechsten Zahns . Um die Fraktur herum findet sich ausgedehnter Knochenkallus , der die Alveole fast vollständig überwuchert, sowie verschiedene osteolytische Kavitäten , Abszesskanäle , Schädigungen des Trigeminusnervs und entzündete Erosionen, die auf eine schwere bakterielle Infektion hindeuten. Auf dem Knochenkallus befinden sich zwei feine Ulzerationen, die möglicherweise im Rahmen des Heilungsprozesses entstanden sind. IRSNB R27 weist zwei Frakturen auf: Eine ist fast vollständig verheilt, die andere ist eine offene Fraktur, bei der benachbarte Zähne abgebrochen sind. Die Fraktur ist von einer nicht verheilten Knochenkallusbildung mit flachen Kratzspuren und einer großen Grube bedeckt , die mit einem Abszesskanal verbunden ist. Lingham-Soliar beschrieb diese Grube als ähnlich einem Bissabdruck eines möglicherweise angreifenden Mosasauriers. Beide Exemplare weisen neben den Frakturen Anzeichen einer tiefen bakteriellen Infektion auf; einige Bakterien könnten sich auf benachbarte beschädigte Zähne ausgebreitet und Karies verursacht haben , die möglicherweise durch frühere posttraumatische oder sekundäre Infektionen in tieferes Gewebe eingedrungen ist. Die Unterkieferknochen vor den Frakturen beider Exemplare sind in gutem Zustand, was darauf hindeutet, dass die Arterien und der Trigeminusnerv nicht beschädigt wurden; andernfalls wären diese Bereiche aufgrund der mangelnden Blutversorgung nekrotisch geworden . Der Zustand der Unterkieferknochen lässt vermuten, dass die Art über einen effizienten Mechanismus zur Ruhigstellung der Fraktur während der Heilung verfügte, wodurch Schäden an lebenswichtigen Blutgefäßen und Nerven verhindert wurden. Dies, zusammen mit den Anzeichen der Heilung, deutet darauf hin, dass die Frakturen nicht unmittelbar tödlich waren. [ 103 ]
Im Jahr 2006 veröffentlichten Schulp und Kollegen eine Studie, die ein Quadratbein von M. hoffmannii mit mehreren unnatürlichen Öffnungen und geschätzten 0,5 Litern (0,13 US-Gallonen) zerstörtem Gewebe beschrieb. Es handelte sich wahrscheinlich um eine schwere Knocheninfektion, ausgelöst durch septische Arthritis , die so weit fortschritt, dass ein großer Teil des Quadratbeins zu einem Abszess reduziert wurde. Es waren auch große Mengen an Knochenreparaturgewebe vorhanden, was darauf hindeutet, dass die Infektion und der anschließende Heilungsprozess mehrere Monate andauerten. Ein solches Ausmaß an Knocheninfektion wäre äußerst schmerzhaft gewesen und hätte die Fähigkeit des Mosasauriers, seine Kiefer zu benutzen, stark beeinträchtigt. Die Lage der Infektion könnte auch die Atmung beeinträchtigt haben. Angesichts dessen, wie das Individuum über einen längeren Zeitraum unter diesen Bedingungen überleben konnte, vermuteten Schulp und Kollegen, dass es auf eine Nahrungssuche mit weichkörperiger Beute wie Tintenfischen umstellte, die im Ganzen verschluckt werden konnte, um den Kiefereinsatz zu minimieren. Die Ursache der Infektion ist weiterhin unbekannt, aber falls es sich um einen innerartlichen Angriff handelte, ist es möglich, dass eine der Öffnungen am Quadratbein als Eintrittspforte für einen angreifenden Zahn diente, durch den die Infektion eindrang. [ 104 ]
Avaskuläre Nekrose wurde in zahlreichen Studien bei allen untersuchten Exemplaren von M. lemonnieri und M. conodon nachgewiesen . [ 68 ] [ 105 ] [ 106 ] Rothschild und Martin beobachteten 2005 bei Untersuchungen von M. conodon- Fossilien aus Alabama und New Jersey sowie von M. lemonnieri -Fossilien aus Belgien, dass 3–17 % der Wirbel der Wirbelsäule der Mosasaurier betroffen waren. [ 105 ] Avaskuläre Nekrose ist eine häufige Folge der Dekompressionskrankheit . Sie entsteht durch Knochenschäden, die durch die Bildung von Stickstoffblasen in der eingeatmeten Luft verursacht werden, welche bei häufigen Tieftauchgängen oder durch wiederholtes Tauchen mit Kurzatmigkeit dekomprimiert wird. Dies deutet darauf hin, dass beide Mosasaurus- Arten entweder gewohnheitsmäßige Tieftaucher oder wiederholte Tauchgänge waren. Agnete Weinreich Carlsen hielt es für die einfachste Erklärung, dass diese Zustände auf eine unzureichende anatomische Anpassung zurückzuführen sind. Dennoch weisen Fossilien anderer Mosasaurier mit ausnahmsloser avaskulärer Nekrose noch immer beträchtliche Anpassungen auf, wie beispielsweise Trommelfelle, die gut vor schnellen Druckänderungen geschützt waren. [ 106 ]
Bei Mosasaurus wurde eine unnatürliche Verschmelzung der Schwanzwirbel dokumentiert . Diese tritt auf, wenn sich die Knochen nach Verletzungen durch Traumata oder Krankheiten selbst umbauen . Eine Studie von Rothschild und Everhart aus dem Jahr 2015 untersuchte 15 Mosasaurus- Exemplare aus Nordamerika und Belgien und fand in drei Fällen verschmolzene Schwanzwirbel. [ q ] Zwei dieser Fälle wiesen unregelmäßige Oberflächenverformungen um die Verschmelzungsstelle herum auf, die durch den Austritt von Sekret aus den Wirbelhöhlen verursacht wurden und auf eine Knocheninfektion hindeuten. Die Ursachen solcher Infektionen sind unklar, doch Berichte über verschmolzene Wirbel bei anderen Mosasauriern legen Angriffe von Haien und anderen Raubtieren als mögliche Ursache nahe. Der dritte Fall wurde aufgrund der Bildung glatter Brücken zwischen den verschmolzenen Wirbeln auf eine Form von Arthritis zurückgeführt. [ 107 ]
Lebensgeschichte

Es ist wahrscheinlich, dass Mosasaurus wie die meisten heutigen Säugetiere lebendgebärend war . Zwar gibt es keine Belege für Lebendgeburten bei Mosasaurus selbst, doch sind sie bei einer Reihe anderer Mosasaurier bekannt; [ 108 ] Beispiele hierfür sind das Skelett eines trächtigen Carsosaurus , [ 108 ] ein Fossil von Plioplatecarpus , das mit Fossilien zweier Mosasaurier-Embryonen vergesellschaftet ist, [ 109 ] und Fossilien neugeborener Clidastes aus pelagischen (Hochsee-)Ablagerungen. [ 108 ] Diese Fossilienfunde, zusammen mit dem völligen Fehlen jeglicher Hinweise auf eine externe, eierbasierte Fortpflanzung, deuten auf die Wahrscheinlichkeit der Lebendgeburt bei Mosasaurus hin . [ 108 ] [ 109 ] Mikroanatomische Untersuchungen an Knochen von Jungtieren des Mosasaurus und verwandter Gattungen haben gezeigt, dass deren Knochenstrukturen mit denen von ausgewachsenen Tieren vergleichbar sind. Sie weisen nicht die bei jungen, primitiven Mosasauriern beobachtete Zunahme der Knochenmasse auf, die dem Auftrieb im Flachwasser dient. Dies deutet darauf hin, dass Mosasaurus Nestflüchter waren : Sie waren bereits in jungen Jahren effiziente Schwimmer und lebten vollständig funktionsfähig im offenen Wasser, ohne Aufzuchtgebiete für ihre Jungen zu benötigen. [ 110 ] [ 108 ] In einigen Gebieten Europas und in South Dakota wurden konzentrierte Ansammlungen von Jungtieren von M. hoffmannii , M. missouriensis und/oder M. lemonnieri gefunden . Diese Fundorte sind allesamt Flachwasserablagerungen, was darauf hindeutet, dass junge Mosasaurus möglicherweise noch in flachen Gewässern lebten. [ 111 ]
Paläoökologie
Verbreitung, Ökosystem und ökologische Auswirkungen

Mosasaurus war transatlantisch verbreitet; seine Fossilien wurden in marinen Ablagerungen beiderseits des Atlantiks gefunden. Zu diesen Fundorten zählen der Mittlere Westen und die Ostküste der USA, Kanada, Europa, die Türkei, Russland, die Levante , die afrikanische Küste von Marokko bis Südafrika, Brasilien, Argentinien und die Antarktis. [ 5 ] [ 92 ] [ 112 ] Während der späten Kreidezeit bildeten diese Regionen die drei Meereswege, die von Mosasaurus bewohnt wurden : der Atlantische Ozean, die Western Interior Seaway und die Tethys im Mittelmeer . [ 112 ] Mehrere ozeanische Klimazonen umfassten diese Meereswege, darunter tropische , subtropische , gemäßigte und subpolare Klimazonen. [ 112 ] [ 113 ] [ 114 ] Die große Bandbreite an ozeanischen Klimazonen führte zu einer großen Vielfalt an Fauna, die mit Mosasaurus koexistierte .
Mittelmeer-Tethys
Die mediterrane Tethys erstreckte sich während des Maastrichtiums über das heutige Europa, Afrika und den Nahen Osten. Neuere Studien bestätigen paläogeografische Verwandtschaften und erweitern dieses Gebiet auf Regionen jenseits des Atlantiks, darunter Brasilien und den US-Bundesstaat New Jersey an der Ostküste. Geografisch ist sie in zwei biogeografische Provinzen unterteilt , die jeweils den nördlichen und südlichen Rand der Tethys umfassen. Die beiden Mosasaurier Mosasaurus und Prognathodon scheinen die dominanten Taxa gewesen zu sein; sie waren weit verbreitet und ökologisch vielfältig im gesamten Meeresgebiet. [ 112 ]
Der nördliche Rand der Tethys lag in den Paläobreiten 30–40 ° N und umfasste das heutige Europa, die Türkei und New Jersey. Damals bestand Europa aus einer Ansammlung von Inseln, der größte Teil der heutigen Landmasse lag unter Wasser. Der Rand bot ein warmgemäßigtes Klima mit Lebensräumen, die von Mosasauriern und Meeresschildkröten dominiert wurden. M. hoffmannii und Prognathodon sectorius waren die vorherrschenden Arten in der nördlichen Region. [ 112 ] In bestimmten Gebieten wie Belgien waren andere Mosasaurus- Arten wie M. lemonnieri die dominierenden Arten, wo ihre Vorkommen die anderer großer Mosasaurier deutlich übertrafen. [ 43 ] Weitere Mosasaurier, die auf der europäischen Seite des nördlichen Tethysrandes gefunden wurden, umfassen kleinere Gattungen wie Halisaurus , Plioplatecarpus und Platecarpus sowie den Muschelknacker Carinodens . Größere Mosasaurier ähnlicher trophischer Ebenen, darunter Tylosaurus bernardi und vier weitere Prognathodon- Arten , waren ebenfalls in diesem Gebiet verbreitet . Meeresschildkröten wie Allopleuron hoffmanni und Glyptochelone suickerbuycki kamen ebenfalls häufig vor, und gelegentlich wurden auch andere Meeresreptilien, darunter nicht näher bestimmte Elasmosaurier, gefunden. Die Meeresreptilienfauna in der Region New Jersey ist im Allgemeinen mit der in Europa vergleichbar; die Mosasaurierfauna ist sehr ähnlich, schließt jedoch M. lemonnieri , Carinodens , Tylosaurus sowie bestimmte Halisaurus- und Prognathodon -Arten aus . Darüber hinaus kommen ausschließlich M. conodon , Halisaurus platyspondylus und Prognathodon rapax vor . [ 112 ] Zahlreiche Haiarten wie Squalicorax , Cretalamna , Serratolamna und Sandhaie [ 115 ] sowie Knochenfische wie Cimolichthys , der Säbelzahnhering Enchodus und der schwertfischartige Protosphyraena sind am nördlichen Rand der Tethys vertreten . [ 112 ] [ 116 ]

Der südliche Rand der Tethys verlief entlang des Äquators zwischen 20° N und 20° S und war daher von wärmeren tropischen Klimazonen geprägt. Die Meeresböden, die an die Kratone Afrikas und Arabiens angrenzten und sich bis in die Levante und nach Brasilien erstreckten, boten ausgedehnte Flachwassergebiete. Diese Gebiete waren von Mosasauriern und Halswenderschildkröten dominiert . Von den Mosasauriern ist Globidens phosphaticus die charakteristische Art der südlichen Region; im afrikanischen und arabischen Gebiet waren neben Globidens auch Halisaurus arambourgi und Platecarpus ptychodon [ r ] [ 112 ] häufige Vertreter dieser Gattung . [ 112 ] Mosasaurus war nicht gut vertreten: Die Verbreitung von M. beaugei beschränkte sich auf Marokko und Brasilien, und isolierte Zähne aus Syrien deuteten auf ein mögliches Vorkommen von M. lemonnieri hin , obwohl M. hoffmannii ebenfalls in der gesamten Region verbreitet war. [ 5 ] [ 112 ] Zu den weiteren Mosasauriern vom südlichen Tethysrand zählen der rätselhafte Goronyosaurus , die Muschelknacker Igdamanosaurus und Carinodens , Eremiasaurus , vier weitere Prognathodon -Arten sowie verschiedene Halisaurus -Arten . Auch andere Meeresreptilien wie der Meereswaran Pachyvaranus und die Seeschlange Palaeophis sind dort bekannt. Abgesehen von Zarafasaura in Marokko waren Plesiosaurier selten. Da es sich um ein tropisches Gebiet handelte, waren Knochenfische wie Enchodus und Stratodus sowie verschiedene Haiarten am gesamten südlichen Tethysrand weit verbreitet. [ 112 ]
Westlicher Binnenseeweg

Viele der frühesten Fossilien des Mosasaurus wurden in Ablagerungen des Campaniums in Nordamerika gefunden , darunter im Western Interior Seaway, einem Binnenmeer, das einst durch das heutige Gebiet der zentralen USA und Kanadas floss und den Arktischen Ozean mit dem heutigen Golf von Mexiko verband . Die Region war für ein Meeresgebiet flach und erreichte eine maximale Tiefe von etwa 800–900 Metern. [ 118 ] Durch die ausgedehnte Entwässerung der benachbarten Kontinente Appalachia und Laramidia wurden große Mengen an Sedimenten dorthin transportiert. Zusammen mit der Bildung einer nährstoffreichen Tiefwassermasse durch die Vermischung von kontinentalem Süßwasser, arktischem Wasser aus dem Norden und wärmerem, salzhaltigem Tethyswasser aus dem Süden entstand so ein warmes und produktives Meeresgebiet, das eine große Vielfalt an Meereslebewesen beherbergte. [ 119 ] [ 120 ] [ 121 ]
Die Biogeographie der Region wurde in zwei Binnenland-Subprovinzen unterteilt, die sich durch unterschiedliche Klimazonen und Faunenstrukturen auszeichnen. Ihre Grenzen verlaufen durch das heutige Kansas . Das ozeanische Klima der nördlichen Binnenland-Subprovinz war wahrscheinlich kühl-gemäßigt, während die südliche Binnenland-Subprovinz ein warm-gemäßigtes bis subtropisches Klima aufwies. [ 113 ] Die Fossilienfunde in diesen Regionen deuten auf einen vollständigen Faunenwechsel hin, als M. missouriensis und M. conodon vor 79,5 Millionen Jahren auftraten. Dies lässt darauf schließen, dass die Anwesenheit von Mosasaurus im westlichen Binnenmeer einen tiefgreifenden Einfluss auf die Umstrukturierung mariner Ökosysteme hatte. [ 122 ] Die Faunenstruktur beider Provinzen war vor dem Auftreten von Mosasaurus , während einer als Niobraran-Zeit bekannten Faunenstufe , im Allgemeinen deutlich vielfältiger als während der darauffolgenden Navesinkan-Zeit . [ 122 ] [ 113 ] [ 123 ]
Im heutigen Alabama, innerhalb der südlichen Binnenprovinz, verschwanden die meisten wichtigen Gattungen, darunter Haie wie Cretoxyrhina und die Mosasaurier Clidastes , Tylosaurus , Globidens , Halisaurus und Platecarpus , und wurden durch Mosasaurus ersetzt . [ 122 ] [ 124 ] Während des Navesinkan-Zeitalters dominierte Mosasaurus die gesamte Region und machte etwa zwei Drittel der gesamten Mosasaurierdiversität aus, während Plioplatecarpus und Prognathodon das verbleibende Drittel teilten. Auch in der nördlichen Binnenprovinz kam es zu einer Umstrukturierung der Mosasaurierfauna, die durch das Verschwinden von Mosasauriern wie Platecarpus und deren Ersetzung durch Mosasaurus und Plioplatecarpus gekennzeichnet war . [ 122 ] Einige Gattungen des Niobraran, wie Tylosaurus , [ 125 ] Cretoxyrhina , [ 126 ] Hesperornithiden, [ 127 ] und Plesiosaurier, darunter Elasmosaurier wie Terminonatator [ 128 ] und Polycotyliden wie Dolichorhynchops [ 129 ], blieben bis etwa zum Ende des Campaniums präsent, als sich die gesamte Western Interior Seaway von Norden her zurückzog. [ 119 ] Mosasaurus blieb bis zum Ende des Navesinkan-Zeitalters am Ende der Kreidezeit die dominierende Gattung in der Seaway. [ 122 ] Zur zeitgenössischen Fauna gehörten Meeresschildkröten wie Protostega [ 124 ] und Archelon ; [ 130 ] viele Seevogelarten, darunter Baptornis , [ 127 ] Ichthyornis und Halimornis ; Haie wie die Makrelenhaie Cretalamna , Squalicorax , Pseudocorax und Serratolamna , der Koboldhai Scapanorhynchus , der Sandtigerhai Odontaspis und der sägefischartige Ischyrhiza ; und Knochenfische wie Enchodus , Protosphyraena , Stratodus, und die Ichthyodectiden Xiphactinus und Saurodon . [ 124 ] [ 131 ]
Antarktis

Mosasaurus ist aus spätmaastrichtischen Ablagerungen der Antarktischen Halbinsel bekannt , genauer gesagt aus der López-de-Bertodano-Formation auf Seymour Island . [ 92 ] Innerhalb des Polarkreises bei etwa 65°S gelegen, [ 114 ] betrugen die Temperaturen in mittleren bis großen Wassertiefen durchschnittlich etwa 6 °C, während die Meeresoberflächentemperaturen zeitweise unter den Gefrierpunkt sanken und sich Meereis bildete. [ 91 ] [ 132 ] Mosasaurus scheint der artenreichste Mosasaurier der maastrichtischen Antarktis zu sein. Mindestens zwei Arten wurden beschrieben, die genaue Artenzahl ist jedoch unbekannt, da die Überreste oft fragmentarisch sind und die Exemplare in offener Nomenklatur beschrieben werden . Zu diesen Arten gehört eine, die mit M. lemonnieri vergleichbar ist , und eine weitere, die eng mit M. hoffmannii verwandt zu sein scheint . [ 92 ] Auch M. sp. wurde beschrieben. Es ist jedoch möglich, dass solche Exemplare tatsächlich Moanasaurus repräsentieren , obwohl dies vom Ergebnis einer anstehenden Revision der Gattung abhängt. [ 44 ] Mindestens vier weitere Mosasauriergattungen wurden in der Antarktis nachgewiesen, darunter Plioplatecarpus , die Mosasaurier Moanasaurus und Liodon [ 92 ] sowie Kaikaifilu . Die Gültigkeit einiger dieser Gattungen ist umstritten, da sie hauptsächlich auf isolierten Zähnen basieren. [ 133 ] Auch die Anwesenheit von Prognathodon und Globidens wird aufgrund der Verbreitungstrends beider Gattungen vermutet, obwohl bisher noch keine eindeutigen Fossilien gefunden wurden. [ 92 ] Zu den weiteren antarktischen Meeresreptilien zählten Elasmosauriden wie Aristonectes und andere unbestimmte Elasmosauriden. [ 134 ] Die Fischfauna der López-de-Bertodano-Formation wurde von Enchodus und Ichthyodectiformes dominiert. [ 135 ]
Habitatpräferenz

Bekannte Fossilien von Mosasaurus stammen typischerweise aus Ablagerungen, die küstennahe Lebensräume der Kreidezeit repräsentieren, wobei einige Fossilien auch aus Tiefseeablagerungen stammen. [ 96 ] : 152, 178 [ 136 ] Lingham-Soliar (1995) führte dies weiter aus und fand heraus, dass maastrichtische Ablagerungen in den Niederlanden mit Funden von M. hoffmannii küstennahe Gewässer in einer Tiefe von etwa 40–50 Metern repräsentieren. Schwankende Temperaturen und eine Fülle an Meereslebewesen waren charakteristisch für diese Fundorte. Der Körperbau von M. hoffmannii war jedoch am besten an eine pelagische Lebensweise an der Wasseroberfläche angepasst. [ 25 ]
Der δ¹³C - Wert korreliert auch mit dem Nahrungsgebiet eines Meerestieres, da die Isotopenkonzentrationen mit zunehmender Entfernung von der Küste abnehmen. Daher interpretierten einige Wissenschaftler die Isotopenkonzentrationen als Indikator für die Habitatpräferenz. Unabhängige Studien an mehreren Mosasaurus- Exemplaren ergaben durchweg niedrige δ¹³C - Werte im Zahnschmelz, was darauf hindeutet, dass sich Mosasaurus eher im offenen Meer oder auf See ernährte. Es wurde darauf hingewiesen, dass der δ¹³C - Wert durch andere Faktoren im Lebensstil eines Tieres, wie z. B. Ernährung und Tauchverhalten, beeinflusst werden kann. [ 96 ] : 122 [ 136 ] Um dies zu berücksichtigen, untersuchten T. Lynn Harrell Jr. und Alberto Perez-Huerta in einer Studie aus dem Jahr 2014 die Konzentrationsverhältnisse von Neodym , Gadolinium und Ytterbium in Fossilien von M. hoffmannii und Mosasaurus sp. aus Alabama, der Demopolis-Kreide und der Hornerstown-Formation . Frühere Studien haben gezeigt, dass die Verhältnisse dieser drei Elemente als Indikator für die relative Meerestiefe eines Fossils während der frühen Diagenese dienen können , ohne dass biologische Prozesse den Einfluss beeinträchtigen. Jedes der drei Elemente steht dabei für flaches, tiefes oder Süßwasser. Die Verhältnisse der Seltenen Erden waren in den meisten untersuchten Mosasaurus- Fossilien sehr einheitlich, was auf eine einheitliche Habitatpräferenz hindeutet. Sie konzentrierten sich auf ein Verhältnis, das für küstenferne Lebensräume mit Meerestiefen von mehr als 50 Metern (160 Fuß) charakteristisch ist. [ 136 ]
Zwischenartliche Konkurrenz

Mosasaurus lebte neben anderen großen Raubsauriern, die ebenfalls zu den Spitzenprädatoren zählten, allen voran den Tylosaurinen und Prognathodon . [ 25 ] [ 68 ] Tylosaurus bernardi , die einzige überlebende Art der Gattung aus dem Maastrichtium, erreichte eine Länge von bis zu 12,2 Metern [ 137 ] , während die größte zeitgleich existierende Prognathodon- Art, wie P. saturator, über 12 Meter lang wurde. [ 68 ] Diese drei Mosasaurier jagten ähnliche Tiere wie Meeresreptilien. [ 9 ] [ 25 ] [ 68 ]
Eine 2013 von Schulp und Kollegen veröffentlichte Studie untersuchte mittels δ¹³C -Analyse , wie Mosasaurier wie M. hoffmannii und P. saturator in denselben Gebieten koexistieren konnten . Die Wissenschaftler interpretierten die Unterschiede in den Isotopenwerten als Indikator für die Ressourcenaufteilung, da diese von verschiedenen Umweltfaktoren wie Lebensweise, Ernährung und Habitatpräferenzen beeinflusst wird. Vergleiche der δ¹³C- Werte in mehreren Zähnen von M. hoffmannii und P. saturator aus der Maastricht-Formation ( Maastrichtium) zeigten, dass zwar bei einigen Exemplaren eine gewisse Übereinstimmung bestand, die durchschnittlichen δ¹³C - Werte der beiden Arten jedoch im Durchschnitt unterschiedlich waren. Dies deutet auf eine Nischenaufteilung hin, bei der die beiden Mosasauriergattungen wahrscheinlich in unterschiedlichen Habitaten nach Nahrung suchten oder sich auf unterschiedliche spezifische Ernährungsweisen stützten, um ohne direkte Konkurrenz zu koexistieren. Die Zähne von P. saturator sind deutlich robuster als die von M. hoffmannii und speziell für die Jagd auf robuste Beutetiere wie Schildkröten angepasst. Zwar jagte auch M. hoffmannii Schildkröten, doch seine Zähne waren für ein breiteres Beutespektrum ausgelegt, das für P. saturator weniger geeignet war . [ 68 ]
Ein weiterer Fall mutmaßlicher Nischenaufteilung zwischen Mosasaurus und Prognathodon aus der Bearpaw-Formation in Alberta wurde 2014 in einer Studie von Konishi und Kollegen dokumentiert. Die Studie fand anhand des Mageninhalts eine unterschiedliche Ernährung von M. missouriensis und P. overtoni . Der Mageninhalt von P. overtoni enthielt Schildkröten und Ammoniten und lieferte damit ein weiteres Beispiel für eine auf harte Beute spezialisierte Ernährung. Im Gegensatz dazu bestand der Mageninhalt von M. missouriensis aus Fischen, was auf eine auf weichere Beute spezialisierte Ernährung hindeutet. Es wurde die Hypothese aufgestellt, dass diese Anpassungen zur Aufrechterhaltung der Ressourcenaufteilung zwischen den beiden Mosasauriern beitrugen. [ 9 ]
Dennoch ließ sich Konkurrenzkampf offenbar nicht gänzlich vermeiden. Es gibt auch Hinweise auf aggressive Kämpfe zwischen Mosasaurus und anderen großen Mosasaurierarten. Dies belegt ein fossiler Schädel eines halbwüchsigen M. hoffmannii mit Frakturen, die durch einen massiven, konzentrierten Schlag auf den Hirnschädel verursacht wurden. Lingham-Soliar (1998) argumentierte, dass dieser Schlag durch einen Rammangriff von T. bernardi ausgeführt wurde , da die Frakturbildung charakteristisch für einen koordinierten Angriff (und nicht für einen Unfall oder eine Beschädigung durch Fossilisation) war. T. bernardi war das einzige bekannte, zeitgleich lebende Tier, das mit seiner robusten, pfeilförmigen Schnauze wahrscheinlich in der Lage war, solche Schäden zu verursachen. Diese Art von Angriff wurde mit dem Verteidigungsverhalten von Großen Tümmlern verglichen, die mit ihren Schnäbeln Zitronenhaie töten oder abwehren . Es wurde spekuliert, dass T. bernardi den Angriff durch einen Hinterhalt auf einen ahnungslosen Mosasaurus ausführte . [ 138 ]
Aussterben
Am Ende der Kreidezeit befanden sich die Mosasaurier auf dem Höhepunkt ihrer evolutionären Radiation , und ihr Aussterben erfolgte abrupt. [ 25 ] Im späten Maastrichtium sank der globale Meeresspiegel, wodurch die Kontinente ihrer nährstoffreichen Meereswege beraubt wurden und sich Zirkulations- und Nährstoffmuster veränderten. Dies reduzierte die Anzahl der verfügbaren Lebensräume für Mosasaurus . Die Gattung passte sich an, indem sie neue Lebensräume in offeneren Gewässern erschloss. [ 139 ] [ 140 ] Die letzten Fossilien von Mosasaurus , darunter die von M. hoffmannii und unbestimmten Arten, stammen aus der Zeit um die Kreide-Paläogen-Grenze (K-Pg-Grenze). Das Aussterben der Gattung war wahrscheinlich eine Folge des Massenaussterbens an der Kreide-Paläogen-Grenze , dem auch die Nicht-Vogel-Dinosaurier zum Opfer fielen. Fossilien des Mosasaurus wurden in weniger als 15 Metern Tiefe unterhalb der Gesteinsgrenze in der Maastricht-Formation, der Davutlar-Formation in der Türkei, der Jagüel-Formation in Argentinien, Stevns Klint in Dänemark, auf Seymour Island und in Missouri gefunden. [ 141 ]
Fossilien von M. hoffmannii wurden innerhalb der K-Pg-Grenze im Südosten Missouris zwischen der paläozänen Clayton-Formation und der kreidezeitlichen Owl-Creek-Formation gefunden . Fossile Wirbel aus dieser Schicht wiesen nach dem Tod entstandene Brüche auf. Die Schicht wurde wahrscheinlich als Tsunami abgelagert , auch bekannt als „Kreide-Cocktail-Ablagerung“. Diese entstand durch eine Kombination aus katastrophalen seismischen und geologischen Störungen, Mega-Hurrikanen und gigantischen Tsunamis, die durch den Einschlag des Chicxulub-Asteroiden ausgelöst wurden und das Massenaussterben an der K-Pg-Grenze katalysierten. [ 139 ] Neben der physischen Zerstörung blockierte der Einschlag auch das Sonnenlicht [ 142 ] , was zum Zusammenbruch mariner Nahrungsnetze führte. [ 139 ] Jeder Mosasaurus, der die unmittelbaren Katastrophen überlebte, indem er in tiefere Gewässer flüchtete, wäre aufgrund des Nahrungsmangels verhungert. [ 139 ]
Ein rätselhafter Fund von Mosasaurus sp.-Fossilien befindet sich in der Hornerstown-Formation, einer Ablagerung, die üblicherweise dem Paläozän (Danium) zugeordnet wird , also unmittelbar nach dem Maastrichtium. Die Fossilien wurden zusammen mit Fossilien von Squalicorax , Enchodus und verschiedenen Ammoniten in einer einzigartig fossilreichen Schicht an der Basis der Hornerstown-Formation, der sogenannten Hauptfossilschicht, gefunden. Dies bedeutet jedoch nicht, dass Mosasaurus und seine Begleitfauna das Massenaussterben an der Kreide-Paläogen-Grenze überlebt haben. Einer Hypothese zufolge könnten die Fossilien aus einer älteren Kreideablagerung stammen und während der frühen Ablagerung in die paläozäne Formation umgelagert worden sein . Hinweise auf eine Umlagerung finden sich typischerweise an Fossilien, die durch weitere Erosion während ihrer Freilegung zum Zeitpunkt der Umlagerung abgenutzt wurden. Viele der Mosasaurus- Fossilien aus der Hauptfossilienschicht bestehen aus isolierten, häufig abgeriebenen und abgenutzten Knochen. Die Schicht enthielt aber auch besser erhaltene Mosasaurus- Überreste. Eine andere Erklärung besagt, dass es sich bei der Hauptfossilienschicht um eine maastrichtische, zeitlich gemittelte Remanié- Ablagerung handelt, die aus einer Kreideablagerung unter Bedingungen geringer Sedimentmenge entstanden ist. Eine dritte Hypothese geht davon aus, dass die Schicht eine Nachlagerung von Kreidesedimenten darstellt, die durch einen starken Tsunami herausgespült und anschließend mit känozoischen Fossilien aufgefüllt wurde. [ 2 ]
Siehe auch
Anmerkungen
- Das genaue Jahr war aufgrund mehrerer widersprüchlicher Angaben bisher nicht eindeutig geklärt. Eine Untersuchung bestehender historischer Belege durch Florence FJM Pieters und Kollegen aus dem Jahr 2012 legt nahe, dass das Jahr 1780 das genaueste Datum wäre. [ 14 ] Kürzlich berichteten Limburger Zeitungen im Jahr 2015, dass Ernst Homburg ein Lütticher Magazin aus jener Zeit entdeckt habe, in dem die Entdeckung des zweiten Schädels im Oktober 1778 detailliert beschrieben wird. [ 15 ]
- ^ hoffmannii war die ursprüngliche Schreibweise, die von Mantell verwendet wurde und auf -ii endete. [ 24 ] Spätere Autoren ließen den letzten Buchstaben weg und schrieben hoffmanni , wie es in den folgenden Jahren für Artnamen ähnlicher Struktur üblich wurde. Neuere Wissenschaftler argumentieren, dass die besondere etymologische Struktur von hoffmannii nicht unter die Artikel 32.5, 33.4 und 34 des Internationalen Codes der Zoologischen Nomenklatur fällt, die normalerweise ähnliche Schreibweisen schützen würden. Daher ist hoffmannii die gültige Schreibweise, obwohl hoffmanni weiterhin von vielen Autoren fälschlicherweise verwendet wird. [ 9 ]
- Da die Gattung Mosasaurus zu jener Zeit noch nicht existierte, beschrieb der Erstbeschreiber, Samuel L. Mitchill , das Fossil als ein echsenartiges Monster oder ein saurierartiges Tier, das dem berühmten Fossil von Maastricht ähnelte. [ 30 ] Cuvier bezweifelte , ob die beiden Exemplare verwandt waren. Die Verwandtschaft innerhalb derselben Gattung wurde schließlich1830 von James Ellsworth De Kay bestätigt, [ 30 ] und das Fossil aus New Jersey wurdeihm zu Ehren Mosasaurus dekayi genannt. [ 31 ] Das Taxon wurde 2005 zum Nomen dubium erklärt , [ 2 ] und weitere ihm zugeordnete Fossilien wurden als M. hoffmannii neu identifiziert . [ 32 ] [ 33 ] : 108
- Lingham -Soliar hat das Verhältnis möglicherweise falsch angewendet. Seine Berechnungen interpretierten die „Körperlänge“ als die Länge des postkranialen Körpers und nicht als die Gesamtlänge des Tieres, wie Russell (1967) gezeigt hat. Dies führte zu einer fälschlichen Überschätzung der Schätzung um 10 %. [ 40 ] : 210 [ 25 ]
- ^ Auch bekannt als Internarialbar [ 25 ]
- ^ Ein Exemplar, das traditionell M. lemonnieri zugeschrieben wird , weist an seinen Schneidekanten gezackte Merkmale auf. Wissenschaftler gehen davon aus, dass dieses Exemplar wahrscheinlich zu einer anderen Art gehört. [ 46 ]
- ^ Die Anzahl der Prismen bei M. conodon und die Anzahl der lingualen Prismen bei M. lemonnieri sind ungewiss. [ 49 ]
- ^ Diese Studie wurde nur an einem Zahn durchgeführt und repräsentiert möglicherweise nicht die genaue Dauer der Dentinbildung in allen Zähnen des Mosasaurus . [ 73 ]
- Die Anzahl der Schwanzwirbel ist bei M. conodon und M. hoffmannii nicht genau bekannt. Bei M. conodon wurden mindestens zehn dokumentiert, während die Anzahl bei M. hoffmannii völlig unbekannt ist . [ 10 ]
- ^ Street & Caldwell (2017) führten M. dekayi ebenfalls als potenziell gültige Art an [ 5 ], ohne jedoch näher auf ihren zweifelhaften Status einzugehen. [ 32 ] [ 33 ] : 108
- ^ Street & Caldwell (2017) revidierten diese Einschätzung von M. beaugei und kamen aufgrund zusätzlicher anatomischer Unterschiede zu dem Schluss, dass es sich um eine eigenständige Art handelt. [ 5 ]
- Da der Vorschlag auf eine Dissertation beschränkt bleibt, gilt er gemäß Artikel 8 der ICZN als unveröffentlichte Arbeit und ist daher noch nicht formell gültig . [ 75 ] [ 76 ]
- ^ Einige Studien wie Madzia & Cau (2017) finden auch Prognathodon und Plesiotylosaurus innerhalb der Mosasaurini. [ 79 ]
- ^ M. maximus ist ein nordamerikanisches Taxon, das Russell (1967) als eigenständige Art anerkannte. [ 40 ] : 138–141 Es wird heute allgemein als jüngeres Synonym von M. hoffmannii betrachtet , [ 7 ] obwohl einige Wissenschaftler die Auffassung vertreten, dass es sich um eine eigenständige Art handelt. [ 5 ] [ 33 ] : 204
- ^ maximus - hoffmannii war die in Russell (1967) verwendete Formulierung; dies trägt der Annahme einer engen Verwandtschaft zwischen den beiden Arten Rechnung. [ 40 ] : 140, 202
- Die 2018 eingereichte Masterarbeit von Cyrus Green widerspricht der Annahme, dass Clidastes ein Endothermer war. Sie basiert auf der Skeletchronologie der Gattung und kommt zu dem Schluss, dass die Wachstumsraten zu niedrig für Endothermie und stattdessen ektotherm waren. Die Dissertation argumentiert, dass die in Studien zu pro-endothermen Arten berechneten hohen Körpertemperaturen auf Gigantothermie zurückzuführen seien . Allerdings wurden nur vier Exemplare untersucht. [ 88 ]
- Zwei der 15 untersuchten Fossilien stammen aus der Niobrara-Formation [ 107 ] ,einer Ablagerung, in der man früher Mosasaurus vermutete [ 40 ] : 136 , deren Vorkommen dort aber heute nicht mehr nachgewiesen ist. [ 33 ] : 164, 294
- ^ Ein zweifelhaftes Taxon, das möglicherweise verschiedene Mosasaurier wie Gavialimimus oder Platecarpus somenensis repräsentiert [ 117 ]
Referenzen
- ^ James G. Ogg; Linda A. Hinnov (2012), „Kreide“, in: Felix M. Gradstein; James G. Ogg; Mark D. Schmitz; Gabi M. Ogg (Hrsg.), The Geologic Time Scale , Oxford: Elsevier, S. 793–853 , doi : 10.1016/B978-0-444-59425-9.00027-5 , ISBN 978-0-444-59425-9, S2CID 127523816
- ^ a b c William B. Gallagher (2005). „Neuere Mosasaurierfunde aus New Jersey und Delaware, USA: Stratigraphie, Taphonomie und Implikationen für das Aussterben der Mosasaurier“ . Netherlands Journal of Geosciences . 84 (3): 241–245 . Bibcode : 2005NJGeo..84..241G . doi : 10.1017/S0016774600021028 .
- ^ William B. Gallagher (1984). „Paläoökologie der Delaware-Valley-Region, Teil II: Kreide bis Quartär“ . The Mosasaur . 2 (1): 9–43 .
- Christian C. Obasi, Dennis O. Terry Jr., George H. Myer und David E. Grandstaff (2011). „Glaukonitzusammensetzung und -morphologie, Schockquarz und die Entstehung der kretazischen(?) Hauptfossilschicht (MFL) im südlichen New Jersey, USA“. Journal of Sedimentary Research . 81 (1): 479–494 . Bibcode : 2011JSedR..81..479O . doi : 10.2110/jsr.2011.42 .
- ^ a b c d e f g h i j k l m n o p Hallie P. Street; Michael W. Caldwell (2017). „Neudiagnose und Neubeschreibung von Mosasaurus hoffmannii (Squamata: Mosasauridae) und eine Bewertung der Arten, die der Gattung Mosasaurus zugeordnet sind “ . Geologisches Magazin . 154 (3): 521– 557. Bibcode : 2017GeoM..154..521S . doi : 10.1017/S0016756816000236 . S2CID 88324947 .
- ^ Joseph Leidy (1864). Cretaceous Reptiles of the United States . Vol. 14. Smithsonian Contributions to Knowledge. S. 30–120 .
- ^ T. Lynn Harrell Jr .; James E. Martin (2014). „Ein Mosasaurier aus der Maastrichtian Fox Hills Formation des nördlichen Western Interior Seaway der Vereinigten Staaten und die Synonymie von Mosasaurus maximus mit Mosasaurus hoffmanni (Reptilia: Mosasauridae)“ . Niederländisches Journal für Geowissenschaften . 94 (1): 23–37 . doi : 10.1017/njg.2014.27 . S2CID 131617632 .
- ^ a b c d e f Michael W. Caldwell; Gorden L. Bell Jr. (2005). „Von deutschen Fürsten und nordamerikanischen Flüssen: Harlans verschollene Mosasaurierschnauze wiederentdeckt“ . Netherlands Journal of Geosciences . 84 (3): 207–211 . Bibcode : 2005NJGeo..84..207C . doi : 10.1017/S0016774600020989 .
- Takuya Konishi, Michael Newbrey und Michael Caldwell (2014). „Ein kleines, exquisit erhaltenes Exemplar von Mosasaurus missouriensis ( Squamata , Mosasauridae ) aus dem oberen Campanium der Bearpaw-Formation in Westkanada und der erste Mageninhalt dieser Gattung“. Journal of Vertebrate Paleontology . 34 ( 4 ) : 802–819 . Bibcode : 2014JVPal..34..802K . doi : 10.1080/02724634.2014.838573 . JSTOR 24523386. S2CID 86325001 .
- Takehito Ikejiri ; Spencer G. Lucas (2015). „ Osteologie und Taxonomie von Mosasaurus conodon Cope 1881 aus der späten Kreidezeit Nordamerikas“ . Netherlands Journal of Geosciences . 94 (1): 39–54 . Bibcode : 2015NJGeo..94 ... 39I . doi : 10.1017/ njg.2014.28 . S2CID 73707936 .
- ^ Martinus van Marum (1790). „Beschrijving der bederen van den kop van eenen visch, gevonden in den St. Pietersberg bij Maastricht, en geplaatst in Teylers Museum“ [Beschreibung der Knochen eines Fischkopfes, die im St. Pietersberg bei Maastricht gefunden und im Teylers Museum aufbewahrt wurden]. Verhandelingen Teylers Tweede Genootschap (auf Niederländisch). 9 : 383–389 .
- ^ a b c Mike Everhart (14. Mai 2010). „ Mosasaurus hoffmanni – Die erste Entdeckung eines Mosasauriers?“ . Ozeane von Kansas . Archiviert vom Original am 4. September 2019 . Abgerufen am 6. November 2019 .
- ^ a b c d Eric Mulder (2004). „Maastricht Cretaceous finds and Dutch pioneers in vertebrate palaeontology“ . In Jacques LR Touret; Robert PW Visser (Hrsg.). Dutch Pioneers of the Earth Sciences . Königlich Niederländische Akademie der Wissenschaften . S. 165–176 . ISBN 978-9-069-84389-6Die
- ^ a b c d e Florence FJM Pieters; Peggy GW Rompen; John WM Jagt; Nathalie Bardet (2012). „Ein neuer Blick auf Faujas de Saint-Fonds fantastische Geschichte über die Herkunft und den Erwerb des Typusexemplars von Mosasaurus hoffmanni Mantell, 1829“. Bulletin der Société Géologique de France . 183 (1): 55–65 . doi : 10.2113/gssgfbull.183.1.55 . ISSN 0037-9409 . S2CID 130192719 .
- ^ Vikkie Bartholomeus (21. September 2015). „Datum vondst mosasaurus ontdekt: im oktober 1778“ [Datum der Entdeckung des Mosasaurus: im Oktober 1778]. 1Limburg (auf Niederländisch). Archiviert vom Original am 7. März 2020.
- ^ Petrus Camper (1786). „Vermutungen über die Versteinerungen auf dem St. Petersberg bei Maestricht“ . Philosophical Transactions of the Royal Society of London . 76 (2): 443–456 . doi : 10.1098/rstl.1786.0026 . ISSN 2053-9223 .
- ^ a b c d Florence FJM Pieters (2009). „Naturgeschichtliche Beute in den Niederlanden 1794/95: die Plünderung des Fossils Mosasaurus aus Maastricht und die Entfernung des Kabinetts und der Menagerie des Statthalters Wilhelm V.“ (PDF) . In Ellinoor Bergvelt; Debora J. Meijers; Lieske Tibbe; Elsa van Wezel (Hrsg.). Napoleons Vermächtnis: Der Aufstieg der Nationalmuseen in Europa, 1794-1830 . Berlin: G+H Verlag. S. 55–72 . hdl : 2066/79083 . ISBN 978-3-940939-11-1. S2CID 164995758 .
- ^ Barthélemy Faujas de Saint-Fond (1799). „Tête du crocodile“ [Krokodilkopf]. Histoire naturelle de la montagne de Saint-Pierre de Maestricht [ Naturgeschichte des Berges St. Peter von Maestricht ] (auf Französisch). Paris: HJ Jansen. S. 59–67 . OCLC 22224984 .
- ^ Adriaan Gilles Camper (1800). „Sur les ossements fossiles de la montagne de St. Pierre, à Maëstricht“ [Über die fossilen Knochen des Berges St. Peter in Maastricht]. Journal de Physique, de Chimie d'Histoire Naturelle et des Arts . 51 : 278–291 .
- ^ Georges Cuvier (1808). „Sur le grand animal fossile des carrières de Maestricht“ [Über das große fossile Tier der Steinbrüche von Maastricht]. Annales du Muséum d'Histoire naturelle (auf Französisch). 12 : 145–176 .
- ^ Mark Evans (2010). „Die Rolle von Museen, Sammlungen und Sammlern in der Frühgeschichte der Reptilienpaläontologie“. Geological Society, London, Special Publications . 343 (1): 5–29 . Bibcode : 2010GSLSP.343....5E . doi : 10.1144/SP343.2 . S2CID 84158087 .
- ^ William D. Conybeare (1822), „Fossile Krokodile und andere Saurier“ , in: James Parkinson (Hrsg.), Einführung in das Studium fossiler organischer Überreste , Bd. 3, London : Gedruckt für den Autor, S. 298
- ^ a b c Ben Creisler (2000). „Mosasauridae Translation and Pronunciation Guide“ . Dinosauria On-line . Archiviert vom Original am 2. Mai 2008.
- ^ a b Gideon Mantell (1829). „Eine tabellarische Anordnung der organischen Überreste der Grafschaft Sussex“ (PDF) . Transactions of the Geological Society of London . 2.3 : 201–216 . doi : 10.1144 /TRANSGSLB.3.1.201 . S2CID 84925439 .
- ^ a b c d e f g h i j k l m n o p q r s t u v w x y z aa ab ac ad ae Theagarten Lingham-Soliar (1995). „Anatomie und funktionelle Morphologie des größten bekannten Meeresreptils, Mosasaurus hoffmanni (Mosasauridae, Reptilia) aus der Oberkreide, Obermaastricht der Niederlande“ . Philosophische Transaktionen der Royal Society B . 347 (1320): 155– 180. Bibcode : 1995RSPTB.347..155L . doi : 10.1098/rstb.1995.0019 . JSTOR 55929 . S2CID 85767257 . Archiviert vom Original am 26. Oktober 2019.
- ^ „10. September 1804“ . Tagebücher der Lewis-und-Clark-Expedition . Archiviert vom Original am 11. November 2019. Abgerufen am 10. November 2019 .
- ^ a b c d Mike Everhart (21. Oktober 2013). „Der Goldfuß-Mosasaurier“ . Ozeane von Kansas . Archiviert vom Original am 2. Juni 2019 . Abgerufen am 10. November 2019 .
- ^ Richard Ellis (2003). Sea Dragons: Predators of the Prehistoric Oceans . University Press of Kansas. S. 216. ISBN 978-0-7006-1394-6Die
- Robert W. Meredith, James E. Martin und Paul N. Wegleitner (2007). „Der größte Mosasaurier (Squamata: Mosasauridae) aus dem Missouri-Flussgebiet (Späte Kreidezeit; Pierre-Schiefer-Gruppe) in South Dakota und seine Beziehung zu Lewis und Clark“ (PDF) . Geological Society of America Special Papers . 427 : 209–214 . doi : 10.1130/2007.2427(15) . ISBN 978-0-8137-2427-0. S2CID 11503297 .
- ^ a b c James Ellsworth De Kay (1830). „Über die Überreste ausgestorbener Reptilien der Gattungen Mosasaurus und Geosaurus, die in der Sekundärformation von New Jersey gefunden wurden; und über das Vorkommen der Substanz, die kürzlich von Dr. Buckland als Koprolith bezeichnet wurde, an demselben Fundort“ . Annalen des Lyceums für Naturgeschichte von New York . 3 : 134–141 .
- ↑ Heinrich Georg Bronn (1838). Lethaea Geognostica Oder Abbildungen und Beschreibungen Der für die Gebirgs-Formationen bezeichnendsten Versteinerungen [ Lethaea Geognostica Oder Abbildungen und Beschreibungen der für die Gebirgsformationen charakteristischsten Fossilien ] (auf Deutsch). Bd. 2. Stuttgart. P. 760. doi : 10.5962/bhl.title.59080 .
- ^ ein b Eric WA Mulder (1999). „Transatlantische neueste Kreidezeit-Mosasaurier (Reptilia, Lacertilia) aus dem Maastricht-Typusgebiet und New Jersey“. Geologie en Mijnbouw . 78 (3/4): 281–300 . doi : 10.1023/a:1003838929257 . S2CID 126956543 .
- ^ a b c d e f g h i j k l m n o p Hallie P. Street (2016). Eine Neubewertung der Gattung Mosasaurus (Squamata: Mosasauridae) (PDF) (PhD). Universität von Alberta. doi : 10.7939/R31N7XZ1K . S2CID 92749266 .
- ^ Richard Harlan (1834). „Notice of the Discovery of the Remains of the Ichthyosaurus in Missouri, NA“. Transactions of the American Philosophical Society . 4 : 405–408 . Bibcode : 1834TAPS....4..405H . doi : 10.2307 /1004839 . JSTOR 1004839. S2CID 135291243 .
- ^ Richard Harlan (1839). „Mitteilung über die Entdeckung von Basilosaurus und Batrachiosaurus “ . Proceedings of the Geological Society of London . 3 : 23–24 .
- ^ a b c August Goldfuß (1845). „Der Schädelbau des Mosasaurus , durch Beschreibung einer neuen Art dieser Gattung erläutert“ . Nova Acta Academiae Caesareae Leopoldino-Carolinae Germanicae Naturae Curiosorum (auf Deutsch). 21 : 174–200 .
- ^ Hermann von Meyer (1845). „(Brief an Professor Bronn)“ . Neues Jahrbuch für Mineralogie, Geognosie, Geologie und Petrefaktenkunde (auf Deutsch): 308–313 .
- ^ Joseph Leidy (1857). „Liste ausgestorbener Wirbeltiere, deren Überreste in der Region des Missouri River entdeckt wurden: mit Bemerkungen zu ihrem geologischen Alter“ . Proceedings of the Academy of Natural Sciences of Philadelphia . 9 : 89–91 .
- ^ a b Edward Drinker Cope (1881). „Ein neuer Clidastes aus New Jersey“ . American Naturalist . 15 : 587–588 .
- ^ a b c d e f g h i j k l Dale A. Russell (1967). Systematik und Morphologie der amerikanischen Mosasauren . Band 23. New Haven : Bulletin des Peabody Museum of Natural History. OCLC 205385 .
- ^ Donald Baird; Gerard R. Case (1966). „ Seltene Meeresreptilien aus der Kreidezeit von New Jersey“. Journal of Paleontology . 40 (5): 1211–1215 . ISSN 0022-3360 . JSTOR 1301995. S2CID 132840230 .
- ^ ein b Louis Dollo (1889). „Première note sur les mosasauriens de Mesvin“ [Erste Anmerkung zu den Mosasauriern von Mesvin]. Bulletin der Société belge de géologie, de paléontologie et d'hydrologie (auf Französisch). 3 : 271–304 . ISSN 0037-8909 .
- ^ a b c d e f g h i j k l m n Theagarten Lingham-Soliar (2000). „Der Mosasaurier Mosasaurus lemonnieri (Lepidosauromorpha, Squamata) aus der Oberkreide Belgiens und der Niederlande“. Paleontological Journal . 34 (Suppl. 2): S225– S237. ISSN 0031-0301 .
- ^ a b c Pablo Gonzalez Ruiz; Marta S. Fernandez; Marianella Talevi; Juan M. Leardi; Marcelo A. Reguero (2019). „Ein neuer Plotosaurini-Mosasaurier-Schädel aus dem oberen Maastrichtium der Antarktis. Plotosaurini-Paläogeographische Vorkommen“ . Kreideforschung . 103 (2019): 104166. Bibcode : 2019CrRes.10304166G . doi : 10.1016/j.cretres.2019.06.012 . HDL : 11336/125124 . S2CID 198418273 .
- ^ Eric WA Mulder; Dirk Cornelissen; Louis Verding (2004). Handelt es sich bei Mosasaurus Lemonnieri um einen jungen Mosasaurus Hoffmanni? Eine Diskussion . Erstes Mosasaurier-Treffen. S. 62–66 .
- ^ a b c Daniel Madzia (2019). „Zahnvariabilität und Unterscheidbarkeit bei Mosasaurus lemonnieri (Mosasauridae) aus dem Campanium und Maastrichtium Belgiens und Implikationen für taxonomische Bewertungen der Mosasauriden-Gebisse“. Historical Biology . 32 (10): 1–15 . doi : 10.1080/08912963.2019.1588892 . S2CID 108526638 .
- ^ Camille Arambourg (1952). Les vertébrés fossiles des gisements dephosphates (Marokko–Algérie–Tunesien) [ Fossile Wirbeltiere aus Phosphatvorkommen (Marokko–Algerien–Tunesien) ] (PDF) . Notes et Mémoires du Service Géologique (auf Französisch). Bd. 92. Paris : Typographie Firmin-Didot et Cie. S. 1, 282–284 . Archiviert vom Original (PDF) am 27. November 2022.
- ^ Nathalie Bardet; Xabier Pereda Suberbiola; Stephane Jouve; Estelle Bourdon; Peggy Vincent; Alexandra Houssaye; Jean-Claude Rage; Nour-Eddine Jalil; Baadi Bouya; Mbarek Amaghzaz (2010). „Reptilienansammlungen aus der jüngsten Kreidezeit – paläogene Phosphate Marokkos: von Arambourg bis zur Gegenwart“ . Historische Biologie . 22 ( 1– 3): 186– 199. Bibcode : 2010HBio...22..186B . doi : 10.1080/08912961003754945 . S2CID 128481560 .
- ^ a b c d e f g h i j k Nathalie Bardet; Xabier Pereda Suberbiola; Mohamed Iarochene; Fatima Bouyahyaoui; Baadi Bouya; Mbarek Amaghzaz (2004). „ Mosasaurus beaugei Arambourg, 1952 (Squamata, Mosasauridae) aus den Phosphaten der späten Kreidezeit Marokkos“ . Geobios . 37 (2004): 315–324 . Bibcode : 2004Geobi..37..315B . doi : 10.1016/j.geobios.2003.02.006 . S2CID 127441579 .
- ^ Hermann Schlegel (1854). „Note sur le mosasaure“ [Anmerkung zum Mosasaurier]. Comptes rendus hebdomadaires des séances de l'Académie des sciences (auf Französisch). 34 : 799–802 .
- ^ a b Eric Mulder; Bert Theunissen (1986). „Hermann Schlegels Untersuchung der Maastricht-Mosasaurier“ . Archives of Natural History . 13 (1): 1–6 . doi : 10.3366/anh.1986.13.1.1 .
- ^ a b Mark Witton (17. Mai 2019). „Die Wissenschaft der Crystal Palace Dinosaurier, Teil 2: Teleosaurus , Pterosaurier und Mosasaurus “ . Mark Witton.com . Archiviert vom Original am 3. Juni 2019.
- ^ Emily Osterloff. „Der erste Dinosaurierpark der Welt: Was die Viktorianer richtig und falsch gemacht haben“ . Archiviert vom Original am 18. April 2021.
- ^ Johan Lindgren; Michael W. Caldwell; Takuya Konishi; Luis M. Chiappe (2010). „Konvergente Evolution bei aquatischen Tetrapoden: Erkenntnisse aus einem außergewöhnlichen fossilen Mosasaurier“ . PLOS ONE . 5 (8) e11998. Bibcode : 2010PLoSO...511998L . doi : 10.1371/journal.pone.0011998 . PMC 2918493. PMID 20711249 .
- ^ a b Michael W. Caldwell (2012). „Eine Herausforderung für Kategorien: „Was, wenn überhaupt, ist ein Mosasaurier?“". Bulletin de la Société Géologique de France . 183 (1): 17–34 . doi : 10.2113/gssgfbull.183.1.7 .
- ^ a b c d Johan Lindgren; Michael J. Polcyn; Bruce A. Young (2011). „Vom Landratten zum Leviathan: Evolution des Schwimmens bei Mosasauriern“. Paleobiology . 37 ( 3): 445–469 . Bibcode : 2011Pbio...37..445L . doi : 10.1666/09023.1 . JSTOR 23014733. S2CID 85165085 .
- ^ a b c d Dimitry V. Grigoriev (2014). „Riesiger Mosasaurus hoffmanni (Squamata, Mosasauridae) aus der Oberkreide (Maastricht) von Pensa, Russland“ (PDF) . Tagungsband des Zoologischen Instituts RAS . 318 (2): 148– 167. doi : 10.31610/trudyzin/2014.318.2.148 . S2CID 53574339 . Archiviert (PDF) vom Original am 3. Oktober 2023.
- ^ Terri J. Cleary; Roger BJ Benson; Susan E. Evans; Paul M. Barrett (2018). „Lepidosaurierdiversität im Mesozoikum–Paläogen: Die potenzielle Rolle von Stichprobenverzerrungen und Umweltfaktoren“ . Royal Society Open Science . 5 (3) 171830. Bibcode : 2018RSOS....571830C . doi : 10.1098 / rsos.171830 . PMC 5882712. PMID 29657788 .
- ^ Fedrico Fanti; Andrea Cau; Alessandra Negri (2014). „Ein riesiger Mosasaurier (Reptilia, Squamata) mit ungewöhnlich verdrehtem Gebiss aus dem Argille-Scagliose-Komplex (spätes Campanium) Norditaliens“ (PDF) . Cretaceous Research . 49 (2014): 91–104 . Bibcode : 2014CrRes..49...91F . doi : 10.1016/j.cretres.2014.01.003 .
- ^ a b Joel H. Gayford; Russell K. Engelman; Phillip C. Sternes; Wayne M. Itano; Mohamad Bazzi; Alberto Collareta; Rodolfo Salas-Gismondi; Kenshu Shimada (2024). „Warnende Beispiele für die Verwendung von Proxydaten zur Schätzung von Körpergröße und -form ausgestorbener Tiere“ . Ecology and Evolution . 14 (9). e70218. Bibcode : 2024EcoEv..1470218G . doi : 10.1002/ece3.70218 . PMC 11368419. PMID 39224151 .
- ^ Michael Everhart; John WM Jagt; Eric WA Mulder; Anne S. Schulp (2016). Mosasaurier – Wie groß wurden sie wirklich? 5. Triennale Mosasaurier-Tagung – Eine globale Perspektive auf mesozoische marine Amnioten. S. 8–10 .
- ^ ein b Louis Dollo (1892). „Nouvelle note sur l'osteologie des mosasauriens“ [Neue Anmerkung zur Osteologie der Mosasaurier]. Bulletin der Société belge de géologie, de paléontologie et d'hydrologie (auf Französisch). 6 : 219–259 . ISSN 0037-8909 .
- ^ Michael J. Polcyn; Louis L. Jacobs; Ricardo Araújo; Anne S. Schulp; Octávio Mateus (2014). „Physikalische Treiber der Mosasaurier-Evolution“ (PDF) . Paläogeographie, Paläoklimatologie, Paläoökologie . 400 (15): 17– 27. Bibcode : 2014PPP...400...17P . doi : 10.1016/j.palaeo.2013.05.018 .
- ^ Michael D. D'Emic; Kathlyn M. Smith; Zachary T. Ansley (2015). „Ungewöhnliche Histologie und Morphologie der Rippen von Mosasauriern (Squamata)“ . Palaeontology . 58 (3): 511–520 . Bibcode : 2015Palgy..58..511D . doi : 10.1111/pala.12157 . S2CID 129177236 .
- ^ a b c d Carolyn Gramling (26. Oktober 2016). „Ungewöhnliches Fossil enthüllt Kampf eines uralten Seeungeheuers“ . Science . doi : 10.1126/science.aal0310 .
- ^ Nathalie Bardet; Alexandra Houssaye; Peggy Vincent; Xabier Pereda Suberbiola; M'barek Amaghzaz; Essay Jourani; Saïd Meslouh (2015). „Mosasauriden (Squamata) aus den Maastricht-Phosphaten Marokkos: Biodiversität, Paläobiogeographie und Paläoökologie basierend auf Zahnmorphogilden“ . Gondwana-Forschung . 27 (3): 1068–1078 . Bibcode : 2015GondR..27.1068B . doi : 10.1016/j.gr.2014.08.014 . S2CID 140596842 .
- ^ Mike Everhart (1. Januar 2010). „Mosasauriergehirn“ . Oceans of Kansas . Archiviert vom Original am 6. November 2020.
- ^ a b c d e f g h i j Anne S. Schulp; Hubert B. Vonhof; Jeroen van der Lubbe; Renée Janssen; Remy R. van Baal (2013). „Über Tauchen und Ernährung: Ressourcenaufteilung bei Mosasauriern vom Typ Maastricht“ . Niederländisches Journal für Geowissenschaften . 92 ( 2– 3): 165– 170. Bibcode : 2013NJGeo..92..165S . doi : 10.1017/S001677460000010X . S2CID 131884448 .
- ^ Anne S. Schulp; Michael J. Polcyn; Octavio Mateus; Louis L. Jacobs; Maria Lusia Morais; Tatiana da Silva Tavares (2006). „Neues Mosasauriermaterial aus dem Maastricht von Angola, mit Anmerkungen zur Phylogenie, Verbreitung und Paläoökologie der Gattung Prognathodon “ (PDF) . Publicaties van het Natuurhistorisch Genootschap in Limburg . 45 (1): 57–67 . ISSN 0374-955X .
- ^ a b Clint A. Boyd (2017). „Eine neue Ergänzung zum Kreidezeit-Meeresweg von North Dakota“ (PDF) . Geo News . Band 44, Nr. 1. North Dakota Geological Society. S. 20–23 .
- ^ Mike Everhart (26. März 2009). „Samuel Wilsons Mosasaurus horridus “ . Ozeane von Kansas . Archiviert vom Original am 2. Juni 2021.
- ^ Michael W. Caldwell (2007). „Ontogenese, Anatomie und Befestigung des Gebisses bei Mosasauriern (Mosasauridae: Squamata)“ . Zoologisches Journal der Linnean Society . 149 (4): 687–700 . doi : 10.1111/j.1096-3642.2007.00280.x .
- ^ ein b Anusuya Chinsamy; Cemal Tunoǧlu; Daniel B. Thomas (2012). „Zahnmikrostruktur und Geochemie von Mosasaurus hoffmanni (Squamata: Mosasauridae) aus der späten Kreidezeit der Türkei“. Bulletin der Société Géologique de France . 183 (2): 85–92 . doi : 10.2113/gssgfbull.183.2.85 .
- ^ Johan Lindgren; Hani F. Kaddumi; Michael J. Polcyn (2013). „Erhaltung von Weichgewebe bei einer fossilen Meeresechse mit zweilappiger Schwanzflosse“ . Nature Communications . 4 (2423): 2423. Bibcode : 2013NatCo...4.2423L . doi : 10.1038/ncomms3423 . PMID 24022259 .
- ^ Internationale Kommission für Zoologische Nomenklatur (2012). „Artikel 8. Was gilt als veröffentlichte Arbeit?“ . Internationaler Code der Zoologischen Nomenklatur (4. Aufl.) . Abgerufen am 16. Juli 2021 .
- ^ Mike Taylor (8. Juni 2010). „ Anmerkungen zu frühmesozoischen Theropoden und zur Zukunft der zoologischen Nomenklatur“ . Sauropodenwirbelbild der Woche . Archiviert vom Original am 9. März 2021.
- ^ Natalia B. Ananjeva (2019). „Aktueller Stand der Probleme in der Phylogenie von Squamate-Reptilien (Squamata, Reptilia)“. Rezensionen zum Biology Bulletin . 9 (2): 119– 128. Bibcode : 2019BioBR...9..119A . doi : 10.1134/s2079086419020026 . S2CID 162184418 .
- ^ a b c Aaron RH LeBlanc; Michael W. Caldwell; Nathalie Bardet (2012). „Ein neues Mosasaurin aus den Maastricht-Phosphaten (Oberkreide) Marokkos und seine Auswirkungen auf die Mosasaurin-Systematik“ . Zeitschrift für Wirbeltierpaläontologie . 32 (1): 82– 104. Bibcode : 2012JVPal..32...82L . doi : 10.1080/02724634.2012.624145 . JSTOR 41407709 . S2CID 130559113 .
- ^ a b c d Daniel Madzia; Andrea Cau (2017). „Inferring 'weak spots' in phylogenetic trees: application to mosasauroid nomenclature“ . PeerJ . 5e3782 . Bibcode : 2017PeerJ ...5e3782M . doi : 10.7717/peerj.3782 . PMC 5602675. PMID 28929018 .
- ^ Hallie P. Street (2017). „Neubewertung der Mosasaurini auf der Grundlage einer systematischen Revision von Mosasaurus “ . Vertebrate Anatomy Morphology Palaeontology . 4. 42. ISSN 2292-1389 .
- ^ a b c d Gorden L. Bell Jr. (1997). „Eine phylogenetische Revision der nordamerikanischen und adriatischen Mosasauroidea“. Alte Meeresreptilien . Akademische Presse. S. 293–332 . doi : 10.1016/b978-012155210-7/50017-x . ISBN 978-0-12-155210-7Die
- ^ a b Tiago R. Simões; Oksana Vernygora; Ilaria Paparella; Paulina Jimenez-Huidobro; Michael W. Caldwell (2017). „ Mosasauroiden-Phylogenie unter Anwendung verschiedener phylogenetischer Methoden liefert neue Erkenntnisse zur Evolution aquatischer Anpassungen in dieser Gruppe“ . PLOS ONE . 12 (5) e0176773. Bibcode : 2017PLoSO..1276773S . doi : 10.1371/journal.pone.0176773 . PMC 5415187. PMID 28467456 .
- ^ Dimitry V. Grigoriev (2013). „Neubeschreibung von Prognathodon lutugini (Squamata, Mosasauridae)“ (PDF) . Tagungsband des Zoologischen Instituts RAS . 317 (3): 246–261 . doi : 10.31610/trudyzin/2013.317.3.246 . S2CID 189800203 .
- ^ Jack L. Conrad (2008). „Phylogenie und Systematik der Schuppenkriechtiere (Reptilien) auf morphologischer Grundlage“. Bulletin of the American Museum of Natural History . 310 : 1–182 . doi : 10.1206/310.1 . S2CID 85271610 .
- ^ Keith A. Metzger; Anthony Herrel (2002). „Trägheitsfressen bei Reptilien: Die Rolle der Schädelmassenreduktion“ . Archiviert vom Original am 10. Juni 2021.
- ^ Theagarten Lingham-Soliar (1991). „Fortbewegung bei Mosasauriern“. Modern Geology . 16 : 229–248 .
- Alexandra Houssaye; Johan Lindgren; Rodrigo Pellegrini; Andrew H. Lee; Damien Germain; Michael J. Polcyn (2013). „Mikroanatomische und histologische Merkmale in den langen Knochen von Mosasauriern (Reptilia, Squamata) – Implikationen für die Anpassung an das Wasser und die Wachstumsraten“ . PLOS ONE . 8 (10) e76741. Bibcode : 2013PLoSO...876741H . doi : 10.1371/journal.pone.0076741 . PMC 3797777. PMID 24146919 .
- ^ Cyrus C. Green (2018). Osteohistologie und Skelettchronologie einer ontogenetischen Reihe von Clidasten (Squamata: Mosasauridae): Wachstum und Stoffwechsel bei basalen Mosasauriden (MS). Fort Hays State University. doi : 10.58809/MQVC1909 . S2CID 91615758 .
- Glenn J. Tattersall; Cleo A. C. Leite; Colin E. Sanders; Viviana Cadena; Denis V. Andrade; Augusto S. Abe; William K. Milsom (2016). „Saisonale reproduktive Endothermie bei Teju-Echsen“ . Science Advances . 2 (1) e1500951. Bibcode : 2016SciA....2E0951T . doi : 10.1126 / sciadv.1500951 . PMC 4737272. PMID 26844295 .
- ^ a b T. Lynn Harrell Jr.; Alberto Pérez-Huerta; Celina A. Suarez (2016). „Endotherme Mosasaurier? Mögliche Thermoregulation von Mosasauriern (Reptilia, Squamata) der späten Kreidezeit, angedeutet durch stabile Sauerstoffisotope in fossilem Bioapatit im Vergleich zu gleichaltrigen Meeresfischen und pelagischen Seevögeln“ . Palaeontology . 59 (3): 351–363 . Bibcode : 2016Palgy..59..351H . doi : 10.1111/pala.12240 . S2CID 130190966 .
- ^ a b Vanessa C. Bowman; Jane E. Francis; James B. Riding (2013). „Wintereis in der Antarktis während der späten Kreidezeit?“ (PDF) . Geology . 41 (12): 1227–1230 . Bibcode : 2013Geo....41.1227B . doi : 10.1130/G34891.1 . S2CID 128885087 .
- ^ a b c d e f James E. Martin (2006). „Biostratigraphie der Mosasauridae (Reptilia) aus der Kreidezeit der Antarktis“. Geological Society, London, Special Publications . 258 (1): 101–108 . Bibcode : 2006GSLSP.258..101M . doi : 10.1144/gsl.sp.2006.258.01.07 . S2CID 128604544 .
- ^ Martin S. Fernandez; Zulma Gasparini (2012). „Kampanische und maastrichtische Mosasaurier von der Antarktischen Halbinsel und Patagonien, Argentinien“. Bulletin der Société Géologique de France . 183 (2): 93–102 . doi : 10.2113/gssgfbull.183.2.93 .
- ^ Takuya Konishi; Michael W. Caldwell; Tomohiro Nishimura; Kazuhiko Sakurai; Kyo Tanoue (2015). „Ein neuer Halisaurin-Mosasaurier (Squamata: Halisaurinae) aus Japan: die erste Aufzeichnung im westlichen Pazifikraum und die ersten dokumentierten Erkenntnisse über das binokulare Sehen bei Mosasauriern“ . Zeitschrift für Systematische Paläontologie . 14 (10): 809–839 . doi : 10.1080/14772019.2015.1113447 . S2CID 130644927 .
- ^ David van der Mark; Wietse ten Hoor (2024). Eine Berechnung der Beschleunigungsfähigkeiten von Mosasaurus hoffmanni(PDF) . 7. Triennale Mosasaur-Treffen – Eine globale Perspektive auf mesozoische marine Amnioten. S. 120–121 .
- ^ a b c John A. Robbins (2010). Untersuchung des Klimawandels im Holozän auf den nördlichen Kanalinseln und der Ökologie der Mosasaurier in der Kreidezeit mithilfe stabiler Isotope (Dissertation). Southern Methodist University. ISBN 978-1-124-43286-1Archiviert vom Original am 21. Juni 2021.
- ^ Femke M. Holwerda; Jordan Bestwick; Mark A. Purnell; John WM Jagt; Anne S. Schulp (2023). „Dreidimensionale Zahnmikrobekleidung in Mosasaurierzähnen vom Typ Maastricht (Reptilia, Squamata)“ . Wissenschaftliche Berichte . 13 (1). 18720. Bibcode : 2023NatSR..1318720H . doi : 10.1038/s41598-023-42369-7 . ISSN 2045-2322 . PMC 10636054 . PMID 37945619 .
- ^ Femke M. Holwerda; Mark T. Mitchell; Madelon van de Kerk; Anne S. Schulp (2025). „Mosasaur Feeding Ecology from the Campanian Bearpaw Formation, Alberta, Canada: A Preliminary Multi-Proxy Approach“ . Diversity . 17 (3). 205. Bibcode : 2025Diver..17..205H . doi : 10.3390/d17030205 . ISSN 1424-2818 . S2CID 277013757 .
- ^ Lars PJ Barten; John WM Jagt; Eric WA Mulder (2024). Der Darminhalt eines subadulten Individuums von Mosasaurus hoffmannii Mantell, 1829 aus dem Maastricht-Typusgebiet (Niederlande) weist auf die Ernährungspräferenzen der Art hin (PDF) . 7. alle drei Jahre stattfindendes Mosasaurier-Treffen – Eine globale Perspektive auf mesozoische Meeresamnioten. S. 23–26 .
- ^ Erle G. Kauffman (2004). „Mosasaur Predation on Upper Cretaceous Nautiloids and Ammonites from the United States Pacific Coast“ (PDF) . PALAIOS . 19 (1): 96–100 . Bibcode : 2004Palai..19...96K . doi : 10.1669/0883-1351(2004)019<0096:MPOUCN>2.0.CO;2 . S2CID 130690035 .
- ^ Gorden L. Bell Jr.; James E. Martin (1995). „Direkter Beweis für aggressive intraspezifische Konkurrenz bei Mosasaurus conodon (Mosasauridae:Squamata)“. Zeitschrift für Wirbeltierpaläontologie . 15 (ergänzt zu 3): 18A. doi : 10.1080/02724634.1995.10011277 .
- ^ Takuya Konishi. „Alles Mosasaurus“ . Takuya Konishi, PhD . Archiviert vom Original am 24. März 2021.
- ^ a b Theagarten Lingham-Soliar (2004). „Paläopathologie und Verletzungen bei den ausgestorbenen Mosasauriern (Lepidosauromorpha, Squamata) und Implikationen für moderne Reptilien“ . Lethaia . 37 (3): 255–262 . Bibcode : 2004Letha..37..255L . doi : 10.1080/00241160410006519 .
- ^ ein b Anne S. Schulp; Geert HIM Walenkamp; Paul AM Hofman; Yvonne Stuip; Bruce M. Rothschild (2006). „Chronische Knocheninfektion im Kiefer von Mosasaurus hoffmanni (Squamata)“ (PDF) . Oryktos . 6 (2006): 41– 52. ISSN 1290-4805 .
- ^ a b Bruce M. Rothschild; Larry D. Martin (2005). „Mosasaur ascending: the phytogeny of bends“ . Netherlands Journal of Geosciences . 84 (Sonderausgabe 3): 341–344 . Bibcode : 2005NJGeo..84..341R . doi : 10.1017/S0016774600021120 .
- ^ a b Agnete Weinreich Carlsen (2017). „Häufigkeit der Dekompressionskrankheit bei rezenten und ausgestorbenen Säugetieren und „Reptilien“: eine Übersicht“. The Science of Nature . 104 ( 7–8 ) 56. Bibcode : 2017SciNa.104...56C . doi : 10.1007/s00114-017-1477-1 . PMID 28656350. S2CID 23194069 .
- Bruce Rothschild und Michael J. Everhart (2015). „Gemeinsame Verknöcherung der Wirbel bei Mosasauriern (Squamata, Mosasauridae); Hinweise auf Wechselwirkungen mit dem Lebensraum und Anfälligkeit für Knochenerkrankungen“ . Transactions of the Kansas Academy of Science . 118 ( 3–4 ): 265–275 . doi : 10.1660/062.118.0309 . S2CID 83690496 .
- ^ a b c d e Daniel J. Field; Aaron LeBlanc; Adrienne Gau; Adam D. Behlke (2015). „Pelagische neonatale Fossilien stützen die Lebendgeburt und den frühreifen Lebenszyklus von Mosasauriern der Kreidezeit“ . Palaeontology . 58 (3): 401–407 . Bibcode : 2015Palgy..58..401F . doi : 10.1111/pala.12165 . S2CID 4660322 .
- ^ a b Gorden L. Bell Jr.; M. Amy Sheldon; James P. Lamb; James E. Martin (1996). „Der erste direkte Nachweis von Lebendgeburten bei Mosasauridae (Squamata): Außergewöhnliche Erhaltung im Pierre Shale der Kreidezeit in South Dakota“. Journal of Vertebrate Paleontology . 16 (Suppl. zu 3): 21A. doi : 10.1080/02724634.1996.10011371 .
- ^ Alexandra Houssaye; Paul Tafforeau (2012). „Was die Wirbelmikroanatomie über die Ökologie juveniler Mosasaurier (Reptilia, Squamata) verrät“. Journal of Vertebrate Paleontology . 32 (5): 1042–1048 . Bibcode : 2012JVPal..32.1042H . doi : 10.1080/02724634.2012.680999 . S2CID 84662320 .
- ^ James E. Martin (2002). „Juvenile Meeresreptilien aus der späten Kreidezeit der Antarktischen Halbinsel und ihre Beziehungen zu anderen Funden dieser Art im zentralen Süddakota und in Belgien“ (PDF) . Proceedings of the South Dakota Academy of Science . 81 : 53–57 . Archiviert vom Original (PDF) am 15. November 2023.
- ^ a b c d e f g h i j k Nathalie Bardet (2012). „Maastrichtische Meeresreptilien der Mittelmeer-Tethys: ein paläobiogeographischer Ansatz“. Bulletin der Société Géologique de France . 183 (6): 573–596 . Bibcode : 2012BSGF..183..573B . doi : 10.2113/gssgfbull.183.6.573 .
- ^ a b c Elizabeth L. Nicholls und Anthony P. Russell (1990). „Paläobiogeographie des westlichen Binnenmeeres Nordamerikas aus der Kreidezeit: die Wirbeltierfunde“. Palaeogeography, Palaeoclimatology, Palaeoecology . 79 ( 1–2 ): 149–169 . Bibcode : 1990PPP....79..149N . doi : 10.1016/0031-0182(90)90110-S .
- ^ a b David B. Kemp; Stuart A. Robinson; J. Alistair Crame; Jane E. Francis; Jon Ineson; Rowan J. Whittle; Vanessa Bowman; Charlotte O'Brien (2014). „Ein kühl-gemäßigtes Klima auf der Antarktischen Halbinsel von der späten Kreidezeit bis zum frühen Paläogen“ . Geology . 42 (7): 583–586 . Bibcode : 2014Geo....42..583K . doi : 10.1130/g35512.1 . hdl : 2164/4380 .
- ^ Jose-Carmelo Corral; Ana Berreteaga; Henri Cappetta (2016). „Obermaastrichtische Flachwassermilieus und neoselachische Vergesellschaftungen im nordiberischen Paläomarginal (Kastilische Rampe, Spanien)“. Cretaceous Research . 57 : 639–661 . Bibcode : 2016CrRes..57..639C . doi : 10.1016/j.cretres.2015.08.001 .
- ^ Matt Friedman (2012). „Strahlenflosser (Osteichthyes, Actinopterygii) aus dem Typus-Maastrichtium, den Niederlanden und Belgien“ . Scripta Geologica (8): 113–142 .
- ^ Catherine RC Strong; Michael W. Caldwell; Takuya Konishi; Alessandro Palci (2020). „Eine neue Art eines langbeinigen Plioplatecarpinen Mosasauriers (Squamata: Mosasauridae) aus der späten Kreidezeit Marokkos, mit einer Neubewertung des problematischen Taxons ‚Platecarpus‘ ptychodon “ . Journal of Systematic Palaeontology . 18 (21): 1769–1804 . Bibcode : 2020JSPal..18.1769S . doi : 10.1080/14772019.2020.1818322 .
- ^ Steven M. Stanley (1999). Geschichte des Erdsystems . New York: WH Freeman and Company. S. 487–489 . ISBN 978-0-7167-2882-5Die
- ^ a b Michael J. Everhart (2017). Oceans of Kansas . Indiana University Press. S. 24–263 . ISBN 978-0-253-02632-3Die
- ^ Shaoneng He; T. Kurtis Kyser; William GE Caldwell (2005). „Paläoumwelt des Western Interior Seaway, abgeleitet aus δ18O- und δ13C-Werten von Mollusken aus dem kretazischen Bearpaw-Meereszyklothem“ . Palaeogeography, Palaeoclimatology, Palaeoecology . 217 ( 1–2 ): 67–85 . Bibcode : 2005PPP...217...67H . doi : 10.1016/j.palaeo.2004.11.016 . S2CID 129666891 .
- ^ Cynthia G. Fisher; Michael A. Arthur (2002). „Wassermassencharakteristika im Cenomanium-Meeresweg des westlichen Binnenlandes der USA, dargestellt durch stabile Isotope kalkhaltiger Organismen“. Palaeogeography, Palaeoclimatology, Palaeoecology . 188 ( 3–4 ): 89–213 . Bibcode : 2002PPP...188..189F . doi : 10.1016/S0031-0182(02)00552-7 .
- ^ a b c d e Caitlin R. Kiernan (2002). „Stratigraphische Verteilung und Lebensraumtrennung von Mosasauriern in der Oberkreide von West- und Zentralalabama, mit einem historischen Rückblick auf die Entdeckungen von Mosasauriern in Alabama“ . Zeitschrift für Wirbeltierpaläontologie . 22 (1): 91– 103. doi : 10.1671/0272-4634(2002)022[0091:sdahso]2.0.co;2 . S2CID 130280406 .
- ^ Andrew D. Gentry; James F. Parham; Dana J. Ehret; Jun A. Ebersole (2018). „Eine neue Art von Peritresius Leidy, 1856 (Testudines: Pan-Cheloniidae) aus der späten Kreidezeit (Campanium) von Alabama, USA, und das Vorkommen der Gattung in der Mississippi-Bucht Nordamerikas“ . PLOS ONE . 13 (4) e0195651. Bibcode : 2018PLoSO..1395651G . doi : 10.1371/ journal.pone.0195651 . PMC 5906092. PMID 29668704 .
- ^ a b c Jun Ebersole; Takehito Ikejiri; Harry Lyon Blewitt; Sandy Ebersole (2013). „Ein Überblick über die Wirbeltiere der späten Kreidezeit aus Alabama“ . Bulletin of the Alabama Museum of Natural History . 31 (1): 46–70 .
- ^ Paulina Jiménez-Huidobro; Michael W. Caldwell (2019). „Eine neue Hypothese der phylogenetischen Beziehungen der Tylosaurinae (Squamata: Mosasauroidea)“ . Grenzen in der Geowissenschaft . 7 (47): 47. Bibcode : 2019FrEaS...7...47J . doi : 10.3389/feart.2019.00047 .
- ^ Todd Cook; Eric Brown; Patricia E. Ralrick; Takuya Konishi (2017). „Eine spätcampanische Euselachien-Vergesellschaftung aus der Bearpaw-Formation von Alberta, Kanada: einige bemerkenswerte Arealerweiterungen“. Canadian Journal of Earth Sciences . 54 (9): 973–980 . Bibcode : 2017CaJES..54..973C . doi : 10.1139/cjes-2016-0233 . hdl : 1807/77762 .
- ^ a b Tim T. Tokaryk; CR Harington (1992). " Baptornis sp. (Aves: Hesperornithiformes) aus der Judith River Formation (Campanium) von Saskatchewan, Kanada". Journal of Paleontology . 66 (6): 1010–1012 . Bibcode : 1992JPal...66.1010T . doi : 10.1017/S002233600002093X . S2CID 130444236 .
- ^ Tamaki Sato (2003). „ Terminonatator ponteixensis , ein neuer Elasmosaurier (Reptilia; Sauropterygia) aus der Oberkreide von Saskatchewan“. Journal of Vertebrate Paleontology . 23 (1): 89–103 . doi : 10.1671/0272-4634(2003)23[89:tpanes]2.0.co;2 . S2CID 130373116 .
- ^ Tamaki Sato (2005). „Ein neuer Polycotyliden-Plesiosaurier (Reptilia: Sauropterygia) aus der oberkretazischen Bearpaw-Formation in Saskatchewan, Kanada“. Journal of Paleontology . 79 (5): 969–980 . doi : 10.1666/0022-3360(2005)079[0969:anpprs]2.0.co;2 . S2CID 131128997 .
- ^ John W. Hoganson; Brett Woodward (2004). „Skelett der seltenen Riesenschildkröte Archelon , gefunden im DeGrey-Member der Pierre-Schieferformation aus der Kreidezeit bei Cooperstown, Griggs County, North Dakota“ (PDF) . North Dakota Geological Society Newsletter . 32 (1): 1–4 . Archiviert vom Original (PDF) am 3. Juni 2020.
- ^ David J. Cicimurri; Gorden L. Bell, Jr.; Philip W. Stoffer (1999). „Wirbeltierpaläontologie der Pierre Shale- und Fox Hills-Formationen (spätes Campanium-spätes Maastrichtium) des Badlands-Nationalparks, South Dakota“ (PDF) . National Park Service Paleontological Research . 4 : 1–7 .
- ^ Thomas S. Tobin; Peter D. Ward; Eric J. Steig; Eduardo B. Olivero; Isaac A. Hilburn; Ross N. Mitchell; Matthew R. Diamond; Timothy D. Raub; Joseph L. Kirschvink (2012). „Aussterbemuster, δ¹⁸O-Trends und Magnetostratigraphie eines südlichen Kreide-Paläogen-Profils in hohen Breiten: Verbindungen zum Dekkan-Vulkanismus“ . Palaeogeography, Palaeoclimatology, Palaeoecology . 350–352 : 180–188 . Bibcode : 2012PPP...350..180T . doi : 10.1016/j.palaeo.2012.06.029 .
- ^ Rodrigo A. Otero; Sergio Soto-Acuña; David Rubilar-Rogers; Carolina S. Gutstein (2017). „ Kaikaifilu hervei gen. et sp. nov., ein neuer großer Mosasaurier (Squamata, Mosasauridae) aus dem oberen Maastrichtium der Antarktis“. Kreideforschung . 70 : 209–225 . Bibcode : 2017CrRes..70..209O . doi : 10.1016/j.cretres.2016.11.002 .
- ^ José P. O'Gorman; Karen M. Panzeri; Marta S. Fernández; Sergio Santillana; Juan J. Moly; Marcelo Reguero (2018). „Ein neues Elasmosaurid aus der oberen Maastricht-López-de-Bertodano-Formation: neue Daten zur Weddellonektien-Diversität“ . Alcheringa: Eine australasiatische Zeitschrift für Paläontologie . 42 (4): 575– 586. Bibcode : 2018Alch...42..575O . doi : 10.1080/03115518.2017.1339233 . HDL : 11336/49635 . S2CID 134265841 .
- ^ Alberto L. Cione; Sergio Santillana; Soledad Gouiric-Cavalli; Carolina Acosta Hospitaleche; Javier N. Gelfo; Guillermo M. Lopez; Marcelo Reguero (2018). „Vor und nach dem K/Pg-Aussterben in der Westantarktis: Neue Meeresfischaufzeichnungen von der Insel Marambio (Seymour)“. Kreideforschung . 85 : 250–265 . Bibcode : 2018CrRes..85..250C . doi : 10.1016/j.cretres.2018.01.004 . HDL : 10915/147537 . S2CID 133767014 .
- ^ a b c T. Lynn Harrell Jr.; Alberto Pérez-Huerta (2014). „Habitatpräferenzen von Mosasauriern, angezeigt durch den Gehalt an Seltenen Erden (SEE) in Fossilien aus den marinen Ablagerungen der Oberkreide von Alabama, New Jersey und South Dakota (USA)“ . Netherlands Journal of Geosciences . 94 (1): 145–154 . doi : 10.1017/njg.2014.29 . S2CID 128587386 .
- ^ Johan Lindgren (2005). „Die erste Aufzeichnung von Hainosaurus (Reptilia: Mosasauridae) aus Schweden“ (PDF) . Zeitschrift für Paläontologie . 79 (6): 1157–1165 . Bibcode : 1998Letha..31..308L . doi : 10.1111/j.1502-3931.1998.tb00520.x . S2CID 128711108 .
- ^ Theagarten Lingham-Soliar (1998). „Ungewöhnlicher Tod eines Kreideriesen“ (PDF) . Lethaia . 31 (4): 308–310 . Bibcode : 1998Letha..31..308L . doi : 10.1111/j.1502-3931.1998.tb00520.x . S2CID 128711108 .
- ^ a b c d William B. Gallagher; Carl E. Campbell; John WM Jagt; Eric WA Mulder (2005). „Mosasaurier-Material (Reptilia, Squamata) aus dem Kreide-Tertiär-Grenzintervall in Missouri“ . Zeitschrift für Wirbeltierpaläontologie . 25 (22): 473– 475. doi : 10.1671/0272-4634(2005)025[0473:mrsmft]2.0.co;2 . S2CID 130130952 .
- ^ Thomas R. Holtz (2006). „GEOL 104 Vorlesung 38: Das Massenaussterben an der Kreide-Tertiär-Grenze III: Nicht mit einem Knall, sondern mit einem Wimmern“ . Geologisches Institut der Universität Maryland . Archiviert vom Original am 13. März 2012.
- ^ John W. Jagt; Dirk Cornelissen; Eric W. Mulder; Anne S. Schulp; Jacques Severinjns; Louis Verding (2008). „Der bisher jüngste In-situ -Nachweis von Mosasaurus hoffmannii (Squamata, Mosasauridae) aus dem Maastricht-Typusgebiet, Niederlande“ . Tagungsband des zweiten Mosasaurus-Treffens : 73–80 .
- ^ Kunio Kaiho; Naga Oshima; Kouji Adachi; Yukimasa Adachi; Takuya Mizukami; Megumu Fujibayashi; Ryosuke Saito (2016). „Globaler Klimawandel durch Ruß an der K-Pg-Grenze als Ursache des Massenaussterbens“ . Scientific Reports . 6 (1): 1–13 . Bibcode : 2016NatSR...628427K . doi : 10.1038/ srep28427 . PMC 4944614. PMID 27414998 .
Externe Links
 Medien zum Thema Mosasaurus auf Wikimedia Commons
 Daten zu Mosasaurus auf Wikispecies
- Ozeane von Kansas