
Meiose ( / m aɪ ˈ oʊ s ɪ s / ) [ a ] ist eine spezielle Form derZellteilungvonKeimzellenbeisich sexuell fortpflanzendenOrganismen, bei der dieGameten, alsoSpermienoderEizellen,. Sie umfasst zwei Teilungsrunden, die letztendlich zu vier Zellen führen, von denen jede nur einen Satz jedesChromosoms(haploidein Crossing-over statt, bei dem genetisches Material der väterlichen und mütterlichen Kopien jedes Chromosoms, wodurch neue Kombinationen von genetischem Code auf jedem Chromosom entstehen. [ 3 ] Später, währendder Befruchtung, verschmelzen die durch Meiose entstandenen haploiden Zellen von Männchen und Weibchen zu einerZygote, einer Zelle mit zwei Sätzen jedes Chromosoms.
Fehler in der Meiose, die zu Aneuploidie (einer abnormalen Anzahl von Chromosomen) führen, sind die häufigste bekannte Ursache für Fehlgeburten und die häufigste genetische Ursache für Entwicklungsstörungen . [ 4 ]
In der Meiose folgt auf die DNA-Replikation eine zweimalige Zellteilung, wodurch vier Tochterzellen entstehen, von denen jede die Hälfte der Chromosomenzahl der ursprünglichen Mutterzelle besitzt. [ 3 ] Die beiden meiotischen Teilungen werden als Meiose I und Meiose II bezeichnet. Vor Beginn der Meiose, in der S-Phase des Zellzyklus , wird die DNA jedes Chromosoms repliziert, sodass sie aus zwei identischen Schwesterchromatiden besteht , die durch Schwesterchromatidenkohäsion zusammengehalten werden. Diese S-Phase kann auch als „prämeiotische S-Phase“ oder „meiotische S-Phase“ bezeichnet werden. Unmittelbar nach der DNA-Replikation treten die meiotischen Zellen in eine verlängerte G2 - ähnliche Phase ein, die als meiotische Prophase bekannt ist . Während dieser Zeit paaren sich homologe Chromosomen und unterliegen der genetischen Rekombination , einem programmierten Prozess, bei dem DNA geschnitten und anschließend repariert werden kann, wodurch die Chromosomen einen Teil ihrer genetischen Information austauschen können . Ein Teil der Rekombinationsereignisse führt zu Crossing-overs , die physische Verbindungen, sogenannte Chiasmata (Singular: Chiasma, vom griechischen Buchstaben Chi , Χ), zwischen den homologen Chromosomen erzeugen. In den meisten Organismen tragen diese Verbindungen dazu bei, dass sich die homologen Chromosomenpaare während der Meiose II voneinander trennen . Dadurch entstehen zwei haploide Zellen mit jeweils der Hälfte der Chromosomenzahl der Ausgangszelle.
Während der Meiose II löst sich die Verbindung zwischen den Schwesterchromatiden, und sie trennen sich voneinander, ähnlich wie bei der Mitose . In manchen Fällen bilden alle vier Meioseprodukte Gameten wie Spermien , Sporen oder Pollen . Bei weiblichen Tieren werden typischerweise drei der vier Meioseprodukte durch Ausstoßung in Polkörperchen eliminiert , und nur eine Zelle entwickelt sich zur Eizelle . Da sich die Chromosomenzahl während der Meiose halbiert, können Gameten verschmelzen ( Befruchtung ) und eine diploide Zygote bilden , die zwei Kopien jedes Chromosoms enthält, je eine von jedem Elternteil. So ermöglichen abwechselnde Zyklen von Meiose und Befruchtung die sexuelle Fortpflanzung , wobei aufeinanderfolgende Generationen die gleiche Chromosomenzahl beibehalten. Beispielsweise enthalten diploide menschliche Zellen 23 Chromosomenpaare, darunter ein Paar Geschlechtschromosomen (insgesamt 46), die je zur Hälfte mütterlichen und väterlichen Ursprungs sind. Die Meiose erzeugt haploide Gameten (Eizellen oder Spermien), die einen Chromosomensatz von 23 enthalten. Verschmelzen zwei Gameten (eine Eizelle und ein Spermium), ist die entstehende Zygote wieder diploid, wobei Mutter und Vater jeweils 23 Chromosomen beisteuern. Dieses Muster, jedoch mit unterschiedlicher Chromosomenzahl, findet sich in allen Organismen, die Meiose betreiben.
Die Meiose findet in allen sich sexuell fortpflanzenden einzelligen und vielzelligen Organismen (die alle Eukaryoten sind ) statt, einschließlich Tieren , Pflanzen und Pilzen . [ 5 ] [ 6 ] [ 7 ] Sie ist ein essentieller Prozess für die Oogenese und die Spermatogenese .
Überblick
Obwohl der Prozess der Meiose mit dem allgemeineren Zellteilungsprozess der Mitose verwandt ist , unterscheidet er sich in zwei wichtigen Punkten:
| Rekombination | Meiose | Die Gene werden zwischen den beiden Chromosomen jedes Paares (jeweils eines von jedem Elternteil) neu angeordnet, wodurch in jeder Gamete zahlreiche rekombinante Chromosomen mit einzigartigen genetischen Kombinationen entstehen. | |||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|
| Mitose | Tritt nur auf, wenn dies zur Reparatur von DNA-Schäden erforderlich ist; Tritt üblicherweise zwischen identischen Schwesterchromatiden auf und führt nicht zu genetischen Veränderungen. | ||||||||||
| Chromosomenzahl (Ploidie) | Meiose | Produziert vier genetisch unterschiedliche Zellen, von denen jede die Hälfte der Chromosomenzahl der Elternzelle aufweist. | |||||||||
| Mitose | Es entstehen zwei genetisch identische Zellen, die jeweils die gleiche Anzahl an Chromosomen wie die Elternzelle aufweisen. | ||||||||||
Die Meiose beginnt mit einer diploiden Zelle, die zwei Kopien jedes Chromosoms , sogenannte Homologe , enthält . Zunächst findet die DNA-Replikation statt , sodass jedes Homolog nun aus zwei identischen Schwesterchromatiden besteht . Anschließend paaren sich die Homologenpaare und tauschen genetische Informationen durch homologe Rekombination aus , was häufig zu physischen Verbindungen ( Crossing-over ) zwischen den Homologen führt. In der ersten meiotischen Teilung werden die Homologen mithilfe des Spindelapparats auf die Tochterzellen verteilt . Die Zellen teilen sich dann in einer zweiten Teilung ohne zwischenzeitliche DNA-Replikation. Die Schwesterchromatiden werden erneut auf die Tochterzellen verteilt, sodass insgesamt vier haploide Zellen entstehen. Weibliche Tiere weisen eine leichte Abweichung von diesem Muster auf und produzieren eine große Eizelle und drei kleine Polkörperchen. Aufgrund der Rekombination kann ein einzelnes Chromatid eine neue Kombination mütterlicher und väterlicher genetischer Informationen enthalten, was zu Nachkommen führt, die sich genetisch von beiden Elternteilen unterscheiden. Darüber hinaus kann eine einzelne Gamete eine Vielzahl mütterlicher, väterlicher und rekombinanter Chromatiden enthalten. Diese genetische Vielfalt, die aus der sexuellen Fortpflanzung resultiert, trägt zur Variation der Merkmale bei, auf die die natürliche Selektion einwirken kann.
Die Meiose nutzt viele der gleichen Mechanismen wie die Mitose , die Zellteilungsart der Eukaryoten , bei der eine Zelle in zwei identische Tochterzellen geteilt wird. Bei einigen Pflanzen, Pilzen und Protisten führt die Meiose zur Bildung von Sporen : haploiden Zellen, die sich vegetativ teilen können, ohne befruchtet zu werden. Manche Eukaryoten, wie beispielsweise Bdelloid-Rädertierchen , sind nicht zur Meiose fähig und haben die Fähigkeit zur parthenogenetischen Fortpflanzung erworben .
Meiose findet bei Archaeen und Bakterien nicht statt ; diese vermehren sich im Allgemeinen ungeschlechtlich durch Zweiteilung . Ein als horizontaler Gentransfer bekannter „sexueller“ Prozess beinhaltet jedoch die Übertragung von DNA von einem Bakterium oder Archaeon auf ein anderes und die Rekombination dieser DNA-Moleküle unterschiedlicher elterlicher Herkunft.
Geschichte
Die Meiose wurde 1876 von dem deutschen Biologen Oscar Hertwig erstmals in Seeigeleiern entdeckt und beschrieben . 1883 beschrieb der belgische Zoologe Edouard Van Beneden sie erneut auf Chromosomenebene in Eiern des Spulwurms (Ascaris) . Die Bedeutung der Meiose für Fortpflanzung und Vererbung wurde jedoch erst 1890 von dem deutschen Biologen August Weismann beschrieben . Er stellte fest, dass zwei Zellteilungen notwendig sind, um eine diploide Zelle in vier haploide Zellen umzuwandeln, wenn die Chromosomenzahl erhalten bleiben soll. 1911 entdeckte der amerikanische Genetiker Thomas Hunt Morgan Crossing-over-Ereignisse in der Meiose der Fruchtfliege Drosophila melanogaster , was dazu beitrug, zu beweisen, dass genetische Merkmale auf Chromosomen vererbt werden.
Der Begriff „Meiose“ leitet sich vom griechischen Wort μείωσις ab , was „Verringerung“ bedeutet. Er wurde 1905 von J. B. Farmer und J. E. S. Moore in die Biologie eingeführt, wobei sie die eigenwillige Schreibweise „maiosis“ verwendeten.
Wir schlagen vor, die Begriffe Maiose oder maiotische Phase zu verwenden, um die gesamte Reihe der Kernveränderungen zu erfassen, die in den beiden von Flemming als Heterotyp und Homotyp bezeichneten Unterteilungen enthalten sind . [ 8 ]
Die Schreibweise wurde von Koernicke (1905) und von Pantel und De Sinety (1906) in „meiosis“ geändert, um den üblichen Konventionen für die Transliteration des Griechischen zu folgen . [ 9 ]
Phasen
Die Meiose gliedert sich in Meiose I und Meiose II , die wiederum in Karyokinese I, Zytokinese I, Karyokinese II und Zytokinese II unterteilt sind. Die vorbereitenden Schritte, die zur Meiose führen, sind in Muster und Bezeichnung identisch mit der Interphase des mitotischen Zellzyklus. [ 10 ] Die Interphase gliedert sich in drei Phasen:
- Wachstumsphase 1 (G1 ) : In dieser sehr aktiven Phase synthetisiert die Zelle ihre Vielzahl an Proteinen, darunter die Enzyme und Strukturproteine, die sie für ihr Wachstum benötigt. In der G1-Phase besteht jedes Chromosom aus einem einzelnen linearen DNA-Molekül.
- Synthesephase (S-Phase) : Das genetische Material wird repliziert; jedes Chromosom der Zelle verdoppelt sich und bildet zwei identische Schwesterchromatiden, die an einem Centromer verbunden sind. Diese Replikation ändert die Ploidiestufe der Zelle nicht, da die Centromerzahl gleich bleibt. Die identischen Schwesterchromatiden sind noch nicht zu den dicht gepackten Chromosomen kondensiert, die unter dem Lichtmikroskop sichtbar sind. Dies geschieht während der Prophase I der Meiose.
- Wachstumsphase 2 (G2 ) : Die G2 - Phase, wie sie vor der Mitose auftritt, existiert in der Meiose nicht. Die meiotische Prophase entspricht am ehesten der G2 - Phase des mitotischen Zellzyklus.
Auf die Interphase folgen Meiose I und Meiose II. In der Meiose I werden die replizierten homologen Chromosomen, die jeweils noch aus zwei Schwesterchromatiden bestehen, auf zwei Tochterzellen verteilt, wodurch sich die Chromosomenzahl halbiert. Während der Meiose II trennen sich die Schwesterchromatiden, und die entstehenden Tochterchromosomen werden auf vier Tochterzellen aufgeteilt. Bei diploiden Organismen sind die aus der Meiose hervorgegangenen Tochterzellen haploid und enthalten nur eine Kopie jedes Chromosoms. Bei manchen Arten treten die Zellen zwischen Meiose I und Meiose II in eine Ruhephase ein, die als Interkinese bezeichnet wird.
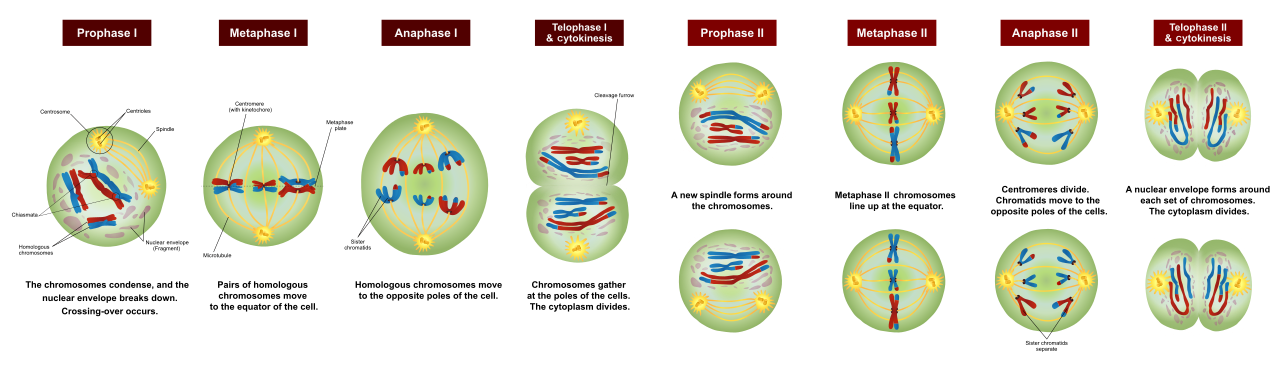
Meiose I und II sind jeweils in Prophase , Metaphase , Anaphase und Telophase unterteilt , analog zu den entsprechenden Unterphasen im mitotischen Zellzyklus. Daher umfasst die Meiose die Stadien der Meiose I (Prophase I, Metaphase I, Anaphase I, Telophase I) und der Meiose II (Prophase II, Metaphase II, Anaphase II, Telophase II).
Während der Meiose werden bestimmte Gene verstärkt transkribiert . [ 11 ] [ 12 ] Neben der starken, meiotischen Stadien-spezifischen mRNA -Expression existieren auch umfassende translationale Kontrollmechanismen (z. B. die selektive Verwendung präformierter mRNA), die die letztendliche meiotische Stadien-spezifische Proteinexpression von Genen während der Meiose regulieren. [ 13 ] Somit bestimmen sowohl transkriptionelle als auch translationale Kontrollmechanismen die umfassende Umstrukturierung meiotischer Zellen, die für die Durchführung der Meiose notwendig ist.
Meiose I
In der Meiose I werden homologe Chromosomen getrennt , die sich zu Tetraden (2n, 4c) verbinden. Dadurch entstehen zwei haploide Zellen (n Chromosomen, 23 beim Menschen), die jeweils 1 Chromatidenpaare (1n, 2c) enthalten. Da die Ploidie von diploid auf haploid reduziert wird, wird die Meiose I als Reduktionsteilung bezeichnet . Die Meiose II ist eine Äquationsteilung, analog zur Mitose, bei der die Schwesterchromatiden getrennt werden. Dadurch entstehen vier haploide Tochterzellen (1n, 1c). [ 14 ]


Prophase I
Die Prophase I ist mit Abstand die längste Phase der Meiose (sie dauert bei Mäusen 13 von 14 Tagen [ 15 ] ). Während der Prophase I paaren sich homologe mütterliche und väterliche Chromosomen, bilden Synapsen und tauschen genetische Information aus (durch homologe Rekombination ), wobei pro Chromosom mindestens ein Crossing-over entsteht [ 16 ] . Diese Crossing-over werden als Chiasmata (Plural; Singular: Chiasma ) sichtbar [ 17 ] . Dieser Prozess ermöglicht die stabile Paarung homologer Chromosomen und somit die korrekte Trennung der Chromosomen bei der ersten meiotischen Teilung. Die gepaarten und replizierten Chromosomen werden Bivalente (zwei Chromosomen) oder Tetraden (vier Chromatiden ) genannt, wobei jeweils ein Chromosom von jedem Elternteil stammt. Die Prophase I ist in eine Reihe von Unterphasen unterteilt, die nach dem Erscheinungsbild der Chromosomen benannt werden.
Leptoten
Das erste Stadium der Prophase I ist das Leptotänstadium , auch Leptonema genannt (von griechisch für „dünne Fäden“). [ 18 ] : 27 In diesem Stadium der Prophase I werden die einzelnen Chromosomen – jedes bestehend aus zwei replizierten Schwesterchromatiden – individualisiert und bilden sichtbare Stränge im Zellkern. [ 18 ] : 27 [ 19 ] : 353 Die Chromosomen bilden jeweils eine lineare Anordnung von Schleifen, die durch Cohesin vermittelt wird . Die lateralen Elemente des synaptonemalen Komplexes lagern sich zu einem „axialen Element“ zusammen, von dem die Schleifen ausgehen. [ 20 ] In diesem Stadium wird die Rekombination durch das Enzym SPO11 eingeleitet , das programmierte Doppelstrangbrüche erzeugt (etwa 300 pro Meiose bei Mäusen). [ 21 ] Bei diesem Prozess entstehen einzelsträngige DNA-Filamente, die mit RAD51 und DMC1 beschichtet sind . Diese dringen in die homologen Chromosomen ein, bilden Brücken zwischen den Achsen und führen zur Paarung/Ausrichtung der homologen Chromosomen (bis zu einem Abstand von ~400 nm bei Mäusen). [ 20 ] [ 22 ]
Zygotän
Auf das Leptotän folgt das Zygotän- Stadium, auch Zygonema genannt (von griechisch für „gepaarte Fäden“). [ 18 ] :27 Bei manchen Organismen wird es aufgrund der Ansammlung der Telomere an einem Ende des Zellkerns auch als Bouquet-Stadium bezeichnet. [ 23 ] In diesem Stadium rücken die homologen Chromosomen deutlich näher zusammen (ca. 100 nm) und paaren sich stabil (Synapsis). Dieser Prozess wird durch die Bildung der transversalen und zentralen Elemente des synaptonemalen Komplexes vermittelt . [ 20 ] Man geht davon aus, dass die Synapsis wie ein Reißverschluss von einem Rekombinationsknoten ausgeht. Die gepaarten Chromosomen werden als Bivalente oder Tetradenchromosomen bezeichnet.
Pachytene
Das Pachytän- Stadium ( auch Pachynema genannt , abgeleitet von griechischen Wörtern für „ dicke Fäden“) [ 18]:27 ist das Stadium, in dem alle autosomalen Chromosomen synaptisch verbunden sind. In diesem Stadium ist die homologe Rekombination, einschließlich des chromosomalen Crossing-overs, durch die Reparatur der im Leptotän entstandenen Doppelstrangbrüche abgeschlossen. [ 20 ] Die meisten Brüche werden repariert , ohne dass es zu Crossing-overs kommt, was eine Genkonversion zur Folge hat . [ 24 ] Eine Untergruppe der Brüche (mindestens einer pro Chromosom) führt jedoch zu Crossing-overs zwischen nicht-schwesterlichen (homologen) Chromosomen, was den Austausch genetischer Information zur Folge hat. [ 25 ] Der Informationsaustausch zwischen den homologen Chromatiden führt zu einer Rekombination der Information. Jedes Chromosom enthält den vollständigen Informationssatz von zuvor, und es entstehen keine Lücken. Da die Chromosomen im synaptonemalen Komplex nicht unterschieden werden können, ist der eigentliche Crossing-over-Vorgang mit einem gewöhnlichen Lichtmikroskop nicht sichtbar, und Chiasmata werden erst im nächsten Stadium sichtbar.
Diploten
Während des Diplotäns , auch Diplonema genannt (von griechisch „zwei Fäden“ [ 18 ] :30) , löst sich der synaptonemale Komplex auf, und die homologen Chromosomen trennen sich ein wenig voneinander. Die homologen Chromosomen jedes Bivalents bleiben jedoch an den Chiasmata, den Bereichen des Crossing-overs, fest verbunden. Die Chiasmata bleiben bis zum Übergang in die Anaphase I an den Chromosomen erhalten, sodass die homologen Chromosomen zu den gegenüberliegenden Zellpolen wandern können.
In der menschlichen fetalen Oogenese durchlaufen alle sich entwickelnden Oozyten dieses Stadium und verharren vor der Geburt in der Prophase I. [ 26 ] Dieser Ruhezustand wird als Dictyotän-Stadium oder Dictyat bezeichnet. Er dauert an, bis die Meiose wieder aufgenommen wird, um die Oozyte auf den Eisprung vorzubereiten, der in der Pubertät oder später stattfindet.
Diakinese
Während der Diakinese , deren Name sich vom Griechischen „durchdringen“ ableitet, kondensieren die Chromosomen weiter . [ 18 ] : 30 Dies ist der erste Zeitpunkt in der Meiose, an dem die vier Teile der Tetraden sichtbar werden. Die Crossing-over-Stellen verhaken sich und überlappen sich, wodurch die Chiasmata deutlich erkennbar werden. Abgesehen von dieser Beobachtung ähnelt der Rest dieses Stadiums stark der Prometaphase der Mitose: Die Nukleoli lösen sich auf, die Kernmembran zerfällt in Vesikel, und die meiotische Spindel beginnt sich zu bilden.
Bildung der meiotischen Spindel
Im Gegensatz zu mitotischen Zellen besitzen menschliche und Maus-Oozyten keine Zentrosomen zur Bildung der meiotischen Spindel. Bei Mäusen bilden etwa 80 Mikrotubuli-Organisationszentren (MTOCs) im Ooplasma eine Kugel und beginnen mit der Bildung von Mikrotubuli, die sich zu den Chromosomen ausstrecken und an deren Kinetochoren anhaften . Mit der Zeit verschmelzen die MTOCs, bis sich zwei Pole gebildet haben und eine tonnenförmige Spindel entsteht. [ 27 ] In menschlichen Oozyten beginnt die Bildung der Spindel-Mikrotubuli an den Chromosomen und bildet einen Aster, der sich schließlich ausdehnt und die Chromosomen umschließt. [ 28 ] Die Chromosomen gleiten dann entlang der Mikrotubuli zur Äquatorialebene der Spindel, wo die Kinetochoren der Chromosomen endständige Verbindungen mit den Mikrotubuli eingehen. [ 29 ]
Metaphase I
Homologous pairs move together along the metaphase plate: As kinetochoremicrotubules from both spindle poles attach to their respective kinetochores, the paired homologous chromosomes align along an equatorial plane that bisects the spindle, due to continuous counterbalancing forces exerted on the bivalents by the microtubules emanating from the two kinetochores of homologous chromosomes. This attachment is referred to as a bipolar attachment. The physical basis of the independent assortment of chromosomes is the random orientation of each bivalent along with the metaphase plate, with respect to the orientation of the other bivalents along the same equatorial line.[17] The protein complex cohesin holds sister chromatids together from the time of their replication until anaphase I. In mitosis, the force of kinetochore microtubules pulling in opposite directions creates tension. The cell senses this tension and does not progress with anaphase until all the chromosomes are properly bi-oriented. In meiosis, establishing tension ordinarily requires at least one crossover per chromosome pair in addition to cohesin between sister chromatids. (see Chromosome segregation)
Anaphase I
Kinetochoremicrotubules shorten, pulling homologous chromosomes (which each consist of a pair of sister chromatids) to opposite poles. Non-kinetochore microtubules lengthen, pushing the centrosomes farther apart. The cell elongates in preparation for division down the center.[17] Unlike in mitosis, only the cohesin from the chromosome arms is degraded while the cohesin surrounding the centromere remains protected by a protein named Shugoshin (Japanese for "guardian spirit"), which prevents the sister chromatids from separating.[30] This allows the sister chromatids to remain together while homologs are segregated.
Telophase I
Die erste meiotische Teilung endet, sobald die Chromosomen die Pole erreicht haben. Jede Tochterzelle besitzt nun die Hälfte der Chromosomenzahl, wobei jedes Chromosom aus einem Chromatidenpaar besteht . Die Mikrotubuli des Spindelapparats lösen sich auf, und eine neue Kernmembran umgibt jeden haploiden Chromosomensatz. Die Zytokinese , die Abschnürung der Zellmembran in tierischen Zellen bzw. die Bildung der Zellwand in pflanzlichen Zellen, schließt die Entstehung zweier Tochterzellen ab. Da die Zytokinese jedoch nicht vollständig abgeschlossen ist, entstehen sogenannte Zytoplasmabrücken, die den Austausch von Zytoplasma zwischen den Tochterzellen bis zum Ende der Meiose II ermöglichen. [ 31 ] Die Schwesterchromatiden bleiben während der Telophase I verbunden.
Zellen können in eine Ruhephase eintreten, die als Interkinese oder Interphase II bezeichnet wird. Während dieser Phase findet keine DNA-Replikation statt.
Meiose II
Die Meiose II ist die zweite meiotische Teilung und beinhaltet üblicherweise die äquatoriale Segregation, also die Trennung der Schwesterchromatiden . Mechanisch ähnelt der Prozess der Mitose , die genetischen Ergebnisse sind jedoch grundlegend verschieden. Dabei entstehen aus den zwei haploiden Zellen (mit n Chromosomen, die jeweils aus zwei Schwesterchromatiden bestehen), die in der Meiose I gebildet wurden, vier haploide Zellen (n Chromosomen; 23 beim Menschen). Die vier Hauptphasen der Meiose II sind: Prophase II, Metaphase II, Anaphase II und Telophase II.
In der Prophase II verschwinden erneut die Nukleoli und die Kernhülle , und die Chromatiden verkürzen und verdicken sich. Die Zentrosomen wandern zu den Polregionen und bilden Spindelfasern für die zweite meiotische Teilung.
In der Metaphase II enthalten die Centromere zwei Kinetochoren , die an Spindelfasern der Centrosomen an gegenüberliegenden Polen anhaften. Die neue äquatoriale Metaphasenplatte ist im Vergleich zur Meiose I um 90 Grad gedreht und steht senkrecht zur vorherigen Platte. [ 32 ]
Darauf folgt die Anaphase II , in der das verbleibende zentromerische Kohäsin , das nicht mehr durch Shugoshin geschützt ist, gespalten wird, wodurch sich die Schwesterchromatiden trennen können. Konventionsgemäß werden die Schwesterchromatiden nun als Schwesterchromosomen bezeichnet, da sie sich zu den gegenüberliegenden Polen bewegen. [ 30 ]
Der Prozess endet mit der Telophase II , die der Telophase I ähnelt und durch Dekondensation und Verlängerung der Chromosomen sowie den Abbau des Spindelapparats gekennzeichnet ist. Die Kernhüllen bilden sich neu, und durch Zellteilung oder Zellplattenbildung entstehen schließlich insgesamt vier Tochterzellen, von denen jede einen haploiden Chromosomensatz besitzt.
Die Meiose ist nun abgeschlossen und es entstehen vier neue Tochterzellen.
Ursprung und Funktion
Ursprung der Meiose
Die Meiose scheint ein grundlegendes Merkmal eukaryotischer Organismen zu sein und war bereits früh in der eukaryotischen Evolution vorhanden. Eukaryoten, von denen man einst annahm, dass sie keine meiotische Fortpflanzung durchführen, besitzen diese Fähigkeit vermutlich oder besaßen sie einst. Ein Beispiel hierfür ist Giardia intestinalis , ein häufiger Darmparasit, von dem man früher annahm, er stamme von einer Linie ab, die vor dem Auftreten von Meiose und sexueller Fortpflanzung existierte. Inzwischen wurde jedoch festgestellt, dass G. intestinalis über einen Kernsatz meiotischer Gene verfügt, darunter fünf meiotische spezifische Gene. [ 33 ] Auch Hinweise auf meiotische Rekombination , ein Indiz für sexuelle Fortpflanzung , wurden in G. intestinalis gefunden . [ 34 ] Ein weiteres Beispiel für Organismen, die man früher für asexuell hielt, sind parasitäre Protozoen der Gattung Leishmania , die beim Menschen Krankheiten verursachen. Es konnte jedoch gezeigt werden, dass diese Organismen einen sexuellen Zyklus aufweisen, der mit einem meiotischen Prozess übereinstimmt. [ 35 ] Obwohl Amöben früher allgemein als asexuell galten, gibt es Hinweise darauf, dass die meisten Abstammungslinien ursprünglich sexuell waren und die Mehrheit der asexuellen Gruppen wahrscheinlich erst kürzlich und unabhängig voneinander entstanden ist. [ 36 ] Dacks und Rogers [ 37 ] schlugen auf Grundlage einer phylogenetischen Analyse vor, dass fakultative sexuelle Fortpflanzung wahrscheinlich bereits beim gemeinsamen Vorfahren der Eukaryoten vorhanden war.
Genetische Variation
Die während der Meiose entstehenden neuen DNA-Kombinationen sind neben Mutationen eine bedeutende Quelle genetischer Variation und führen zu neuen Allelkombinationen , die vorteilhaft sein können. Die Meiose erzeugt die genetische Vielfalt der Gameten auf zwei Arten: (1) Unabhängigkeitsprinzip . Die unabhängige Anordnung homologer Chromosomenpaare entlang der Metaphasenplatte während der Metaphase I und die Ausrichtung der Schwesterchromatiden in der Metaphase II – die anschließende Trennung von Homologen und Schwesterchromatiden während der Anaphase I und II – ermöglicht eine zufällige und unabhängige Verteilung der Chromosomen auf die Tochterzellen (und letztendlich auf die Gameten) [ 38 ] . (2) Crossing-over . Der physikalische Austausch homologer Chromosomenabschnitte durch homologe Rekombination während der Prophase I führt zu neuen Kombinationen genetischer Information innerhalb der Chromosomen [ 39 ] . Dieser physikalische Austausch findet jedoch nicht immer während der Meiose statt. In den Oozyten des Seidenspinners Bombyx mori verläuft die Meiose vollständig achiasmatisch (ohne Crossing-over). [ 40 ] Obwohl während des Pachytänstadiums der Meiose bei B. mori synaptonemale Komplexe vorhanden sind , findet keine Crossing-over- homologe Rekombination zwischen den gepaarten Chromosomen statt . [ 41 ]
Prophase-I-Arrest
Weibliche Säugetiere und Vögel werden mit allen für zukünftige Ovulationen benötigten Oozyten geboren. Diese Oozyten befinden sich im Prophase-I-Stadium der Meiose. [ 42 ] Beim Menschen beispielsweise werden Oozyten zwischen dem dritten und vierten Schwangerschaftsmonat gebildet und sind daher bei der Geburt vorhanden. Während dieses Prophase-I-Arrests ( Diktat ), der Jahrzehnte andauern kann, liegen vier Kopien des Genoms in den Oozyten vor. Der Arrest der Oozyten im Vier-Genomkopien-Stadium soll die für die Reparatur von DNA-Schäden in der Keimbahn notwendige Informationsredundanz gewährleisten . [ 42 ] Der verwendete Reparaturprozess scheint die homologe Rekombinationsreparatur zu umfassen. [ 42 ] [ 43 ] Oozyten im Prophase-I-Arrest besitzen eine hohe Fähigkeit zur effizienten Reparatur von DNA-Schäden , insbesondere von exogen induzierten Doppelstrangbrüchen. [ 43 ] Die Fähigkeit zur DNA-Reparatur scheint ein wichtiger Qualitätskontrollmechanismus in der weiblichen Keimbahn und ein entscheidender Faktor für die Fruchtbarkeit zu sein . [ 43 ]
Meiose als Anpassung zur Reparatur der Keimbahn-DNA
Genetische Rekombination kann grundsätzlich als DNA- Reparaturprozess betrachtet werden. Findet sie während der Meiose statt, dient sie der Reparatur der genomischen DNA , die an die Nachkommen weitergegeben wird. [ 44 ] [ 45 ] Experimentelle Befunde zeigen, dass ein wesentlicher Vorteil der Meiose in der rekombinationsbedingten Reparatur von DNA-Schäden in der Keimbahn liegt , wie die folgenden Beispiele verdeutlichen. Wasserstoffperoxid ist ein Agens, das oxidativen Stress und damit oxidative DNA-Schäden verursacht. [ 46 ] Die Behandlung der Hefe Schizosaccharomyces pombe mit Wasserstoffperoxid erhöhte die Paarungshäufigkeit und die Bildung meiotischer Sporen um das 4- bis 18-Fache. [ 47 ] Volvox carteri , eine haploide, vielzellige, fakultativ sexuelle Grünalge, kann durch Hitzeschock zur meiotischen Fortpflanzung angeregt werden. [ 48 ] Diese Induktion kann durch Antioxidantien gehemmt werden , was darauf hindeutet, dass die Induktion der meiotischen Geschlechtsteilung durch Hitzeschock wahrscheinlich durch oxidativen Stress vermittelt wird , der zu verstärkten DNA-Schäden führt. [ 49 ]
Auftreten
In Lebenszyklen


Die Meiose findet in den Lebenszyklen von Eukaryoten mit sexueller Fortpflanzung statt und besteht aus dem zyklischen Prozess des Wachstums und der Entwicklung durch mitotische Zellteilung, der Gametenbildung durch Meiose und der Befruchtung. In bestimmten Stadien des Lebenszyklus produzieren Keimzellen Gameten. Somatische Zellen bilden den Körper des Organismus und sind nicht an der Gametenbildung beteiligt.
Zyklische Meiose- und Befruchtungsereignisse führen zu einem Wechsel zwischen haploiden und diploiden Zuständen. Die Organismusphase des Lebenszyklus kann entweder im diploiden Zustand ( diploider Lebenszyklus), im haploiden Zustand ( haplontischer Lebenszyklus) oder in beiden ( haplodiplontischer Lebenszyklus) auftreten. Im letzteren Fall existieren zwei unterschiedliche Organismusphasen: eine mit haploiden und eine mit diploiden Zellen.
Im diplontischen Lebenszyklus (mit prägametischer Meiose), wie beim Menschen, ist der Organismus vielzellig und diploid. Er entsteht durch Mitose aus einer diploiden Zelle, der Zygote . Die diploiden Keimbahnstammzellen des Organismus teilen sich durch Meiose und bilden haploide Gameten ( Spermien beim Mann und Eizellen bei der Frau), die zur Zygote verschmelzen. Die diploide Zygote teilt sich wiederholt durch Mitose und entwickelt sich so zum Organismus.
Im haplontischen Lebenszyklus (mit postzygotischer Meiose) ist der Organismus haploid, da sich eine einzige haploide Zelle, die Gamete, vermehrt und differenziert . Zwei Organismen unterschiedlichen Geschlechts tragen ihre haploiden Gameten bei, um eine diploide Zygote zu bilden. Die Zygote durchläuft sofort die Meiose, wodurch vier haploide Zellen entstehen. Diese teilen sich durch Mitose und bilden so den Organismus. Viele Pilze und Protozoen nutzen den haplontischen Lebenszyklus.
Im haplodiplontischen Lebenszyklus (mit sporischer oder intermediärer Meiose) wechselt der Organismus zwischen haploidem und diploidem Zustand. Daher wird dieser Zyklus auch als Generationswechsel bezeichnet . Die Keimzellen des diploiden Organismus teilen sich durch Meiose und bilden Sporen. Diese Sporen vermehren sich durch Mitose und wachsen zu einem haploiden Organismus heran. Dessen Gamete verschmilzt mit der Gamete eines anderen haploiden Organismus zur Zygote. Die Zygote durchläuft wiederholte Mitosen und Differenzierung, um einen neuen diploiden Organismus hervorzubringen. Der haplodiplontische Lebenszyklus kann als Verschmelzung des diplontischen und haplontischen Lebenszyklus betrachtet werden. [ 50 ]
Bei Pflanzen und Tieren

Meiose findet in allen Tieren und Pflanzen statt. Das Ergebnis – die Bildung von Gameten mit der halben Chromosomenzahl der Mutterzelle – ist immer gleich, der genaue Ablauf jedoch unterschiedlich. Bei Tieren entstehen Gameten durch Meiose direkt. Bei Landpflanzen und einigen Algen findet ein Generationswechsel statt : In der diploiden Sporophyten- Generation entstehen durch Meiose haploide Sporen anstelle von Gameten. Nach der Keimung teilen sich diese Sporen durch Mitose wiederholt und entwickeln sich zu einer vielzelligen haploiden Gametophyten- Generation, die dann direkt Gameten produziert (d. h. ohne weitere Meiose).
Bei Tieren und Pflanzen besteht das letzte Stadium in der Verschmelzung der Gameten zu einer Zygote , in der die ursprüngliche Chromosomenzahl wiederhergestellt ist. [ 51 ]
Bei Säugetieren
Bei Frauen findet die Meiose in Zellen statt, die als Oozyten (Einzahl: Oozyte) bezeichnet werden. Jede primäre Oozyte teilt sich in der Meiose zweimal, wobei die Teilungen jeweils ungleichmäßig verlaufen. Die erste Teilung erzeugt eine Tochterzelle und einen deutlich kleineren Polkörper, der sich gegebenenfalls ein zweites Mal teilen kann. In der zweiten Teilung (Meiose II) entsteht aus der Tochterzelle ein zweiter Polkörper und eine einzelne haploide Zelle, die sich zur Eizelle vergrößert . Daher resultiert bei Frauen aus jeder primären Oozyte, die die Meiose durchläuft, eine reife Eizelle und zwei oder drei Polkörper.
Bei Frauen kommt es während der Meiose zu Unterbrechungen. Reifende Eizellen verharren in der Prophase I der Meiose I und ruhen in einer schützenden Hülle aus somatischen Zellen, dem Follikel . In diesem Stadium wird der Eizellkern als Keimbläschen bezeichnet. [ 52 ] Zu Beginn jedes Menstruationszyklus stimuliert die Ausschüttung von FSH aus dem Hypophysenvorderlappen einige Follikel zur Reifung ( Follikulogenese ) . Dabei setzen die reifenden Eizellen die Meiose fort und durchlaufen sie bis zur Metaphase II der Meiose II, wo sie kurz vor dem Eisprung erneut verharren. Der Zerfall des Keimbläschens, die Kondensation der Chromosomen und die Bildung der bipolaren Metaphase-I-Spindel sind eindeutige Anzeichen dafür, dass die Meiose wieder aufgenommen wurde. [ 52 ] Werden diese Eizellen von einem Spermium befruchtet, setzen sie die Meiose fort und vollenden sie. Während der Follikulogenese beim Menschen wird üblicherweise ein Follikel dominant, während die anderen atretisch werden . Die Meiose findet bei Frauen während der Oogenese statt und unterscheidet sich von der typischen Meiose dadurch, dass sie eine lange Phase des Meiosestillstands, das sogenannte Diktyatstadium , aufweist und keine Zentrosomen benötigt . [ 53 ] [ 54 ]
Bei Männern findet die Meiose während der Spermatogenese in den Samenkanälchen der Hoden statt . Die Meiose während der Spermatogenese ist spezifisch für einen Zelltyp, die Spermatocyten , aus denen später Spermien reifen . Die Meiose der Urkeimzellen setzt mit der Pubertät ein, deutlich später als bei Frauen. Das Gewebe des männlichen Hodens hemmt die Meiose durch den Abbau von Retinsäure, die als Stimulator der Meiose gilt. Diese Hemmung wird mit Beginn der Pubertät aufgehoben, wenn die Sertoli-Zellen in den Samenkanälchen beginnen, selbst Retinsäure zu produzieren. Die Empfindlichkeit gegenüber Retinsäure wird zudem durch die Proteine Nanos und DAZL reguliert. [ 55 ] [ 56 ] Genetische Funktionsverluststudien an Retinsäure-generierenden Enzymen haben gezeigt, dass Retinsäure postnatal benötigt wird, um die Differenzierung von Spermatogonien zu stimulieren, was einige Tage später zur Bildung von Spermatocyten führt, die die Meiose durchlaufen. Retinsäure wird jedoch nicht zum Zeitpunkt des Beginns der Meiose benötigt. [ 57 ]
Bei weiblichen Säugetieren beginnt die Meiose unmittelbar nach der Migration der Urkeimzellen in den Eierstock des Embryos. Einige Studien deuten darauf hin, dass Retinsäure aus der Urniere (Mesonephros) die Meiose in den embryonalen Oogonien stimuliert und dass Gewebe des embryonalen männlichen Hodens die Meiose durch den Abbau von Retinsäure hemmen. [ 58 ] Genetische Funktionsverluststudien an Retinsäure-bildenden Enzymen haben jedoch gezeigt, dass Retinsäure weder für den Beginn der weiblichen Meiose während der Embryogenese [ 59 ] noch für die postnatale Einleitung der männlichen Meiose [ 57 ] erforderlich ist .
Flagellaten
Während die Mehrheit der Eukaryoten eine zweigeteilte Meiose aufweist (wenn auch manchmal achiasmatisch ), kommt eine sehr seltene Form, die eingeteilte Meiose, bei einigen Flagellaten ( Parabasaliden und Oxymonaden ) aus dem Darm der holzfressenden Schabe Cryptocercus vor . [ 60 ]
Rolle in der Humangenetik und bei Krankheiten
Die Rekombination zwischen den 23 Chromosomenpaaren des Menschen ist für die Umverteilung nicht nur der Chromosomen selbst, sondern auch von Fragmenten jedes einzelnen Chromosoms verantwortlich. Schätzungsweise findet bei Frauen 1,6-mal häufiger Rekombination statt als bei Männern. Darüber hinaus ist die Rekombinationsrate bei Frauen im Durchschnitt an den Zentromeren und bei Männern an den Telomeren höher. Im Durchschnitt entspricht 1 Million Basenpaare (bp) (1 Mb) 1 cMorgan (cm = 1 % Rekombinationsfrequenz). [ 61 ] Die Häufigkeit von Crossing-overs ist noch nicht vollständig geklärt. Bei Hefe, Maus und Mensch wird geschätzt, dass pro meiotischer Zelle ≥200 Doppelstrangbrüche (DSBs) entstehen. Allerdings führt nur ein Teil der DSBs (ca. 5–30 %, je nach Organismus) zu Crossing-overs, [ 62 ] was lediglich 1–2 Crossing-overs pro menschlichem Chromosom zur Folge hätte.
Beim Menschen unterscheiden sich die Rekombinationsraten zwischen mütterlicher und väterlicher DNA:
- Mütterliche DNA: Rekombiniert im Durchschnitt etwa 42 Mal.
- Väterliche DNA: Rekombiniert im Durchschnitt etwa 27 Mal.
Nichtdisjunktion
Fehler während der Meiose, insbesondere Non-Disjunction, können zu Gameten mit einer abnormalen Chromosomenzahl führen und potenziell Chromosomenstörungen verursachen. [ 63 ]

Die normale Trennung der Chromosomen in der Meiose I bzw. der Schwesterchromatiden in der Meiose II wird als Disjunktion bezeichnet . Erfolgt die Trennung nicht normal, spricht man von Nondisjunktion . Dies führt zur Bildung von Gameten mit entweder zu vielen oder zu wenigen Exemplaren eines bestimmten Chromosoms und ist ein häufiger Mechanismus für Trisomie oder Monosomie . Nondisjunktion kann in der Meiose I oder Meiose II, Phasen der Zellteilung, oder während der Mitose auftreten .
Die meisten monosomen und trisomen menschlichen Embryonen sind nicht lebensfähig, einige Aneuploidien jedoch können toleriert werden, wie beispielsweise die Trisomie des kleinsten Chromosoms, Chromosom 21. Die Phänotypen dieser Aneuploidien reichen von schweren Entwicklungsstörungen bis hin zu asymptomatischen Verläufen. Zu den medizinischen Folgen gehören unter anderem:
- Down-Syndrom – Trisomie des Chromosoms 21
- Pätau-Syndrom – Trisomie des Chromosoms 13
- Edwards-Syndrom – Trisomie des Chromosoms 18
- Klinefelter-Syndrom – zusätzliche X-Chromosomen bei Männern – z. B. XXY, XXXY, XXXXY usw.
- Turner-Syndrom – Fehlen eines X-Chromosoms bei Frauen – d. h. X0
- Triple-X-Syndrom – ein zusätzliches X-Chromosom bei Frauen
- Jacobs-Syndrom – ein zusätzliches Y-Chromosom bei Männern.
Die Wahrscheinlichkeit einer Nondisjunktion in menschlichen Oozyten steigt mit zunehmendem mütterlichen Alter [ 64 ] , vermutlich aufgrund eines mit der Zeit fortschreitenden Verlusts von Kohäsin . [ 65 ]
Vergleich mit der Mitose

Zum Verständnis der Meiose ist ein Vergleich mit der Mitose hilfreich. Die folgende Tabelle zeigt die Unterschiede zwischen Meiose und Mitose. [ 66 ]
| Meiose | Mitose | |
|---|---|---|
| Endergebnis | Normalerweise vier Zellen, von denen jede die Hälfte der Chromosomenzahl der Elternzelle besitzt. | Zwei Zellen, die die gleiche Anzahl an Chromosomen wie die Elternzelle besitzen. |
| Funktion | Produktion von Gameten (Geschlechtszellen) bei sich sexuell fortpflanzenden Eukaryoten mit diplonischem Lebenszyklus | Zellteilung, Wachstum, Reparatur, ungeschlechtliche Fortpflanzung |
| Wo findet das statt? | Fast alle Eukaryoten (Tiere, Pflanzen, Pilze und Protisten ); [ 67 ] [ 60 ] In den Gonaden, vor den Gameten (in diplontischen Lebenszyklen); nach den Zygoten (in haplontischen); vor den Sporen (in haplodiplontischen) | Alle sich teilenden Zellen in allen Eukaryoten |
| Schritte | Prophase I, Metaphase I, Anaphase I, Telophase I, Prophase II, Metaphase II, Anaphase II, Telophase II | Prophase, Prometaphase, Metaphase, Anaphase, Telophase |
| Genetisch identisch mit dem Elternteil? | NEIN | Ja |
| Findet der Übergang statt? | Ja, das findet normalerweise zwischen jedem Paar homologer Chromosomen statt. | Sehr selten |
| Paarung homologer Chromosomen? | Ja | NEIN |
| Zytokinese | Findet in der Telophase I und Telophase II statt. | Findet in der Telophase statt |
| Centromere spalten sich | Findet nicht in der Anaphase I statt, sondern in der Anaphase II. | Findet in der Anaphase statt |
Molekulare Regulation
Der Reifungsfördernde Faktor (MPF) scheint, basierend auf Experimenten mit Oozyten von Xenopus laevis, eine Rolle in der Meiose zu spielen . MPF aus Säugetieroozyten induzierte den Keimbläschenzerfall (GVB) in Seestern- und Xenopus-laevis -Oozyten. [ 68 ] MPF ist vor dem GVB aktiv, nimmt aber gegen Ende der Meiose I ab. [ 69 ] Die Konzentrationen von CDK1 und Cyclin B korrelieren mit der GVB-Kompetenz der Oozyten und unterliegen wahrscheinlich eher einer translationalen als einer transkriptionellen Kontrolle. [ 52 ] In der Meiose II tritt MPF vor der Metaphase II wieder auf, und seine Aktivität bleibt bis zur Befruchtung hoch. [ 69 ] [ 70 ]
Bei Säugetieren beginnt der Meiosestopp mit der Freisetzung von natriuretischem Peptid Typ C (NPPC) aus den Wandgranulosazellen. Dieses aktiviert in Verbindung mit dem natriuretischen Peptidrezeptor 2 (NPR2) auf den Cumuluszellen die Produktion von zyklischem Guanosin-3′,5′-monophosphat (cGMP). [ 71 ] cGMP diffundiert in die Oozyten und stoppt die Meiose durch Hemmung der Phosphodiesterase 3A (PDE3A) und der Hydrolyse von zyklischem Adenosin-3′,5′-monophosphat (cAMP). [ 71 ] In der Oozyte aktiviert der G-Protein-gekoppelte Rezeptor GPR3/12 die Adenylylcyclase zur cAMP-Generierung. [ 71 ] cAMP stimuliert die Proteinkinase A (PKA) zur Aktivierung der nukleären Kinase WEE2 durch Phosphorylierung. [ 72 ] PKA unterstützt auch die Phosphorylierung der CDK1-Phosphatase CDC25B, um diese im Zytoplasma zu halten; in ihrer unphosphorylierten Form wandert CDC25B in den Zellkern. [ 52 ] [ 72 ] Die Proteinkinase C (PKC) könnte ebenfalls eine Rolle bei der Hemmung des Übergangs zur Metaphase II der Meiose spielen. [ 52 ] Insgesamt wird die CDK1-Aktivität unterdrückt, um die Wiederaufnahme der Meiose zu verhindern. [ 72 ] Oozyten fördern zudem die Expression von NPR2 und Inosinmonophosphat-Dehydrogenase (und damit die Produktion von cGMP) in Cumuluszellen. [ 71 ] Follikelstimulierendes Hormon und Estradiol fördern ebenfalls die Expression von NPPC und NPR2. [ 71 ] Hypoxanthin, ein Purin, das offenbar im Follikel entsteht, hemmt ebenfalls die Meiose von Oozyten in vitro. [ 73 ] Ein Anstieg des luteinisierenden Hormons (LH) fördert die Oozytenreifung, [ 71 ] wobei die Oozyten aus der Meiose gelöst werden und die Prophase I durch die Metaphase II durchlaufen. [ 73 ] LH-induzierte, dem epidermalen Wachstumsfaktor ähnliche Faktoren wie Amphiregulin und Epiregulin [ 73 ], die in den Wandgranulosazellen synthetisiert werden, reduzieren den cGMP-Spiegel in den Oozyten, indem sie den cGMP-Transport durch die Gap Junctions zwischen Cumuluszellen und Oozyten einschränken und die NPPC-Konzentration sowie die NPR2-Aktivität senken. [ 72 ] [ 71 ] Tatsächlich können LH-induzierte, dem epidermalen Wachstumsfaktor ähnliche Faktoren die Gap Junctions sogar vollständig destabilisieren und zerstören. [ 73 ] LH-induzierte epidermale Wachstumsfaktor-ähnliche Faktoren können die Produktion zusätzlicher Oozytenreifungsfaktoren wie Steroide und aus der Follikelflüssigkeit stammendes meioseaktivierendes Sterol (FF-MAS) in Cumuluszellen auslösen. [ 73 ]FF-MAS fördert den Übergang von der Metaphase I zur Metaphase II und kann zur Stabilisierung des Metaphase-II-Arrests beitragen. [ 73 ] Die Wiederaufnahme der Meiose wird durch den Austritt von WEE2 aus dem Zellkern infolge der CDK1-Aktivierung verstärkt. [ 72 ] Phosphodiesterasen (PDEs) metabolisieren cAMP und können vorübergehend durch PKA-vermittelte Phosphorylierung aktiviert werden. [ 73 ] Die längerfristige Regulation von Phosphodiesterasen erfordert möglicherweise eine Modulation der Proteinexpression. [ 73 ] Hypoxanthin ist beispielsweise ein PDE-Inhibitor, der den cAMP-Metabolismus hemmen kann. [ 73 ] Kinasen wie die Proteinkinase B, die Aurora-Kinase A und die Polo-like-Kinase 1 tragen zur Wiederaufnahme der Meiose bei. [ 72 ] Es bestehen Ähnlichkeiten zwischen den Mechanismen des meiotischen Prophase-I-Arrests und der Wiederaufnahme der Meiose und dem mitotischen G2-DNA-Schadens-Checkpoint: CDC14B-basierte Aktivierung von APC-CDH1 beim Arrest und CDC25B-basierte Wiederaufnahme. [ 72 ] Der meiotische Arrest erfordert die inhibitorische Phosphorylierung von CDK1 an den Aminosäureresten Thr-14 und Tyr-15 durch MYT1 und WEE1 [ 52 ] sowie die Regulation des Cyclin-B-Spiegels durch den Anaphase-fördernden Komplex (APC). [ 72 ] CDK1 wird durch Cyclin B reguliert, dessen Synthese am Ende der Meiose I ihren Höhepunkt erreicht. [ 52 ] In der Anaphase I wird Cyclin B über einen Ubiquitin-abhängigen Abbauweg abgebaut. [ 52 ] Die Synthese von Cyclin B und die Aktivierung von CDK1 veranlassen Oozyten zum Eintritt in die Metaphase, während der Eintritt in die Anaphase durch den Ubiquitin-vermittelten Abbau von Cyclin B erfolgt, wodurch die CDK1-Aktivität sinkt. [ 52 ] Die Proteolyse von Adhäsionsproteinen zwischen homologen Chromosomen ist an der Anaphase I beteiligt, während die Proteolyse von Adhäsionsproteinen zwischen Schwesterchromatiden in der Anaphase II stattfindet. [ 52 ] Der Arrest in der Meiose II wird durch den zytostatischen Faktor (CSF) bewirkt, dessen Bestandteile das MOS-Protein, die Mitogen-aktivierte Proteinkinase-Kinase (MAPKK/MEK1) und MAPK umfassen. [ 52 ] Die Proteinkinase p90 (RSK) ist ein wichtiges Zielmolekül von MAPK und kann durch Reaktivierung von CDK1 den Eintritt in die S-Phase zwischen Meiose I und II blockieren. [ 52 ] Es gibt Hinweise darauf, dass RSK den Eintritt in die Meiose I fördert, indem es MYT1 hemmt, welches CDK1 aktiviert. [ 52 ] Der CSF-Arrest könnte durch die Regulation des APC im Rahmen des Spindelkontrollpunkts erfolgen. [ 52 ]
In der Bäckerhefe *Saccharomyces cerevisiae* ist Clb1 das wichtigste meiotische regulatorische Cyclin, obwohl auch Clb3 und Clb4 während der Meiose exprimiert werden und unmittelbar vor der ersten meiotischen Teilung eine p34- cdc28 -assoziierte Kinase aktivieren. [ 74 ] Der Transkriptionsfaktor IME1 steuert den Eintritt in die meiotische S-Phase und wird durch Faktoren wie die Nährstoffversorgung reguliert. [ 75 ] a1/α2 reprimiert einen Repressor von IME1 und initiiert so die Meiose. [ 75 ] Zahlreiche meiotische regulatorische Gene von *S. cerevisiae* wurden identifiziert. Einige davon werden hier vorgestellt. IME1 ermöglicht die Sporulation von Nicht-a/α-Diploiden. [ 76 ] IME2 / SME1 ermöglicht die Sporulation in Gegenwart von Stickstoff, unterstützt die Rekombination in a/α-Zellen, die RME1 , einen Inhibitor der Meiose, exprimieren, und kodiert ein Proteinkinase-Homolog. [ 76 ] MCK1 (Meiose- und Zentromer-Regulationskinase) unterstützt ebenfalls die Rekombination in a/α-Zellen, die RME1 exprimieren , und kodiert ein Proteinkinase-Homolog. [ 76 ] SME2 ermöglicht die Sporulation in Gegenwart von Ammoniak oder Glucose. [ 76 ] UME1–5 ermöglichen die Expression bestimmter früher meiotischer Gene in vegetativen, nicht-a/α-Zellen. [ 76 ]
In der Spaltpilzart S. pombe initiieren die Cdc2-Kinase und das Cyclin Cig2 gemeinsam die prämeiotische S-Phase, während das Cyclin Cdc13 und der CDK-Aktivator Cdc25 für beide meiotischen Teilungen notwendig sind. [ 77 ] Das Pat1-Mei2-System ist jedoch zentral für die meiotische Regulation von S. pombe . Mei2 ist der wichtigste meiotische Regulator. [ 77 ] Es pendelt zwischen Zellkern und Zytoplasma und interagiert mit meiRNA, um die Meiose I zu fördern. [ 77 ] Darüber hinaus ist Mei2 am Austritt aus der Mitose und der Induktion der prämeiotischen S-Phase beteiligt. [ 77 ] Mei2 kann das DSR-Mmi1-System durch Sequestrierung von Mmi1 inaktivieren, um die Expression meiosespezifischer Transkripte zu stabilisieren. [ 77 ] Mei2 kann das Wachstum hemmen und einen G1-Arrest herbeiführen. [ 77 ] Pat1 ist eine Ser/Thr-Proteinkinase, die Mei2, ein RNA-bindendes Protein, an den Aminosäureresten Ser438 und Thr527 phosphoryliert. [ 77 ] Diese Phosphorylierung kann die Halbwertszeit von Mei2 verkürzen, indem sie dessen Abbau durch ein Proteasom in Zusammenarbeit mit den Enzymen E2 Ubc2 und E3 Ubr1 begünstigt. [ 77 ] Der Transkriptionsfaktor Mei4 ist für die transkriptionelle Aktivierung von cdc25 während der Meiose notwendig, und die mei4- Mutante erleidet einen Zellzyklusarrest. [ 77 ] Mes1 hemmt den APC/C-Aktivator Slp1, sodass die Cdc2-Cdc13-MPF-Aktivität die zweite meiotische Teilung auslösen kann. [ 77 ]
Es wurde vermutet, dass das Hefegenprodukt CEP1, das an die zentromerische Region CDE1 bindet, eine Rolle bei der Chromosomenpaarung während der Meiose I spielen könnte. [ 78 ]
Die meiotische Rekombination wird durch Doppelstrangbrüche vermittelt, die vom Protein Spo11 katalysiert werden. Auch Mre11, Sae2 und Exo1 spielen eine Rolle bei Bruch und Rekombination. Nach dem Bruch findet Rekombination statt, die typischerweise homolog ist. Die Rekombination kann entweder über einen doppelten Holliday-Übergang (dHJ) oder über syntheseabhängiges Strangannealing (SDSA) erfolgen. (Letzteres führt zu einem Nicht-Crossover-Produkt.) [ 79 ]
Offenbar gibt es auch Kontrollpunkte für die meiotische Zellteilung. Bei S. pombe bilden vermutlich Rad-Proteine, S. pombe Mek1 (mit FHA-Kinasedomäne), Cdc25, Cdc2 und ein unbekannter Faktor einen solchen Kontrollpunkt. [ 80 ]
Bei der Oogenese der Wirbeltiere spielt der durch den zytostatischen Faktor (CSF) aufrechterhaltene Faktor eine Rolle beim Übergang in die Meiose II. [ 78 ]
Siehe auch
Referenzen
Fußnoten
Zitate
- ^ „4.1: Meiose“ . Biology LibreTexts . 01.10.2019 . Abgerufen am 29.05.2021 .
- ^ „Definition der Reduktionsabteilung“ . MedicineNet . Abgerufen am 29.05.2021 .
- ^ a b Freeman S (2011). Biologische Wissenschaften (6. Aufl.). Hoboken, NY: Pearson. S. 210.
- ^ Hassold T, Hunt P (April 2001). „Meiotische Fehler sind menschlich: Die Entstehung der menschlichen Aneuploidie“. Nature Reviews Genetics . 2 (4): 280–91 . doi : 10.1038/35066065 . PMID 11283700. S2CID 22264575 .
- ^ Letunic I, Bork P (2006). „Interaktiver Baum des Lebens“ . Archiviert vom Original am 29. Januar 2018. Abgerufen am 23. Juli 2011 .
- Bernstein H, Bernstein C (2010). „Evolutionärer Ursprung der Rekombination während der Meiose“. BioScience . 60 (7): 498–505 . Bibcode : 2010BiSci..60..498B . doi : 10.1525/bio.2010.60.7.5 . S2CID 86663600 .
- ^ Lodé T (Juni 2011). „Sex ist keine Lösung für die Fortpflanzung: Die Theorie der libertinen Blase“ . BioEssays . 33 (6): 419–22 . doi : 10.1002/bies.201000125 . PMID 21472739 .
- ^ Farmer, JB; Moore, JES (Februar 1904). „Über die Maiotische Phase (Reduktionsteilungen) bei Tieren und Pflanzen“ . Quarterly Journal of Microscopical Science . 48 (192): 489–558 .wie im Oxford English Dictionary , dritte Auflage, Juni 2001, sv zitiert.
- ^ Battaglia E (1985). „Meiose und Mitose: eine terminologische Kritik“ . Annali di Botanica . 43 : 101–140 .
- ^ Carter JS (27.10.2012). „Mitose“ . Universität von Cincinnati. Archiviert vom Original am 27.10.2012 . Abgerufen am 9.2.2018 .
- ^ Zhou A, Pawlowski WP (August 2014). „Regulation der meiotischen Genexpression in Pflanzen“ . Frontiers in Plant Science . 5 : 413. Bibcode : 2014FrPS....5..413Z . doi : 10.3389/fpls.2014.00413 . PMC 4142721. PMID 25202317 .
- ^ Jung M, Wells D, Rusch J, Ahmad S, Marchini J, Myers SR, Conrad DF (Juni 2019). „Vereinheitlichte Einzelzellanalyse der Genregulation und Pathologie des Hodens in fünf Mausstämmen“ . eLife . 8 e43966 . doi : 10.7554/eLife.43966 . PMC 6615865. PMID 31237565 .
- ^ Brar GA, Yassour M, Friedman N, Regev A, Ingolia NT, Weissman JS (Februar 2012). „Hochauflösende Darstellung des meiotischen Programms der Hefe durch Ribosomen-Profiling“ . Science . 335 ( 6068): 552–7 . Bibcode : 2012Sci...335..552B . doi : 10.1126/science.1215110 . PMC 3414261. PMID 22194413 .
- ^ Freeman 2005 , S. 244–45
- ^ Cohen PE, Pollack SE, Pollard JW (Juni 2006). „Genetische Analyse der Chromosomenpaarung, Rekombination und Zellzykluskontrolle während der ersten meiotischen Prophase bei Säugetieren“ . Endocrine Reviews . 27 (4): 398–426 . doi : 10.1210/er.2005-0017 . PMID 16543383 .
- ^ Hunter N (Oktober 2015). „Meiotische Rekombination: Das Wesen der Vererbung“ . Cold Spring Harbor Perspectives in Biology . 7 (12) a016618. doi : 10.1101/cshperspect.a016618 . PMC 4665078. PMID 26511629 .
- ^ a b c Freeman 2005 , S. 249–250
- ^ a b c d e f Snustad DP, Simmons MJ (Dezember 2008). Principles of Genetics (5. Aufl.). Wiley. ISBN 978-0-470-38825-9Die
- ^ Krebs JE, Goldstein ES, Kilpatrick ST (November 2009). Lewin's Genes X (10. Aufl.). Jones & Bartlett Learning. ISBN 978-0-7637-6632-0Die
- Zickler D , Kleckner N (Mai 2015). „Rekombination, Paarung und Synapsis homologer Chromosomen während der Meiose“ . Cold Spring Harbor Perspectives in Biology . 7 ( 6) a016626. Bibcode : 2015CSHPB...716626Z . doi : 10.1101 / cshperspect.a016626 . PMC 4448610. PMID 25986558 .
- ^ Baudat F, de Massy B (Juli 2007). „Regulation der Reparatur von DNA-Doppelstrangbrüchen in Richtung Crossover oder Nicht-Crossover während der Meiose von Säugetieren“ . Chromosome Research . 15 (5): 565–77 . doi : 10.1007/s10577-007-1140-3 . PMID 17674146. S2CID 26696085 .
- ^ O'Connor C (2008). „Meiose, genetische Rekombination und sexuelle Fortpflanzung“ . Nature Education . 1 (1): 174.
- ^ Link J, Jantsch V (September 2019). „ Meiotische Chromosomen in Bewegung: eine Perspektive von Mus musculus und Caenorhabditis elegans“ . Chromosoma . 128 (3): 317–330 . doi : 10.1007/s00412-019-00698-5 . PMC 6823321. PMID 30877366 .
- ^ Chen JM, Cooper DN, Chuzhanova N, Férec C, Patrinos GP (Oktober 2007). „Genkonversion: Mechanismen, Evolution und menschliche Krankheiten“. Nature Reviews Genetics . 8 (10): 762–775 . doi : 10.1038/nrg2193 . PMID 17846636. S2CID 205484180 .
- ^ Bolcun-Filas E, Handel MA (Juli 2018). „Meiose: Die chromosomale Grundlage der Reproduktion“ . Biology of Reproduction . 99 (1): 112–126 . doi : 10.1093 / biolre/ioy021 . PMID 29385397. S2CID 38589675 .
- ^ Nussbaum RL, McInnes RR, Willard HF, Hamosh A (21.05.2015). Thompson & Thompson Genetics in Medicine (8. Aufl.). Elsevier. S. 19. ISBN 978-1-4377-0696-3OCLC 908336124 .
- ^ Schuh M, Ellenberg J (August 2007). „Selbstorganisation von MTOCs ersetzt die Zentrosomenfunktion während der azentrosomalen Spindelbildung in lebenden Mausoozyten“ . Cell . 130 ( 3): 484–98 . doi : 10.1016/j.cell.2007.06.025 . PMID 17693257. S2CID 5219323 .
- Holubcová Z, Blayney M, Elder K, Schuh M (Juni 2015). „Humane Oozyten. Fehleranfällige, chromosomenvermittelte Spindelbildung begünstigt Chromosomensegregationsdefekte in menschlichen Oozyten“ . Science . 348 ( 6239): 1143–7 . Bibcode : 2015Sci...348.1143H . doi : 10.1126/science.aaa9529 . PMC 4477045. PMID 26045437 .
- ^ Kitajima TS, Ohsugi M, Ellenberg J (August 2011). „Vollständige Kinetochorenverfolgung deckt fehleranfällige Biorientierung homologer Chromosomen in Säugetier-Oozyten auf“ . Cell . 146 ( 4): 568–81 . doi : 10.1016/j.cell.2011.07.031 . PMID 21854982. S2CID 5637615 .
- ^ a b Pierce, Benjamin (2009). „Chromosomen und Zellteilung“. Genetik: Ein konzeptioneller Ansatz, dritte Auflage. WH FREEMAN AND CO. ISBN 9780716779285S. 32
- ^ Haglund K, Nezis IP, Stenmark H (Januar 2011). „Struktur und Funktionen stabiler interzellulärer Brücken, die durch unvollständige Zytokinese während der Entwicklung entstehen“ . Communicative & Integrative Biology . 4 (1): 1–9 . doi : 10.4161/cib.13550 . PMC 3073259. PMID 21509167 .
- ^ „BioCoach-Aktivität: Konzept 11: Meiose II: Metaphase II“ . The Biology Place . Pearson. Archiviert vom Original am 28.02.2018 . Abgerufen am 10.02.2018 .
- ^ Ramesh MA, Malik SB, Logsdon JM (Januar 2005). „Eine phylogenomische Bestandsaufnahme meiotischer Gene; Hinweise auf Sex bei Giardia und einen frühen eukaryotischen Ursprung der Meiose“ . Curr Biol . 15 (2): 185–91 . Bibcode : 2005CBio...15..185R . doi : 10.1016/j.cub.2005.01.003 . PMID 15668177 .
- Cooper MA, Adam RD, Worobey M, Sterling CR (November 2007). „Populationsgenetik liefert Hinweise auf Rekombination bei Giardia“ . Curr Biol . 17 (22): 1984–8 . Bibcode : 2007CBio...17.1984C . doi : 10.1016/j.cub.2007.10.020 . PMID 17980591 .
- ^ Akopyants NS, Kimblin N, Secundino N, Patrick R, Peters N, Lawyer P, Dobson DE, Beverley SM, Sacks DL (April 2009). „Nachweis des genetischen Austauschs während der zyklischen Entwicklung von Leishmania im Sandmückenvektor“ . Science . 324 (5924): 265–268 . Bibcode : 2009Sci...324..265A . doi : 10.1126/ science.1169464 . PMC 2729066. PMID 19359589 .
- ^ Lahr DJ, Parfrey LW, Mitchell EA, Katz LA, Lara E (Juli 2011). „Die Keuschheit von Amöben: Eine Neubewertung der Belege für Sexualität bei amöboiden Organismen“ . Proc Biol Sci . 278 (1715): 2081–90 . Bibcode : 2011PBioS.278.2081L . doi : 10.1098/rspb.2011.0289 . PMC 3107637. PMID 21429931 .
- ^ Dacks J, Roger AJ (Juni 1999). „Die erste sexuelle Linie und die Relevanz des fakultativen Geschlechts“. J Mol Evol . 48 (6): 779–83 . Bibcode : 1999JMolE..48..779D . doi : 10.1007/pl00013156 . PMID 10229582 .
- ^ Monaghan F, Corcos A (1984-01-01). „Über die Ursprünge der Mendelschen Gesetze“. The Journal of Heredity . 75 (1): 67–9 . doi : 10.1093/oxfordjournals.jhered.a109868 . PMID 6368675 .
- ^ Saleem M, Lamb BC, Nevo E (Dezember 2001). „Vererbte Unterschiede in den Crossing-over- und Genkonversionsfrequenzen zwischen Wildstämmen von Sordaria fimicola aus dem „Evolution Canyon““" . Genetics . 159 (4): 1573– 93. doi : 10.1093/genetics/159.4.1573 . PMC 1461899 . PMID 11779798 .
- ^ Xiang Y, Tsuchiya D, Guo F, Gardner J, McCroskey S, Price A, Tromer EC, Walters JR, Lake CM, Hawley RS (Mai 2023). „Ein molekularbiologisches Werkzeugset zur Untersuchung der Meiose beim Seidenspinner Bombyx mori“ . G3 (Bethesda) . 13 (5) jkad058. doi : 10.1093/g3journal/jkad058 . PMC 10151401. PMID 36911915 .
- ^ Rasmussen SW (April 1977). „Die Umwandlung des synaptonemalen Komplexes in das ‚Eliminierungschromatin‘ in Bombyx mori-Oozyten“. Chromosoma . 60 (3): 205–221 . doi : 10.1007/BF00329771 . PMID 870294 .
- ^ a b c Mira A (September 1998). „Warum wird die Meiose unterbrochen?“. Journal of Theoretical Biology . 194 (2): 275–87 . Bibcode : 1998JThBi.194..275M . doi : 10.1006/jtbi.1998.0761 . PMID 9778439 .
- Stringer JM , Winship A, Zerafa N, Wakefield M, Hutt K (Mai 2020). „ Oozyten können DNA-Doppelstrangbrüche effizient reparieren, um die genetische Integrität wiederherzustellen und die Gesundheit der Nachkommen zu schützen“ . Proceedings of the National Academy of Sciences of the United States of America . 117 (21): 11513–11522 . Bibcode : 2020PNAS..11711513S . doi : 10.1073 / pnas.2001124117 . PMC 7260990. PMID 32381741 .
- Bernstein H, Byerly HC, Hopf FA, Michod RE (September 1985). „Genetische Schäden, Mutationen und die Evolution des Geschlechts“. Science . 229 (4719): 1277–81 . Bibcode : 1985Sci...229.1277B . doi : 10.1126/science.3898363 . PMID 3898363 .
- Bernstein H, Hopf FA, Michod RE (1987). „Die molekulare Grundlage der Evolution des Geschlechts“. Molekulargenetik der Entwicklung . Fortschritte in der Genetik. Band 24. S. 323–370 . doi : 10.1016/s0065-2660(08)60012-7 . ISBN 978-0-12-017624-3PMID 3324702 .
- ^ Slupphaug G, Kavli B, Krokan HE (Oktober 2003). „Die interagierenden Signalwege zur Prävention und Reparatur oxidativer DNA-Schäden“. Mutat Res . 531 ( 1–2 ): 231–51 . Bibcode : 2003MRFMM.531..231S . doi : 10.1016/j.mrfmmm.2003.06.002 . PMID 14637258 .
- Bernstein C, Johns V (April 1989). „Sexuelle Fortpflanzung als Reaktion auf H₂O₂-Schäden bei Schizosaccharomyces pombe“ . J Bacteriol . 171 (4): 1893–7 . doi : 10.1128/jb.171.4.1893-1897.1989 . PMC 209837. PMID 2703462 .
- ^ Kirk DL, Kirk MM (Januar 1986). „Hitzeschock löst die Produktion eines Sexualhormons bei Volvox aus“. Science . 231 (4733): 51–4 . Bibcode : 1986Sci...231...51K . doi : 10.1126/science.3941891 . PMID 3941891 .
- ^ Nedelcu AM, Marcu O, Michod RE (August 2004). „Sex als Reaktion auf oxidativen Stress: Eine Verdopplung der zellulären reaktiven Sauerstoffspezies aktiviert Sexualgene“ . Proc Biol Sci . 271 (1548): 1591–6 . Bibcode : 2004PBioS.271.1591N . doi : 10.1098 / rspb.2004.2747 . PMC 1691771. PMID 15306305 .
- ^ South GR, Whittick A (08.07.2009). Einführung in die Phykologie . Wiley. ISBN 978-1-4443-1420-5Die
- ^ Bidlack JE, Jansky S, Stern KR (2011). Stern’s Introductory Plant Biology . McGraw Hill. S. 214–229 . ISBN 978-0-07-304052-3OCLC 320895017 .
- ^ a b c d e f g h i j k l m n Eppig, John J.; Viveiros, Maria M.; Bivens, Carrie Marin; De la fuente, Rabindranath (01.01.2004), „Kapitel 7 – Regulierung der Eizellenreifung von Säugetieren“ , in Leung, PETER CK; Adashi, Eli Y. (Hrsg.), The Ovary (Zweite Ausgabe), San Diego: Academic Press, S. 113–129 , ISBN 978-0-12-444562-8abgerufen am 15.12.2024
- Brunet S, Verlhac MH (2010). „Positionierung zum Verlassen der Meiose: Die Asymmetrie der Zellteilung“ . Human Reproduction Update . 17 (1): 68–75 . doi : 10.1093/humupd/dmq044 . PMID 20833637. S2CID 13988521 .
- ^ Rosenbusch B (November 2006). „Die widersprüchlichen Informationen zur Verteilung von Non-Disjunction und Prädivision in weiblichen Gameten“. Human Reproduction . 21 (11): 2739–42 . doi : 10.1093/humrep/del122 . PMID 16982661 .
- ^ Lin Y, Gill ME, Koubova J, Page DC (Dezember 2008). „Keimzell-intrinsische und -extrinsische Faktoren steuern die Meioseinitiierung in Mausembryonen“. Science . 322 ( 5908): 1685–7 . Bibcode : 2008Sci...322.1685L . doi : 10.1126/science.1166340 . PMID 19074348. S2CID 11261341 .
- ^ Suzuki A, Saga Y (Februar 2008). „Nanos2 unterdrückt die Meiose und fördert die Differenzierung männlicher Keimzellen“ . Genes & Development . 22 (4): 430–5 . doi : 10.1101/gad.1612708 . PMC 2238665. PMID 18281459 .
- ^ a b Teletin M, Vernet N, Yu J, Klopfenstein M, Jones JW, Féret B, Kane MA, Ghyselinck NB, Mark M (Januar 2019). „Zwei funktionell redundante Quellen der Retinsäure sichern die Differenzierung von Spermatogonien im Samenepithel“ . Development . 146 (1) dev.170225: dev170225. doi : 10.1242/dev.170225 (inaktiv seit 3. Dezember 2025) . PMC 6340151. PMID 30487180 .
{{cite journal}}: CS1 Wartung: DOI inaktiv ab Dezember 2025 ( Link ) - Bowles J, Knight D, Smith C, Wilhelm D, Richman J, Mamiya S, Yashiro K, Chawengsaksophak K, Wilson MJ, Rossant J, Hamada H, Koopman P (April 2006). „Retinoid signaling determines germ cell fate in mice“. Science . 312 ( 5773 ): 596–600 . Bibcode : 2006Sci...312..596B . doi : 10.1126/science.1125691 . PMID 16574820. S2CID 2514848 .
- ^ Kumar S, Chatzi C, Brade T, Cunningham TJ, Zhao X, Duester G (Januar 2011). „Geschlechtsspezifischer Zeitpunkt der Meioseeinleitung wird durch Cyp26b1 unabhängig von der Retinsäuresignalgebung reguliert“ . Nature Communications . 2 (1) 151. Bibcode : 2011NatCo...2..151K . doi : 10.1038/ncomms1136 . PMC 3034736. PMID 21224842 .
- ^ a b Raikov IB (1995). „Meiose bei Protisten: Neuere Fortschritte und anhaltende Probleme“. European Journal of Protistology . 31 : 1–7 . doi : 10.1016/s0932-4739(11)80349-4 .
- ^ Hegde MR, Crowley MR (2019-01-01). „Genom- und Genstruktur“. Emery and Rimoin's Principles and Practice of Medical Genetics and Genomics : 53–77 . doi : 10.1016/B978-0-12-812537-3.00004-4 . ISBN 978-0-12-812537-3S2CID 92480716 .
- ^ Hunter N (2013-01-01). „Meiose“. Encyclopedia of Biological Chemistry (2. Aufl.). S. 17–23 . doi : 10.1016/B978-0-12-378630-2.00474-6 . ISBN 978-0-12-378631-9Die
- ^ Gottlieb, Samantha F.; Tupper, Connor; Tegay, David H. (14.08.2023), „Genetik, Nondisjunktion“ , StatPearls [Internet] , StatPearls Publishing, PMID 29489267 , abgerufen am 27.07.2025
- Hassold T, Jacobs P, Kline J, Stein Z, Warburton D (Juli 1980). „Einfluss des mütterlichen Alters auf autosomale Trisomien“. Annals of Human Genetics . 44 (1): 29–36 . doi : 10.1111/j.1469-1809.1980.tb00943.x . PMID 7198887. S2CID 24469567 .
- ^ Tsutsumi M, Fujiwara R, Nishizawa H, Ito M, Kogo H, Inagaki H, Ohye T, Kato T, Fujii T, Kurahashi H (Mai 2014). „Altersbedingter Rückgang meiotischer Kohäsine in menschlichen Eizellen“ . PLUS EINS . 9 (5) e96710. Bibcode : 2014PLoSO...996710T . doi : 10.1371/journal.pone.0096710 . PMC 4013030 . PMID 24806359 .
- ^ „Wie sich Zellen teilen“ . PBS . Public Broadcasting Service. Archiviert vom Original am 1. November 2012. Abgerufen am 6. Dezember 2012 .
- Heywood P, Magee PT (März 1976). „Meiose bei Protisten. Einige strukturelle und physiologische Aspekte der Meiose bei Algen, Pilzen und Protozoen“ . Bacteriological Reviews . 40 (1): 190–240 . doi : 10.1128/mmbr.40.1.190-240.1976 . PMC 413949. PMID 773364 .
- ^ Schorderet-Slatkine, Sabine; Drury, Kenneth C. (1973-10-01). „Progesteroninduzierte Reifung in Oozyten von Xenopus laevis. Auftreten eines ‚Reifungsfördernden Faktors‘ in enukleierten Oozyten“ . Cell Differentiation . 2 (4): 247–254 . doi : 10.1016/0045-6039(73)90013-4 . ISSN 0045-6039 . PMID 4799790 .
- Gerhart , J.; Wu, M.; Kirschner, M. (April 1984). „ Zellzyklusdynamik eines M-Phasen-spezifischen zytoplasmatischen Faktors in Oozyten und Eiern von Xenopus laevis“ . The Journal of Cell Biology . 98 (4): 1247–1255 . doi : 10.1083/jcb.98.4.1247 . ISSN 0021-9525 . PMC 2113233. PMID 6425302 .
- ^ Dekel, Nava (Juli 1995). „Molekulare Kontrolle der Meiose“ . Trends in Endocrinology & Metabolism . 6 (5): 165–169 . doi : 10.1016/1043-2760(95)00079-W . ISSN 1043-2760 . PMID 18406698. Archiviert vom Original am 10.03.2014 . Abgerufen am 16.12.2024 .
- ^ a b c d e f g Zhang, Meijia (2017), „Ein neues Verständnis der Regulation des meiotischen Prophase-Arrests und der Wiederaufnahme in Oozyten“ , in: Chian, Ri-Cheng; Nargund, Geeta; Huang, Jack YJ (Hrsg.), Entwicklung der In-vitro-Reifung menschlicher Oozyten: Natürliche und schonende Ansätze zur klinischen Behandlung von Unfruchtbarkeit , Cham: Springer International Publishing, S. 59–74 , doi : 10.1007/978-3-319-53454-1_3 , ISBN 978-3-319-53454-1abgerufen am 15.12.2024
- Solc , Petr; Schultz, Richard M.; Motlik, Jan (1. September 2010). „ Prophase - I - Arrest und Übergang zur Metaphase I in Maus-Oozyten: Vergleich der Wiederaufnahme der Meiose und der Erholung vom G2-Arrest in somatischen Zellen“ . Molecular Human Reproduction . 16 ( 9): 654–664 . doi : 10.1093 / molehr/gaq034 . ISSN 1360-9947 . PMC 2930517. PMID 20453035 .
- ^ a b c d e f g h i Jamnongjit, Michelle; Hammes, Stephen (2005). „Oozytenreifung: Die Entwicklung einer Keimzelle“ . Seminars in Reproductive Medicine . 23 (3): 234–241 . doi : 10.1055 / s-2005-872451 . PMC 1482430. PMID 16059829 .
- Grandin , Nathalie; Reed, Steven I. (1993-04-01). „Differential Function and Expression of Saccharomyces cerevisiae B-type Cyclins in Mitosis and Meiosis“ . Molecular and Cellular Biology . 13 (4): 2113–2125 . doi : 10.1128/mcb.13.4.2113-2125.1993 . PMC 359532. PMID 8455600 .
- ^ a b Kimble J (August 2011). „ Molekulare Regulation der Mitose/Meiose-Entscheidung in vielzelligen Organismen“ . Cold Spring Harbor Perspectives in Biology . 3 (8) a002683. doi : 10.1101/cshperspect.a002683 . PMC 3140684. PMID 21646377 .
- ^ a b c d e Mitchell, AP (1994). „ Kontrolle der meiotischen Genexpression in Saccharomyces cerevisiae“ . Microbiological Reviews . 58 (1): 56–70 . doi : 10.1128/mr.58.1.56-70.1994 . PMC 372953. PMID 8177171 .
- ^ a b c d e f g h i j Harigaya, Yuriko; Yamamoto, Masayuki (01.07.2007). „Molekulare Mechanismen, die der Mitose-Meiose-Entscheidung zugrunde liegen“ . Chromosomenforschung . 15 (5): 523–537 . doi : 10.1007/s10577-007-1151-0 . ISSN 1573-6849 . PMID 17674143 .
- ^ a b Honigberg SM, McCarroll RM, Esposito RE (April 1993). „Regulatorische Mechanismen in der Meiose“. Current Opinion in Cell Biology . 5 (2): 219–225 . doi : 10.1016/0955-0674(93)90106-z . PMID 8389567 .
- ^ Lam I, Keeney S (Oktober 2014). „Mechanismus und Regulation der meiotischen Rekombinationsinitiierung“ . Cold Spring Harbor Perspectives in Biology . 7 (1) a016634. doi : 10.1101/cshperspect.a016634 . PMC 4292169. PMID 25324213 .
- ^ Pérez-Hidalgo L, Moreno S, San-Segundo PA (Januar 2003). „Regulation des meiotischen Fortschreitens durch die Meiose-spezifische Checkpoint-Kinase Mek1 in Spalthefe“. Zeitschrift für Zellwissenschaft . 116 (Teil 2): 259–71 . doi : 10.1242/jcs.00232 . HDL : 10261/62904 . PMID 12482912 . S2CID 14608163 .
Zitierte Texte
- Freeman S (2005). Biologische Wissenschaften (3. Aufl.). Upper Saddle River, NJ: Pearson Prentice Hall. ISBN 978-0-13-140941-5Die
Externe Links
- Meiose-Flash-Animation, archiviert am 23.08.2010 im Internetarchiv (Wayback Machine) .
- Animationen aus dem Fachbereich Biologie der Universität von Arizona.
- Meiose auf Kimballs Biologieseiten
- Khan Academy, Videovorlesung
- CCO Die Zellzyklus-Ontologie
- Animation der Stadien der Meiose