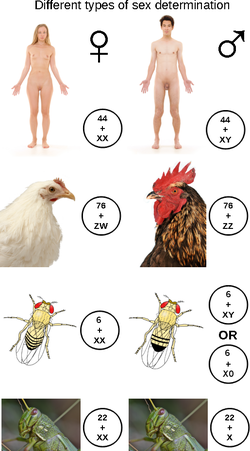
Ein Geschlechtsbestimmungssystem ist ein biologisches System, das die Entwicklung des Geschlechts eines Organismus steuert . [ 1 ] Die meisten Organismen , die sich sexuell fortpflanzen, haben zwei gemeinsame Geschlechter, Männchen und Weibchen . Bei anderen Arten gibt es Hermaphroditen , Organismen, die sich entweder als Weibchen oder als Männchen oder als beides fortpflanzen können. [ 2 ]
Es gibt auch Arten, bei denen nur ein Geschlecht vorkommt, sei es vorübergehend oder dauerhaft. Dies kann auf Parthenogenese zurückzuführen sein , die Fortpflanzung eines weiblichen Organismus ohne Befruchtung , die vor allem bei Pflanzen vorkommt. Bei manchen Pflanzen oder Algen kann sich das Gametophytenstadium selbst reproduzieren und so weitere Individuen des gleichen Geschlechts wie das Elterntier hervorbringen.
Bei manchen Arten ist die Geschlechtsbestimmung genetisch bedingt: Männchen und Weibchen besitzen unterschiedliche Allele oder sogar unterschiedliche Gene , die ihre Geschlechtsmerkmale festlegen . Bei Tieren geht dies häufig mit chromosomalen Unterschieden einher, in der Regel durch Kombinationen von XY- , ZW- , XO- oder ZO- Chromosomen oder durch Haplodiploidie . Die Geschlechtsdifferenzierung wird im Allgemeinen durch ein Hauptgen (einen „Geschlechtslocus“) ausgelöst, woraufhin eine Vielzahl weiterer Gene in einer Art Dominoeffekt folgt .
In anderen Fällen wird das Geschlecht eines Fötus durch Umweltfaktoren (wie die Temperatur) bestimmt . Die Details einiger Geschlechtsbestimmungsmechanismen sind noch nicht vollständig erforscht.
Einige Arten, wie beispielsweise verschiedene Pflanzen und Fische, besitzen kein festes Geschlecht, sondern durchlaufen Lebenszyklen und wechseln ihr Geschlecht anhand genetischer Merkmale in den entsprechenden Lebensstadien ihrer Art. Dies kann auf Umweltfaktoren wie Jahreszeiten und Temperatur zurückzuführen sein. Bei manchen getrenntgeschlechtlichen Arten können einzelne Individuen Merkmale aufweisen , die zu einer Mischung verschiedener Geschlechtsmerkmale führen . [ 3 ]
Entdeckung
Das wissenschaftliche Verständnis der Geschlechtsbestimmung hat sich im Laufe der Jahrhunderte durch eine Reihe bahnbrechender Entdeckungen bei Pflanzen, Tieren und Insekten erheblich weiterentwickelt.
Im Jahr 1694 führte der deutsche Botaniker Rudolf Jakob Camerarius bahnbrechende Experimente zur Bestäubung durch, bei denen er die Existenz unterschiedlicher männlicher und weiblicher Fortpflanzungsstrukturen bei Pflanzen, darunter auch Mais, nachwies. Seine Erkenntnisse legten den Grundstein für das Verständnis der pflanzlichen Fortpflanzung und der Geschlechtsdifferenzierung. [ 4 ]
1866 veröffentlichte der österreichische Mönch und Wissenschaftler Gregor Mendel seine bahnbrechende Arbeit über die Vererbung von Merkmalen bei Erbsenpflanzen. Diese Erkenntnisse – heute als Mendelsche Vererbung bekannt – führten das Konzept der vererbbaren Einheiten (Gene) ein, die von zwei Gameten weitergegeben werden. Mendels Prinzipien bildeten schließlich das Fundament der modernen Genetik. [ 5 ]
Im Jahr 1902 schlug der amerikanische Zoologe C. E. McClung auf der Grundlage zytologischer Studien an Insekten vor, dass Geschlechtschromosomen eine zentrale Rolle bei der Geschlechtsbestimmung spielen. Dies war einer der frühesten Schritte hin zu einer chromosomalen Theorie der Geschlechtsbestimmung. [ 6 ]
Die amerikanische Genetikerin Nettie Stevens machte 1903 bei der Untersuchung des Mehlwurms (Tenebrio molitor) eine bahnbrechende Entdeckung : Sie wies nach, dass das Geschlecht durch spezifische Chromosomen, die heute als X- und Y-Chromosomen bekannt sind, bestimmt wird. Ihre Ergebnisse lieferten den ersten konkreten Beweis für die chromosomale Geschlechtsbestimmung. [ 7 ] [ 8 ]
1917 erweiterte der Botaniker Charles Elmer Allen dieses Verständnis auf das Pflanzenreich, indem er Geschlechtschromosomen in Pflanzen entdeckte und damit bestätigte, dass der chromosomale Mechanismus nicht ausschließlich Tieren vorbehalten ist. [ 9 ]
Im Jahr 1922 stellte der Genetiker Calvin B. Bridges die Genie-Balance-Theorie vor, die auf Experimenten mit Drosophila melanogaster (Fruchtfliegen) basiert. Er postulierte, dass das Verhältnis von X-Chromosomen zu Autosomen die Geschlechtsentwicklung bestimmt, und erweiterte damit das bis dahin akzeptierte XX/XY-System um eine neue Dimension. [ 10 ]
1928 beschrieb der Schweizer Biologe Fritz Baltzer als Erster die umweltbedingte Geschlechtsbestimmung und zeigte, dass äußere Umweltfaktoren wie die Temperatur die Geschlechtsentwicklung bestimmter Organismen beeinflussen können. Diese Entdeckung erweiterte das Verständnis der Geschlechtsbestimmung über rein genetische Mechanismen hinaus. [ 11 ]
Chromosomale Systeme
Bei Tieren sind die häufigsten chromosomalen Geschlechtsbestimmungssysteme XY, XO, ZW und ZO, allerdings gibt es zahlreiche Ausnahmen.
Laut der Tree of Sex-Datenbank [ 12 ] (Stand 2023) sind folgende Systeme zur Geschlechtsbestimmung bekannt: [ 13 ]
| Taxonomische Gruppe | XY | XO | ZW | ZO | Andere 1 | XO/XY-Verhältnis | ZO/ZW-Verhältnis |
|---|---|---|---|---|---|---|---|
| Wirbeltiere | 722 | 15 | 480 | 3 | 254 | 0,02 | 0,01 |
| Insekten | 4415 | 1857 | 37 | 25 | 156 | 0,42 | 0,68 |
| Angiospermen | 23 | 0 | 1 | 0 | 19 | 0,00 | 0,00 |
| Gesamt | 5160 | 1872 | 518 | 28 | 429 | 0,36 | 0,05 |
1. komplexe Geschlechtschromosomen, homomorphe Geschlechtschromosomen oder andere
XX/XY-Geschlechtschromosomen


Das XX/XY-System der Geschlechtsbestimmung ist wohl das bekannteste, da es beim Menschen und den meisten anderen Säugetieren sowie bei einigen Insektenarten vorkommt. Im XX/XY-System besitzen weibliche Individuen in der Regel zwei X-Chromosomen (XX), während männliche Individuen üblicherweise ein X- und ein Y-Chromosom (XY) aufweisen. Die X- und Y-Geschlechtschromosomen unterscheiden sich in Form und Größe, anders als andere Chromosomenpaare ( Autosomen ), und werden daher auch als Allosomen bezeichnet. Bei manchen Arten, einschließlich des Menschen, bleiben die Individuen während der Entwicklung ( Embryogenese ) phänotypisch zunächst undifferenziert ; bei anderen Arten, wie beispielsweise Fruchtfliegen, erfolgt die Geschlechtsdifferenzierung jedoch unmittelbar nach der Befruchtung. [ 14 ]
Y-Chromosom-zentrierte Geschlechtsbestimmung
Einige Arten (einschließlich des Menschen) besitzen ein SRY -Gen auf dem Y-Chromosom, das die Entwicklung des männlichen Phänotyps auslöst . Angehörige von SRY-abhängigen Arten können auch andere Chromosomenkombinationen wie XXY aufweisen . [ 14 ] Beim Menschen wird das karyotypische Geschlecht im Allgemeinen durch das Vorhandensein oder Fehlen eines Y-Chromosoms mit einem funktionsfähigen SRY-Gen bestimmt. Ist das SRY-Gen vorhanden und während der fetalen Entwicklung aktiviert, produzieren die Zellen Testosteron und Anti-Müller-Hormon , was typischerweise zur Entwicklung des männlichen Phänotyps führt. [ 14 ] Embryonen, denen ein funktionsfähiges SRY-Gen fehlt, wie die meisten XX-Individuen, entwickeln sich phänotypisch weiblich.
Bei der Y-chromosomalen Geschlechtsbestimmung ist das SRY-Gen dasjenige, das die Entwicklung des männlichen Phänotyps auslöst. Für diesen Prozess sind jedoch mehrere Gene erforderlich. Bei XY-Mäusen führt das Fehlen des Gens DAX1 auf dem X-Chromosom zu Sterilität, beim Menschen hingegen zu einer angeborenen Nebennierenhypoplasie . [ 15 ] Wird jedoch ein zusätzliches DAX1-Gen auf das X-Chromosom platziert, ist das Ergebnis trotz des Vorhandenseins von SRY ein weiblicher Phänotyp, da es die Wirkung von SRY aufhebt. [ 16 ] Selbst wenn bei XX-Weibchen funktionsfähige X-Chromosomen vorhanden sind, führt die Duplikation oder Expression von SOX9 zur Entwicklung von Hoden. [ 17 ] [ 18 ] Eine allmähliche Geschlechtsumkehr bei ausgewachsenen Mäusen kann auch auftreten, wenn das Gen FOXL2 bei Weibchen entfernt wird. [ 19 ] Obwohl das Gen DMRT1 bei Vögeln als Geschlechtslocus dient, sind auch Arten mit XY-Chromosomen auf DMRT1, das sich auf Chromosom 9 befindet, für die Geschlechtsdifferenzierung zu einem bestimmten Zeitpunkt ihrer Entwicklung angewiesen. [ 14 ]
X-zentrierte Geschlechtsbestimmung
Einige Arten, wie beispielsweise Fruchtfliegen , nutzen das Vorhandensein zweier X-Chromosomen, um das weibliche Geschlecht zu bestimmen . [ 20 ] Arten, die die Anzahl der X-Chromosomen zur Geschlechtsbestimmung verwenden, sind mit einem zusätzlichen X-Chromosom nicht lebensfähig.
Andere Varianten der XX/XY-Geschlechtsbestimmung
Einige Fische besitzen Varianten des XY-Geschlechtsbestimmungssystems sowie das reguläre System. Beispielsweise besitzen Xiphophorus nezahualcoyotl und X. milleri neben dem XY-Chromosomensatz auch ein zweites Y-Chromosom, bekannt als Y', das XY'-Weibchen und YY'-Männchen hervorbringt. [ 21 ]
Mindestens ein Kloakentier , das Schnabeltier , weist ein besonderes Geschlechtsbestimmungsschema auf, das in mancher Hinsicht dem der ZW-Geschlechtschromosomen von Vögeln ähnelt und das SRY-Gen nicht besitzt. Das Schnabeltier hat Geschlechtschromosomen . Die Männchen haben X-Chromosomen , die Weibchen Y-Chromosomen . Während der Meiose bilden 5 X-Chromosomen eine Kette und 5 Y-Chromosomen eine andere. Somit verhalten sie sich im Prinzip wie ein typisches XY-Chromosomensystem, nur dass jedes X- und Y-Chromosom in 5 Teile geteilt wird, was dazu führt, dass Rekombinationen an 4 bestimmten Stellen sehr häufig auftreten. [ 22 ] Eines der X-Chromosomen ist homolog zum menschlichen X-Chromosom, das andere zum Z-Chromosom der Vögel. [ 23 ]


Obwohl es sich um ein XY-System handelt, weisen die Geschlechtschromosomen des Schnabeltiers keine Homologen mit denen der Höheren Säugetiere auf. [ 24 ] Homologe zu den Geschlechtschromosomen der Höheren Säugetiere befinden sich stattdessen auf Chromosom 6 des Schnabeltiers. Dies bedeutet, dass die Geschlechtschromosomen der Höheren Säugetiere Autosomen waren , als sich die Kloakentiere von den Höheren Säugetieren (Beuteln und Höheren Säugetieren) abspalteten. Homologe zum aviären DMRT1 -Gen auf den Geschlechtschromosomen X3 und X5 des Schnabeltiers legen jedoch nahe, dass das geschlechtsbestimmende Gen beim Schnabeltier möglicherweise dasselbe ist, das auch bei Vögeln an der Geschlechtsbestimmung beteiligt ist. Weitere Forschung ist notwendig, um das genaue geschlechtsbestimmende Gen des Schnabeltiers zu identifizieren. [ 25 ]

XX/X0 Geschlechtschromosomen
Bei dieser Variante des XY-Systems besitzen Weibchen zwei Kopien des Geschlechtschromosoms (XX), Männchen hingegen nur eines (X0). Die 0 steht für das Fehlen eines zweiten Geschlechtschromosoms. Im Allgemeinen wird das Geschlecht bei dieser Methode durch die Menge der auf den beiden Chromosomen exprimierten Gene bestimmt. Dieses System findet sich bei einer Reihe von Insekten, darunter Heuschrecken und Grillen der Ordnung Orthoptera sowie Schaben (Ordnung Blattodea ). Auch einigen Säugetieren fehlt ein Y-Chromosom. Dazu gehören die Amami-Stachelratte ( Tokudaia osimensis ), die Tokunoshima-Stachelratte ( Tokudaia tokunoshimensis ) und die Spitzmausart Sorex araneus . Auch die Transkaukasische Maulwurfsmaus ( Ellobius lutescens ) weist eine Form der XO-Geschlechtsbestimmung auf, bei der beiden Geschlechtern ein zweites Geschlechtschromosom fehlt. [ 16 ] Der Mechanismus der Geschlechtsbestimmung ist noch nicht vollständig geklärt. [ 26 ]
Der Fadenwurm C. elegans ist männlich und besitzt ein Geschlechtschromosom (X0); mit einem Chromosomenpaar (XX) ist er ein Hermaphrodit. [ 27 ] Sein wichtigstes Geschlechtsgen ist XOL, das für XOL-1 kodiert und außerdem die Expression der Gene TRA-2 und HER-1 reguliert. Diese Gene reduzieren bzw. erhöhen die Aktivierung männlicher Gene. [ 28 ]
ZW/ZZ-Geschlechtschromosomen
Das ZW-Geschlechtsbestimmungssystem findet sich bei Vögeln, einigen Reptilien sowie einigen Insekten und anderen Organismen. Im Vergleich zum XY-System ist das ZW-System umgekehrt: Weibchen besitzen zwei verschiedene Chromosomentypen ( ZW), Männchen hingegen zwei gleiche Chromosomentypen (ZZ). Beim Huhn wurde festgestellt, dass dies von der Expression von DMRT1 abhängt. [ 29 ] Bei Vögeln befinden sich die Gene FET1 und ASW auf dem W-Chromosom der Weibchen, ähnlich wie das Y-Chromosom das Gen SRY enthält. [ 14 ] Allerdings ist nicht bei allen Arten das W-Chromosom für die Geschlechtsbestimmung verantwortlich. So gibt es beispielsweise Motten und Schmetterlinge mit ZW-Chromosomen, aber auch Weibchen mit ZO- oder ZZW-Chromosomen wurden beobachtet. [ 27 ] Während Säugetiere im weiblichen Stadium eines ihrer zusätzlichen X-Chromosomen deaktivieren, produzieren die Männchen der Schmetterlinge (Lepidoptera ) aufgrund ihrer zwei Z-Chromosomen offenbar die doppelte Menge an Enzymen. [ 27 ] Da die ZW-Geschlechtsbestimmung unterschiedlich gehandhabt wird, ist noch immer unklar, wie genau die meisten Arten ihr Geschlecht bestimmen. [ 27 ] Berichten zufolge nutzt der Seidenspinner Bombyx mori jedoch eine einzelne weibchenspezifische piRNA als primären Geschlechtsbestimmenden Faktor. [ 30 ] Trotz der Ähnlichkeiten zwischen dem ZW- und dem XY-System entwickelten sich diese Geschlechtschromosomen unabhängig voneinander. Beim Huhn ist das Z-Chromosom dem menschlichen Autosom 9 ähnlicher. [ 31 ] Das Z-Chromosom des Huhns scheint auch mit dem X-Chromosom des Schnabeltiers verwandt zu sein. [ 32 ] Bei der parthenogenetischen Fortpflanzung einer ZW-Art, wie beispielsweise des Komodowarans , entstehen in der Regel nur Männchen. Dies liegt daran, dass sich die Chromosomen der haploiden Eizellen verdoppeln, wodurch ZZ- oder WW-Eizellen entstehen. Die ZZ-Eizellen entwickeln sich zu Männchen, die WW-Eizellen sind jedoch nicht lebensfähig und werden nicht ausgetragen. [ 33 ]
Sowohl bei XY- als auch bei ZW-Geschlechtsbestimmungssystemen ist das Geschlechtschromosom, das die entscheidenden Faktoren trägt, oft deutlich kleiner und enthält kaum mehr als die Gene, die für die Auslösung der Entwicklung eines bestimmten Geschlechts notwendig sind. [ 34 ]
ZZ/Z0 Geschlechtschromosomen
Das ZZ/Z0-Geschlechtsbestimmungssystem findet sich bei einigen Motten. Diese Insekten besitzen ein Geschlechtschromosom, Z. Männchen haben zwei Z-Chromosomen, Weibchen hingegen nur eines. Männchen sind ZZ, Weibchen Z0. [ 35 ] [ 36 ] [ 37 ]
UV-Geschlechtschromosomen
Bei einigen Moos- und Algenarten verläuft das Gametophytenstadium des Lebenszyklus nicht zwittrig, sondern als getrennte männliche oder weibliche Individuen, die jeweils männliche und weibliche Gameten produzieren. Findet in der Sporophytengeneration die Meiose statt , werden die Geschlechtschromosomen U und V in Sporen verteilt, die entweder das U-Chromosom tragen und weibliche Gametophyten hervorbringen, oder das V-Chromosom und männliche Gametophyten. [ 38 ] [ 39 ]
Paarungstypen
Der Paarungstyp bei Mikroorganismen ist analog zum Geschlecht bei vielzelligen Organismen und wird mitunter mit diesen Begriffen beschrieben, obwohl er nicht unbedingt mit physischen Körperstrukturen korreliert. Einige Arten weisen mehr als zwei Paarungstypen auf. Tetrahymena, eine Wimpertierchenart , besitzt sieben Paarungstypen.
Paarungstypen werden bei Pilzen intensiv erforscht. Bei Pilzen wird der Paarungstyp durch chromosomale Regionen, sogenannte Paarungstyp-Loci , bestimmt . Es ist nicht so einfach wie „zwei verschiedene Paarungstypen können sich paaren“, sondern vielmehr eine Frage der Kombinatorik. Ein einfaches Beispiel: Die meisten Basidiomyceten besitzen ein Paarungssystem der „tetrapolaren Heterothallie “: Es gibt zwei Loci, und eine Paarung zwischen zwei Individuen ist möglich, wenn sich die Allele an beiden Loci unterscheiden. Sind beispielsweise drei Allele pro Locus vorhanden, ergeben sich neun Paarungstypen, von denen jeder mit vier anderen Paarungstypen interagieren kann. [ 40 ] Durch multiplikative Kombination entsteht so eine Vielzahl von Paarungstypen. Beispielsweise besitzt der Pilz Schizophyllum commune mehrere Paarungstypen.


Haplodiploidie
Haplodiploidie findet sich bei Insekten der Ordnung Hymenoptera , wie Ameisen und Bienen . Die Geschlechtsbestimmung wird durch die Zygosität eines komplementären Geschlechtsbestimmungs- Locus ( csd- Locus) gesteuert. Unbefruchtete Eier entwickeln sich zu haploiden Individuen, die eine einzelne, hemizygote Kopie des csd- Locus besitzen und somit Männchen sind. Befruchtete Eier entwickeln sich zu diploiden Individuen, die aufgrund der hohen Variabilität des csd- Locus in der Regel heterozygote Weibchen sind. In seltenen Fällen können diploide Individuen homozygot sein; diese entwickeln sich zu sterilen Männchen. Das als csd- Locus fungierende Gen wurde in der Honigbiene identifiziert , und es wurden mehrere Kandidatengene als csd- Locus für andere Hautflügler vorgeschlagen. [ 41 ] [ 42 ] [ 43 ] Die meisten Weibchen der Ordnung Hymenoptera können das Geschlecht ihrer Nachkommen bestimmen, indem sie empfangenes Sperma in ihrer Spermatheka speichern und es entweder in ihren Eileiter abgeben oder nicht. Dadurch können sie, abhängig vom Zustand des Bienenvolks, weitere Arbeiterinnen erzeugen. [ 44 ]
Polygenische Geschlechtsbestimmung
Bei der polygenen Geschlechtsbestimmung wird das Geschlecht primär durch Gene auf mehreren nicht- homologen Chromosomen bestimmt . Umwelteinflüsse können dabei gering sein. Beispiele hierfür sind afrikanische Buntbarsche ( Metriaclima spp. ), Lemminge ( Myopus schisticolor ), Grüne Schwertträger [ 21 ] , Medaka [ 21 ] usw. In solchen Systemen existiert typischerweise eine Dominanzhierarchie, in der ein System im Konfliktfall über ein anderes dominant ist. Beispielsweise ist bei einigen Buntbarscharten aus dem Malawisee der WZ-Locus dominant, wenn ein Individuum sowohl den XY-Locus (auf einem Chromosomenpaar) als auch den WZ-Locus (auf einem anderen Chromosomenpaar) besitzt. Das Individuum weist dann einen weiblichen Phänotyp auf. [ 45 ]
Das Geschlechtsbestimmungssystem des Zebrafisches ist polygen. Jungtiere (0–30 Tage nach dem Schlüpfen) besitzen sowohl eierstockähnliches als auch hodenartiges Gewebe. Sie entwickeln sich dann zu männlichen oder weiblichen Tieren, wobei die Geschlechtsbestimmung auf einem komplexen Zusammenspiel von Genen auf mehreren Chromosomen beruht, aber nicht durch Umwelteinflüsse beeinflusst wird. [ 46 ] [ 47 ]
Geschlechtsbestimmung durch nicht-kodierende RNA
In many insects, sex is determined by a long non-coding RNA (lncRNA), ANTSR (pronounced ant-ser) that was discovered in ants.[48] Ants that are heterozygous at the ANTSR locus become females, while homozygous (and hemizygous) embryos become males (in Hymenoptera, e.g. ants, bees, wasps, sawflies, females arise from fertilized, diploid eggs, while males develop from unfertilized, haploid eggs). The ANTSR system has been maintained for over 150 million years but still evolves rapidly and thus has lost sequence similarity among many species that use it.[49]
Other chromosomal systems
In systems with two sex chromosomes, they can be heteromorphic or homomorphic. Homomorphic sex chromosomes are almost identical in size and gene content. The two familiar kinds of sex chromosome pairs (XY and ZW) are heteromorphic. Homomorphic sex chromosomes exist among pufferfish, ratite birds, pythons, and European tree frogs. Some are quite old, meaning that there is some evolutionary force that resists their differentiation.[50] For example, three species of European tree frogs have homologous, homomorphic sex chromosomes, and this homomorphism was maintained for at least 5.4 million years by occasional recombination.[51]
The Nematocera, particularly the Simuliids and Chironomus, have sex determination regions that are labile, meaning that one species may have the sex determination region in one chromosome, but a closely related species might have the same region moved to a different non-homologous chromosome. Some species even have the sex determination region different among individuals withinthe same species (intraspecific variation).[52][53][54] In some species, some populations have homomorphic sex chromosomes while other populations have heteromorphic sex chromosomes.
The New Zealand frog, Leiopelma hochstetteri, uses a supernumerary sex chromosome. With zero of that chromosome, the frog develops into a male. With one or more, the frog develops into a female. One female had as many as 16 of that chromosome.[55]
Verschiedene Populationen des Japanischen Frosches (Rana rugosa) nutzen unterschiedliche Systeme der Geschlechtsbestimmung. Zwei Populationen verwenden homomorphe männliche Heterogametie, eine Population XX/XY und eine Population ZZ/ZW. Bemerkenswerterweise sind die X- und Z-Chromosomen homolog, ebenso wie die Y- und W-Chromosomen. Das Gen Dmrt1 liegt auf Autosom 1 und ist nicht geschlechtsgebunden. Dies bedeutet, dass ein XX-Weibchen genetisch einem ZZ-Männchen ähnelt und ein XY-Männchen einem ZW-Weibchen. Der zugrundeliegende Mechanismus ist noch unklar, es wird jedoch vermutet, dass der Übergang von XY zu ZW im Laufe der jüngeren Evolution zweimal stattfand. [ 56 ] [ 57 ]
Clarias gariepinus nutzt innerhalb der Art sowohl das XX/XY- als auch das ZW/ZZ-System, wobei einige Populationen das homomorphe XX/XY-System, andere hingegen das heteromorphe ZW/ZZ-System aufweisen. Eine Population in Thailand scheint beide Systeme gleichzeitig zu nutzen, möglicherweise weil C. gariepinus nicht in Thailand heimisch ist, sondern aus verschiedenen Ursprungspopulationen eingeführt wurde, was zu einer Vermischung führte. [ 58 ]
Mehrere Geschlechtschromosomen, wie sie beim Schnabeltier vorkommen, finden sich auch bei Knochenfischen. [ 59 ] Einige Motten und Schmetterlinge besitzen [ 60 ]


Der Südliche Platys besitzt ein komplexes Geschlechtsbestimmungssystem mit 3 Geschlechtschromosomen und 4 autosomalen Allelen. [ 61 ] [ 62 ]
Gastrotheca pseustes weist einen C-Banden- Heteromorphismus auf, was bedeutet, dass Männchen und Weibchen zwar XY-Chromosomen besitzen, sich ihre Y-Chromosomen jedoch in einem oder mehreren C-Bändern unterscheiden. Eleutherodactylus maussi besitzt einsolches System. [ 63 ] [ 64 ]


Geschlechtsbestimmung bei Pflanzen
Im Gegensatz zu den meisten Tieren sind die meisten Blütenpflanzen (Angiospermen) zwittrig: Einzelne Pflanzen bilden zwittrige (perfekte) Blüten, die sowohl Staubblätter als auch Fruchtblätter enthalten, oder sie sind einhäusig und tragen männliche und weibliche Blüten auf derselben Pflanze. [ 65 ] [ 66 ] Arten, bei denen männliche und weibliche Blüten auf verschiedenen Individuen vorkommen (Zweihäusigkeit), sind vergleichsweise selten und machen etwa 5–6 % der Angiospermenarten aus, obwohl zweihäusige Arten in etwa 43 % aller Pflanzenfamilien vertreten sind. [ 67 ]
Im Gegensatz zum einzigen, uralten Ursprung des XY-Systems, das die meisten Säugetiere teilen, ist die Zweihäusigkeit bei Pflanzen sehr oft unabhängig voneinander entstanden – Schätzungen zufolge zwischen etwa 870 und 5000 Mal – und viele dieser Übergänge sind evolutionär jung. [ 66 ] [ 67 ] Da sich getrennte Geschlechter wiederholt und oft erst vor kurzem entwickelt haben, gelten Pflanzen als besonders nützliche Modelle, um zu untersuchen, wie die genetische Geschlechtsbestimmung und die Geschlechtschromosomen aus kosexuellen Vorfahren entstehen. [ 66 ]
Evolution der getrennten Geschlechter
Eine zentrale Schlussfolgerung theoretischer Arbeiten ist, dass die Evolution getrennter Geschlechter aus einem kosexuellen Vorfahren mindestens zwei Mutationen erfordert und dass mindestens eine davon typischerweise einen Entwicklungs-Kompromiss beinhaltet, bei dem der Verlust einer Geschlechtsfunktion die andere verbessert. [ 66 ] [ 68 ] Populationsgenetische Modelle sagen außerdem voraus, dass sich Weibchen in einer Population in der Regel vor Männchen etablieren. [ 68 ]
Zwei grundlegende genetische Modelle werden häufig gegenübergestellt. Im Zwei-Gen-Modell (oder „Zwei-Faktor-Modell“), das historisch mit der Breitblättrigen Lichtnelke ( Silene latifolia ) in Verbindung gebracht wird, deaktiviert eine Mutation die männliche Funktion, wodurch weibliche (männlich-sterile) Pflanzen und zunächst eine gynodiözische Population entstehen. Eine zweite, separate Mutation unterdrückt die weibliche Funktion und führt so zur Bildung von Männchen. [ 68 ] [ 69 ] Da eine Rekombination zwischen diesen beiden Genen sterile oder zwittrige Nachkommen erzeugen würde, begünstigt die natürliche Selektion ihre enge Kopplung, und die Unterdrückung der Rekombination zwischen ihnen definiert ein entstehendes Y-Chromosom. [ 66 ] [ 69 ] Die klassische Deletionskartierung des Y-Chromosoms von Silene latifolia lieferte frühe Hinweise auf einen Y-chromosomalen, die weibliche Funktion unterdrückenden Faktor sowie auf separate Gene, die für die männliche Fertilität notwendig sind. [ 69 ]
Im Ein-Gen-Modell (oder „Ein-Faktor-Modell“) steuert ein einziger Hauptregulator das Geschlecht: Seine Anwesenheit lenkt die Entwicklung in Richtung eines Geschlechts, seine Abwesenheit führt zum „Standard“-Geschlecht. [ 66 ] Dieses Modell wurde durch die Entdeckung eines Ein-Gen-Systems in der Kaki bestätigt. [ 70 ] Die beiden Modelle unterscheiden sich in ihren Konsequenzen für die Rückkehr zur Kosexualität: Der Verlust des weibchenunterdrückenden Gens in einem Zwei-Gen-System führt leicht zur Regeneration von Hermaphroditen, während die Umkehrung eines Ein-Gen-Systems schwieriger ist, da das geschlechtsbestimmende Gen die entgegengesetzte Geschlechtsfunktion aktiv unterdrücken muss. [ 67 ]
Pflanzen-Geschlechtschromosomen
Viele zweihäusige Pflanzen haben erst vor kurzem Geschlechtschromosomen entwickelt, und ihre X- und Y-Chromosomen sind häufig homomorph – mikroskopisch nicht zu unterscheiden – mit nur einer kleinen, vollständig geschlechtsgebundenen Region. [ 66 ] In anderen Abstammungslinien, wie beispielsweise bei Silene latifolia oder Hanf ( Cannabis sativa ), sind die Geschlechtschromosomen stark heteromorph und ähneln den ursprünglichen Geschlechtschromosomen von Säugetieren und Vögeln, wobei eines der beiden Chromosomen repetitiv, genarm und teilweise heterochromatisch ist. [ 66 ] Männliche Heterogametie (ein XY-System) ist die häufigste Anordnung, aber weibliche Heterogametie (ein ZW-System) kommt in einigen Taxa vor, darunter die Walderdbeeren (Fragaria) und Pistazien. [ 66 ]
Sobald die Rekombination zwischen den Geschlechtschromosomen in der Region mit den geschlechtsbestimmenden Genen unterdrückt ist, akkumulieren sich in der nicht-rekombinierenden Y-chromosomalen (oder W-chromosomalen) Region transponierbare Elemente und andere repetitive Sequenzen. Es kann Heterochromatin entstehen, und es kommt zu genetischer Degeneration, da sich schädliche Mutationen anhäufen und funktionelle Gene verloren gehen oder zu Pseudogenen werden. [ 66 ] Regionen, in denen die Geschlechtschromosomen noch rekombinieren, werden als pseudoautosomale Regionen bezeichnet. Sukzessive Ereignisse, die die Rekombination zunehmend unterdrücken, können „evolutionäre Schichten“ mit unterschiedlicher Divergenz erzeugen. [ 66 ] Bei manchen Pflanzen liegen die geschlechtsbestimmenden Gene in großen, von Natur aus rekombinationsarmen perizentromerischen Regionen, sodass eine ausgedehnte nicht-rekombinierende Region auch ohne neu entstandene Unterdrückung der Rekombination entstehen kann. [ 66 ]
Eine besondere Situation ergibt sich bei Pflanzen mit einem dominanten haploiden (Gametophyten-)Stadium, wie beispielsweise vielen Moosen. Ihre Geschlechtschromosomen, U (weibchenbestimmend) und V (männchenbestimmend), rekombinieren nur im diploiden Sporophyten; daher ist zu erwarten, dass sich auf beiden repetitive Sequenzen ansammeln und sie degenerieren, wie es beim Lebermoos Marchantia polymorpha beobachtet wurde . [ 66 ] [ 71 ] [ 72 ]
Gene, die das Geschlecht bei Pflanzen bestimmen
Da sich die Zweihäusigkeit in vielen Abstammungslinien unabhängig voneinander entwickelt hat, unterscheiden sich die Gene, die der Geschlechtsbestimmung zugrunde liegen, zwischen den Arten; mehrere wurden inzwischen mithilfe von Genomsequenzierung und Genomeditierung identifiziert. [ 66 ]
Bei der diploiden Kaki ( Diospyros lotus ) wird das Geschlecht durch einen einzigen Y-chromosomalen Faktor, OGI , gesteuert , der eine Kopie des autosomalen Gens MeGI ist . OGI kodiert für eine kleine RNA, die MeGI unterdrückt ; da eine hohe MeGI-Aktivität die weibliche Entwicklung fördert, führt ihre Unterdrückung durch OGI zur Entstehung von Männchen, während Weibchen das Standardgeschlecht sind. [ 65 ] [ 70 ]
Kiwis ( Actinidia ) besitzen ein Zwei-Gen-System, bestehend aus Shy Girl ( SyGI ), einem Cytokinin-Reaktionsregulatorgen, das die weibliche (Karpell-)Entwicklung unterdrückt, und Friendly Boy ( FrBy ), das die männliche Funktion aufrechterhält und im Antherentapetum exprimiert wird. [ 73 ] [ 74 ] Beide Gene liegen in einer kleinen, männchenspezifischen Region des Y-Chromosoms. [ 74 ]
Beim Gartenspargel ( Asparagus officinalis ) wirken zwei eng gekoppelte, Y-chromosomal kodierte Gene zusammen: ein männchenförderndes Gen, das mit dem Tapetumregulator TDF1 von Arabidopsis verwandt ist, und SOFF (Suppressor Of Female Function), dessen Deletion zu Zwitterbildung führt. [ 65 ] [ 75 ] Die Deletion beider Gene ist erforderlich, um Männchen in Weibchen umzuwandeln, was mit dem Zwei-Gen-Modell übereinstimmt. [ 66 ]
Bei der Weinrebe ( Vitis ) trägt die geschlechtsbestimmende Region Kandidatengene für beide Funktionen: VviINP1, das mit männlicher Sterilität assoziiert ist, und den Transkriptionsfaktor VviYABBY3, der mit der weiblichen Funktion in Verbindung steht. [ 76 ] Man geht davon aus, dass die kultivierte, zwittrige Weinrebe durch ein seltenes Rekombinationsereignis innerhalb dieser Region während der Domestizierung aus ihrer zweihäusigen wilden Vorfahrin entstanden ist. [ 76 ]
Weitere identifizierte oder potenzielle Geschlechtsdeterminanten umfassen ein ARR17-ähnliches Genduplikat, das bei Pappeln (Populus) als männlich-determinierender Faktor wirkt, offenbar durch Unterdrückung der weiblichen Entwicklung, ähnlich wie bei der Kaki; [ 77 ] ein SHORT VEGETATIVE PHASE-ähnliches, weiblich-supprimierendes Kandidatengen auf dem hermaphroditenbestimmenden Yh-Chromosom der Papaya ( Carica papaya ); [ 66 ] [ 78 ] [ 79 ] und eine Insertionsregion, die die männliche Entwicklung in Spinat bestimmt. [ 80 ] Gemeinsames Merkmal dieser Systeme ist, dass die geschlechtsbestimmenden Gene häufig durch Genduplikation mit anschließendem Erwerb einer neuen Funktion (Neofunktionalisierung) entstanden sind. [ 65 ] [ 66 ]
Evolution
Eine Übersicht findet sich in [ 81 ] .
Ursprung der Geschlechtschromosomen
Geschlechtschromosomenpaare können aus einem autosomalen Paar entstehen, bei dem aus verschiedenen Gründen die Rekombination eingestellt wurde, was zu ihrer Divergenz führte. Die Rate, mit der die Rekombination unterdrückt wird, und damit die Rate der Geschlechtschromosomen-Divergenz, ist zwischen verschiedenen Kladen sehr unterschiedlich . [ 50 ]
In Analogie zu geologischen Schichten werden historische Ereignisse in der Evolution der Geschlechtschromosomen als evolutionäre Schichten bezeichnet. Das menschliche Y-Chromosom hat seit dem Ursprung der X- und Y-Chromosomen vor etwa 300 Millionen Jahren aus einem Paar Autosomen etwa fünf Schichten durchlaufen. Jede Schicht entstand durch die Inversion einer pseudoautosomalen Region (PAR) des Y-Chromosoms , wodurch eine Rekombination mit dem X-Chromosom verhindert wurde. Im Laufe der Zeit zerfällt jede invertierte Region, möglicherweise aufgrund des Müller-Effekts . [ 82 ] [ 83 ] Die Evolution des Y-Chromosoms bei Primaten verlief rasant, mit mehreren Inversionen und Verschiebungen der PAR-Grenze. [ 84 ]
Bei vielen Salamanderarten unterscheiden sich die beiden Chromosomen lediglich durch eine perizentrische Inversion , sodass das Bandenmuster des X-Chromosoms dem des Y-Chromosoms entspricht, jedoch eine Region nahe dem Zentromer invertiert ist (Abb. 7 [ 85 ] ). Bei manchen Arten ist das X-Chromosom perizentrisch invertiert und das Y-Chromosom ist das ursprüngliche. Bei anderen Arten ist es umgekehrt (S. 15 [ 85 ] ) .
Der Geninhalt des X-Chromosoms ist bei Plazentatieren nahezu identisch. Man vermutet, dass dies daran liegt, dass die Inaktivierung des X-Chromosoms bedeutet, dass jede Veränderung schwerwiegende Störungen zur Folge hätte und es somit einer starken reinigenden Selektion unterliegt. Auch Vögel besitzen hochkonservierte Z-Chromosomen. [ 57 ]
Neo-Geschlechtschromosomen
Neo-Geschlechtschromosomen sind bereits existierende Geschlechtschromosomen, die durch die Fusion eines Autosomenpaares mit dem zuvor vorhandenen Geschlechtschromosomenpaar entstanden sind. Nach dieser Fusion unterliegt der autosomale Abschnitt einer Rekombinationsunterdrückung, wodurch er sich differenzieren kann. Derartige Systeme wurden bei Insekten, Reptilien, Vögeln und Säugetieren beobachtet. Sie sind nützlich für die Erforschung der Evolution der Y-Chromosomen-Degeneration und der Dosiskompensation. [ 86 ] [ 87 ]
Geschlechtschromosomen-Turnover
Der Geschlechtschromosomenwechsel ist ein evolutionäres Phänomen, bei dem Geschlechtschromosomen verschwinden oder zu Autosomen werden und Autosomen zu Geschlechtschromosomen werden – ein Vorgang, der sich im Laufe der Evolution wiederholt. Manche Abstammungslinien weisen einen ausgeprägten Wechsel auf, andere nicht. Im Allgemeinen ist in einem XY-System ein Wechsel unwahrscheinlich, wenn das Y-Chromosom degeneriert ist, sich weitgehend vom X-Chromosom unterscheidet und eine X- Dosierungskompensation vorliegt . Dies trifft insbesondere auf den Menschen zu. [ 88 ] [ 81 ] [ 89 ]
Die ZW- und XY-Systeme können sich aufgrund von sexuellen Konflikten ineinander entwickeln . [ 90 ]
Homomorphismus und der Jungbrunnen
Es ist ein evolutionäres Rätsel, warum bestimmte Geschlechtschromosomen über Millionen von Jahren homomorph bleiben, insbesondere bei Fischen, Amphibien und nicht-vogelartigen Reptilien. Das Jungbrunnen-Modell besagt, dass Heteromorphie auf der Unterdrückung der Rekombination beruht, und diese Unterdrückung wiederum auf dem männlichen Phänotyp, nicht auf den Geschlechtschromosomen selbst. Wenn also einige XY-Weibchen unter bestimmten Umständen fruchtbar und anpassungsfähig sind, würden sich die X- und Y-Chromosomen in diesen Individuen rekombinieren, wodurch der Abbau des Y-Chromosoms verhindert und der langfristige Homomorphismus erhalten bliebe. [ 91 ]
Geschlechtsumkehr bezeichnet eine Situation, in der das phänotypische Geschlecht vom genotypischen Geschlecht abweicht. Während Geschlechtsumkehr beim Menschen (wie beispielsweise beim XX-Mann-Syndrom ) häufig zu Unfruchtbarkeit führt, sind geschlechtsumgekehrte Individuen mancher Arten unter bestimmten Bedingungen fruchtbar. So entwickelten sich beispielsweise einige XY-Individuen in einer Population von Königslachsen im Columbia River zu fruchtbaren Weibchen und zeugten YY-Söhne. Da Königslachse homomorphe Geschlechtschromosomen besitzen, sind diese YY-Söhne gesund. Wenn sich YY-Männchen mit XX-Weibchen paaren, wären alle ihre Nachkommen unter normalen Bedingungen XY-Männchen. [ 92 ]
Unterstützung für diese Hypothese findet sich beim Grasfrosch , bei dem sowohl XX- als auch XY-Männchen die Geschlechtschromosomen-Rekombination unterdrücken, während XX- und XY-Weibchen mit der gleichen Rate rekombinieren. [ 93 ]
Umweltsysteme
Temperaturabhängig

Es existieren viele weitere Systeme der Geschlechtsbestimmung. Bei einigen Reptilienarten, darunter Alligatoren , einige Schildkröten und die Brückenechse , wird das Geschlecht durch die Temperatur während der Inkubation des Eis in einer temperaturempfindlichen Phase bestimmt. Bei Vögeln gibt es keine Beispiele für temperaturabhängige Geschlechtsbestimmung (TSD). Man ging früher davon aus, dass Großfußhühner dieses Phänomen aufweisen, fand aber heraus, dass sie tatsächlich unterschiedliche temperaturabhängige Embryonensterblichkeitsraten für jedes Geschlecht haben. [ 94 ] Bei einigen Arten mit TSD wird das Geschlecht durch die Einwirkung höherer Temperaturen bestimmt, die zur Entwicklung von Nachkommen eines Geschlechts führen, und durch die Einwirkung niedrigerer Temperaturen, die zur Entwicklung des anderen Geschlechts führen. Dieser Typ der TSD wird als Muster I bezeichnet . Bei anderen Arten mit TSD führt die Einwirkung von Temperaturen an beiden Extremen zur Entwicklung von Nachkommen eines Geschlechts und die Einwirkung moderater Temperaturen zur Entwicklung von Nachkommen des anderen Geschlechts, was als Muster II der TSD bezeichnet wird. Die spezifischen Temperaturen, die zur Entwicklung jedes Geschlechts erforderlich sind, werden als weibchenfördernde und männchenfördernde Temperatur bezeichnet. [ 95 ] Bleibt die Temperatur während der temperatursensitiven Phase nahe dem Schwellenwert, ändert sich das Geschlechterverhältnis . [ 96 ] Bei manchen Arten basiert die Temperaturabhängigkeit der Geschlechtsbestimmung auf dem Zeitpunkt der Bildung eines bestimmten Enzyms. Diese Arten, deren Geschlechtsbestimmung von der Temperatur abhängt, besitzen nicht das SRY-Gen , sondern andere Gene wie DAX1 , DMRT1 und SOX9 , deren Expression von der Temperatur abhängt. [ 95 ] Das Geschlecht einiger Arten, wie beispielsweise des Nilbuntbarsches , der australischen Skinkart und der australischen Drachenechse , weist eine anfängliche, durch die Chromosomen festgelegte Prägung auf, die jedoch später durch die Inkubationstemperatur verändert werden kann. [ 21 ]
Es ist unbekannt, wie genau die temperaturabhängige Geschlechtsbestimmung entstanden ist. [ 97 ] Möglicherweise entwickelte sie sich dadurch, dass bestimmte Geschlechter besser an bestimmte Gebiete mit entsprechenden Temperaturvorgaben angepasst waren. Beispielsweise könnte ein wärmeres Gebiet besser zum Nisten geeignet sein, sodass mehr Weibchen produziert werden, um die Anzahl der Nistpartner in der nächsten Saison zu erhöhen. [ 97 ] Bei Amnioten ging die umweltbedingte Geschlechtsbestimmung den genetisch determinierten Systemen von Vögeln und Säugetieren voraus; man geht davon aus, dass ein temperaturabhängiger Amniote der gemeinsame Vorfahre der Amnioten mit Geschlechtschromosomen war . [ 98 ]
Andere Umweltsysteme
Es gibt weitere umweltbedingte Geschlechtsbestimmungssysteme , darunter ortsabhängige, wie sie beispielsweise beim Meereswurm Bonellia viridis vorkommen : Larven entwickeln sich zu Männchen, wenn sie physischen Kontakt mit einem Weibchen haben, und zu Weibchen, wenn sie auf dem nackten Meeresboden landen. Ausgelöst wird dies durch die Anwesenheit des von den Weibchen produzierten Botenstoffs Bonellin . [ 99 ] Einige Arten, wie etwa bestimmte Schneckenarten , vollziehen einen Geschlechtswechsel : Ausgewachsene Tiere sind zunächst männlich und werden dann weiblich. Bei tropischen Clownfischen wird das dominante Individuum einer Gruppe weiblich, während die anderen männlich bleiben. Bei Blaukopflippfischen ( Thalassoma bifasciatum ) ist es umgekehrt.

Clownfische leben in Kolonien, die aus mehreren kleinen, undifferenzierten Fischen und zwei großen Fischen (Männchen und Weibchen) bestehen. Nur die Männchen und Weibchen sind geschlechtsreif und können sich fortpflanzen. Clownfische sind protandrische Hermaphroditen, das heißt, nachdem sie die Geschlechtsreife als Männchen erreicht haben, können sie sich schließlich in Weibchen verwandeln. Sie entwickeln sich undifferenziert, bis sie eine bestimmte Rolle in ihrem Lebensraum übernehmen müssen, d. h., wenn sie die entsprechenden sozialen und umweltbedingten Signale erhalten. [ 100 ]
Einige Arten besitzen jedoch kein Geschlechtsbestimmungssystem. Zu den Zwitterarten zählen der gemeine Regenwurm und bestimmte Schneckenarten. Einige Fisch-, Reptilien- und Insektenarten pflanzen sich durch Parthenogenese fort und sind ausschließlich weiblich. Es gibt einige Reptilien, wie die Boa Constrictor und den Komodowaran , die sich je nach Verfügbarkeit eines Partners sowohl sexuell als auch asexuell fortpflanzen können. [ 101 ]
Andere
Es gibt außergewöhnliche Geschlechtsbestimmungssysteme, die weder genetisch noch umweltbedingt sind.
Zytoplasmatische Geschlechtsbestimmung
Die Gattung Wolbachia parasitärer Bakterien lebt im Zytoplasma ihres Wirtes und wird vertikal von den Eltern an die Nachkommen vererbt. Sie infizieren vorwiegend Arthropoden und Nematoden. Verschiedene Wolbachia-Arten können die Fortpflanzungsfähigkeit ihres Wirtes auf vielfältige Weise verändern, unter anderem durch zytoplasmatische Inkompatibilität, Parthenogenese, Feminisierung und Abtötung männlicher Embryonen. [ 102 ]
Mitochondriale männliche Sterilität : Bei vielen Blütenpflanzen können die Mitochondrien dazu führen, dass zwittrige Individuen keine Nachkommen zeugen können und somit ausschließlich weiblich sind. Dies ist eine Form des „ Mutterfluchs“ . Es handelt sich um eine evolutionär angepasste Strategie der Mitochondrien, da diese ausschließlich von der Mutter an die Nachkommen vererbt werden. [ 103 ] Der erste publizierte Fall von mitochondrialer männlicher Sterilität bei Metazoen wurde 2022 bei der zwittrigen Schnecke Physa acuta beschrieben. [ 104 ]
Eliminierung des väterlichen Genoms
Bei einigen Insektenarten, Springschwänzen und Milben verlieren männliche Nachkommen während der Entwicklung oder in der Keimbahn ihr väterliches Genom (ganz oder teilweise). Je nach Eliminationsmechanismus können die Männchen diploid, diploid mit fehlendem Geschlechtschromosom, funktionell haploid oder tatsächlich haploid sein. [ 105 ] [ 103 ]
Monogenie
Bei einigen Hautflüglerarten ( Ameisen, Bienen und Wespen), Fliegen und Krebstieren sind alle Nachkommen eines bestimmten Weibchens entweder ausschließlich männlich oder ausschließlich weiblich. [ 103 ] Die zugrunde liegenden Mechanismen sind vielfältig und umfassen die mütterlich kontrollierte Eliminierung des väterlichen Genoms sowie nach den Mendelschen Regeln vererbte mütterliche Geschlechtsbestimmungsfaktoren. [ 106 ]
Evolution
Systeme zur Geschlechtsbestimmung könnten sich aus dem Paarungstyp entwickelt haben , der ein Merkmal von Mikroorganismen ist .
Die chromosomale Geschlechtsbestimmung könnte sich früh in der Geschichte der Eukaryoten entwickelt haben. [ 107 ] Bei Pflanzen wird jedoch angenommen, dass sie sich erst kürzlich entwickelt hat. [ 108 ]
Die allgemein anerkannte Hypothese zur Evolution der XY- und ZW-Geschlechtschromosomen bei Amnioten besagt, dass sie sich gleichzeitig in zwei verschiedenen Zweigen entwickelt haben. [ 109 ] [ 110 ]
Es gibt keine gemeinsamen Gene zwischen dem ZW-Chromosom der Vögel und den XY-Chromosomen der Säugetiere [ 31 ]. Das Z-Chromosom des Huhns ähnelt eher dem menschlichen Autosomenchromosom 9 als dem X- oder Y-Chromosom. Dies deutet nicht darauf hin, dass die Geschlechtsbestimmungssysteme von ZW und XY einen gemeinsamen Ursprung haben, sondern dass die Geschlechtschromosomen von Autosomen des gemeinsamen Vorfahren von Vögeln und Säugetieren abstammen. Beim Schnabeltier , einem Kloakentier , weist das X1 - Chromosom Homologie zu Höheren Säugetieren auf, während das X5- Chromosom ein Gen für die Geschlechtsbestimmung von Vögeln enthält, was einen weiteren Hinweis auf eine evolutionäre Verbindung liefert. [ 111 ]
Es gibt jedoch Hinweise darauf, dass Übergänge zwischen ZW- und XY-Chromosomen stattgefunden haben könnten, beispielsweise bei Xiphophorus maculatus , wo trotz unterschiedlicher Genlokalisationen beider Systeme in derselben Population sowohl ZW- als auch XY-Chromosomen vorkommen. [ 112 ] [ 113 ] Ein neueres theoretisches Modell legt sowohl Übergänge zwischen dem XY/XX- und dem ZZ/ZW-System als auch eine umweltbedingte Geschlechtsbestimmung nahe. [ 114 ] Die Gene des Schnabeltiers stützen ebenfalls die mögliche evolutionäre Verbindung zwischen XY und ZW, da es das bei Vögeln vorkommende DMRT1- Gen auf seinem X-Chromosom trägt. [ 115 ] Ungeachtet dessen folgen XY und ZW einem ähnlichen Entwicklungsweg. Alle Geschlechtschromosomen entstanden ursprünglich als Autosom eines Amnioten, dessen Geschlechtsbestimmung der Nachkommen auf der Temperatur beruhte. Nach der Trennung der Säugetiere spaltete sich der Reptilienzweig weiter in Lepidosauria und Archosauromorpha auf . Diese beiden Gruppen entwickelten das ZW-System unabhängig voneinander, was durch die unterschiedlichen Positionen der Geschlechtschromosomen belegt wird. [ 110 ] Bei Säugetieren mutierte eines der beiden Autosomen, das heutige Y-Chromosom, sein SOX3- Gen zum SRY- Gen, wodurch dieses Chromosom die Geschlechtsbestimmung übernahm. [ 110 ] [ 115 ] [ 116 ] Nach dieser Mutation invertierte das SRY-haltige Chromosom und war nicht mehr vollständig homolog zu seinem Partner. Die Bereiche der X- und Y-Chromosomen , die weiterhin homolog sind, werden als pseudoautosomale Region bezeichnet . [ 117 ] Nach der Invertierung war das Y-Chromosom nicht mehr in der Lage, schädliche Mutationen zu korrigieren, und degenerierte daher . [ 110 ] Es besteht die Befürchtung, dass das Y-Chromosom in zehn Millionen Jahren weiter schrumpfen und seine Funktion einstellen könnte; allerdings ist das Y-Chromosom nach seinem anfänglichen raschen Genverlust streng konserviert geblieben. [ 118 ] [ 119 ]
Es gibt einige Wirbeltierarten, wie beispielsweise den Medaka- Fisch, bei denen sich die Geschlechtschromosomen unabhängig voneinander entwickelt haben; ihr Y-Chromosom invertiert sich nie und kann weiterhin Gene mit dem X-Chromosom austauschen. Die Geschlechtschromosomen dieser Arten sind relativ primitiv und unspezialisiert. Da das Y-Chromosom keine männchenspezifischen Gene trägt und mit dem X-Chromosom interagieren kann, können sowohl XY- und YY-Weibchen als auch XX-Männchen entstehen. [ 21 ] Nicht-invertierte Y-Chromosomen mit langer Entwicklungsgeschichte finden sich bei Pythons und Emus ; jedes dieser Systeme ist mehr als 120 Millionen Jahre alt, was darauf hindeutet, dass Inversionen nicht zwangsläufig auftreten. [ 103 ] Die XO-Geschlechtsbestimmung kann sich innerhalb von etwa 2 Millionen Jahren aus der XY-Geschlechtsbestimmung entwickeln. [ 120 ]
Siehe auch
- Hodenbestimmender Faktor
- Mütterlicher Einfluss auf die Geschlechtsbestimmung
- Sequenzieller Hermaphroditismus
- Geschlechtsbestimmung und -differenzierung (Mensch)
Referenzen
- ^ Schnebly, Risa Aria (2021). „Geschlechtsbestimmung beim Menschen“ . The Embryo Project Encyclopedia . Abgerufen am 6. Juli 2022 .
- ^ Rosenfield KA (2018). „Hermaphrodit“. In: Vonk J, Shackelford T (Hrsg.). Encyclopedia of Animal Cognition and Behavior . Cham: Springer International Publishing. S. 1–2 . doi : 10.1007/978-3-319-47829-6_329-1 . ISBN 978-3-319-47829-6Die
- ^ Minelli A , Fusco G (2019). Die Biologie der Fortpflanzung . Cambridge University Press. S. 116–117 . ISBN 978-1-108-49985-9Archiviert vom Original am 11. Oktober 2020. Abgerufen am 11. Oktober 2020 .
- ^ „Rudolph Jacob Camerarius | Pflanzenphysiologie, Taxonomie & Genetik | Britannica“ . www.britannica.com . Abgerufen am 15. Juli 2025 .
- ^ „Deutsches Textarchiv – Mendel, Gregor: Versuche über Pflanzen-Hybriden. In: Verhandlungen des Naturforschenden Vereines in Brünn 4 (1866), S. 3-47“ . www.deutschestextarchiv.de . Abgerufen am 15. Juli 2025 .
- ^ MCCLUNG, CE (Mai 1902). „Das akzessorische Chromosom – ein Geschlechtsdeterminant?“. The Biological Bulletin . 3 ( 1–2 ): 43–84 . Bibcode : 1902BiolB...3...43M . doi : 10.2307/1535527 . ISSN 0006-3185 . JSTOR 1535527 .
- ^ Stevens, Nettie Maria (1905). Studien zur Spermatogenese . Washington, DC: Carnegie Institution of Washington. doi : 10.5962/bhl.title.56517 .
- ^ Ogilvie, Marilyn Bailey (Februar 2000). Stevens, Nettie Maria (1861–1912), Zytologin . American National Biography Online. Oxford University Press. doi : 10.1093/anb/9780198606697.article.1302015 .
- ^ The American Naturalist . 51 (605). Mai 1917. doi : 10.1086/an.1917.51.issue-605 . ISSN 0003-0147 .
{{cite journal}}Fehlend oder leer|title=( Hilfe ) - ^ Bridges, Calvin B. (Januar 1922). „Der Ursprung von Variationen in sexuellen und geschlechtsspezifischen Merkmalen“. The American Naturalist . 56 (642): 51–63 . Bibcode : 1922ANat...56...51B . doi : 10.1086/279847 . ISSN 0003-0147 .
- ^ Buchner, Paul (1928), „Ergebnisse der Symbioseforschung“, Ergebnisse der Biologie , Berlin, Heidelberg: Springer Berlin Heidelberg, S. 1–129 , doi : 10.1007/978-3-642-91066-1_1 , ISBN 978-3-642-89210-3
{{citation}}:ISBN-/Datumsinkompatibilität ( Hilfe ) - ^ Ashman, Tia-Lynn; Bachtrog, Doris; Blackmon, Heath; Goldberg, Emma E.; Hahn, Matthew W.; Kirkpatrick, Mark; Kitano, Jun; Mank, Judith E.; Mayrose, Itay; Ming, Ray; Otto, Sarah P.; Peichel, Catherine L.; Pennell, Matthew W.; Perrin, Nicolas; Ross, Laura; Valenzuela, Nicole; Vamosi, Jana C. (24. Juni 2014). „ Tree of Sex: Eine Datenbank sexueller Systeme“ . Scientific Data . 1 140015. doi : 10.1038/sdata.2014.15 . ISSN 2052-4463 . PMC 4322564. PMID 25977773 .
- Hayashi , Shun; Abe, Takuya; Igawa, Takeshi; Katsura, Yukako; Kazama, Yusuke; Nozawa, Masafumi (31. Juli 2024). „Der Geschlechtschromosomenzyklus als Mechanismus der stabilen Geschlechtsbestimmung“ . The Journal of Biochemistry . 176 (2): 81–95 . doi : 10.1093/jb / mvae045 . ISSN 0021-924X . PMC 11289310. PMID 38982631 .
- ^ a b c d e Hake L (2008). „Genetische Mechanismen der Geschlechtsbestimmung“ . Nature Education . 1 (1). Archiviert vom Original am 19. August 2017. Abgerufen am 8. Dezember 2011 .
- ^ Goodfellow PN, Camerino G (Juni 1999). „ DAX-1, ein ‚Antitestis‘-Gen“ . Cellular and Molecular Life Sciences . 55 ( 6–7 ): 857–863 . doi : 10.1007/PL00013201 . PMC 11147076. PMID 10412368. S2CID 19764423 .
- ^ a b Chandra, HS (25. April 1999). „Eine andere Sichtweise auf das Rätsel der Geschlechtsbestimmung bei Ellobius lutescens“. Current Science . 76 (8): 1072.
- ^ Cox JJ, Willatt L, Homfray T, Woods CG (Januar 2011). „Eine SOX9-Duplikation und familiäre 46,XX-Entwicklungsstörung der Hoden“ . The New England Journal of Medicine . 364 (1): 91–93 . doi : 10.1056/NEJMc1010311 . PMID 21208124 .
- ^ Huang B, Wang S, Ning Y, Lamb AN, Bartley J (Dezember 1999). „Autosomale XX-Geschlechtsumkehr durch Duplikation von SOX9“. American Journal of Medical Genetics . 87 (4): 349–353 . doi : 10.1002/(SICI)1096-8628(19991203)87:4<349::AID-AJMG13>3.0.CO;2-N . PMID 10588843 .
- ^ Uhlenhaut NH, Jakob S, Anlag K, Eisenberger T, Sekido R, Kress J, et al. (Dezember 2009). „Somatische Geschlechtsumwandlung adulter Ovarien zu Hoden durch FOXL2-Ablation“ . Cell . 139 (6): 1130–1142 . Bibcode : 2009Cell..139.1130U . doi : 10.1016/j.cell.2009.11.021 . PMID 20005806 .
- ^ Penalva LO, Sánchez L (September 2003). „RNA-bindendes Protein Sex-Lethal (Sxl) und Kontrolle der Geschlechtsbestimmung und Dosiskompensation bei Drosophila“ . Microbiology and Molecular Biology Reviews . 67 (3): 343–59 , Inhaltsverzeichnis. Bibcode : 2003MMBR...67..343P . doi : 10.1128/MMBR.67.3.343-359.2003 . PMC 193869. PMID 12966139 .
- ^ a b c d e Schartl M (Juli 2004). „ Eine vergleichende Betrachtung der Geschlechtsbestimmung beim Medaka“ . Mechanisms of Development . 121 ( 7–8 ): 639–645 . doi : 10.1016/j.mod.2004.03.001 . PMID 15210173. S2CID 17401686 .
- ^ Gruetzner, Frank; Ashley, Terry; Rowell, David M.; Marshall Graves, Jennifer A. (1. April 2006). „Wie kam das Schnabeltier zu seiner Geschlechtschromosomenkette? Ein Vergleich meiotischer Vielfacher und Geschlechtschromosomen bei Pflanzen und Tieren“. Chromosoma . 115 (2): 75–88 . doi : 10.1007/s00412-005-0034-4 . ISSN 1432-0886 . PMID 16344965 .
- Grützner, Frank; Rens, Willem; Tsend-Ayush, Enkhjargal; El-Mogharbel, Nisrine; O'Brien, Patricia CM; Jones, Russell C.; Ferguson-Smith, Malcolm A.; Marshall Graves, Jennifer A. (Dezember 2004). „ Beim Schnabeltier teilt eine meiotische Kette von zehn Geschlechtschromosomen Gene mit dem Z-Chromosom der Vögel und dem X-Chromosom der Säugetiere . “ Nature . 432 (7019): 913–917 . Bibcode : 2004Natur.432..913G . doi : 10.1038/nature03021 . ISSN 1476-4687 . PMID 15502814 .
- ^ Warren WC, Hillier LW, Marshall Graves JA, Birney E, Ponting CP, Grützner F, et al. (Mai 2008). „ Genomanalyse des Schnabeltiers enthüllt einzigartige Spuren der Evolution“ . Nature . 453 (7192): 175–183 . Bibcode : 2008Natur.453..175W . doi : 10.1038/nature06936 . PMC 2803040. PMID 18464734 .
- ^ Gruetzner F, Ashley T, Rowell DM, Marshall Graves JA (April 2006). „Wie kam das Schnabeltier zu seiner Geschlechtschromosomenkette? Ein Vergleich meiotischer Vielfacher und Geschlechtschromosomen bei Pflanzen und Tieren“. Chromosoma . 115 ( 2): 75–88 . doi : 10.1007/s00412-005-0034-4 . PMID 16344965. S2CID 23603889 .
- Kuroiwa A, Handa S, Nishiyama C, Chiba E, Yamada F, Abe S, Matsuda Y (Juli 2011). „Zusätzliche Kopien von CBX2 im Genom von Männchen der Säugetiere Amami (Tokudaia osimensis) und Tokunoshima (Tokudaia tokunoshimensis), denen das SRY-Gen fehlt“. Chromosome Research . 19 (5): 635–644 . doi : 10.1007/s10577-011-9223-6 . PMID 21656076. S2CID 23311263 .
- ^ a b c d Majerus ME (2003). Sex wars: genes, bacteria, and biased sex ratios . Princeton University Press. S. 250. ISBN 978-0-691-00981-0Abgerufen am 4. November 2011 .
- ^ Kuwabara PE, Okkema PG, Kimble J (April 1992). „tra-2 kodiert für ein Membranprotein und kann die Zellkommunikation im Geschlechtsbestimmungsweg von Caenorhabditis elegans vermitteln . “ Molekularbiologie der Zelle . 3 (4): 461–473 . doi : 10.1091/mbc.3.4.461 . PMC 275596 . PMID 1498366 .
- ^ Smith CA, Roeszler KN, Ohnesorg T, Cummins DM, Farlie PG, Doran TJ, Sinclair AH (September 2009). „Das aviäre Z-chromosomale Gen DMRT1 ist für die männliche Geschlechtsbestimmung beim Huhn erforderlich“. Nature . 461 ( 7261): 267–271 . Bibcode : 2009Natur.461..267S . doi : 10.1038/nature08298 . PMID 19710650. S2CID 4413389 .
- ^ Kiuchi T, Koga H, Kawamoto M, Shoji K, Sakai H, Arai Y, et al. (Mai 2014). „Eine einzelne weibchenspezifische piRNA ist der primäre Geschlechtsbestimmende Faktor beim Seidenspinner“. Nature . 509 ( 7502): 633–636 . Bibcode : 2014Natur.509..633K . doi : 10.1038/nature13315 . PMID 24828047. S2CID 205238635 .
- ^ a b Stiglec R, Ezaz T, Graves JA (2007). „Ein neuer Blick auf die Evolution der Geschlechtschromosomen von Vögeln“. Cytogenetic and Genome Research . 117 ( 1–4 ): 103–109 . doi : 10.1159/000103170 . PMID 17675850. S2CID 12932564 .
- ^ Grützner F, Rens W, Tsend-Ayush E, El-Mogharbel N, O'Brien PC, Jones RC, et al. (Dezember 2004). „Beim Schnabeltier teilt eine meiotische Kette von zehn Geschlechtschromosomen Gene mit dem Z-Chromosom der Vögel und dem X-Chromosom der Säugetiere“. Nature . 432 ( 7019): 913–917 . Bibcode : 2004Natur.432..913G . doi : 10.1038/nature03021 . PMID 15502814. S2CID 4379897 .
- ^ „Jungfrauengeburten bei Riesenechsen“ . BBC News . 20. Dezember 2006. Archiviert vom Original am 4. November 2014. Abgerufen am 13. März 2008 .
- ^ „Evolution des Y-Chromosoms“ . Annenberg Media . Archiviert vom Original am 4. November 2004. Abgerufen am 1. April 2008 .
- ^ Traut W, Sahara K, Marec F (2007). „Geschlechtschromosomen und Geschlechtsbestimmung bei Lepidoptera“. Sexual Development . 1 (6): 332–346 . doi : 10.1159/000111765 . PMID 18391545. S2CID 6885122 .
- ^ „Genetische Mechanismen der Geschlechtsbestimmung – Wissenschaft lernen mit Scitable“ . www.nature.com . Archiviert vom Original am 19. August 2017. Abgerufen am 8. Dezember 2011 .
- ↑ Handbuch Der Zoologie / Handbook of Zoology . Walter de Gruyter. 1925. ISBN 978-3-11-016210-3– via Google Books.
{{cite book}}:ISBN-/Datumsinkompatibilität ( Hilfe ) - ^ Bachtrog D, Kirkpatrick M, Mank JE, McDaniel SF, Pires JC, Rice W, Valenzuela N (September 2011). „Sind alle Geschlechtschromosomen gleich?“. Trends in Genetics . 27 (9): 350–357 . doi : 10.1016/j.tig.2011.05.005 . PMID 21962970 .
- Renner , SS; Heinrichs, J.; Sousa, A. (2017). „Die Geschlechtschromosomen der Bryophyten: Neuere Erkenntnisse, offene Fragen und erneute Untersuchungen von Frullania dilatata und Plagiochila asplenioides“ . Journal of Systematics and Evolution . 55 (4): 333–339 . Bibcode : 2017JSyEv..55..333R . doi : 10.1111/jse.12266 .
- ^ Idnurm, Alexander; Hood, Michael E.; Johannesson, Hanna; Giraud, Tatiana (1. Dezember 2015). „Kontrastierende Muster in Paarungstyp-Chromosomen bei Pilzen: Hotspots versus Coldspots der Rekombination“ . Fungal Biology Reviews . Sonderausgabe: Pilzsex und Pilze – Ein Dank an Lorna Casselton. 29 (3): 220–229 . Bibcode : 2015FunBR..29..220I . doi : 10.1016 / j.fbr.2015.06.001 . ISSN 1749-4613 . PMC 4680991. PMID 26688691 .
- ^ Beye M, Hasselmann M, Fondrk MK, Page RE, Omholt SW (August 2003). „Das Gen csd ist das primäre Signal für die sexuelle Entwicklung der Honigbiene und kodiert ein SR-Typ-Protein“ . Cell . 114 (4): 419–429 . doi : 10.1016/S0092-8674(03)00606-8 . PMID 12941271 .
- ^ Privman E, Wurm Y, Keller L (Mai 2013). „Duplikation und konzertierte Evolution eines Master-Geschlechtsdeterminanten unter balancierender Selektion“ . Proceedings Biological Sciences . 280 (1758) 20122968. doi : 10.1098/rspb.2012.2968 . PMC 3619454. PMID 23466984 .
- ^ Miyakawa MO, Tsuchida K, Miyakawa H (März 2018). „Das Doublesex-Gen integriert komplementäre Signale der Geschlechtsbestimmung an mehreren Loci in der Japanischen Ameise Vollenhovia emeryi“. Insect Biochemistry and Molecular Biology . 94 : 42–49 . Bibcode : 2018IBMB...94...42M . doi : 10.1016/j.ibmb.2018.01.006 . PMID 29408414 .
- ^ van Wilgenburg E, Driessen G, Beukeboom LW (Januar 2006). „Komplementäre Geschlechtsbestimmung an einem einzigen Locus bei Hautflüglern: ein „unintelligentes“ Design?“ . Frontiers in Zoology . 3 (1) 1. doi : 10.1186/1742-9994-3-1 . PMC 1360072. PMID 16393347 .
- ^ Moore, Emily C.; Roberts, Reade B. (Juni 2013). „Polygenetische Geschlechtsbestimmung“ . Current Biology . 23 (12): R510– R512. Bibcode : 2013CBio...23.R510M . doi : 10.1016/j.cub.2013.04.004 . PMID 23787041 .
- ^ Liew, Woei Chang; Bartfai, Richard; Lim, Zijie; Sreenivasan, Rajini; Siegfried, Kellee R.; Orban, Laszlo (10. April 2012). Alsina, Berta (Hrsg.). „Polygenes Geschlechtsbestimmungssystem bei Zebrafischen“ . PLUS EINS . 7 (4) e34397. Bibcode : 2012PLoSO...734397L . doi : 10.1371/journal.pone.0034397 . ISSN 1932-6203 . PMC 3323597 . PMID 22506019 .
- ^ Liew, Woei Chang; Orbán, László (März 2014). „Zebrafisch-Sex: eine komplizierte Angelegenheit“ . Briefings in Functional Genomics . 13 (2): 172–187 . doi : 10.1093/bfgp / elt041 . ISSN 2041-2649 . PMC 3954038. PMID 24148942 .
- ^ Pan, Qiaowei; Darras, Hugo; Keller, Laurent (31. Mai 2024). „Das LncRNA-Gen ANTSR koordiniert die komplementäre Geschlechtsbestimmung bei der Argentinischen Ameise“ . Science Advances . 10 (22) eadp1532. Bibcode : 2024SciA...10P1532P . doi : 10.1126/ sciadv.adp1532 . ISSN 2375-2548 . PMC 11141628. PMID 38820161 .
- ^ Yu, Chuanxin; Hodapp, Dean; Moog, Safira; Dupont, Simon; Darrouzet, Eric; Keller Valsecchi, Claudia Isabelle; Colgan, Thomas Joseph; Pan, Qiaowei; Darras, Hugo (13. Januar 2026). „Tiefe evolutionäre Konservierung eines geschlechtsbestimmenden Locus ohne Sequenzhomologie“ . Proceedings of the National Academy of Sciences . 123 (2) e2522417123. Bibcode : 2026PNAS..12322417Y . doi : 10.1073/ pnas.2522417123 . PMC 12799146. PMID 41490485 .
- ^ a b Wright, Alison E.; Dean, Rebecca; Zimmer, Fabian; Mank, Judith E. (4. Juli 2016). „Wie man ein Geschlechtschromosom herstellt“ . Nature Communications . 7 (1) 12087. Bibcode : 2016NatCo...712087W . doi : 10.1038/ncomms12087 . ISSN 2041-1723 . PMC 4932193. PMID 27373494 .
- ^ Stöck, Matthias; Horn, Agnès; Großen, Christine; Lindtke, Dorothea; Sermier, Roberto; Betto-Colliard, Caroline; Dufresnes, Christophe; Bonjour, Emmanuel; Dumas, Zoé; Luquet, Emilien; Maddalena, Tiziano; Sousa, Helena Clavero; Martinez-Solano, Iñigo; Perrin, Nicolas (17. Mai 2011). Rice, William R. (Hrsg.). „Immer junge Geschlechtschromosomen bei europäischen Laubfröschen“ . PLOS-Biologie . 9 (5) e1001062. doi : 10.1371/journal.pbio.1001062 . ISSN 1545-7885 . PMC 3100596 . PMID 21629756 .
- ^ Furman, Benjamin LS; Metzger, David CH; Darolti, Julia; Wright, Alison E; Sandkam, Benjamin A; Almeida, Pedro; Shu, Jacelyn J; Mank, Judith E (1. Juni 2020). Fraser, Bonnie (Hrsg.). „Evolution der Geschlechtschromosomen: So viele Ausnahmen von den Regeln“ . Genombiologie und Evolution . 12 (6): 750–763 . doi : 10.1093/gbe/evaa081 . ISSN 1759-6653 . PMC 7268786 . PMID 32315410 .
- ^Martin, Jon; Lee, B. T. O. (September 1984). "A phylogenetic study of sex determiner location in a group of Australasian Chironomus species (Diptera, Chironomidae)". Chromosoma. 90 (3): 190–197. doi:10.1007/BF00292396. ISSN 0009-5915.
- ^Martin, Jon; Kuvangkadilok, Chaliow; Peart, Dianne H.; Lee, Barry T. O. (June 1980). "Multiple sex determining regions in a group of related Chironomus species (Diptera:Chironomidae)". Heredity. 44 (3): 367–382. Bibcode:1980Hered..44..367M. doi:10.1038/hdy.1980.34. ISSN 1365-2540.
- ^Green, David M. (1 September 1988). "Cytogenetics of the endemic New Zealand frog, Leiopelma hochstetteri: extraordinary supernumerary chromosome variation and a unique sex-chromosome system". Chromosoma. 97 (1): 55–70. doi:10.1007/BF00331795. ISSN 1432-0886.
- ^Uno, Yoshinobu; Nishida, Chizuko; Oshima, Yuki; Yokoyama, Satoshi; Miura, Ikuo; Matsuda, Yoichi; Nakamura, Masahisa (June 2008). "Comparative chromosome mapping of sex-linked genes and identification of sex chromosomal rearrangements in the Japanese wrinkled frog (Rana rugosa, Ranidae) with ZW and XY sex chromosome systems". Chromosome Research. 16 (4): 637–647. doi:10.1007/s10577-008-1217-7. ISSN 0967-3849. PMID 18484182.
- ^ abGraves, Jennifer A. Marshall (1 December 2008). "Weird Animal Genomes and the Evolution of Vertebrate Sex and Sex Chromosomes". Annual Review of Genetics. 42 (1): 565–586. doi:10.1146/annurev.genet.42.110807.091714. ISSN 0066-4197. PMID 18983263.
- ^ Nguyen, Dung Ho My; Panthum, Thitipong; Ponjarat, Jatupong; Laopichienpong, Nararat; Kraichak, Ekaphan; Singhat, Worapong; Ahmad, Syed Farhan; Muangmai, Narongrit; Peyachoknagul, Surin; Na-Nakorn, Uthairat; Srikulnath, Kornsorn (5. Januar 2021). „Eine Untersuchung der Geschlechtsbestimmungssysteme ZZ/ZW und XX/XY bei nordafrikanischen Welsen (Clarias gariepinus, Burchell, 1822)“ . Grenzen in der Genetik . 11 562856. doi : 10.3389/fgene.2020.562856 . ISSN 1664-8021 . PMC 7874028 . PMID 33584785 .
- ^ Sember, Alexandr; Nguyen, Petr; Perez, Manolo F.; Altmanová, Marie; Ráb, Petr; Cioffi, Marcelo de Bello (13. September 2021). „Multiple Geschlechtschromosomen bei Teleostiern aus zytogenetischer Sicht: Stand der Forschung und zukünftige Herausforderungen“ . Philosophical Transactions of the Royal Society B: Biological Sciences . 376 (1833) 20200098. doi : 10.1098/rstb.2020.0098 . ISSN 0962-8436 . PMC 8310710. PMID 34304595 .
- Traut , W.; Sahara, K.; Marec, F. (18. Januar 2008). „Geschlechtschromosomen und Geschlechtsbestimmung bei Schmetterlingen“. Sexual Development . 1 (6): 332–346 . doi : 10.1159/000111765 . ISSN 1661-5425 . PMID 18391545 .
- ^ Kallman, Klaus D. (1984), „Ein neuer Blick auf die Geschlechtsbestimmung bei Poeciliiden“, in Turner, Bruce J. (Hrsg.), Evolutionsgenetik der Fische , Boston, MA: Springer US, S. 95–171 , doi : 10.1007/978-1-4684-4652-4_3 , ISBN 978-1-4684-4652-4
- ^ Schartl M (Juli 2004). „ Eine vergleichende Betrachtung der Geschlechtsbestimmung beim Medaka“ . Mechanisms of Development . 121 ( 7–8 ): 639–645 . doi : 10.1016/j.mod.2004.03.001 . PMID 15210173. S2CID 17401686 .
- ^ Schmid, M.; Steinlein, C.; Feichtinger, W. (März 1992). „Chromosomenbandenmuster bei Amphibien: XVII. Erster Nachweis multipler Geschlechtschromosomen bei Amphibien: Eleutherodactylus maussi (Anura, Leptodactylidae)“ . Chromosoma . 101 ( 5–6 ): 284–292 . doi : 10.1007/BF00346007 . ISSN 0009-5915 . PMID 1576881 .
- ^ Schmid, M.; Feichtinger, W.; Steinlein, C.; Haaf, T.; Schartl, M.; Visbal García, R.; Manzanilla Pupo, J.; Fernández Badillo, A. (14. August 2003). „Chromosomenstreifenbildung bei Amphibien: XXVI. Koexistenz homomorpher XY-Geschlechtschromosomen und einer abgeleiteten Y-Autosomentranslokation bei Eleutherodactylus maussi (Anura, Leptodactylidae)“. Zytogenetik und Zellgenetik . 99 ( 1– 4): 330– 343. doi : 10.1159/000071612 . ISSN 0301-0171 . PMID 12900583 .
- Henry, Isabelle M.; Akagi, Takashi; Tao, Ryutaro; Comai, Luca (29. April 2018). „ Einhundert Wege zur Erfindung der Geschlechter: Theoretische und beobachtete Pfade zur Diözie bei Pflanzen“ . Annual Review of Plant Biology . 69 (1 ) : 553–575 . Bibcode : 2018AnRPB..69..553H . doi : 10.1146/annurev-arplant-042817-040615 . ISSN 1543-5008 . PMID 29719167 .
- Charlesworth , Deborah; Harkess, Alex (1. Mai 2024) . „ Warum sollten wir pflanzliche Geschlechtschromosomen untersuchen ? “ The Plant Cell . 36 ( 5 ) : 1242–1256 . doi : 10.1093 / plcell / koad278 . ISSN 1040-4651 . PMC 11062472. PMID 38163640 .
- Renner , Susanne S. ( 2014). „ Die relative und absolute Häufigkeit der sexuellen Fortpflanzungssysteme der Angiospermen: Zweihäusigkeit, Einhäusigkeit, Gynodiözie und eine aktualisierte Online-Datenbank“ . American Journal of Botany . 101 (10): 1588–1596 . doi : 10.3732/ajb.1400196 . ISSN 0002-9122 . PMID 25326608 .
- ^ a b c Charlesworth, Brian; Charlesworth, Deborah (1978). „Ein Modell für die Evolution von Diözie und Gynodiözie“ . The American Naturalist . 112 (988): 975–997 . Bibcode : 1978ANat..112..975C . doi : 10.1086/283342 . ISSN 0003-0147 .
- ^ a b c Westergaard, M. (1958), Der Mechanismus der Geschlechtsbestimmung bei zweihäusigen Blütenpflanzen , Advances in Genetics, Bd. 9, Elsevier, S. 217–281 , doi : 10.1016/S0065-2660(08)60163-7 , ISBN 978-0-12-017609-0, PMID 13520443 , abgerufen am 2. Juni 2026
{{citation}}:ISBN-/Datumsinkompatibilität ( Hilfe ) - ^ a b Akagi, Takashi; Henry, Isabelle M.; Tao, Ryutaro; Comai, Luca (31. Oktober 2014). „Eine auf dem Y-Chromosom kodierte kleine RNA fungiert als Geschlechtsdeterminante bei Kakis“ . Science . 346 (6209): 646–650 . Bibcode : 2014Sci...346..646A . doi : 10.1126/science.1257225 . ISSN 0036-8075 . PMID 25359977 .
- ^ Iwasaki, Miyuki; Kajiwara, Tomoaki; Yasui, Yukiko; Yoshitake, Yoshihiro; Miyazaki, Motoki; Kawamura, Shogo; Suetsugu, Noriyuki; Nishihama, Ryuichi; Yamaoka, Shohei; Wanke, Dierk; Hashimoto, Kenji; Kuchitsu, Kazuyuki; Montgomery, Sean A.; Singh, Shilpi; Tanizawa, Yasuhiro (2021). „Die Identifizierung des geschlechtsbestimmenden Faktors im Leberblümchen Marchantia polymorpha zeigt eine einzigartige Entwicklung der Geschlechtschromosomen in einem haploiden System . “ Aktuelle Biologie . 31 (24): 5522–5532.e7. Bibcode : 2021CBio...31E5522I . doi : 10.1016/ j.cub.2021.10.023 . PMC 8699743. PMID 34735792 .
- ^ Bull, James J. (1978). „Geschlechtschromosomen in haploider Diözie: Ein einzigartiger Gegensatz zu Mullers Theorie der diploiden Diözie“ . The American Naturalist . 112 (983): 245–250 . Bibcode : 1978ANat..112..245B . doi : 10.1086/283267 . ISSN 0003-0147 .
- ^ Akagi, Takashi; Henry, Isabelle M.; Ohtani, Haruka; Morimoto, Takuya; Beppu, Kenji; Kataoka, Ikuo; Tao, Ryutaro (2018). „Ein Y-kodierter Suppressor der Feminisierung entstand durch linien-spezifische Duplikation eines Cytokinin - Antwortregulators in Kiwis“ . The Plant Cell . 30 (4): 780–795 . Bibcode : 2018PlanC..30..780A . doi : 10.1105/tpc.17.00787 . ISSN 1040-4651 . PMC 5969274. PMID 29626069 .
- ^ a b Akagi, Takashi; Pilkington, Sarah M.; Varkonyi-Gasic, Erika; Henry, Isabelle M.; Sugano, Shigeo S.; Sonoda, Minori; Firl, Alana; McNeilage, Mark A.; Douglas, Mikaela J.; Wang, Tianchi; Rebstock, Ria; Voogd, Charlotte; Datson, Paul; Allan, Andrew C.; Beppu, Kenji (5. August 2019). „Zwei auf dem Y-Chromosom kodierte Gene bestimmen das Geschlecht der Kiwi“ . Nature Plants . 5 (8): 801–809 . Bibcode : 2019NatPl...5..801A . doi : 10.1038/s41477-019-0489-6 . ISSN 2055-0278 . PMID 31383971 .
- ^ Harkess, Alex; Huang, Kun; van der Hulst, Ron; Tissen, Bart; Caplan, Jeffrey L.; Koppula, Aakash; Batish, Mona; Meyers, Blake C.; Leebens-Mack, Jim (2020). „Geschlechtsbestimmung durch zwei Y-chromosomale Gene bei Gartenspargel“ . The Plant Cell . 32 (6): 1790–1796 . Bibcode : 2020PlanC..32.1790H . doi : 10.1105/tpc.19.00859 . ISSN 1040-4651 . PMC 7268802. PMID 32220850 .
- ^ ein b Massonnet, Mélanie; Cochetel, Noé; Minio, Andrea; Vondras, Amanda M.; Lin, Jerry; Muyle, Aline; Garcia, Jadran F.; Zhou, Yongfeng; Delledonne, Massimo; Riaz, Summaira; Figueroa-Balderas, Rosa; Gaut, Brandon S.; Cantu, Dario (9. Juni 2020). „Die genetische Grundlage der Geschlechtsbestimmung bei Weintrauben“ . Naturkommunikation . 11 (1) 2902. Bibcode : 2020NatCo..11.2902M . doi : 10.1038/s41467-020-16700-z . ISSN 2041-1723 . PMC 7283251 . PMID 32518223 .
- ^ Müller, Niels A.; Kersten, Birgit; Leite Montalvão, Ana P.; Mähler, Niklas; Bernhardsson, Carolina; Bräutigam, Katharina; Carracedo Lorenzo, Zulema; Hoenicka, Hans; Kumar, Vikash; Mader, Malte; Pakull, Birte; Robinson, Kathryn M.; Sabatti, Maurizio; Vettori, Cristina; Ingvarsson, Pär K. (1. Juni 2020). „Ein einzelnes Gen liegt der dynamischen Entwicklung der Geschlechtsbestimmung von Pappeln zugrunde . “ Naturpflanzen . 6 (6): 630–637 . Bibcode : 2020NatPl...6..630M . doi : 10.1038/s41477-020-0672-9 . ISSN 2055-0278 . PMID 32483326 .
- ^ VanBuren, Robert; Zeng, Fanchang; Chen, Cuixia; Zhang, Jisen; Wai, Ching Man; Han, Jennifer; Aryal, Rishi; Gschwend, Andrea R.; Wang, Jianping; Na, Jong-Kuk; Huang, Lixian; Zhang, Lingmao; Miao, Wenjing; Gou, Jiqing; Arro, Jie (2015). „Ursprung und Domestizierung des Yh-Chromosoms der Papaya“ . Genomforschung . 25 (4): 524–533 . doi : 10.1101/gr.183905.114 . ISSN 1088-9051 . PMC 4381524 . PMID 25762551 .
- ^ Wang, Jianping; Na, Jong-Kuk; Yu, Qingyi; Gschwend, Andrea R.; Han, Jennifer; Zeng, Fanchang; Aryal, Rishi; VanBuren, Robert; Murray, Jan E.; Zhang, Wenli; Navajas-Pérez, Rafael; Feltus, F. Alex; Lemke, Cornelia; Tong, Eric J.; Chen, Cuixia (21. August 2012). „Die Sequenzierung der X- und Yh-Chromosomen der Papaya enthüllt die molekulare Grundlage der beginnenden Evolution der Geschlechtschromosomen . “ Verfahren der National Academy of Sciences . 109 (34): 13710–13715 . doi : 10.1073/pnas.1207833109 . ISSN 0027-8424 . PMC 3427123 . PMID 22869747 .
- ^ Ma, Xiaokai; Yu, Li'ang; Fatima, Mahpara; Wadlington, William H.; Hulse-Kemp, Amanda M.; Zhang, Xingtan; Zhang, Shengcheng; Xu, Xindan; Wang, Jingjing; Huang, Huaxing; Lin, Jing; Deng, Ban; Liao, Zhenyang; Yang, Zhenhui; Ma, Yanhong (7. März 2022). „Das Spinat-YY-Genom offenbart die Evolution der Geschlechtschromosomen, die Domestikation und die Introgressionsgeschichte der Art . “ Genombiologie . 23 (1) 75. doi : 10.1186/s13059-022-02633-x . ISSN 1474-760X . PMC 8902716 . PMID 35255946 .
- ^ a b Zhu, Zexian; Younas, Lubna; Zhou, Qi (18. Juli 2024). „Evolution und Regulation tierischer Geschlechtschromosomen“ . Nature Reviews Genetics . 26 (1): 59–74 . doi : 10.1038/s41576-024-00757-3 . ISSN 1471-0064 . PMID 39026082 .
- ^ Lahn, Bruce T.; Page, David C. (29. Oktober 1999). „Vier evolutionäre Schichten auf dem menschlichen X-Chromosom“ . Science . 286 (5441): 964–967 . doi : 10.1126/science.286.5441.964 . ISSN 0036-8075 . PMID 10542153 .
- ^ Lemaitre, Claire; Braga, Marilia DV; Gautier, Christian; Sagot, Marie-France; Tannier, Eric; Marais, Gabriel AB (1. Januar 2009). „Spuren von Inversionen an gegenwärtigen und vergangenen pseudoautosomalen Grenzen in menschlichen Geschlechtschromosomen“ . Genome Biology and Evolution . 1 : 56–66 . doi : 10.1093 / gbe/evp006 . ISSN 1759-6653 . PMC 2817401. PMID 20333177 .
- Zhou, Yang; Zhan, Xiaoyu; Jin, Jiazheng; Zhou, Long; Bergman, Juraj; Li, Xuemei; Rousselle, Marjolaine Marie C.; Belles, Meritxell Riera; Zhao, Lan; Fang, Miaoquan; Chen, Jiawei; Fang, Qi; Kuderna, Lukas; Marques-Bonet, Tomas; Kitayama, Haruka (Juli 2023). „ Achtzig Millionen Jahre rasanter Evolution des Y-Chromosoms der Primaten“ . Nature Ecology & Evolution . 7 (7): 1114–1130 . Bibcode : 2023NatEE...7.1114Z . doi : 10.1038/s41559-022-01974-x . ISSN 2397-334X . PMID 37268856 .
- ^ a b Solari, Alberto J. (1994). Geschlechtschromosomen und Geschlechtsbestimmung bei Wirbeltieren . Boca Raton: CRC Press. ISBN 978-0-8493-4571-5Die
- ^ Zhou, Qi; Wang, Jun; Huang, Ling; Nie, Wenhui; Wang, Jinhuan; Liu, Yan; Zhao, Xiangyi; Yang, Fengtang; Wang, Wen (14. Juni 2008). „Neo-Geschlechtschromosomen im schwarzen Muntjak rekapitulieren die beginnende Entwicklung der Geschlechtschromosomen von Säugetieren“ . Genombiologie . 9 (6): R98. doi : 10.1186/gb-2008-9-6-r98 . ISSN 1474-760X . PMC 2481430 . PMID 18554412 .
- ^ Pala, I.; Naurin, S.; Stervander, M.; Hasselquist, D.; Bensch, S.; Hansson, B. (März 2012). „ Evidence of a neo-sex chromosome in birds“ . Heredity . 108 (3): 264–272 . Bibcode : 2012Hered.108..264P . doi : 10.1038 / hdy.2011.70 . ISSN 1365-2540 . PMC 3282394. PMID 21897438 .
- ^ Vicoso, Beatriz (Dezember 2019). „Molekulare und evolutionäre Dynamik des Geschlechtschromosomenwechsels bei Tieren“ . Nature Ecology & Evolution . 3 (12): 1632–1641 . Bibcode : 2019NatEE...3.1632V . doi : 10.1038/s41559-019-1050-8 . ISSN 2397-334X . PMID 31768022 .
- ^ Palmer, Daniela H.; Rogers, Thea F.; Dean, Rebecca; Wright, Alison E. (November 2019). „Wie man Geschlechtschromosomen und ihren Umsatz identifiziert“ . Molecular Ecology . 28 (21): 4709–4724 . Bibcode : 2019MolEc..28.4709P . doi : 10.1111 / mec.15245 . ISSN 0962-1083 . PMC 6900093. PMID 31538682 .
- ^ van Doorn, G. Sander; Kirkpatrick, Mark (1. Oktober 2010). „Übergänge zwischen männlicher und weiblicher Heterogametie durch geschlechtsantagonistische Selektion“ . Genetics . 186 ( 2): 629–645 . Bibcode : 2010Genet.186..629V . doi : 10.1534/genetics.110.118596 . ISSN 1943-2631 . PMC 2954476. PMID 20628036 .
- ^ Perrin, Nicolas (Dezember 2009). „ Geschlechtsumkehr: Ein Jungbrunnen für Geschlechtschromosomen?“ Evolution . 63 (12): 3043–3049 . Bibcode : 2009Evolu..63.3043P . doi : 10.1111/j.1558-5646.2009.00837.x . PMID 19744117 .
- ^ Nagler, JJ; Bouma, J; Thorgaard, GH; Dauble, DD (Januar 2001). „Hohe Inzidenz eines männchenspezifischen genetischen Markers bei phänotypisch weiblichen Königslachsen aus dem Columbia River“ . Environmental Health Perspectives . 109 (1): 67–69 . Bibcode : 2001EnvHP.109...67N . doi : 10.1289/ehp.0110967 . ISSN 0091-6765 . PMC 1242053. PMID 11171527 .
- ^ Rodrigues, Nicolas; Studer, Tania; Dufresnes, Christophe; Perrin, Nicolas (1. April 2018). „Sex-Chromosom-Rekombination bei Grasfröschen bringt Wasser zum Jungbrunnen“ . Molecular Biology and Evolution . 35 (4): 942–948 . doi : 10.1093/molbev/msy008 . ISSN 0737-4038 . PMID 29394416 .
- Göth A, Booth DT (März 2005). „Temperaturabhängiges Geschlechterverhältnis bei einem Vogel“ . Biology Letters . 1 ( 1): 31–33 . Bibcode : 2005BiLet...1...31G . doi : 10.1098/rsbl.2004.0247 . PMC 1629050. PMID 17148121 .
- ^ a b Torres Maldonado LC, Landa Piedra A, Moreno Mendoza N, Marmolejo Valencia A, Meza Martínez A, Merchant Larios H (Oktober 2002). „Expressionsprofile von Dax1, Dmrt1 und Sox9 während der temperaturabhängigen Geschlechtsbestimmung in den Gonaden der Meeresschildkröte Lepidochelys olivacea“. General and Comparative Endocrinology . 129 (1): 20–26 . Bibcode : 2002GCEnd.129...20T . doi : 10.1016/s0016-6480(02)00511-7 . PMID 12409092 .
- ^ Bull JJ (März 1980). „Geschlechtsbestimmung bei Reptilien“. The Quarterly Review of Biology . 55 (1): 3–21 . doi : 10.1086/411613 . JSTOR 2826077. S2CID 85177125 .
- ^ a b Valenzuela N, Janzen FJ (2001). „Nest-site philopatry and the evolution of temperature-dependent sex determination“ (PDF) . Evolutionary Ecology Research . 3 : 779–794 . Archiviert (PDF) vom Original am 4. Mai 2013. Abgerufen am 7. Dezember 2011 .
- ^ Janzen FJ, Phillips PC (November 2006). „Exploring the evolution of environmental sex determination, especially in reptiles“. Journal of Evolutionary Biology . 19 (6): 1775–1784 . doi : 10.1111/j.1420-9101.2006.01138.x . PMID 17040374. S2CID 15485510 .
- ^ Gilbert S (2006). Entwicklungsbiologie (8. Aufl.). Sunderland, Mass.: Sinauer Associates, Inc. Publishers. S. 550–553 . ISBN 978-0-87893-250-4Die
- Casas, L., Saborido-Rey, F., Ryu, T., Michell, C., Ravasi, T. & Irigoien, X. (2016). Geschlechtsumwandlung bei Clownfischen: Molekulare Erkenntnisse aus der Transkriptomanalyse. Scientific Reports, 6(1) . https://doi.org/10.1038/srep35461
- ^ Watts PC, Buley KR, Sanderson S, Boardman W, Ciofi C, Gibson R (Dezember 2006). „Parthenogenese bei Komodowaranen“. Nature . 444 ( 7122): 1021–1022 . Bibcode : 2006Natur.444.1021W . doi : 10.1038/4441021a . PMID 17183308. S2CID 4311088 .
- Stevens , Lori; Giordano, Rosanna; Fialho, Roberto F. (November 2001). „Männchentötung, Nematodeninfektionen, Bakteriophageninfektion und Virulenz zytoplasmatischer Bakterien der Gattung Wolbachia“ . Annual Review of Ecology and Systematics . 32 (1): 519–545 . Bibcode : 2001AnRES..32..519S . doi : 10.1146/annurev.ecolsys.32.081501.114132 . ISSN 0066-4162 .
- Bachtrog D, Mank JE, Peichel CL, Kirkpatrick M, Otto SP, Ashman TL, et al. (Juli 2014). „ Geschlechtsbestimmung : Warum gibt es so viele Wege , sie durchzuführen?“ PLOS Biology . 12 (7) e1001899. doi : 10.1371 /journal.pbio.1001899 . PMC 4077654. PMID 24983465 .
- ^ David, Patrice; Degletagne, Cyril; Saclier, Nathanaëlle; Jennan, Aurel; Jarne, Philippe; Plénet, Sandrine; Konecny, Lara; François, Clémentine; Guéguen, Laurent; Garcia, Noéline; Lefébure, Tristan; Luquet, Emilien (Mai 2022). „Extreme mitochondriale DNA-Divergenz liegt genetischem Konflikt um die Geschlechtsbestimmung zugrunde“ . Aktuelle Biologie . 32 (10): 2325–2333.e6. Bibcode : 2022CBio...32E2325D . doi : 10.1016/j.cub.2022.04.014 . PMID 35483362 .
- ^ Herbette, Marion; Ross, Laura (2023). „Eliminierung des väterlichen Genoms: Muster und Mechanismen von Antrieb und Stilllegung“ . Current Opinion in Genetics & Development . 81 102065. doi : 10.1016/j.gde.2023.102065 . hdl : 20.500.11820/093dee14-4ce5-4a07-95c5-d2dc8c4a70d1 . PMID 37413739 .
- ^ Baird, Robert B.; Mongue, Andrew J.; Ross, Laura (2023). „Warum alles auf eine Karte setzen? Evolutionäre Perspektiven auf die Ursprünge monogener Reproduktion“ . Heredity . 131 (2): 87–95 . Bibcode : 2023Hered.131...87B . doi : 10.1038/ s41437-023-00632-7 . ISSN 0018-067X . PMC 10382564. PMID 37328587 .
- ^ Lehtonen J, Parker GA (Dezember 2014). „Gametenkonkurrenz, Gametenlimitierung und die Evolution der beiden Geschlechter“ . Molecular Human Reproduction . 20 (12): 1161–1168 . doi : 10.1093/molehr/gau068 . PMID 25323972 .
- ^ Clarke R, Merlin M (28. Juni 2016). Cannabis: Evolution and Ethnobotany . University of California Press. S. 359. ISBN 978-0-520-29248-2Die
- ^ Namekawa SH , Lee JT (Mai 2009). „XY und ZW: Ist die meiotische Inaktivierung der Geschlechtschromosomen die Regel in der Evolution?“ PLOS Genetics . 5 (5) e1000493. doi : 10.1371/journal.pgen.1000493 . PMC 2679206. PMID 19461890 .
- Vallender EJ , Lahn BT ( November 2006). „Mehrere unabhängige Ursprünge von Geschlechtschromosomen bei Amnioten“ . Proceedings of the National Academy of Sciences of the United States of America . 103 ( 48): 18031–18032 . Bibcode : 2006PNAS..10318031V . doi : 10.1073 / pnas.0608879103 . PMC 1838700. PMID 17116892 .
- ^ Veyrunes F, Waters PD, Miethke P, Rens W, McMillan D, Alsop AE, et al. (Juni 2008). „Vogelähnliche Geschlechtschromosomen des Schnabeltiers deuten auf einen jüngeren Ursprung der Geschlechtschromosomen von Säugetieren hin“ . Genome Research . 18 (6): 965–973 . doi : 10.1101/gr.7101908 . PMC 2413164. PMID 18463302 .
- ^ Marshall Graves JA (September 2000). „Das menschliche Y-Chromosom, die Geschlechtsbestimmung und die Spermatogenese – eine feministische Sichtweise“ . Biology of Reproduction . 63 (3): 667–676 . doi : 10.1095/biolreprod63.3.667b . PMID 10952906 .
- ^ Ezaz T, Stiglec R, Veyrunes F, Marshall Graves JA (September 2006). „Beziehungen zwischen den ZW- und XY-Geschlechtschromosomensystemen von Wirbeltieren“. Current Biology . 16 (17): R736– R743. Bibcode : 2006CBio...16.R736E . doi : 10.1016/j.cub.2006.08.021 . hdl : 1885/37887 . PMID: 16950100. S2CID : 18864471 .
- ^ Quinn AE, Sarre SD, Ezaz T, Marshall Graves JA, Georges A (Juni 2011). „Evolutionäre Übergänge zwischen Mechanismen der Geschlechtsbestimmung bei Wirbeltieren“ . Biology Letters . 7 (3): 443–448 . Bibcode : 2011BiLet...7..443Q . doi : 10.1098/rsbl.2010.1126 . PMC 3097877. PMID 21212104 .
- ^ a b Graves JA (März 2006). „ Spezialisierung und Degeneration der Geschlechtschromosomen bei Säugetieren“ . Cell . 124 (5): 901–914 . Bibcode : 2006Cell..124..901G . doi : 10.1016/j.cell.2006.02.024 . PMID 16530039. S2CID 8379688 .
- ^ „Die Evolution der Geschlechtschromosomen: Schritt für Schritt“ (Pressemitteilung). Universitätsklinikum Chicago. 28. Oktober 1999. Abgerufen am 23. Oktober 2011 .
- ^ Charlesworth B (14. August 2003). „Die Organisation und Evolution des menschlichen Y-Chromosoms“ . Genome Biology . 4 (9): 226. doi : 10.1186 / gb-2003-4-9-226 . PMC 193647. PMID 12952526 .
- ^ Graves JA (22. Juli 2004). „Das degenerierte Y-Chromosom – kann die Konversion es retten?“. Reproduction , Fertility, and Development . 16 (5): 527–534 . doi : 10.1071/RD03096 . PMID 15367368. S2CID 23740483 .
- ^ Hughes JF, Skaletsky H, Brown LG, Pyntikova T, Graves T, Fulton RS, et al. (Februar 2012). „Strenge evolutionäre Konservierung folgte auf schnellen Genverlust auf den Y-Chromosomen von Mensch und Rhesusaffe“ . Nature . 483 ( 7387): 82–86 . Bibcode : 2012Natur.483...82H . doi : 10.1038/nature10843 . PMC 3292678. PMID 22367542 .
- ^ Nei M (2. Mai 2013). Mutationsgetriebene Evolution . OUP Oxford. S. 168. ISBN 978-0-19-163781-0Die
Weiterführende Literatur
- Beukeboom L, Perrin N (2014). Die Evolution der Geschlechtsbestimmung . Oxford University Press. ISBN 978-0-19-163140-5Die
- Lahn, Bruce T. (29. Oktober 1999). „Vier evolutionäre Schichten auf dem menschlichen X-Chromosom“ . Science . 286 (5441): 964–967 . doi : 10.1126/science.286.5441.964 . ISSN 0036-8075 . PMID 10542153 .