Huftiere [ a ] gehören zur vielfältigen Klade Euungulata [ b ] , die hauptsächlich aus großen Säugetieren mit Hufen besteht. Einst gehörten sie zusammen mit Paenungulaten und Tubulidentata sowie einigen ausgestorbenen Taxa zum Taxon „Ungulata“ [ 6 ] . Molekulargenetische Daten haben jedoch gezeigt, dass „Ungulata“ eine polyphyletische Gruppe darstellen. Infolgedessen wurden die echten Huftiere 2001 in die neuere Klade Euungulata innerhalb der Klade Laurasiatheria umklassifiziert, während Paenungulata und Tubulidentata in die entfernt verwandte Klade Afrotheria umklassifiziert wurden . [ 1 ] [ 7 ] [ 8 ] Alternativ verwenden einige Autoren den Namen Ungulata, um dieselbe Klade wie Euungulata zu bezeichnen. [ 4 ] [ 5 ]
Die lebenden Huftiere werden in zwei Ordnungen unterteilt:
- Unpaarhufer (Perissodactyla) einschließlich Pferde , Nashörner und Tapire .
- Paarhufer (Artiodactyla) , zu denen unter anderem Rinder , Antilopen , Schweine , Giraffen , Kamele , Schafe , Hirsche und Flusspferde gehören .
Wale , Delfine und Schweinswale werden ebenfalls zu den Paarhufern gezählt, obwohl sie keine Hufe besitzen.
Die meisten Landhuftiere nutzen die Hufspitzen ihrer Zehen, um ihr Körpergewicht beim Stehen oder Gehen zu tragen. Zwei weitere Huftierordnungen, Notoungulata und Litopterna , die beide in Südamerika beheimatet waren, starben am Ende des Pleistozäns vor etwa 12.000 Jahren aus.
Der Begriff bedeutet grob übersetzt „Huftier“. Als beschreibender Begriff schließt „Huftier“ normalerweise Wale aus, da diese nicht die meisten typischen morphologischen Merkmale anderer Huftiere aufweisen. Sie stammen jedoch ebenfalls von frühen Paarhufern ab . [ 9 ] Huftiere sind typischerweise Pflanzenfresser und viele nutzen spezialisierte Darmbakterien zur Verdauung von Zellulose. Einige Arten weichen jedoch davon ab: Mehrere Schweinearten und die ausgestorbenen Entelodonten sind Allesfresser, während Wale und die ausgestorbenen Mesonychier Fleischfresser sind.
Etymologie
Ungulate stammt vom spätlateinischen Adjektiv ungulatus „ hufig “ , abgeleitet von ungula „ Huf “ , einer Verkleinerungsform von unguis „ Nagel “ (Fingernagel; Zehennagel). [ 10 ]
Klassifizierungen
Geschichte
Euungulata is a clade (or in some taxonomies, a grand order) of mammals. The two extant orders of ungulates are the Perissodactyla (odd-toed ungulates) and Artiodactyla (even-toed ungulates). Hyracoidea (hyraxes), Sirenia (sea cows, dugongs and manatees), Proboscidea (elephants) and Tubulidentata (aardvarks) were in the past grouped within the clade "Ungulata", later found to be a polyphyletic and invalid. The three orders of Paenungulata are considered a clade and grouped in the Afrotheria clade, along with Tubulidentata, while Euungulata is grouped under the Laurasiatheria clade.[1][8]
In 2009, morphological[11][12][13][14] and molecular[15][16] work found that aardvarks, hyraxes, sea cows, and elephants were more closely related to each other and to sengis, tenrecs, and golden moles than to the perissodactyls and artiodactyls, and form the clade Afrotheria. Elephants, sea cows, and hyraxes were grouped together in the clade Paenungulata, while the aardvark has been considered as either a close relative to them or a close relative to sengis in the clade Afroinsectiphilia.[17] This is a striking example of convergent evolution.[18]
Es besteht Uneinigkeit darüber, ob die kleinere Untergruppe der Euungulata eine kladistische (evolutionsgeschichtlich bedingte) Gruppe oder lediglich eine phänetische Gruppe ( Formtaxon ) bzw. ein Volkstaxon (ähnlich, aber nicht unbedingt verwandt) darstellt. Einige Studien haben tatsächlich gezeigt, dass die mesaxonischen und paraxonischen Huftiere eine monophyletische Linie bilden [ 19 ] [ 20 ] [ 21 ], die entweder eng mit den Ferae (den Raubtieren und Schuppentieren ) [ 22 ] [ 23 ] innerhalb der Klade Fereuungulata oder mit den Fledermäusen [ 24 ] verwandt ist . Andere Studien fanden die beiden Ordnungen nicht so eng verwandt, da einige die Unpaarhufer als nahe Verwandte der Fledermäuse und Ferae innerhalb der Pegasoferae [ 25 ] und andere die Paarhufer als nahe Verwandte der Fledermäuse [ 26 ] einordnen.
Taxonomie


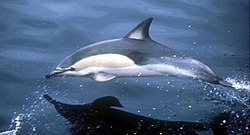
Nachfolgend finden Sie eine vereinfachte Taxonomie (unter der Annahme, dass Huftiere tatsächlich eine natürliche Gruppe bilden) mit den rezenten Familien in der Reihenfolge ihrer Verwandtschaftsverhältnisse. Beachten Sie, dass es noch einige Unklarheiten gab, beispielsweise im Fall der Verwandtschaft zwischen den Pecora- und den Bartenwalfamilien . Die Verwandtschaftsverhältnisse der Arten sowie die Kontroversen werden in den jeweiligen Artikeln zu den einzelnen Familien erläutert.
- Euungulata [ 19 ]
- Unpaarhufer (Mesaxonische Huftiere)
- Hippomorpha
- Equidae : Pferde, Esel und Zebras
- Ceratomorpha
- Tapiridae : Tapire
- Rhinocerotidae : Nashörner
- Hippomorpha
- Artiodactyla (= Cetartiodactyla ) (Paraxonische Huftiere)
- Tylopoda
- Kamelartige : Kamele und Lamas
- Artiofabula
- Suina
- Tayassuidae : Pekaris
- Suidae : Schweine
- Cetruminantia
- Wiederkäuer
- Tragulidae : Chevrotains
- Cervoidea
- Antilocapridae : Gabelbock
- Giraffidae : Giraffen und Okapis
- Cervidae : Hirsche
- Moschidae : Moschushirsche
- Bovidae : Rinder und Antilopen
- Whippomorpha
- Hippopotamidae : Flusspferde
- Wale
- Mysticeti
- Balaenidae : Grönlandwale und Glattwale
- Cetotheriidae : Zwergglattwal
- Balaenopteridae : Furchenquallen
- Zahnkeime
- Physteroidea
- Physeteridae : Pottwal
- Kogiidae : Kleine Pottwale
- Platanistoidea
- Platanistidae : Indische Flussdelfine
- Ziphioidea
- Ziphiidae : Schnabelwale
- Lipotoidea
- Lipotidae : Baiji (funktionell ausgestorben)
- Inioidea
- Iniidae : Amazonas-Flussdelfine
- Pontoporiidae : La-Plata-Delfin
- Delphinoidea
- Monodontidae : Beluga und Narwal
- Phocoenidae : Schweinswale
- Delphinidae : Ozeanische Delfine
- Physteroidea
- Mysticeti
- Wiederkäuer
- Suina
- Tylopoda
- Unpaarhufer (Mesaxonische Huftiere)
Phylogenie
Nachfolgend ist der allgemeine Konsens zur Phylogenie der Huftierfamilien dargestellt. [ 26 ] [ 27 ]
| Euungulata | |


Evolutionsgeschichte


Unpaarhufer (Perissodactyla) und Paarhufer (Artiodactyla) umfassen die Mehrheit der großen Landsäugetiere. Diese beiden Gruppen traten erstmals im späten Paläozän auf , breiteten sich rasch auf zahlreiche Kontinente aus und entwickelten sich seither parallel. Einige Wissenschaftler glaubten, dass die modernen Huftiere von einer evolutionären Stufe der Säugetiere, den sogenannten Condylarthen, abstammen . [ 28 ] Das früheste bekannte Mitglied dieser Gruppe war möglicherweise das winzige Protungulatum , ein Säugetier, das vor 66 Millionen Jahren mit den letzten nicht-aviären Dinosauriern koexistierte . [ 29 ] Viele Experten betrachten es jedoch nicht als echtes Plazentatier, geschweige denn als Huftier. [ 30 ] Die rätselhaften Dinoceraten gehörten zu den ersten großen pflanzenfressenden Säugetieren, obwohl ihre genaue Verwandtschaft zu anderen Säugetieren noch immer diskutiert wird. Eine Theorie besagt, dass sie möglicherweise nur entfernte Verwandte der heutigen Huftiere sind. Die jüngste Studie ordnet sie der Gruppe der echten Huftiere zu, am nächsten verwandt mit Carodnia . [ 31 ]
In Australien entwickelte das kürzlich ausgestorbene Beuteltier Chaeropus ("Schweinefuß-Nasenbeutler") ebenfalls Hufe, die denen der Paarhufer ähnelten, [ 32 ] ein Beispiel für konvergente Evolution .
Evolution der Unpaarhufer

Man nahm an, dass sich die Unpaarhufer aus den Phenacodontidae entwickelten , kleinen, schafsgroßen Tieren, die bereits anatomische Merkmale aufwiesen, die ihre Nachkommen erben würden (z. B. die Reduktion des ersten und fünften Fingers). [ 34 ] Zu Beginn des Eozäns , vor 55 Millionen Jahren, hatten sie sich diversifiziert und mehrere Kontinente besiedelt. Pferde und Tapire entwickelten sich in Nordamerika; [ 35 ] Nashörner scheinen sich in Asien aus tapirähnlichen Tieren entwickelt und dann im mittleren Eozän (vor etwa 45 Millionen Jahren) Amerika besiedelt zu haben. Von den etwa 15 Familien sind heute nur noch drei erhalten (McKenna und Bell, 1997; Hooker, 2005). Diese Familien waren in Form und Größe sehr vielfältig; zu ihnen gehörten die riesigen Brontotherien und die bizarren Chalicotherien . Das größte Unpaarhufer, ein asiatisches Nashorn namens Paraceratherium , erreichte ein Gewicht von 15 Tonnen (17 Tonnen), mehr als das Doppelte des Gewichts eines Elefanten . [ 36 ]
Eine kladistische Studie ergab, dass die Anthracobuniden und die Desmostylier – zwei Linien, die zuvor den Afrotheria (genauer: den Elefanten) zugeordnet wurden – eine Klade bilden, die eng mit den Unpaarhufern verwandt ist. [ 2 ] Die Desmostylier waren große amphibische Vierbeiner mit massiven Gliedmaßen und einem kurzen Schwanz. [ 37 ] Sie erreichten eine Länge von bis zu 1,8 Metern und wogen vermutlich über 200 Kilogramm. Ihre Fossilien stammen aus dem nördlichen Pazifikraum [ 38 ] , von Südjapan über Russland , die Aleuten und die Pazifikküste Nordamerikas bis zur Südspitze von Baja California . Ihre Zahn- und Skelettstruktur deutet darauf hin, dass Desmostylier aquatische Pflanzenfresser waren, die auf Küstenlebensräume angewiesen waren . Ihr Name bezieht sich auf ihre unverwechselbaren Backenzähne, deren Höcker zu hohlen Säulen ausgebildet waren, sodass ein typischer Backenzahn einem Röhrengeflecht oder, im Falle abgenutzter Zähne, einem Vulkan ähnelte. Sie waren die einzigen Meeressäugetiere, die ausgestorben sind.
Die südamerikanischen Meridiungulaten umfassen die tapirähnlichen Pyrotherien und Astrapotherien , die mesaxonischen Litopternen und die vielfältigen Notoungulaten . Man ging davon aus, dass sich die Meridiungulaten insgesamt aus Tieren wie Hyopsodus entwickelt hatten . [ 34 ] Lange Zeit waren ihre Verwandtschaftsverhältnisse zu anderen Huftieren ungeklärt. Einige Paläontologen stellten sogar die Monophylie der Meridiungulata in Frage, indem sie vermuteten, dass die Pyrotherien enger mit anderen Säugetieren, wie den Embrithopoda (einer afrikanischen Ordnung, die mit Elefanten verwandt war ), als mit anderen südamerikanischen Huftieren verwandt sein könnten. [ 39 ] Eine neuere Studie, die auf Knochenkollagen basiert, ergab, dass zumindest die Litopternen und die Notoungulaten eng mit den Unpaarhufern verwandt waren. [ 40 ]
Die ältesten bekannten Fossilien der Equiden stammen aus dem frühen Eozän vor 54 Millionen Jahren. Sie wurden ursprünglich der Gattung Hyracotherium zugeordnet , doch die Typusart dieser Gattung wird heute nicht mehr zu dieser Familie gezählt, die übrigen Arten wurden jedoch in verschiedene Gattungen aufgeteilt. Diese frühen Equiden waren fuchsgroße Tiere mit drei Zehen an den Hinterfüßen und vier an den Vorderfüßen. Sie ernährten sich von relativ weichen Pflanzen und waren bereits an das Laufen angepasst. Die Komplexität ihres Gehirns lässt vermuten, dass sie bereits aufmerksame und intelligente Tiere waren. [ 41 ] Spätere Arten reduzierten die Anzahl ihrer Zehen und entwickelten Zähne, die besser zum Zerkleinern von Gras und anderer zäher Pflanzennahrung geeignet waren.
Die Nashörner (Rhinocerotoidea) spalteten sich im frühen Eozän von den anderen Unpaarhufern ab. Fossilien von Hyrachyus eximus, die in Nordamerika gefunden wurden, stammen aus dieser Zeit. Dieser kleine, hornlose Vorfahre ähnelte eher einem Tapir oder einem kleinen Pferd als einem Nashorn. Im späten Eozän entwickelten sich drei Familien, die manchmal als Überfamilie Rhinocerotoidea zusammengefasst werden: Hyracodontidae , Amynodontidae und Rhinocerotidae . Dadurch entstand eine Artenvielfalt, die lange Zeit unerreicht blieb, bis Umweltveränderungen mehrere Arten drastisch auslöschten.
Die ersten Tapire, wie beispielsweise Heptodon , traten im frühen Eozän auf. [ 42 ] Sie ähnelten den heutigen Tapiren sehr, waren aber etwa halb so groß und besaßen keinen Rüssel. Die ersten echten Tapire erschienen im Oligozän . Im Miozän waren Gattungen wie Miotapirus von den heutigen Arten kaum noch zu unterscheiden. Man geht davon aus, dass sich asiatische und amerikanische Tapire vor etwa 20 bis 30 Millionen Jahren voneinander abspalteten; im Zuge des Großen Amerikanischen Faunenaustauschs wanderten Tapire vor etwa 3 Millionen Jahren von Nordamerika nach Südamerika . [ 43 ]
Unpaarhufer waren während des gesamten Oligozäns die dominierende Gruppe großer Landtiere. Mit dem Aufkommen von Gräsern im Miozän (vor etwa 20 Millionen Jahren) änderte sich dies jedoch grundlegend: Die Paarhufer mit ihren komplexeren Mägen konnten sich besser an eine grobe, nährstoffarme Ernährung anpassen und gewannen bald an Bedeutung. Dennoch überlebten und gediehen viele Unpaarhuferarten bis zum späten Pleistozän (vor etwa 10.000 Jahren), als sie durch die Jagd des Menschen und die Veränderung ihres Lebensraums unter Druck gerieten.
Evolution der Paarhufer

Man geht davon aus, dass sich die Paarhufer aus einer kleinen Gruppe der Condylarthi, den Arctocyonidae , entwickelten . Diese waren unspezialisierte, oberflächlich waschbär- bis bärenähnliche Allesfresser des frühen Paläozäns (vor etwa 65 bis 60 Millionen Jahren). Sie besaßen relativ kurze Gliedmaßen ohne die für ihre Verwandten typischen Spezialisierungen (z. B. reduzierte Seitenzehen, verschmolzene Knochen und Hufe) [ 34 ] und lange, schwere Schwänze. Aufgrund ihrer primitiven Anatomie war es unwahrscheinlich, dass sie Beutetiere verfolgen konnten. Doch mit ihren kräftigen Proportionen, Krallen und langen Eckzähnen könnten sie kleinere Tiere in Überraschungsangriffen überwältigt haben. [ 34 ] Offenbar entwickelten sich diese Säugetiere bald in zwei getrennte Linien: die Mesonychier und die Paarhufer.

Die ersten Paarhufer ähnelten den heutigen Zwergziegen oder Schweinen: kleine, kurzbeinige Tiere, die Blätter und weiche Pflanzenteile fraßen . Im späten Eozän (vor 46 Millionen Jahren) hatten sich bereits die drei modernen Unterordnungen entwickelt: Suina ( Schweine ), Tylopoda ( Kamele ) und Ruminantia ( Ziegen und Rinder ). Dennoch waren Paarhufer zu dieser Zeit alles andere als dominant: Unpaarhufer waren deutlich erfolgreicher und viel zahlreicher. Paarhufer überlebten in ökologischen Nischen, meist in Randgebieten , und vermutlich entwickelten sie zu dieser Zeit ihre komplexen Verdauungssysteme , die es ihnen ermöglichten, sich von minderwertiger Nahrung zu ernähren. Während die meisten Paarhufer die von ausgestorbenen Unpaarhufern hinterlassenen ökologischen Nischen einnahmen, wagte sich eine Linie der Paarhufer ins Meer vor.
Evolution der Wale

Die traditionelle Theorie der Wal-Evolution besagte, dass Wale mit den Mesonychiern verwandt seien . Diese Tiere besaßen ungewöhnliche, dreieckige Zähne, die denen primitiver Wale sehr ähnlich waren. Daher nahmen Wissenschaftler lange Zeit an, dass Wale sich aus einer Form der Mesonychier entwickelten. Heute gehen viele Wissenschaftler davon aus, dass Wale vom selben Stamm abstammen wie die Flusspferde. Diese hypothetische Vorfahrengruppe spaltete sich wahrscheinlich vor etwa 54 Millionen Jahren in zwei Zweige auf . [ 9 ] Ein Zweig entwickelte sich zu den Walen , möglicherweise beginnend vor etwa 52 Millionen Jahren mit dem Urwal Pakicetus und anderen frühen Wal-Vorfahren, die zusammenfassend als Archaeoceti bezeichnet werden und sich schließlich zu den vollständig im Wasser lebenden Walen entwickelten . [ 44 ] Der andere Zweig entwickelte sich zu den Anthracotherien , einer großen Familie vierbeiniger Tiere. Die frühesten Vertreter dieser Gruppe im späten Eozän ähnelten wohl schlanken Flusspferden mit vergleichsweise kleinen und schmalen Köpfen. Alle Zweige der Anthracotherien, mit Ausnahme desjenigen, aus dem die Hippopotamidae hervorgingen , starben im Pliozän aus, ohne Nachkommen zu hinterlassen. [ 45 ]
Die Familie der Raoellidae gilt als die engste Verwandtschaft der Paarhufer mit den Walen. [ 46 ] [ 47 ] Folglich gehen neuere Theorien zur Walevolution davon aus, dass Wale und ihre Vorfahren der Prädation und nicht der Konkurrenz entkamen, indem sie sich langsam an den Ozean anpassten. [ 48 ] [ 49 ] [ 50 ]
Mesonychische Evolution


Mesonychier wurden als „Wölfe auf Hufen“ beschrieben und waren die ersten bedeutenden Säugetierprädatoren, die im Paläozän auftraten. [ 51 ] Frühe Mesonychier besaßen fünf Zehen an den Füßen, die beim Gehen wahrscheinlich flach auf dem Boden auflagen ( Plantigradgang ). Spätere Mesonychier hatten hingegen vier Zehen, die in kleinen Hufen endeten und zunehmend besser an das Laufen angepasst waren. Wie laufende Vertreter der Paarhufer bewegten sich Mesonychier (z. B. Pachyaena ) auf ihren Zehen fort ( Zehengänger ). [ 51 ] Am Ende des Eozäns ging es den Mesonychiern sehr schlecht; nur eine Gattung, Mongolestes , [ 52 ] überlebte bis ins frühe Oligozän , da sich das Klima änderte und die besser angepassten Creodonten eine starke Konkurrenz darstellten .
Eigenschaften

Huftiere weisen aufgrund sexueller Selektion und ökologischer Veränderungen eine hohe Diversität auf; den meisten Huftieren fehlt das Schlüsselbein . [ 53 ] Landhuftiere sind überwiegend Pflanzenfresser, einige grasen auch. Es gibt jedoch Ausnahmen: Schweine, Pekaris, Flusspferde und Ducker ernähren sich omnivor. Wale sind die einzigen rezenten Huftiere mit einer rein fleischfressenden Ernährung. Bartenwale fressen im Verhältnis zu ihrer Körpergröße deutlich kleinere Tiere wie kleine Fischarten und Krill ; Zahnwale hingegen können je nach Art ein breites Spektrum an Beutetieren verzehren: Tintenfische , Fische, Haie und andere Säugetierarten wie Robben und andere Wale. Huftiere haben alle Ökosysteme der Erde besiedelt, von Gebirgen bis in die Tiefen des Ozeans , von Grasland bis Wüsten , und einige wurden vom Menschen domestiziert .
Anatomie
Bei den Huftieren wurden spezielle Anpassungen entwickelt, insbesondere im Bereich der Schädelanhänge, des Gebisses und der Beinmorphologie, einschließlich der Modifizierung des Sprungbeins (eines der Sprungbeinknochen am Ende des Unterschenkels) mit einem kurzen, robusten Kopf.
Hufe

Der Huf ist die Spitze der Zehe eines Huftiers und wird durch eine dicke Hornschicht ( Keratin ) verstärkt. Er besteht aus einer harten oder gummiartigen Sohle und einer harten Wand, die durch einen dicken Nagel gebildet wird , der sich um die Zehenspitze wickelt. Sowohl die Sohle als auch der Rand der Hufwand tragen normalerweise das Gewicht des Tieres. Hufe wachsen kontinuierlich und nutzen sich durch ständige Beanspruchung ab. Bei den meisten modernen Huftieren sind Speiche und Elle entlang der Vordergliedmaße miteinander verwachsen; frühe Huftiere wie die Arctocyoniden besaßen diese einzigartige Skelettstruktur nicht. [ 54 ] Die Verwachsung von Speiche und Elle verhindert, dass ein Huftier seine Vordergliedmaße drehen kann. Da diese Skelettstruktur bei Huftieren keine spezifische Funktion hat, gilt sie als homologes Merkmal, das Huftiere mit anderen Säugetieren teilen. Dieses Merkmal wurde vermutlich von einem gemeinsamen Vorfahren vererbt. Die umgangssprachlichen Bezeichnungen für die beiden Huftierordnungen basierten zwar auf der Zehenanzahl ihrer Mitglieder („Unpaarhufer“ für die Unpaarhufer und „Gleichhufer“ für die Paarhufer), doch ist dies kein korrekter Grund für ihre Einteilung. Tapire haben vier Zehen an den Vorderfüßen, gehörten aber dennoch zur Ordnung der Unpaarhufer; Pekaris und moderne Wale gehörten zur Ordnung der Gleichhufer, obwohl Pekaris drei Zehen an den Vorderfüßen haben. Wale stellen ein extremes Beispiel dar, da sie Flossen statt Hufe besitzen. Wissenschaftler klassifizierten sie daher anhand der Gewichtsverteilung auf ihre Zehen.
Unpaarhufer besitzen einen mesaxonischen Fuß, was bedeutet, dass das Gewicht dank der ebenen Symmetrie ihrer Füße auf der dritten Zehe aller Beine verteilt ist. Im Vergleich zum gemeinsamen Vorfahren hat sich die Anzahl der Zehen reduziert, wie beispielsweise bei Pferden mit ihren einzelnen Hufen. Dies führte zu einer alternativen Bezeichnung für die Unpaarhufer: dem heute fast veralteten Begriff Mesaxonia. Unpaarhufer waren nicht die einzige Säugetierlinie, die dieses Merkmal entwickelte; auch Meridiungulaten haben mehrfach mesaxonische Füße entwickelt.
Landlebende Paarhufer besitzen einen paraxonischen Fuß, d. h. das Gewicht verteilt sich auf die dritte und vierte Zehe aller Beine. Die meisten dieser Säugetiere haben gespaltene Hufe, wobei sich weiter oben am Fuß zwei kleinere, sogenannte Afterkrallen , befinden. Die frühesten Wale (die Archaeoceten ) wiesen dieses Merkmal ebenfalls auf und besaßen darüber hinaus sowohl ein Sprungbein als auch ein Würfelbein im Sprunggelenk, die weitere diagnostische Merkmale der Paarhufer darstellten. [ 55 ]

Bei modernen Walen haben sich die Vordergliedmaßen zu Brustflossen entwickelt , während die Hintergliedmaßen nach innen verlagert und reduziert sind. Gelegentlich führen die Gene, die für längere Extremitäten kodieren, dazu, dass ein moderner Wal Miniaturbeine entwickelt (Atavismus ) . Die Hauptfortbewegungsart ist eine Auf- und Abwärtsbewegung mit der Schwanzflosse, der sogenannten Fluke , die dem Vortrieb dient , während die Brustflossen zusammen mit dem gesamten Schwanzbereich die Richtungssteuerung ermöglichen. Alle modernen Wale besitzen trotz ihres äußerlichen Erscheinungsbildes noch immer Zehen.
Zähne
Die meisten Huftiere haben reduzierte Eckzähne und spezialisierte Backenzähne entwickelt , darunter bunodonte (niedrige, abgerundete Höcker) und hypsodonte (hochkronige) Zähne. Die Entwicklung der Hypsodontie ist von besonderem Interesse, da diese Anpassung eng mit der Ausbreitung von Grasland während des Miozäns vor etwa 25 Millionen Jahren verbunden war. Mit dem Rückgang der Waldökosysteme breiteten sich Graslandschaften aus und eröffneten Säugetieren neue ökologische Nischen . Viele Huftiere stellten von Laub- auf Weideernährung um, und möglicherweise bedingt durch den abrasiven Siliziumdioxidgehalt im Gras wurde Hypsodontie weit verbreitet. Neuere Erkenntnisse bringen die Evolution der Hypsodontie jedoch eher mit offenen, sandigen Lebensräumen als mit dem Gras selbst in Verbindung. Dies wird als „ Sand-statt-Gras-Hypothese “ bezeichnet. [ 56 ]
Manche Huftiere besitzen keine oberen Schneidezähne, sondern stattdessen eine Zahnplatte , die ihnen beim Fressen hilft. [ 57 ] [ 58 ] Beispiele hierfür sind Kamele, Wiederkäuer und einige Zahnwale. Bemerkenswert ist, dass moderne Bartenwale stattdessen Barten besitzen , um Krill aus dem Wasser zu filtern. Am anderen Ende des Spektrums haben sich Zähne als Waffen oder zur Zurschaustellung von Balzverhalten entwickelt, wie man es bei Schweinen und Pekaris, einigen Hirscharten, Moschushirschen, Flusspferden, Schnabelwalen und dem Narwal mit seinem langen Eckzahn beobachten kann. [ 59 ]
Schädelanhängsel

Huftiere haben eine Vielzahl von Schädelanhängen entwickelt, die bei Hirschen (mit Ausnahme des Moschustiers) vorkommen . Bei Rindern und Antilopen variieren Größe und Form der Hörner stark, die Grundstruktur besteht jedoch stets aus zwei einfachen, unverzweigten Knochenvorsprüngen, die oft spiralförmig, gedreht oder geriffelt sind und jeweils von einer permanenten Keratinschicht umgeben sind . Die einzigartige Hornstruktur ist das einzige eindeutige morphologische Merkmal der Hornträger, das sie von anderen Huftieren unterscheidet . [ 60 ] [ 61 ] Die Hornentwicklung bei Männchen wird mit sexueller Selektion in Verbindung gebracht, [ 62 ] [ 63 ] während das Vorhandensein von Hörnern bei Weibchen wahrscheinlich auf natürliche Selektion zurückzuführen ist. [ 62 ] [ 64 ] Die Hörner der Weibchen sind in der Regel kleiner als die der Männchen und weisen mitunter eine andere Form auf. Man geht davon aus, dass sich die Hörner weiblicher Rinder zur Verteidigung gegen Fressfeinde oder zur Kennzeichnung von Territorialität entwickelt haben, da nicht-territoriale Weibchen, die sich durch Tarnung vor Fressfeinden schützen können , oft keine Hörner besitzen. [ 64 ]
Die Hörner des Nashorns bestehen, anders als die anderer gehörnter Säugetiere, ausschließlich aus Keratin. Diese Hörner sitzen auf dem Nasenrücken des Schädels des Tieres.
Geweihe sind ein einzigartiges Merkmal der Hirsche und finden sich hauptsächlich bei Männchen: Die einzigen weiblichen Hirsche mit Geweihen sind Karibus und Rentiere , deren Geweihe normalerweise kleiner sind als die der Männchen. Dennoch können fortpflanzungsfähige Hirschkühe anderer Hirscharten gelegentlich Geweihe ausbilden, meist aufgrund eines erhöhten Testosteronspiegels. [ 65 ] Jedes Geweih wächst von einem Ansatzpunkt am Schädel, dem sogenannten Geweihstiel. Während des Wachstums ist das Geweih von einer stark durchbluteten Haut , dem Bast, bedeckt, die den wachsenden Knochen mit Sauerstoff und Nährstoffen versorgt. [ 66 ] Geweihe gelten als eines der ausgeprägtesten Beispiele für sekundäre Geschlechtsmerkmale des Männchens im Tierreich [ 67 ] und wachsen schneller als jeder andere Säugetierknochen. [ 68 ] Das Wachstum beginnt an der Spitze, zunächst als Knorpel , der dann mineralisiert und zu Knochen wird. Sobald das Geweih seine endgültige Größe erreicht hat, fällt der Bast ab und der Knochen stirbt ab. Diese abgestorbene Knochenstruktur stellt das ausgewachsene Geweih dar. In den meisten Fällen wird der Knochen an der Basis durch Osteoklasten abgebaut , und das Geweih fällt schließlich ab. [ 66 ] Aufgrund ihres schnellen Wachstums stellen Geweihe einen erheblichen Nährstoffbedarf für Hirsche dar und können daher ein verlässlicher Indikator für Stoffwechseleffizienz und Nahrungssuche sein. [ 69 ]
Ossicone sind hornartige (oder geweihartige) Auswüchse auf den Köpfen von Giraffen und männlichen Okapis . Sie ähneln den Hörnern von Antilopen und Rindern , mit dem Unterschied , dass sie aus verknöchertem Knorpel bestehen [ 70 ] und dass die Ossicone von Haut und Fell anstatt von Horn bedeckt sind .
Die Schädelanhänge der Gabelböcke sind einzigartig. Jedes „Horn“ des Gabelbocks besteht aus einer schlanken, seitlich abgeflachten Knochenlamelle, die aus den Stirnbeinen des Schädels wächst und einen permanenten Kern bildet. Wie bei den Giraffenartigen (Giraffidae) ist der Knochenkern von Haut bedeckt, die sich beim Gabelbock jedoch zu einer Hornscheide entwickelt, die jährlich abgeworfen und erneuert wird. Im Gegensatz zu den Hörnern der Hornträger (Bovidae) sind die Hornscheiden des Gabelbocks verzweigt, wobei jede Scheide einen nach vorn gerichteten Fortsatz besitzt (daher der Name Gabelbock). Die Hörner der Männchen sind gut entwickelt.
Siehe auch
Anmerkungen
Referenzen
- ^ a b c Peter J. Waddell, Hirohisa Kishino, Rissa Ota (2001). „Eine phylogenetische Grundlage für die vergleichende Säugetiergenomik“. Genominformatik 12 : 141–154, doi : 10.11234/gi1990.12.141 .
- Cooper , LN; Seiffert, ER; Clementz, M.; Madar, SI; Bajpai, S .; Hussain, ST; Thewissen, JGM (2014-10-08). „Anthracobuniden aus dem mittleren Eozän Indiens und Pakistans sind Stammgruppen der Unpaarhufer“ . PLOS ONE . 9 ( 10 ) e109232. Bibcode : 2014PLoSO...9j9232C . doi : 10.1371/ journal.pone.0109232 . PMC 4189980. PMID 25295875 .
- ^ Irwin, DM und Wilson, AC (1993). „Grenzen molekularer Methoden zur Erforschung der Phylogenie von Säugetieren, insbesondere im Hinblick auf die Stellung der Elefanten“. In: FS Szalay, MJ Novacek und MC McKenna (Hrsg.), Phylogenie der Säugetiere: Plazentatiere . S. 257–267, Springer-Verlag, New York.
- ^ a b de Queiroz, K.; Cantino, PD; Gauthier, JA, Hrsg. (2020). " Ungulata C. Linnaeus 1766 [JD Archibald], konvertierter Kladenname". Phylonyms: A Companion to the PhyloCode . Boca Raton: CRC Press. S. 943–947 . ISBN 978-1-138-33293-5Die
- ^ ein b „Ungulata“ . RegNum . Abgerufen am 15. August 2025 .
- ^ McKenna, MC (1975). „Toward a phylogenetic classification of the Mammalia“. In: Luckett, WP; Szalay, FS (Hrsg.). Phylogeny of the primates: a multidisciplinary approach (Proceedings of WennerGren Symposium no. 61, Burg Wartenstein, Österreich, 6.–14. Juli 1974) . New York: Plenum. S. 21–46 . doi : 10.1007/978-1-4684-2166-8_2 . ISBN 978-1-4684-2168-2Die
- ^ Gheerbrant, Emmanuel; Filippo, Andrea; Schmitt, Arnaud (2016). „Konvergenz afrotherischer und lausiatherischer Huftier-ähnlicher Säugetiere: Erste morphologische Belege aus dem Paläozän Marokkos“ . PLOS ONE . 11 (7) e0157556. Bibcode : 2016PLoSO..1157556G . doi : 10.1371/journal.pone.0157556 . PMC 4934866. PMID 27384169 .
- ^ a b Püschel, Hans P; Shelley, Sarah L; Williamson, Thomas E; Perini, Fernando A; Wible, John R; Brusatte, Stephen L (2024-09-02). „Eine neue, auf dem Gebiss basierende Phylogenie der Litopterna (Mammalia: Placentalia) und der ‚archaischen‘ südamerikanischen Huftiere“ . Zoological Journal of the Linnean Society . 202 (1) zlae095. doi : 10.1093/zoolinnean/zlae095 . ISSN 0024-4082 .
- ^ a b Ursing, BM; Arnason, U. (1998). „Analysen mitochondrialer Genome stützen stark eine Nilpferd-Wal-Klade“ . Proceedings of the Royal Society B. 265 ( 1412): 2251–5 . Bibcode : 1998PBioS.265.2251U . doi : 10.1098/rspb.1998.0567 . PMC 1689531. PMID 9881471 .
- ^ „Online Etymology Dictionary“ . www.etymonline.com . Abgerufen am 6. Juni 2022 .
- ^ Asher, RJ; Bennet, N; Lehmann, T (2009). „Das neue Rahmenkonzept zum Verständnis der Evolution der Plazentatiere“ . BioEssays . 31 ( 8): 853–864 . Bibcode : 2009BiEss..31..853A . doi : 10.1002/bies.200900053 . PMID 19582725. S2CID 46339675 .
- ^ Tabuce, R.; Marivaux, L.; Adaci, M.; Bensalah, M.; Hartenberger, JL; et al. (2007). „Frühe tertiäre Säugetiere aus Nordafrika untermauern die molekulare Afrotheria-Klade“ . Proceedings of the Royal Society B. 274 ( 1614): 1159–1166 . Bibcode : 2007PBioS.274.1159T . doi : 10.1098 / rspb.2006.0229 . PMC 2189562. PMID 17329227 .
- ^ Seiffert, E. (2007). „Eine neue Schätzung der Afrotheria-Phylogenie basierend auf der simultanen Analyse genomischer, morphologischer und fossiler Belege“ . BMC Evol Biol . 7 (1): 13. Bibcode : 2007BMCEE...7..224S . doi : 10.1186/1471-2148-7-224 . PMC 2248600. PMID 17999766 .
- ^ Sanchez-Villagra, MR; Narita, Y.; Kuratani, S. (2007). „Anzahl der thorakolumbalen Wirbel: die erste skelettale Synapomorphie bei afrotherischen Säugetieren“. Syst Biodivers . 5 (1): 1–17 . Bibcode : 2007SyBio...5Q...1S . doi : 10.1017/S1477200006002258 . S2CID 85675984 .
- ^ Springer, MS; Stanhope, MJ; Madsen, O; de Jong, WW (2004). „Moleküle festigen den Stammbaum der Plazentatiere“. Trends Ecol Evol . 19 (8): 430–438 . doi : 10.1016/j.tree.2004.05.006 . PMID 16701301. S2CID 1508898 .
- ^ Robinson, MA Yang; Fu, TJ; Ferguson-Smith, B. (2004). „Artübergreifende Chromosomenfärbung beim Goldmull und der Elefantenspitzmaus: Unterstützung für die Säugetierkladen Afrotheria und Afroinsectiphillia, nicht aber für Afroinsectivora“ . Proceedings of the Royal Society B. 271 ( 1547 ): 1477–1484 . doi : 10.1098/rspb.2004.2754 . PMC 1691750. PMID 15306319 .
- ^ Seiffert, ER; Guillon, JM (2007). „Eine neue Schätzung der Afrotheria-Phylogenie basierend auf der simultanen Analyse genomischer, morphologischer und fossiler Belege“ . BMC Evolutionary Biology . 7 (1): 13. Bibcode : 2007BMCEE...7..224S . doi : 10.1186/1471-2148-7-224 . PMC 2248600. PMID 17999766 .
- ^ Dawkins , Richard (2005). Die Geschichte unserer Vorfahren . Boston: Mariner Books. S. 195. ISBN 978-0-618-61916-0Die
- ^ a b Asher, Robert J; Helgen, Kristofer M (2010). „Nomenklatur und Phylogenie der Plazentatiere“ . BMC Evolutionary Biology . 10 (1): 102. Bibcode : 2010BMCEE..10..102A . doi : 10.1186/1471-2148-10-102 . PMC 2865478. PMID 20406454 .
- ^ a b Spaulding, Michelle; O'Leary, Maureen A.; Gatesy, John (2009). Farke, Andrew Allen (Hrsg.). „Verwandtschaftsbeziehungen der Wale (Artiodactyla) innerhalb der Säugetiere: Eine erweiterte Taxon-Auswahl verändert die Interpretation wichtiger Fossilien und der Merkmalsentwicklung“ . PLOS ONE . 4 (9) e7062. Bibcode : 2009PLoSO...4.7062S . doi : 10.1371/journal.pone.0007062 . PMC 2740860. PMID 19774069 .
- ^ Nery, MF; González, DMJ; Hoffmann, FG; Opazo, JC (2012). „Auflösung der Laurasiatheria-Phylogenie: Evidenz aus Genomdaten“. Molecular Phylogenetics and Evolution . 64 (3): 685–689 . Bibcode : 2012MolPE..64..685N . doi : 10.1016/j.ympev.2012.04.012 . PMID 22560954 .
- ^ Beck, Robin MD; Bininda-Emonds, Olaf RP; Cardillo, Marcel; Liu, Fu-Guo; Purvis, Andy (2006). „ Ein übergeordneter MRP-Superbaum der Plazentatiere“ . BMC Evolutionary Biology . 6 (1): 93. doi : 10.1186/1471-2148-6-93 . PMC 1654192. PMID 17101039 .
- Zhou , X.; Xu, S.; Xu, J.; Chen, B.; Zhou, K.; Yang, G.; et al. (2011). „Phylogenomische Analyse klärt die interordinalen Beziehungen und die rasche Diversifizierung der Laurasiatheria-Säugetiere“ . Systematic Biology . 61 (1): 150–164 . doi : 10.1093/sysbio/ syr089 . PMC 3243735. PMID 21900649 .
- ^ „Forscher verbessern den Stammbaum des Lebens der Säugetiere erheblich“ . UCR Newsroom . UC Riverside. 22. September 2011. Archiviert vom Original am 1. Oktober 2011. Abgerufen am 9. April 2021 .
- ^ Nishihara, H.; Hasegawa, M.; Okada, N. (2006). „Pegasoferae, eine unerwartete Säugetiergruppe, entdeckt durch die Untersuchung alter Retroposon-Insertionen“ . Proceedings of the National Academy of Sciences . 103 (26): 9929–9934 . Bibcode : 2006PNAS..103.9929N . doi : 10.1073/pnas.0603797103 . PMC 1479866. PMID 16785431 .
- Gatesy , J.; Geisler, J. H.; Chang, J.; Buell, C.; Berta, A.; Meredith, R. W.; Springer, M. S.; McGowen, M. R. (Februar 2013). „Ein phylogenetischer Bauplan für einen modernen Wal“. Molecular Phylogenetics and Evolution . 66 (2): 479–506 . Bibcode : 2013MolPE..66..479G . doi : 10.1016/j.ympev.2012.10.012 . PMID 23103570 .
- ^ Kim, SL; Thewissen, JG; Churchill, MM; Suydam, RS; Ketten, DR ; Clementz, MT (2014). „Einzigartige biochemische und mineralische Zusammensetzung der Gehörknöchelchen von Walen“ ( PDF) . Physiological and Biochemical Zoology . 87 (4): 576–584 . doi : 10.1086/676309 . hdl : 1912/6709 . PMID 24940922. S2CID 27076616 .
- Rose , Kenneth D. (2006). „Archaische Huftiere“. Der Beginn des Zeitalters der Säugetiere . Baltimore: Johns Hopkins University Press. ISBN 978-0-8018-9221-9Die
- ^ Jehle, Martin „Condylarthen: Archaische Huftiere“ in: Paläozäne Säugetiere der Welt
- ^ Archibald, J. David; Zhang, Yue; Harper, Tony; Cifelli, Richard L. (2011). „Protungulatum, bestätigtes Vorkommen eines ansonsten paläozänen eutherischen (plazentalen?) Säugetiers in der Kreidezeit“. Journal of Mammalian Evolution . 18 (3): 153–161 . doi : 10.1007/s10914-011-9162-1 . S2CID 16724836 .
- ^ Burger, Benjamin J. (15. Oktober 2015). Die systematische Stellung der Säbelzahn- und Hornriesen des Eozäns: Die Uintatheres (Ordnung Dinocerata) (PDF) . 75. Jahrestagung der Society of Vertebrate Paleontology. Dallas . Abgerufen am 20. Februar 2020 .Konferenzabstract (S. 99). Archiviert am 24.12.2019 in der Wayback Machine . Erläuterungen und Schlussfolgerungen: Folge 17: Systematische Stellung der Uintatheres (Ordnung Dinocerata) auf YouTube .
- ^ Sánchez-Villagra, Marcelo R. (2013). „Warum gab es weniger Beuteltiere als Plazentatiere? Zur Bedeutung von Geographie und Physiologie für die evolutionären Muster der Diversität und Disparität der Säugetiere“ (PDF) . Journal of Mammalian Evolution . 20 (4): 279–290 . doi : 10.1007/s10914-012-9220-3 . S2CID 18789008 .
- ^ Hieronymus, Tobin L. (März 2009). Osteologische Korrelate von Kopfhautstrukturen bei Amniota: Dokumentation der Evolution von Darstellungs- und Nahrungsstrukturen anhand von Fossilienfunden (Dissertation). Ohio University. S. 3. Abgerufen am 12.11.2022 .
- ^ a b c d Jehle, Martin „Condylarthen: Archaische Huftiere“ in Paläozäne Säugetiere der Welt
- ^ Savage, RJG, & Long, MR (1986). Säugetierevolution: Ein illustrierter Leitfaden . New York: Facts on File. ISBN 978-0-8160-1194-0OCLC 12949777 .
{{cite book}}: CS1 Wartung: Mehrere Namen: Autorenliste ( Link ) - ^ Benton, Michael J. (1997). Wirbeltierpaläontologie . London: Chapman & Hall. S. 343. ISBN 0-412-73810-4Die
- ^ Gheerbrant, Domning & Tassy 2005 , S. 95–6
- ^ Gingerich, Philip D. (2005). „Aquatische Anpassung und Schwimmverhalten abgeleitet aus Skelettproportionen beim miozänen Desmostylier Desmostylus “ (PDF) . Journal of Mammalian Evolution . 12 (1/2): 183–194 . doi : 10.1007/s10914-005-5719-1 . hdl : 2027.42/44971 . S2CID 7812089 .
- Shockey , B. J. & Anaya, F. (2004). „ Pyrotherium macfaddeni , sp. nov. (spätes Oligozän, Bolivien) und die Fußmorphologie der Pyrotherien“. Journal of Vertebrate Paleontology . 24 (2): 481–488 . Bibcode : 2004JVPal..24..481S . doi : 10.1671/2521 . S2CID 83680724 .
- ^ Welker, F; Collins, MJ ; Thomas, JA; Wadsley, M; Zahnspange; Cappellini, E; Turvey, ST; Reguero, M; Gelfo, JN; Kramarz, A; Burger, J; Thomas-Oates, J ; Ashford, DA; Ashton, PD; Rowsell, K; Porter, DM; Kessler, B ; Fischer, R; Baessmann, C; Kaspar, S; Olsen, JV; Kiley, P; Elliott, JA; Kelstrup, CD; Mullin, V; Hofreiter, M; Willerslev, E ; Hublin, JJ; Orlando, L; Barnes, ich; MacPhee, RD (18. März 2015). „Alte Proteine klären die Evolutionsgeschichte von Darwins südamerikanischen Huftieren auf“ . Natur . 522 (7554): 81–84 . Bibcode : 2015Natur.522...81W . doi : 10.1038/ nature14249 . hdl : 11336/14769 . PMID 25799987. S2CID 4467386 .
- ^ Palmer, D. (Hrsg.). (1999). The Marshall Illustrated Encyclopedia of Dinosaurs and Prehistoric Animals . London: Marshall Editions. S. 255. ISBN 978-1-84028-152-1Die
- ^ Ballenger, L. und Myers, P. (2001). „Familie Tapiridae“ , Animal Diversity Web . Abgerufen am 22. November 2007.
- Ashley , MV; Norman, JE; Stross, L. (1996). „Phylogenetische Analyse der Familie der Unpaarhufer (Tapiriden) anhand mitochondrialer Cytochrom-c-Oxidase-(COII)-Sequenzen“. Journal of Mammalian Evolution . 3 (4): 315–326 . doi : 10.1007/BF02077448 . S2CID 24948320 .
- ^ Boisserie, Jean-Renaud; Lihoreau, F.; Brunet, M. (Februar 2005). „Die Stellung der Hippopotamidae innerhalb der Cetartiodactyla“ . Proceedings of the National Academy of Sciences . 102 (5): 1537–1541 . Bibcode : 2005PNAS..102.1537B . doi : 10.1073/pnas.0409518102 . PMC 547867. PMID 15677331 .
- ^ „Wissenschaftler entdecken fehlendes Bindeglied zwischen Delfin, Wal und seinem nächsten Verwandten, dem Flusspferd“ . Science News Daily . 25.01.2005. Archiviert vom Original am 04.03.2007 . Abgerufen am 18.06.2007 .
- ^ Thewissen, JGM; Cooper, LN; Clementz, MT; Bajpai, S ; Tiwari, BN (2007). „Wale stammen von aquatischen Paarhufern im Eozän Indiens ab“ (PDF) . Nature . 450 (7173): 1190–1194 . Bibcode : 2007Natur.450.1190T . doi : 10.1038/nature06343 . PMID 18097400. S2CID 4416444. Archiviert vom Original (PDF) am 7. Mai 2021. Abgerufen am 20. April 2018 .
- ^ Minkel, JR (19.12.2007). „Nächster Walverwandter – ein fuchsgroßes Reh? Forscher sind sich uneins über den nächsten evolutionären Verwandten von Walen und Delfinen“ . Scientific American .
- ^ Sample, Ian (19. Dezember 2007). „Wale könnten von einem kleinen, hirschähnlichen Tier abstammen“ . Guardian Unlimited . London . Abgerufen am 21. Dezember 2007 .
- ^ Zimmer, Carl (19. Dezember 2007). „Der Webstuhl: Wale: Von so bescheidenen Anfängen…“ ScienceBlogs . Archiviert vom Original am 21.12.2007 . Abgerufen am 21.12.2007 .
- ^ Myers, PZ (19. Dezember 2007). „Pharyngula: Indohyus“ . Pharyngula . ScienceBlogs . Archiviert vom Original am 20.12.2007 . Abgerufen am 21.12.2007 .
- ^ a b Jehle, Martin „Carnivores, creodonts and carnivorous ungulates: Mammals become predators“ in Paläozän-Säugetiere der Welt
- ^ Jin, X. (2005). „Mesonychiden aus dem Lushi-Becken, Provinz Henan, China (in Chinesisch mit englischer Zusammenfassung) “ (PDF) . Vertebrata PalAsiatica . 43 (2): 151–164 .
- ^ Die illustrierte Enzyklopädie des Tierreichs . S. 7
- ^ Janis, Christine M.; Scott, Kathleen M. und Jacobs, Louis L. (1998) Evolution of Tertiary Mammals of North America , Band 1. Cambridge: Cambridge University Press. S. 322-23. ISBN 9780521355193
- ^ Gingerich, PD; ul Haq, M.; Zalmout, IS; Khan, IH; Malkani, MS (Sep 2001). „Ursprung der Wale von frühen Paarhufern: Hände und Füße von Protocetidae aus dem Eozän Pakistans“ . Science . 293 ( 5538): 2239–42 . Bibcode : 2001Sci...293.2239G . doi : 10.1126/science.1063902 . PMID 11567134. S2CID 21441797 .
- ^ Jardine, Phillip E.; Janis, Christine M.; Sahney, Sarda; Benton, Michael J. (2012). „Kies statt Gras: Übereinstimmende Muster des frühen Ursprungs der Hypsodontie bei Huftieren und Glires der Great Plains“. Palaeogeography, Palaeoclimatology, Palaeoecology . 365–366 : 1–10 . Bibcode : 2012PPP...365....1J . doi : 10.1016/j.palaeo.2012.09.001 .
- ^ Rouge, Melissa (2001). „Zahnanatomie der Wiederkäuer“ . Colorado State University. Archiviert vom Original am 28. September 2011. Abgerufen am 5. Mai 2010 .
- ^ „Zahnlose Wiederkäuer, die uns so sehen, wie andere uns sehen …“ WonderQuest. Archiviert vom Original am 27. September 2011. Abgerufen am 5. Mai 2010 .
- ^ Nweeia, Martin T.; Nweeia, Frederick C.; Hauschka, Peter V.; Tyler, Ethan; Mead, James G.; Potter, Charles W.; Angnatsiak, David P.; Richard, Pierre R.; Orr, Jack R.; Black, Sandie R.; et al. (2012). „ Anatomie rudimentärer Zähne und Nomenklatur der Stoßzähne von Monodon monoceros “ . The Anatomical Record . 295 (6): 1006–1016 . doi : 10.1002/ar.22449 . PMID 22467529. S2CID 22907605 .
- ^ Bibi, F.; Bukhsianidze, M.; Gentry, A.; Geraads, D.; Kostopoulos, D.; Vrba, E. (2009). „Der Fossilienbestand und die Entwicklung von Bovidae: Stand der Technik“ . Palaeontologia Electronica . 12 (3): 10A.
- ^ Gatesy, J.; Yelon, D., DeSalle, R., Vrba, E. (1992). „Phylogenie der Bovidae (Artiodactyla, Mammalia) auf der Grundlage mitochondrialer ribosomaler DNA-Sequenzen“ . Mol. Biol. Evol . 9 (3): 433–446 . doi : 10.1093/oxfordjournals.molbev.a040734 . PMID 1584013 .
{{cite journal}}: CS1 Wartung: Mehrere Namen: Autorenliste ( Link ) - ^ a b Bro-Jørgensen, J. (2007). „Die Intensität der sexuellen Selektion sagt die Waffengröße bei männlichen Rindern voraus“ . Evolution . 61 (6): 1316–1326 . Bibcode : 2007Evolu..61.1316B . doi : 10.1111/ j.1558-5646.2007.00111.x . PMID 17542842. S2CID 24278541 .
- ^ Ezenwa, V.; Jolles, A. (2008). „Hörner zeigen ehrlich Parasitenbefall bei männlichen und weiblichen Afrikanischen Büffeln an“. Animal Behaviour . 75 (6): 2013–2021 . Bibcode : 2008AnBeh..75.2013E . doi : 10.1016/j.anbehav.2007.12.013 . S2CID 49240459 .
- ^ a b Stankowich, T.; Caro, T. (2009). „Evolution of weaponry in female bovids“ . Proceedings of the Royal Society B. 276 ( 1677): 4329–34 . Bibcode : 2009PBioS.276.4329S . doi : 10.1098 / rspb.2009.1256 . PMC 2817105. PMID 19759035 .
- ^ Hirschkuh mit Geweih ( Archiviert am 29.02.2012 in der Wayback Machine)
- ^ a b Hall, Brian K. (2005). „Geweih“ . Knochen und Knorpel: Entwicklungsbiologie und Evolution des Skeletts . Academic Press. S. 103–114 . ISBN 978-0-12-319060-4Abgerufen am 08.11.2010 .
- ^ Malo, AF; Roldan, ERS; Garde, J.; Soler, AJ; Gomendio, M. (2005). „Geweihe geben ehrlich Auskunft über Spermienproduktion und -qualität“ . Proceedings of the Royal Society B. 272 ( 1559): 149–157 . doi : 10.1098/rspb.2004.2933 . PMC 1634960. PMID 15695205 .
- ^ Whitaker, John O.; Hamilton, William J. Jr. (1998). Säugetiere der östlichen Vereinigten Staaten . Cornell University Press. S. 517. ISBN 978-0-8014-3475-4Abgerufen am 08.11.2010 .
- ^ Ditchkoff, SS; Lochmiller, RL; Masters, RE; Hoofer, SR; Den Bussche, RA Van (2001). „MHC-assoziierte Variation sekundärer Geschlechtsmerkmale beim Weißwedelhirsch (Odocoileus virginianus): Hinweise auf die Verbreitung guter Gene“ . Evolution . 55 ( 3): 616–625 . doi : 10.1111/j.0014-3820.2001.tb00794.x . PMID 11327168. S2CID 10418779 .
- ^ „Der Nashville Zoo in Grassmere – Tiere :: Massai-Giraffe“. Der Nashville Zoo in Grassmere, o. J. Web. 15. Feb. 2010. „Der Nashville Zoo in Grassmere – Tiere :: Massai-Giraffe“ . Archiviert vom Original am 20.12.2010 . Abgerufen am 10.02.2013 .
Externe Links
- Ihr Leitfaden zu den Huftieren der Welt – Die ultimative Huftierseite
- . Encyclopædia Britannica (11. Aufl.). 1911.

