Archaea ( / ɑːr ˈ k iː ə / - KEE -ə) ist eineDomänevonOrganismen. Traditionell umfasste die Domäne Archaea nur ihreprokaryotischenVertreter, doch inzwischen hat sich gezeigt, dass sie paraphyletisch ist , da EukaryotenbekanntermaßenausArchaea hervorgegangen sind. Obwohl die Domäne ArchaeakladistischgesehenEukaryoten einschließt, bezieht sich der BegriffArchaea ( Singular:Archaeon/ ɑːrˈkiːɒn / , ausdem Altgriechischenἀρχαῖον arkhaîon , „alt“ ) im Englischen im Allgemeinen immer noch spezifisch auf die prokaryotischen Vertreter der Archaea .
Archaeen wurden ursprünglich als Bakterien klassifiziert und erhielten den Namen Archaebakterien ( / ˌ ɑːr k i b æ k ˈ t ɪər i ə / , im Reich der Archaebakterien ), dieser Begriff ist jedoch außer Gebrauch gekommen. [ 5 ] Archaeenzellen weisen einzigartige Eigenschaften auf, die sie von Bakterien und Eukaryoten unterscheiden , darunter: Zellmembranen aus Ether-verknüpften Lipiden; Stoffwechselprozesse wie die Methanogenese ; und eine einzigartige Bewegungsstruktur, das Archaellum . [ 6 ] Archaeen werden weiter in mehrere anerkannte Phyla unterteilt . Die Klassifizierung gestaltet sich schwierig, da die meisten nicht im Labor isoliert und nur anhand ihrer Gensequenzen in Umweltproben identifiziert wurden . Es wurde nicht beobachtet, dass sie Endosporen bilden .
Archaeen ähneln Bakterien oft in Größe und Form, obwohl einige wenige sehr unterschiedliche Formen aufweisen, wie beispielsweise die flachen, quadratischen Zellen von Haloquadratum walsbyi . [ 7 ] Trotzdem besitzen Archaeen Gene und mehrere Stoffwechselwege , die enger mit denen von Eukaryoten verwandt sind, insbesondere hinsichtlich der an Transkription und Translation beteiligten Enzyme . Andere Aspekte der archaeellen Biochemie sind einzigartig, wie beispielsweise ihre Abhängigkeit von Etherlipiden in ihren Zellmembranen [ 8 ] , einschließlich Archaeolen . Archaeen nutzen vielfältigere Energiequellen als Eukaryoten, von organischen Verbindungen wie Zuckern über Ammoniak und Metallionen bis hin zu Wasserstoffgas . Die salztoleranten Halobakterien nutzen Sonnenlicht als Energiequelle, und andere Archaeenarten fixieren Kohlenstoff (Autotrophie), aber im Gegensatz zu Cyanobakterien ist keine bekannte Archaeenart bekannt, die beides tut. Archaeen vermehren sich ungeschlechtlich durch Zweiteilung , Fragmentierung oder Knospung . Im Gegensatz zu Bakterien bilden keine bekannten Archaeen-Arten Endosporen . Die ersten beobachteten Archaeen waren Extremophile , die in extremen Umgebungen wie heißen Quellen und Salzseen ohne andere Organismen lebten. Verbesserte molekulare Nachweismethoden führten zur Entdeckung von Archaeen in nahezu allen Lebensräumen , darunter Böden [ 9 ] , Ozeane und Feuchtgebiete . Archaeen sind in den Ozeanen besonders zahlreich, und die Archaeen im Plankton gehören möglicherweise zu den häufigsten Organismengruppen der Erde.
Archaeen sind ein wesentlicher Bestandteil des Lebens auf der Erde . Sie gehören zur Mikrobiota aller Organismen. Im menschlichen Mikrobiom spielen sie eine wichtige Rolle im Darm , im Mund und auf der Haut. [ 10 ] Ihre morphologische, metabolische und geografische Vielfalt ermöglicht es ihnen, vielfältige ökologische Funktionen zu erfüllen: Kohlenstofffixierung, Stickstoffkreislauf , Umsatz organischer Verbindungen und die Aufrechterhaltung mikrobieller symbiotischer und syntropher Gemeinschaften, zum Beispiel. [ 9 ] [ 11 ] Bis 2024 wurde nur eine einzige Archaeenart als parasitär identifiziert; [ 12 ] viele sind mutualistisch oder kommensal , wie beispielsweise die Methanogene (Methanproduzenten), die den Magen-Darm-Trakt von Menschen und Wiederkäuern besiedeln , wo ihre große Anzahl die Verdauung fördert . Methanogene werden in der Biogasproduktion und der Abwasserbehandlung eingesetzt , während die Biotechnologie Enzyme von extremophilen Archaeen nutzt, die hohen Temperaturen und organischen Lösungsmitteln standhalten .
Entdeckung und Klassifizierung
Frühes Konzept

Im Großteil des 20. Jahrhunderts wurden Prokaryoten als eine einzige Organismengruppe betrachtet und anhand ihrer Biochemie , Morphologie und ihres Stoffwechsels klassifiziert . Mikrobiologen versuchten, Mikroorganismen anhand der Struktur ihrer Zellwände , ihrer Form und der von ihnen aufgenommenen Substanzen zu klassifizieren. [ 13 ] 1965 schlugen Emile Zuckerkandl und Linus Pauling [ 14 ] stattdessen vor, die Gensequenzen verschiedener Prokaryoten zu verwenden, um deren Verwandtschaftsverhältnisse zu ermitteln. Dieser phylogenetische Ansatz ist heute die gängigste Methode. [ 15 ] Die ersten Archaeen, die isoliert und in Reinkultur gezüchtet wurden, waren methanproduzierende Arten der Gattungen Methanobacterium und Methanococcus in den 1930er und 1940er Jahren, obwohl sie damals als Bakterien klassifiziert wurden. [ 16 ]
Archaeen wurden 1977 von Carl Woese und George E. Fox anhand ihrer ribosomalen RNA -Gene (rRNA) erstmals getrennt von Bakterien klassifiziert. [ 17 ] (Damals waren nur die Methanogene bekannt.) Sie nannten diese Gruppen die Urreiche der Archaebakterien und Eubakterien, obwohl andere Forscher sie als Reiche oder Unterreiche behandelten. Woese und Fox lieferten die ersten Beweise dafür, dass Archaebakterien eine eigene Abstammungslinie bilden: 1. das Fehlen von Peptidoglykan in ihren Zellwänden, 2. zwei ungewöhnliche Coenzyme und 3. die Ergebnisse der 16S-rRNA -Gensequenzierung. Um diesen Unterschied zu verdeutlichen, schlugen Woese, Otto Kandler und Mark Wheelis später eine Neuklassifizierung der Organismen in drei damals als natürlich angesehene Domänen vor, das sogenannte Drei-Domänen-System : Eukaryoten , Bakterien und Archaeen. [ 18 ] Dies ist heute als Woes'sche Revolution bekannt . [ 19 ]
Der Begriff Archaea stammt vom altgriechischen ἀρχαῖα und bedeutet „alte Dinge“ [ 20 ]. Die ersten Vertreter der Domäne Archaea waren Methanogene , und man nahm an, ihr Stoffwechsel spiegele die Uratmosphäre der Erde und das hohe Alter der Organismen wider. Mit der Erforschung neuer Lebensräume wurden jedoch weitere Organismen entdeckt. Auch extrem halophile [ 21 ] und hyperthermophile Mikroben [ 22 ] wurden zu den Archaea gezählt. Lange Zeit galten Archaea als Extremophile, die ausschließlich in extremen Lebensräumen wie heißen Quellen und Salzseen vorkommen . Doch Ende des 20. Jahrhunderts wurden Archaea auch in nicht-extremen Umgebungen nachgewiesen. Heute sind sie als große und vielfältige Organismengruppe bekannt, die in der Natur weit verbreitet ist. [ 23 ] Diese neue Erkenntnis über die Bedeutung und Allgegenwärtigkeit von Archaeen beruht auf der Anwendung der Polymerase-Kettenreaktion (PCR) zum Nachweis von Prokaryoten in Umweltproben (wie Wasser oder Boden) durch Vervielfältigung ihrer ribosomalen Gene. Dies ermöglicht den Nachweis und die Identifizierung von Organismen, die nicht im Labor kultiviert werden konnten. [ 24 ] [ 25 ]
Einstufung

Die Klassifizierung der Archaeen und der Prokaryoten im Allgemeinen ist ein sich rasch entwickelndes und kontrovers diskutiertes Forschungsgebiet. Aktuelle Klassifizierungssysteme zielen darauf ab, Archaeen in Gruppen von Organismen einzuteilen, die strukturelle Merkmale und gemeinsame Vorfahren teilen. [ 26 ] Diese Klassifizierungen basieren maßgeblich auf der Sequenzierung ribosomaler RNA- Gene, um Verwandtschaftsverhältnisse zwischen Organismen aufzudecken ( molekulare Phylogenetik ). [ 27 ] Die meisten kultivierbaren und gut untersuchten Archaeenarten gehören zu zwei Hauptreichen, den Methanobacteriati und den Thermoproteati (ehemals TACK). Weitere Gruppen wurden vorläufig geschaffen, wie beispielsweise die ungewöhnliche Art Nanoarchaeum equitans – entdeckt im Jahr 2003 und zunächst einem eigenen Stamm, den Nanoarchaeota, zugeordnet ( 2023 in Nanobdellota umbenannt [ 28 ] ). [ 29 ] Ein neues Phylum „ Korarchaeota “ (jetzt Thermoproteota ) [ 2 ] wurde ebenfalls vorgeschlagen. Es umfasst eine kleine Gruppe ungewöhnlicher thermophiler Arten, die Merkmale beider Hauptstämme aufweisen. [ 30 ] [ 31 ] Andere nachgewiesene Archaeenarten sind nur entfernt mit diesen Gruppen verwandt, wie beispielsweise die archaealen acidophilen Nanoorganismen der Richmond Mine (ARMAN, bestehend aus Micrarchaeota und Parvarchaeota), die 2006 entdeckt wurden [ 32 ] und zu den kleinsten bekannten Organismen zählen. [ 33 ]
Ein Superphylum – „TACK“ (heute Reich Thermoproteati ) – zu dem die Thaumarchaeota (heute Nitrososphaerota ), „ Augarchaeota “, Crenarchaeota (heute Thermoproteota) und „Korarchaeota“ (heute Thermoproteota) gehören [ 2 ] , wurde 2011 als mit dem Ursprung der Eukaryoten verwandt vorgeschlagen. [ 34 ] Im Jahr 2017 wurde das neu entdeckte und neu benannte Superphylum „Asgard“ (heute Reich Promethearchaeati ) als enger mit dem ursprünglichen Eukaryoten verwandt und als Schwestergruppe der Thermoproteati/„TACK“ vorgeschlagen. [ 35 ]
Im Jahr 2013 wurde das Superphylum „DPANN“ (heute Reich Nanobdellati) vorgeschlagen, um „Nanoarchaeota“, „ Nanohaloarchaeota “, die archaealen acidophilen Nanoorganismen der Richmond Mine (ARMAN, bestehend aus „ Micrarchaeota “ und „ Parvarchaeota “) sowie andere ähnliche Archaeen zu gruppieren. Dieses archaeale Superphylum umfasst mindestens zehn verschiedene Linien und schließt Organismen mit extrem kleinen Zell- und Genomgrößen sowie begrenzten Stoffwechselkapazitäten ein. Daher könnten Nanobdellati/„DPANN“ Mitglieder umfassen, die obligat auf symbiotische Interaktionen angewiesen sind, und möglicherweise sogar neuartige Parasiten. Andere phylogenetische Analysen ergaben jedoch, dass Nanobdellati/„DPANN“ keine monophyletische Gruppe bildet und die scheinbare Gruppierung durch Long Branch Attraction (LBA) verursacht wird , was darauf hindeutet, dass all diese Linien zu den Methanobacteriati gehören. [ 36 ] [ 37 ]
Phylogenie
Laut Tom A. Williams et al. 2017 [ 38 ] , Castelle & Banfield (2018) [ 39 ] und GTDB- Version 11-RS232 (15. April 2026) [ 40 ] [ 41 ] [ 42 ].
| Tom A. Williams et al. 2017 [ 38 ] und Castelle & Banfield 2018 [ 39 ] | 11-RS232 (15. April 2026) [ 40 ] [ 41 ] [ 42 ] | ||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
|
|
Artenbegriff
Die Einteilung der Archaeen in Arten ist ebenfalls umstritten. Ernst Mayrs Definition einer Art – eine reproduktiv isolierte Gruppe von sich untereinander fortpflanzenden Organismen – ist nicht anwendbar, da sich Archaeen ausschließlich asexuell vermehren. [ 45 ]
Archaeen weisen einen hohen Grad an horizontalem Gentransfer zwischen verschiedenen Abstammungslinien auf. Einige Forscher schlagen vor, Individuen aufgrund hochgradig ähnlicher Genome und seltenem Gentransfer zu/von Zellen mit weniger verwandten Genomen in artenähnliche Populationen einzuteilen, wie beispielsweise in der Gattung Ferroplasma . [ 46 ] Studien an Halorubrum zeigten hingegen einen signifikanten Gentransfer zu/von weniger verwandten Populationen, was die Anwendbarkeit dieses Kriteriums einschränkt. [ 47 ] Manche Forscher bezweifeln daher die praktische Relevanz solcher Artbezeichnungen. [ 48 ]
Das aktuelle Wissen über die genetische Diversität von Archaeen ist lückenhaft, weshalb die Gesamtzahl der Arten nicht genau geschätzt werden kann. [ 27 ] Schätzungen der Anzahl der Phyla reichen von 18 bis 23, von denen nur 8 Vertreter aufweisen, die kultiviert und direkt untersucht wurden. Viele dieser vermuteten Gruppen sind nur durch eine einzige rRNA-Sequenz bekannt, sodass das Ausmaß der Diversität unklar bleibt. [ 49 ] Ähnliches gilt für Bakterien; viele nicht kultivierte Mikroorganismen bereiten ähnliche Probleme bei der Charakterisierung. [ 50 ]
Prokaryotische Stämme
Gültige Stämme
Die folgenden Stämme wurden gemäß dem Prokaryotischen Code gültig veröffentlicht ; sie gehören zu den vier Reichen der Archaeen: [ 51 ] [ 52 ] [ 2 ]
Kandidatenstämme
Folgende Stämme wurden vorgeschlagen, sind aber gemäß dem Prokaryotischen Code nicht gültig veröffentlicht worden; Stämme, die keinem Reich angehören, sind fett hervorgehoben : [ 53 ] [ 2 ]
- " Aenigmatarchaeota "
- " Altarchaeota "
- " Augarchaeota "
- " Geoarchaeota "
- " Hadarchaeota "
- " Hadesarchaeota "
- " Huberarchaeota "
- " Hydrothermarchaeota "
- " Iainarchaeota "
- " Micrarchaeota "
- " Nanohalarchaeota "
- " Nezhaarchaeota "
- " Parvarchaeota "
- " Poseidoniota "
- „ Terrarchaeota “ [„Axalarchota“; „Caliditerrarchaeota“]
- " Undinarchaeota "
Ursprung und Evolution
Das Alter der Erde beträgt etwa 4,54 Milliarden Jahre. [ 54 ] [ 55 ] [ 56 ] Wissenschaftliche Erkenntnisse deuten darauf hin, dass das Leben auf der Erde vor mindestens 3,5 Milliarden Jahren begann . [ 57 ] [ 58 ] Die frühesten Lebensnachweise auf der Erde sind biogenes Graphit in 3,7 Milliarden Jahre alten Metasedimenten in Westgrönland [ 59 ] und mikrobielle Mattenfossilien in 3,48 Milliarden Jahre altem Sandstein in Westaustralien . [ 60 ] [ 61 ] Im Jahr 2015 wurden in 4,1 Milliarden Jahre alten Gesteinen in Westaustralien mögliche Überreste biotischer Materie gefunden. [ 62 ] [ 63 ]
Obwohl wahrscheinliche prokaryotische Zellfossilien bis vor fast 3,5 Milliarden Jahren datiert werden können , weisen die meisten Prokaryoten keine charakteristische Morphologie auf, und ihre Fossilienformen eignen sich nicht zur Identifizierung als Archaeen. [ 64 ] Chemische Fossilien einzigartiger Lipide sind hingegen aussagekräftiger, da solche Verbindungen in anderen Organismen nicht vorkommen. [ 65 ] Einige Publikationen legen nahe, dass archaische oder eukaryotische Lipidreste in Schiefergesteinen aus der Zeit vor 2,7 Milliarden Jahren vorhanden sind, [ 66 ] diese Daten wurden jedoch inzwischen infrage gestellt. [ 67 ] Diese Lipide wurden auch in noch älteren Gesteinen aus Westgrönland nachgewiesen . Die ältesten Spuren stammen aus dem Isua-Distrikt , der die ältesten bekannten Sedimente der Erde enthält, die vor 3,8 Milliarden Jahren entstanden sind. [ 68 ] Die archaische Linie ist möglicherweise die älteste, die auf der Erde existiert. [ 69 ]
Woese argumentierte, dass Bakterien, Archaeen und Eukaryoten separate Abstammungslinien darstellen, die sich früh von einer gemeinsamen Vorfahrenkolonie abspalteten. [ 70 ] [ 71 ] Eine Möglichkeit [ 71 ] [ 72 ] ist, dass dies vor der Entwicklung der Zellen geschah , als das Fehlen einer typischen Zellmembran einen uneingeschränkten horizontalen Gentransfer ermöglichte , und dass die gemeinsamen Vorfahren der drei Domänen durch die Fixierung spezifischer Gen-Subsets entstanden. [ 71 ] [ 72 ] Es ist möglich, dass der letzte gemeinsame Vorfahre von Bakterien und Archaeen ein Thermophiler war , was die Möglichkeit eröffnet, dass niedrigere Temperaturen für Archaeen „extreme Umgebungen“ darstellen und Organismen, die in kühleren Umgebungen leben, erst später auftraten. [ 73 ] Da Archaeen und Bakterien nicht enger miteinander verwandt sind als mit Eukaryoten, kann der Begriff Prokaryot eine falsche Ähnlichkeit zwischen ihnen suggerieren. [ 74 ] Strukturelle und funktionelle Ähnlichkeiten zwischen Abstammungslinien entstehen jedoch häufig aufgrund gemeinsamer Merkmale der Vorfahren oder evolutionärer Konvergenz . Diese Ähnlichkeiten werden als Grad bezeichnet , und Prokaryoten lassen sich am besten als ein Grad des Lebens verstehen, der durch Merkmale wie das Fehlen membrangebundener Organellen charakterisiert ist.
Vergleich mit anderen Domänen
Die folgende Tabelle vergleicht einige wichtige Merkmale der drei Domänen, um ihre Gemeinsamkeiten und Unterschiede zu verdeutlichen. [ 75 ]
| Eigentum | Archaeen | Bakterien | Eukaryoten |
|---|---|---|---|
| Zellmembran | Ether -verknüpfte Lipide | Ester -verknüpfte Lipide | Esterverknüpfte Lipide |
| Zellwand | Glykoprotein oder S-Schicht ; selten Pseudopeptidoglykan | Peptidoglykan , S-Schicht oder keine Zellwand | Verschiedene Strukturen |
| Genstruktur | Ringförmige Chromosomen , ähnliche Translation und Transkription wie bei Eukaryoten | Ringförmige Chromosomen, einzigartige Translation und Transkription | Mehrere, lineare Chromosomen, aber Translation und Transkription ähnlich wie bei Archaeen |
| Innere Zellstruktur | Keine membrangebundenen Organellen (? [ 76 ] ) oder Zellkern | Keine membrangebundenen Organellen oder Zellkern | Membrangebundene Organellen und Zellkern |
| Stoffwechsel [ 77 ] | Verschiedene, darunter Diazotrophie , wobei die Methanogenese einzigartig für Archaeen ist | Verschiedene, darunter Photosynthese , aerobe und anaerobe Atmung , Gärung , Diazotrophie und Autotrophie | Photosynthese, Zellatmung und Gärung; keine Diazotrophie |
| Reproduktion | Ungeschlechtliche Fortpflanzung , horizontaler Gentransfer | Ungeschlechtliche Fortpflanzung, horizontaler Gentransfer | Sexuelle und asexuelle Fortpflanzung |
| Initiierung der Proteinsynthese | Methionin | Formylmethionin | Methionin |
| RNA-Polymerase | Eins | Eins | Viele |
| EF-2 / EF-G | Empfindlich gegenüber Diphtherietoxin | Resistent gegen Diphtherietoxin | Empfindlich gegenüber Diphtherietoxin |
Archaeen wurden aufgrund der großen Unterschiede in ihrer ribosomalen RNA-Struktur als dritte Domäne abgetrennt. Das spezifische Molekül 16S rRNA ist für die Proteinproduktion in allen Organismen von zentraler Bedeutung. Da diese Funktion so lebensnotwendig ist, ist das Überleben von Organismen mit Mutationen in ihrer 16S rRNA unwahrscheinlich, was zu einer großen (aber nicht absoluten) Stabilität der Struktur dieses Polynukleotids über Generationen hinweg führt. Die 16S rRNA ist groß genug, um organismenspezifische Variationen zu zeigen, aber dennoch klein genug, um schnell verglichen zu werden. 1977 entwickelte der Mikrobiologe Carl Woese, der die genetischen Sequenzen von Organismen untersuchte, eine neue Vergleichsmethode. Dabei wurde die RNA in Fragmente zerlegt, die sortiert und mit Fragmenten anderer Organismen verglichen werden konnten. [ 17 ] Je ähnlicher die Muster zwischen den Arten sind, desto enger sind sie verwandt. [ 78 ]
Woese nutzte seine neue rRNA-Vergleichsmethode, um verschiedene Organismen zu kategorisieren und gegenüberzustellen. Er verglich eine Vielzahl von Arten und stieß dabei auf eine Gruppe von Methanogenen mit einer rRNA, die sich stark von der aller bekannten Prokaryoten und Eukaryoten unterschied. [ 17 ] Diese Methanogene waren einander viel ähnlicher als anderen Organismen, was Woese dazu veranlasste, die neue Domäne der Archaeen vorzuschlagen. [ 17 ] Seine Experimente zeigten, dass die Archaeen genetisch den Eukaryoten ähnlicher waren als den Prokaryoten, obwohl sie in ihrer Struktur den Prokaryoten ähnlicher waren. [ 79 ] Daraus schloss er, dass Archaeen und Eukaryoten einen gemeinsamen Vorfahren hatten, der jünger ist als der von Eukaryoten und Bakterien. [ 79 ] Die Entwicklung des Zellkerns erfolgte nach der Trennung der Bakterien von diesem gemeinsamen Vorfahren. [ 79 ] [ 18 ]
Eine einzigartige Eigenschaft von Archaeen ist die häufige Verwendung von Ether-verknüpften Lipiden in ihren Zellmembranen. Etherbindungen sind chemisch stabiler als die in Bakterien und Eukaryoten vorkommenden Esterbindungen. Dies trägt möglicherweise dazu bei, dass viele Archaeen in extremen Umgebungen überleben können, die Zellmembranen stark belasten, wie beispielsweise extreme Hitze und Salinität . Vergleichende Analysen von Archaeen-Genomen haben zudem mehrere molekular konservierte Signatur-Insertionen/Deletionen (Indels) und Signaturproteine identifiziert, die entweder nur in allen Archaeen oder nur in verschiedenen Hauptgruppen innerhalb der Archaeen vorkommen. [ 80 ] [ 81 ] [ 82 ] Ein weiteres einzigartiges Merkmal von Archaeen, das in keinem anderen Organismus zu finden ist, ist die Methanogenese (die metabolische Produktion von Methan). Methanogene Archaeen spielen eine zentrale Rolle in Ökosystemen mit Organismen, die Energie aus der Oxidation von Methan gewinnen. Viele dieser Organismen sind Bakterien, da sie in solchen Umgebungen oft eine wichtige Methanquelle darstellen und als Primärproduzenten fungieren können. Methanogene spielen auch eine entscheidende Rolle im Kohlenstoffkreislauf , indem sie organischen Kohlenstoff in Methan umwandeln, das ebenfalls ein wichtiges Treibhausgas ist. [ 83 ]
Dieser Unterschied in der biochemischen Struktur von Bakterien und Archaeen wurde von Forschern durch evolutionäre Prozesse erklärt. Es wird angenommen, dass beide Domänen an alkalischen Tiefsee- Hydrothermalquellen entstanden sind . Mindestens zweimal entwickelten Mikroben die Lipidbiosynthese und die Zellwandbiochemie. Es wird vermutet, dass der letzte gemeinsame Vorfahre aller Lebewesen ein nicht freilebender Organismus war. [ 84 ] Er könnte eine durchlässige Membran besessen haben, die aus bakteriellen, einfachkettigen Amphiphilen (Fettsäuren) sowie archaischen, einfachkettigen Amphiphilen (Isoprenoiden) bestand. Diese stabilisieren Fettsäuremembranen im Meerwasser; diese Eigenschaft könnte die Divergenz bakterieller und archaischer Membranen vorangetrieben haben, „wobei die spätere Biosynthese von Phospholipiden die einzigartigen G1P- und G3P-Kopfgruppen von Archaeen bzw. Bakterien hervorgebracht hat. Wenn dem so ist, datieren die durch Membran-Isoprenoide vermittelten Eigenschaften die Lipidtrennung bis in die Anfänge des Lebens zurück.“ [ 85 ]
Beziehung zu Bakterien
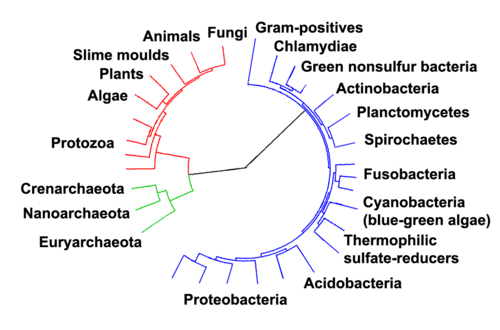
Die Beziehungen zwischen den drei Domänen sind von zentraler Bedeutung für das Verständnis des Ursprungs des Lebens. Die meisten Stoffwechselwege , die Gegenstand des Großteils der Gene eines Organismus sind, sind Archaeen und Bakterien gemeinsam, während die meisten Gene, die an der Genexpression beteiligt sind , Archaeen und Eukaryoten gemeinsam sind. [ 87 ] Innerhalb der Prokaryoten ist die Zellstruktur der Archaeen derjenigen grampositiver Bakterien am ähnlichsten, vor allem weil beide eine einzelne Lipiddoppelschicht besitzen [ 88 ] und üblicherweise einen dicken Sacculus (Exoskelett) mit variierender chemischer Zusammensetzung enthalten. [ 89 ] In einigen phylogenetischen Bäumen, die auf verschiedenen Gen-/Proteinsequenzen prokaryotischer Homologe basieren , sind die archaeischen Homologe enger mit denen grampositiver Bakterien verwandt. [ 88 ] Archaeen und grampositive Bakterien weisen zudem konservierte Insertionen/Deletionen (Indels) in einer Reihe wichtiger Proteine auf, wie beispielsweise Hsp70 und Glutaminsynthetase I. [ 88 ] [ 90 ] Die Phylogenie dieser Gene wurde jedoch so interpretiert, dass sie einen Gentransfer zwischen verschiedenen Domänen aufzeigt, [ 91 ] [ 92 ] und spiegelt möglicherweise nicht die Verwandtschaftsverhältnisse der Organismen wider. [ 93 ]
Es wurde vorgeschlagen, dass sich Archaeen aus grampositiven Bakterien als Reaktion auf den Selektionsdruck von Antibiotika entwickelten . [ 88 ] [ 90 ] [ 94 ] Dies wird durch die Beobachtung nahegelegt, dass Archaeen gegen eine Vielzahl von Antibiotika resistent sind, die hauptsächlich von grampositiven Bakterien produziert werden, [ 88 ] [ 90 ] und dass diese Antibiotika primär auf die Gene wirken, die Archaeen von Bakterien unterscheiden. Der Vorschlag lautet, dass der durch die grampositiven Antibiotika erzeugte Selektionsdruck in Richtung Resistenz schließlich ausreichte, um umfassende Veränderungen in vielen der Zielgene der Antibiotika zu verursachen, und dass diese Stämme die gemeinsamen Vorfahren der heutigen Archaeen darstellen. [ 94 ] Die Evolution der Archaeen als Reaktion auf Antibiotikaselektion oder einen anderen kompetitiven Selektionsdruck könnte auch ihre Anpassung an extreme Umgebungen (wie hohe Temperaturen oder Säure) erklären, die das Ergebnis der Suche nach unbesetzten ökologischen Nischen ist, um antibiotikaproduzierenden Organismen zu entgehen. [ 94 ] [ 95 ] Cavalier-Smith hat einen ähnlichen Vorschlag unterbreitet, die Neomura- Hypothese. [ 96 ] Dieser Vorschlag wird auch durch andere Arbeiten zur Untersuchung struktureller Beziehungen von Proteinen [ 97 ] sowie durch Studien gestützt, die nahelegen, dass grampositive Bakterien die frühesten Abzweigungen innerhalb der Prokaryoten darstellen könnten. [ 98 ]
Beziehung zu Eukaryoten

Die evolutionäre Verwandtschaft zwischen Archaeen und Eukaryoten ist weiterhin unklar. Abgesehen von den im Folgenden erörterten Ähnlichkeiten in Zellstruktur und -funktion werden beide in vielen Stammbäumen zusammengefasst. [ 100 ]
Erschwerende Faktoren sind unter anderem die Annahme, dass die Verwandtschaft zwischen Eukaryoten und dem Archaeen-Phylum Thermoproteota enger ist als die zwischen dem Archaeen-Reich Methanobacteriati und den Thermoproteota [ 101 ] , sowie das Vorkommen archaeenähnlicher Gene in bestimmten Bakterien, wie beispielsweise Thermotoga maritima , das auf horizontalen Gentransfer zurückzuführen ist [ 102 ] . Die Standardhypothese besagt, dass sich der Vorfahre der Eukaryoten früh von den Archaeen abspaltete [103, 104 ] und dass Eukaryoten durch Symbiogenese entstanden , die Verschmelzung eines Archaeen und eines Eubakteriums, aus der die Mitochondrien hervorgingen ; diese Hypothese erklärt die genetischen Ähnlichkeiten zwischen den Gruppen [ 99 ] . Die Eocyten-Hypothese hingegen postuliert, dass die Eukaryoten relativ spät aus den Archaeen hervorgingen [ 105 ] .
Eine 2015 entdeckte Archaeenlinie, Lokiarchaeum (aus dem vorgeschlagenen neuen Stamm „ Lokiarchaeota “), benannt nach einer hydrothermalen Quelle namens Lokis Schloss im Arktischen Ozean, erwies sich als die damals am engsten mit Eukaryoten verwandte. Sie wird als Übergangsorganismus zwischen Prokaryoten und Eukaryoten bezeichnet. [ 106 ] [ 107 ]
Seitdem wurden mehrere Schwesterstämme der "Lokiarchaeota" gefunden (" Thorarchaeota ", " Odinarchaeota ", " Heimdallarchaeota "), die zusammen die neu vorgeschlagene Supergruppe "Asgard" bilden. [ 35 ] [ 108 ] [ 109 ]
Die Verwandtschaftsverhältnisse der Promethearchaeati/„Asgard“-Mitglieder und der Eukaryoten werden weiterhin untersucht [ 110 ]. Im Januar 2020 berichteten Wissenschaftler jedoch, dass Promethearchaeum syntrophicum , ein Vertreter der Promethearchaeati/„Asgard“-Archaeen, möglicherweise ein Bindeglied zwischen einfachen prokaryotischen und komplexen eukaryotischen Mikroorganismen vor etwa zwei Milliarden Jahren darstellt. [ 111 ] [ 112 ] [ 113 ]
Morphologie
Einzelne Archaeen weisen Durchmesser von 0,1 Mikrometern (µm) bis über 15 µm auf und kommen in verschiedenen Formen vor, üblicherweise als Kugeln, Stäbchen, Spiralen oder Platten. [ 114 ] Weitere Morphologien innerhalb der Thermoproteota umfassen unregelmäßig geformte, gelappte Zellen in Sulfolobus , nadelförmige Filamente mit einem Durchmesser von weniger als einem halben Mikrometer in Thermofilum sowie nahezu perfekt rechteckige Stäbchen in Thermoproteus und Pyrobaculum . [ 115 ] Archaeen der Gattung Haloquadratum , wie beispielsweise Haloquadratum walsbyi, sind flache, quadratische Exemplare, die in hypersalinen Gewässern leben. [ 116 ] Diese ungewöhnlichen Formen werden wahrscheinlich sowohl durch ihre Zellwände als auch durch ein prokaryotisches Zytoskelett aufrechterhalten . Proteine, die mit den Zytoskelettkomponenten anderer Organismen verwandt sind, existieren in Archaeen [ 117 ] , und es bilden sich Filamente in ihren Zellen [ 118 ] , aber im Gegensatz zu anderen Organismen sind diese Zellstrukturen noch wenig erforscht [ 119 ] . Bei Thermoplasma und Ferroplasma führt das Fehlen einer Zellwand dazu, dass die Zellen unregelmäßige Formen aufweisen und Amöben ähneln können [ 120 ] .
Einige Arten bilden Zellaggregate oder -filamente von bis zu 200 μm Länge. [ 114 ] Diese Organismen können in Biofilmen eine wichtige Rolle spielen . [ 121 ] Insbesondere verschmelzen Aggregate von Thermococcus coalescens -Zellen in Kultur zu einzelnen Riesenzellen. [ 122 ] Archaeen der Gattung Pyrodictium bilden komplexe Vielzellkolonien mit langen, dünnen Hohlröhrchen, sogenannten Cannulae , die von der Zelloberfläche abstehen und die Zellen zu einem dichten, buschartigen Verband verbinden. [ 123 ] Die Funktion dieser Cannulae ist noch nicht vollständig geklärt, sie könnten jedoch der Kommunikation oder dem Nährstoffaustausch mit benachbarten Zellen dienen. [ 124 ] Es existieren auch Mehrartenkolonien, wie beispielsweise die „Perlenketten“-Gemeinschaft, die 2001 in einem deutschen Sumpf entdeckt wurde. Runde, weißliche Kolonien einer neuartigen Methanobacteriati-Art sind entlang dünner Filamente angeordnet, die bis zu 15 Zentimeter lang werden können; diese Filamente bestehen aus einer bestimmten Bakterienart. [ 125 ]
Struktur, Zusammensetzung, Entwicklung und Betrieb
Archaeen und Bakterien weisen im Allgemeinen eine ähnliche Zellstruktur auf , jedoch unterscheiden sich Archaeen in ihrer Zellzusammensetzung und -organisation. Wie Bakterien besitzen auch Archaeen keine inneren Membranen und Organellen . [ 74 ] Wie bei Bakterien sind die Zellmembranen von Archaeen üblicherweise von einer Zellwand umgeben , und sie bewegen sich mithilfe eines oder mehrerer Flagellen fort . [ 126 ] Strukturell ähneln Archaeen am ehesten grampositiven Bakterien . Die meisten besitzen eine einfache Plasmamembran und eine Zellwand und keinen periplasmatischen Raum ; eine Ausnahme bildet Ignicoccus , das über ein besonders großes Periplasma verfügt, welches membrangebundene Vesikel enthält und von einer äußeren Membran umschlossen ist. [ 127 ]
Zellwand und Archaellen
Die meisten Archaeen (mit Ausnahme von Thermoplasma und Ferroplasma ) besitzen eine Zellwand. [ 120 ] Bei den meisten Archaeen besteht die Zellwand aus Oberflächenproteinen, die eine S-Schicht bilden . [ 128 ] Die S-Schicht ist eine starre Anordnung von Proteinmolekülen, die die Außenseite der Zelle bedeckt (ähnlich einem Kettenhemd ). [ 129 ] Diese Schicht bietet sowohl chemischen als auch physikalischen Schutz und kann verhindern, dass Makromoleküle mit der Zellmembran in Kontakt treten. [ 130 ] Im Gegensatz zu Bakterien fehlt Archaeen Peptidoglykan in ihren Zellwänden. [ 131 ] Methanobacteriales besitzen Zellwände mit Pseudopeptidoglykan , das dem eubakteriellen Peptidoglykan in Morphologie, Funktion und physikalischer Struktur ähnelt, sich aber in seiner chemischen Struktur unterscheidet; es fehlen D-Aminosäuren und N-Acetylmuraminsäure , die durch N-Acetyltalosaminuronsäure ersetzt ist . [ 130 ]
Archaeen-Flagellen, auch Archaellen genannt , funktionieren ähnlich wie bakterielle Flagellen : Ihre langen Stiele werden von Rotationsmotoren an der Basis angetrieben. Diese Motoren werden durch einen Protonengradienten über die Membran angetrieben, Archaellen unterscheiden sich jedoch deutlich in ihrer Zusammensetzung und Entwicklung. [ 126 ] Die beiden Flagellentypen entwickelten sich aus unterschiedlichen Vorfahren. Das bakterielle Flagellum hat einen gemeinsamen Vorfahren mit dem Typ-III-Sekretionssystem , [ 132 ] [ 133 ] während archaeen-Flagellen sich anscheinend aus bakteriellen Typ-IV-Pili entwickelt haben . [ 134 ] Im Gegensatz zum bakteriellen Flagellum, das hohl ist und durch das Aufsteigen von Untereinheiten durch die zentrale Pore zur Spitze der Flagelle zusammengesetzt wird, werden archaeen-Flagellen durch das Anfügen von Untereinheiten an der Basis synthetisiert. [ 135 ]
Membranen

Die Membranen von Archaeen bestehen aus anderen Molekülen als die von Bakterien und Eukaryoten. [ 136 ] In allen Organismen bestehen Zellmembranen aus Molekülen, die als Phospholipide bekannt sind . Diese Moleküle besitzen sowohl einen polaren , wasserlöslichen Teil (den Phosphatkopf ) als auch einen unpolaren, wasserunlöslichen Teil (den Lipidschwanz). Diese unterschiedlichen Teile sind durch eine Glycerin - Einheit verbunden. In Wasser bilden Phospholipid-Cluster, wobei die Köpfe zum Wasser hin und die Schwänze vom Wasser weg zeigen. Die Hauptstruktur der Zellmembranen ist eine Doppelschicht dieser Phospholipide, die als Lipiddoppelschicht bezeichnet wird . [ 137 ]
Die Phospholipide der Archaeen sind in vierfacher Hinsicht ungewöhnlich:
- Sie besitzen Membranen aus Glycerinetherlipiden , während Bakterien und Eukaryoten Membranen aufweisen, die hauptsächlich aus Glycerinesterlipiden bestehen . [ 138 ] Der Unterschied liegt in der Art der Bindung, die die Lipide mit dem Glycerinrest verbindet; die beiden Typen sind in der Abbildung rechts gelb dargestellt. Bei Esterlipiden handelt es sich um eine Esterbindung , bei Etherlipiden hingegen um eine Etherbindung . [ 139 ]
- Die Stereochemie des Glycerinanteils in Archaeen ist spiegelbildlich zu der in anderen Organismen. Der Glycerinanteil kann in zwei spiegelbildlichen Formen, sogenannten Enantiomeren , vorkommen . Ähnlich wie eine rechte Hand nicht ohne Weiteres in einen Linkshänderhandschuh passt, können Enantiomere eines Typs im Allgemeinen nicht von Enzymen des jeweils anderen Typs verwendet oder synthetisiert werden. Die Phospholipide der Archaeen basieren auf einem Rückgrat aus sn -Glycerin-1-phosphat, einem Enantiomer von sn- Glycerin-3-phosphat, dem Phospholipid-Rückgrat von Bakterien und Eukaryoten. Dies deutet darauf hin, dass Archaeen im Vergleich zu Bakterien und Eukaryoten völlig andere Enzyme zur Phospholipidsynthese verwenden. Solche Enzyme entwickelten sich sehr früh in der Geschichte des Lebens, was auf eine frühe Trennung von den beiden anderen Domänen hindeutet. [ 136 ]
- Die Lipidketten der Archaeen unterscheiden sich von denen anderer Organismen dadurch, dass sie auf langen Isoprenoidketten mit mehreren Seitenketten, teilweise mit Cyclopentan- oder Cyclohexanringen , basieren . [ 140 ] Im Gegensatz dazu besitzen die Fettsäuren in den Membranen anderer Organismen gerade Ketten ohne Seitenketten oder Ringe. Obwohl Isoprenoide in der Biochemie vieler Organismen eine wichtige Rolle spielen, nutzen nur die Archaeen sie zur Phospholipidsynthese. Diese verzweigten Ketten tragen möglicherweise dazu bei, dass die Membranen der Archaeen bei hohen Temperaturen nicht durchlässig werden. [ 141 ]
- Bei einigen Archaeen wird die Lipiddoppelschicht durch eine Monoschicht ersetzt. Dabei verschmelzen die Archaeen die Schwänze zweier Phospholipidmoleküle zu einem einzigen Molekül mit zwei polaren Köpfen (einem Bolaamphiphil ). Diese Fusion kann ihre Membranen steifer machen und sie widerstandsfähiger gegen widrige Umgebungsbedingungen machen. [ 142 ] Beispielsweise sind die Lipide in Ferroplasma von dieser Art, was vermutlich das Überleben dieses Organismus in seinem stark sauren Lebensraum begünstigt. [ 143 ]
Stoffwechsel
Archaeen weisen eine große Vielfalt an chemischen Reaktionen in ihrem Stoffwechsel auf und nutzen zahlreiche Energiequellen. Diese Reaktionen werden je nach Energie- und Kohlenstoffquelle in Ernährungsgruppen eingeteilt. Einige Archaeen gewinnen Energie aus anorganischen Verbindungen wie Schwefel oder Ammoniak (sie sind Chemotrophe ). Dazu gehören Nitrifizierer , Methanogene und anaerobe Methanoxidierer . [ 144 ] Bei diesen Reaktionen überträgt eine Verbindung Elektronen auf eine andere (in einer Redoxreaktion ) und setzt dabei Energie frei, die die Zellaktivitäten antreibt. Eine Verbindung fungiert als Elektronendonator , die andere als Elektronenakzeptor . Die freigesetzte Energie wird zur Bildung von Adenosintriphosphat (ATP) durch Chemiosmose genutzt , dem gleichen grundlegenden Prozess, der auch in den Mitochondrien eukaryotischer Zellen stattfindet . [ 145 ]
Andere Archaeen-Gruppen nutzen Sonnenlicht als Energiequelle (sie sind phototroph ), jedoch findet bei keinem dieser Organismen eine sauerstoffproduzierende Photosynthese statt. [ 145 ] Viele grundlegende Stoffwechselwege sind allen Lebensformen gemeinsam; so nutzen Archaeen beispielsweise eine modifizierte Form der Glykolyse (den Entner-Doudoroff-Weg ) und entweder einen vollständigen oder einen partiellen Citratzyklus . [ 146 ] Diese Ähnlichkeiten zu anderen Organismen spiegeln wahrscheinlich sowohl ihren frühen Ursprung in der Geschichte des Lebens als auch ihre hohe Effizienz wider. [ 147 ]
| Ernährungstyp | Energiequelle | Kohlenstoffquelle | Beispiele |
|---|---|---|---|
| Phototrophen | Sonnenlicht | Organische Verbindungen | Halobakterium |
| Lithotrophe | Anorganische Verbindungen | Organische Verbindungen oder Kohlenstofffixierung | Ferroglobus , Methanobakterien oder Pyrolobus |
| Organotrophe | Organische Verbindungen | Organische Verbindungen oder Kohlenstofffixierung | Pyrococcus , Sulfolobus oder Methanosarcinales |
Einige Methanobakterien sind Methanogene (Archaeen, die Methan als Stoffwechselprodukt erzeugen) und leben in anaeroben Umgebungen wie Sümpfen. Diese Stoffwechselform entwickelte sich früh, und es ist sogar möglich, dass der erste freilebende Organismus ein Methanogen war. [ 148 ] Eine häufige Reaktion beinhaltet die Verwendung von Kohlendioxid als Elektronenakzeptor zur Oxidation von Wasserstoff . Die Methanogenese nutzt eine Reihe von Coenzymen , die für diese Archaeen einzigartig sind, wie beispielsweise Coenzym M und Methanofuran . [ 149 ] Andere organische Verbindungen wie Alkohole , Essigsäure oder Ameisensäure werden von Methanogenen als alternative Elektronenakzeptoren verwendet . Diese Reaktionen sind bei im Darm lebenden Archaeen weit verbreitet. Essigsäure wird von acetotrophen Archaeen auch direkt in Methan und Kohlendioxid abgebaut . Diese Acetotrophen gehören zur Ordnung der Methanosarcinales und sind ein wichtiger Bestandteil der Mikroorganismengemeinschaften, die Biogas produzieren . [ 150 ]

Andere Archaeen nutzen CO2Archaeen nutzen Kohlenstoff aus der Atmosphäre als Quelle in einem Prozess namens Kohlenstofffixierung (sie sind autotroph ). Dieser Prozess beinhaltet entweder eine stark modifizierte Form des Calvin-Zyklus [ 152 ] oder einen anderen Stoffwechselweg, den 3-Hydroxypropionat-/4-Hydroxybutyrat-Zyklus [ 153 ] . Die Thermoproteota nutzen außerdem den umgekehrten Krebs-Zyklus , während die Methanobacteriati zusätzlich den reduktiven Acetyl-CoA-Weg verwenden [ 154 ] . Die Kohlenstofffixierung wird durch anorganische Energiequellen angetrieben. Es sind keine Archaeen bekannt, die Photosynthese betreiben [ 155 ] . Die Energiequellen der Archaeen sind äußerst vielfältig und reichen von der Oxidation von Ammoniak durch die Nitrosopumilales [ 156 ] [ 157 ] bis zur Oxidation von Schwefelwasserstoff oder elementarem Schwefel durch Sulfolobus -Arten , wobei entweder Sauerstoff oder Metallionen als Elektronenakzeptoren dienen [ 145 ] .
Phototrophe Archaeen nutzen Licht zur Erzeugung chemischer Energie in Form von ATP. Bei Halobakterien erzeugen lichtaktivierte Ionenpumpen wie Bakteriorhodopsin und Halorhodopsin Ionengradienten, indem sie Ionen durch die Plasmamembran aus der Zelle heraus und in sie hinein pumpen . Die in diesen elektrochemischen Gradienten gespeicherte Energie wird anschließend durch die ATP-Synthase in ATP umgewandelt . [ 114 ] Dieser Prozess ist eine Form der Photophosphorylierung . Die Fähigkeit dieser lichtgetriebenen Pumpen, Ionen durch Membranen zu transportieren, beruht auf lichtinduzierten Strukturveränderungen eines Retinol- Cofaktors , der im Zentrum des Proteins liegt. [ 158 ]
Genetik
Archaeen besitzen üblicherweise ein einzelnes ringförmiges Chromosom [ 159 ] , doch bei vielen Euryarchaea wurden mehrere Kopien dieses Chromosoms nachgewiesen [ 160 ] . Das größte bekannte Archaeen-Genom (Stand 2002) umfasste 5.751.492 Basenpaare und befand sich in Methanosarcina acetivorans [ 161 ] . Das winzige Genom von Nanoarchaeum equitans mit 490.885 Basenpaaren ist nur ein Zehntel so groß und das kleinste bekannte Archaeen-Genom; es enthält schätzungsweise nur 537 proteinkodierende Gene [ 162 ] . Kleinere, unabhängige DNA-Abschnitte, sogenannte Plasmide , kommen ebenfalls in Archaeen vor. Plasmide können durch direkten Zellkontakt übertragen werden, ein Prozess, der der bakteriellen Konjugation ähneln könnte [ 163 ] [ 164 ] .
Archaeen unterscheiden sich genetisch von Bakterien und Eukaryoten. Bis zu 15 % der von einem Archaeen-Genom kodierten Proteine sind einzigartig für diese Domäne, obwohl die meisten dieser einzigartigen Gene keine bekannte Funktion haben. [ 166 ] Von den übrigen einzigartigen Proteinen mit bekannter Funktion gehören die meisten zu den Methanobacteriati und sind an der Methanogenese beteiligt. Die Proteine, die Archaeen, Bakterien und Eukaryoten gemeinsam haben, bilden einen gemeinsamen Kern zellulärer Funktionen, der hauptsächlich Transkription , Translation und Nukleotidstoffwechsel betrifft . [ 167 ] Weitere charakteristische Merkmale der Archaeen sind die Organisation von Genen mit verwandter Funktion – wie beispielsweise Enzyme, die Schritte desselben Stoffwechselwegs katalysieren – in neuartigen Operons sowie große Unterschiede in den tRNA- Genen und ihren Aminoacyl-tRNA-Synthetasen . [ 167 ]
Die Transkription in Archaeen ähnelt der eukaryotischen stärker als der bakteriellen Transkription. Die archaeale RNA-Polymerase ist ihrem eukaryotischen Äquivalent sehr ähnlich [ 159 ] , während die archaeale Translation sowohl bakterielle als auch eukaryotische Merkmale aufweist [ 168 ] . Obwohl Archaeen nur einen Typ von RNA-Polymerase besitzen, scheinen deren Struktur und Funktion bei der Transkription der eukaryotischen RNA-Polymerase II sehr ähnlich zu sein . Ähnliche Proteinkomplexe (die allgemeinen Transkriptionsfaktoren ) steuern die Bindung der RNA-Polymerase an den Promotor eines Gens [ 169 ] . Andere archaeale Transkriptionsfaktoren ähneln jedoch eher denen in Bakterien. [ 170 ] Posttranskriptionelle Modifikationen sind einfacher als bei Eukaryoten, da die meisten Archaeen-Gene keine Introns enthalten , obwohl ihre tRNA- und ribosomalen RNA- Gene viele Introns aufweisen [ 171 ] und Introns in einigen protein-kodierenden Genen vorkommen können. [ 172 ] [ 173 ]
Horizontaler Gentransfer und genetischer Austausch
Haloferax volcanii , ein extrem halophiles Archaebakterium, bildet zytoplasmatische Brücken zwischen Zellen, die offenbar dem Transfer von DNA von einer Zelle zur anderen in beide Richtungen dienen. [ 174 ]
Wenn die hyperthermophilen Archaeen Sulfolobus solfataricus [ 175 ] und Sulfolobus acidocaldarius [ 176 ] DNA-schädigender UV-Strahlung oder den Substanzen Bleomycin oder Mitomycin C ausgesetzt werden , kommt es zu einer artspezifischen Zellaggregation. Die Aggregation in S. solfataricus konnte nicht durch andere physikalische Stressoren wie pH-Wert- oder Temperaturänderungen induziert werden [ 175 ] , was darauf hindeutet, dass die Aggregation spezifisch durch DNA-Schäden ausgelöst wird . Ajon et al. [ 176 ] zeigten, dass die UV-induzierte Zellaggregation in S. acidocaldarius mit hoher Frequenz den Austausch chromosomaler Marker vermittelt . Die Rekombinationsraten überstiegen die von nicht-induzierten Kulturen um bis zu drei Größenordnungen. Frols et al. [ 175 ] [ 177 ] und Ajon et al. [ 176 ] wurde die Hypothese aufgestellt, dass die Zellaggregation den artspezifischen DNA-Transfer zwischen Sulfolobus- Zellen verstärkt, um die Reparatur beschädigter DNA durch homologe Rekombination zu verbessern . Diese Reaktion könnte eine primitive Form der sexuellen Interaktion darstellen, ähnlich den besser untersuchten bakteriellen Transformationssystemen, die ebenfalls mit artspezifischem DNA-Transfer zwischen Zellen und der daraus resultierenden homologen Rekombinationsreparatur von DNA-Schäden einhergehen. [ 178 ]
Archaeen-Viren
Archaeen sind Ziel zahlreicher Viren in einer vielfältigen Virosphäre, die sich von bakteriellen und eukaryotischen Viren unterscheidet. Sie wurden bisher in 15–18 DNA-basierte Familien eingeteilt, doch viele Arten sind noch nicht isoliert und warten auf ihre Klassifizierung. [ 179 ] [ 180 ] [ 181 ] Diese Familien lassen sich informell in zwei Gruppen unterteilen: archaeenspezifische und kosmopolitische. Archaeenspezifische Viren infizieren ausschließlich Archaeen und umfassen derzeit 12 Familien. In dieser Gruppe wurden zahlreiche einzigartige, bisher unbekannte Virusstrukturen beobachtet, darunter flaschen-, spindel-, spiral- und tropfenförmige Viren. [ 180 ] Obwohl die Reproduktionszyklen und Genommechanismen archaeenspezifischer Arten anderen Viren ähneln mögen, weisen sie einzigartige Merkmale auf, die sich aufgrund der Morphologie der von ihnen infizierten Wirtszellen entwickelt haben. [ 179 ] Ihre Virusfreisetzungsmechanismen unterscheiden sich von denen anderer Phagen. Bakteriophagen durchlaufen im Allgemeinen entweder lytische , lysogene oder (selten) eine Mischung aus beidem. [ 182 ] Die meisten archäenspezifischen Virusstämme pflegen eine stabile, teils lysogene Beziehung zu ihren Wirten, die sich als chronische Infektion äußert. Dabei werden Virionen allmählich und kontinuierlich produziert und freigesetzt, ohne die Wirtszelle abzutöten. [ 183 ] Prangishyili (2013) merkte an, dass die Hypothese aufgestellt wurde, dass Schwanz-Phagen von Archaeen von Bakteriophagen abstammen, die Haloarchaeen infizieren können . Sollte diese Hypothese zutreffen, könnte man schlussfolgern, dass die übrigen doppelsträngigen DNA-Viren , die den Rest der archäenspezifischen Gruppe ausmachen, eine eigene, einzigartige Gruppe innerhalb der globalen Virusgemeinschaft bilden. Krupovic et al. (2018) stellt fest, dass die hohe Rate an horizontalem Gentransfer , die schnellen Mutationsraten in viralen Genomen und das Fehlen universeller Gensequenzen Forscher dazu veranlasst haben, den evolutionären Weg von Archaeenviren als Netzwerk zu betrachten. Das Fehlen von Ähnlichkeiten zwischen phylogenetischen Markern in diesem Netzwerk und der globalen Virosphäre sowie externe Verbindungen zu nicht-viralen Elementen legen nahe, dass einige archaeenspezifische Virenarten aus nicht-viralen mobilen genetischen Elementen (MGE) entstanden sind. [ 180 ]
Diese Viren wurden am detailliertesten in thermophilen Organismen, insbesondere in den Ordnungen Sulfolobales und Thermoproteales , untersucht . [ 184 ] Kürzlich wurden zwei Gruppen von einzelsträngigen DNA-Viren isoliert, die Archaeen infizieren. Eine Gruppe wird durch das Halorubrum pleomorphe Virus 1 ( Pleolipoviridae ) repräsentiert, das halophile Archaeen infiziert, [ 185 ] die andere durch das Aeropyrum spiralförmige Virus ( Spiraviridae ), das einen hyperthermophilen Wirt (optimales Wachstum bei 90–95 °C) infiziert. [ 186 ] Bemerkenswerterweise besitzt letzteres Virus das bisher größte beschriebene ssDNA-Genom. Die Abwehr gegen diese Viren könnte RNA-Interferenz durch repetitive DNA- Sequenzen umfassen, die mit den Genen der Viren verwandt sind. [ 187 ] [ 188 ]
Reproduktion
Archaeen vermehren sich ungeschlechtlich durch binäre oder multiple Teilung , Fragmentierung oder Knospung ; Mitose und Meiose finden nicht statt. Existiert eine Archaeenart in mehreren Formen, besitzen alle dasselbe genetische Material. [ 114 ] Die Zellteilung wird durch einen Zellzyklus gesteuert ; nach der Replikation des Zellchromosoms und der Trennung der beiden Tochterchromosomen teilt sich die Zelle. [ 189 ] Im Genus Sulfolobus weist der Zyklus Merkmale auf, die sowohl bakteriellen als auch eukaryotischen Systemen ähneln. Die Chromosomen replizieren sich von mehreren Startpunkten ( Replikationsursprüngen ) mithilfe von DNA-Polymerasen , die den entsprechenden eukaryotischen Enzymen ähneln. [ 190 ]
Bei Methanobacteriati ähneln das Zellteilungsprotein FtsZ , das einen sich zusammenziehenden Ring um die Zelle bildet, und die Komponenten des Septums , das sich quer durch die Zellmitte ausbildet, ihren bakteriellen Äquivalenten. [ 189 ] Bei Cren- [ 191 ] [ 192 ] und Thaumarchaea [ 193 ] erfüllt der Zellteilungsapparat Cdv eine ähnliche Funktion. Dieser Apparat ist mit dem eukaryotischen ESCRT-III-Apparat verwandt, der zwar vor allem für seine Rolle bei der Zellsortierung bekannt ist, aber auch bei der Trennung geteilter Zellen eine Rolle spielt, was auf eine ursprüngliche Funktion bei der Zellteilung hindeutet. [ 194 ]
Sowohl Bakterien als auch Eukaryoten, nicht aber Archaeen, bilden Sporen . [ 195 ] Einige Haloarchaea -Arten durchlaufen einen Phänotypwechsel und wachsen in verschiedenen Zelltypen, darunter dickwandige Strukturen, die resistent gegen osmotischen Schock sind und den Archaeen das Überleben in Wasser mit niedrigen Salzkonzentrationen ermöglichen. Diese Strukturen dienen jedoch nicht der Fortpflanzung, sondern helfen ihnen möglicherweise, neue Lebensräume zu erreichen. [ 196 ]
Verhalten
Kommunikation
Ursprünglich ging man davon aus, dass Quorum Sensing bei Archaeen nicht existiert. Neuere Studien belegen jedoch, dass einige Arten über Quorum Sensing kommunizieren können. Andere Studien zeigten syntrophe Interaktionen zwischen Archaeen und Bakterien während des Biofilmwachstums. Obwohl die Forschung zum Quorum Sensing bei Archaeen noch begrenzt ist, wurden in einigen Studien LuxR-Proteine in Archaeen nachgewiesen, die Ähnlichkeiten mit bakteriellen LuxR-Proteinen aufweisen und letztendlich die Detektion kleiner Moleküle ermöglichen, die für die Kommunikation in hoher Dichte genutzt werden. Ähnlich wie bei Bakterien binden auch LuxR-Proteine von Archaeen an AHLs (Lactone) und Nicht-AHL-Liganden. Dies spielt eine wichtige Rolle bei der Kommunikation innerhalb und zwischen Arten sowie zwischen verschiedenen Reichen durch Quorum Sensing. [ 197 ]
Biofilme
Archaeen sind dafür bekannt, Biofilme zu bilden – eine gängige Strategie unter Mikroorganismen. [ 198 ] Quorum Sensing spielt vermutlich eine Rolle bei der Biofilmbildung von Archaeen, ist aber weniger gut erforscht als das von Bakterien. Es wurde beobachtet, dass einige Archaeen bei einem bestimmten pH-Wert Biofilme bilden, ohne dabei zwingend auf Quorum Sensing angewiesen zu sein. Diese Biofilme sind sessile Gemeinschaften von Mikroorganismen (sie können mehrere verschiedene Arten enthalten), die extrazelluläre polymere Substanzen produzieren. Diese dienen der Bildung einer Matrix, in der die Mikroorganismen wachsen können. Biofilme sind vorteilhaft, da sie Organismen vor abiotischen Stressfaktoren schützen, den horizontalen Gentransfer erleichtern und Syntropie ermöglichen.
Die Biofilmbildung verläuft in mehreren Phasen: Anheftung, Mikrokoloniebildung, Reifung und Auflösung. Während der Anheftungsphase haften Archaeen reversibel an einer Oberfläche mittels Typ-4-Pili und Archaellen. Einige Archaeen besitzen weitere Strukturen, die an der Anheftung beteiligt sind, wie Hami, Fimbrien oder Cannulae. In der Mikrokoloniephase wird die extrazelluläre polymere Substanzmatrix produziert, und es wurde beobachtet, dass zahlreiche Archaeen Pillen und Nanodrähte zwischen den Zellen bilden. Während der Reifungsphase nimmt die Matrix eine komplexe Architektur an und enthält beispielsweise Wege für den Abtransport von Stoffwechselprodukten aus dem Biofilm. Verschiedene Archaeen bilden Biofilme mit unterschiedlichen Architekturen. Schließlich kann die Auflösung erfolgen, bei der Zellen den Biofilm verlassen. Dieser Prozess wurde bei Archaeen beobachtet, die zugrunde liegenden Mechanismen sind jedoch noch nicht vollständig verstanden. [ 198 ]
Ökologie
Lebensräume

Archaeen kommen in einer Vielzahl von Lebensräumen vor, sind ein wichtiger Bestandteil globaler Ökosysteme [ 23 ] und machen etwa 20 % der mikrobiellen Zellen in den Ozeanen aus [ 199 ] sowie eine große Anzahl von Zellen in Meeresbodensedimenten . Die zuerst entdeckten Archaeen waren jedoch Extremophile [ 144 ] . Tatsächlich überleben einige Archaeen hohe Temperaturen, oft über 100 °C, wie sie in Geysiren , Schwarzen Rauchern und Ölquellen vorkommen. Weitere häufige Lebensräume sind sehr kalte Gebiete und stark salzhaltiges , saures oder alkalisches Wasser. Zu den Archaeen gehören aber auch Mesophile , die unter milden Bedingungen in Sümpfen und Marschland , Abwasser , den Ozeanen , dem Darmtrakt von Tieren und Böden wachsen [ 9 , 23 ] . Ähnlich wie PGPR ( pflanzenwachstumsfördernde Rhizobakterien ) gelten auch Archaeen als Quelle der Pflanzenwachstumsförderung [ 9 ] .
Extremophile Archaeen gehören vier physiologischen Hauptgruppen an : Halophilen , Thermophilen , Alkaliphilen und Acidophilen . [ 200 ] Diese Gruppen sind weder vollständig noch stammspezifisch und schließen sich auch nicht gegenseitig aus, da manche Archaeen mehreren Gruppen angehören. Dennoch bilden sie einen nützlichen Ausgangspunkt für die Klassifizierung. [ 201 ]
Halophile Bakterien, darunter die Gattung Halobacterium , leben in extrem salzhaltigen Umgebungen wie Salzseen und sind bei einem Salzgehalt von über 20–25 % ihren bakteriellen Verwandten zahlenmäßig überlegen. [ 144 ] Thermophile Bakterien gedeihen am besten bei Temperaturen über 45 °C, beispielsweise in heißen Quellen; hyperthermophile Archaeen wachsen optimal bei Temperaturen über 80 °C. [ 202 ] Die Archaee Methanopyrus kandleri Stamm 116 kann sich sogar bei 122 °C vermehren – der höchsten jemals gemessenen Temperatur eines Organismus. [ 203 ]
Andere Archaeen existieren unter sehr sauren oder alkalischen Bedingungen. [ 200 ] Ein Beispiel hierfür ist Picrophilus torridus , einer der extremsten acidophilen Archaeen , der bei pH 0 wächst, was dem Gedeihen in 1,2 molarer Schwefelsäure entspricht . [ 204 ]
Diese Widerstandsfähigkeit gegenüber extremen Umgebungen hat Archaeen in den Mittelpunkt von Spekulationen über die möglichen Eigenschaften außerirdischen Lebens gerückt . [ 205 ] Einige extremophile Lebensräume ähneln denen auf dem Mars , [ 206 ] was zu der Annahme geführt hat, dass lebensfähige Mikroben durch Meteoriten zwischen Planeten übertragen werden könnten . [ 207 ]
Jüngste Studien haben gezeigt, dass Archaeen nicht nur in mesophilen und thermophilen Umgebungen vorkommen, sondern auch – mitunter in hoher Anzahl – bei niedrigen Temperaturen. So sind Archaeen beispielsweise in kalten Meeresgebieten wie den Polarmeeren weit verbreitet. [ 208 ] Noch bedeutsamer ist die große Anzahl an Archaeen, die in den Weltmeeren in nicht-extremen Lebensräumen innerhalb der Planktongemeinschaft (als Teil des Picoplanktons) gefunden wurden . [ 209 ] Obwohl diese Archaeen in extrem hoher Anzahl (bis zu 40 % der mikrobiellen Biomasse) auftreten können, ist es bisher fast keiner dieser Arten gelungen, sie in Reinkultur zu isolieren und zu untersuchen . [ 210 ] Daher ist unser Verständnis der Rolle von Archaeen in der Meeresökologie noch rudimentär, und ihr Einfluss auf globale biogeochemische Kreisläufe ist weitgehend unerforscht. [ 211 ] Einige marine Thermoproteota sind zur Nitrifikation fähig , was darauf hindeutet, dass diese Organismen den ozeanischen Stickstoffkreislauf beeinflussen könnten , [ 156 ] obwohl diese ozeanischen Thermoproteota möglicherweise auch andere Energiequellen nutzen. [ 212 ]
In den Sedimenten des Meeresbodens finden sich unzählige Archaeen . Diese Organismen machen mindestens 12,8 % [ 213 ] und stellen vielerorts die Mehrheit der lebenden Zellen in Tiefen von über einem Meter unter dem Meeresboden dar. [ 214 ] [ 215 ] Es wurde gezeigt, dass in allen ozeanischen Oberflächensedimenten (in Wassertiefen von 1.000 bis 10.000 m) die Auswirkungen einer Virusinfektion auf Archaeen stärker sind als auf Bakterien. Die virusinduzierte Lyse von Archaeen trägt bis zu einem Drittel zur gesamten abgetöteten mikrobiellen Biomasse bei, was weltweit zur Freisetzung von etwa 0,3 bis 0,5 Gigatonnen Kohlenstoff pro Jahr führt. [ 216 ]
Rolle im chemischen Kreislauf
Archaeen recyceln Elemente wie Kohlenstoff , Stickstoff und Schwefel in ihren verschiedenen Lebensräumen. [ 217 ] Sie sind an vielen Schritten des Stickstoffkreislaufs beteiligt . Dazu gehören sowohl Reaktionen, die Stickstoff aus Ökosystemen entfernen (wie die nitratbasierte Atmung und Denitrifikation ), als auch Prozesse, die Stickstoff zuführen (wie die Nitratassimilation und die Stickstofffixierung ). [ 218 ] [ 219 ]
Forscher entdeckten kürzlich die Beteiligung von Archaeen an Ammoniakoxidationsreaktionen . Diese Reaktionen sind besonders in den Ozeanen von Bedeutung. [ 157 ] [ 220 ] Auch im Boden scheinen Archaeen eine entscheidende Rolle bei der Ammoniakoxidation zu spielen. Sie produzieren Nitrit , das von anderen Mikroorganismen zu Nitrat oxidiert wird . Pflanzen und andere Organismen nehmen das Nitrat auf. [ 221 ]
Im Schwefelkreislauf setzen Archaeen, die durch die Oxidation von Schwefelverbindungen wachsen, dieses Element aus Gesteinen frei und stellen es so anderen Organismen zur Verfügung. Allerdings produzieren die Archaeen, die dies tun, wie beispielsweise Sulfolobus , Schwefelsäure als Abfallprodukt. Das Wachstum dieser Organismen in stillgelegten Bergwerken kann zur Bildung von saurem Grubenwasser und anderen Umweltschäden beitragen. [ 222 ]
Im Kohlenstoffkreislauf entziehen methanogene Archaeen Wasserstoff und spielen eine wichtige Rolle beim Abbau organischer Substanz durch Mikroorganismen, die als Zersetzer in anaeroben Ökosystemen wie Sedimenten, Sümpfen und Kläranlagen wirken . [ 223 ]
Wechselwirkungen mit anderen Organismen

Die gut charakterisierten Interaktionen zwischen Archaeen und anderen Organismen sind entweder mutualistisch oder kommensal . Bislang gab es keine eindeutigen Beispiele bekannter pathogener oder parasitärer Archaeen [ 224 , 225 ] . Es wurde jedoch vermutet , dass einige Methanogene an Infektionen im Mundraum beteiligt sind [ 226 , 227 ] , und Nanoarchaeum equitans könnte ein Parasit einer anderen Archaeenart sein, da es ausschließlich in den Zellen des Crenarchaeons Ignicoccus hospitalis überlebt und sich dort vermehrt [ 162 ] und seinem Wirt offenbar keinen Nutzen bietet [ 228 ] .
Mutualismus
Mutualismus ist eine Wechselwirkung zwischen Individuen verschiedener Arten, die positive Auswirkungen auf die Reproduktionsrate und/oder das Überleben der beteiligten Populationen hat. Ein gut erforschtes Beispiel für Mutualismus ist die Interaktion zwischen Protozoen und methanogenen Archaeen im Verdauungstrakt von Tieren, die Cellulose verdauen , wie Wiederkäuer und Termiten . [ 229 ] In diesen anaeroben Umgebungen spalten Protozoen pflanzliche Cellulose auf, um Energie zu gewinnen. Dabei entsteht Wasserstoff als Abfallprodukt, doch hohe Wasserstoffkonzentrationen reduzieren die Energieproduktion. Wenn Methanogene Wasserstoff in Methan umwandeln, profitieren die Protozoen von der zusätzlichen Energie. [ 230 ]
In anaeroben Protozoen wie Plagiopyla frontata , Trimyema , Heterometopus und Metopus contortus leben Archaeen im Inneren der Protozoen und verbrauchen den in ihren Hydrogenosomen produzierten Wasserstoff . [ 231 ] [ 232 ] [ 233 ] [ 234 ] [ 235 ] Archaeen leben auch mit größeren Organismen in Symbiose. So ist beispielsweise die marine Archaee Cenarchaeum symbiosum ein Endosymbiont des Schwamms Axinella mexicana . [ 236 ]
Kommensalismus
Einige Archaeen leben als Kommensalen und profitieren von einer Symbiose, ohne dem anderen Organismus zu schaden oder ihn zu schädigen. Beispielsweise ist das Methanogene Methanobrevibacter smithii mit Abstand die häufigste Archaee in der menschlichen Darmflora und macht etwa ein Zehntel der Prokaryoten im menschlichen Darm aus. [ 237 ] Bei Termiten und Menschen könnten diese Methanogene sogar Mutualisten sein und mit anderen Mikroben im Darm interagieren, um die Verdauung zu unterstützen. [ 238 ] Archaeen-Gemeinschaften leben mit einer Reihe anderer Organismen zusammen, beispielsweise auf der Oberfläche von Korallen [ 239 ] und in der Rhizosphäre , der Bodenregion um die Pflanzenwurzeln . [ 240 ] [ 241 ]
Schmarotzertum
Obwohl Archaeen historisch gesehen nicht als Krankheitserreger gelten, weisen sie häufig ähnliche Genome wie verbreitete Pathogene wie E. coli auf [ 242 ] , was auf metabolische Verbindungen und eine gemeinsame Evolutionsgeschichte mit heutigen Krankheitserregern hindeutet. Archaeen wurden in klinischen Studien aufgrund der fehlenden Kategorisierung in spezifischere Arten nur uneinheitlich nachgewiesen [ 243 ] . Das reduzierte Genom von Candidatus Sukunaarchaeum mirabile lässt vermuten, dass es sich um einen spezialisierten Parasiten handelt, der stark von seinem Dinoflagellaten-Wirt abhängig ist [ 244 ].
Bedeutung in Technologie und Industrie
Extremophile Archaeen, insbesondere solche, die hitze- oder alkaliresistent sind, liefern Enzyme , die unter diesen extremen Bedingungen aktiv sind. [ 245 ] [ 246 ] Diese Enzyme finden vielfältige Anwendung. So revolutionierten beispielsweise thermostabile DNA-Polymerasen , wie die Pfu-DNA-Polymerase aus Pyrococcus furiosus , die Molekularbiologie, indem sie die Polymerase-Kettenreaktion ( PCR) als einfache und schnelle Methode zur DNA- Klonierung in der Forschung etablierten . In der Industrie ermöglichen Amylasen , Galactosidasen und Pullulanasen anderer Pyrococcus -Arten , die bei über 100 °C aktiv sind, die Lebensmittelverarbeitung bei hohen Temperaturen, beispielsweise die Herstellung von laktosearmer Milch und Molke . [ 247 ] Enzyme dieser thermophilen Archaeen sind zudem in organischen Lösungsmitteln sehr stabil, was ihren Einsatz in umweltfreundlichen Prozessen der Grünen Chemie zur Synthese organischer Verbindungen ermöglicht. [ 246 ] Aufgrund dieser Stabilität sind sie in der Strukturbiologie leichter anwendbar . Daher werden häufig die Gegenstücke bakterieller oder eukaryotischer Enzyme aus extremophilen Archaeen für Strukturuntersuchungen verwendet. [ 248 ]
Im Gegensatz zu den vielfältigen Anwendungsmöglichkeiten von Archaeenenzymen ist die Nutzung der Organismen selbst in der Biotechnologie weniger weit entwickelt. Methanogene Archaeen sind ein wichtiger Bestandteil der Abwasserbehandlung , da sie zur Mikroorganismengemeinschaft gehören, die anaerobe Vergärung durchführt und Biogas produziert . [ 249 ] In der Mineralaufbereitung zeigen acidophile Archaeen vielversprechende Ansätze für die Gewinnung von Metallen aus Erzen , darunter Gold , Kobalt und Kupfer . [ 250 ]
Archaeen beherbergen eine neue Klasse potenziell nützlicher Antibiotika . Einige dieser Archaeocine wurden bereits charakterisiert, doch man geht davon aus, dass Hunderte weitere existieren, insbesondere in Halobakterien und Sulfolobus . Diese Verbindungen unterscheiden sich strukturell von bakteriellen Antibiotika und könnten daher neuartige Wirkmechanismen aufweisen. Darüber hinaus könnten sie die Entwicklung neuer selektierbarer Marker für die molekulare Biologie der Archaeen ermöglichen. [ 251 ]
Siehe auch
- Aerobe Methanproduktion
- früheste bekannte Lebensformen
- Liste der Archaea-Gattungen
- Liste sequenzierter Archaeen-Genome
- Kernlokalisierungssequenz
- Steigbügelproteindomäne
- Die überraschenden Archaeen (Buch)
- Auf dem Weg zu einem natürlichen System von Organismen: Vorschlag für die Domänen Archaea, Bacteria und Eucarya
- Einzigartige Eigenschaften hyperthermophiler Archaeen
- Verzweigungsreihenfolge der Bakterienstämme (Genom-Taxonomie-Datenbank, 2018)
Referenzen
- ^ a b Göker, Markus; Oren, Aharon (22. Januar 2024). „Gültige Veröffentlichung der Namen zweier Domänen und sieben Reiche der Prokaryoten“ . International Journal of Systematic and Evolutionary Microbiology . 74 (1). doi : 10.1099/ijsem.0.006242 . PMID 38252124 .– Dieser Artikel stellt die gültige Veröffentlichung des Namens Archaea dar. Obwohl Woese den Namen bereits 1990 vorschlug, erlangte er erst mit diesem Artikel aus dem Jahr 2024 Gültigkeit; daher das Datum.
- Parte , Aidan C.; Sardà Carbasse, Joaquim; Meier-Kolthoff, Jan P.; Reimer, Lorenz C.; Göker, Markus (1. November 2020). „ Liste der Prokaryotennamen mit Status in der Nomenklatur (LPSN) wird in die DSMZ verlegt“ . International Journal of Systematic and Evolutionary Microbiology . 70 (11): 5607–5612 . doi : 10.1099 / ijsem.0.004332 . ISSN 1466-5026 . PMC 7723251. PMID 32701423 .
- ^ [Archaea, nicht einer Familie zugeordnet] in LPSN ; Parte, Aidan C.; Sardà Carbasse, Joaquim; Meier-Kolthoff, Jan P.; Reimer, Lorenz C.; Göker, Markus (1. November 2020). „Liste der Prokaryotennamen mit Status in der Nomenklatur (LPSN) wechselt zur DSMZ“ . International Journal of Systematic and Evolutionary Microbiology . 70 (11): 5607–5612 . doi : 10.1099/ijsem.0.004332 .
- ^ Velasco, Israel Muñoz. „El hallazgo de Candidatus Sukunaarchaeum mirabile, una Archaea con el genoma más pequeño hasta ahora descubierto – Laboratorio de Genómica Ambiental, Facultad de Ciencias, Universidad Nacional Autónoma de México“ (auf Spanisch) . Abgerufen am 3. September 2025 .
- ^ Pace NR (Mai 2006). „Zeit für einen Wandel“ . Nature . 441 (7091): 289. Bibcode : 2006Natur.441..289P . doi : 10.1038 / 441289a . PMID 16710401. S2CID 4431143 .
- ^ van Wolferen, Marleen; Pulschen, Andre Arashiro; Baum, Buzz; Gribaldo, Simonetta; Albers, Sonja-Verena (November 2022). „Die Zellbiologie der Archaeen“ . Naturmikrobiologie . 7 (11): 1744–1755 . doi : 10.1038/s41564-022-01215-8 . ISSN 2058-5276 . PMC 7613921 . PMID 36253512 .
- ^ Stoeckenius W (Oktober 1981). „Walsbys quadratisches Bakterium: Feinstruktur eines orthogonalen Prokaryoten“ . Journal of Bacteriology . 148 (1): 352–60 . doi : 10.1128/JB.148.1.352-360.1981 . PMC 216199. PMID 7287626 .
- ^ „Archaea Basic Biology“ . März 2018.
- ^ a b c d Chow C, Padda KP, Puri A, Chanway CP (September 2022). „Ein archaischer Ansatz für ein modernes Problem: Endophytische Archaeen für eine nachhaltige Landwirtschaft“. Current Microbiology . 79 (11) 322. doi : 10.1007/s00284-022-03016-y . PMID 36125558. S2CID 252376815 .
- ^ Bang C, Schmitz RA (September 2015). „Archaeen auf menschlichen Oberflächen: nicht zu unterschätzen“ . FEMS Microbiology Reviews . 39 (5): 631–48 . doi : 10.1093/femsre/fuv010 . PMID 25907112 .
- ^ Moissl-Eichinger C, Pausan M, Taffner J, Berg G, Bang C, Schmitz RA (Januar 2018). „Archaeen sind interaktive Komponenten komplexer Mikrobiome“. Trends in Microbiology . 26 (1): 70–85 . Bibcode : 2018TrMic..26...70M . doi : 10.1016/j.tim.2017.07.004 . PMID 28826642 .
- ^ Hamm J, et al. (31. Juli 2024). „Der parasitäre Lebensstil eines archaischen Symbionten“ . Nature Communications . 15 (1) 6449. Bibcode : 2024NatCo..15.6449H . doi : 10.1038/s41467-024-49962- y . PMC 11291902. PMID 39085207 .
- ^ Staley JT (November 2006). „Das Bakterienarten-Dilemma und das genomisch-phylogenetische Artkonzept“ . Philosophical Transactions of the Royal Society of London. Series B, Biological Sciences . 361 (1475): 1899–909 . doi : 10.1098 / rstb.2006.1914 . PMC 1857736. PMID 17062409 .
- ^ Zuckerkandl E, Pauling L (März 1965). „Moleküle als Dokumente der Evolutionsgeschichte“. Journal of Theoretical Biology . 8 (2): 357–66 . Bibcode : 1965JThBi...8..357Z . doi : 10.1016/0022-5193(65)90083-4 . PMID 5876245 .
- ^ Parks DH, Chuvochina M, Waite DW, Rinke C, Skarshewski A, Chaumeil PA, Hugenholtz P (November 2018). „Eine standardisierte Bakterientaxonomie basierend auf der Genomphylogenie revidiert den Baum des Lebens grundlegend“. Nature Biotechnology . 36 (10): 996–1004 . doi : 10.1038/nbt.4229 . PMID 30148503. S2CID 52093100 .
- ^ Stadtman, TC; Barker, HA (1951). „Studien zur Methangärung. X. Ein neues Formiat-abbauendes Bakterium, Methanococcus vannielii“ . Journal of Bacteriology . 62 (3): 269–280 . doi : 10.1128/jb.62.3.269-280.1951 . ISSN 0021-9193 . PMC 386125. PMID 14888644 .
- ^ a b c d Woese CR, Fox GE (November 1977). „Phylogenetische Struktur der prokaryotischen Domäne: die primären Reiche“ . Proceedings of the National Academy of Sciences of the United States of America . 74 (11): 5088–90 . Bibcode : 1977PNAS...74.5088W . doi : 10.1073 / pnas.74.11.5088 . PMC 432104. PMID 270744 .
- ^ a b Woese CR, Kandler O, Wheelis ML (Juni 1990). „Towards a natural system of organisms: proposal for the domains Archaea, Bacteria, and Eucarya“ . Proceedings of the National Academy of Sciences of the United States of America . 87 (12): 4576–9 . Bibcode : 1990PNAS...87.4576W . doi : 10.1073 / pnas.87.12.4576 . PMC 54159. PMID 2112744 .
- ^ Sapp J (2009). Die neuen Grundlagen der Evolution: Auf dem Baum des Lebens . New York: Oxford University Press. ISBN 978-0-19-973438-2Die
- ^ „Archaea“ . Merriam-Webster Online Dictionary . 2008. Abgerufen am 1. Juli 2008 .
- ^ Magrum LJ, Luehrsen KR, Woese CR (Mai 1978). „Sind extreme Halophile tatsächlich „Bakterien“?“. Journal of Molecular Evolution . 11 (1): 1–8 . Bibcode : 1978JMolE..11....1M . doi : 10.1007/bf01768019 . PMID 660662. S2CID 1291732 .
- ^ Stetter KO (1996). „Hyperthermophile in der Geschichte des Lebens“. Ciba Foundation Symposium . 202 : 1–10 , Diskussion 11–18. PMID 9243007 .
- ^ a b c DeLong EF (Dezember 1998). „Alles in Maßen: Archaeen als ‚Nicht-Extremophile‘“". Current Opinion in Genetics & Development . 8 (6): 649– 54. doi : 10.1016/S0959-437X(98)80032-4 . PMID 9914204 .
- ^ Theron J, Cloete TE (2000). „Molekulare Techniken zur Bestimmung der mikrobiellen Diversität und Gemeinschaftsstruktur in natürlichen Umgebungen“. Critical Reviews in Microbiology . 26 (1): 37–57 . doi : 10.1080/10408410091154174 . PMID 10782339. S2CID 5829573 .
- ^ Schmidt TM (September 2006). „Die Reifung der mikrobiellen Ökologie“ (PDF) . International Microbiology . 9 (3): 217–223 . PMID 17061212. Archiviert vom Original (PDF) am 11. September 2008.
- ^ Gevers D, Dawyndt P, Vandamme P, Willems A, Vancanneyt M, Swings J, et al. (November 2006). „Schritte zu einer neuen prokaryotischen Taxonomie“ . Philosophical Transactions of the Royal Society of London. Series B, Biological Sciences . 361 (1475): 1911–1916 . doi : 10.1098 / rstb.2006.1915 . PMC 1764938. PMID 17062410 .
- ^ a b Robertson CE, Harris JK, Spear JR, Pace NR (Dezember 2005). „Phylogenetische Diversität und Ökologie von Umweltarchaea“. Current Opinion in Microbiology . 8 (6): 638–642 . doi : 10.1016/j.mib.2005.10.003 . PMID 16236543 .
- Göker , Markus; Oren, Aharon (2023). „Gültige Veröffentlichung von vier weiteren Phylumnamen“ . International Journal of Systematic and Evolutionary Microbiology . 73 (9): 006024. doi : 10.1099/ijsem.0.006024 . ISSN 1466-5034 . PMID 37695645 .
- ^ Huber H, Hohn MJ, Rachel R, Fuchs T, Wimmer VC, Stetter KO (Mai 2002). „Ein neues Phylum der Archaeen, repräsentiert durch einen nanoskaligen hyperthermophilen Symbionten“. Nature . 417 ( 6884): 63–67 . Bibcode : 2002Natur.417...63H . doi : 10.1038/417063a . PMID 11986665. S2CID 4395094 .
- Barns SM, Delwiche CF, Palmer JD, Pace NR (August 1996). „ Perspektiven auf die Diversität, Thermophilie und Monophylie von Archaeen anhand von rRNA-Sequenzen aus Umweltproben“ . Proceedings of the National Academy of Sciences of the United States of America . 93 (17): 9188–93 . Bibcode : 1996PNAS...93.9188B . doi : 10.1073/pnas.93.17.9188 . PMC 38617. PMID 8799176 .
- ^ Elkins JG, Podar M, Graham DE, Makarova KS, Wolf Y, Randau L, et al. (Juni 2008). „Ein Korarchaeen-Genom liefert Einblicke in die Evolution der Archaeen“ . Proceedings of the National Academy of Sciences of the United States of America . 105 (23): 8102–07 . Bibcode : 2008PNAS..105.8102E . doi : 10.1073 / pnas.0801980105 . PMC 2430366. PMID 18535141 .
- ^ Baker BJ, Tyson GW, Webb RI, Flanagan J, Hugenholtz P, Allen EE, Banfield JF (Dezember 2006). „Linien acidophiler Archaeen, aufgedeckt durch Genomanalyse von Gemeinschaften“. Science . 314 ( 5807): 1933–35 . Bibcode : 2006Sci...314.1933B . doi : 10.1126/science.1132690 . PMID 17185602. S2CID 26033384 .
- ^ Baker BJ, Comolli LR, Dick GJ, Hauser LJ, Hyatt D, Dill BD, et al. (Mai 2010). „Rätselhafte, ultrakleine, nicht kultivierbare Archaeen“ . Proceedings of the National Academy of Sciences of the United States of America . 107 (19): 8806–11 . Bibcode : 2010PNAS..107.8806B . doi : 10.1073 / pnas.0914470107 . PMC 2889320. PMID 20421484 .
- Guy L, Ettema TJ (Dezember 2011). „Das archaische Superphylum ‚TACK‘ und der Ursprung der Eukaryoten“ . Trends in Microbiology . 19 (12): 580–87 . Bibcode : 2011TrMic..19..580G . doi : 10.1016/j.tim.2011.09.002 . PMID 22018741 .
- ^ a b Zaremba-Niedzwiedzka K, Caceres EF, Saw JH, Bäckström D, Juzokaite L, Vancaester E, et al. (Januar 2017). „Asgard-Archaeen beleuchten den Ursprung der eukaryotischen Zellkomplexität“ . Natur . 541 (7637): 353– 58. Bibcode : 2017Natur.541..353Z . doi : 10.1038/nature21031 . OSTI 1580084 . PMID 28077874 .
- Dombrowski , Nina; Lee, Jun-Hoe; Williams, Tom A.; Offre, Pierre; Spang, Anja (2019). „Genomische Diversität , Lebensweisen und evolutionäre Ursprünge von DPANN-Archaeen“ . FEMS Microbiology Letters . 366 (2). doi : 10.1093/femsle/fnz008 . PMC 6349945. PMID 30629179 .
- ^ Petitjean C, Deschamps P, López-García P, Moreira D (Dezember 2014). „Die Verankerung der Domäne Archaea durch phylogenomische Analysen unterstützt die Gründung des neuen Reiches Proteoarchaeota“ . Genome Biology and Evolution . 7 (1): 191–204 . doi : 10.1093/gbe/ evu274 . PMC 4316627. PMID 25527841 .
- ^ a b Williams TA, Szöllősi GJ, Spang A, Foster PG, Heaps SE, Boussau B, et al. (Juni 2017). „Integrative Modellierung der Gen- und Genom-Evolution verankert den archaischen Stammbaum des Lebens“ . Proceedings of the National Academy of Sciences of the United States of America . 114 (23): E4602– E4611 . Bibcode : 2017PNAS..114E4602W . doi : 10.1073/pnas.1618463114 . PMC 5468678. PMID 28533395 .
- ^ a b Castelle CJ, Banfield JF (2018). „Wichtige neue mikrobielle Gruppen erweitern die Diversität und verändern unser Verständnis des Baums des Lebens“ . Cell . 172 (6): 1181–1197 . doi : 10.1016/j.cell.2018.02.016 . PMID 29522741 .
- ^ a b „GTDB Release 11-RS232“ . Genome Taxonomy Database . Abgerufen am 1. Mai 2026 .
- ^ a b "ar53_r232.sp_label" . Genome Taxonomy Database . Abgerufen am 1. Mai 2026 .
- ^ a b „Taxon History“ . Genome Taxonomy Database . Abgerufen am 1. Mai 2026 .
- ^ a b Zhang, Jiawei; Feng, Xiaoyuan; Li, Meng; Liu, Yang; Liu, Min; Hou, Li-Jun; Dong, Hong-Po (7. Mai 2025). „Tiefer Ursprung der Eukaryoten außerhalb der Heimdallarchaeia innerhalb der Asgardarchaeota“ . Nature . 642 (8069): 990–998 . Bibcode : 2025Natur.642..990Z . doi : 10.1038 / s41586-025-08955-7 . ISSN 1476-4687 . PMC 12222021. PMID 40335687 .
- Hamm , JN; Dombrowski, N; Valentin-Alvarado, LE; Greening, C; Williams, TA; Spang, A. (15. Mai 2026). „Neue Abstammungslinien liefern Einblicke in die konvergente Evolution extremer Salzanpassung innerhalb symbiotischer Archaeen“ . Molecular Biology and Evolution . 43 (5) msag091. doi : 10.1093 / molbev/msag091 . PMC 13195033. PMID 42139541 .
- ^ de Queiroz K (Mai 2005). „Ernst Mayr und der moderne Artenbegriff“ . Proceedings of the National Academy of Sciences of the United States of America . 102 (Supplement 1): 6600–6007 . Bibcode : 2005PNAS..102.6600D . doi : 10.1073 / pnas.0502030102 . PMC 1131873. PMID 15851674 .
- ^ Eppley JM, Tyson GW, Getz WM, Banfield JF (September 2007). „Genetischer Austausch über eine Artengrenze hinweg in der Archaeengattung Ferroplasma“ . Genetics . 177 ( 1): 407–16 . Bibcode : 2007Genet.177..407E . doi : 10.1534/genetics.107.072892 . PMC 2013692. PMID 17603112 .
- ^ Papke RT, Zhaxybayeva O, Feil EJ, Sommerfeld K, Muise D, Doolittle WF (August 2007). „Suche nach Arten in Haloarchaea“ . Proceedings of the National Academy of Sciences of the United States of America . 104 (35): 14092–97 . Bibcode : 2007PNAS..10414092P . doi : 10.1073/pnas.0706358104 . PMC 1955782. PMID 17715057 .
- ^ Kunin V, Goldovsky L, Darzentas N, Ouzounis CA (Juli 2005). „Das Netz des Lebens: Rekonstruktion des mikrobiellen phylogenetischen Netzwerks“ . Genome Research . 15 (7): 954–59 . doi : 10.1101/gr.3666505 . PMC 1172039. PMID 15965028 .
- ^ Hugenholtz P (2002). „Erforschung der prokaryotischen Diversität im Genomzeitalter“ . Genome Biology . 3 (2) REVIEWS0003. doi : 10.1186/gb-2002-3-2-reviews0003 . PMC 139013. PMID 11864374 .
- ^ Rappé MS, Giovannoni SJ (2003). „Die nicht kultivierbare mikrobielle Mehrheit“. Annual Review of Microbiology . 57 : 369–94 . doi : 10.1146/annurev.micro.57.030502.090759 . PMID 14527284. S2CID 10781051 .
- ^ Oren A, Garrity GM (2021). „Gültige Veröffentlichung der Namen von zweiundvierzig Stämmen der Prokaryoten“ . Int J Syst Evol Microbiol . 71 (10): 5056. doi : 10.1099/ijsem.0.005056 . PMID 34694987. S2CID 239887308 .
- Göker , Markus; Oren, Aharon (11. September 2023). „Gültige Veröffentlichung von vier weiteren Stammnamen“ . International Journal of Systematic and Evolutionary Microbiology . 73 (9). doi : 10.1099/ijsem.0.006024 . PMID 37695645 .
- Valentin -Alvarado, Luis E.; Appler, Kathryn E.; De Anda, Valerie; Schoelmerich, Marie C.; West-Roberts, Jacob; Kivenson, Veronika; Crits-Christoph, Alexander; Ly, Lynn; Sachdeva, Rohan; Greening, Chris; Savage, David F.; Baker, Brett J.; Banfield, Jillian F. (31. Juli 2024). „Asgard-Archaeen modulieren potenzielle Methanogenese-Substrate in Feuchtbodenböden“ . Nature Communications . 15 (1): 6384. Bibcode : 2024NatCo..15.6384V . doi : 10.1038/s41467-024-49872-z . ISSN 2041-1723 . PMC 11291895 . PMID 39085194 .
- ^ „Alter der Erde“ . US Geological Survey. 1997. Archiviert vom Original am 23. Dezember 2005. Abgerufen am 10. Januar 2006 .
- ^ Dalrymple GB (2001). „Das Alter der Erde im 20. Jahrhundert: ein (weitgehend) gelöstes) Problem“. Special Publications, Geological Society of London . 190 (1): 205–221 . Bibcode : 2001GSLSP.190..205D . doi : 10.1144/GSL.SP.2001.190.01.14 . S2CID 130092094 .
- ^ Manhesa G, Allègre CJ, Dupréa B, Hamelin B (1980). „Bleiisotopenuntersuchung basischer bis ultrabasischer Schichtkomplexe: Spekulationen über das Alter der Erde und die Eigenschaften des primitiven Mantels“. Earth and Planetary Science Letters . 47 (3): 370–82 . Bibcode : 1980E&PSL..47..370M . doi : 10.1016/0012-821X(80)90024-2 .
- ^ de Duve C (Oktober 1995). „Die Anfänge des Lebens auf der Erde“ . American Scientist . Archiviert vom Original am 6. Juni 2017. Abgerufen am 15. Januar 2014 .
- ^ Timmer J (4. September 2012). „3,5 Milliarden Jahre alte organische Ablagerungen weisen Lebensspuren auf“ . Ars Technica . Abgerufen am 15. Januar 2014 .
- ^ Ohtomo Y, Kakegawa T, Ishida A, Nagase T, Rosingm MT (8. Dezember 2013). „Hinweise auf biogenen Graphit in frühen archaischen Isua-Metasedimentgesteinen“. Naturgeowissenschaften . 7 (1): 25. Bibcode : 2014NatGe...7...25O . doi : 10.1038/ngeo2025 .
- ^ Borenstein S (13. November 2013). „Ältestes Fossil gefunden: Lernen Sie Ihre mikrobielle Mutter kennen“ . Associated Press. Archiviert vom Original am 29. Juni 2015. Abgerufen am 15. November 2013 .
- ^ Noffke N , Christian D, Wacey D, Hazen RM (Dezember 2013). „Mikrobiell induzierte Sedimentstrukturen dokumentieren ein uraltes Ökosystem in der ca. 3,48 Milliarden Jahre alten Dresser-Formation, Pilbara, Westaustralien“ . Astrobiology . 13 ( 12): 1103–24 . Bibcode : 2013AsBio..13.1103N . doi : 10.1089/ast.2013.1030 . PMC 3870916. PMID 24205812 .
- ^ Borenstein S (19. Oktober 2015). „Hinweise auf Leben auf der vermeintlich öden frühen Erde“ . Excite . Yonkers, NY: Mindspark Interactive Network . Associated Press . Archiviert vom Original am 1. Oktober 2018. Abgerufen am 20. Oktober 2015 .
- ^ Bell EA, Boehnke P, Harrison TM, Mao WL (November 2015). „Potenziell biogener Kohlenstoff in einem 4,1 Milliarden Jahre alten Zirkon“ . Proceedings of the National Academy of Sciences of the United States of America . 112 (47): 14518–21 . Bibcode : 2015PNAS..11214518B . doi : 10.1073/pnas.1517557112 . PMC 4664351. PMID 26483481 .
- ^ Schopf JW (Juni 2006). „ Fossilienbelege archaischen Lebens“ . Philosophical Transactions of the Royal Society of London. Series B, Biological Sciences . 361 (1470): 869–885 . doi : 10.1098/rstb.2006.1834 . PMC 1578735. PMID 16754604 .
- Chappe B, Albrecht P, Michaelis W (Juli 1982). „Polare Lipide von Archaeen in Sedimenten und Erdölen“. Science . 217 (4554): 65–66 . Bibcode : 1982Sci...217...65C . doi : 10.1126 / science.217.4554.65 . PMID 17739984. S2CID 42758483 .
- ^ Brocks JJ, Logan GA, Buick R, Summons RE (August 1999). „Archäische molekulare Fossilien und der frühe Aufstieg der Eukaryoten“. Wissenschaft . 285 (5430): 1033–36 . Bibcode : 1999Sci...285.1033B . CiteSeerX 10.1.1.516.9123 . doi : 10.1126/science.285.5430.1033 . PMID 10446042 .
- ^ Rasmussen B, Fletcher IR, Brocks JJ, Kilburn MR (Oktober 2008). „Neubewertung des ersten Auftretens von Eukaryoten und Cyanobakterien“. Nature . 455 ( 7216): 1101–4 . Bibcode : 2008Natur.455.1101R . doi : 10.1038/nature07381 . PMID 18948954. S2CID 4372071 .
- Hahn J, Haug P (1986). „Spuren von Archaebakterien in alten Sedimenten“. System Applied Microbiology . 7 (Archaebacteria '85 Proceedings): 178–83 . Bibcode : 1986SyApM...7..178H . doi : 10.1016/S0723-2020(86)80002-9 .
- ^ Wang M, Yafremava LS, Caetano-Anollés D, Mittenthal JE, Caetano-Anollés G (November 2007). „ Reduktive Evolution architektonischer Repertoires in Proteomen und die Entstehung der dreiteiligen Welt“ . Genome Research . 17 (11): 1572–85 . doi : 10.1101/gr.6454307 . PMC 2045140. PMID 17908824 .
- ^ Woese CR, Gupta R (Januar 1981). „ Sind Archaebakterien lediglich abgeleitete ‚Prokaryoten‘?“. Nature . 289 (5793): 95–96 . Bibcode : 1981Natur.289...95W . doi : 10.1038/289095a0 . PMID 6161309. S2CID 4343245 .
- ^ a b c Woese C (Juni 1998). „Der universelle Vorfahre“ . Proceedings of the National Academy of Sciences of the United States of America . 95 (12): 6854–59 . Bibcode : 1998PNAS...95.6854W . doi : 10.1073 / pnas.95.12.6854 . PMC 22660. PMID 9618502 .
- ^ a b Kandler OT (August 1998). „Die frühe Diversifizierung des Lebens und der Ursprung der drei Domänen: ein Vorschlag.“ In: Wiegel J, Adams WW (Hrsg.). Thermophile: Die Schlüssel zur molekularen Evolution und zum Ursprung des Lebens . Athen: Taylor and Francis. S. 19–31 . ISBN 978-1-4822-7304-5Die
- ^ Gribaldo S, Brochier-Armanet C (Juni 2006). „Der Ursprung und die Evolution der Archaeen: ein Überblick über den Forschungsstand“ . Philosophical Transactions of the Royal Society of London. Series B, Biological Sciences . 361 (1470): 1007–22 . doi : 10.1098/rstb.2006.1841 . PMC 1578729. PMID 16754611 .
- ^ a b Woese CR (März 1994). „Es muss irgendwo einen Prokaryoten geben: Die Suche der Mikrobiologie nach sich selbst“ . Microbiological Reviews . 58 (1): 1–9 . doi : 10.1128/MMBR.58.1.1-9.1994 . PMC 372949. PMID 8177167 .
- ^ Die Informationen stammen aus Willey JM, Sherwood LM, Woolverton CJ. Microbiology 7th ed. (2008), Kap. 19 S. 474–475, sofern nicht anders angegeben.
- ^ Heimerl T, Flechsler J, Pickl C, Heinz V, Salecker B, Zweck J, Wanner G, Geimer S, Samson RY, Bell SD, Huber H, Wirth R, Wurch L, Podar M, Rachel R (13. Juni 2017). „Ein komplexes Endomembransystem im Archaeon Ignicoccus hospitalis wird von Nanoarchaeum equitans erschlossen “ . Grenzen in der Mikrobiologie . 8 1072. doi : 10.3389/fmicb.2017.01072 . PMC 5468417 . PMID 28659892 .
- ^ Jurtshuk P (1996). „Bakterienstoffwechsel“ . Medizinische Mikrobiologie (4. Aufl.). Galveston (TX): University of Texas Medical Branch at Galveston. ISBN 978-0-9631172-1-2PMID 21413278 .
- ^ Howland JL (2000). Die überraschenden Archaeen: Die Entdeckung einer weiteren Lebensdomäne . Oxford: Oxford University Press. S. 25–30 . ISBN 978-0-19-511183-5Die
- ^ a b c Cavicchioli R (Januar 2011). „Archaea – timeline of the third domain“. Nature Reviews Microbiology . 9 (1): 51–61 . doi : 10.1038/nrmicro2482 . PMID 21132019. S2CID 21008512 .
- ^ Gupta RS, Shami A (Februar 2011) . „Molekulare Signaturen für die Crenarchaeota und die Thaumarchaeota“. Antonie van Leeuwenhoek . 99 (2): 133–57 . doi : 10.1007/s10482-010-9488-3 . PMID 20711675. S2CID 12874800 .
- ^ Gao B, Gupta RS (März 2007). „Phylogenomische Analyse von Proteinen, die für Archaeen und ihre Hauptuntergruppen charakteristisch sind, und der Ursprung der Methanogenese“ . BMC Genomics . 8 (1): 86. Bibcode : 2007BMCG....8...86G . doi : 10.1186/1471-2164-8-86 . PMC 1852104. PMID 17394648 .
- ^ Gupta RS, Naushad S, Baker S (März 2015). „Phylogenomische Analysen und molekulare Signaturen für die Klasse Halobacteria und ihre beiden Hauptklassen: ein Vorschlag zur Aufteilung der Klasse Halobacteria in eine geänderte Ordnung Halobacterias und zwei neue Ordnungen, Haloferacales ord. nov. und Natrialbales ord. nov., die die neuartigen Familien Haloferacaceae fam. nov. und Natrialbaceae fam. nov enthalten“ . Internationale Zeitschrift für systematische und evolutionäre Mikrobiologie . 65 (Teil 3): 1050–69 . Bibcode : 2015IJSEM..65.1050G . doi : 10.1099/ijs.0.070136-0 . PMID 25428416 .
- ^ Deppenmeier U (2002). Die einzigartige Biochemie der Methanogenese . Fortschritte in der Nukleinsäureforschung und Molekularbiologie. Band 71. S. 223–283 . doi : 10.1016/s0079-6603(02)71045-3 . ISBN 978-0-12-540071-8PMID 12102556 .
- ^ Martin W, Russell MJ (Januar 2003). „Über den Ursprung der Zellen: Eine Hypothese für die evolutionären Übergänge von der abiotischen Geochemie zu chemoautotrophen Prokaryoten und von Prokaryoten zu kernhaltigen Zellen“ . Philosophical Transactions of the Royal Society of London. Series B, Biological Sciences . 358 (1429): 59–85 . doi : 10.1098/rstb.2002.1183 . PMC 1693102. PMID 12594918 .
- ^ Jordan SF, Nee E, Lane N (Dezember 2019). „Isoprenoide erhöhen die Stabilität von Fettsäuremembranen bei der Entstehung des Lebens und führen möglicherweise zu einer frühen Lipidteilung“ . Interface Focus . 9 (6) 20190067. doi : 10.1098/rsfs.2019.0067 . PMC 6802135. PMID 31641436 .
- ^ Ciccarelli FD, Doerks T, von Mering C, Creevey CJ, Snel B, Bork P (März 2006). „Zur automatischen Rekonstruktion eines hochaufgelösten Stammbaums des Lebens“. Science . 311 ( 5765): 1283–1287 . Bibcode : 2006Sci...311.1283C . CiteSeerX 10.1.1.381.9514 . doi : 10.1126/science.1123061 . PMID 16513982. S2CID 1615592 .
- ^ Koonin EV, Mushegian AR, Galperin MY, Walker DR (August 1997). „Vergleich von Archaeen- und Bakteriengenomen: Computeranalyse von Proteinsequenzen sagt neue Funktionen voraus und deutet auf einen chimären Ursprung der Archaeen hin“ . Molecular Microbiology . 25 (4): 619–637 . doi : 10.1046/j.1365-2958.1997.4821861.x . PMID 9379893. S2CID 36270763 .
- ^ a b c d e Gupta RS (Dezember 1998). „Proteinphylogenien und Signatursequenzen: Eine Neubewertung der evolutionären Beziehungen zwischen Archaebakterien, Eubakterien und Eukaryoten“ . Microbiology and Molecular Biology Reviews . 62 (4): 1435–1491 . doi : 10.1128/MMBR.62.4.1435-1491.1998 . PMC 98952. PMID 9841678 .
- ^ Koch AL (April 2003). „Waren grampositive Stäbchen die ersten Bakterien?“. Trends in Microbiology . 11 (4): 166–170 . doi : 10.1016/S0966-842X(03)00063-5 . PMID 12706994 .
- ^ a b c Gupta RS (August 1998). „Was sind Archaebakterien: Die dritte Domäne des Lebens oder monoderme Prokaryoten , die mit grampositiven Bakterien verwandt sind? Ein neuer Vorschlag zur Klassifizierung prokaryotischer Organismen“ . Molecular Microbiology . 29 (3): 695–707 . doi : 10.1046/j.1365-2958.1998.00978.x . PMID 9723910. S2CID 41206658 .
- ^ Gogarten JP (November 1994). „Welche ist die am besten konservierte Proteingruppe? Homologie-Orthologie, Paralogie, Xenologie und die Fusion unabhängiger Abstammungslinien“. Journal of Molecular Evolution . 39 (5): 541–543 . Bibcode : 1994JMolE..39..541G . doi : 10.1007 / bf00173425 . PMID 7807544. S2CID 44922755 .
- ^ Brown JR, Masuchi Y, Robb FT, Doolittle WF (Juni 1994). „Evolutionäre Verwandtschaftsverhältnisse bakterieller und archaischer Glutaminsynthetase-Gene“. Journal of Molecular Evolution . 38 (6): 566–576 . Bibcode : 1994JMolE..38..566B . doi : 10.1007/BF00175876 . PMID 7916055. S2CID 21493521 .
- ^ Katz LA (September 2015). „Rezente Ereignisse dominieren den lateralen Gentransfer zwischen Prokaryoten und Eukaryoten, und mit Ausnahme endosymbiotischer Gentransfers sind nur wenige ältere Transferereignisse erhalten geblieben . “ Philosophical Transactions of the Royal Society of London. Series B, Biological Sciences . 370 (1678) 20140324. doi : 10.1098/rstb.2014.0324 . PMC 4571564. PMID 26323756 .
- ^ a b c Gupta RS ( 2000). „Die natürlichen evolutionären Beziehungen zwischen Prokaryoten“. Critical Reviews in Microbiology . 26 (2): 111–131 . CiteSeerX 10.1.1.496.1356 . doi : 10.1080/10408410091154219 . PMID 10890353. S2CID 30541897 .
- ^ Gupta RS (2005). „Molekulare Sequenzen und die Frühgeschichte des Lebens“. In: Sapp J (Hrsg.). Mikrobielle Phylogenie und Evolution: Konzepte und Kontroversen . New York, NY: Oxford University Press. S. 160–183 .
- ^ Cavalier-Smith T (Januar 2002). „Der neomuranische Ursprung der Archaebakterien, die negibakterielle Wurzel des universellen Baums und die bakterielle Megaklassifizierung“ . International Journal of Systematic and Evolutionary Microbiology . 52 (Teil 1): 7–76 . Bibcode : 2002IJSEM..52....7C . doi : 10.1099/00207713-52-1-7 . PMID 11837318 .
- ^ Valas RE, Bourne PE (Februar 2011). „Der Ursprung eines abgeleiteten Superreichs: Wie ein grampositives Bakterium die Wüste durchquerte und zu einem Archaeon wurde“ . Biology Direct . 6 : 16. doi : 10.1186/1745-6150-6-16 . PMC 3056875. PMID 21356104 .
- ^ Skophammer RG, Herbold CW, Rivera MC, Servin JA, Lake JA (September 2006). „Beweise dafür, dass die Wurzel des Baumes des Lebens nicht in den Archaeen liegt“ . Molecular Biology and Evolution . 23 (9): 1648–1651 . doi : 10.1093/molbev/msl046 . PMID 16801395 .
- ^ a b Latorre A, Durban A, Moya A, Pereto J (2011). „Die Rolle der Symbiose in der eukaryotischen Evolution“ . In: Gargaud M, López-García P, Martin H (Hrsg.). Ursprung und Evolution des Lebens: Eine astrobiologische Perspektive . Cambridge: Cambridge University Press. S. 326–339 . ISBN 978-0-521-76131-4Archiviert vom Original am 24. März 2019. Abgerufen am 27. August 2017 .
- ^ Eme L, Spang A, Lombard J, Stairs CW, Ettema TJG (November 2017). „Archaea and the origin of eukaryotes“. Nature Reviews Microbiology . 15 (12): 711–723 . doi : 10.1038/nrmicro.2017.133 . PMID 29123225. S2CID 8666687 .
- ^ Lake JA (Januar 1988). „Ursprung des eukaryotischen Zellkerns bestimmt durch rateninvariante Analyse von rRNA-Sequenzen“. Nature . 331 ( 6152): 184–86 . Bibcode : 1988Natur.331..184L . doi : 10.1038/331184a0 . PMID 3340165. S2CID 4368082 .
- ^ Nelson KE, Clayton RA, Gill SR, Gwinn ML, Dodson RJ, Haft DH et al. (Mai 1999). „Nachweis horizontalen Gentransfers zwischen Archaeen und Bakterien anhand der Genomsequenz von Thermotoga maritima“. Nature . 399 ( 6734): 323–29 . Bibcode : 1999Natur.399..323N . doi : 10.1038/20601 . PMID 10360571. S2CID 4420157 .
- ^ Gouy M, Li WH (Mai 1989). „Phylogenetische Analyse basierend auf rRNA-Sequenzen stützt den archäobakteriellen Stammbaum anstelle des Eocyten-Stammbaums“. Nature . 339 ( 6220): 145–47 . Bibcode : 1989Natur.339..145G . doi : 10.1038/339145a0 . PMID 2497353. S2CID 4315004 .
- ^ Yutin N, Makarova KS, Mekhedov SL, Wolf YI, Koonin EV (August 2008). „Die tiefen archaischen Wurzeln der Eukaryoten“ . Molecular Biology and Evolution . 25 (8): 1619–30 . doi : 10.1093 / molbev/msn108 . PMC 2464739. PMID 18463089 .
- ^ Williams TA, Foster PG, Cox CJ, Embley TM (Dezember 2013). „Ein archaischer Ursprung der Eukaryoten stützt nur zwei primäre Domänen des Lebens“. Nature . 504 (7479): 231–36 . Bibcode : 2013Natur.504..231W . doi : 10.1038/nature12779 . PMID 24336283 .
- ^ Zimmer C (6. Mai 2015). „Unter dem Meer: Ein fehlendes Glied in der Evolution komplexer Zellen“ . The New York Times . Abgerufen am 6. Mai 2015 .
- ^ Spang A, Saw JH, Jørgensen SL, Zaremba-Niedzwiedzka K, Martijn J, Lind AE, van Eijk R, Schleper C, Guy L, Ettema TJ (Mai 2015). „Komplexe Archaeen, die die Lücke zwischen Prokaryoten und Eukaryoten schließen“ . Natur . 521 (7551): 173– 179. Bibcode : 2015Natur.521..173S . doi : 10.1038/nature14447 . PMC 4444528 . PMID 25945739 .
- ^ NCBI-Taxonomieseite zu Archaeen
- ^ Seitz KW, Lazar CS, Hinrichs KU, Teske AP, Baker BJ (Juli 2016). „Genomische Rekonstruktion eines neuen, tief verzweigten Archaeen-Phylums aus Sedimenten mit Stoffwechselwegen für Acetogenese und Schwefelreduktion“ . The ISME Journal . 10 ( 7 ): 1696–705 . Bibcode : 2016ISMEJ..10.1696S . doi : 10.1038/ismej.2015.233 . PMC 4918440. PMID 26824177 .
- ^ MacLeod F, Kindler GS, Wong HL, Chen R, Burns BP (2019). „Asgard-Archaeen: Diversität, Funktion und evolutionäre Implikationen in verschiedenen Mikrobiomen“ . AIMS Microbiology . 5 (1): 48–61 . Bibcode : 2019AIMSM...5...48M . doi : 10.3934/microbiol.2019.1.48 . PMC 6646929. PMID 31384702 .
- ^ Zimmer C (15. Januar 2020). „Dieses seltsame Mikroorganismus könnte einen der größten Entwicklungssprünge des Lebens markieren – Ein im Meeresschlamm lebender Organismus liefert Hinweise auf den Ursprung der komplexen Zellen aller Tiere und Pflanzen“ . The New York Times . Abgerufen am 16. Januar 2020 .
- ^ Imachi H, Nobu MK, Nakahara N, Morono Y, Ogawara M, Takaki Y, et al. (Januar 2020). „Isolierung eines Archaeons an der Prokaryoten-Eukaryoten-Grenzfläche“ . Natur . 577 (7791): 519– 525. Bibcode : 2020Natur.577..519I . doi : 10.1038/s41586-019-1916-6 . PMC 7015854 . PMID 31942073 .
- ^ Tirumalai MR, Sivaraman RV, Kutty LA, Song EL, Fox GE (September 2023). „Organisation ribosomaler Proteincluster in Asgard-Archaeen“ . Archaea . 2023 : 1–16 . Bibcode : 2023Archa202312414T . doi : 10.1155 /2023/5512414 . PMC 10833476. PMID 38314098 .
- Krieg N ( 2005). Bergey’s Manual of Systematic Bacteriology . USA : Springer. S. 21–26 . ISBN 978-0-387-24143-2Die
- ^ Barns S, Burggraf S (1997). "Crenarchaeota" . The Tree of Life Web Project . Version 01 Januar 1997.
- ^ Walsby AE (1980). „Ein quadratisches Bakterium“. Nature . 283 (5742): 69–71 . Bibcode : 1980Natur.283...69W . doi : 10.1038/283069a0 . S2CID 4341717 .
- ^ Hara F, Yamashiro K, Nemoto N, Ohta Y, Yokobori S, Yasunaga T, et al. (März 2007). „Ein Aktin-Homolog des Archaebakteriums Thermoplasma acidophilum, das die ursprünglichen Eigenschaften von eukaryotischem Aktin beibehält“ . Journal of Bacteriology . 189 (5): 2039–45 . doi : 10.1128/JB.01454-06 . PMC 1855749. PMID 17189356 .
- Trent JD, Kagawa HK, Yaoi T, Olle E, Zaluzec NJ (Mai 1997). „Chaperoninfilamente: Das Zytoskelett der Archaeen?“ Proceedings of the National Academy of Sciences of the United States of America . 94 (10): 5383–88 . Bibcode : 1997PNAS...94.5383T . doi : 10.1073 / pnas.94.10.5383 . PMC 24687. PMID 9144246 .
- ^ Hixon WG, Searcy DG (1993). „Zytoskelett im Archaebakterium Thermoplasma acidophilum? Viskositätsanstieg in löslichen Extrakten“. Bio Systems . 29 ( 2–3 ): 151–60 . Bibcode : 1993BiSys..29..151H . doi : 10.1016/0303-2647(93)90091-P . PMID 8374067 .
- ^ a b Golyshina OV, Pivovarova TA, Karavaiko GI, Kondratéva TF, Moore ER, Abraham WR, et al. (Mai 2000). „Ferroplasma acidiphilum gen. nov., sp. nov., ein acidophiles, autotrophes, Eisen(II)-oxidierendes, zellwandloses, mesophiles Mitglied der Ferroplasmaceae fam. nov., das eine eigenständige Linie der Archaea darstellt“ . International Journal of Systematic and Evolutionary Microbiology . 50 (3): 997–1006 . doi : 10.1099/00207713-50-3-997 . PMID 10843038 .
- ^ Hall-Stoodley L, Costerton JW, Stoodley P (Februar 2004). „Bakterielle Biofilme: von der natürlichen Umwelt zu Infektionskrankheiten“. Nature Reviews Microbiology . 2 (2): 95–108 . doi : 10.1038/nrmicro821 . PMID 15040259. S2CID 9107205 .
- ^ Kuwabara T, Minaba M, Iwayama Y, Inouye I, Nakashima M, Marumo K, et al. (November 2005). „Thermococcus coalescens sp. nov., ein zellverschmelzendes hyperthermophiles Archäon vom Suiyo Seamount“ . Internationale Zeitschrift für systematische und evolutionäre Mikrobiologie . 55 (Teil 6): 2507–14 . Bibcode : 2005IJSEM..55.2507K . doi : 10.1099/ijs.0.63432-0 . PMID 16280518 .
- ^ Nickell S, Hegerl R, Baumeister W, Rachel R (Januar 2003). „Pyrodictium-Kanülen gelangen in den periplasmatischen Raum, aber nicht in das Zytoplasma, wie durch Kryo-Elektronen-Tomographie gezeigt wurde“. Journal of Structural Biology . 141 (1): 34–42 . doi : 10.1016/S1047-8477(02)00581-6 . PMID 12576018 .
- Horn C, Paulmann B, Kerlen G, Junker N, Huber H (August 1999). „In-vivo-Beobachtung der Zellteilung anaerober Hyperthermophiler mittels Dunkelfeldmikroskopie mit hoher Lichtintensität“ . Journal of Bacteriology . 181 (16): 5114–18 . doi : 10.1128/JB.181.16.5114-5118.1999 . PMC 94007. PMID 10438790 .
- ^ Rudolph C, Wanner G, Huber R (Mai 2001). „Natürliche Gemeinschaften neuartiger Archaeen und Bakterien, die in kalten schwefelhaltigen Quellen mit perlschnurartiger Morphologie wachsen“ . Applied and Environmental Microbiology . 67 (5): 2336–44 . Bibcode : 2001ApEnM..67.2336R . doi : 10.1128 / AEM.67.5.2336-2344.2001 . PMC 92875. PMID 11319120 .
- ^ a b Thomas NA, Bardy SL, Jarrell KF (April 2001). „Das archäale Flagellum: eine andere Art von prokaryotischer Motilitätsstruktur“. FEMS Microbiology Reviews . 25 (2): 147–74 . Bibcode : 2001FEMMR..25..147T . doi : 10.1111/j.1574-6976.2001.tb00575.x . PMID 11250034 .
- ^ Rachel R, Wyschkony I, Riehl S, Huber H (März 2002). „Die Ultrastruktur von Ignicoccus: Hinweise auf eine neuartige äußere Membran und auf intrazelluläre Vesikelbildung in einem Archaebakterium“ . Archaea . 1 (1): 9–18 . doi : 10.1155/2002/307480 . PMC 2685547. PMID 15803654 .
- ^ Sára M, Sleytr UB (Februar 2000). „S-Layer-Proteine“ . Journal of Bacteriology . 182 (4): 859–68 . doi : 10.1128/JB.182.4.859-868.2000 . PMC 94357. PMID 10648507 .
- ^ Engelhardt H, Peters J (Dezember 1998). „Strukturelle Untersuchungen an Oberflächenschichten: Fokus auf Stabilität, Homologiedomänen von Oberflächenschichten und Wechselwirkungen zwischen Oberflächenschichten und Zellwänden“. Journal of Structural Biology . 124 ( 2–3 ): 276–302 . doi : 10.1006/jsbi.1998.4070 . PMID 10049812 .
- ^ a b Kandler O, König H (April 1998). „Zellwandpolymere in Archaea (Archaebacteria)“ . Cellular and Molecular Life Sciences . 54 (4 ) : 305–08 . doi : 10.1007 / s000180050156 . PMC 11147200. PMID 9614965. S2CID 13527169 .
- ^ Howland JL (2000). Die überraschenden Archaeen: Die Entdeckung einer weiteren Lebensdomäne . Oxford: Oxford University Press. S. 32. ISBN 978-0-19-511183-5Die
- ^ Gophna U, Ron EZ, Graur D (Juli 2003). „Bakterielle Typ-III-Sekretionssysteme sind uralt und entstanden durch mehrere horizontale Gentransferereignisse“. Gene . 312 : 151–63 . doi : 10.1016/S0378-1119(03)00612-7 . PMID 12909351 .
- ^ Nguyen L, Paulsen IT, Tchieu J, Hueck CJ, Saier MH (April 2000). „Phylogenetische Analysen der Bestandteile von Typ-III-Proteinsekretionssystemen“. Journal of Molecular Microbiology and Biotechnology . 2 (2): 125–44 . PMID 10939240 .
- ^ Ng SY, Chaban B, Jarrell KF (2006). „Archaeale Flagellen, bakterielle Flagellen und Typ-IV-Pili: Ein Vergleich von Genen und posttranslationalen Modifikationen“. Journal of Molecular Microbiology and Biotechnology . 11 ( 3–5 ): 167–91 . doi : 10.1159 / 000094053 . PMID 16983194. S2CID 30386932 .
- ^ Bardy SL, Ng SY, Jarrell KF (Februar 2003). „Prokaryotische Motilitätsstrukturen“ . Microbiology . 149 (Teil 2): 295–304 . doi : 10.1099 /mic.0.25948-0 . PMID 12624192. S2CID 20751743 .
- ^ a b Koga Y, Morii H (März 2007). „Biosynthese von Ether-artigen polaren Lipiden in Archaeen und evolutionäre Betrachtungen“ . Microbiology and Molecular Biology Reviews . 71 (1): 97–120 . doi : 10.1128/MMBR.00033-06 . PMC 1847378. PMID 17347520 .
- ^ Youssefian S, Rahbar N, Van Dessel S (Mai 2018). „Wärmeleitfähigkeit und Gleichrichtung in asymmetrischen Lipidmembranen von Archaeen“. The Journal of Chemical Physics . 148 (17) 174901. Bibcode : 2018JChPh.148q4901Y . doi : 10.1063/1.5018589 . PMID 29739208 .
- ^ De Rosa M, Gambacorta A, Gliozzi A (März 1986). „Struktur, Biosynthese und physikochemische Eigenschaften von Archaeenlipiden“ . Microbiological Reviews . 50 (1): 70–80 . doi : 10.1128/MMBR.50.1.70-80.1986 . PMC 373054. PMID 3083222 .
- ^ Balleza D, Garcia-Arribas AB, Sot J, Ruiz-Mirazo K, Goñi FM (September 2014). „Ether- versus ester-verknüpfte Phospholipid-Doppelschichten mit linearen oder verzweigten apolaren Ketten“ . Biophysical Journal . 107 (6): 1364–74 . Bibcode : 2014BpJ...107.1364B . doi : 10.1016 / j.bpj.2014.07.036 . PMC 4167531. PMID 25229144 .
- ^ Damsté JS, Schouten S, Hopmans EC, van Duin AC, Geenevasen JA (Oktober 2002). „Crenarchaeol: Das charakteristische Kern-Glyceroldibiphytanylglyceroltetraether-Membranlipid kosmopolitischer pelagischer Crenarchaeota“ . Journal of Lipid Research . 43 (10): 1641–51 . doi : 10.1194/jlr.M200148-JLR200 . PMID 12364548 .
- ^ Koga Y, Morii H (November 2005). „Aktuelle Fortschritte in der Strukturforschung an Etherlipiden aus Archaeen einschließlich vergleichender und physiologischer Aspekte“ . Bioscience , Biotechnology, and Biochemistry . 69 (11): 2019–34 . doi : 10.1271/bbb.69.2019 . PMID 16306681. S2CID 42237252 .
- ^ Hanford MJ, Peeples TL (Januar 2002). „Archaeale Tetraetherlipide: einzigartige Strukturen und Anwendungen“. Applied Biochemistry and Biotechnology . 97 (1): 45–62 . doi : 10.1385/ABAB:97:1: 45 . PMID 11900115. S2CID 22334666 .
- ^ Macalady JL, Vestling MM, Baumler D, Boekelheide N, Kaspar CW, Banfield JF (Oktober 2004). „Tetraether-verknüpfte Membranmonolagen in Ferroplasma spp.: ein Schlüssel zum Überleben in saurem Milieu“. Extremophiles . 8 (5): 411–19 . doi : 10.1007 / s00792-004-0404-5 . PMID 15258835. S2CID 15702103 .
- Valentine DL ( April 2007). „ Anpassungen an Energiestress bestimmen die Ökologie und Evolution der Archaeen“. Nature Reviews Microbiology . 5 (4): 316–23 . doi : 10.1038/nrmicro1619 . PMID 17334387. S2CID 12384143 .
- Schäfer G, Engelhard M, Müller V (September 1999). „ Bioenergetik der Archaeen“ . Microbiology and Molecular Biology Reviews . 63 (3): 570–620 . Bibcode : 1999MMBR ... 63..570S . doi : 10.1128 / MMBR.63.3.570-620.1999 . PMC 103747. PMID 10477309 .
- ^ Zillig W (Dezember 1991). „Vergleichende Biochemie von Archaeen und Bakterien“. Current Opinion in Genetics & Development . 1 (4): 544–551 . doi : 10.1016/S0959-437X(05)80206-0 . PMID 1822288 .
- ^ Romano AH, Conway T (1996). „Evolution of carbohydrate metabolic pathways“ . Research in Microbiology . 147 ( 6–7 ): 448–55 . doi : 10.1016/0923-2508(96)83998-2 . PMID 9084754 .
- ^ Koch AL (1998). Wie entstanden Bakterien? Advances in Microbial Physiology. Band 40. S. 353–99 . doi : 10.1016/S0065-2911(08)60135-6 . ISBN 978-0-12-027740-7PMID 9889982 .
- ^ DiMarco AA, Bobik TA, Wolfe RS (1990). „Ungewöhnliche Coenzyme der Methanogenese“. Annual Review of Biochemistry . 59 : 355–94 . doi : 10.1146/annurev.bi.59.070190.002035 . PMID 2115763 .
- ^ Klocke M, Nettmann E, Bergmann I, Mundt K, Souidi K, Mumme J, et al. (August 2008). „Charakterisierung methanogener Archaeen in Zweiphasen-Biogasreaktorsystemen mit pflanzlicher Biomasse“. Systematic and Applied Microbiology . 31 (3): 190–205 . Bibcode : 2008SyApM..31..190K . doi : 10.1016/j.syapm.2008.02.003 . PMID 18501543 .
- ^ Basierend auf PDB 1FBB . Daten veröffentlicht in: Subramaniam S, Henderson R (August 2000). „Molekularer Mechanismus der vektoriellen Protonentranslokation durch Bakteriorhodopsin“. Nature . 406 ( 6796): 653–57 . Bibcode : 2000Natur.406..653S . doi : 10.1038/35020614 . PMID 10949309. S2CID 4395278 .
- ^ Mueller-Cajar O, Badger MR (August 2007). „Neue Wege führen zu Rubisco in Archaeen“. BioEssays . 29 (8): 722–24 . doi : 10.1002/bies.20616 . PMID 17621634 .
- ^ Berg IA, Kockelkorn D, Buckel W, Fuchs G (Dezember 2007). „Ein autotropher Kohlendioxid-Assimilationsweg über 3-Hydroxypropionat/4-Hydroxybutyrat in Archaeen“. Science . 318 (5857): 1782–86 . Bibcode : 2007Sci...318.1782B . doi : 10.1126 / science.1149976 . PMID 18079405. S2CID 13218676 .
- ^ Thauer RK (Dezember 2007). „Mikrobiologie. Ein fünfter Weg der Kohlenstofffixierung“. Science . 318 (5857): 1732–33 . doi : 10.1126/science.1152209 . PMID 18079388. S2CID 83805878 .
- ^ Bryant DA, Frigaard NU (November 2006). „Prokaryotische Photosynthese und Phototrophie beleuchtet“. Trends in Microbiology . 14 (11): 488–96 . doi : 10.1016/j.tim.2006.09.001 . PMID 16997562 .
- Könneke M, Bernhard AE, de la Torre JR, Walker CB, Waterbury JB, Stahl DA ( September 2005). „Isolierung eines autotrophen, ammoniakoxidierenden marinen Archaebakteriums“. Nature . 437 (7058): 543–46 . Bibcode : 2005Natur.437..543K . doi : 10.1038 / nature03911 . PMID 16177789. S2CID 4340386 .
- ^ a b Francis CA, Beman JM, Kuypers MM (Mai 2007). „Neue Prozesse und Akteure im Stickstoffkreislauf: Die mikrobielle Ökologie der anaeroben und archaischen Ammoniakoxidation“ . The ISME Journal . 1 (1): 19–27 . Bibcode : 2007ISMEJ...1...19F . doi : 10.1038/ismej.2007.8 . PMID 18043610 .
- ^ Lanyi JK (2004). „Bacteriorhodopsin“. Annual Review of Physiology . 66 (1): 665–88 . Bibcode : 2004ARPhy..66..665L . doi : 10.1146/annurev.physiol.66.032102.150049 . PMID 14977418 .
- ^ a b Allers T, Mevarech M (Januar 2005). „Archaeale Genetik – der dritte Weg“. Nature Reviews Genetics . 6 (1): 58–73 . doi : 10.1038/nrg1504 . PMID 15630422 .
- ^ Hildenbrand C, Stock T, Lange C, Rother M, Soppa J (Februar 2011). „Genomkopienzahlen und Genkonversion in methanogenen Archaeen“ . Journal of Bacteriology . 193 (3): 734–43 . doi : 10.1128/JB.01016-10 . PMC 3021236. PMID 21097629 .
- ^ Galagan JE, Nusbaum C, Roy A, Endrizzi MG, Macdonald P, FitzHugh W, et al. (April 2002). „Das Genom von M. acetivorans offenbart eine umfassende metabolische und physiologische Diversität“ . Genome Research . 12 (4): 532–42 . doi : 10.1101/gr.223902 . PMC 187521. PMID 11932238 .
- Waters E, Hohn MJ, Ahel I, Graham DE, Adams MD, Barnstead M et al. (Oktober 2003). „Das Genom von Nanoarchaeum equitans: Einblicke in die frühe Evolution der Archaeen und den daraus resultierenden Parasitismus“ . Proceedings of the National Academy of Sciences of the United States of America . 100 (22): 12984–88 . Bibcode : 2003PNAS..10012984W . doi : 10.1073 / pnas.1735403100 . PMC 240731. PMID 14566062 .
- ^ Schleper C, Holz I, Janekovic D, Murphy J, Zillig W (August 1995). „Ein Multikopienplasmid des extrem thermophilen Archaebakteriums Sulfolobus bewirkt seinen Transfer auf Empfänger durch Paarung“ . Journal of Bacteriology . 177 (15): 4417–26 . doi : 10.1128/jb.177.15.4417-4426.1995 . PMC 177192. PMID 7635827 .
- ^ Sota M, Top EM (2008). „Horizontaler Gentransfer durch Plasmide“ . Plasmide: Aktuelle Forschung und zukünftige Trends . Caister Academic Press. ISBN 978-1-904455-35-6Archiviert vom Original am 11. April 2008. Abgerufen am 15. April 2008 .
- Xiang X, Chen L, Huang X, Luo Y, She Q, Huang L (Juli 2005). „Sulfolobus tengchongensis spindle-shaped virus STSV1: virus-wire interactions and genomic features“ . Journal of Virology . 79 (14): 8677–8686 . Bibcode : 2005JVir...79.8677X . doi : 10.1128/JVI.79.14.8677-8686.2005 . PMC 1168784. PMID 15994761 .
- ^ Graham DE, Overbeek R, Olsen GJ, Woese CR (März 2000). „Eine genomische Signatur von Archaeen“ . Proceedings of the National Academy of Sciences of the United States of America . 97 (7): 3304–08 . Bibcode : 2000PNAS...97.3304G . doi : 10.1073 / pnas.050564797 . PMC 16234. PMID 10716711 .
- ^ a b Gaasterland T (Oktober 1999). „Archaeal genomics“. Current Opinion in Microbiology . 2 (5): 542–47 . doi : 10.1016/S1369-5274(99)00014-4 . PMID 10508726 .
- ^ Dennis PP (Juni 1997). „Antike Chiffren: Übersetzung in Archaea“ . Cell . 89 (7): 1007–10 . Bibcode : 1997Cell...89.1007D . doi : 10.1016 / S0092-8674(00)80288-3 . PMID 9215623. S2CID 18862794 .
- ^ Werner F (September 2007). „Struktur und Funktion von RNA - Polymerasen in Archaeen“ . Molecular Microbiology . 65 (6): 1395–404 . doi : 10.1111/j.1365-2958.2007.05876.x . PMID 17697097. S2CID 28078184 .
- ^ Aravind L, Koonin EV (Dezember 1999). „DNA-bindende Proteine und die Evolution der Transkriptionsregulation in Archaeen“ . Nucleic Acids Research . 27 (23): 4658–70 . doi : 10.1093 / nar/27.23.4658 . PMC 148756. PMID 10556324 .
- ^ Lykke-Andersen J, Aagaard C, Semionenkov M, Garrett RA (September 1997). „Archaeale Introns: Splicing, interzelluläre Mobilität und Evolution“. Trends in Biochemical Sciences . 22 (9): 326–331 . doi : 10.1016/S0968-0004(97)01113-4 . PMID 9301331 .
- ^ Watanabe Y, Yokobori S, Inaba T, Yamagishi A, Oshima T, Kawarabayasi Y, et al. (Januar 2002). „ Introns in protein-coding genes in Archaea“ . FEBS Letters . 510 ( 1–2 ): 27–30 . Bibcode : 2002FEBSL.510...27W . doi : 10.1016/S0014-5793(01)03219-7 . PMID 11755525. S2CID 27294545 .
- ^ Yoshinari S, Itoh T, Hallam SJ, DeLong EF, Yokobori S, Yamagishi A, et al. (August 2006). „Archaeales Prä-mRNA-Spleißen: Eine Verbindung zur hetero-oligomeren Spleißendonuklease“. Biochemical and Biophysical Research Communications . 346 (3): 1024–32 . Bibcode : 2006BBRC..346.1024Y . doi : 10.1016/j.bbrc.2006.06.011 . PMID 16781672 .
- Rosenshine I, Tchelet R, Mevarech M (September 1989). „Der Mechanismus des DNA-Transfers im Paarungssystem eines Archaebakteriums“. Science . 245 (4924): 1387–89 . Bibcode : 1989Sci...245.1387R . doi : 10.1126/science.2818746 . PMID 2818746 .
- Fröls S, Ajon M, Wagner M, Teichmann D, Zolghadr B, Folea M, et al. (November 2008). „UV-induzierbare zelluläre Aggregation des hyperthermophilen Archaebakteriums Sulfolobus solfataricus wird durch die Bildung von Pili vermittelt“ . Molecular Microbiology . 70 ( 4 ): 938–52 . doi : 10.1111/j.1365-2958.2008.06459.x . hdl : 11370/0dd2a8eb-0f4b-4382-805d-158a870be95e . PMID 18990182 .
- Ajon M, Fröls S, van Wolferen M, Stoecker K , Teichmann D, Driessen AJ, et al. (November 2011). „ UV -induzierbarer DNA-Austausch in hyperthermophilen Archaeen, vermittelt durch Typ-IV-Pili“ . Molecular Microbiology . 82 (4): 807–17 . doi : 10.1111/j.1365-2958.2011.07861.x . PMID 21999488 .
- ^ Fröls S, White MF, Schleper C (Februar 2009). „Reaktionen auf UV-Schäden im Modellarchaeon Sulfolobus solfataricus“. Biochemical Society Transactions . 37 (Teil 1): 36–41 . doi : 10.1042/BST0370036 . PMID 19143598 .
- Bernstein H, Bernstein C (2017). „Sexuelle Kommunikation bei Archaeen, die Vorstufe der eukaryotischen Meiose“. In: Witzany G (Hrsg.). Biokommunikation der Archaeen . Springer Nature . S. 301–117 . doi : 10.1007/978-3-319-65536-9_7 . ISBN 978-3-319-65535-2Die
- ^ a b Blohs M, Moissl-Eichinger C, Mahnert A, Spang A, Dombrowski N, Krupovic M, Klingl A (Januar 2019). „Archaea – An Introduction“. In: Schmidt TM (Hrsg.). Encyclopedia of Microbiology (4. Aufl.). Academic Press. S. 243–252 . doi : 10.1016/B978-0-12-809633-8.20884-4 . ISBN 978-0-12-811737-8. S2CID 164553336 .
- ^ a b c Krupovic M, Cvirkaite-Krupovic V, Iranzo J, Prangishvili D, Koonin EV (Januar 2018). „ Viren von Archaeen: Strukturelle, funktionelle, umweltbedingte und evolutionäre Genomik“ . Virus Research . 244 : 181–193 . doi : 10.1016/j.virusres.2017.11.025 . PMC 5801132. PMID 29175107 .
- ^ Pietilä MK, Demina TA, Atanasova NS, Oksanen HM, Bamford DH (Juni 2014). „Archaeale Viren und Bakteriophagen: Vergleiche und Gegenüberstellungen“. Trends in Microbiology . 22 (6): 334–44 . Bibcode : 2014TrMic..22..334P . doi : 10.1016/j.tim.2014.02.007 . PMID 24647075 .
- ^ Principi N, Silvestri E, Esposito S (2019). „Vorteile und Grenzen von Bakteriophagen zur Behandlung bakterieller Infektionen“ . Frontiers in Pharmacology . 10: 513. doi : 10.3389 /fphar.2019.00513 . PMC 6517696. PMID 31139086 .
- ^ Prangishvili, D. (2013). „Viren der Archaeen“. Brenner’s Encyclopedia of Genetics . S. 295–298 . doi : 10.1016/B978-0-12-374984-0.01627-2 . ISBN 978-0-08-096156-9Die
- ^ Prangishvili, D.; Garrett, RA (April 2004). „Außergewöhnlich diverse Morphotypen und Genome von hyperthermophilen Crenarchaeen-Viren“. Biochemical Society Transactions . 32 (2): 204–208 . doi : 10.1042/bst0320204 . PMID 15046572 .
- ^ Pietilä MK, Roine E, Paulin L, Kalkkinen N, Bamford DH (April 2009). „Ein ssDNA-Virus , das Archaeen infiziert: eine neue Linie von Viren mit einer Membranhülle“ . Molecular Microbiology . 72 (2): 307–19 . doi : 10.1111/j.1365-2958.2009.06642.x . PMID 19298373. S2CID 24894269 .
- ^ Mochizuki T, Krupovic M, Pehau-Arnaudet G, Sako Y, Forterre P, Prangishvili D (August 2012). „Archaeenvirus mit außergewöhnlicher Virionenarchitektur und dem größten einzelsträngigen DNA-Genom“ . Proceedings of the National Academy of Sciences of the United States of America . 109 (33): 13386–91 . Bibcode : 2012PNAS..10913386M . doi : 10.1073 / pnas.1203668109 . PMC 3421227. PMID 22826255 .
- ^ Mojica FJ, Díez-Villaseñor C, García-Martínez J, Soria E (Februar 2005). „Intervening sequences of regular spaced prokaryotic repeats derive from foreign genetic elements“. Journal of Molecular Evolution . 60 (2): 174–82 . Bibcode : 2005JMolE..60..174M . doi : 10.1007/s00239-004-0046-3 . PMID 15791728. S2CID 27481111 .
- ^ Makarova KS, Grishin NV, Shabalina SA, Wolf YI, Koonin EV (März 2006). „Ein mutmaßliches RNA-Interferenz - basiertes Immunsystem in Prokaryoten: Computergestützte Analyse der vorhergesagten enzymatischen Maschinerie, funktionelle Analogien mit eukaryotischer RNAi und hypothetische Wirkungsmechanismen“ . Biology Direct . 17. doi : 10.1186/1745-6150-1-7 . PMC 1462988. PMID 16545108 .
- ^ a b Bernander R (August 1998). „Archaea and the cell cycle“. Molecular Microbiology . 29 (4): 955–61 . doi : 10.1046 / j.1365-2958.1998.00956.x . PMID 9767564. S2CID 34816545 .
- ^ Kelman LM, Kelman Z (September 2004). „Multiple origins of replication in archaea“. Trends in Microbiology . 12 (9): 399–401 . doi : 10.1016/j.tim.2004.07.001 . PMID 15337158 .
- ^ Lindås AC, Karlsson EA, Lindgren MT, Ettema TJ, Bernander R (Dezember 2008). „Ein einzigartiger Zellteilungsmechanismus in den Archaeen“ . Proceedings of the National Academy of Sciences of the United States of America . 105 (48): 18942–46 . Bibcode : 2008PNAS..10518942L . doi : 10.1073 / pnas.0809467105 . PMC 2596248. PMID 18987308 .
- ^ Samson RY, Obita T, Freund SM, Williams RL, Bell SD (Dezember 2008). „Eine Rolle des ESCRT-Systems bei der Zellteilung in Archaeen“ . Science . 322 ( 5908): 1710–1713 . Bibcode : 2008Sci...322.1710S . doi : 10.1126/science.1165322 . PMC 4121953. PMID 19008417 .
- ^ Pelve EA, Lindås AC, Martens-Habbena W, de la Torre JR, Stahl DA, Bernander R (November 2011). „Cdv-basierte Zellteilung und Zellzyklusorganisation im Thaumarchaeon Nitrosopumilus maritimus“ . Molekulare Mikrobiologie . 82 (3): 555– 66. doi : 10.1111/j.1365-2958.2011.07834.x . PMID 21923770 . S2CID 1202516 .
- ^ Caspi Y , Dekker C (2018). „Die Teilung nach archaischem Vorbild: Der uralte Zellteilungsmechanismus von CDV“ . Frontiers in Microbiology . 9, 174. doi : 10.3389/fmicb.2018.00174 . PMC 5840170. PMID 29551994 .
- ^ Onyenwoke RU, Brill JA, Farahi K, Wiegel J (Oktober 2004). „Sporulationsgene in Mitgliedern des grampositiven Zweigs mit niedrigem G+C-Gehalt (Firmicutes)“. Archives of Microbiology . 182 ( 2–3 ): 182–92 . Bibcode : 2004ArMic.182..182O . doi : 10.1007/s00203-004-0696-y . PMID 15340788. S2CID 34339306 .
- ^ Kostrikina NA, Zvyagintseva IS, Duda VI (1991). „Zytologische Besonderheiten einiger extrem halophiler Bodenarchäobakterien“. Arch. Microbiol . 156 (5): 344–49 . Bibcode : 1991ArMic.156..344K . doi : 10.1007/BF00248708 . S2CID 13316631 .
- ^ Rajput A, Kumar M (2017). „Computergestützte Untersuchung mutmaßlicher LuxR-Solos in Archaeen und deren funktionelle Implikationen für Quorum Sensing“ . Frontiers in Microbiology . 8, 798. doi : 10.3389 /fmicb.2017.00798 . PMC 5413776. PMID 28515720 .
- ^ a b van Wolferen, Marleen; Orell, Alvaro; Albers, Sonja-Verena (November 2018). „Archaeale Biofilmbildung“ . Nature Reviews Mikrobiologie . 16 (11): 699–713 . doi : 10.1038/s41579-018-0058-4 . ISSN 1740-1534 . PMID 30097647 .
- ^ DeLong EF, Pace NR (August 2001). „Umweltdiversität von Bakterien und Archaeen“. Systematic Biology . 50 (4): 470–78 . CiteSeerX 10.1.1.321.8828 . doi : 10.1080/106351501750435040 . PMID 12116647 .
- ^ a b Pikuta EV, Hoover RB, Tang J (2007). „Mikrobielle Extremophile an den Grenzen des Lebens“. Critical Reviews in Microbiology . 33 (3): 183–209 . doi : 10.1080/10408410701451948 . PMID 17653987. S2CID 20225471 .
- ^ Adam PS, Borrel G, Brochier - Armanet C, Gribaldo S (November 2017). „Der wachsende Baum der Archaeen: Neue Perspektiven auf ihre Diversität, Evolution und Ökologie“ . The ISME Journal . 11 (11): 2407–2425 . Bibcode : 2017ISMEJ..11.2407A . doi : 10.1038/ismej.2017.122 . PMC 5649171. PMID 28777382 .
- ^ Madigan MT, Martino JM (2006). Brock Biology of Microorganisms (11. Aufl.). Pearson. S. 136. ISBN 978-0-13-196893-6Die
- ^ Takai K, Nakamura K, Toki T, Tsunogai U, Miyazaki M, Miyazaki J, Hirayama H, Nakagawa S, Nunoura T, Horikoshi K (August 2008). „Zellproliferation bei 122 °C und Produktion von isotopisch schwerem CH4 durch ein hyperthermophiles Methanogen unter Hochdruckkultivierung“ . Proceedings of the National Academy of Sciences of the United States of America . 105 (31): 10949–54 . Bibcode : 2008PNAS..10510949T . doi : 10.1073 / pnas.0712334105 . PMC 2490668. PMID 18664583 .
- ^ Ciaramella M, Napoli A, Rossi M (Februar 2005). „Ein weiteres extremes Genom: Wie man bei pH 0 lebt“. Trends in Microbiology . 13 (2): 49–51 . doi : 10.1016/j.tim.2004.12.001 . PMID 15680761 .
- ^ Javaux EJ (2006). „Extremes Leben auf der Erde – Vergangenheit, Gegenwart und möglicherweise darüber hinaus“ . Research in Microbiology . 157 (1): 37–48 . doi : 10.1016/j.resmic.2005.07.008 . PMID 16376523 .
- ^ Nealson KH (Januar 1999). „Mikrobiologie nach der Wikingerzeit: Neue Ansätze, neue Daten, neue Erkenntnisse“. Origins of Life and Evolution of the Biosphere . 29 (1): 73–93 . Bibcode : 1999OLEB...29...73N . doi : 10.1023/A:1006515817767 . PMID 11536899 .
- ^ Davies PC (1996). „Der Transfer lebensfähiger Mikroorganismen zwischen Planeten“. In: Bock GR, Goode JA (Hrsg.). Ciba Foundation Symposium 202 – Evolution hydrothermaler Ökosysteme auf der Erde (und dem Mars?) . Novartis Foundation Symposia. Band 202. S. 304–314 , Diskussion S. 314–317. doi : 10.1002/9780470514986.ch16 . ISBN 978-0-470-51498-6PMID 9243022 .
- ^ López-García P, López-López A, Moreira D, Rodríguez-Valera F (Juli 2001). „Diversität freilebender Prokaryoten an einem Tiefseestandort an der Antarktischen Polarfront“. FEMS Microbiology Ecology . 36 ( 2–3 ): 193–202 . Bibcode : 2001FEMME..36..193L . doi : 10.1016/s0168-6496(01)00133-7 (inaktiv seit 21. Juni 2026). PMID 11451524 .
{{cite journal}}: CS1 Wartung: DOI inaktiv ab Juni 2026 ( Link ) - ^ Karner MB, DeLong EF, Karl DM (Januar 2001). „Archaeen-Dominanz in der mesopelagischen Zone des Pazifischen Ozeans“. Nature . 409 ( 6819): 507–10 . Bibcode : 2001Natur.409..507K . doi : 10.1038/35054051 . PMID 11206545. S2CID 6789859 .
- ^ Giovannoni SJ, Stingl U (September 2005). „Molekulare Diversität und Ökologie des mikrobiellen Planktons“. Nature . 437 (7057): 343–48 . Bibcode : 2005Natur.437..343G . doi : 10.1038 / nature04158 . PMID 16163344. S2CID 4349881 .
- ^ DeLong EF, Karl DM (September 2005). „Genomische Perspektiven in der mikrobiellen Ozeanographie“. Nature . 437 (7057): 336–42 . Bibcode : 2005Natur.437..336D . doi : 10.1038/nature04157 . PMID 16163343. S2CID 4400950 .
- ^ Agogué H, Brink M, Dinasquet J, Herndl GJ (Dezember 2008). „Starke Gradienten mutmaßlich nitrifizierender und nicht-nitrifizierender Archaeen im tiefen Nordatlantik“ . Nature . 456 (7223): 788–91 . Bibcode : 2008Natur.456..788A . doi : 10.1038/nature07535 . PMID 19037244 .
- ^ Hoshino, Tatsuhiko; Inagaki, Fumio (2019). „Häufigkeit und Verbreitung von Archaeen in der Sedimentbiosphäre unter dem Meeresboden“ . Das ISME Journal . 13 (1): 227–231 . Bibcode : 2019ISMEJ..13..227H . doi : 10.1038/s41396-018-0253-3 . ISSN 1751-7370 . PMC 6298964 . PMID 30116037 .
- ^ Teske A, Sørensen KB (Januar 2008). „Nicht kultivierte Archaeen in Tiefseesedimenten: Haben wir sie alle erfasst?“ The ISME Journal . 2 (1): 3–18 . Bibcode : 2008ISMEJ...2....3T . doi : 10.1038/ismej.2007.90 . hdl : 10379/14139 . PMID 18180743 .
- ^ Lipp JS, Morono Y, Inagaki F, Hinrichs KU (August 2008). „Signifikanter Beitrag von Archaeen zur rezenten Biomasse in marinen Untergrundsedimenten“. Nature . 454 ( 7207): 991–994 . Bibcode : 2008Natur.454..991L . doi : 10.1038/nature07174 . PMID 18641632. S2CID 4316347 .
- ^ Danovaro R, Dell'Anno A, Corinaldesi C, Rastelli E, Cavicchioli R, Krupovic M, Noble RT, Nunoura T, Prangishvili D (Oktober 2016). „Virusvermittelte archaische Hekatombe im Tiefseeboden“ . Wissenschaftliche Fortschritte . 2 (10) e1600492. Bibcode : 2016SciA....2E0492D . doi : 10.1126/sciadv.1600492 . PMC 5061471 . PMID 27757416 .
- ^ Liu X, Pan J, Liu Y, Li M, Gu JD (Oktober 2018). „Diversität und Verbreitung von Archaeen in globalen Ästuarökosystemen“. The Science of the Total Environment . 637–638 : 349–358 . Bibcode : 2018ScTEn.637..349L . doi : 10.1016/j.scitotenv.2018.05.016 . PMID 29753224. S2CID 21697690 .
- ^ Cabello P, Roldán MD, Moreno-Vivián C (November 2004). „Nitratreduktion und der Stickstoffkreislauf in Archaeen“ . Microbiology . 150 (Pt 11): 3527–46 . doi : 10.1099/mic.0.27303-0 . PMID 15528644 .
- ^ Mehta MP, Baross JA (Dezember 2006). „Stickstofffixierung bei 92 °C durch ein Archaeon aus einer hydrothermalen Quelle“. Science . 314 ( 5806): 1783–86 . Bibcode : 2006Sci...314.1783M . doi : 10.1126/science.1134772 . PMID 17170307. S2CID 84362603 .
- ^ Coolen MJ, Abbas B, van Bleijswijk J, Hopmans EC, Kuypers MM, Wakeham SG, et al. (April 2007). „Vermutete ammoniakoxidierende Crenarchaeota in suboxischen Gewässern des Schwarzen Meeres: Eine beckenweite ökologische Studie unter Verwendung von 16S-ribosomalen und funktionellen Genen sowie Membranlipiden“. Environmental Microbiology . 9 (4): 1001–1016 . Bibcode : 2007EnvMi...9.1001C . doi : 10.1111/j.1462-2920.2006.01227.x . hdl : 1912/2034 . PMID 17359272 .
- ^ Leininger S, Urich T, Schloter M, Schwark L, Qi J, Nicol GW, Prosser JI , Schuster SC, Schleper C (August 2006). „Unter den Ammoniak oxidierenden Prokaryoten im Boden überwiegen Archaeen.“ Natur . 442 (7104): 806– 09. Bibcode : 2006Natur.442..806L . doi : 10.1038/nature04983 . PMID 16915287 . S2CID 4380804 .
- ^ Baker BJ, Banfield JF (Mai 2003). „Mikrobielle Gemeinschaften in sauren Grubenwässern“ . FEMS Microbiology Ecology . 44 (2): 139–52 . Bibcode : 2003FEMME..44..139B . doi : 10.1016/S0168-6496(03)00028-X . PMID 19719632 .
- ^ Schimel J (August 2004). „Skalen im Methankreislauf: von der mikrobiellen Ökologie zum globalen Kontext“ . Proceedings of the National Academy of Sciences of the United States of America . 101 (34): 12400–01 . Bibcode : 2004PNAS..10112400S . doi : 10.1073 / pnas.0405075101 . PMC 515073. PMID 15314221 .
- ^ Eckburg PB, Lepp PW, Relman DA (Februar 2003). „Archaeen und ihre potenzielle Rolle bei menschlichen Erkrankungen“ . Infection and Immunity . 71 (2): 591–96 . doi : 10.1128/IAI.71.2.591-596.2003 . PMC 145348. PMID 12540534 .
- ^ Cavicchioli R, Curmi PM, Saunders N, Thomas T (November 2003). „Pathogene Archaeen: Gibt es sie?“ . BioEssays . 25 (11): 1119–28 . doi : 10.1002/bies.10354 . HDL : 1959.4/39571 . PMID 14579252 .
- ^ Lepp PW, Brinig MM, Ouverney CC, Palm K, Armitage GC, Relman DA (April 2004). „Methanogene Archaeen und Parodontitis beim Menschen“ . Proceedings of the National Academy of Sciences of the United States of America . 101 (16): 6176–81 . Bibcode : 2004PNAS..101.6176L . doi : 10.1073/pnas.0308766101 . PMC 395942. PMID 15067114 .
- ^ Vianna ME, Conrads G, Gomes BP, Horz HP (April 2006). „Identifizierung und Quantifizierung von Archaeen bei primären endodontischen Infektionen“ . Journal of Clinical Microbiology . 44 (4): 1274–82 . doi : 10.1128/JCM.44.4.1274-1282.2006 . PMC 1448633. PMID 16597851 .
- ^ Jahn U, Gallenberger M, Paper W, Junglas B, Eisenreich W, Stetter KO, et al. (März 2008). „Nanoarchaeum equitans und Ignicoccus hospitalis: neue Einblicke in eine einzigartige, enge Verbindung zweier Archaeen“ . Zeitschrift für Bakteriologie . 190 (5): 1743–50 . Bibcode : 2008JBact.190.1743J . doi : 10.1128/JB.01731-07 . PMC 2258681 . PMID 18165302 .
- ^ Chaban B, Ng SY, Jarrell KF (Februar 2006). „Archaeale Lebensräume – vom Extremen zum Gewöhnlichen“. Canadian Journal of Microbiology . 52 (2): 73–116 . doi : 10.1139/w05-147 . PMID 16541146 .
- ^ Schink B (Juni 1997). „Energetik der syntrophen Kooperation beim methanogenen Abbau“ . Microbiology and Molecular Biology Reviews . 61 (2): 262–80 . doi : 10.1128/mmbr.61.2.262-280.1997 . PMC 232610. PMID 9184013 .
- ^ Lewis WH, Sendra KM, Embley TM, Esteban GF (2018). „Morphologie und Phylogenie einer neuen Art anaerober Ciliaten, Trimyema finlayi n. sp., mit endosymbiotischen Methanogenen“ . Frontiers in Microbiology . 9, 140. doi : 10.3389 /fmicb.2018.00140 . PMC 5826066. PMID 29515525 .
- ^ Anaerobe Ciliaten als Modellgruppe zur Untersuchung der Biodiversität und Symbiosen in anoxischen Umgebungen (PDF) (Dissertation). 2020.
- ^ Wrede C, Dreier A , Kokoschka S, Hoppert M (2012). „Archaea in Symbiosen“ . Archaea . 2012 596846. doi : 10.1155/2012/596846 . PMC 3544247. PMID 23326206 .
- ^ Lange M, Westermann P, Ahring BK (Februar 2005). „Archaea in protozoa and metazoa“. Applied Microbiology and Biotechnology . 66 (5): 465–474 . doi : 10.1007/ s00253-004-1790-4 . PMID 15630514. S2CID 22582800 .
- ^ van Hoek AH, van Alen TA, Sprakel VS, Leunissen JA, Brigge T, Vogels GD, Hackstein JH (Februar 2000). „Mehrfacher Erwerb methanogener Archaeen-Symbionten durch anaerobe Ciliaten“ . Molekularbiologie und Evolution . 17 (2): 251–258 . doi : 10.1093/oxfordjournals.molbev.a026304 . PMID 10677847 .
- ^ Preston CM, Wu KY, Molinski TF, DeLong EF (Juni 1996). „Ein psychrophiles Crenarchaeon bewohnt einen Meeresschwamm: Cenarchaeum symbiosum gen. nov., sp. nov . “ Proceedings of the National Academy of Sciences of the United States of America . 93 (13): 6241–6246 . Bibcode : 1996PNAS...93.6241P . doi : 10.1073 / pnas.93.13.6241 . PMC 39006. PMID 8692799 .
- ^ Eckburg PB, Bik EM, Bernstein CN, Purdom E, Dethlefsen L, Sargent M, et al. (Juni 2005). „Diversität der menschlichen Darmflora“ . Science . 308 (5728): 1635–38 . Bibcode : 2005Sci...308.1635E . doi : 10.1126 / science.1110591 . PMC 1395357. PMID 15831718 .
- ^ Samuel BS, Gordon JI (Juni 2006). „Ein humanisiertes gnotobiotisches Mausmodell der Wirt-Archaeen-Bakterien-Symbiose“ . Proceedings of the National Academy of Sciences of the United States of America . 103 (26): 10011–16 . Bibcode : 2006PNAS..10310011S . doi : 10.1073/pnas.0602187103 . PMC 1479766. PMID 16782812 .
- ^ Wegley L, Yu Y, Breitbart M , Casas V, Kline DI, Rohwer F (2004). „Korallenassoziierte Archaeen“ . Marine Ecology Progress Series . 273 : 89–96 . Bibcode : 2004MEPS..273...89W . doi : 10.3354/meps273089 .
- ^ Chelius MK, Triplett EW (April 2001). „Die Diversität von Archaeen und Bakterien in Assoziation mit den Wurzeln von Zea mays L“. Microbial Ecology . 41 (3): 252–263 . Bibcode : 2001MicEc..41..252C . doi : 10.1007/ s002480000087 . JSTOR 4251818. PMID 11391463. S2CID 20069511 .
- ^ Simon HM, Dodsworth JA, Goodman RM (Oktober 2000). „Crenarchaeota besiedeln Wurzeln terrestrischer Pflanzen“. Environmental Microbiology . 2 (5): 495–505 . Bibcode : 2000EnvMi...2..495S . doi : 10.1046/j.1462-2920.2000.00131.x . PMID 11233158 .
- ^ Gophna U, Charlebois RL, Doolittle WF (Mai 2004). „Haben Archaeen-Gene zur bakteriellen Virulenz beigetragen?“. Trends in Microbiology . 12 (5): 213–219 . doi : 10.1016/j.tim.2004.03.002 . PMID 15120140 .
- ^ Shiffman ME, Charalambous BM (2012). „Die Suche nach archäalen Krankheitserregern“. Reviews in Medical Microbiology . 23 (3): 45–51 . doi : 10.1097/MRM.0b013e328353c7c9 .
- ^ Harada, Ryo; Nishimura, Yuki; Nomura, Mami; Yabuki, Akinori; Shiba, Kogiku; Inaba, Kazuo; Inagaki, Yuji; Nakayama, Takuro (2025). „Eine zelluläre Einheit, die nur ihren replikativen Kern behält: Verborgene archaische Abstammungslinie mit einem extrem reduzierten Genom“. bioRxiv 10.1101/2025.05.02.651781 .
- ^ Breithaupt H (November 2001). „Die Jagd nach lebendem Gold. Die Suche nach Organismen in extremen Umgebungen liefert nützliche Enzyme für die Industrie“ . EMBO Reports . 2 (11): 968–71 . doi : 10.1093/embo-reports/kve238 . PMC 1084137. PMID 11713183 .
- ^ a b Egorova K, Antranikian G (Dezember 2005). „Industrielle Relevanz thermophiler Archaeen“. Current Opinion in Microbiology . 8 (6): 649–55 . Bibcode : 2005COMb....8..649E . doi : 10.1016/j.mib.2005.10.015 . PMID 16257257 .
- Synowiecki J, Grzybowska B, Zdziebło A (2006). „Quellen, Eigenschaften und Eignung neuer thermostabiler Enzyme in der Lebensmittelverarbeitung“. Critical Reviews in Food Science and Nutrition . 46 (3): 197–205 . doi : 10.1080/10408690590957296 . PMID 16527752. S2CID 7208835 .
- ^ Jenney FE, Adams MW (Januar 2008). „Der Einfluss von Extremophilen auf die Strukturgenomik (und umgekehrt)“. Extremophiles . 12 ( 1): 39–50 . doi : 10.1007/s00792-007-0087-9 . PMID 17563834. S2CID 22178563 .
- ^ Schiraldi C, Giuliano M, De Rosa M (September 2002). „Perspektiven für biotechnologische Anwendungen von Archaeen“ . Archaea . 1 (2): 75–86 . doi : 10.1155 / 2002/436561 . PMC 2685559. PMID 15803645 .
- ^ Norris PR, Burton NP, Foulis NA (April 2000). „Acidophile in bioreactor mineral processing“. Extremophiles . 4 ( 2): 71–76 . Bibcode : 2000Extmo...4.0071N . doi : 10.1007/s007920050139 . PMID 10805560. S2CID 19985179 .
- ^ Shand RF, Leyva KJ (2008). „Archaeale antimikrobielle Mittel: Ein unentdecktes Gebiet“. In: Blum P (Hrsg.). Archaea: Neue Modelle für die prokaryotische Biologie . Caister Academic Press. ISBN 978-1-904455-27-1Die
Weiterführende Literatur
- Howland JL (2000). Die überraschenden Archaeen: Die Entdeckung einer weiteren Lebensdomäne . Oxford University Press. ISBN 978-0-19-511183-5Die
- Martinko JM, Madigan MT (2005). Brock Biology of Microorganisms (11. Aufl.). Englewood Cliffs, NJ: Prentice Hall. ISBN 978-0-13-144329-7Die
- Garrett RA, Klenk H (2005). Archaea: Evolution, Physiology and Molecular Biology . WileyBlackwell. ISBN 978-1-4051-4404-9Die
- Cavicchioli R (2007). Archaea: Molecular and Cellular Biology . American Society for Microbiology. ISBN 978-1-55581-391-8Die
- Blum P (Hrsg.). (2008). Archaea: New Models for Prokaryotic Biology . Caister Academic Press. ISBN 978-1-904455-27-1Die
- Lipps G (2008). „Archaeale Plasmide“. Plasmide: Aktuelle Forschung und zukünftige Trends . Caister Academic Press. ISBN 978-1-904455-35-6Die
- Sapp J (2009). Die neuen Grundlagen der Evolution: Über den Baum des Lebens . New York: Oxford University Press. ISBN 978-0-19-538850-3Die
- Schaechter M (2009). Archaea (Overview) in The Desk Encyclopedia of Microbiology (2. Aufl.). San Diego und London: Elsevier Academic Press. ISBN 978-0-12-374980-2Die
Externe Links
Allgemein
- Einführung in die Archaeen, Ökologie, Systematik und Morphologie
- Ozeane der Archaeen – EF DeLong, ASM News , 2003
Einstufung
- NCBI-Taxonomieseite über Archaeen
- Gattungen der Domäne Archaea – Liste prokaryotischer Namen mit Status in der Nomenklatur
- Shotgun-Sequenzierung findet Nanoorganismen – Entdeckung der ARMAN-Gruppe von Archaeen