Seneszenz ( ausgesprochen / ˌsɪˈnɛsəns / ) oder biologisches Altern ist die allmähliche Verschlechterung der funktionellen Eigenschaften lebender Organismen. Die Seneszenz des gesamten Organismus äußert sich in einer Zunahme der Sterberate oder einer Abnahme der Fruchtbarkeit mit zunehmendem Alter, zumindest im späteren Lebensabschnitt . [ 1 ] [ 2 ] Die Auswirkungen der Seneszenz lassen sich jedoch verzögern. Die Entdeckung im Jahr 1934, dass Kalorienrestriktion die Lebensspanne von Ratten um 50 % verlängern kann , die Existenz von Arten mit vernachlässigbarer Seneszenz und die Existenz potenziell unsterblicher Organismen wie beispielsweise der Gattung Hydra haben die Forschung zur Verzögerung der Seneszenz und damit altersbedingter Erkrankungen angeregt . Seltene Mutationen im menschlichen Genom können zu beschleunigten Alterungserkrankungen führen .
Umweltfaktoren können den Alterungsprozess beeinflussen – beispielsweise beschleunigt übermäßige UV-Strahlung die Hautalterung . Verschiedene Körperteile, darunter Gehirn , Herz-Kreislauf-System und Muskulatur, können unterschiedlich schnell und deutlich altern. Auch Funktionen wie Bewegungssteuerung und Gedächtnis können mit dem Alter deutlich nachlassen . Selbst zwei Organismen derselben Art können unterschiedlich schnell altern, wodurch biologisches und chronologisches Altern zu unterschiedlichen Konzepten werden.
Definition und Merkmale
Die organismische Seneszenz beschreibt das Altern ganzer Organismen. Aktuarische Seneszenz lässt sich als Zunahme der Mortalität oder Abnahme der Fruchtbarkeit mit dem Alter definieren. Das Gompertz-Makeham-Gesetz der Mortalität besagt, dass die altersabhängige Komponente der Mortalitätsrate exponentiell mit dem Alter zunimmt.
Altern ist gekennzeichnet durch die abnehmende Fähigkeit, auf Stress zu reagieren, ein zunehmendes Ungleichgewicht der Homöostase und ein erhöhtes Risiko für altersbedingte Erkrankungen , einschließlich Krebs und Herzerkrankungen . Altern wird definiert als „eine fortschreitende Verschlechterung der physiologischen Funktion, ein intrinsischer, altersbedingter Prozess des Verlusts der Lebensfähigkeit und der Zunahme der Anfälligkeit.“ [ 3 ]
Im Jahr 2013 definierte eine Gruppe von Wissenschaftlern neun Merkmale des Alterns , die allen Organismen gemeinsam sind, wobei der Schwerpunkt auf Säugetieren lag:
- genomische Instabilität
- Telomerverkürzung
- epigenetische Veränderungen,
- Verlust der Proteostase
- deregulierte Nährstofferkennung ,
- mitochondriale Dysfunktion,
- zelluläre Seneszenz
- Erschöpfung der Stammzellen
- veränderte interzelluläre Kommunikation [ 4 ]
Im Rahmen einer Aktualisierung im Laufe des Jahrzehnts wurden drei weitere Merkmale hinzugefügt, sodass nun insgesamt 12 Merkmale vorgeschlagen werden:
- deaktivierte Makroautophagie
- chronische Entzündung
- Dysbiose [ 5 ]
Umwelteinflüsse verursachen Schäden auf verschiedenen Ebenen, z. B. DNA-Schäden sowie Schäden an Geweben und Zellen durch Sauerstoffradikale ( allgemein bekannt als freie Radikale ). Ein Teil dieser Schäden wird nicht repariert und akkumuliert sich daher mit der Zeit. [ 6 ] Beim Klonen von somatischen Zellen anstelle von Keimzellen kann das Leben mit einer höheren anfänglichen Schädigungslast beginnen. Das Schaf Dolly starb jung an einer ansteckenden Lungenkrankheit, doch wären Daten über eine ganze Population geklonter Individuen notwendig, um die Sterblichkeitsraten zu messen und das Altern zu quantifizieren.
Der Evolutionstheoretiker George Williams schrieb: „Es ist bemerkenswert, dass ein komplexes Metazoon nach einer scheinbar wundersamen Leistung der Morphogenese nicht in der Lage sein sollte, die viel einfachere Aufgabe zu erfüllen, das bereits Gebildete lediglich zu erhalten.“ [ 7 ]
Unterschiede zwischen den Arten
Die unterschiedliche Geschwindigkeit, mit der die Sterblichkeit mit dem Alter zunimmt, korrespondiert mit unterschiedlichen maximalen Lebensspannen der verschiedenen Arten . Beispielsweise gilt eine Maus mit 3 Jahren als alt, ein Mensch mit 80 Jahren [ 8 ] , und Ginkgobäume zeigen selbst im Alter von 667 Jahren kaum einen Einfluss des Alters [ 9 ] .
Fast alle Organismen altern, darunter auch Bakterien , bei denen es bei der Zellteilung zu Asymmetrien zwischen Mutter- und Tochterzellen kommt : Die Mutterzelle altert, während die Tochterzelle verjüngt wird. [ 10 ] [ 11 ] Bei einigen Gruppen, wie beispielsweise der Gattung Hydra , ist die Alterung vernachlässigbar . [ 12 ] Planarien besitzen „offenbar unbegrenzte Telomerregenerationsfähigkeit , die durch eine Population hochproliferativer adulter Stammzellen ermöglicht wird .“ [ 13 ] Diese Planarien sind nicht biologisch unsterblich , sondern ihre Sterberate steigt mit dem Alter langsam an. Ein Beispiel für einen Organismus, der als biologisch unsterblich gilt, ist Turritopsis dohrnii , auch bekannt als „unsterbliche Qualle“, da sie sich bei Stress im Erwachsenenalter in ihren Jugendzustand zurückverwandeln kann. [ 14 ] Es wurde beobachtet, dass das Fortpflanzungssystem intakt bleibt und sogar die Gonaden von Turritopsis dohrnii vorhanden sind. [ 15 ]
Bei einigen Arten tritt eine „negative Seneszenz“ auf, bei der die Fortpflanzungsfähigkeit zunimmt oder stabil bleibt und die Sterblichkeit mit zunehmendem Alter abnimmt, was auf die Vorteile einer größeren Körpergröße im Alter zurückzuführen ist. [ 16 ]
Theorien des Alterns
Mehr als 300 verschiedene Theorien wurden aufgestellt, um die Natur (Mechanismen) und die Ursachen (Gründe für das natürliche Auftreten oder Faktoren) des Alterns zu erklären. [ 17 ] Gute Theorien würden sowohl vergangene Beobachtungen erklären als auch die Ergebnisse zukünftiger Experimente vorhersagen. Einige der Theorien können sich ergänzen, überschneiden, widersprechen oder andere Theorien nicht ausschließen.
Theorien des Alterns lassen sich in zwei Hauptkategorien einteilen: evolutionäre und mechanistische Alterungstheorien. Evolutionäre Alterungstheorien erklären primär, warum Altern stattfindet [ 18 ] , befassen sich aber nicht mit den molekularen Mechanismen, die diesen Prozess antreiben. Alle evolutionären Alterungstheorien basieren auf der Annahme, dass die Kraft der natürlichen Selektion mit dem Alter abnimmt [ 19 , 20 ] . Mechanistische Alterungstheorien lassen sich in Theorien, die von einem programmierten Alterungsprozess ausgehen, und Theorien der Schadensakkumulation unterteilen. Letztere gehen davon aus , dass Altern durch spezifische, im Laufe der Zeit auftretende molekulare Veränderungen verursacht wird.
Der Alterungsprozess lässt sich durch verschiedene Theorien erklären. Dazu gehören evolutionäre, molekulare, systemische und zelluläre Theorien. Die evolutionäre Theorie des Alterns wurde Ende der 1940er Jahre erstmals vorgeschlagen und lässt sich kurz durch die Akkumulation von Mutationen ( Evolution des Alterns ), die „verschwindende“ Soma-Hypothese und die Hypothese der antagonistischen Pleiotropie erklären . Zu den molekularen Theorien des Alterns zählen Phänomene wie Genregulation ( Genexpression ), Codon-Restriktion, Fehlerkatastrophen , somatische Mutationen, die Akkumulation von DNA-Schäden ( DNA-Schadenstheorie des Alterns ) und Dysdifferenzierung. Die systemischen Theorien umfassen den immunologischen Ansatz des Alterns, die Lebensgeschwindigkeit und Veränderungen neuroendokriner Kontrollmechanismen ( siehe Homöostase ). Die zelluläre Theorie des Alterns lässt sich in die Telomertheorie , die Freie-Radikal-Theorie ( Freie-Radikal-Theorie des Alterns ) und die Apoptose unterteilen . Die Stammzellentheorie des Alterns ist ebenfalls eine Unterkategorie der zellulären Theorien.
Evolutionäre Alterungstheorien
Antagonistische Pleiotropie
Eine Theorie, die von George C. Williams [ 7 ] vorgeschlagen wurde , basiert auf antagonistischer Pleiotropie . Ein einzelnes Gen kann mehrere Merkmale beeinflussen. Manche Merkmale, die die Fitness in jungen Jahren erhöhen, können später negative Auswirkungen haben. Da jedoch viel mehr Individuen in jungen als in alten Jahren leben, können selbst kleine positive Effekte in jungen Jahren stark selektiert werden, während große negative Effekte später nur schwach selektiert werden. Williams führte folgendes Beispiel an: Ein Gen kodiert möglicherweise für die Kalziumablagerung in den Knochen, was das Überleben in der Jugend fördert und daher durch natürliche Selektion begünstigt wird. Dasselbe Gen fördert jedoch die Kalziumablagerung in den Arterien und verursacht so im Alter negative atherosklerotische Effekte. Schädliche biologische Veränderungen im Alter können somit die Folge der Selektion pleiotroper Gene sein, die in jungen Jahren vorteilhaft, später aber schädlich sind. In diesem Fall ist der Selektionsdruck relativ hoch, wenn der Fisher-Reproduktionswert hoch ist, und relativ niedrig, wenn er niedrig ist.
Theorie des Wechselspiels zwischen Krebs und zellulärer Seneszenz beim Altern
Seneszente Zellen in einem vielzelligen Organismus können durch Konkurrenz zwischen den Zellen eliminiert werden, was jedoch das Krebsrisiko erhöht. Daraus ergibt sich ein unausweichliches Dilemma zwischen zwei Möglichkeiten: der Ansammlung physiologisch nutzloser seneszenter Zellen und Krebs, die beide mit zunehmendem Alter zu steigenden Sterblichkeitsraten führen. [ 2 ]
Einweg-Soma
Die „Einweg-Soma-Theorie“ des Alterns wurde 1977 von Thomas Kirkwood vorgeschlagen. [ 1 ] [ 21 ] Diese Theorie besagt, dass Altern auf einer Strategie beruht, bei der ein Individuum nur so lange in den Erhalt seines Körpers investiert, wie eine realistische Überlebenschance besteht. [ 22 ] Eine Art, die Ressourcen effizienter nutzt, lebt länger und kann somit genetische Informationen an die nächste Generation weitergeben. Da die Anforderungen der Fortpflanzung hoch sind, wird im Vergleich zu den Keimzellen weniger Aufwand in die Reparatur und den Erhalt somatischer Zellen investiert, um sich auf die Fortpflanzung und das Überleben der Art zu konzentrieren. [ 23 ]
Theorien des programmierten Alterns
Programmierte Theorien des Alterns gehen davon aus, dass Altern adaptiv ist und berufen sich dabei normalerweise auf Selektion im Sinne der Evolvierbarkeit oder Gruppenselektion .
Die Theorie des reproduktiven Zellzyklus legt nahe, dass die Alterung durch Veränderungen der hormonellen Signalgebung im Laufe des Lebens reguliert wird. [ 24 ]
Schadensakkumulationstheorien
Die Freie-Radikal-Theorie des Alterns
Eine der bekanntesten Theorien des Alterns wurde 1956 von Harman aufgestellt. [ 25 ] Sie besagt, dass freie Radikale, die durch gelösten Sauerstoff, Strahlung, Zellatmung und andere Quellen entstehen, die molekularen Maschinen der Zelle schädigen und diese allmählich abbauen. Dies wird auch als oxidativer Stress bezeichnet .
Für diese Theorie gibt es zahlreiche Belege. Ältere Tiere weisen größere Mengen an oxidierten Proteinen, DNA und Lipiden auf als jüngere. [ 26 ] [ 27 ]
Chemische Schäden

Eine der frühesten Theorien des Alterns war die Rate of Living Hypothesis, die Raymond Pearl 1928 [ 28 ] (basierend auf früheren Arbeiten von Max Rubner ) beschrieb und die besagt, dass eine hohe Grundumsatzrate mit einer kurzen maximalen Lebensspanne einhergeht .
Auch wenn die Annahme, dass ein schneller Stoffwechsel bei bestimmten, im Folgenden beschriebenen Stoffwechselprodukten die Lebensspanne verkürzen kann, teilweise zutrifft, erklärt diese Theorie im Allgemeinen weder innerhalb noch zwischen Arten die Unterschiede in der Lebensspanne ausreichend. Kalorienbeschränkte Tiere verbrauchen genauso viele oder sogar mehr Kalorien pro Gramm Körpermasse wie ihre ad libitum gefütterten Artgenossen und weisen dennoch eine deutlich längere Lebensspanne auf. Ebenso wenig lässt sich die Lebensspanne von Vögeln, Fledermäusen und anderen Arten vorhersagen, die vermutlich aufgrund geringerer Prädationssterblichkeit eine lange Lebensspanne entwickelt haben, anhand der Stoffwechselrate vorhersagen. [ 29 ] Eine Analyse aus dem Jahr 2007 zeigte, dass die Stoffwechselrate bei Säugetieren und Vögeln nicht mit der Langlebigkeit korreliert , wenn moderne statistische Methoden zur Korrektur der Effekte von Körpergröße und Phylogenie angewendet werden. [ 30 ]
Bezüglich spezifischer Arten von Stoffwechselschäden wird angenommen, dass Schäden an langlebigen Biopolymeren , wie Strukturproteinen oder DNA , die durch ubiquitäre chemische Substanzen im Körper, wie Sauerstoff und Zucker , verursacht werden , teilweise für die Alterung verantwortlich sind. Zu diesen Schäden zählen der Bruch von Biopolymerketten, die Vernetzung von Biopolymeren oder die chemische Anlagerung unnatürlicher Substituenten ( Haptene ) an Biopolymere. Unter normalen aeroben Bedingungen werden etwa 4 % des von den Mitochondrien verstoffwechselten Sauerstoffs in Superoxid- Ionen umgewandelt . Diese können anschließend in Wasserstoffperoxid , Hydroxylradikale und schließlich in andere reaktive Spezies, darunter weitere Peroxide und Singulett -Sauerstoff , umgewandelt werden . Diese können wiederum freie Radikale erzeugen , die Strukturproteine und DNA schädigen können. [ 6 ] Bestimmte im Körper vorkommende Metallionen , wie Kupfer und Eisen , können an diesem Prozess beteiligt sein. (Bei der Wilson-Krankheit , einem erblichen Defekt , der zu einer Kupferspeicherung im Körper führt, ähneln einige Symptome einer beschleunigten Alterung.) Diese als oxidativer Stress bezeichneten Prozesse werden mit den potenziellen Vorteilen von Polyphenol- Antioxidantien in der Nahrung , beispielsweise in Kaffee [ 31 ] und Tee [ 32 ] , in Verbindung gebracht . Ihre typischerweise positiven Auswirkungen auf die Lebensspanne bei moderatem Konsum [ 33 ] [ 34 ] [ 35 ] wurden jedoch auch durch Effekte auf die Autophagie [ 36 ] , den Glukosestoffwechsel [ 37 ] und AMPK [ 38 ] erklärt .
Zucker wie Glukose und Fruktose können mit bestimmten Aminosäuren wie Lysin und Arginin sowie bestimmten DNA-Basen wie Guanin reagieren und dabei Zuckeraddukte bilden. Dieser Prozess wird als Glykation bezeichnet . Die Addukte können sich weiter zu reaktiven Spezies umlagern, welche dann Strukturproteine oder DNA mit ähnlichen Biopolymeren oder anderen Biomolekülen wie nicht-strukturellen Proteinen vernetzen können. Menschen mit Diabetes , die einen erhöhten Blutzuckerspiegel aufweisen , entwickeln altersbedingte Erkrankungen deutlich früher als die Allgemeinbevölkerung. Durch eine strenge Blutzuckerkontrolle lässt sich das Auftreten dieser Erkrankungen jedoch verzögern. Es gibt Hinweise darauf, dass Zuckerschäden mit oxidativen Schäden in einem Prozess namens Glykoxidation zusammenhängen .
Freie Radikale können Proteine, Lipide oder DNA schädigen . Glykation schädigt hauptsächlich Proteine. Beschädigte Proteine und Lipide reichern sich in Lysosomen als Lipofuszin an . Chemische Schäden an Strukturproteinen können zu Funktionsverlust führen; beispielsweise kann eine Schädigung des Kollagens in Blutgefäßwänden zu Gefäßwandversteifung und damit zu Bluthochdruck sowie zu Gefäßwandverdickung und reaktiver Gewebsbildung ( Arteriosklerose ) führen; ähnliche Prozesse in der Niere können Nierenversagen verursachen . Schäden an Enzymen beeinträchtigen die Zellfunktion. Lipidperoxidation der inneren Mitochondrienmembran reduziert das elektrische Potenzial und die Fähigkeit zur Energiegewinnung. Es ist wahrscheinlich kein Zufall, dass nahezu alle sogenannten „ beschleunigten Alterungserkrankungen “ auf defekte DNA- Reparaturenzyme zurückzuführen sind. [ 39 ] [ 40 ]
Man geht davon aus, dass die Auswirkungen von Alkohol auf den Alterungsprozess teilweise durch die Aktivierung der HPA-Achse durch Alkohol erklärt werden können, welche die Glukokortikoidausschüttung stimuliert , wodurch langfristige Exposition gegenüber Glukokortikoiden zu Alterserscheinungen führt. [ 41 ]
DNA-Schäden
In einer Übersichtsarbeit aus dem Jahr 2021 wurde DNA-Schädigung als Hauptursache des Alterns vorgeschlagen, da sie mit nahezu allen Aspekten des Alterungsphänotyps mechanistisch verknüpft ist. [ 42 ] Eine langsamere Akkumulation von DNA-Schäden , gemessen anhand des DNA-Schadensmarkers γH2AX in Leukozyten, korrelierte mit einer längeren Lebensspanne bei Delfinen , Ziegen , Rentieren , Flamingos und Gänsegeiern . [ 43 ] DNA-Schaden-induzierte epigenetische Veränderungen, wie die DNA-Methylierung und zahlreiche Histonmodifikationen , scheinen für den Alterungsprozess von besonderer Bedeutung zu sein. [ 42 ] Belege für die Theorie, dass DNA-Schäden die grundlegende Ursache des Alterns sind, wurden erstmals 1981 zusammenfassend dargestellt. [ 44 ]
Mutationsakkumulation
Die natürliche Selektion kann letale und schädliche Allele begünstigen , wenn deren Auswirkungen erst nach der Fortpflanzung sichtbar werden. Der Genetiker J. B. S. Haldane fragte sich, warum die dominante Mutation, die die Huntington-Krankheit verursacht , in der Population erhalten blieb und warum die natürliche Selektion sie nicht eliminiert hatte. Diese neurologische Erkrankung bricht (im Durchschnitt) mit 45 Jahren aus und führt innerhalb von 10–20 Jahren unweigerlich zum Tod. Haldane nahm an, dass in der menschlichen Vorgeschichte nur wenige Menschen das 45. Lebensjahr erreichten. Da nur wenige ein höheres Alter erreichten und ihr Beitrag zur nächsten Generation im Verhältnis zu den großen Kohorten jüngerer Altersgruppen gering war, war die Selektionskraft gegen solche spät wirkenden schädlichen Mutationen entsprechend gering. Daher kann eine genetische Belastung durch spät wirkende schädliche Mutationen im Mutations-Selektions-Gleichgewicht erheblich sein. Dieses Konzept wurde als Selektionsschatten bekannt . [ 45 ]
Peter Medawar formalisierte diese Beobachtung in seiner Mutationsakkumulationstheorie des Alterns. [ 46 ] [ 47 ] „Die Kraft der natürlichen Selektion schwächt sich mit zunehmendem Alter ab – selbst in einer theoretisch unsterblichen Population, vorausgesetzt, sie ist realen Todesrisiken ausgesetzt. Tritt eine genetische Katastrophe erst spät im Leben eines Individuums ein, können ihre Folgen völlig unbedeutend sein.“ Altersunabhängige Risiken wie Raubtiere, Krankheiten und Unfälle, die als „ extrinsische Mortalität “ bezeichnet werden, führen dazu, dass selbst in einer Population mit vernachlässigbarer Seneszenz weniger Individuen in höheren Altersgruppen leben.
Sonstige Schäden
Eine Studie kam zu dem Schluss, dass Retroviren im menschlichen Genom aus einem Ruhezustand reaktiviert werden und zur Alterung beitragen können, was durch neutralisierende Antikörper blockiert werden kann , wodurch „zelluläre Seneszenz und Gewebedegeneration und bis zu einem gewissen Grad auch die Alterung des Organismus“ gemildert werden. [ 48 ]
Stammzelltheorien des Alterns
Die Stammzelltheorie des Alterns postuliert, dass der Alterungsprozess auf der Unfähigkeit verschiedener Stammzelltypen beruht, das Gewebe eines Organismus kontinuierlich mit funktionsfähigen , differenzierten Zellen zu erneuern, die die ursprüngliche Funktion des Gewebes (oder Organs ) aufrechterhalten können. Schäden und Fehler im genetischen Material stellen unabhängig vom Alter ein Problem für alle Systeme dar. Die Anzahl der Stammzellen ist bei jungen Menschen deutlich höher als bei älteren, wodurch ein besserer und effizienterer Ersatzmechanismus zur Verfügung steht. Anders ausgedrückt: Altern ist nicht auf eine Zunahme von Schäden zurückzuführen, sondern auf das Versagen, diese aufgrund der abnehmenden Anzahl von Stammzellen zu ersetzen. Die Anzahl der Stammzellen nimmt ab, und sie verlieren tendenziell die Fähigkeit, sich in Nachkommen oder lymphatische und myeloische Zelllinien zu differenzieren .
Die Aufrechterhaltung des dynamischen Gleichgewichts der Stammzellpools erfordert mehrere Bedingungen. Das Gleichgewicht zwischen Proliferation und Ruhephase sowie das Homing ( siehe Nische ) und die Selbsterneuerung hämatopoetischer Stammzellen fördern die Erhaltung des Stammzellpools, während Differenzierung, Mobilisierung und Seneszenz schädliche Faktoren darstellen. Diese schädlichen Effekte führen schließlich zur Apoptose .
Auch bei der therapeutischen Anwendung von Stammzellen und ihrer Fähigkeit, Organe und Gewebe zu regenerieren, bestehen einige Herausforderungen. Erstens können verschiedene Zellen unterschiedliche Lebensdauern aufweisen, selbst wenn sie von denselben Stammzellen abstammen ( siehe T-Zellen und Erythrozyten ). Dies bedeutet, dass der Alterungsprozess in Zellen mit längerer Lebensdauer anders verlaufen kann als in solchen mit kürzerer Lebensdauer. Zudem kann der kontinuierliche Versuch, somatische Zellen zu ersetzen, zur Erschöpfung der Stammzellen führen. [ 49 ]
- Alterung hämatopoetischer Stammzellen
Hämatopoetische Stammzellen (HSCs) regenerieren das Blutsystem lebenslang und erhalten die Homöostase aufrecht. [ 50 ] Mit zunehmendem Alter akkumulieren sich DNA-Strangbrüche in HSCs. [ 51 ] [ 52 ] Diese Akkumulation ist mit einer allgemeinen Abschwächung von DNA-Reparatur- und Antwortwegen verbunden, die von der Ruhephase der HSCs abhängt. [ 52 ] Die DNA-Ligase 4 (Lig4) spielt eine hochspezifische Rolle bei der Reparatur von Doppelstrangbrüchen durch nicht-homologe Endverknüpfung (NHEJ). Ein Lig4-Mangel in der Maus führt zu einem fortschreitenden Verlust von HSCs im Alter. [ 53 ] Diese Ergebnisse legen nahe, dass NHEJ ein entscheidender Faktor für die Fähigkeit von HSCs ist, sich über die Zeit selbst zu erhalten. [ 53 ]
- Diversität hämatopoetischer Stammzellen und Alterung
- Hämatopoetischer Mosaikverlust des Y-Chromosoms
Eine Studie aus dem Jahr 2022 zeigte, dass der Verlust des Y-Chromosoms in einer Untergruppe von Blutzellen , der als „ mosaikartiger Verlust des Y-Chromosoms “ (mLOY) bezeichnet wird und Berichten zufolge mindestens 40 % der 70-jährigen Männer in gewissem Maße betrifft, ursächlich zu Fibrose , Herzrisiken und Mortalität beiträgt. [ 56 ] [ 57 ]
Biomarker des Alterns
Wenn Individuen unterschiedlich schnell altern, könnten Fruchtbarkeit, Mortalität und funktionelle Kapazität durch Biomarker besser vorhergesagt werden als durch das chronologische Alter. [ 58 ] [ 59 ] Allerdings sind Ergrauen der Haare [ 60 ] , Gesichtsalterung , Faltenbildung und andere häufige altersbedingte Veränderungen keine besseren Indikatoren für die zukünftige Funktionsfähigkeit als das chronologische Alter. Biogerontologen bemühen sich weiterhin um die Suche und Validierung von Biomarkern des Alterns, bisher jedoch mit begrenztem Erfolg.
Anhand der Konzentrationen von CD4- und CD8- Gedächtnis-T-Zellen sowie naiven T-Zellen lassen sich gute Vorhersagen über die Lebenserwartung von Mäusen mittleren Alters treffen. [ 61 ]
Alternde Uhren
Epigenetische Uhren gewinnen zunehmend an Bedeutung als Biomarker des Alterns, da sie das chronologische Alter des Menschen vorhersagen können. Viele epigenetische Alterungsuhren basieren auf der DNA-Methylierung [ 62 , 63 ] , doch es werden auch alternative epigenetische Uhren entwickelt, beispielsweise basierend auf der Nukleosomenpositionierung zellfreier DNA [ 64 ] . Auch grundlegende Blutchemie und Zellzahlen ermöglichen eine präzise Vorhersage des chronologischen Alters [ 65 ] . Darüber hinaus ist es möglich , das chronologische Alter mithilfe transkriptomischer Alterungsuhren vorherzusagen [ 66 ] .
Es wird an weiteren Biomarkern, Detektionssystemen und Softwaresystemen geforscht und entwickelt, um das biologische Alter verschiedener Gewebe, Systeme oder des gesamten Organismus zu messen. Beispielsweise schätzte eine Deep-Learning -Software (DL) anhand anatomischer Magnetresonanztomographiebilder das Hirnalter mit relativ hoher Genauigkeit und erkannte dabei frühe Anzeichen der Alzheimer-Krankheit sowie unterschiedliche neuroanatomische Muster der neurologischen Alterung [ 67 ] . Außerdem wurde ein DL-Tool zur Berechnung des Entzündungsalters einer Person auf Basis systemischer altersbedingter Entzündungsmuster vorgestellt [ 68 ] .
Alterungsuhren wurden bereits zur Bewertung der Auswirkungen von Interventionen auf den Menschen, einschließlich Kombinationstherapien, eingesetzt . [ 69 ] Der Einsatz von Alterungsuhren zur Identifizierung und Bewertung von Langlebigkeitsinterventionen stellt ein grundlegendes Ziel der Alternsforschung dar. Die Erreichung dieses Ziels erfordert jedoch die Bewältigung zahlreicher Herausforderungen und die Implementierung zusätzlicher Validierungsschritte. [ 70 ] [ 71 ]
Genetische Determinanten des Alterns
Mithilfe von Modellorganismen, von der einfachen Bäckerhefe Saccharomyces cerevisiae bis hin zu Würmern wie Caenorhabditis elegans und Fruchtfliegen ( Drosophila melanogaster ), wurden mehrere genetische Komponenten des Alterns identifiziert. Die Untersuchung dieser Organismen hat die Existenz von mindestens zwei konservierten Alterungswegen aufgezeigt.
Die Genexpression ist nicht perfekt reguliert, und zufällige Schwankungen in der Expression vieler Gene können zum Alterungsprozess beitragen, wie eine Studie an solchen Genen in Hefe nahelegt. [ 72 ] Einzelne, genetisch identische Zellen können dennoch deutlich unterschiedliche Reaktionen auf äußere Reize und merklich unterschiedliche Lebensspannen aufweisen. Dies deutet darauf hin, dass epigenetische Faktoren neben genetischen Faktoren eine wichtige Rolle bei der Genexpression und dem Altern spielen. Die Epigenetik des Alterns ist Gegenstand aktueller Forschung .
Die Fähigkeit zur Reparatur von DNA-Doppelstrangbrüchen nimmt mit dem Alter bei Mäusen [ 73 ] und Menschen [ 74 ] ab.
Eine Gruppe seltener, erblicher Erkrankungen , die als Progerie bezeichnet werden , ist seit einiger Zeit bekannt. Betroffene weisen Symptome auf, die einer beschleunigten Alterung ähneln , darunter Faltenbildung . Die Ursache des Hutchinson-Gilford-Progerie-Syndroms wurde im Mai 2003 in der Fachzeitschrift Nature beschrieben. [ 75 ] Dieser Bericht legt nahe, dass DNA-Schäden und nicht oxidativer Stress die Ursache für diese Form der beschleunigten Alterung sind.
Eine Studie deutet darauf hin, dass sich die Aktivität im Alter hin zu kurzen Genen oder kürzeren Transkriptlängen verlagern kann und dass dem durch Interventionen entgegengewirkt werden kann. [ 76 ]
Gesundheitsspanne und Altern in der Gesellschaft


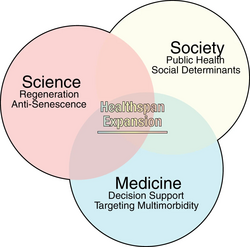
Die Gesundheitsspanne kann im weitesten Sinne als der Zeitraum im Leben definiert werden, in dem man gesund ist , also frei von schwerwiegenden Krankheiten [ 78 ] oder einem Rückgang der Fähigkeiten (z. B. der Sinne wie Hören , der Muskeln , der Ausdauer und der Kognition ) ist.
Mit der Alterung der Bevölkerung nehmen altersbedingte Erkrankungen zu und stellen eine erhebliche Belastung für die Gesundheitssysteme sowie die moderne Wirtschaft und ihre gesellschaftlichen Systeme dar. Die Forschung zur Verlängerung der Gesundheitsspanne und zur Bekämpfung des Alterns zielt darauf ab, die gesunde Lebensspanne älterer Menschen zu verlängern und den Alterungsprozess bzw. seine negativen Auswirkungen wie den körperlichen und geistigen Abbau zu verlangsamen. Moderne Anti-Seneszenz- und regenerative Technologien in Verbindung mit verbesserter Entscheidungsfindung könnten dazu beitragen, „die Lücke zwischen Gesundheitsspanne und Lebensspanne verantwortungsvoll zu schließen und so eine Zukunft mit gerechtem globalem Wohlbefinden zu schaffen“ [ 79 ] . Altern ist „der häufigste Risikofaktor für chronische Krankheiten, Gebrechlichkeit und Behinderung, und es wird geschätzt, dass es bis zum Jahr 2050 über 2 Milliarden Menschen im Alter von über 60 Jahren geben wird“, was es zu einer großen globalen gesundheitlichen Herausforderung macht, die erhebliche (und gut koordinierte bzw. effiziente) Anstrengungen erfordert, einschließlich Interventionen, die den angeborenen Alterungsprozess verändern und gezielt beeinflussen [ 80 ] .
Die biologische Alterung bzw. die Lebenserwartungserhöhung (LHG) ist mit einer hohen Kostenbelastung für die Gesellschaft verbunden, darunter potenziell steigende Gesundheitskosten (abhängig von Art und Kosten der Behandlungen ). [ 77 ] [ 81 ] Dies unterstreicht zusammen mit der allgemeinen Lebensqualität bzw. dem Wohlbefinden die Bedeutung der Verlängerung der gesunden Lebensspanne. [ 77 ]
Obwohl Interventionen, die die Lebensspanne verlängern, auch die Gesundheitsspanne verlängern können, ist dies nicht immer der Fall. Dies deutet darauf hin, dass die Lebensspanne in der Forschung nicht länger der alleinige relevante Parameter sein kann. [ 82 ] Als der Anstieg der Lebenserwartung die Verbesserungen der Gesundheitsspanne übertraf, [ 77 ] wuchs das öffentliche Bewusstsein für diese Diskrepanz zwischen Lebensspanne und Gesundheitsspanne um das Jahr 2017. [ 78 ] Wissenschaftler stellten fest: „ Chronische Erkrankungen des Alters nehmen zu und verursachen unermessliche Kosten für die Lebensqualität der Menschen.“ [ 81 ]
Interventionen
Lebensverlängerung ist das Konzept, die menschliche Lebensspanne zu verlängern , entweder durch schrittweise medizinische Fortschritte oder durch eine radikale Steigerung der maximalen Lebensspanne über die allgemein anerkannte biologische Grenze von etwa 125 Jahren hinaus . [ 83 ] Dieses Forschungsgebiet wurde von zahlreichen Wissenschaftlern und Befürwortern untersucht, darunter „Lebensverlängerungsbefürworter“, „ Unsterblichkeitsbefürworter “ und „ Langlebigkeitsbefürworter “ (jene, die selbst eine verlängerte Lebensspanne anstreben). Diese Wissenschaftler und Befürworter gehen davon aus, dass zukünftige Fortschritte in der Geweberegeneration , der Stammzellforschung , der regenerativen Medizin , der molekularen Reparatur, der Gentherapie , der Pharmazie und des Organersatzes (z. B. durch künstliche Organe oder Xenotransplantationen ) es dem Menschen letztendlich ermöglichen werden, durch vollständige Verjüngung zu einem Zustand optimaler Gesundheit und Jugend ein unbegrenztes Leben zu führen (Agerasie [ 84 ] ). Die ethischen Implikationen der Lebensverlängerung sind Gegenstand von Diskussionen unter Bioethikern .
Der Verkauf vermeintlicher Anti-Aging-Produkte wie Nahrungsergänzungsmittel und Hormonersatztherapie ist ein lukratives globales Geschäft. So erwirtschaftete beispielsweise die Branche, die in den USA die Anwendung von Hormonen zur Verlangsamung oder Umkehrung des Alterungsprozesses bewirbt, im Jahr 2009 einen Umsatz von rund 50 Milliarden US-Dollar. [ 85 ] Die Wirksamkeit und Sicherheit solcher Hormonprodukte ist nicht erwiesen. [ 85 ] [ 86 ] [ 87 ] [ 88 ] Auch diverse Apps versprechen, die Lebensdauer ihrer Nutzer zu verlängern oder deren Lebenserwartung vorherzusagen. [ 89 ] [ 90 ] [ 91 ]
Siehe auch
- Anti-Aging-Bewegung
- Antimuskarinika
- Demenz
- DNA-Reparatur
- Geriatrie
- Gerontologie
- Homöostatische Kapazität
- Unsterblichkeit
- Themenverzeichnis zur Lebensverlängerung
- Mitohormesis
- Alter
- Phänoptose
- Pflanzenalterung
- Programmierter Zelltod
- Strategien für künstlich herbeigeführte vernachlässigbare Seneszenz (SENS)
- Subtödliche Schäden
- Generationenübergreifendes Design
- Zeitleiste der Seneszenzforschung
Referenzen
- ^ a b Kirkwood TB (1977). „Evolution of ageing“. Nature . 270 (5635): 301–4 . Bibcode : 1977Natur.270..301K . doi : 10.1038 / 270301a0 . PMID 593350. S2CID 492012 .
- ^ a b Nelson P, Masel J (Dezember 2017). „Interzelluläre Konkurrenz und die Unvermeidbarkeit des Alterns in mehrzelligen Organismen“ . Proceedings of the National Academy of Sciences of the United States of America . 114 (49): 12982–7 . Bibcode : 2017PNAS..11412982N . doi : 10.1073 / pnas.1618854114 . PMC 5724245. PMID 29087299 .
- ^ „Glossar zu Altern und Gerontologie“ . Archiviert vom Original am 19. Oktober 2019. Abgerufen am 26. Februar 2011 .
- ^ López-Otín C, Blasco MA , Partridge L, et al. (Juni 2013). „Die Kennzeichen des Alterns“ . Cell . 153 (6): 1194–217 . doi : 10.1016/j.cell.2013.05.039 . PMC 3836174. PMID 23746838 .
- ^ López-Otín C, Blasco MA, Partridge L, et al. (19. Januar 2023). „Kennzeichen des Alterns: Ein expandierendes Universum“ . Cell . 186 ( 2): 243–278 . doi : 10.1016/j.cell.2022.11.001 . PMID 36599349. S2CID 255394876 .
- ^ a b Holmes GE, Bernstein C, Bernstein H (September 1992). „Oxidative and other DNA damage as the basis of aging: a review“. Mutat. Res . 275 ( 3– 6): 305– 15. doi : 10.1016/0921-8734(92)90034-m . PMID 1383772 .
- ^ a b Williams GC (1957). „Pleiotropie, natürliche Selektion und die Evolution der Seneszenz“. Evolution . 11 (4): 398–411 . doi : 10.2307/2406060 . JSTOR 2406060 .
- ^ Austad SN (Februar 2009). „Vergleichende Biologie des Alterns“ . The Journals of Gerontology. Series A, Biological Sciences and Medical Sciences . 64 (2): 199–201 . doi : 10.1093/gerona/ gln060 . PMC 2655036. PMID 19223603 .
- ^ Wang L, Cui J, Jin B, et al. (Januar 2020). „Multifeature-Analysen von vaskulären Kambiumzellen enthüllen Langlebigkeitsmechanismen in alten Ginkgo-biloba- Bäumen“ . Proceedings of the National Academy of Sciences of the United States of America . 117 (4): 2201–10 . Bibcode : 2020PNAS..117.2201W . doi : 10.1073/pnas.1916548117 . PMC 6995005. PMID 31932448 .
- ^ Ackermann M, Stearns SC, Jenal U (Juni 2003). „Seneszenz in einem Bakterium mit asymmetrischer Teilung“. Science . 300 ( 5627): 1920. Bibcode : 2003Sci...300.1920A . doi : 10.1126/science.1083532 . PMID 12817142. S2CID 34770745 .
- ^ Stewart EJ, Madden R, Paul G, et al. (Februar 2005). „Altern und Tod in einem Organismus, der sich durch morphologisch symmetrische Teilung fortpflanzt“ . PLOS Biology . 3 (2) e45. doi : 10.1371/journal.pbio.0030045 . PMC 546039. PMID 15685293 .
- ^ Dańko MJ, Kozłowski J, Schaible R (Oktober 2015). „Das Phänomen der Nicht-Seneszenz bei Hydra entschlüsseln“ . Journal of Theoretical Biology . 382 : 137–49 . Bibcode : 2015JThBi.382..137D . doi : 10.1016/j.jtbi.2015.06.043 . PMID 26163368 .
- ^ Tan TC, Rahman R, Jaber-Hijazi F, et al. (März 2012). „Telomererhaltung und Telomeraseaktivität werden in asexuellen und sexuellen Würmern unterschiedlich reguliert“ . Proceedings of the National Academy of Sciences of the United States of America . 109 (11): 4209–14 . Bibcode : 2012PNAS..109.4209T . doi : 10.1073/pnas.1118885109 . PMC 3306686. PMID 22371573 .
- ^ Lisenkova AA, Grigorenko AP, Tyazhelova TV, et al. (Februar 2017). „Vollständiges mitochondriales Genom und evolutionäre Analyse von Turritopsis dohrnii, der „unsterblichen“ Qualle mit reversiblem Lebenszyklus“ . Molecular Phylogenetics and Evolution . 107 : 232–238 . Bibcode : 2017MolPE.107..232L . doi : 10.1016/j.ympev.2016.11.007 . PMID 27845203 .
- ^ Piraino S, Boero F, Aeschbach B, et al. (Juni 1996). „Umkehrung des Lebenszyklus: Medusen verwandeln sich in Polypen und Zelltransdifferenzierung bei Turritopsis nutricula (Cnidaria, Hydrozoa)“. The Biological Bulletin . 190 (3): 302–312 . Bibcode : 1996BiolB.190..302P . doi : 10.2307/1543022 . JSTOR 1543022. PMID 29227703 .
- ^ Vaupel JW, Baudisch A, Dölling M, et al. (Juni 2004). „The case for negative senescence“. Theoretical Population Biology . 65 (4): 339–51 . Bibcode : 2004TPBio..65..339W . doi : 10.1016/j.tpb.2003.12.003 . PMID 15136009 .
- ^ Viña J, Borrás C, Miquel J (2007). „Theorien des Alterns“ . IUBMB Leben . 59 ( 4– 5): 249– 54. doi : 10.1080/15216540601178067 . PMID 17505961 .
- ^ Kirkwood TB, Austad SN (2000). „Warum altern wir?“. Nature . 408 ( 6809): 233–238 . Bibcode : 2000Natur.408..233K . doi : 10.1038/35041682 . PMID 11089980. S2CID 2579770 .
- ^ Medawar PB (1952). Ein ungelöstes Problem der Biologie . Veröffentlicht für das College von HK Lewis . OCLC 869293719 .
- Rose MR (1991). Evolutionsbiologie des Alterns . Oxford University Press. ISBN 1-4237-6520-6OCLC 228167629 .
- ^ Kirkwood T (2006). Die Zeit unseres Lebens: Die Wissenschaft des menschlichen Alterns . Oxford University Press. ISBN 978-0-19-802939-7OCLC 437175125 .
- Hammers M, Richardson DS, Burke T, et al. (September 2013). „Der Einfluss von Reproduktionsinvestition und frühkindlichen Umweltbedingungen auf die Seneszenz: Unterstützung für die Einweg-Soma-Hypothese“. Journal of Evolutionary Biology . 26 (9): 1999–2007 . Bibcode : 2013JEBio..26.1999H . doi : 10.1111/jeb.12204 . hdl : 11370/9cc6749c- f67d -40ab-a253-a06650c32102 . PMID 23961923. S2CID 46466320 .
- ^ Kirkwood TB, Rose MR (April 1991). „Evolution der Seneszenz: Spätes Überleben geopfert für die Reproduktion“. Philosophical Transactions of the Royal Society of London. Series B, Biological Sciences . 332 (1262): 15–24 . Bibcode : 1991RSPTB.332...15K . doi : 10.1098/rstb.1991.0028 . PMID 1677205 .
- ^ Atwood CS, Bowen RL (2011). „Die Theorie des reproduktiven Zellzyklus beim Altern: ein Update“. Experimental Gerontology . 46 ( 2–3 ): 100–7 . doi : 10.1016/j.exger.2010.09.007 . PMID 20851172. S2CID 20998909 .
- ^ Harman D (Juli 1956). „Altern: Eine Theorie basierend auf freier Radikal- und Strahlenchemie“. Journal of Gerontology . 11 (3): 298–300 . doi : 10.1093/geronj/11.3.298 . hdl : 2027/mdp.39015086547422 . PMID 13332224 .
- ^ Stadtman ER (August 1992). „Protein oxidation and aging“ . Science . 257 (5074): 1220–4 . Bibcode : 1992Sci...257.1220S . doi : 10.1126/science.1355616 . PMID 1355616. Archiviert vom Original am 31. Juli 2021. Abgerufen am 21. Juli 2021 .
- ^ Sohal RS, Agarwal S, Dubey A, et al. (August 1993). „Oxidative Proteinschäden korrelieren mit der Lebenserwartung von Stubenfliegen“ . Proceedings of the National Academy of Sciences of the United States of America . 90 (15): 7255–9 . Bibcode : 1993PNAS...90.7255S . doi : 10.1073/pnas.90.15.7255 . PMC 47115. PMID 8346242 .
- ^ Pearl R (1928). Die Geschwindigkeit des Lebens, eine Darstellung einiger experimenteller Studien zur Biologie der Lebensdauer . New York: Alfred A. Knopf. LCCN 28000834 .
- Brunet -Rossinni AK, Austad SN (2004). „Altersstudien an Fledermäusen: ein Überblick“. Biogerontology . 5 ( 4): 211–22 . doi : 10.1023/B:BGEN.0000038022.65024.d8 . PMID 15314271. S2CID 22755811 .
- ^ de Magalhães JP, Costa J, Church GM (Februar 2007). „Eine Analyse des Zusammenhangs zwischen Stoffwechsel, Entwicklungszeitplan und Langlebigkeit mittels phylogenetischer unabhängiger Kontraste“ . The Journals of Gerontology. Series A, Biological Sciences and Medical Sciences . 62 (2): 149–60 . CiteSeerX 10.1.1.596.2815 . doi : 10.1093 / gerona/62.2.149 . PMC 2288695. PMID 17339640 .
- ^ Freedman ND, Park Y, Abnet CC, et al. (Mai 2012). „Zusammenhang zwischen Kaffeekonsum und Gesamt- sowie ursachenspezifischer Mortalität“ . The New England Journal of Medicine . 366 (20): 1891–904 . doi : 10.1056/NEJMoa1112010 . PMC 3439152. PMID 22591295 .
- ^ Yang Y, Chan SW, Hu M, et al. (2011). „Auswirkungen einiger häufiger Lebensmittelbestandteile auf Herz-Kreislauf-Erkrankungen“ . ISRN Cardiology . 2011; 397136. doi : 10.5402/2011/397136 . PMC 3262529. PMID 22347642 .
- Poole R, Kennedy OJ, Roderick P, et al. (22. November 2017). „Kaffeekonsum und Gesundheit: Übersichtsarbeit von Metaanalysen zu verschiedenen Gesundheitsindikatoren“ . BMJ . 359 j5024 . doi : 10.1136/bmj.j5024 . PMC 5696634. PMID 29167102 .
- ^ O'Keefe JH, DiNicolantonio JJ, Lavie CJ (1. Mai 2018). „Kaffee zur Herz-Kreislauf-Gesundheit und für ein langes Leben“. Progress in Cardiovascular Diseases . 61 (1): 38–42 . doi : 10.1016/j.pcad.2018.02.002 . PMID 29474816 .
- ^ Grosso G, Godos J, Galvano F, et al. (21. August 2017). „Kaffee, Koffein und gesundheitliche Auswirkungen: Eine Übersichtsarbeit“. Annual Review of Nutrition . 37 (1): 131–156 . doi : 10.1146/annurev-nutr-071816-064941 . PMID 28826374 .
- ^ Dirks-Naylor AJ (15. Dezember 2015). „Die Vorteile von Kaffee für die Skelettmuskulatur“. Life Sciences . 143 : 182–6 . doi : 10.1016/j.lfs.2015.11.005 . PMID 26546720 .
- ^ Reis CE, Dórea JG, da Costa TH (1. Juli 2019). „Auswirkungen des Kaffeekonsums auf den Glukosestoffwechsel: Eine systematische Übersicht klinischer Studien“ . Journal of Traditional and Complementary Medicine . 9 (3): 184–191 . doi : 10.1016/j.jtcme.2018.01.001 . PMC 6544578. PMID 31193893 .
- ^ Loureiro LM, Reis CE, Costa TH (1. Mai 2018). „Einfluss von Kaffeebestandteilen auf die Regeneration des Muskelglykogens: Eine systematische Übersicht“. International Journal of Sport Nutrition and Exercise Metabolism . 28 (3): 284–293 . doi : 10.1123/ijsnem.2017-0342 . PMID 29345166 .
- Bernstein H, Payne CM, Bernstein C, et al. (2008). „Krebs und Altern als Folgen unreparierter DNA-Schäden.“ In: Kimura H, Suzuki A (Hrsg.). Neue Forschung zu DNA-Schäden . Nova Science Publishers. S. 1–47 . ISBN 978-1-60456-581-2Archiviert vom Original am 15. November 2023. Abgerufen am 4. Februar 2016 .
- ^ Pan MR, Li K, Lin SY, et al. (Mai 2016). „Zusammenhänge erkennen: Von DNA-Schäden und -Reparatur zum Altern“ . International Journal of Molecular Sciences . 17 (5): 685. doi : 10.3390/ijms17050685 . PMC 4881511. PMID 27164092 .
- Spencer RL, Hutchison KE (1999). „Alkohol, Alterung und die Stressreaktion“ ( PDF) . Alcohol Research & Health . 23 (4): 272–83 . PMC 6760387. PMID 10890824. Archiviert vom Original (PDF) am 11. Dezember 2018. Abgerufen am 8. April 2008 .
- Schumacher B , Pothof J, Vijg J, et al. (April 2021). „Die zentrale Rolle von DNA - Schäden im Alterungsprozess“ . Nature . 592 ( 7856): 695–703 . Bibcode : 2021Natur.592..695S . doi : 10.1038/s41586-021-03307-7 . PMC 9844150. PMID 33911272 .
- ^ Whittemore K, Martínez-Nevado E, Blasco MA (November 2019). „Langsamere Akkumulationsraten von DNA-Schäden in Leukozyten korrelieren mit längeren Lebensspannen bei verschiedenen Vogel- und Säugetierarten“ . Aging (Albany NY) . 11 (21): 9829–45 . doi : 10.18632/aging.102430 . PMC 6874430. PMID 31730540 .
- ^ Gensler HL, Bernstein H (September 1981). „DNA-Schäden als Hauptursache des Alterns“. The Quarterly Review of Biology . 56 (3): 279–303 . doi : 10.1086/412317 . PMID 7031747. S2CID 20822805 .
- ^ Fabian D, Flatt T (2011). „Die Evolution des Alterns“ (PDF) . Nature Education .
- ^ Medawar PB (1946). „Alter und natürlicher Tod“. Modern Quarterly . 1 : 30–56 .
- ^ Medawar 1952
- ^ Liu X, Liu Z, Wu Z, et al. (19. Januar 2023). „Resurrection of endogenous retroviruses during aging strengthens senescence“ . Cell . 186 (2): 287–304.e26. doi : 10.1016 / j.cell.2022.12.017 . PMID 36610399. S2CID 232060038 .
- Erläuterung der Studie durch einen Experten: „Altern und Retroviren“ . Science . Archiviert vom Original am 17. Februar 2023. Abgerufen am 17. Februar 2023 .
- ^ Smith J., A., Daniel R. „Stammzellen und Altern: Ein Henne-Ei-Problem?“. Aging and Disease . Juni 2012, Band 3, Nummer 3; 260–268.
- ^ Mahla RS (2016). „Anwendung von Stammzellen in der regenerativen Medizin und Krankheitstherapie“ . International Journal of Cell Biology . 2016 (7): 19. doi : 10.1155/2016/6940283 . PMC 4969512. PMID 27516776 .
- ^ Rossi DJ, Bryder D, Seita J, et al. (2007). „Defizite in der DNA-Reparatur schränken die Funktion hämatopoetischer Stammzellen mit zunehmendem Alter ein“. Nature . 447 ( 7145): 725–9 . Bibcode : 2007Natur.447..725R . doi : 10.1038/nature05862 . PMID 17554309. S2CID 4416445 .
- ^ a b Beerman I, Seita J, Inlay MA, et al. (2014). „Ruhende hämatopoetische Stammzellen akkumulieren während des Alterns DNA-Schäden, die beim Eintritt in den Zellzyklus repariert werden.“ Cell Stem Cell . 15 (1): 37–50 . doi : 10.1016/j.stem.2014.04.016 . PMC 4082747. PMID 24813857 .
- ^ a b Nijnik A, Woodbine L, Marchetti C, et al. (2007). „DNA-Reparatur ist ein limitierender Faktor für hämatopoetische Stammzellen während des Alterns“. Nature . 447 ( 7145): 686–90 . Bibcode : 2007Natur.447..686N . doi : 10.1038/nature05875 . PMID 17554302. S2CID 4332976 .
- ^ „Forschungsergebnisse könnten aufdecken, warum Menschen in ihren 70ern plötzlich gebrechlich werden können . “ The Guardian . 1. Juni 2022. Abgerufen am 18. Juli 2022 .
- ^ Mitchell E, Spencer Chapman M, Williams N, et al. (Juni 2022). „Klonale Dynamik der Hämatopoese über die menschliche Lebensspanne“ . Nature . 606 ( 7913): 343–350 . Bibcode : 2022Natur.606..343M . doi : 10.1038/s41586-022-04786-y . ISSN 1476-4687 . PMC 9177428. PMID 35650442 .
- ^ Kolata G (14. Juli 2022). „Mit dem Verschwinden der Y-Chromosomen im Alter könnten die Herzrisiken steigen“ . The New York Times . Abgerufen am 21. August 2022 .
- ^ Sano S, Horitani K, Ogawa H, et al. (15. Juli 2022). „Hämatopoetischer Verlust des Y-Chromosoms führt zu Herzfibrose und Herzinsuffizienz-bedingter Mortalität“ . Science . 377 ( 6603): 292–297 . Bibcode : 2022Sci...377..292S . doi : 10.1126/science.abn3100 . ISSN 0036-8075 . PMC 9437978. PMID 35857592 .
- ^ Gasmi A, Chirumbolo S, Peana M, et al. (17. September 2020). „Biomarker der Seneszenz im Alter als mögliche Warnsignale für präventive Maßnahmen“. Current Medicinal Chemistry . 28 (8): 1471–88 . doi : 10.2174/0929867327999200917150652 . PMID 32942969. S2CID 221789280 .
- ^ Baker GT , Sprott RL (1988). „Biomarker des Alterns“ . Experimental Gerontology . 23 ( 4–5 ): 223–39 . doi : 10.1016/0531-5565(88)90025-3 . PMID 3058488. S2CID 31039588. Archiviert vom Original am 24. Oktober 2021. Abgerufen am 12. Juli 2019 .
- ^ Van Neste D, Tobin DJ (2004). „Haarzyklus und Haarpigmentierung: Dynamische Wechselwirkungen und altersbedingte Veränderungen“. Micron . 35 (3): 193–200 . doi : 10.1016/j.micron.2003.11.006 . PMID 15036274 .
- ^ Miller RA (April 2001). „Biomarker des Alterns: Vorhersage der Langlebigkeit durch altersabhängige Bestimmung von T-Zell-Subpopulationen in einer genetisch heterogenen Mauspopulation mittleren Alters“ . The Journals of Gerontology. Series A, Biological Sciences and Medical Sciences . 56 (4): B180-6. doi : 10.1093/gerona/56.4.b180 . PMC 7537444. PMID 11283189 .
- ^ Naue J (Oktober 2023). „Die Bestimmung des chronologischen Alters von DNA: Nutzung von Erkenntnissen zur altersabhängigen DNA-Methylierung für forensische DNA-Anwendungen“ . Genes & Genomics . 45 (10): 1239–1261 . doi : 10.1007/s13258-023-01392-8 . PMC 10504122. PMID 37253906 .
- ^ Horvath S, Raj K (2018). „DNA-Methylierungs-basierte Biomarker und die epigenetische Uhrtheorie des Alterns“. Nat Rev Genet . 19 (6): 371–384 . doi : 10.1038/s41576-018-0004-3 . PMID 29643443 .
- ^ Shtumpf M, Jeong S, Bikova M, et al. (2024). „Alterungsuhr basierend auf der Nukleosomenreorganisation aus zellfreier DNA“ . Aging Cell . 23 (5) e14100. doi : 10.1111/acel.14100 . PMC 11113261. PMID 38337183 .
- ^ Putin E, Mamoshina P, Aliper A, et al. (Mai 2016). „Tiefe Biomarker des menschlichen Alterns: Anwendung tiefer neuronaler Netze zur Biomarkerentwicklung“ . Aging . 8 ( 5): 1021–33 . doi : 10.18632/aging.100968 . PMC 4931851. PMID 27191382 .
- ^ Peters MJ, Joehanes R, Pilling LC, et al. (Oktober 2015). „Das transkriptionelle Profil des Alters im menschlichen peripheren Blut“ . Nature Communications . 6 8570. Bibcode : 2015NatCo...6.8570. doi : 10.1038 /ncomms9570 . PMC 4639797. PMID 26490707 .
- Yin C, Imms P, Cheng M, et al. (10. Januar 2023). „Anatomisch interpretierbares Deep Learning des Hirnalters erfasst domänenspezifische kognitive Beeinträchtigungen“ . Proceedings of the National Academy of Sciences . 120 (2) e2214634120. Bibcode : 2023PNAS..12014634Y . doi : 10.1073/pnas.2214634120 . PMC 9926270. PMID 36595679 .
- Pressemitteilung der Universität: „Wie alt ist Ihr Gehirn wirklich? KI-gestützte Analyse spiegelt das Risiko kognitiver Beeinträchtigungen und Alzheimer präzise wider . “ University of Southern California via medicalxpress.com . Archiviert vom Original am 17. Februar 2023. Abgerufen am 17. Februar 2023 .
- News-Artikel zur Studie: „KI kann wahres Alter des Hirns bestimmen“ . Deutschlandfunk Nova (auf Deutsch). Archiviert vom Original am 17. Februar 2023 . Abgerufen am 17. Februar 2023 .
- ^ Sayed N, Huang Y, Nguyen K, et al. (Juli 2021). „Eine auf Deep Learning basierende inflammatorische Alterungsuhr (iAge) erfasst Multimorbidität, Immunseneszenz, Gebrechlichkeit und kardiovaskuläres Altern“ . Nature Aging . 1 (7): 598–615 . doi : 10.1038/s43587-021-00082-y . PMC 8654267. PMID 34888528 .
- Nachrichtenartikel zur Studie: „Tool zur Berechnung des Immunsystemalters könnte Gebrechlichkeit und Krankheiten vorhersagen“ . New Atlas . 13. Juli 2021. Archiviert vom Original am 26. Juli 2021. Abgerufen am 26. Juli 2021 .
- ^ Fitzgerald KN, Hodges R, Hanes D, et al. (2021). „Potenzielle Umkehrung des epigenetischen Alters durch eine Ernährungsumstellung und Lebensstiländerung: eine randomisierte Pilotstudie“ . Aging . 13 ( 7): 9419–32 . doi : 10.18632/aging.202913 . PMC 8064200. PMID 33844651. Archiviert vom Original am 2. Juni 2021. Abgerufen am 28. Juni 2021 .
- ^ Moqri M, Herzog C, Poganik JR, et al. (August 2023). „Biomarker des Alterns zur Identifizierung und Bewertung von Langlebigkeitsinterventionen“ . Cell . 186 ( 18): 3758–75 . doi : 10.1016/j.cell.2023.08.003 . PMC 11088934. PMID 37657418 .
- ^ Moqri M, Herzog C, Poganik JR, et al. (Februar 2024). „Validierung von Biomarkern des Alterns“ . Nature Medicine . 30 (2): 360–372 . doi : 10.1038/s41591-023-02784-9 . ISSN 1546-170X . PMC 11090477. PMID 38355974 .
- ^ Ryley J, Pereira-Smith OM (2006). „Mikrofluidisches Gerät zur Einzelzell - Genexpressionsanalyse in Saccharomyces cerevisiae“. Yeast . 23 ( 14–15 ): 1065–73 . doi : 10.1002/yea.1412 . PMID 17083143. S2CID 31356425 .
- ^ Vaidya A, Mao Z, Tian X, et al. (Juli 2014). „Knock-in-Reportermäuse zeigen, dass die DNA-Reparatur durch nicht-homologe Endverknüpfung mit dem Alter abnimmt“ . PLOS Genet . 10 (7) e1004511. doi : 10.1371/journal.pgen.1004511 . PMC 4102425. PMID 25033455 .
- ^ Li Z, Zhang W, Chen Y, et al. (November 2016). „Beeinträchtigte Reparatur von DNA-Doppelstrangbrüchen trägt zum altersbedingten Anstieg der genomischen Instabilität beim Menschen bei“ . Cell Death Differ . 23 (11): 1765–77 . doi : 10.1038/cdd.2016.65 . PMC 5071568. PMID 27391797 .
- ^ Mounkes LC, Kozlov S, Hernandez L, et al. (Mai 2003). „Ein Progerie-Syndrom bei Mäusen wird durch Defekte in A-Typ-Laminen verursacht“ . Nature . 423 ( 6937): 298–301 . Bibcode : 2003Natur.423..298M . doi : 10.1038/nature01631 . PMID 12748643. S2CID 4360055. Archiviert vom Original am 30. Mai 2022. Abgerufen am 21. Juli 2021 – via Zenodo.
- ^ Stoeger T, Grant RA, McQuattie-Pimentel AC, et al. (Dezember 2022). „Altern ist mit einem systemischen, längenabhängigen Ungleichgewicht des Transkriptoms verbunden“ . Nature Aging . 2 (12): 1191–1206 . doi : 10.1038/s43587-022-00317-6 . PMC 10154227. PMID 37118543 .
- Pressemitteilung der Universität: „Altern wird durch unausgewogene Gene verursacht, so eine KI-Analyse mehrerer Spezies“ . Northwestern University . 9. Dezember 2022. Archiviert vom Original am 2. Februar 2023. Abgerufen am 18. Januar 2023 – via phys.org.
- Nachrichtenartikel zur Studie: Kwon D (6. Januar 2023). „Altern ist mit einer höheren Aktivität kurzer Gene als langer Gene verbunden“ . Scientific American . Archiviert vom Original am 17. Januar 2023. Abgerufen am 18. Januar 2023 .
- ^ a b c d e f Garmany A, Yamada S, Terzic A (23. September 2021). „Langlebigkeitssprung: Die Lücke in der Gesundheitsspanne beachten“ . npj Regenerative Medicine . 6 (1): 57. doi : 10.1038/s41536-021-00169-5 . PMC 8460831. PMID 34556664 .
- Pressemitteilung eines gemeinnützigen Krankenhauses: Buckles S (7. Oktober 2021). „Ein regenerativer Neustart für das Altern » Zentrum für Regenerative Biotherapeutika“ . Mayo Clinic . Archiviert vom Original am 1. März 2023. Abgerufen am 1. März 2023 .
- ^ a b Peterson T (30. Mai 2017). „Die Gesundheitsspanne ist wichtiger als die Lebensspanne, warum wissen das also nicht mehr Menschen?“ Institut für öffentliche Gesundheit . Washington University in St. Louis. Harvey A. Friedman Center for Aging. Archiviert vom Original am 1. März 2023. Abgerufen am 1. März 2023 .
- ^ Garmany A, Yamada S, Terzic A (September 2021). „ Langlebigkeitssprung: Die Lücke in der Gesundheitsspanne beachten“ . npj Regenerative Medicine . 6 (1) 57. doi : 10.1038/s41536-021-00169-5 . PMC 8460831. PMID 34556664 .
- ^ Farrelly C (November 2022). „Altern, Gleichstellung und die menschliche Gesundheitsspanne“ . HEC Forum . 36 (2): 187–205 . doi : 10.1007/s10730-022-09499-3 . PMC 9644010. PMID 36348214 .
- ^ a b Hansen M, Kennedy BK (1. August 2016). „Bedeutet eine längere Lebensspanne auch eine längere Gesundheitsspanne?“ . Trends in Cell Biology . 26 (8): 565– 8. doi : 10.1016/j.tcb.2016.05.002 . PMC 4969078 . PMID 27238421 .
- ^ Bansal A, Zhu LJ, Yen K, et al. (20. Januar 2015). „Entkopplung von Lebensspanne und Gesundheitsspanne bei Langlebigkeitsmutanten von Caenorhabditis elegans“ . Proceedings of the National Academy of Sciences . 112 (3): E277-86. Bibcode : 2015PNAS..112E.277B . doi : 10.1073/pnas.1412192112 . PMC 4311797. PMID 25561524 .
- ^ Turner BS (2009). Können wir ewig leben? Eine soziologische und moralische Untersuchung . Anthem Press. S. 3.
- ^ „Agerasia“ . Oxford English Dictionary (Online-Ausgabe). Oxford University Press.(Abonnement oder Mitgliedschaft in einer teilnehmenden Institution erforderlich.)
- ^ a b Japsen B (15. Juni 2009). „AMA-Bericht stellt wissenschaftliche Grundlagen der Hormonanwendung als Anti-Aging-Behandlung in Frage“ . The Chicago Tribune . Abgerufen am 17. Juli 2009 .
- ^ Holliday R (April 2009). „Die extreme Arroganz der Anti-Aging-Medizin“. Biogerontology . 10 ( 2): 223–228 . doi : 10.1007/s10522-008-9170-6 . PMID 18726707. S2CID 764136 .
- ^ Olshansky SJ, Hayflick L, Carnes BA (August 2002). „Positionspapier zum menschlichen Altern“ . The Journals of Gerontology. Series A, Biological Sciences and Medical Sciences . 57 (8): B292– B297. CiteSeerX 10.1.1.541.3004 . doi : 10.1093/gerona/57.8.B292 . PMID 12145354 .
- ^ Warner H, Anderson J, Austad S, et al. ( November 2005). „Wissenschaftliche Fakten und die SENS - Agenda. Was können wir vernünftigerweise von der Alternsforschung erwarten?“ EMBO Reports . 6 (11): 1006–1008 . doi : 10.1038/sj.embor.7400555 . PMC 1371037. PMID 16264422 .
{{cite journal}}CS1-Wartung: Überschriebene Einstellung ( Link ) - ^ Ellefson L (12. Februar 2025). „Diese ‚Todesuhr‘-App hat mich mein Leben überdenken lassen“ . Lifehacker . Abgerufen am 27. Juni 2025 .
- ^ Downs M (20. Mai 2025). „Die Todesuhr-App nutzt KI, um vorherzusagen, wann Sie sterben werden“ . SUCCESS . Abgerufen am 27. Juni 2025 .
- ^ Petrow S (9. Juni 2025). „Wie viele Jahre bleiben mir noch? Eine App hat mir einige hilfreiche Erkenntnisse geliefert .“ Abgerufen am 27. Juni 2025 .