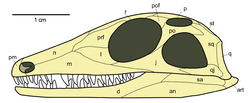
Sauropsida ( griechisch für „Echsengesichter“) ist eine Gruppe der Amnioten , die im Wesentlichen der Klasse Reptilia entspricht . Der Begriff wird jedoch üblicherweise weiter gefasst und schließt auch ausgestorbene Stammgruppenverwandte der heutigen nicht-avianen Reptilien und Vögel ein (die als Theropoden -Dinosaurier innerhalb der Reptilien stehen, da sie enger mit Krokodilen als mit Eidechsen oder Schildkröten verwandt sind). [ 3 ] Die gängigste Definition besagt, dass Sauropsida die Schwestergruppe der Synapsida ist , der anderen Gruppe der Amnioten, zu der Säugetiere als einzige moderne Vertreter gehören. Obwohl frühe Synapsiden historisch als „säugetierähnliche Reptilien“ bezeichnet wurden, sind alle Synapsiden enger mit Säugetieren verwandt als mit irgendeinem modernen Reptil. Sauropsiden hingegen umfassen alle Amnioten, die enger mit modernen Reptilien als mit Säugetieren verwandt sind. Dazu gehören die Aves ( Vögel ), die eine Gruppe theropoder Dinosaurier darstellen, obwohl sie in der Linnéschen Taxonomie ursprünglich als eigene Klasse geführt wurden . [ 4 ] [ 5 ]
Die Basis der Sauropsida wird traditionell in die Hauptgruppen der „Reptilien“ unterteilt: Eureptilia („echte Reptilien“) und Parareptilia („Nebenreptilien“). Die Eureptilia umfassen alle lebenden Reptilien (einschließlich Vögel) sowie verschiedene ausgestorbene Gruppen. Die Parareptilia gelten üblicherweise als vollständig ausgestorbene Gruppe, obwohl einige Hypothesen zum Ursprung der Schildkröten nahelegen, dass diese zu den Parareptilien gehören. Die Kladen Recumbirostra und Varanopidae , die traditionell den Lepospondyli bzw. Synapsiden zugeordnet wurden , könnten ebenfalls basale Sauropsiden sein. Der Begriff „Sauropsida“ stammt von Thomas Henry Huxley aus dem Jahr 1864 [ 6 ] , der Vögel anhand von Fossilienfunden mit Reptilien zusammenfasste. Die Einteilung in „Eureptilia“ und „Parareptilia“ wurde in mehreren neueren Studien infrage gestellt, da diese keine monophyletischen Gruppen darstellen. [ 4 ] [ 7 ]
Im Perm waren Sauropsiden überwiegend klein, obwohl einige Pareiasaurier über 1000 kg wogen [ 8 ] [ 9 ] und damit fast die Größe der größten Dinocephalier erreichten [ 10 ] . Im späten Perm übernahmen Archosauromorpha und Therocephalier nach dem lokalen Aussterben der Gorgonopsier in Osteuropa die ökologische Nische der großen Tiere [ 11 ] [ 12 ] [ 13 ] . Nach dem Massenaussterben an der Perm-Trias-Grenze lösten die Sauropsiden die Synapsiden als dominante Gruppe der Tetrapoden ab [ 14 ] [ 15 ] [ 16 ] . Im Mesozoikum diversifizierten sie sich in marinen, aerogenen und terrestrischen Ökosystemen. [ 17 ] [ 15 ] [ 18 ] Die Sauropsiden erlitten nach dem Massenaussterben an der Kreide-Paläogen-Grenze , das zum Aussterben aller nicht-avianen Dinosaurier , [ 19 ] Pterosaurier [ 18 ] und mariner Reptilien wie Mosasaurier und Plesiosaurier führte, einen Rückgang der Artenvielfalt . [ 20 ] [ 21 ] [ 22 ] [ 23 ]
Nach dem Massenaussterben an der Kreide-Paläogen-Grenze diversifizierten sich die Säugetiere, die einzige noch lebende Gruppe der Synapsiden, und besetzten die durch das Aussterben der Dinosaurier entstandenen ökologischen Nischen. [ 24 ] [ 25 ] [ 26 ] Trotzdem diversifizierten sich auch die verbliebenen Sauropsiden [ 27 ] [ 28 ] [ 29 ] [ 30 ] , wobei die Sauropsiden etwa 20.000 Arten umfassen [ 31 ] [ 32 ] [ 33 ] [ 34 ] – mehr als doppelt so viele wie die Säugetiere mit etwa 6.800 Arten. [ 35 ]
Geschichte der Klassifizierung
Huxley und die Fossilienlücken
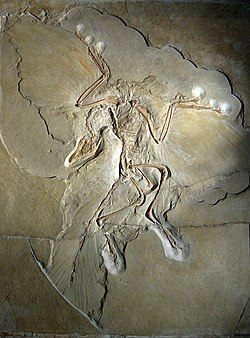
Der Begriff Sauropsida („Echsengesichter“) hat eine lange Geschichte und geht auf Thomas Henry Huxley zurück , der ihn 1863 erstmals verwendete. Ursprünglich nannte er die Tiere „Sauroidea“ [ 36 ] und vertrat die Ansicht, dass Vögel von Dinosauriern abstammten . Diese Annahme stützte er hauptsächlich auf die Fossilien von Hesperornis und Archaeopteryx , die zu dieser Zeit allmählich bekannt wurden. [ 37 ] In seinen Hunterian Lectures am Royal College of Surgeons im Jahr 1863 gruppierte Huxley die Wirbeltierklassen informell in Säugetiere , Sauroidea und Ichthyoidea (zu denen auch die Anamnioten zählten ). Diese Einteilung basierte auf den Lücken in den physiologischen Merkmalen und dem Fehlen von Übergangsfossilien zwischen den drei Gruppen. Anfang des folgenden Jahres schlug er die Namen Sauropsida und Ichthyopsida für die beiden letztgenannten Gruppen vor. [ 6 ] Huxley zählte jedoch auch Gruppen der Säugetierlinie ( Synapsiden ) wie Dicynodon zu den Sauropsiden. Gemäß der ursprünglichen Definition umfassten die Sauropsiden somit nicht nur die heute üblicherweise mit ihnen assoziierten Gruppen, sondern auch mehrere Gruppen, die heute als Teil der Säugetierlinie gelten. [ 38 ] In einem Vortrag von 1867 erklärte Huxley: „Die Mitglieder der Klasse Aves ähneln den Reptilien in allen wesentlichen und grundlegenden Punkten ihrer Struktur so sehr, dass die Formulierung ‚Vögel und stark veränderte Reptilien‘ die enge Ähnlichkeit kaum übertrieben darstellt.“ [ 36 ]
Neudefinition der Sauropsiden (Goodrich, 1916)
Zu Beginn des 20. Jahrhunderts waren die Fossilien permischer Synapsiden aus Südafrika gut bekannt und ermöglichten es Paläontologen, die Evolution der Synapsiden viel detaillierter nachzuvollziehen. Der Begriff Sauropsida wurde 1916 von E. S. Goodrich , ähnlich wie von Huxley, eingeführt, um Eidechsen, Vögel und ihre Verwandten zu umfassen. Er unterschied sie von Säugetieren und ihren ausgestorbenen Verwandten, die er der Schwestergruppe Theropsida (heute meist durch den Namen Synapsida ersetzt ) zuordnete. Goodrichs Klassifizierung weicht somit etwas von Huxleys ab, in der die nicht-säugetierartigen Synapsiden (oder zumindest die Dicynodontier ) zu den Sauropsiden zählten. Goodrich begründete diese Einteilung mit der Beschaffenheit der Herzen und Blutgefäße in den jeweiligen Gruppen sowie mit anderen Merkmalen wie der Struktur des Vorderhirns. Laut Goodrich entwickelten sich beide Linien aus einer früheren Stammgruppe, den Protosauria („ersten Echsen“), zu denen einige paläozoische Amphibien sowie frühe Reptilien gehörten , die vor der Aufspaltung der Sauropsiden in Synapsiden lebten (und somit keine echten Sauropsiden waren). Sein Konzept unterschied sich von modernen Klassifikationen dadurch, dass er einen modifizierten fünften Mittelfußknochen als Apomorphie der Gruppe betrachtete, was ihn dazu veranlasste , Sauropterygia , Mesosauria und möglicherweise Ichthyosauria und Araeoscelida den Theropsida zuzuordnen. [ 38 ]
Detaillierte Darstellung des Stammbaums der Reptilien
1956 stellte D. M. S. Watson fest, dass sich Sauropsiden und Synapsiden sehr früh in der Evolutionsgeschichte der Reptilien abspalteten, und teilte daher Goodrichs Protosauria in diese beiden Gruppen auf. Er interpretierte auch die Sauropsida und Theropsida neu, indem er Vögel bzw. Säugetiere ausschloss und sie somit – im Gegensatz zu Goodrichs Definition – paraphyletisch machte. Seine Sauropsida umfassten daher Procolophonia , Eosuchia , Protorosauria , Millerosauria , Chelonia (Schildkröten), Squamata (Eidechsen und Schlangen), Rhynchocephalia , Rhynchosauria , Choristodera , Thalattosauria , Crocodilia , „ Thecodonten “ ( paraphyletische basale Archosauria ), nicht- aviale Dinosaurier , Pterosaurier und Sauropyterygier . Sein Konzept unterschied sich jedoch vom modernen dadurch, dass er Reptilien ohne Ohrkerbe , wie etwa Araeosceliden und Captorhiniden , zu den Theropsiden zählte . [ 39 ]
Diese Klassifizierung ergänzte die Einteilung der Reptilien in vier Unterklassen (nach Romers klassischer Wirbeltierpaläontologie [ 40 ] ), die sich nach der Lage der Schläfenfenster (Öffnungen an den Seiten des Schädels hinter den Augen) richtete, war aber nie so populär. Seit der Einführung der phylogenetischen Nomenklatur hat der Begriff Reptilia bei vielen Taxonomen an Bedeutung verloren; sie verwenden stattdessen Sauropsida, um eine monophyletische Gruppe zu bezeichnen, die die traditionellen Reptilien und die Vögel umfasst.
Kladistische Definitionen

Die Klasse Reptilia gilt seit jeher als evolutionäre Stufe und nicht als Klade . Die Neuklassifizierung der Reptilien zählt zu den Hauptzielen der phylogenetischen Nomenklatur . [ 41 ] Der Begriff Sauropsida bezeichnet seit Mitte des 20. Jahrhunderts eine auf einem Ast basierende Klade, die alle Amniotenarten umfasst, die nicht auf der Synapsiden-Seite der Trennlinie zwischen Reptilien und Säugetieren stehen. Diese Gruppe schließt alle heute lebenden Reptilien sowie Vögel ein und ist somit mit Goodrichs Klassifikation vergleichbar. Der Hauptunterschied besteht darin, dass die genauere Auflösung des frühen Amnioten-Stammbaums den Großteil von Goodrichs „Protosauria“ aufgespalten hat, obwohl auch Definitionen der Sauropsida vorgeschlagen wurden, die im Wesentlichen mit Huxleys Definitionen übereinstimmen (d. h. die säugetierähnlichen Reptilien einschließen). [ 42 ] [ 43 ] In einigen späteren kladistischen Arbeiten wurde der Begriff Sauropsida restriktiver verwendet und bezeichnet die Kronengruppe , d. h. alle Nachkommen des letzten gemeinsamen Vorfahren der rezenten Reptilien und Vögel. Es wurden zahlreiche Definitionen von Stamm, Knoten und Kronengruppe veröffentlicht, die auf einer Vielzahl fossiler und rezenter Organismen basieren. Daher besteht derzeit kein Konsens über die tatsächliche Definition (und damit den Inhalt) der Sauropsida als phylogenetische Einheit. [ 44 ]
Einige Taxonomen, wie beispielsweise Benton (2004), haben den Begriff übernommen, um ihn in traditionelle, rangbasierte Klassifikationen einzufügen, indem sie Sauropsida und Synapsida als Taxa auf Klassenebene anstelle der traditionellen Klasse Reptilia einführten. Modesto und Anderson (2004) hingegen schlugen unter Verwendung des PhyloCode- Standards vor, den Namen Sauropsida durch ihre Neudefinition von Reptilia zu ersetzen, da letztere weitaus bekannter sei und daher Priorität haben sollte. [ 44 ]
Zu den kladistischen Definitionen der Sauropsida gehören:
- Sauropsida als die Gesamtgruppe der Reptilien: „Reptilien plus alle anderen Amnioten, die enger mit ihnen verwandt sind als mit Säugetieren“ (Gauthier, 1994). [ 3 ] Dies ist eine zweigbasierte Definition der Gesamtgruppe. Gauthier (1994) betrachtete Schildkröten als Nachkommen von Parareptilien und definierte Reptilia somit als eine engere Kronengruppe, die Diapsiden und Parareptilien umfasst (mit Ausnahme der Mesosaurier, die er als basalsten Zweig der Sauropsiden ansah).
- Sauropsida als Gesamtgruppe, synonym mit Reptilia sensu lato: „Die umfassendste Klade, die Lacerta agilis und Crocodylus niloticus , aber nicht Homo sapiens enthält “ (Modesto & Anderson, 2004). [ 44 ] Diese Definition der Gesamtgruppe lässt die Frage nach der Abstammung der Schildkröten ungeklärt.
- Sauropsida als breit angelegte, knotenbasierte Gruppe: „Der letzte gemeinsame Vorfahre der Mesosaurier, Schildkröten und Diapsiden sowie all seiner Nachkommen“ (Laurin & Reisz, 1995). [ 45 ] Obwohl anders formuliert, ähnelte diese Gruppierung in Umfang und Intention der Definition von Gauthier (1994).
Unterteilungen
Eureptilia („Echte Reptilien“) ist eine der beiden traditionellen Hauptuntergruppen des Taxons Sauropsida, die andere ist Parareptilia . Zu Eureptilia gehören Diapsida (das Taxon, das alle modernen Reptilien und Vögel umfasst ) sowie eine Reihe primitiver permokarbonischer Formen , die zuvor unter Anapsida in der alten (nicht mehr anerkannten) Ordnung „ Cotylosauria “ klassifiziert wurden , darunter Captorhinidae sowie Hylonomus und die „Protorothyriden“. [ 4 ]
Eureptilien zeichnen sich durch einen Schädel mit stark reduzierten Supraoccipital- , Tabular- und Supratemporalknochen aus , die keinen Kontakt mehr zum Postorbitale aufweisen . Neben den Diapsida umfasst die Gruppe insbesondere die Captorhinidae , eine vielfältige und langlebige (spätes Karbon bis spätes Perm) Gruppe ursprünglich kleiner Fleischfresser, die sich später zu großen Pflanzenfressern entwickelten. [ 46 ] Andere primitive Eureptilien wie die „ Protorothyriden “ waren allesamt kleine, oberflächlich eidechsenartige Formen, die wahrscheinlich Insektenfresser waren . [ 47 ] Eine primitive Eureptile, der spätkarbonische „Protorothyride“ Anthracodromeus , ist der älteste bekannte kletternde Tetrapode. [ 48 ] Die Diapsiden waren die einzige Eureptilien-Gruppe, die über das Ende des Perms hinaus existierte.
Die traditionelle Klassifizierung der Sauropsiden und Eureptilien wurde in neueren Studien in Frage gestellt. Mehrere Studien aus den frühen 2020er Jahren kamen zu dem Ergebnis, dass „ Parareptilia “ paraphyletisch ist , die vermeintlichen „eureptilianischen“ Captorhiniden und Protorothyris nicht einmal Sauropsiden, sondern Stamm-Amnioten sind , und dass Araeoscelidier nicht eng mit echten Diapsiden verwandt sind, falls sie überhaupt Sauropsiden sind, [ 4 ] [ 49 ] [ 7 ] und dass das berühmte „früheste Reptil“ Hylonomus möglicherweise auch kein echter Sauropside ist. [ 7 ] Im Jahr 2019 wurde die neue Klade Neoreptilia als die Klade definiert, die Parareptilia und Neodiapsida vereint. Grundlage hierfür war die phylogenetische Hypothese, dass Parareptilien monophyletisch und relativ abgeleitet seien und näher mit den Neodiapsiden verwandt wären als mit Araeoscelidien, Hylonomus , „Protorothyriden“ und Varanopiden (die üblicherweise als Synapsiden betrachtet werden ). [ 50 ] Diese Klade wurde später von anderen Forschern in einem anderen Sinne wiederverwendet, um Teile der ehemaligen Parareptilia einzuschließen, die als eng mit den Neodiapsida verwandt galten. In einer Arbeit wurden nur Procolophonia und Neodiapsida einbezogen, [ 4 ] während in einer anderen Arbeit zusätzlich zu den genannten Taxa auch Mesosauria und Acleistorhinidae zu den Neoreptilia gezählt wurden. [ 7 ]
Eine 2025 veröffentlichte Studie benannte die neue Klade Parapleurota innerhalb der Sauropsida. Sie umfasst die ehemals zu den Parareptilien gehörenden Familien Millerettidae und Neodiapsida, die sich in der Studie als Schwestergruppen erwiesen. Die Gruppe ist formal definiert als die Klade, die den jüngsten gemeinsamen Vorfahren von Milleretta rubidgei und Youngina capensis enthält , jedoch nicht Petrolacosaurus kansensis , Orovenator mayorum , Procolophon trigoniceps oder Mesosaurus tenuidens . [ 7 ] Erweiterte phylogenetische Analysen bestätigten diese Klade anschließend. [ 51 ] [ 52 ] [ 53 ] Mitglieder der Parapleurota zeichnen sich durch das Vorhandensein eines Trommelfells im Ohr aus. [ 7 ] Dies ermöglicht die effiziente Übertragung von Luftschall durch das Ohr und ist typischerweise mit einem überdurchschnittlich guten Hörvermögen verbunden. [ 54 ] [ 55 ] Entwicklungsbiologie und Fossilienfunde deuten darauf hin, dass das Vorhandensein eines Trommelfells ein ursprüngliches Merkmal der heutigen Reptilien ist. [ 56 ] Bei den Parapleurota zeigt sich eine schrittweise Evolution der Trommelfellgrube, einer Öffnung im Hinterkopf, die das Trommelfell umschließt. Bei basalen Vertretern dieser Klade wird das Trommelfell vom Schuppenbein und Quadratjugal gestützt , während es bei den Neodiapsida größtenteils oder vollständig vom Quadratbein gestützt wird . [ 7 ] Trommelfelle entwickelten sich auch unabhängig voneinander bei den Procolophonia und den Stamm-Säugetieren . [ 7 ] [ 56 ]
Evolutionsgeschichte
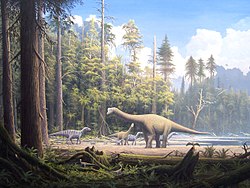
Sauropsiden entwickelten sich vor etwa 315 Millionen Jahren im Karbon des Paläozoikums aus Stammgruppen der Amnioten . [ 7 ] Im Mesozoikum ( von etwa 250 Millionen bis etwa 66 Millionen Jahren vor heute) waren Sauropsiden die größten Tiere an Land, im Wasser und in der Luft. Das Mesozoikum wird daher auch als Zeitalter der Reptilien bezeichnet. Beim Massenaussterben an der Kreide-Paläogen-Grenze starben die großwüchsigen Sauropsiden aus . Mit Ausnahme einiger weniger Vogelarten starb die gesamte Dinosaurierlinie aus. Im darauffolgenden Känozoikum diversifizierten sich die verbliebenen Vögel so stark, dass heute fast jede dritte Landwirbeltierart ein Vogel ist.
Phylogenie
Das hier dargestellte Kladogramm veranschaulicht den Stammbaum der Sauropsiden und folgt einer vereinfachten Version der von M. S. Lee im Jahr 2013 ermittelten Verwandtschaftsverhältnisse. [ 5 ] Alle genetischen Studien stützen die Hypothese, dass Schildkröten (früher zusammen mit den urtümlichen Anapsiden kategorisiert ) Diapsiden sind, obwohl ihnen Schädelöffnungen hinter den Augenhöhlen fehlen. Einige Studien ordnen Schildkröten sogar den Archosauriern zu , [ 5 ] [ 57 ] [ 58 ] [ 59 ] [ 60 ] [ 61 ] während andere sie stattdessen als Lepidosauromorpha einstufen. [ 62 ] Das untenstehende Kladogramm basiert auf einer Kombination aus genetischen (molekularen) und fossilen (morphologischen) Daten. [ 5 ]
| Amniota |
| ||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||


Laurin & Piñeiro (2017) und Modesto (2019) schlugen eine alternative Phylogenie der basalen Sauropsiden vor. In diesem Stammbaum umfassen die Parareptilien Schildkröten und sind eng mit den nicht-araeoscelidianischen Diapsiden verwandt. Die Familie Varanopidae , die ansonsten zu den Synapsida gezählt wird , wird von Modesto als Sauropsiden-Gruppe betrachtet. [ 63 ] [ 64 ]
| |||||||


In einer Reihe neuerer Studien wurde die „ Mikrosaurier “-Klade Recumbirostra , die historisch zu den lepospondylen Reptiliomorpha gezählt wurde, als frühe Sauropsiden wiedergefunden [ 65 ] [ 66 ], obwohl diese Behauptung von einer Reihe von Autoren bestritten wird, die argumentieren, dass Mikrosaurier immer noch zu den reptillomorphen Stamm-Amnioten gehören [ 67 ] .
Simoes et al. (2022) fanden heraus, dass Captorhinidae , Protorothyris und Araeoscelidia eine Klade bilden, die die Schwestergruppe der Kronengruppe der Amniota (mit den echten Sauropsiden und Synapsiden) darstellt. Dieselbe Studie betrachtete die Parareptilien auch als polyphyletisch, wobei einige Gruppen näher mit der Kronengruppe der Reptilien verwandt sind als andere. [ 4 ]
Kladogramm nach Simoes et al (2022): [ 4 ]
| Reptiliomorpha |
| ||||||||||||||||||||||||||||||||||||||||||||||||



Dieses Kladogramm folgt Jenkins et al. (2025). Traditionelle „Parareptilien“ sind orange hervorgehoben: [ 7 ]
| Sauropsida | |||||||||||||


Strukturunterschiede zu Synapsiden
Der letzte gemeinsame Vorfahre der Synapsiden und Sauropsida lebte vor etwa 320 Millionen Jahren im Karbon und war als Reptiliomorpha bekannt .
Thermische und sekretorische
Die frühen Synapsiden erbten von ihren amphibischen Vorfahren zahlreiche Hautdrüsen. Diese entwickelten sich bei den Synapsiden zu Schweißdrüsen, wodurch sie zwar ihre Körpertemperatur konstant halten konnten, aber gleichzeitig die Fähigkeit verloren, Wasser vor Verdunstung zu schützen. Zudem schieden Synapsiden stickstoffhaltige Abfallprodukte über Harnstoff aus , der giftig ist und in Wasser gelöst werden muss, um ausgeschieden zu werden. Unglücklicherweise waren das darauffolgende Perm und die Trias Trockenperioden. Daher überlebte nur ein geringer Prozentsatz der frühen Synapsiden in dem Gebiet, das sich von Südafrika bis zur Antarktis erstreckt. Im Gegensatz zu den Synapsiden besitzen Sauropsiden keine solchen Hautdrüsen; sie scheiden stickstoffhaltige Abfallprodukte über Harnsäure aus , die kein Wasser benötigt und mit dem Kot ausgeschieden werden kann. Dadurch konnten sich Sauropsiden in allen Lebensräumen ausbreiten und ihre Blütezeit erleben. Auch heute noch sind die meisten Wirbeltiere, die in ariden Umgebungen leben, Sauropsiden, zum Beispiel Schlangen und Wüstenleguane.
Gehirnstruktur
Anders als die Synapsiden, deren Cortex aus sechs verschiedenen Neuronenschichten besteht ( Neocortex) , weist das Großhirn der Sauropsida eine völlig andere Struktur auf. Nach klassischer Auffassung ist der Neocortex der Synapsiden hinsichtlich der entsprechenden Großhirnstruktur lediglich mit dem Archicortex des Vogelgehirns homolog. Neuere Erkenntnisse, die seit den 1960er Jahren aufkamen, zeigen jedoch, dass das Neostriatum und Hyperstriatum von Vögeln Signale des Sehens, Hörens und der Körperempfindungen empfangen können und somit ähnlich wie der Neocortex funktionieren. Im Vergleich zum Säugetiergehirn legt die von Karten (1969) aufgestellte Kern-Schicht-Hypothese nahe, dass sich die Zellen, die im Neocortex der Synapsiden Schichten bilden, nach Zelltypen sortiert einzeln zusammenfinden und mehrere Zellkerne ausbilden. Bei Synapsiden wird jede neu entstandene Funktion im Laufe der Evolution einem separaten Bereich der Hirnrinde zugeordnet. Daher müssen Synapsiden für jede Funktion einen eigenen Bereich entwickeln, und eine Schädigung dieses spezifischen Bereichs kann zu Behinderungen führen. [ 68 ] Bei Sauropsida hingegen sind die Funktionen auf alle Hirnkerne verteilt. In diesem Fall ist die Hirnfunktion bei Sauropsida sehr flexibel. Selbst mit einem kleinen Gehirn können viele Sauropsida im Vergleich zu Säugetieren, beispielsweise Vögeln der Familie Corvidae, eine relativ hohe Intelligenz aufweisen. Es ist daher möglich, dass einige nicht-aviäre Dinosaurier, wie der Tyrannosaurus , der im Verhältnis zu seiner enormen Körpergröße ein winziges Gehirn besaß, intelligenter waren als bisher angenommen. [ 69 ]
Referenzen
- ^ Marjanović, D. (2021). „Die Herstellung der Kalibrierungswurst am Beispiel der Rekalibrierung des Transkriptom-Zeitbaums von Kieferwirbeltieren“ . Frontiers in Genetics . 12 521693. doi : 10.3389/fgene.2021.521693 . PMC 8149952. PMID 34054911 .
- ^ Lang, JA; Niedźwiedzki, G.; Garvey, J.; Clement, AM; Camens, AB; Eury, CA; Eason, J.; Ahlberg, PE (2025). „Die frühesten Amniotenspuren kalibrieren die Zeitachse der Tetrapodenentwicklung neu“ . Natur . 641 (8065): 1193–1200 . Bibcode : 2025Natur.641.1193L . doi : 10.1038/s41586-025-08884-5 . PMC 12119326 . PMID 40369062 .
- ^ a b Gauthier JA (1994): Die Diversifizierung der Amnioten . In: DR Prothero und RM Schoch (Hrsg.) Hauptmerkmale der Wirbeltierevolution: 129–159. Knoxville, Tennessee: The Paleontological Society.
- Simões , TR; Kammerer, CF; Caldwell, MW; Pierce, SE (2022). „ Aufeinanderfolgende Klimakrisen in der fernen Vergangenheit trieben die frühe Evolution und Radiation der Reptilien voran“ . Science Advances . 8 ( 33 ) eabq1898. Bibcode : 2022SciA....8.1898S . doi : 10.1126 / sciadv.abq1898 . PMC 9390993. PMID 35984885 .
- ^ a b c d Lee, MSY (2013). „Ursprung der Schildkröten: Erkenntnisse aus phylogenetischer Rückanpassung und molekularen Gerüsten“ . Journal of Evolutionary Biology . 26 (12): 2729–2738 . doi : 10.1111/jeb.12268 . PMID 24256520. S2CID 2106400 .
- ^ a b Huxley, Thomas Henry (1864). „Die Struktur und Klassifizierung der Säugetiere“ . Medical Times and Gazette . Huxley-Archiv . Abgerufen am 16.03.2023 .
- Jenkins, Xavier A .; Benson, Roger B. J .; Ford, David P.; Browning, Claire; Fernandez, Vincent; Dollman, Kathleen; Gomes, Timothy; Griffiths, Elizabeth; Choiniere, Jonah N.; Peecook, Brandon R. (28.08.2025). „ Die evolutionäre Entstehung der Kronengruppe der Reptilienanatomie wird durch spätpaläozoische Verwandte der Neodiapsida aufgeklärt . “ Peer Community Journal . 5 e89. doi : 10.24072/pcjournal.620 . ISSN 2804-3871 .
- ^ Romano, Marco; Manucci, Fabio; Rubidge, Bruce; Van den Brandt, Marc J. (2021). „Volumetrische Körpermassenschätzung und In-vivo-Rekonstruktion des russischen Pareiasauriers Scutosaurus karpinskii “ . Frontiers in Ecology and Evolution . 9. doi : 10.3389/fevo.2021.692035 . hdl : 11573/1634310 . ISSN 2296-701X .
- ^ Van den Brandt, Marc Johan; Day, Michael Oliver; Manucci, Fabio; Viglietti, Pia Alexa; Angielczyk, Kenneth David; Romano, Marco (27.02.2023). „Erste volumetrische Körpermassenschätzung und eine neue In-vivo-3D-Rekonstruktion des ältesten Karoo-Pareiasauriers Bradysaurus baini sowie die Evolution der Körpergröße bei Pareiasauria“ . Historical Biology . 36 (3): 587–601 . doi : 10.1080/08912963.2023.2175211 . ISSN 0891-2963 . S2CID 257369904. Archiviert vom Original am 04.08.2023 . Abgerufen am 04.04.2023 .
- ^ Benoit, Julien; Midzuk, Adam J. (August 2024). „Schätzung des endokranialen Volumens und der Körpermasse von Anteosaurus, Jonkeria und Moschops (Dinocephalia, Therapsida) mittels 3D-Modellierung“ . Palaeontologia Electronica . doi : 10.26879/1377 . Abgerufen am 19. September 2025 – via Palaeontologia Electronica.
- ^ Ivakhnenko, Mikhail F. (2008). „Der erste Whaitsiide (Therocephalia, Theromorpha)“. Paleontological Journal . 42 (4): 409–413 . doi : 10.1134/S0031030108040102 . S2CID 140547244 .
- ^ Benoit, Julien; Kammerer, Christian F.; Dollman, Kathleen; Groenewald, David P.; Smith, Roger MH (2024). „Überlebten Gorgonopsier das Massenaussterben am Ende des Perms? Eine Neubewertung dreier Gorgonopsier-Exemplare (Therapsida, Theriodontia) aus der triassischen Lystrosaurus-declivis- Vergesellschaftungszone im Karoo-Becken, Südafrika“ . Palaeogeography, Palaeoclimatology, Palaeoecology . 638 112044. Bibcode : 2024PPP...63812044B . doi : 10.1016/j.palaeo.2024.112044 . S2CID 267080711 .
- ^ Sennikov, Andrey (2006). „Die Vyazniki-Faunengemeinschaft des späten Perm“. Paleontological Journal . 40 (4): 475–481 . doi : 10.1134/S0031030106100078 . S2CID 129507095 .
- Kammerer , Christian F.; Viglietti, Pia A.; Butler, Elize; Botha, Jennifer (2022). „Schneller Artenwechsel bei Spitzenprädatoren in afrikanischen Landfaunen um das Massenaussterben an der Perm-Trias-Grenze“ . Current Biology . 33 ( 11): 2283–2290 . Bibcode : 2023JVPal..43E3622B . doi : 10.1016/j.cub.2023.04.007 . PMID 37220743. S2CID 258835757 .
- ^ a b „Leguanartiger Dinosaurier-Verwandter in der Antarktis entdeckt - ScienceDaily“ .
- ^ Hoffmann, Devin K.; Hancox, John P.; Nesbitt, Sterling J. (1. Mai 2023). „Eine vielfältige Diapsiden-Zahnfauna aus der frühen Trias (Fundort Driefontein, Südafrika) dokumentiert die Erholung der Diapsiden nach dem Massenaussterben am Ende des Perms“ . PLOS ONE . 18 (5) e0285111. Bibcode : 2023PLoSO..1885111H . doi : 10.1371/journal.pone.0285111 . PMC 10150976. PMID 37126508 .
- ^ P. Martin Sander; Eva Maria Griebeler; Nicole Klein; Jorge Velez Juarbe; Tanja Wintrich; Liam J. Revell; Lars Schmitz (2021). „ Frühe Riesen zeigen schnellere Evolution großer Körpergröße bei Ichthyosauriern als bei Walen“ . Science . 374 (6575) eabf5787. doi : 10.1126/science.abf5787 . PMID 34941418. S2CID 245444783 .
- ^ a b Smith, Roy E.; Chinsamy, Anusuya; Unwin, David M.; Ibrahim, Nizar; Zouhri, Samir; Martill, David M. (16. Oktober 2021). „Kleine, unreife Flugsaurier aus der Kreidezeit Afrikas: Implikationen für taphonomische Verzerrungen und die Struktur von Paläogemeinschaften bei fliegenden Reptilien“ . Cretaceous Research . 130 105061. Bibcode : 2022CrRes.13005061S . doi : 10.1016/j.cretres.2021.105061 . S2CID 239257717 .
- ^ Robertson, DS; McKenna, MC; Toon, OB; et al. (2004). „Überleben in den ersten Stunden des Känozoikums“ ( PDF) . Geological Society of America Bulletin . 116 ( 5–6 ): 760–768 . Bibcode : 2004GSAB..116..760R . doi : 10.1130/B25402.1 . S2CID 44010682. Archiviert (PDF) vom Original am 7. Mai 2019.
- ^ D'Hondt, Steven (17. August 2005). „Folgen des Massenaussterbens an der Kreide-Paläogen-Grenze für marine Ökosysteme“ . Annual Review of Ecology, Evolution, and Systematics . 36 : 295–317 . doi : 10.1146/annurev.ecolsys.35.021103.105715 . S2CID 86073650 .
- ^ Chatterjee, S.; Small, BJ (1989). „Neue Plesiosaurier aus der Oberkreide der Antarktis“. Geological Society, London, Special Publications . 47 (1): 197–215 . Bibcode : 1989GSLSP..47..197C . doi : 10.1144/GSL.SP.1989.047.01.15 . S2CID 140639013 .
- ^ O'Keefe, FR (2001). „Eine kladistische Analyse und taxonomische Revision der Plesiosauria (Reptilia: Sauropterygia)“. Acta Zoologica Fennica . 213 : 1–63 .
- ^ O'Gorman, José P. (Dezember 2022). „Polycotylidae (Sauropterygia, Plesiosauria) aus der La Colonia Formation, Patagonien, Argentinien: Phylogenetische Verwandtschaft von Sulcusuchus erraini und der Polycotyliden-Diversität der späten Kreidezeit im pazifischen Raum“. Cretaceous Research . 140 105339. Bibcode : 2022CrRes.14005339O . doi : 10.1016/j.cretres.2022.105339 . S2CID 251749728 .
- ^ Bininda-Emonds, OR; Cardillo M; Jones, KE; MacPhee, RD; Beck, RM; Grenyer, R; Price, SA; Vos, RA; Gittleman, JL; Purvis, A. (2007). „Der verzögerte Aufstieg der heutigen Säugetiere“. Nature . 446 ( 7135): 507–512 . Bibcode : 2007Natur.446..507B . doi : 10.1038/nature05634 . PMID 17392779. S2CID 4314965 .
- ^ Springer, Mark S.; Foley, Nicole M.; Brady, Peggy L.; Gatesy, John; Murphy, William J. (29. November 2019). „Evolutionäre Modelle für die Diversifizierung von Plazentatieren über die Kpg-Grenze hinweg“ . Frontiers in Genetics . 10, 1241. doi : 10.3389/fgene.2019.01241 . ISSN 1664-8021 . PMC 6896846. PMID 31850081 .
- ^ Shupinski, Alex B.; Wagner, Peter J.; Smith, Felisa A.; Lyons, S. Kathleen (3. Juli 2024). „Einzigartige funktionelle Diversität während der frühen känozoischen Radiation der Säugetiere Nordamerikas“ . Proceedings of the Royal Society B: Biological Sciences . 291 (2026) 20240778. doi : 10.1098/rspb.2024.0778 . ISSN 1471-2954 . PMC 11286128. PMID 38955231 .
- Klein , Catherine G.; Pisani, Davide; Field, Daniel J.; Lakin, Rebecca; Wills, Matthew A.; Longrich, Nicholas R. (14. September 2021). „Evolution und Ausbreitung von Schlangen während des Massenaussterbens an der Kreide-Paläogen-Grenze“ . Nature Communications . 12 (1): 5335. Bibcode : 2021NatCo..12.5335K . doi : 10.1038/s41467-021-25136- y . PMC 8440539. PMID 34521829 .
- ^ Longrich, NR; Bhullar, B.-AS; Gauthier, JA (Dezember 2012). „Massenaussterben von Eidechsen und Schlangen an der Kreide-Paläogen-Grenze“ . Proceedings of the National Academy of Sciences of the United States of America . 109 (52): 21396–401 . Bibcode : 2012PNAS..10921396L . doi : 10.1073/pnas.1211526110 . PMC 3535637. PMID 23236177 .
- ^ Feduccia, Alan (1995). „Explosive Evolution bei Vögeln und Säugetieren des Tertiärs“. Science . 267 ( 5198): 637–638 . Bibcode : 1995Sci...267..637F . doi : 10.1126/science.267.5198.637 . PMID 17745839. S2CID 42829066 .
- ^ Ericson, PG; Anderson, CL; Britton, T; et al. (Dezember 2006). „Diversifizierung der Neoaves: Integration von molekularen Sequenzdaten und Fossilien“ . Biology Letters . 2 (4): 543–7 . doi : 10.1098/rsbl.2006.0523 . PMC 1834003. PMID 17148284 .
- ^ „Anzahl bedrohter Arten nach Hauptgruppen von Organismen (1996–2012)“ (PDF) . Rote Liste der IUCN (Bericht). IUCN . 2010. Archiviert vom Original (PDF) am 4. Februar 2013. Abgerufen am 30. Januar 2013 .
- ^ „Reptile Database News“ . reptile-database.org . Abgerufen am 25.05.2022 .
- ^ Gill, Frank ; Donsker, David; Rasmussen, Pamela C. (Hrsg.). „IOC World Bird List: Welcome“ . IOC World Bird List . 14.2 . Abgerufen am 21. November 2024 .
- ^ „Oktober 2022 | Clements Checkliste“ . www.birds.cornell.edu . Abgerufen am 6. Januar 2023 .
- ^ Laurin, Michel; Reisz, Robert R. (2011). „Synapsida: Säugetiere und ihre ausgestorbenen Verwandten“ (Version 14 ed.). The Tree of Life Web Project .
- ^ a b Switek, Brian (Januar 2010). „Thomas Henry Huxley und der Übergang von Reptilien zu Vögeln“ . Geological Society, London, Special Publications . 343 (1): 251–263 . Bibcode : 2010GSLSP.343..251S . doi : 10.1144/SP343.15 . ISSN 0305-8719 .
- ^ Huxley, Thomas Henry (1877). „Vorlesungen über die Evolution“ . Gesammelte Essays IV . Abgerufen am 16.03.2023 .
- ^ a b Goodrich, ES (1916). „On the classification of the Reptilia“. Proceedings of the Royal Society of London . 89B (615): 261–276 . Bibcode : 1916RSPSB..89..261G . doi : 10.1098/rspb.1916.0012 .
- ^ Watson, DMS (1957). „Über Millerosaurus und die Frühgeschichte der Sauropsiden“. Philosophical Transactions of the Royal Society of London. Series B, Biological Sciences . 240 (673): 325–400 . Bibcode : 1957RSPTB.240..325W . doi : 10.1098/rstb.1957.0003 . JSTOR 92508 .
- ^ Romer, AS (1933). Wirbeltierpaläontologie . University of Chicago Press.3. Aufl., 1966.
- ^ Gauthier, A., Kluge, A. G. & Rowe, T. (1988). Die frühe Evolution der Amniota. S. 103–155 in: Michael J. Benton (Hrsg.): Die Phylogenie und Klassifikation der Tetrapoden, Band 1: Amphibien, Reptilien, Vögel. Syst. Ass. Spec. Band 35A. Clarendon Press, Oxford.
- ^ Laurin, Michel; Gauthier, Jacques (Januar 1996). „Amniota. Säugetiere, Reptilien (Schildkröten, Eidechsen, Keilschwanzschweine, Krokodile, Vögel) und ihre ausgestorbenen Verwandten“ . Tree of Life Web Project . Archiviert vom Original am 10. April 2006. Abgerufen am 16. März 2023 .
- ^ Pearse, A. S. (Hrsg., 1947): Zoologische Namen: Eine Liste der Stämme, Klassen und Ordnungen. Erstellt für die Sektion F der American Association for the Advancement of Science . Zweite Auflage. Durham, North Carolina, USA, S. 1–22.
- ^ a b c Modesto, SP; Anderson, JS (2004). „Die phylogenetische Definition der Reptilien“ . Systematic Biology . 53 (5): 815–821 . doi : 10.1080/10635150490503026 . PMID 15545258 .
- ^ Laurin, Michel; Reisz, Robert R. (1995). „Eine Neubewertung der frühen Amniotenphylogenie“ . Zoological Journal of the Linnean Society . 113 (2): 165–223 . doi : 10.1111/j.1096-3642.1995.tb00932.x .
- ^ Brocklehurst, Neil (13.04.2017). „ Raten der morphologischen Evolution bei Captorhinidae: eine adaptive Radiation permischer Herbivoren“ . PeerJ . 5 e3200. doi : 10.7717/peerj.3200 . ISSN 2167-8359 . PMC 5392250. PMID 28417061 .
- ^ Canoville, Aurore; Laurin, Michel (19.05.2010). „Evolution der Humerusmikroanatomie und des Lebensstils bei Amnioten sowie einige Anmerkungen zu paläobiologischen Schlussfolgerungen: Amniotenmikroanatomie und paläobiologische Schlussfolgerungen“ . Biological Journal of the Linnean Society . 100 (2): 384–406 . doi : 10.1111/j.1095-8312.2010.01431.x .
- ^ Mann, Arjan; Dudgeon, Thomas W.; Henrici, Amy C.; Berman, David S.; Pierce, Stephanie E. (2021). „Zehen- und Krallenmorphologie deuten auf Anpassungen an die Kletterweise beim spätkarbonischen Eureptil Anthracodromeus longipes hin“ . Frontiers in Earth Science . 9 675337: 440. Bibcode : 2021FrEaS...9..440M . doi : 10.3389/feart.2021.675337 . ISSN 2296-6463 .
- ^ Klembara, J.; Ruta, M.; Anderson, J.; Mayer, T.; Hain, M.; Valaška, D. (2023). „Eine Übersicht über Coelostegus prothales Carroll und Baird, 1972 aus dem Oberkarbon der Tschechischen Republik und die Verwandtschaftsverhältnisse basaler Eureptilien“ . PLOS ONE . 18 (9) e0291687. Bibcode : 2023PLoSO..1891687K . doi : 10.1371/journal.pone.0291687 . PMC 10513281. PMID 37733816 .
- ^ Ford, David P.; Benson, Roger BJ (23.12.2019). „Die Phylogenie früher Amnioten und die Verwandtschaftsverhältnisse von Parareptilia und Varanopidae“ . Nature Ecology & Evolution . 4 (1): 57–65 . doi : 10.1038/s41559-019-1047-3 . ISSN 2397-334X .
- Buffa , Valentin; Jenkins, Xavier A.; Benoit, Julien (31.12.2025). „ Galesphyrus capensis aus dem Perm Südafrikas und der Ursprung der Neodiapsida“. Journal of Systematic Palaeontology . 23 (1) 2563582. doi : 10.1080/14772019.2025.2563582 . ISSN 1477-2019 .
- ^ Jenkins, Xavier A.; Buffa, Valentin; Marchant, Cy J.; Ford, David P.; Browning, Claire; Fernandez, Vincent; Dollman, Kathleen; Botha, Jennifer; Choiniere, Jonah N.; Benson, Roger BJ; Peecook, Brandon R. (2026). „Der Ursprung der Trommelfellgrube bei Reptilien wurde durch ein spätpermisches Neodiapsid enthüllt“ . Paläontologie . 69 (1) e70041. doi : 10.1111/pala.70041 . ISSN 1475-4983 .
- Jenkins , Xavier A.; Peecook, Brandon R.; Choiniere, Jonah N.; Buffa, Valentin; Benoit, Julien; Browning, Claire; Fernandez, Vincent; Dollman, Kathleen; Gomes, Timothy W.; McGaughey, Gary A.; Marchant, Cy J.; Fitch, Adam J.; Day, Michael O.; Evers, Serjoscha W.; Benson, Roger BJ (08.06.2026). „Der phylogenetische Ursprung der Schildkröten“ . Current Biology . 36 (11): 2907–2917.e2. doi : 10.1016/j.cub.2026.04.070 . ISSN 0960-9822 . PMID 42208530 .
- Müller , Johannes; Tsuji, Linda A. (12.09.2007). „Impedanzanpassendes Hören bei paläozoischen Reptilien: Hinweise auf fortgeschrittene Sinneswahrnehmung in einem frühen Stadium der Amnioten-Evolution“ . PLOS ONE . 2 (9) e889. Bibcode : 2007PLoSO...2..889M . doi : 10.1371/journal.pone.0000889 . PMC 1964539. PMID 17849018 .
- ^ Senter, Phil (2008). „Stimmen der Vergangenheit: Eine Übersicht über Tierlaute des Paläozoikums und Mesozoikums“. Historical Biology . 20 (4): 255–287 . doi : 10.1080/08912960903033327 .
- ^ ein b Bronzati, Mario; Vieceli, Felipe M.; Botezelli, Vitoria S.; Godoy, Pedro L.; Montefeltro, Felipe C.; Nassif, Jann PM; Luzete, Juliana; Ribeiro, Douglas; Yan, CY Irene; Werneburg, Ingmar; Kohlsdorf, Tiana (18.11.2024). „Tiefzeitiger Ursprung des Trommelfellhörens bei Kronenreptilien“ . Aktuelle Biologie . 34 (22): 5334–5340.E5. Bibcode : 2024CBio...34.5334B . doi : 10.1016/j.cub.2024.09.041 . HDL : 11449/299164 . PMID 39393352 .
- ^ Mannen, Hideyuki; Li, Steven S.-L. (Okt. 1999). „Molekulare Hinweise auf eine Klade von Schildkröten“. Molecular Phylogenetics and Evolution . 13 (1): 144–148 . Bibcode : 1999MolPE..13..144M . doi : 10.1006/mpev.1999.0640 . PMID 10508547 .
- ^ Zardoya, R.; Meyer, A. (1998). „Das vollständige mitochondriale Genom deutet auf diapside Verwandtschaft der Schildkröten hin“ . Proc Natl Acad Sci USA . 95 (24): 14226–14231 . Bibcode : 1998PNAS...9514226Z . doi : 10.1073/ pnas.95.24.14226 . ISSN 0027-8424 . PMC 24355. PMID 9826682 .
- ^ Iwabe, N.; Hara, Y.; Kumazawa, Y.; Shibamoto, K.; Saito, Y.; Miyata, T.; Katoh, K. (29.12.2004). „Schwestergruppenbeziehung der Schildkröten zum Vogel-Krokodil-Klade, aufgezeigt durch nukleäre DNA-kodierte Proteine“ . Molecular Biology and Evolution . 22 (4): 810–813 . doi : 10.1093/molbev/msi075 . PMID 15625185 .
- Roos , Jonas; Aggarwal, Ramesh K.; Janke, Axel (Nov. 2007). „Erweiterte mitogenomische phylogenetische Analysen liefern neue Erkenntnisse zur Krokodil-Evolution und ihrem Überleben an der Kreide-Tertiär-Grenze“. Molecular Phylogenetics and Evolution . 45 (2): 663–673 . Bibcode : 2007MolPE..45..663R . doi : 10.1016/j.ympev.2007.06.018 . PMID 17719245 .
- ^ Katsu, Y.; Braun, EL; Guillette, LJ Jr.; Iguchi, T. (17.03.2010). „Von der Phylogenomik der Reptilien zu den Genomen der Reptilien: Analysen der Proto-Onkogene c-Jun und DJ-1“. Cytogenetic and Genome Research . 127 ( 2–4 ): 79–93 . doi : 10.1159/000297715 . PMID 20234127. S2CID 12116018 .
- ^ Lyson, Tyler R.; Sperling, Erik A.; Heimberg, Alysha M.; Gauthier, Jacques A.; King, Benjamin L.; Peterson, Kevin J. (23.02.2012). „MicroRNAs unterstützen eine Schildkröten- + Eidechsen-Klade“ . Biology Letters . 8 (1 ) : 104–107 . Bibcode : 2012BiLet...8..104L . doi : 10.1098/rsbl.2011.0477 . PMC 3259949. PMID 21775315 .
- ^ Laurin, Michel; Piñeiro, Graciela H. (2017). „Eine Neubewertung der taxonomischen Stellung der Mesosaurier und eine überraschende Phylogenie früher Amnioten“ . Frontiers in Earth Science . 5 88. Bibcode : 2017FrEaS...5...88L . doi : 10.3389/feart.2017.00088 . hdl : 20.500.12008/33548 . ISSN 2296-6463 .
- ^ Modesto, Sean P. (Januar 2020). „Rooting about reptile relationships“ . Nature Ecology & Evolution . 4 (1): 10–11 . doi : 10.1038/s41559-019-1074-0 . ISSN 2397-334X . PMID 31900449. S2CID 209672518. Abgerufen am 29. Dezember 2020 .
- ^ Pardo, Jason D.; Szostakiwskyj, Matt; Ahlberg, Per E.; Anderson, Jason S. (Juni 2017). „Verborgene morphologische Vielfalt bei frühen Tetrapoden“ . Nature . 546 (7660): 642–645 . Bibcode : 2017Natur.546..642P . doi : 10.1038/nature22966 . hdl : 1880/113382 . ISSN 1476-4687 . PMID 28636600. S2CID 2478132 .
- ^ Mann, Arjan; Pardo, Jason D.; Maddin, Hillary C. (30.09.2019). „Infernovenator steenae, ein neues Serpentinen-Rekumbirostran aus der ‚Mazon Creek‘-Lagerstätte, klärt die lysorophischen Ursprünge weiter auf“ . Zoologisches Journal der Linnean Society . 187 (2): 506–517 . doi : 10.1093/zoolinnean/zlz026 . ISSN 0024-4082 .
- Reisz , Robert R.; Maho, Tea; Modesto, Sean P. (31.12.2024). „Recumbirostrane ‚Mikrosaurier‘ sind keine Amnioten“ . Journal of Systematic Palaeontology . 22 (1) 2296078. Bibcode : 2024JSPal..2296078R . doi : 10.1080/14772019.2023.2296078 . ISSN 1477-2019 .
- ^ Karten, HJ in Comparative and Evolutionary Aspects of the Vertebrate Central Nervous System (ed. Pertras, J.) 164–179 (1969).
- ^ Jarvis, Güntürkün, O., Bruce, L., Csillag, A., Karten, H., Kuenzel, W., Medina, L., Paxinos, G., Perkel, DJ, Shimizu, T., Striedter, G., Wild, JM, Ball, GF, Dugas-Ford, J., Durand, SE, Hough, GE, Husband, S., Kubikova, L., Lee, DW, ... Butler, AB (2005). „Vogelgehirne und ein neues Verständnis der Evolution des Wirbeltiergehirns“. Nature Reviews Neuroscience, 6(2), 151–159. doi : 10.1038/nrn1606 .