Osteoblasten (vom griechischen Wort für „ Knochen “, ὀστέο-, osteo- und βλαστάνω, blastanō „keimen“) sind einkernige Zellen , die Knochengewebe bilden . Bei der Knochenbildung arbeiten Osteoblasten jedoch in Gruppen verbundener Zellen. Einzelne Zellen können kein Knochengewebe aufbauen. Eine Gruppe organisierter Osteoblasten zusammen mit dem von dieser Zelleinheit gebildeten Knochengewebe wird üblicherweise als Osteon bezeichnet .
Osteoblasten sind spezialisierte, terminal differenzierte Produkte mesenchymaler Stammzellen . [ 1 ] Sie synthetisieren dichtes, vernetztes Kollagen und spezialisierte Proteine in viel geringeren Mengen, darunter Osteocalcin und Osteopontin , die die organische Matrix des Knochens bilden.
In organisierten Gruppen voneinander unabhängiger Zellen produzieren Osteoblasten Hydroxylapatit , das Knochenmineral , das hochreguliert in die anorganische Matrix eingelagert wird und so ein starkes und dichtes mineralisiertes Gewebe , die mineralisierte Matrix, bildet. Mit Hydroxylapatit beschichtete Knochenimplantate erzielen oft bessere Ergebnisse als unbeschichtete. Beispielsweise sind bei Patienten mit Fettlebererkrankung mit Hydroxylapatit beschichtete Titanimplantate wirksamer als unbeschichtete. [ 2 ] Das mineralisierte Skelett bildet die Hauptstützstruktur des Körpers luftatmender Wirbeltiere . Es ist zudem ein wichtiger Mineralstoffspeicher für die physiologische Homöostase , einschließlich des Säure-Basen-Haushalts und der Aufrechterhaltung des Kalzium- und Phosphatspiegels . [ 3 ] [ 4 ]
Knochenstruktur
Das Skelett ist ein großes Organ, das sich bei luftatmenden Wirbeltieren im Laufe des Lebens bildet und abbaut . Es dient sowohl als Stützstruktur als auch zur Aufrechterhaltung des Kalzium-, Phosphat- und Säure-Basen-Haushalts im gesamten Organismus. [ 5 ] Die funktionelle Komponente des Knochens, die Knochenmatrix , ist vollständig extrazellulär. Sie besteht aus Proteinen und Mineralien . Die Proteine bilden die organische Matrix. Sie werden synthetisiert, und anschließend werden die Mineralien hinzugefügt. Der größte Teil der organischen Matrix besteht aus Kollagen , das für die Zugfestigkeit sorgt . Die Matrix wird durch die Ablagerung von Hydroxylapatit mineralisiert. Dieses Mineral ist hart und verleiht Druckfestigkeit . Kollagen und Mineralien bilden somit zusammen einen Verbundwerkstoff mit ausgezeichneter Zug- und Druckfestigkeit, der sich unter Belastung biegen und ohne Beschädigung in seine ursprüngliche Form zurückkehren kann. Dies wird als elastische Verformung bezeichnet . Kräfte, die die Elastizität des Knochens überschreiten, können zu Versagen, typischerweise Knochenbrüchen , führen .
Knochenumbau
Knochen ist ein dynamisches Gewebe, das ständig von Osteoblasten , welche Matrixproteine produzieren und absondern und Mineralien in die Matrix transportieren, und Osteoklasten , welche das Gewebe abbauen, umgeformt wird.
Osteoblasten
Osteoblasten sind die Hauptzellen des Knochens. Sie entstehen aus mesenchymalen Stammzellen (MSCs). MSCs differenzieren sich unter anderem zu Osteoblasten, Adipozyten und Myozyten . Die Anzahl der Osteoblasten verhält sich umgekehrt proportional zu der der Knochenmark-Adipozyten, die das Knochenmarkfettgewebe (MAT) bilden . Osteoblasten finden sich in großer Zahl im Periost , der dünnen Bindegewebsschicht an der Knochenoberfläche, und im Endost .
Normalerweise wird bei luftatmenden Wirbeltieren fast die gesamte Knochenmatrix von Osteoblasten mineralisiert. Vor der Mineralisierung spricht man von Osteoid . Die in der Matrix eingebetteten Osteoblasten heißen Osteozyten . Während der Knochenbildung besteht die Oberflächenschicht der Osteoblasten aus kubischen Zellen, den sogenannten aktiven Osteoblasten . Wenn die knochenbildende Einheit nicht aktiv Knochen synthetisiert, flachen die Oberflächenosteoblasten ab und werden inaktive Osteoblasten genannt . Osteozyten bleiben lebensfähig und sind über Zellfortsätze mit der Oberflächenschicht der Osteoblasten verbunden. Osteozyten spielen eine wichtige Rolle bei der Erhaltung des Skeletts.
Osteoklasten
Osteoklasten sind vielkernige Zellen, die aus hämatopoetischen Vorläuferzellen im Knochenmark hervorgehen und auch Monozyten im peripheren Blut bilden. [ 6 ] Osteoklasten bauen Knochengewebe ab und bilden zusammen mit Osteoblasten und Osteozyten die strukturellen Bestandteile des Knochens. Im Inneren der Knochen befinden sich viele weitere Zelltypen des Knochenmarks . Zu den für die osteoblastische Knochenbildung essenziellen Komponenten gehören mesenchymale Stammzellen (Osteoblasten-Vorläuferzellen) und Blutgefäße , die Sauerstoff und Nährstoffe für die Knochenbildung liefern. Knochen ist ein stark vaskularisiertes Gewebe, und die aktive Bildung von Blutgefäßzellen, ebenfalls aus mesenchymalen Stammzellen, ist für die Aufrechterhaltung des Knochenstoffwechsels unerlässlich. Das Gleichgewicht zwischen Knochenaufbau und Knochenabbau verschiebt sich mit zunehmendem Alter tendenziell ins Negative, insbesondere bei postmenopausalen Frauen [ 7 ] , was häufig zu einem so starken Knochenverlust führt, dass es zu Frakturen kommt – der sogenannten Osteoporose .
Osteogenese
Knochen entstehen durch einen von zwei Prozessen: enchondrale Ossifikation oder intramembranöse Ossifikation . Bei der enchondralen Ossifikation bildet sich Knochen aus Knorpel – dies ist der übliche Prozess. Diese Form der Knochenentwicklung ist komplexer: Zunächst entsteht ein Knorpelskelett aus Chondrozyten , das später abgebaut und durch Knochen aus Osteoblasten ersetzt wird. Die intramembranöse Ossifikation ist die direkte Verknöcherung des Mesenchyms , wie sie beispielsweise bei der Bildung der Membranknochen des Schädels vorkommt. [ 8 ]
Während der Osteoblastendifferenzierung exprimieren die sich entwickelnden Vorläuferzellen den regulatorischen Transkriptionsfaktor Cbfa1/Runx2 . Ein weiterer erforderlicher Transkriptionsfaktor ist Sp7 . [ 9 ] Osteochondroprogenitorzellen differenzieren sich unter dem Einfluss von Wachstumsfaktoren . Isolierte mesenchymale Stammzellen in Gewebekultur können jedoch unter permissiven Bedingungen, die Vitamin C und Substrate für die alkalische Phosphatase – ein Schlüsselenzym , das hohe Phosphatkonzentrationen am Ort der Mineralablagerung bereitstellt – umfassen, ebenfalls Osteoblasten bilden. [ 1 ] Osteoblasten können wiederum in einem von der Gefäßmuskulatur der Blutgefäße im Knochen abhängigen Prozess zu Osteozyten differenzieren . [ 10 ]
Knochenmorphogenetische Proteine
Zu den wichtigsten Wachstumsfaktoren der enchondralen Skelettdifferenzierung gehören Knochenmorphogenetische Proteine (BMPs), die maßgeblich bestimmen, wo die Chondrozytendifferenzierung stattfindet und wo Zwischenräume zwischen den Knochen entstehen. Das System des Knorpelersatzes durch Knochen verfügt über ein komplexes Regulationssystem. BMP2 reguliert zudem die frühe Skelettmusterbildung. Der transformierende Wachstumsfaktor beta (TGF-β) gehört zu einer Protein-Superfamilie, zu der auch BMPs zählen, die gemeinsame Signalmoleküle im TGF-β-Signalweg aufweisen . TGF-β ist besonders wichtig für die Knorpeldifferenzierung , die der Knochenbildung im Rahmen der enchondralen Ossifikation in der Regel vorausgeht. Eine weitere Familie essenzieller regulatorischer Faktoren sind die Fibroblasten-Wachstumsfaktoren (FGFs), die die Lage der Skelettelemente in Bezug auf die Haut bestimmen.
Steroid- und Proteinhormone
Viele weitere Regulationssysteme sind am Übergang von Knorpel zu Knochen und an der Knochenerhaltung beteiligt. Ein besonders wichtiger, auf den Knochen wirkender Hormonregulator ist das Parathormon (PTH). Parathormon ist ein Protein, das von der Nebenschilddrüse unter der Kontrolle der Serumkalziumaktivität gebildet wird . [ 4 ] PTH hat auch wichtige systemische Funktionen, unter anderem hält es die Serumkalziumkonzentration unabhängig von der Kalziumzufuhr nahezu konstant. Eine erhöhte Kalziumzufuhr über die Nahrung führt zu einem geringfügigen Anstieg des Blutkalziums. Dies ist jedoch kein signifikanter Mechanismus zur Unterstützung der Osteoblastenbildung, außer bei kalziumarmer Ernährung. Darüber hinaus erhöht eine abnorm hohe Kalziumzufuhr über die Nahrung das Risiko schwerwiegender gesundheitlicher Folgen, die nicht direkt mit der Knochenmasse zusammenhängen, wie Herzinfarkt und Schlaganfall . [ 11 ] Eine intermittierende PTH-Stimulation steigert die Osteoblastenaktivität, obwohl PTH bifunktionell ist und in höheren Konzentrationen den Abbau der Knochenmatrix vermittelt.
Das Skelett wird auch im Hinblick auf die Fortpflanzung und als Reaktion auf Ernährungs- und andere hormonelle Belastungen modifiziert; es reagiert auf Steroide , darunter Östrogene und Glukokortikoide , die für die Fortpflanzung und die Regulation des Energiestoffwechsels wichtig sind. Der Knochenumbau ist mit einem hohen Energieaufwand für Synthese und Abbau verbunden und involviert zahlreiche zusätzliche Signale, darunter Hypophysenhormone . Zwei dieser Hormone sind das adrenokortikotrope Hormon (ACTH) [ 12 ] und das follikelstimulierende Hormon (FSH) [ 13 ] . Die physiologische Rolle der Reaktionen auf diese und einige andere Glykoproteinhormone ist noch nicht vollständig geklärt. Es ist jedoch wahrscheinlich, dass ACTH, ähnlich wie PTH, eine bifunktionelle Funktion hat: Periodische ACTH-Spitzen fördern den Knochenaufbau, während hohe Konzentrationen zu Knochenabbau führen. Bei Mäusen verursachen Mutationen, die die Effizienz der ACTH-induzierten Glukokortikoidproduktion in den Nebennieren verringern, eine Verdichtung des Skeletts ( Osteosklerose ) [ 14 ] [ 15 ] .
Organisation und Ultrastruktur
In gut erhaltenen Knochen, die mittels Elektronenmikroskopie unter hoher Vergrößerung untersucht wurden , zeigt sich, dass einzelne Osteoblasten durch Tight Junctions verbunden sind. Diese verhindern den Durchtritt von extrazellulärer Flüssigkeit und bilden so ein vom übrigen extrazellulären Raum getrenntes Knochenkompartiment. [ 16 ] Die Osteoblasten sind außerdem durch Gap Junctions verbunden , kleine Poren, die die Zellen einer Gruppe miteinander verbinden und es ihnen ermöglichen, als Einheit zu funktionieren. [ 17 ] Die Gap Junctions verbinden auch tiefer liegende Zellschichten mit der Oberflächenschicht ( Osteozyten , wenn diese von Knochen umgeben sind). Dies wurde direkt nachgewiesen, indem niedermolekulare Fluoreszenzfarbstoffe in Osteoblasten injiziert wurden und die Diffusion des Farbstoffs in die umliegenden und tiefer liegenden Zellen der knochenbildenden Einheit gezeigt wurde. [ 18 ] Knochen besteht aus vielen dieser Einheiten, die durch undurchlässige Zonen ohne Zellverbindungen, sogenannte Kittlinien, voneinander getrennt sind.
Kollagen und akzessorische Proteine
Nahezu die gesamte organische (nicht-mineralische) Komponente des Knochens besteht aus dichtem Kollagen Typ I [ 19 ] , das dichte, vernetzte Stränge bildet, welche dem Knochen seine Zugfestigkeit verleihen. Osteoblasten sezernieren über noch ungeklärte Mechanismen Schichten aus orientiertem Kollagen, wobei sich die parallel zur Längsachse des Knochens verlaufenden Schichten alle paar Mikrometer mit Schichten abwechseln, die senkrecht zur Längsachse des Knochens stehen . Defekte im Kollagen Typ I verursachen die häufigste erbliche Knochenerkrankung, die Osteogenesis imperfecta [ 20 ] .
Geringe, aber dennoch wichtige Mengen kleiner Proteine, darunter Osteocalcin und Osteopontin , werden in die organische Knochenmatrix sezerniert. [ 21 ] Osteocalcin wird außerhalb des Knochens nicht in signifikanten Konzentrationen exprimiert und ist daher ein spezifischer Marker für die Knochenmatrixsynthese. [ 22 ] Diese Proteine verbinden die organischen und mineralischen Komponenten der Knochenmatrix. [ 23 ] Aufgrund ihrer intermediären Lokalisation zwischen Mineralien und Kollagen sind diese Proteine für eine maximale Matrixfestigkeit notwendig.
Bei Mäusen, bei denen die Expression von Osteocalcin oder Osteopontin durch gezielte Deaktivierung der entsprechenden Gene unterdrückt wurde ( Knockout-Mäuse ), war die Mineralakkumulation jedoch nicht merklich beeinträchtigt, was darauf hindeutet, dass die Matrixorganisation keinen signifikanten Einfluss auf den Mineraltransport hat. [ 24 ] [ 25 ]
Knochen versus Knorpel
Das primitive Skelett besteht aus Knorpel , einem festen, gefäßlosen Gewebe, in dem einzelne Knorpelmatrix-produzierende Zellen, die Chondrozyten , vorkommen. Chondrozyten sind nicht miteinander verbunden und nicht zu Einheiten koordiniert. Knorpel besteht aus einem Netzwerk von Kollagen Typ II, das durch wasserbindende Proteine, hydrophile Proteoglykane , unter Spannung gehalten wird . [ 26 ] Dies ist das Skelett adulter Knorpelfische wie Haie . Es entwickelt sich als erstes Skelett bei höher entwickelten Tierklassen .
Bei luftatmenden Wirbeltieren wird Knorpel durch zellulären Knochen ersetzt. Ein Übergangsgewebe ist mineralisierter Knorpel . Die Mineralisierung des Knorpels erfolgt durch die massive Expression von Phosphat-produzierenden Enzymen, die zu hohen lokalen Konzentrationen von Kalzium und Phosphat führen, welche ausfallen. [ 26 ] Dieser mineralisierte Knorpel ist weder dicht noch fest. Bei luftatmenden Wirbeltieren dient er als Gerüst für die Bildung von zellulärem Knochen durch Osteoblasten und wird anschließend von Osteoklasten abgebaut , die auf den Abbau von mineralisiertem Gewebe spezialisiert sind.
Osteoblasten produzieren eine hochentwickelte Knochenmatrix, die aus dichten, unregelmäßigen Hydroxylapatitkristallen besteht , welche die Kollagenfasern umhüllen. [ 27 ] Dieses feste Verbundmaterial ermöglicht es, das Skelett hauptsächlich in Form von Hohlröhren zu gestalten. Durch die Reduzierung der langen Knochen auf Röhren wird das Gewicht verringert, während die Stabilität erhalten bleibt.
Mineralisierung des Knochens
Die Mechanismen der Mineralisierung sind noch nicht vollständig verstanden. Fluoreszierende, niedermolekulare Verbindungen wie Tetracyclin oder Calcein binden bei kurzzeitiger Gabe stark an Knochenmineralien. Sie reichern sich dann in schmalen Bändern im neu gebildeten Knochen an. [ 28 ] Diese Bänder verlaufen quer durch die zusammenhängende Gruppe knochenbildender Osteoblasten. Sie treten an einer schmalen (submikrometergroßen ) Mineralisierungsfront auf. Auf den meisten Knochenoberflächen finden sich weder Neubildung von Knochen noch Tetracyclinaufnahme oder Mineralbildung. Dies deutet stark darauf hin, dass ein erleichterter oder aktiver Transport , koordiniert innerhalb der knochenbildenden Zellgruppe, an der Knochenbildung beteiligt ist und dass ausschließlich zellvermittelte Mineralbildung stattfindet. Das heißt, Kalzium aus der Nahrung führt nicht durch Massenwirkung zur Mineralbildung.
Der Mechanismus der Mineralbildung im Knochen unterscheidet sich deutlich von dem phylogenetisch älteren Prozess der Knorpelmineralisierung: Tetracyclin markiert mineralisierten Knorpel nicht in schmalen Bändern oder an spezifischen Stellen, sondern diffus, was mit einem passiven Mineralisierungsmechanismus übereinstimmt. [ 27 ]
Osteoblasten trennen Knochen durch dichte Zellverbindungen [ 16 ] mittels reguliertem Transport von der extrazellulären Flüssigkeit. Anders als im Knorpel können Phosphat und Kalzium nicht durch passive Diffusion ein- oder austreten, da die dichten Zellverbindungen der Osteoblasten den Knochenbildungsraum abgrenzen. Kalzium wird durch erleichterten Transport (d. h. durch passive Transporter, die Kalzium nicht gegen ein Konzentrationsgefälle pumpen) durch die Osteoblasten transportiert [ 27 ] . Phosphat hingegen wird aktiv produziert, und zwar durch die Sekretion phosphathaltiger Verbindungen, einschließlich ATP , sowie durch Phosphatasen , die Phosphat spalten und so eine hohe Phosphatkonzentration an der Mineralisierungsfront erzeugen. Die alkalische Phosphatase ist ein membrangebundenes Protein und ein charakteristischer Marker, der in großen Mengen an der apikalen (sekretorischen) Seite aktiver Osteoblasten exprimiert wird.

Mindestens ein weiterer regulierter Transportprozess ist beteiligt. Die Stöchiometrie des Knochenminerals entspricht im Wesentlichen der von Hydroxylapatit, das bei einem leicht alkalischen pH-Wert aus Phosphat, Calcium und Wasser ausfällt : [ 29 ]
- 6 HPO2−4+ 2 H 2 O + 10 Ca 2+ ⇌ Ca 10 (PO 4 ) 6 (OH) 2 + 8 H +
In einem geschlossenen System reichert sich bei der Mineralausfällung Säure an, wodurch der pH-Wert rasch sinkt und die weitere Ausfällung gestoppt wird. Knorpel stellt keine Diffusionsbarriere dar, sodass die Säure diffundieren und die Ausfällung fortsetzen kann. Im Osteon, wo die Matrix durch Tight Junctions von der extrazellulären Flüssigkeit getrennt ist, kann dies nicht geschehen. In diesem kontrollierten, abgeschlossenen Kompartiment treibt die Entfernung von H⁺ die Ausfällung unter verschiedensten extrazellulären Bedingungen an, solange Kalzium und Phosphat im Matrixkompartiment vorhanden sind. [ 30 ] Der Mechanismus, durch den Säure die Barriereschicht passiert, ist noch nicht vollständig geklärt. Osteoblasten besitzen die Fähigkeit zum Na⁺ / H⁺ - Austausch über die redundanten Na⁺/H⁺-Austauscher NHE1 und NHE6. [ 31 ] Dieser H⁺ - Austausch ist ein wichtiger Faktor für die Säureentfernung, obwohl der Mechanismus, durch den H⁺ aus dem Matrixraum in die Barriereschicht der Osteoblasten transportiert wird, noch unbekannt ist.
Bei der Knochenentfernung wird ein umgekehrter Transportmechanismus angewendet, bei dem Säure in die mineralisierte Matrix eingebracht wird, um Hydroxylapatit in Lösung zu bringen. [ 32 ]
Osteozyten-Rückkopplung
Rückkopplung durch körperliche Aktivität erhält die Knochenmasse, während Rückkopplung durch Osteozyten die Größe der knochenbildenden Einheit begrenzt. [ 33 ] [ 34 ] [ 35 ] Ein wichtiger zusätzlicher Mechanismus ist die Sekretion von Sklerostin durch in der Matrix eingebettete Osteozyten . Dieses Protein hemmt einen Signalweg, der die Aktivität der Osteoblasten aufrechterhält. Erreicht das Osteon somit eine maximale Größe, wird die Knochensynthese deaktiviert. [ 36 ]
Morphologie und histologische Färbung
Die Hämatoxylin-Eosin- Färbung (H&E) zeigt, dass das Zytoplasma aktiver Osteoblasten aufgrund des reichlich vorhandenen rauen endoplasmatischen Retikulums leicht basophil ist . Der aktive Osteoblast produziert reichlich Kollagen Typ I. Etwa 10 % der Knochenmatrix bestehen aus Kollagen, der Rest aus Mineralien. [ 29 ] Der Zellkern des Osteoblasten ist kugelförmig und groß. Morphologisch ist ein aktiver Osteoblast durch einen prominenten Golgi-Apparat charakterisiert , der histologisch als helle Zone neben dem Zellkern erscheint. Die Zellprodukte werden hauptsächlich in das Osteoid, die nicht-mineralisierte Matrix, transportiert. Aktive Osteoblasten können mit Antikörpern gegen Kollagen Typ I markiert werden. Alternativ kann die Aktivität der alkalischen Phosphatase direkt mit Naphtholphosphat und dem Diazoniumfarbstoff Fast Blue nachgewiesen werden .
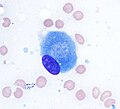 Osteoblast (Wright-Giemsa-Färbung, 100x)
 Lichtmikroskopische Aufnahme von entkalktem Spongiosaknochen, die Osteoblasten zeigt, die aktiv Osteoid synthetisieren und zwei Osteozyten enthalten.
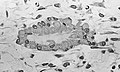 Lichtmikroskopische Aufnahme von nicht entkalktem Gewebe, die Osteoblasten zeigt, die aktiv Osteoid synthetisieren (Mitte).
 Lichtmikroskopische Aufnahme von nicht entkalktem Gewebe, auf der Osteoblasten aktiv rudimentäres Knochengewebe synthetisieren (Mitte).
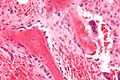 Osteoblasten, die den Knochen auskleiden (H&E-Färbung)
Isolierung von Osteoblasten
- Die erste Isolierungstechnik mittels Mikrodissektion wurde ursprünglich von Fell et al. [ 37 ] beschrieben . Sie verwendeten Hühnergliedmaßenknochen, die in Periost und übrige Bestandteile getrennt wurden. Aus kultiviertem Gewebe gewannen sie Zellen mit osteogenen Eigenschaften.
- Die enzymatische Verdauung zählt zu den fortschrittlichsten Techniken zur Isolierung von Knochenzellpopulationen und zur Gewinnung von Osteoblasten. Peck et al. (1964) [ 38 ] beschrieben die ursprüngliche Methode, die heute von vielen Forschern häufig angewendet wird.
- 1974 stellten Jones et al. [ 39 ] fest, dass sich Osteoblasten in vivo und in vitro unter verschiedenen experimentellen Bedingungen lateral bewegen, und beschrieben die Migrationsmethode detailliert. Die Osteoblasten waren jedoch mit Zellen kontaminiert, die aus den Gefäßöffnungen einwanderten, darunter möglicherweise Endothelzellen und Fibroblasten.
Siehe auch
- Liste der aus den Keimblättern stammenden menschlichen Zelltypen
- Liste der verschiedenen Zelltypen im erwachsenen menschlichen Körper
Referenzen
- ^ a b Pittenger MF, Mackay AM, Beck SC, Jaiswal RK, Douglas R, Mosca JD, Moorman MA, Simonetti DW, Craig S, Marshak DR (April 1999). „Multilineage potential of adult human mesenchymal stem cells“. Science . 284 (5411): 143– 7. Bibcode : 1999Sci...284..143P . doi : 10.1126/science.284.5411.143 . PMID 10102814 .
- ^ Pinto TS, van der Eerden BC, Schreuders-Koedam M, van de Peppel J, Ayada I, Pan Q, Verstegen MM, van der Laan LJ, Fuhler GM, Zambuzzi WF, Peppelenbosch MP (November 2024). „Wechselwirkung hoch lipogener Zustände mit Titan auf die Osteogenese“ . Knochen . 189 : 117256. doi : 10.1016/j.bone.2024.117242 . PMID 39209139 .
- ^Arnett T (2003). "Regulation of bone cell function by acid–base balance". Proc Nutr Soc. 62 (2): 511–20. doi:10.1079/pns2003268. PMID 14506899.
- ^ abBlair HC, Zaidi M, Huang CL, Sun L (November 2008). "The developmental basis of skeletal cell differentiation and the molecular basis of major skeletal defects". Biol Rev Camb Philos Soc. 83 (4): 401–15. doi:10.1111/j.1469-185X.2008.00048.x. PMID 18710437. S2CID 20459725.
- ^Blair HC, Sun L, Kohanski RA (November 2007). "Balanced regulation of proliferation, growth, differentiation, and degradation in skeletal cells". Ann. N. Y. Acad. Sci. 1116 (1): 165–73. Bibcode:2007NYASA1116..165B. doi:10.1196/annals.1402.029. PMID 17646258. S2CID 22605157.
- ^Loutit, J.F.; Nisbet, N.W. (January 1982). "The Origin of Osteoclasts". Immunobiology. 161 (3–4): 193–203. doi:10.1016/S0171-2985(82)80074-0. PMID 7047369.
- ^Nicks KM, Fowler TW, Gaddy D (June 2010). "Reproductive hormones and bone". Curr Osteoporos Rep. 8 (2): 60–7. doi:10.1007/s11914-010-0014-3. PMID 20425612. S2CID 43825140.
- ^Larsen, William J. (2001). Human embryology (3. ed.). Philadelphia, Pa.: Churchill Livingstone. pp. 355–357. ISBN 0-443-06583-7.
- ^Karsenty G (2008). "Transcriptional control of skeletogenesis". Annu Rev Genom Hum Genet. 9: 183–96. doi:10.1146/annurev.genom.9.081307.164437. PMID 18767962.
- ^ Fernandes CJ, Silva RA, Ferreira MR, Fuhler GM, Peppelenbosch MP, van der Eerden BC, Zambuzzi WF (August 2024). „Vaskuläre glatte Muskelzellen-abgeleitete Exosomen fördern den Übergang von Osteoblasten zu Osteozyten über β-Catenin-Signalisierung“. Experimental Cell Research . 442 (1) 114211. doi : 10.1016/j.yexcr.2024.114211 . hdl : 11449/298906 . PMID 39147261 .
- ^ Reid IR, Bristow SM, Bolland MJ (April 2015). „Kardiovaskuläre Komplikationen von Kalziumpräparaten“. J. Cell. Biochem . 116 (4): 494–501 . doi : 10.1002 / jcb.25028 . PMID 25491763. S2CID 40654125 .
- ^ Zaidi M, Sun L, Robinson LJ, Tourkova IL, Liu L, Wang Y, Zhu LL, Liu X, Li J, Peng Y, Yang G, Shi X, Levine A, Iqbal J, Yaroslavskiy BB, Isales C, Blair HC (Mai 2010). „ACTH schützt vor Glukokortikoid-induzierter Knochennekrose“ . Proz. Natl. Acad. Wissenschaft. USA . 107 (19): 8782– 7. Bibcode : 2010PNAS..107.8782Z . doi : 10.1073/pnas.0912176107 . PMC 2889316 . PMID 20421485 .
- ^ Sun L, Peng Y, Sharrow AC, Iqbal J, Zhang Z, Papachristou DJ, Zaidi S, Zhu LL, Yaroslavskiy BB, Zhou H, Zallone A, Sairam MR, Kumar TR, Bo W, Braun J, Cardoso-Landa L, Schaffler MB, Moonga BS, Blair HC, Zaidi M (April 2006). „FSH reguliert direkt die Knochenmasse“ . Cell . 125 (2): 247–60 . doi : 10.1016 / j.cell.2006.01.051 . PMID 16630814. S2CID 7544706 .
- ^ Hoekstra M, Meurs I, Koenders M, Out R, Hildebrand RB, Kruijt JK, Van Eck M, Van Berkel TJ (April 2008). „Fehlende Aufnahme von HDL-Cholesterylestern über SR-BI bei Mäusen beeinträchtigt eine adäquate, durch Nebennierenrinden-Glukokortikoide vermittelte Stressreaktion auf Fasten“ . J. Lipid Res . 49 (4): 738–45 . doi : 10.1194/jlr.M700475-JLR200 . hdl : 2066/69489 . PMID 18204096 .
- ^ Martineau C, Martin-Falstrault L, Brissette L, Moreau R (Januar 2014). „Das atherogene Scarb1-Null-Mausmodell zeigt einen Phänotyp mit hoher Knochenmasse“ . Am . J. Physiol. Endocrinol. Metab . 306 (1): E48–57. doi : 10.1152/ajpendo.00421.2013 . PMC 3920004. PMID 24253048 .
- ^ a b Arana-Chavez VE, Soares AM, Katchburian E (August 1995). „Verbindungen zwischen früh entwickelten Osteoblasten der Rattenkalvarie, dargestellt durch Gefrierbruch- und Ultradünnschnitt-Elektronenmikroskopie“ . Arch. Histol. Cytol . 58 (3): 285–92 . doi : 10.1679/aohc.58.285 . PMID 8527235 .
- ^ Doty SB (1981). „Morphologische Hinweise auf Gap Junctions zwischen Knochenzellen“. Calcif. Tissue Int . 33 (5): 509–12 . doi : 10.1007/BF02409482 . PMID 6797704. S2CID 29501339 .
- Yellowley CE, Li Z, Zhou Z, Jacobs CR, Donahue HJ (Februar 2000). „Funktionelle Gap Junctions zwischen Osteozyten und Osteoblasten“ . J. Bone Miner. Res . 15 (2): 209–17 . doi : 10.1359/jbmr.2000.15.2.209 . PMID 10703922. S2CID 7632980 .
- ^ Reddi AH, Gay R, Gay S, Miller EJ (Dezember 1977). „Übergänge der Kollagentypen während der Matrix-induzierten Knorpel-, Knochen- und Knochenmarkbildung“ . Proc . Natl. Acad. Sci. USA . 74 (12): 5589–92 . Bibcode : 1977PNAS...74.5589R . doi : 10.1073/pnas.74.12.5589 . PMC 431820. PMID 271986 .
- ^ Kuivaniemi H, Tromp G, Prockop DJ (April 1991). „Mutationen in Kollagengenen: Ursachen seltener und einiger häufiger Erkrankungen beim Menschen“ . FASEB J. 5 ( 7): 2052–60 . doi : 10.1096/fasebj.5.7.2010058 . PMID 2010058. S2CID 24461341 .
- ^ Aubin JE, Liu F, Malaval L, Gupta AK (August 1995). „Osteoblasten- und Chondroblastendifferenzierung“. Bone . 17 (2 Suppl): 77S– 83S. doi : 10.1016/8756-3282(95)00183-E . PMID 8579903 .
- ^ Delmas PD, Demiaux B, Malaval L, Chapuy MC, Meunier PJ (April 1986). „[Osteocalcin (oder Knochen-Gla-Protein), ein neuer biologischer Marker zur Untersuchung der Knochenpathologie]“. Presse Med (in Französisch). 15 (14): 643–6 . PMID 2939433 .
- ^ Roach HI (Juni 1994). „Warum enthält die Knochenmatrix nicht-kollagene Proteine? Die mögliche Rolle von Osteocalcin, Osteonectin, Osteopontin und Knochensialoprotein bei der Knochenmineralisierung und -resorption“. Cell Biol. Int . 18 (6): 617–28 . doi : 10.1006/cbir.1994.1088 . PMID 8075622. S2CID 20913443 .
- ^ Boskey AL, Gadaleta S, Gundberg C, Doty SB, Ducy P, Karsenty G (September 1998). „Fourier-Transformations-Infrarot-Mikrospektroskopie-Analyse von Knochen osteocalcin-defizienter Mäuse liefert Einblick in die Funktion von Osteocalcin“ . Bone . 23 (3): 187–96 . doi : 10.1016/s8756-3282(98)00092-1 . PMID 9737340 .
- ^ Thurner PJ, Chen CG, Ionova-Martin S, Sun L, Harman A, Porter A, Ager JW, Ritchie RO, Alliston T (Juni 2010). „Osteopontinmangel erhöht die Knochenbrüchigkeit, erhält aber die Knochenmasse“ . Bone . 46 ( 6): 1564–73 . doi : 10.1016/j.bone.2010.02.014 . PMC 2875278. PMID 20171304 .
- ^ a b Blair HC, Zaidi M, Schlesinger PH (Juni 2002). „Mechanismen, die die Synthese und den Abbau der Skelettmatrix im Gleichgewicht halten“ . Biochem . J. 364 ( Pt 2): 329–41 . doi : 10.1042/BJ20020165 . PMC 1222578. PMID 12023876 .
- ^ a b c Blair HC, Robinson LJ, Huang CL, Sun L, Friedman PA, Schlesinger PH, Zaidi M (2011). „Calcium and bone disease“ . BioFactors . 37 (3): 159–67 . doi : 10.1002 / biof.143 . PMC 3608212. PMID 21674636 .
- ^ Frost HM (1969). „ Tetracyclinbasierte histologische Analyse des Knochenumbaus“. Calcif Tissue Res . 3 (1): 211–37 . doi : 10.1007/BF02058664 . PMID 4894738. S2CID 9373656 .
- ^ a b Neuman WF, Neuman MW (1958-01-01). Die chemische Dynamik der Knochenmineralien . University of Chicago Press. ISBN 0-226-57512-8Die
{{cite book}}:ISBN-/Datumsinkompatibilität ( Hilfe ) - ^ Schartum S, Nichols G (Mai 1962). „Über pH-Gradienten zwischen dem extrazellulären Raum und den die Knochenmineraloberfläche umgebenden Flüssigkeiten und deren Beziehung zur Calciumionenverteilung“ . J. Clin. Invest . 41 (5): 1163–8 . doi : 10.1172/JCI104569 . PMC 291024. PMID 14498063 .
- ^ Liu L, Schlesinger PH, Slack NM, Friedman PA, Blair HC (Juni 2011). „Hohe Na+/H+-Austauschkapazität in mineralisierenden Osteoblasten“ . J. Cell. Physiol . 226 (6): 1702–1712 . doi : 10.1002 / jcp.22501 . PMC 4458346. PMID 21413028 .
- ^ Blair HC, Teitelbaum SL, Ghiselli R, Gluck S (August 1989). „Osteoklastische Knochenresorption durch eine polarisierte vakuoläre Protonenpumpe“. Science . 245 (4920): 855–7 . Bibcode : 1989Sci...245..855B . doi : 10.1126/science.2528207 . PMID 2528207 .
- ^ Klein-Nulend J, Nijweide PJ, Burger EH (Juni 2003). „Osteozyten- und Knochenstruktur“. Curr Osteoporos Rep . 1 (1): 5–10 . doi : 10.1007/s11914-003-0002-y . PMID 16036059 . S2CID 9456704 .
- ^ Dance, Amber (23. Februar 2022). „Wissenswertes über Knochen: Mehr als nur ein Stützgerüst“ . Knowable Magazine . doi : 10.1146/knowable-022222-1 . Abgerufen am 8. März 2022 .
- Robling , Alexander G.; Bonewald, Lynda F. (10. Februar 2020). „Der Osteozyt: Neue Erkenntnisse“ . Annual Review of Physiology . 82 (1): 485–506 . doi : 10.1146/annurev-physiol- 021119-034332 . hdl : 1805/30982 . ISSN 0066-4278 . PMC 8274561. PMID 32040934 .
- ^ Baron, Roland; Rawadi, Georges; Roman-Roman, Sergio (2006). „WNT-Signalgebung: Ein Schlüsselregulator der Knochenmasse“. Aktuelle Themen der Entwicklungsbiologie . Band 76. S. 103–127 . doi : 10.1016/S0070-2153(06)76004-5 . ISBN 978-0-12-153176-8PMID 17118265 .
- Fell , HB (Januar 1932). „Die osteogene Kapazität von Periost und Endost, isoliert aus dem Gliedmaßenskelett von Hühnerembryonen und jungen Küken, in vitro“ . Journal of Anatomy . 66 (Teil 2): 157–180.11. PMC 1248877. PMID 17104365 .
- ^ Peck, WA; Birge, SJ; Fedak, SA (11. Dezember 1964). „Knochenzellen: Biochemische und biologische Studien nach enzymatischer Isolierung“. Science . 146 ( 3650): 1476–1477 . Bibcode : 1964Sci...146.1476P . doi : 10.1126/science.146.3650.1476 . PMID 14208576. S2CID 26903706 .
- ^ Jones, SJ; Boyde, A. (Dezember 1977). „Einige morphologische Beobachtungen an Osteoklasten“. Cell and Tissue Research . 185 (3): 387–97 . doi : 10.1007/bf00220298 . PMID 597853. S2CID 26078285 .
Weiterführende Literatur
- William F. Neuman und Margaret W. Neuman. (1958). Die chemische Dynamik der Knochenmineralien. Chicago: The University of Chicago Press. ISBN 0-226-57512-8Die
- Netter, Frank H. (1987). Bewegungsapparat: Anatomie, Physiologie und Stoffwechselstörungen . Summit, New Jersey: Ciba-Geigy Corporation . ISBN 0-914168-88-6Die


