
Eine Art ( Plural: Arten ) ist die grundlegende Klassifizierungseinheit und taxonomische Rangstufe eines Organismus sowie eine Einheit der Biodiversität . Sie kann als die größte Organismengruppe definiert werden, in der zwei Individuen des entsprechenden Geschlechts oder Paarungstyps fruchtbare Nachkommen zeugen können, typischerweise durch sexuelle Fortpflanzung. Weitere Definitionen von Arten umfassen ihren Karyotyp , ihre DNA - Sequenz , ihre Morphologie , ihr Verhalten oder ihre ökologische Nische . Paläontologen verwenden zudem das Konzept der Chronospezies , da die Fortpflanzung fossiler Organismen nicht untersucht werden kann. Die jüngste präzise Schätzung der Gesamtzahl der eukaryotischen Arten liegt zwischen 8 und 8,7 Millionen. [ 1 ] [ 2 ] [ 3 ] Etwa 14 % davon waren bis 2011 beschrieben worden. [ 3 ] Alle Arten (außer Viren ) erhalten einen zweiteiligen Namen , ein sogenanntes Binomen. Der erste Teil eines Binomens ist der Name der Gattung , zu der die Art gehört. Der zweite Teil wird als Artname oder Art-Epitheton bezeichnet (in der botanischen Nomenklatur , manchmal auch in der zoologischen Nomenklatur ). Beispielsweise ist Boa constrictor eine Art der Gattung Boa , wobei constrictor der Artname ist.
Obwohl die oben genannten Definitionen auf den ersten Blick ausreichend erscheinen mögen, stellen sie bei genauerer Betrachtung problematische Artkonzepte dar. Beispielsweise verschwimmen die Grenzen zwischen eng verwandten Arten bei Hybridisierung , in Artenkomplexen mit Hunderten ähnlicher Mikrospezies und bei Ringarten . Auch bei Organismen, die sich ausschließlich ungeschlechtlich fortpflanzen , stößt das Konzept der reproduktiven Art an seine Grenzen, und jede klonale Linie kann potenziell eine Mikrospezies darstellen. Obwohl keine dieser Definitionen vollkommen zufriedenstellend ist und das Artkonzept kein perfektes Modell des Lebens darstellt, ist es trotz der theoretischen Schwierigkeiten ein nützliches Werkzeug für Wissenschaftler und Naturschützer zur Erforschung des Lebens auf der Erde. Wären Arten unveränderlich und voneinander unterscheidbar, gäbe es kein Problem, doch evolutionäre Prozesse führen zu Veränderungen der Arten. Dies zwingt Taxonomen beispielsweise dazu zu entscheiden, wann genügend Veränderungen stattgefunden haben, um eine fossile Linie in mehrere Chronospezies aufzuteilen , oder wann Populationen so weit auseinanderentwickelt sind, dass sie genügend unterschiedliche Merkmalsausprägungen aufweisen, um als kladistische Arten beschrieben zu werden.
Von Aristoteles bis ins 18. Jahrhundert galten Arten und höhere Taxa als Kategorien, die sich hierarchisch, der großen Kette des Seins, anordnen ließen . Im 19. Jahrhundert erkannten Biologen, dass sich Arten bei ausreichend Zeit entwickeln können. Charles Darwins 1859 erschienenes Buch „ Über die Entstehung der Arten“ erklärte, wie Arten durch natürliche Selektion entstehen können . Dieses Verständnis wurde im 20. Jahrhundert durch Genetik und Populationsökologie erheblich erweitert . Genetische Variabilität entsteht durch Mutationen und Rekombination , während die Mobilität von Organismen zu geografischer Isolation und Gendrift mit unterschiedlichen Selektionsdrücken führt. Gene können mitunter durch horizontalen Gentransfer zwischen Arten ausgetauscht werden ; neue Arten können durch Hybridisierung und Polyploidie rasch entstehen ; und Arten können aus verschiedenen Gründen aussterben , wobei es im Laufe der Geschichte mehrere Massenaussterben gab. Viren stellen einen Sonderfall dar, der durch ein Gleichgewicht von Mutation und Selektion bedingt ist, und können als Quasispezies betrachtet werden .
Definition
Biologen und Taxonomen haben zahlreiche Versuche unternommen, Arten zu definieren, angefangen bei der Morphologie bis hin zur Genetik . Frühe Taxonomen wie Linné hatten keine andere Wahl, als das Gesehene zu beschreiben: Dies wurde später als typologisches oder morphologisches Artkonzept formalisiert. Ernst Mayr betonte die reproduktive Isolation, doch diese ist, wie andere Artkonzepte auch, bei räumlich oder zeitlich getrennten Organismengruppen schwer oder gar unmöglich zu überprüfen. [ 4 ] [ 5 ] Spätere Biologen haben versucht, Mayrs Definition unter anderem durch die Konzepte der Erkennung und des Zusammenhalts zu verfeinern. [ 6 ] Viele der Konzepte sind einander sehr ähnlich oder überschneiden sich, weshalb ihre Zählung schwierig ist: Der Biologe R. L. Mayden zählte etwa 24 Konzepte [ 7 ] , der Wissenschaftsphilosoph John Wilkins 26. [ 4 ] Wilkins unterteilte die Artkonzepte weiter in sieben grundlegende Kategorien: (1) Agamospezies für asexuelle Organismen, (2) Biospezies für reproduktiv isolierte sexuelle Organismen, (3) Ökospezies basierend auf ökologischen Nischen, (4) evolutionäre Arten basierend auf Abstammungslinien, (5) genetische Arten basierend auf dem Genpool, (6) Morphospezies basierend auf Form oder Phänotyp und (7) taxonomische Arten, Arten, wie sie von einem Taxonomen definiert werden. [ 8 ]
Typologische oder morphologische Arten
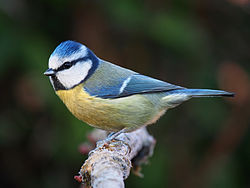
Eine typologische Art ist eine Gruppe von Organismen, deren Individuen bestimmte feste Merkmale aufweisen (einen Typus, der durch eine gewählte „nominale Art“ definiert werden kann), sodass selbst Menschen vor der Schrift oft dasselbe Taxon erkannten wie moderne Taxonomen. [ 10 ] [ 11 ] Moderne Feldführer und Bestimmungswebseiten wie iNaturalist verwenden dieses Konzept. Die Häufung von Variationen oder Phänotypen innerhalb von Exemplaren (z. B. längere oder kürzere Schwänze) dient zur Unterscheidung der Arten. Diese Methode wurde, wie beispielsweise von Linné, zu Beginn der Evolutionstheorie als „klassische“ Methode zur Artbestimmung verwendet. Unterschiedliche Phänotypen stellen jedoch nicht zwangsläufig verschiedene Arten dar (z. B. ist eine vierflügelige Drosophila, die von einer zweiflügeligen Mutter geboren wurde, keine andere Art). Auf diese Weise benannte Arten werden als Morphospezies bezeichnet . [ 12 ] [ 13 ]
In den 1970er Jahren schlugen Robert R. Sokal , Theodore J. Crovello und Peter Sneath eine Variante des morphologischen Artkonzepts vor: die phänotypische Art. Diese wird definiert als eine Gruppe von Organismen mit ähnlichem Phänotyp untereinander, der sich jedoch von dem anderer Organismengruppen unterscheidet. [ 14 ] Sie unterscheidet sich vom morphologischen Artkonzept durch die Einbeziehung eines numerischen Distanz- oder Ähnlichkeitsmaßes zur Gruppierung von Organismengruppen auf Basis multivariater Vergleiche einer ausreichend großen Anzahl phänotypischer Merkmale. [ 15 ]
Erkennungs- und Kohäsionsarten
Eine Partnererkennungsart ist eine Gruppe sexuell reproduzierender Organismen, die einander als potenzielle Partner erkennen. [ 16 ] [ 17 ] Um auch die Isolation nach der Paarung zu berücksichtigen, wird dieses Konzept erweitert: Eine Kohäsionsart ist die umfassendste Population von Individuen, die durch intrinsische Kohäsionsmechanismen das Potenzial zur phänotypischen Kohäsion aufweisen. Unabhängig davon, ob Populationen erfolgreich hybridisieren können, bleiben sie distinkte Kohäsionsarten, solange die Hybridisierung nicht ausreicht, um ihre jeweiligen Genpools vollständig zu vermischen . [ 18 ] Eine Weiterentwicklung des Erkennungskonzepts liefert das biosemiotische Artenkonzept. [ 19 ]
Genetische Ähnlichkeit und Barcode-Arten
Einzelgen (Barcoding)
In der Mikrobiologie können Gene selbst zwischen entfernt verwandten Bakterien frei wandern, möglicherweise sogar innerhalb der gesamten Bakteriendomäne. Als Faustregel galt, dass Bakterien oder Archaeen mit 16S-rRNA -Gensequenzen, die zu mehr als 97 % übereinstimmen, mittels DNA-DNA-Hybridisierung untersucht werden müssen , um festzustellen, ob sie zur selben Art gehören. [ 20 ] Dieses Konzept wurde 2006 auf eine Übereinstimmung von 98,7 % eingeschränkt. [ 21 ]
Die 16S-Sequenz ist ein Beispiel für einen einzelnen Genort, der so einfach ist, dass er auch von Nicht-Experten angewendet werden kann und in den meisten Fällen zur Unterscheidung von Arten ausreicht. Die Verwendung eines einzelnen, leicht anwendbaren Genorts zur Unterscheidung von Taxa wird als DNA-Barcoding bezeichnet . [ 22 ] Einer der Barcodes für Eukaryoten ist ein Abschnitt der mitochondrialen DNA innerhalb des Gens für Cytochrom-c-Oxidase . Die Datenbank „ Barcode of Life Data System “ enthält DNA-Barcode-Sequenzen von über 190.000 Arten. [ 23 ] [ 24 ] Wissenschaftler wie Rob DeSalle haben jedoch Bedenken geäußert, dass die klassische Taxonomie und das ihrer Ansicht nach irreführende Konzept des DNA-Barcoding miteinander in Einklang gebracht werden müssen, da sie Arten unterschiedlich abgrenzen. [ 25 ] Genetische Introgression durch Endosymbionten und andere Vektoren kann die Wirksamkeit von Barcodes bei der Artenidentifizierung zusätzlich beeinträchtigen. [ 26 ]
Ein einzelner Genort kann ein guter Indikator für den Zeitpunkt der Divergenz sein, vorausgesetzt, der gewählte Genort hat sich wie der größte Teil des restlichen Genoms entwickelt. Diese Annahme kann durch horizontalen Gentransfer, der den Genort selbst betrifft, widerlegt werden. Schnelle Evolutionsprozesse, die biologische Arten innerhalb kurzer Zeit trennen (Artbildung), würden das Artkonzept ebenfalls von der Zeit entkoppeln. Bei Bakterien gibt es mehrere Fälle, in denen sehr unterschiedliche Genome eine 16S-Identität von 99,9 % aufweisen. [ 27 ]
Multilocus-Vergleich
Die Verwendung mehrerer (üblicherweise weniger als 10) Loci für den Vergleich liefert ein aussagekräftigeres phylogenetisches Signal als der Vergleich von Varianten desselben Locus, da mehr Mutationen erfasst werden können. Dadurch wird eine verbesserte taxonomische Auflösung im Vergleich zum Vergleich einzelner Loci erzielt, wodurch Ergebnisse entstehen, die dem teuren „Goldstandard“ des Gesamtgenomvergleichs ähnlicher sind – und das bei nur geringfügig höheren Kosten. [ 28 ]
Selbst wenn vollständige Genome verfügbar sind, gibt es gute Gründe, nur ausgewählte Gene zu vergleichen: Viele Gene kommen nicht in allen Genomen vor und liefern daher nur ein begrenztes taxonomisches Signal, erhöhen aber gleichzeitig den Rechenaufwand des Vergleichs. In solchen Fällen können Dutzende bis Hunderte von Loci aus jedem Genom extrahiert und gemeinsam verwendet werden. Wie bei Vergleichen mit weniger Loci sollten die hierfür verwendeten Marker-Gene eine geringe Rate an horizontalem Gentransfer und Genduplikation, wenige bekannte Fälle von horizontalem Gentransfer und eine hohe Häufigkeit in den untersuchten Genomen aufweisen. [ 29 ] [ 30 ] Bei Prokaryoten können Marker-Gene verwendet werden, um Taxa bis auf die Gattungsebene abzugrenzen, wobei der Vergleich ganzer Genome der Unterscheidung von Arten vorbehalten bleibt. [ 31 ]
Vergleich des gesamten Genoms
Der sicherste Weg, den gesamten Genfluss zwischen Populationen zu erfassen, ist der Vergleich ihrer vollständigen Genome. Die Methode der durchschnittlichen Nukleotididentität (ANI) quantifiziert die genetische Distanz zwischen gesamten Genomen anhand von Regionen von etwa 10.000 Basenpaaren . Mit genügend Daten aus Genomen einer Gattung können Algorithmen zur Kategorisierung von Arten verwendet werden, wie beispielsweise für Pseudomonas avellanae im Jahr 2013 [ 32 ] und für alle sequenzierten Bakterien und Archaeen seit 2020 [ 33 ]. Die beobachteten ANI-Werte prokaryotischer Sequenzen weisen eine „ANI-Lücke“ von 85–95 % auf, was darauf hindeutet, dass eine genetische Grenze existiert, die sich zur Definition eines Artkonzepts eignet [ 34 ] .
Phylogenetische oder kladistische Arten

Eine phylogenetische oder kladistische Art ist „die kleinste Ansammlung von Populationen (sexuell) oder Abstammungslinien (asexuell), die durch eine einzigartige Kombination von Merkmalsausprägungen in vergleichbaren Individuen (Semaphoronten) diagnostizierbar ist“ [ 35 ] . Die empirische Grundlage – beobachtete Merkmalsausprägungen – liefert die Evidenz zur Stützung von Hypothesen über evolutionär divergente Abstammungslinien, die ihre erbliche Integrität über Zeit und Raum hinweg bewahrt haben [ 36 ] [ 37 ] [ 38 ] [ 39 ] . Molekulare Marker können verwendet werden, um diagnostische genetische Unterschiede in der nukleären oder mitochondrialen DNA verschiedener Arten zu bestimmen [ 40 ] [ 35 ] [ 41 ] . Beispielsweise lieferte in einer Studie an Pilzen die Untersuchung der Nukleotidmerkmale mithilfe kladistischer Arten die genauesten Ergebnisse bei der Erkennung der zahlreichen Pilzarten aller untersuchten Konzepte. [ 41 ] [ 42 ] Versionen des phylogenetischen Artkonzepts, die Monophylie oder Diagnostizierbarkeit betonen [ 43 ], können zur Aufspaltung bestehender Arten führen, beispielsweise bei den Hornträgern (Bovidae ), indem alte Unterarten als Arten anerkannt werden, obwohl keine reproduktiven Barrieren bestehen und Populationen morphologisch ineinander übergehen können. [ 44 ] Andere bezeichnen diesen Ansatz als taxonomische Inflation , die das Artkonzept verwässert und die Taxonomie instabil macht. [ 45 ] Wieder andere verteidigen diesen Ansatz, betrachten „taxonomische Inflation“ als abwertend und bezeichnen die gegenteilige Ansicht als „taxonomischen Konservatismus“. Sie argumentieren, es sei politisch opportun, Arten aufzuspalten und kleinere Populationen auf Artebene anzuerkennen, da diese so leichter in die Rote Liste der IUCN als gefährdet aufgenommen werden und Schutzgesetze und Fördermittel erhalten können. [ 46 ]
Anders als das biologische Artkonzept beruht ein kladistisches Artkonzept nicht auf reproduktiver Isolation – seine Kriterien sind unabhängig von Prozessen, die für andere Konzepte integraler Bestandteil sind. [ 35 ] Daher ist es auch auf asexuelle Abstammungslinien anwendbar. [ 40 ] [ 41 ] Allerdings liefert es nicht immer klare und intuitiv einleuchtende Grenzen zwischen Taxa und kann mehrere Evidenzquellen, wie beispielsweise mehr als einen polymorphen Locus, erfordern, um plausible Ergebnisse zu erzielen. [ 41 ]
Evolutionäre Arten
Eine evolutionäre Art, die George Gaylord Simpson 1951 vorschlug , ist „eine aus Organismen bestehende Einheit, die ihre Identität gegenüber anderen solchen Einheiten im Laufe der Zeit und im Raum bewahrt und die ihr eigenes, unabhängiges evolutionäres Schicksal und ihre eigenen historischen Tendenzen hat“ [ 7 ] [ 47 ] . Dies unterscheidet sich vom biologischen Artkonzept durch die Berücksichtigung der Persistenz über die Zeit. Wiley und Mayden erklärten, dass sie das evolutionäre Artkonzept als „identisch“ mit Willi Hennigs Arten-als-Linien-Konzept ansehen und behaupteten, dass das biologische Artkonzept, „die verschiedenen Versionen“ des phylogenetischen Artkonzepts und die Vorstellung, dass Arten derselben Art wie höhere Taxa angehören, für Biodiversitätsstudien (mit dem Ziel, die Artenzahl genau zu schätzen) ungeeignet seien. Sie schlugen weiterhin vor, dass das Konzept sowohl für asexuell als auch für sexuell reproduzierende Arten anwendbar sei [ 48 ] . Eine Version des Konzepts ist Kevin de Queiroz ’ „General Lineage Concept of Species“ [ 49 ] .
Ökologische Arten
Eine ökologische Art ist eine Gruppe von Organismen, die an eine bestimmte Ressourcengruppe, die sogenannte ökologische Nische, in ihrer Umwelt angepasst sind. Gemäß diesem Konzept bilden Populationen die diskreten phänetischen Gruppen, die wir als Arten erkennen, weil die ökologischen und evolutionären Prozesse, die die Ressourcenverteilung steuern, tendenziell diese Gruppen hervorbringen. [ 50 ]
Genetische Arten
Eine genetische Art, wie sie von Robert Baker und Robert Bradley definiert wurde, ist eine Gruppe genetisch isolierter, sich untereinander fortpflanzender Populationen. Dies ähnelt Mayrs biologischem Artkonzept, betont aber die genetische anstelle der reproduktiven Isolation. [ 51 ] Im 21. Jahrhundert kann eine genetische Art durch den Vergleich von DNA-Sequenzen bestimmt werden. Früher standen andere Methoden zur Verfügung, wie der Vergleich von Karyotypen (Chromosomensätzen ) und Allozymen ( Enzymvarianten ). [ 52 ]
Evolutionär bedeutsame Einheit
Eine evolutionär bedeutsame Einheit (ESU) oder „Wildtierart“ [ 53 ] ist eine Population von Organismen, die im Sinne des Naturschutzes als eigenständig betrachtet wird. [ 54 ]
Chronospezies

In der Paläontologie kann , allein anhand vergleichender Anatomie (Morphologie) und Histologie [ 55 ] von Fossilien , das Konzept der Chronospezies angewendet werden. Während der Anagenese (Evolution, die nicht notwendigerweise mit Verzweigungen einhergeht) versuchen einige Paläontologen, eine Abfolge von Arten zu identifizieren, von denen jede durch kontinuierliche, langsame und mehr oder weniger gleichmäßige Veränderungen aus der phylogenetisch ausgestorbenen Vorgängerart hervorgegangen ist. In einer solchen zeitlichen Abfolge beurteilen einige Paläontologen, wie viel Veränderung erforderlich ist, damit eine morphologisch distinkte Form als eine andere Art als ihre Vorfahren gilt. [ 56 ] [ 57 ] [ 58 ] [ 59 ]
Virale Quasispezies
Viren weisen enorme Populationen auf, sind aufgrund ihrer Beschaffenheit – sie bestehen im Wesentlichen aus einer DNA- oder RNA-Sequenz in einer Proteinhülle – fraglich als Lebewesen einzustufen und mutieren schnell. All diese Faktoren machen herkömmliche Artkonzepte weitgehend unanwendbar. [ 60 ] Eine virale Quasispezies ist eine Gruppe von Genotypen, die durch ähnliche Mutationen verwandt sind, in einer stark mutagenen Umgebung konkurrieren und daher einem Mutations-Selektions-Gleichgewicht unterliegen . Es wird vorhergesagt, dass eine virale Quasispezies in einem niedrigen, aber evolutionär neutralen und stark vernetzten (d. h. flachen) Bereich der Fitnesslandschaft eine Quasispezies in einem höheren, aber schmaleren Fitnessmaximum, in dem die umgebenden Mutanten unfit sind, verdrängen wird – der sogenannte „Quasispezies-Effekt“ oder das „Überleben des Flachsten“. Es gibt keinerlei Hinweise darauf, dass eine virale Quasispezies einer traditionellen biologischen Art ähnelt. [ 61 ] [ 62 ] [ 63 ] Das Internationale Komitee für die Taxonomie von Viren hat seit 1962 ein universelles taxonomisches Schema für Viren entwickelt; Dies hat die Virustaxonomie stabilisiert. [ 64 ] [ 65 ] [ 66 ]
Mayrs biologisches Artkonzept

Die meisten modernen Lehrbücher verwenden Ernst Mayrs Definition von 1942 [ 67 ] [ 68 ] , bekannt als biologisches Artkonzept , als Grundlage für die weitere Diskussion über die Definition von Arten. Es wird auch als Reproduktions- oder Isolationskonzept bezeichnet. Dieses definiert eine Art als [ 69 ]
Gruppen von tatsächlich oder potenziell untereinander fortpflanzungsfähigen natürlichen Populationen, die von anderen solchen Gruppen reproduktiv isoliert sind. [ 69 ]
Es wurde argumentiert, dass diese Definition eine natürliche Folge des Einflusses der sexuellen Fortpflanzung auf die Dynamik der natürlichen Selektion sei. [ 70 ] [ 71 ] [ 72 ] [ 73 ] Mayrs Verwendung des Adjektivs „potenziell“ war Gegenstand von Debatten; einige Interpretationen schließen ungewöhnliche oder künstliche Paarungen aus, die nur in Gefangenschaft vorkommen oder Tiere betreffen, die zwar zur Paarung fähig sind, dies aber normalerweise nicht in freier Wildbahn tun. [ 69 ]
Das Konzept der sich erneuernden Arten [ 74 ] erweitert Mayrs biologische Artdefinition um agame (asexuelle) Organismen. Es erweitert das Konzept der Kreuzung , den „Klebstoff“, der einzelne Individuen zu einer Art verbindet, zum Konzept der Erneuerungskohäsion , dem „Klebstoff“, der sowohl für sexuelle als auch für agame Organismen gilt. Erneuerungskohäsion ist „die Einschränkung der genetischen Vielfalt einer Gruppe verwandter Individuen aufgrund ihres jüngsten Ursprungs von einem gemeinsamen Vorfahren“. Diese Einschränkung der genetischen Vielfalt resultiert aus den Auswirkungen der Gendrift , die durch die Koaleszenztheorie erklärt werden und ausreichen, um die genetische Vielfalt selbst ohne Selektion einzuschränken. Reproduktive Isolation als „Anti-Kreuzung“ und Voraussetzung für die Artbildung wird zur Erneuerungsisolation erweitert und schließt sowohl sexuelle als auch agame Organismen ein.
Eine sich erneuernde Art „ist die umfassendste Gruppe von Individuen, die durch Erneuerungskohäsion vereint sind, d. h. 1) sich in einer spezifischen ökologischen Nische fortpflanzen und 2) aufgrund des jüngsten Ursprungs ihrer Genome (als vollständige, ununterbrochene DNA-Abschnitte oder in Teilen) aus den Genomen von Vorfahren genetisch ähnlich sind. […] Angewendet auf sexuell fortpflanzende Individuen reduziert sich das Konzept der sich erneuernden Art auf Mayrs biologisches Konzept.“
Abgesehen von der Verbindung zu Mayrs biologischem Artkonzept entlehnt die Erneuerung der Arten ihren Kohäsionsmechanismus Templetons „Kohäsion durch Gendrift“ (einer der in [ 75 ] beschriebenen Kohäsionsmechanismen der Arten ).
Das Artenproblem
Es ist schwierig, eine Art so zu definieren, dass sie auf alle Organismen zutrifft. [ 76 ] Diese Debatte über Artbegriffe wird als Artenproblem bezeichnet . [ 69 ] [ 77 ] [ 78 ] [ 79 ] Das Problem wurde bereits 1859 erkannt, als Darwin in „Über die Entstehung der Arten“ schrieb :
Mich hat sehr beeindruckt, wie vage und willkürlich die Unterscheidung zwischen Arten und Varietäten ist. [ 80 ]
Er schrieb weiter:
Keine Definition hat alle Naturforscher zufriedengestellt; dennoch weiß jeder Naturforscher ungefähr, was er meint, wenn er von einer Art spricht. Im Allgemeinen schließt der Begriff das unbekannte Element eines spezifischen Schöpfungsaktes mit ein. [ 81 ]
Probleme mit einfachen Definitionen von Arten

Viele Autoren haben argumentiert, dass eine einfache Lehrbuchdefinition, die Mayrs Konzept folgt, für die meisten vielzelligen Organismen gut funktioniert , aber in einigen Situationen versagt:
- Bei der ungeschlechtlichen Fortpflanzung von Organismen , wie beispielsweise bei einzelligen Organismen wie Bakterien und anderen Prokaryoten [ 82 ] sowie bei parthenogenetischen oder apomiktischen mehrzelligen Organismen, werden häufig DNA-Barcoding und Phylogenetik eingesetzt. [ 75 ] [ 83 ] [ 84 ] Der Begriff Quasispezies wird mitunter für schnell mutierende Organismen wie Viren verwendet. [ 85 ] [ 86 ]
- Wenn Wissenschaftler nicht wissen, ob zwei morphologisch ähnliche Organismengruppen sich untereinander fortpflanzen können; dies ist bei allen ausgestorbenen Lebensformen in der Paläontologie der Fall , da Zuchtexperimente nicht möglich sind. [ 87 ]
- Wenn Hybridisierung einen erheblichen Genfluss zwischen den Arten ermöglicht. [ 88 ]
- Bei Ringarten , wenn sich Mitglieder benachbarter Populationen in einem weitläufigen, zusammenhängenden Verbreitungsgebiet erfolgreich miteinander fortpflanzen, Mitglieder weiter entfernter Populationen jedoch nicht. [ 89 ]

Die Artbestimmung wird durch Diskrepanzen zwischen molekularen und morphologischen Untersuchungen erschwert. Diese lassen sich in zwei Typen einteilen: (i) eine Morphologie, mehrere Abstammungslinien (z. B. morphologische Konvergenz , kryptische Arten ) und (ii) eine Abstammungslinie, mehrere Morphologien (z. B. phänotypische Plastizität , mehrere Lebenszyklusstadien ). [ 90 ] Darüber hinaus erschwert horizontaler Gentransfer (HGT) die Definition einer Art. [ 91 ] Alle Artdefinitionen setzen voraus, dass ein Organismus seine Gene von einem oder zwei Elternteilen erbt, die dem „Tochterorganismus“ sehr ähnlich sind. Dies trifft jedoch beim HGT nicht zu. [ 92 ] Es gibt starke Hinweise auf HGT zwischen sehr unähnlichen Gruppen von Prokaryoten und zumindest gelegentlich auch zwischen unähnlichen Gruppen von Eukaryoten , [ 91 ] darunter einige Krebstiere und Stachelhäuter . [ 93 ]
Der Evolutionsbiologe James Mallet kommt zu dem Schluss, dass
Es gibt keine einfache Möglichkeit festzustellen, ob verwandte geografische oder zeitliche Formen derselben oder verschiedenen Arten angehören. Artenlücken lassen sich nur lokal und zu einem bestimmten Zeitpunkt nachweisen. Man muss daher Darwins Erkenntnis bestätigen: Jegliche lokale Realität oder Integrität von Arten nimmt über große geografische Gebiete und Zeiträume hinweg stark ab. [ 18 ]
Der Botaniker Brent Mishler [ 94 ] argumentierte, dass das Artkonzept nicht gültig sei, insbesondere weil der Genfluss nicht in diskreten Schritten, sondern allmählich abnehme, was eine objektive Abgrenzung von Arten erschwere. [ 95 ] Tatsächlich wurden komplexe und instabile Muster des Genflusses bei Buntbarschen der Ostafrikanischen Großen Seen beobachtet . [ 96 ] Wilkins argumentierte, dass man, „wenn wir der Evolution und dem daraus resultierenden phylogenetischen Ansatz für Taxa gerecht werden wollten, diesen durch die Idee des ‚kleinsten Klades ‘ (ein phylogenetisches Artkonzept) ersetzen sollte“. [ 97 ] Mishler und Wilkins [ 98 ] sowie andere [ 99 ] stimmen diesem Ansatz zu, obwohl dies Schwierigkeiten in der biologischen Nomenklatur mit sich bringen würde. Wilkins zitierte die Bemerkung des Ichthyologen Charles Tate Regan aus dem frühen 20. Jahrhundert: „Eine Art ist das, was ein entsprechend qualifizierter Biologe als Art bezeichnet.“ [ 97 ] Wilkins merkte an, dass der Philosoph Philip Kitcher dies als das „zynische Artenkonzept“ bezeichnete [ 100 ] und argumentierte, dass es keineswegs zynisch sei, sondern vielmehr nützlicherweise zu einer empirischen Taxonomie für jede beliebige Gruppe führe, basierend auf der Erfahrung von Taxonomen. [ 97 ] Andere Biologen gingen noch weiter und argumentierten, dass wir Arten gänzlich aufgeben und uns auf die „kleinsten inklusiven taxonomischen Einheiten“ (LITUs) beziehen sollten [ 101 ] – eine Ansicht, die mit der aktuellen Evolutionstheorie vereinbar wäre. [ 99 ]
Aggregate von Mikroorganismen
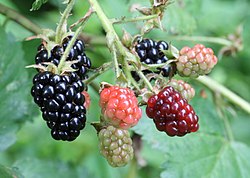
Das Artkonzept wird durch die Existenz von Mikrospezies weiter geschwächt . Mikrospezies sind Organismengruppen, darunter viele Pflanzenarten, die eine sehr geringe genetische Variabilität aufweisen und meist Artenkomplexe bilden . [ 102 ] Beispielsweise sind der Löwenzahn (Taraxacum officinale) und die Brombeere (Rubus fruticosus) solche Komplexe mit vielen Mikrospezies – allein in Großbritannien schätzungsweise 400 im Fall der Brombeere und über 200 im Löwenzahn. [ 103 ] Hybridisierung , Apomixis und Polyploidie erschweren die Bestimmung des Genflusses zwischen Populationen und machen ihre Taxonomie umstritten. [ 104 ] [ 105 ] [ 106 ] Artenkomplexe kommen auch bei Insekten wie den Heliconius- Schmetterlingen [ 107 ] , Wirbeltieren wie den Hypsiboas- Laubfröschen [ 108 ] und Pilzen wie dem Fliegenpilz vor . [ 109 ]
 Die Schmetterlingsgattung Heliconius umfasst viele ähnliche Arten.
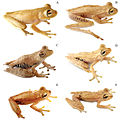 Der Hypsiboas calcaratus – fasciatus Artenkomplex umfasst mindestens sechs Baumfroscharten.
Hybridisierung
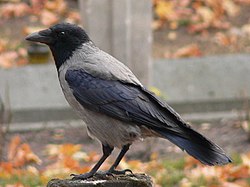
Natürliche Hybridisierung stellt das Konzept einer reproduktiv isolierten Art in Frage, da fruchtbare Hybriden den Genfluss zwischen zwei Populationen ermöglichen. Beispielsweise erscheinen die Aaskrähe (Corvus corone) und die Nebelkrähe (Corvus cornix) als separate Arten und werden auch so klassifiziert, obwohl sie sich in Gebieten, in denen sich ihre Verbreitungsgebiete überschneiden, hybridisieren können. [ 110 ]
- Die Hybridisierung von Aas- und Nebelkrähen ermöglicht den Genaustausch zwischen den „Arten“.

 Hybrid mit dunklem Bauch
Ringarten
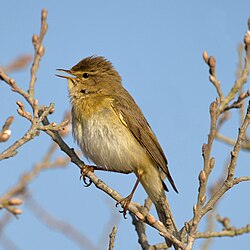
Eine Ringart ist eine zusammenhängende Reihe benachbarter Populationen, die sich jeweils sexuell mit benachbarten, verwandten Populationen fortpflanzen können. Innerhalb dieser Reihe existieren jedoch mindestens zwei „Endpopulationen“, die zu weit voneinander entfernt verwandt sind, um sich miteinander fortzupflanzen, obwohl ein potenzieller Genfluss zwischen den einzelnen „verbundenen“ Populationen besteht. [ 111 ] Solche nicht fortpflanzungsfähigen, aber genetisch verbundenen „Endpopulationen“ können im selben Gebiet koexistieren und so den Ring schließen. Ringarten stellen daher ein Problem für jedes Artkonzept dar, das auf reproduktiver Isolation beruht. [ 112 ] Ringarten sind jedoch bestenfalls selten. Als Beispiele werden der Silbermöwen - Heringsmöwen- Komplex um den Nordpol, die Ensatina eschscholtzii- Gruppe mit 19 Salamanderpopulationen in Amerika [ 113 ] und der Grünlaubsänger in Asien [ 114 ] genannt. Viele sogenannte Ringarten haben sich jedoch als Fehlklassifizierungen erwiesen, was die Existenz von Ringarten infrage stellt. [ 115 ] [ 116 ] [ 117 ] [ 118 ]
 Sieben verschiedene Möwenarten der Gattung Larus brüten in einem Ring um die Arktis.
 An den gegenüberliegenden Enden des Rings: eine Silbermöwe ( Larus argentatus ) (vorne) und eine Heringsmöwe ( Larus fuscus ) in Norwegen
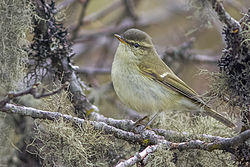 Ein grünlicher Laubsänger , Phylloscopus trochiloides

Taxonomie und Namensgebung

Gebräuchliche und wissenschaftliche Namen
Die gebräuchlichen Bezeichnungen für Organismengruppen sind oft mehrdeutig: „Katze“ kann sowohl die Hauskatze ( Felis catus) als auch die Katzenfamilie ( Felidae) bezeichnen . Ein weiteres Problem mit Trivialnamen ist ihre regionale Variabilität. So bezeichnen Puma, Cougar, Catamount, Panther, Painter und Mountain Lion in verschiedenen Teilen Amerikas jeweils den Puma concolor , während „Panther“ auch den Jaguar ( Panthera onca ) Lateinamerikas oder den Leoparden ( Panthera pardus ) Afrikas und Asiens bezeichnen kann. Im Gegensatz dazu sind die wissenschaftlichen Artnamen eindeutig und universell (abgesehen von einigen Homonymen zwischen verschiedenen wissenschaftlichen Codes ). Sie bestehen aus zwei Teilen : dem Gattungsnamen (z. B. Puma ) und dem Artnamen ( z. B. concolor ). [ 119 ] [ 120 ]
Artenbeschreibung

Eine Art erhält einen taxonomischen Namen, wenn ein Typusexemplar formell in einer Publikation beschrieben wird, die ihr einen eindeutigen wissenschaftlichen Namen zuweist. Die Beschreibung liefert in der Regel Mittel zur Identifizierung der neuen Art, die nicht allein auf morphologischen Merkmalen beruhen muss [ 121 ] (siehe kryptische Arten ). Sie dient der Unterscheidung von anderen, bereits beschriebenen, verwandten oder verwechselbaren Arten und liefert einen gültig publizierten Namen (in der Botanik) bzw. einen verfügbaren Namen (in der Zoologie), sobald die Publikation angenommen wird. Das Typusmaterial wird üblicherweise in einer permanenten Sammlung aufbewahrt, oft in der Forschungssammlung eines großen Museums oder einer Universität, was eine unabhängige Überprüfung und den Vergleich von Exemplaren ermöglicht. [ 122 ] [ 123 ] [ 124 ] Die Beschreiber neuer Arten werden gebeten, Namen zu wählen, die, gemäß dem Internationalen Code der Zoologischen Nomenklatur , „angemessen, kompakt, wohlklingend, einprägsam und nicht anstößig“ sind. [ 125 ]
Abkürzungen
In Büchern und Artikeln wird die Artbezeichnung manchmal absichtlich nicht vollständig angegeben. Stattdessen wird im Singular die Abkürzung „ sp. “ oder im Plural „ spp. “ verwendet (z. B. „ Canis sp.“). Dies kommt häufig vor, wenn Autoren zwar sicher sind, dass einige Individuen zu einer bestimmten Gattung gehören, aber nicht genau wissen, zu welcher Art, wie es in der Paläontologie üblich ist . [ 126 ]
Autoren verwenden „spp.“ auch als Kurzform, um auszudrücken, dass etwas auf viele, aber nicht alle Arten einer Gattung zutrifft. Wenn Wissenschaftler meinen, dass etwas auf alle Arten einer Gattung zutrifft, verwenden sie den Gattungsnamen ohne Artnamen oder Epitheton. Gattungs- und Artnamen werden üblicherweise kursiv gedruckt . Abkürzungen wie „sp.“ sollten jedoch nicht kursiv gesetzt werden. [ 126 ]
Ist die Artzugehörigkeit unklar, kann ein Spezialist vor dem Epitheton „cf.“ verwenden, um anzuzeigen, dass eine Bestätigung erforderlich ist. Die Abkürzungen „nr.“ (nahe) oder „aff.“ (affin) können verwendet werden, wenn die Artzugehörigkeit unklar ist, die Art aber der nachfolgend genannten Art ähnlich zu sein scheint. [ 126 ]
Identifikationscodes
Mit dem Aufkommen von Online-Datenbanken wurden Codes entwickelt, um Identifikatoren für bereits definierte Arten bereitzustellen, darunter:
- Das National Center for Biotechnology Information (NCBI) verwendet eine numerische „Taxid“ oder Taxonomie-Kennung , eine „stabile eindeutige Kennung“, z. B. ist die Taxid von Homo sapiens 9606. [ 127 ]
- Die Kyoto Encyclopedia of Genes and Genomes (KEGG) verwendet für eine begrenzte Anzahl von Organismen einen drei- oder vierstelligen Code; in diesem Code wird beispielsweise H. sapiens einfach als hsa bezeichnet . [ 128 ]
- UniProt verwendet eine „Organismen-Mnemonik“ von höchstens fünf alphanumerischen Zeichen, z. B. HUMAN für H. sapiens . [ 129 ]
- Das Integrated Taxonomic Information System (ITIS) vergibt für jede Art eine eindeutige Nummer. Die LSID für Homo sapiens lautet urn:lsid:catalogueoflife.org:taxon:4da6736d-d35f-11e6-9d3f-bc764e092680:col20170225 . [ 130 ]
Zusammenfassen und Aufteilen
Die Benennung einer bestimmten Art, einschließlich der Gattung (und höherer Taxa), in die sie eingeordnet wird, ist eine Hypothese über die evolutionären Verwandtschaftsverhältnisse und die Unterscheidbarkeit dieser Organismengruppe. Mit zunehmenden Erkenntnissen kann diese Hypothese bestätigt oder widerlegt werden. Manchmal, insbesondere in der Vergangenheit, als die Kommunikation schwieriger war, gaben isoliert arbeitende Taxonomen einzelnen Organismen zwei verschiedene Namen, die sich später als dieselbe Art herausstellten. Wenn sich herausstellt, dass zwei Artnamen auf dieselbe Art zutreffen, hat der ältere Artname Vorrang und wird in der Regel beibehalten, während der neuere Name als jüngeres Synonym gilt – ein Vorgang, der als Synonymie bezeichnet wird . Die Aufteilung eines Taxons in mehrere, oft neue Taxa wird als Aufspaltung bezeichnet . Taxonomen werden von ihren Kollegen je nach ihrer persönlichen Herangehensweise an die Erkennung von Unterschieden oder Gemeinsamkeiten zwischen Organismen oft als „Lumper“ oder „Splitter“ bezeichnet. [ 131 ] [ 132 ] [ 126 ] Die Abgrenzung von Taxa, die als taxonomische Entscheidung im Ermessen der jeweiligen Spezialisten gilt, ist – im Gegensatz zum PhyloCode und entgegen der Praxis in einigen anderen Bereichen, in denen die Definitionen technischer Begriffe wie geochronologischer Einheiten und geopolitischer Einheiten explizit festgelegt sind – nicht durch die Codes der zoologischen oder botanischen Nomenklatur geregelt. [ 133 ] [ 99 ]
Weites und enges Sinnesverständnis
Die Nomenklaturregeln für die Benennung von Arten, darunter die ICZN für Tiere und die ICN für Pflanzen, legen keine Regeln für die Abgrenzung von Arten fest. Forschung kann die Abgrenzung, auch Zirkumskription genannt, aufgrund neuer Erkenntnisse verändern. Arten müssen dann gegebenenfalls anhand der verwendeten Abgrenzungsdefinitionen unterschieden werden. In solchen Fällen können die Namen mit „ sensu stricto “ („im engeren Sinne“) qualifiziert werden, um die Verwendung in der vom Autor – beispielsweise dem Benannten – angegebenen Bedeutung zu kennzeichnen. Das Antonym „ sensu lato “ („im weiteren Sinne“) bezeichnet hingegen eine breitere Verwendung, die beispielsweise auch andere Unterarten einschließt . Weitere Abkürzungen wie „auct.“ („Autor“) und Zusätze wie „non.“ („nicht“) können verwendet werden, um die Bedeutung, in der die jeweiligen Autoren die Art abgegrenzt oder beschrieben haben, weiter zu verdeutlichen. [ 126 ] [ 134 ] [ 135 ]
Ändern
Arten unterliegen Veränderungen, sei es durch die Entstehung neuer Arten [ 136 ] , den Austausch von Genen mit anderen Arten [ 137 ] , die Verschmelzung mit anderen Arten oder durch ihr Aussterben [ 138 ] .
Artbildung
Der evolutionäre Prozess, durch den sich biologische Populationen sexuell fortpflanzender Organismen zu eigenständigen oder reproduktiv isolierten Arten entwickeln, wird als Artbildung bezeichnet . [ 139 ] [ 140 ] Charles Darwin beschrieb als Erster die Rolle der natürlichen Selektion bei der Artbildung in seinem 1859 erschienenen Buch „Die Entstehung der Arten“ . [ 141 ] Artbildung hängt von einem gewissen Maß an reproduktiver Isolation , einem reduzierten Genfluss, ab. Dies tritt am einfachsten bei allopatrischer Artbildung auf, wo Populationen geografisch getrennt sind und sich durch die Anhäufung von Mutationen allmählich auseinanderentwickeln können. Reproduktive Isolation wird durch Hybridisierung bedroht, diese kann jedoch selektiert werden, sobald zwei Populationen inkompatible Allele desselben Gens aufweisen, wie im Bateson-Dobzhansky-Muller-Modell beschrieben . [ 136 ] Ein anderer Mechanismus, die phylogenetische Artbildung, beinhaltet die allmähliche Entwicklung einer Abstammungslinie zu einer neuen und eigenständigen Form (einer Chronospezies ), ohne dass sich die Anzahl der resultierenden Arten erhöht. [ 142 ]
Austausch von Genen zwischen Arten

Der horizontale Gentransfer zwischen Organismen verschiedener Arten, sei es durch Hybridisierung , Antigen-Shift oder Reassortierung , ist mitunter eine wichtige Quelle genetischer Variation. Viren können Gene zwischen Arten übertragen. Bakterien können Plasmide mit Bakterien anderer Arten austauschen, darunter auch mit scheinbar entfernt verwandten Arten aus verschiedenen phylogenetischen Domänen . Dies erschwert die Analyse ihrer Verwandtschaftsverhältnisse und schwächt das Konzept der Bakterienart. [ 143 ] [ 91 ] [ 144 ] [ 137 ]
Louis-Marie Bobay und Howard Ochman schlagen auf Grundlage der Genomanalyse zahlreicher Bakterienarten vor, dass diese häufig in „Gemeinschaften, die regelmäßig Gene austauschen“, eingeteilt werden können, ähnlich wie Pflanzen und Tiere in reproduktiv isolierte Populationen unterteilt werden können. Bakterien könnten demnach Arten bilden, analog zu Mayrs biologischem Artkonzept, bestehend aus sich asexuell fortpflanzenden Populationen, die Gene durch homologe Rekombination austauschen. [ 145 ] [ 146 ]
Aussterben
Eine Art gilt als ausgestorben, wenn das letzte Individuum dieser Art stirbt, doch kann sie bereits lange vorher funktionell ausgestorben sein . Schätzungsweise über 99 Prozent aller jemals auf der Erde existierenden Arten, etwa fünf Milliarden, sind heute ausgestorben. Einige davon fielen Massenaussterben zum Opfer , wie beispielsweise jenen an den Enden des Ordoviziums , Devons , Perms , der Trias und der Kreidezeit . Massenaussterben hatten vielfältige Ursachen, darunter Vulkanismus , Klimawandel und Veränderungen der ozeanischen und atmosphärischen Chemie, und hatten wiederum gravierende Auswirkungen auf die Ökologie, die Atmosphäre, die Landoberfläche und die Gewässer der Erde. [ 147 ] [ 148 ] Eine weitere Form des Aussterbens ist die Verschmelzung einer Art mit einer anderen durch Hybridisierung. Die daraus entstehende Art wird als „ Kompilospezies “ bezeichnet. [ 149 ]
Praktische Auswirkungen
Biologen und Naturschützer müssen im Rahmen ihrer Arbeit Organismen kategorisieren und identifizieren. Schwierigkeiten bei der zuverlässigen Zuordnung von Organismen zu einer Art gefährden die Validität von Forschungsergebnissen und machen beispielsweise Messungen der Häufigkeit einer Art in einem Ökosystem irrelevant. Untersuchungen, die ein phylogenetisches Artkonzept verwenden, ergaben 48 % mehr Arten und dementsprechend kleinere Populationen und Verbreitungsgebiete als solche, die nicht-phylogenetische Konzepte verwenden. Dies wurde als „taxonomische Inflation“ bezeichnet [ 150 ] , die einen falschen Eindruck von Veränderungen in der Anzahl gefährdeter Arten erwecken und daraus resultierende politische und praktische Schwierigkeiten nach sich ziehen kann. [ 151 ] [ 152 ] Einige Beobachter argumentieren, dass ein inhärenter Konflikt zwischen dem Wunsch, die Prozesse der Artbildung zu verstehen, und der Notwendigkeit der Identifizierung und Kategorisierung besteht. [ 152 ]
Naturschutzgesetze vieler Länder enthalten spezielle Bestimmungen, um das Aussterben von Arten zu verhindern. Hybridisierungszonen zwischen zwei Arten, einer geschützten und einer nicht geschützten, haben mitunter zu Konflikten zwischen Gesetzgebern, Landbesitzern und Naturschützern geführt. Ein klassisches Beispiel in Nordamerika ist der geschützte Fleckenkauz , der sich mit dem nicht geschützten Kalifornischen Fleckenkauz und dem Streifenkauz hybridisiert ; dies hat zu juristischen Debatten geführt. [ 153 ]
Es wurde argumentiert, dass die bloße Zählung von Arten kein valides Maß für die Biodiversität darstellt, da diese nicht vergleichbar sind ; alternative Maße für die phylogenetische Biodiversität wurden vorgeschlagen. [ 154 ] [ 95 ] [ 155 ]
Geschichte
Klassische Formen
In seiner Biologie verwendete Aristoteles den Begriff γένος (génos) für eine Art, wie etwa einen Vogel oder Fisch , und εἶδος (eidos) für eine spezifische Form innerhalb einer Art, wie beispielsweise (bei den Vögeln) Kranich , Adler , Krähe oder Spatz . Diese Begriffe wurden ins Lateinische mit „Gattung“ und „Art“ übersetzt, entsprechen aber nicht den gleichnamigen Begriffen der Linnéschen Taxonomie . Heute bilden die Vögel eine Klasse , die Kraniche eine Familie und die Krähen eine Gattung . Eine Art zeichnete sich durch ihre Merkmale aus ; so hat beispielsweise ein Vogel Federn, einen Schnabel, Flügel, ein hartschaliges Ei und warmes Blut. Eine Form hingegen war allen ihren Mitgliedern gemeinsam, wobei die Jungtiere etwaige Variationen von ihren Eltern erbten. Aristoteles glaubte, dass alle Arten und Formen unveränderlich und eindeutig seien. Wichtiger noch: In Aristoteles’ Werken sind die Begriffe γένος (génos) und εἶδος (eidos) relativ; ein Taxon, das in einem bestimmten Kontext als eidos gilt, kann in einem anderen Kontext als génos betrachtet und weiter in eide (Plural von eidos) unterteilt werden. [ 156 ] [ 157 ] Sein Ansatz blieb bis zur Renaissance einflussreich [ 158 ] und ist es in geringerem Maße auch heute noch . [ 159 ]
Feste Arten


Als Beobachter in der Frühen Neuzeit begannen, Systeme zur Einteilung von Lebewesen zu entwickeln, ordneten sie jede Tier- oder Pflanzenart in einen Kontext ein. Viele dieser frühen Abgrenzungsschemata würden heute als willkürlich gelten: Dazu gehörten beispielsweise Verwandtschaftsverhältnisse, die auf der Farbe (alle Pflanzen mit gelben Blüten) oder dem Verhalten (Schlangen, Skorpione und bestimmte beißende Ameisen) basierten. Der englische Naturforscher John Ray unternahm 1686 den ersten Versuch einer biologischen Definition von Arten, die wie folgt lautete:
Mir ist kein sichereres Kriterium zur Bestimmung von Arten eingefallen als die Unterscheidungsmerkmale, die sich bei der Vermehrung durch Samen erhalten. Daher sind alle Variationen, die bei einzelnen Individuen oder innerhalb einer Art auftreten, zufällig und nicht geeignet, eine Art zu kennzeichnen, sofern sie vom Samen ein und derselben Pflanze stammen. … Auch Tiere, die sich in bestimmten Aspekten unterscheiden, bewahren ihre Artzugehörigkeit dauerhaft; eine Art entsteht niemals aus dem Samen einer anderen und umgekehrt. [ 160 ]
Im 18. Jahrhundert klassifizierte der schwedische Wissenschaftler Carl von Linné Organismen anhand gemeinsamer physischer Merkmale und nicht allein aufgrund von Unterschieden. [ 161 ] Wie viele zeitgenössische Systematiker [ 162 ] [ 163 ] [ 164 ] entwickelte er die Idee einer taxonomischen Hierarchie , die auf beobachtbaren Merkmalen basierte und natürliche Verwandtschaftsverhältnisse widerspiegeln sollte. [ 165 ] [ 166 ] Damals herrschte jedoch noch die weitverbreitete Ansicht vor, dass es keine organische Verbindung zwischen den Arten gab (außer möglicherweise zwischen denen einer bestimmten Gattung), [ 99 ] ungeachtet ihrer Ähnlichkeit. Diese Ansicht war von der europäischen Gelehrten- und Religionsausbildung geprägt, die davon ausging, dass die Taxa von Gott geschaffen worden seien und eine aristotelische Hierarchie, die Scala naturae oder große Kette des Seins, bildeten . Unabhängig davon, ob sie als unveränderlich galt oder nicht, implizierte die Scala (eine Leiter) die Möglichkeit des Aufstiegs. [ 167 ]
Wandlungsfähigkeit
Bei der Betrachtung von Belegen für Hybridisierung erkannte Linné, dass Arten nicht unveränderlich sind und sich verändern können. Er ging jedoch nicht davon aus, dass neue Arten entstehen könnten, und vertrat die Ansicht, dass die Arten göttlich festgelegt seien und sich durch Hybridisierung oder Akklimatisierung verändern könnten. [ 168 ] Im 19. Jahrhundert verstanden Naturforscher, dass Arten ihre Form im Laufe der Zeit verändern können und dass die Erdgeschichte genügend Zeit für tiefgreifende Veränderungen bietet. Jean-Baptiste Lamarck beschrieb in seiner 1809 erschienenen Zoologischen Philosophie die Umwandlung von Arten und schlug vor, dass sich eine Art im Laufe der Zeit verändern kann – ein radikaler Bruch mit dem aristotelischen Denken. [ 169 ]
1858 lieferten Charles Darwin und Alfred Russel Wallace eine überzeugende Darstellung der Evolution und der Entstehung neuer Arten. [ 170 ] Darwin argumentierte, dass sich Populationen und nicht Individuen durch natürliche Selektion aus natürlich vorkommender Variation zwischen Individuen entwickelten. [ 171 ] Dies erforderte eine neue Definition von Art. Darwin schlussfolgerte, dass Arten das sind, was sie zu sein scheinen: Ideen, die vorläufig nützlich sind, um Gruppen interagierender Individuen zu benennen, und schrieb:
Ich betrachte den Begriff „Art“ als eine willkürliche Bezeichnung, die aus praktischen Gründen einer Gruppe von Individuen gegeben wird, die einander stark ähneln … Er unterscheidet sich im Wesentlichen nicht von dem Begriff „Varietät“, der für weniger ausgeprägte und stärker schwankende Formen verwendet wird. Auch der Begriff „Varietät“ wird, im Vergleich zu bloßen individuellen Unterschieden, willkürlich und aus praktischen Gründen angewendet. [ 172 ]
Siehe auch
- Cline
- Enzyklopädie des Lebens
- Gefährdete Arten
- Globale Biodiversität
- Listen von Tierarten
- Listen von Pflanzenarten
- Überblick über die Zoologie
- Systematik
- Artbildung
- Geschichte der Artbildung
- Pseudospezies
- Orthogenese
- Adaptive Strahlung
- Ökotyp
- Ökophänotypische Variation
- Polymorphismus
- Chronospezies
- Sympatrische Artbildung
- Parapatrische Artbildung
- Hinweise auf Artbildung durch Verstärkung
- jüngster gemeinsamer Vorfahre
- Hybride Artbildung
Referenzen
- ^ Wilson, Edward O. (3. März 2018). „Meinung: Die 8 Millionen Arten, die wir nicht kennen“ . The New York Times . ISSN 0362-4331 . Abgerufen am 25. Januar 2020 .
- ^ Borenstein, S. (2019). „UN-Bericht: Der Mensch beschleunigt das Aussterben anderer Arten“ . Associated Press .
- ^ a b Mora, Camilo; Tittensor, Derek P.; Adl, Sina; Simpson, Alastair GB; Worm, Boris (23. August 2011). „Wie viele Arten gibt es auf der Erde und im Ozean?“ . PLOS Biology . 9 (8) e1001127. doi : 10.1371/journal.pbio.1001127 . PMC 3160336 . PMID 21886479 .
- ^ a b „Artkonzepte“ . Scientific American . 20. April 2012. Archiviert vom Original am 14. März 2017. Abgerufen am 14. März 2017 .
- ^ Mallet, James (1995). „Eine Artendefinition für die moderne Synthese“. Trends in Ecology & Evolution . 10 (7): 294–299 . Bibcode : 1995TEcoE..10..294M . doi : 10.1016/0169-5347(95)90031-4 . PMID 21237047 .
- ^ Masters, JC; Spencer, HG (1989). „Warum wir ein neues genetisches Artkonzept brauchen“. Systematic Zoology . 38 (3): 270–279 . doi : 10.2307/2992287 . JSTOR 2992287 .
- ^ a b Mayden, RL (1997). „Eine Hierarchie der Artenkonzepte: Die Auflösung des Artenproblems“. In: Claridge, MF; Dawah, HA; Wilson, MR (Hrsg.). Die Einheiten der Biodiversität – Arten in der Praxis, Sonderband 54. Systematics Association.
- ^ Zachos 2016 , S. 79.
- ^ Gooders, John (1986). Kingfisher Field Guide to the Birds of Britain and Ireland . Kingfisher Books. S. 246. ISBN 978-0-86272-139-8Die
- ^ Gould, Stephen Jay (1980). „Eine Venusmuschel ist eine Venusmuschel“ . In: Der Daumen des Pandas: Weitere Betrachtungen zur Naturgeschichte . New York: W. W. Norton & Company. S. 204–213 . ISBN 978-0-393-30023-9Die
- ^ Maynard Smith, John (1989). Evolutionsgenetik . Oxford University Press. S. 273–274 . ISBN 978-0-19-854215-5Die
- ^ Ruse, Michael (1969). „Definitionen von Arten in der Biologie“. The British Journal for the Philosophy of Science . 20 (2): 97–119 . doi : 10.1093/ bjps /20.2.97 . JSTOR 686173. S2CID 121580839 .
- ^ Lewin, Ralph A. (1981). „Drei-Arten-Konzepte“. Taxon . 30 (3): 609–613 . Bibcode : 1981Taxon..30..609L . doi : 10.2307/1219942 . JSTOR 1219942 .
- ^ Claridge, Dawah & Wilson 1997 , S. 404
- ^ Ghiselin, Michael T. (1974). „Eine radikale Lösung für das Artenproblem“ . Systematic Biology . 23 (4): 536–544 . doi : 10.1093/sysbio/23.4.536 .
- ^ Claridge et al.:408–409.
- ^ Paterson, HEH (1985). „Arten und Artbildung“. In: Vrba, ES (Hrsg.). Monographie Nr. 4: Das Erkennungskonzept der Art . Pretoria: Transvaal Museum.
- ^ a b Mallet, James (28. September 1999). „Arten, Konzepte von“ (PDF) . In: Calow, P. (Hrsg.). Enzyklopädie der Ökologie und des Umweltmanagements . Blackwell. S. 709–711 . ISBN 978-0-632-05546-3Archiviert ( PDF) vom Original am 19. Oktober 2016.
- ^ Kull, Kalevi (2016). „Das biosemiotische Konzept der Spezies“ . Biosemiotics . 9 : 61–71 . doi : 10.1007 /s12304-016-9259-2 . S2CID 18470078. Archiviert vom Original am 7. Februar 2018.
- ^ Stackebrandt, E.; Goebel, BM (1994). „Taxonomische Anmerkung: Die Rolle der DNA-DNA-Reassoziation und der 16S-rRNA-Sequenzanalyse in der gegenwärtigen Artdefinition in der Bakteriologie“ . International Journal of Systematic Bacteriology . 44 (4): 846–849 . doi : 10.1099/00207713-44-4-846 .
- ^ Stackebrandt, E.; Ebers, J. (2006). „Taxonomische Parameter neu betrachtet: Verblasste Goldstandards“ (PDF) . Microbiology Today . 33 (4): 152–155 . Archiviert (PDF) vom Original am 25. März 2018.
- ^ „Was ist DNA-Barcoding?“ . Barcode of Life. Archiviert vom Original am 1. Juli 2017. Abgerufen am 11. Oktober 2017 .
- ^ Ratnasingham, Sujeevan; Hebert, Paul DN (2007). „BOLD: Das Barcode-of-Life - Datensystem“ . Molecular Ecology Notes . 7 (3): 355–364 . doi : 10.1111/j.1471-8286.2007.01678.x . PMC 1890991. PMID 18784790 .
- ^ Stoeckle, Mark (November–Dezember 2013). „DNA-Barcoding bereit für den Durchbruch“ . GeneWatch . 26 (5). Archiviert vom Original am 3. April 2014. Abgerufen am 25. März 2018 .
- ^ DeSalle, R.; Egan, MG; Siddall, M. (2005). „Die unheilige Dreifaltigkeit: Taxonomie, Artabgrenzung und DNA-Barcoding“ . Philosophical Transactions of the Royal Society B: Biological Sciences . 360 (1462): 1905–1916 . doi : 10.1098/rstb.2005.1722 . PMC 1609226. PMID 16214748 .
- ^ Whitworth, TL; Dawson, RD; Magalon, H.; Baudry, E. (2007). „DNA-Barcoding kann Arten der Schmeißfliegengattung Protocalliphora (Diptera: Calliphoridae) nicht zuverlässig identifizieren“ . Proceedings of the Royal Society B: Biological Sciences . 274 (1619): 1731–1739 . doi : 10.1098/rspb.2007.0062 . PMC 2493573. PMID 17472911 .
- ^ Bartoš, Oldřich; Chmel, Martin; Swierczková, Iva (20. April 2024). „Die übersehene evolutionäre Dynamik der 16S rRNA revidiert ihre Rolle als „Goldstandard“ für die Identifizierung bakterieller Arten“ . Scientific Reports . 14 (1): 9067. Bibcode : 2024NatSR..14.9067B . doi : 10.1038/s41598-024-59667-3 . PMC 11032355. PMID 38643216 .
- ^ Vargas Ribera, Pablo Roberto; Kim, Nuri; Venbrux, Marc; Álvarez-Pérez, Sergio; Rediers, Hans (19. November 2024). „Evaluation von sequenzbasierten Werkzeugen zur Gewinnung weiterer Einblicke in die Positionierung rhizogetischer Agrobakterien innerhalb des Agrobacterium tumefaciens-Artenkomplexes“ . PLOS ONE . 19 (11) e0302954. Bibcode : 2024PLoSO..1902954V . doi : 10.1371/ journal.pone.0302954 . PMC 11575935. PMID 39561304 .
- ^ Manni, Mosè; Berkeley, Matthew R.; Seppey, Mathieu; Zdobnov, Evgeny M. (Dezember 2021). „BUSCO: Assessing Genomic Data Quality and Beyond“ . Current Protocols . 1 (12) e323. doi : 10.1002/cpz1.323 . PMID 34936221 .
- Sussfeld , D.; Lannes, R.; Corel, E.; Bernard, G.; Martin, P.; Bapteste, E.; Pelletier, E.; Lopez, P. (11. Juni 2025). „Neue Gruppen hochgradig divergenter Proteine in Familien, die so alt sind wie das zelluläre Leben selbst , mit wichtigen biologischen Funktionen im Ozean“ . Environmental Microbiome . 20 (1): 65. Bibcode : 2025EMicb..20...65S . doi : 10.1186/s40793-025-00697-3 . PMC 12153180. PMID 40500757 .
- ^ Parks, DH; Chuvochina, M; Rinke, C; Mussig, AJ; Chaumeil, PA; Hugenholtz, P (7. Januar 2022). „GTDB: Eine fortlaufende Erfassung der bakteriellen und archaischen Diversität mittels einer phylogenetisch konsistenten, rangnormalisierten und vollständigen genombasierten Taxonomie“ . Nucleic Acids Research . 50 (D1): D785– D794 . doi : 10.1093/nar/gkab776 . PMC 8728215. PMID 34520557 .
- Land , Miriam; Hauser, Loren; Jun, Se-Ran; Nookaew, Intawat; Leuze, Michael R.; Ahn, Tae-Hyuk; Karpinets, Tatiana; Lund, Ole; Kora, Guruprased; Wassenaar, Trudy; Poudel, Suresh; Ussery, David W. (2015). „ Einblicke aus 20 Jahren bakterieller Genomsequenzierung“ . Functional & Integrative Genomics . 15 (2): 141–161 . doi : 10.1007/s10142-015-0433-4 . PMC 4361730. PMID 25722247 .
 Dieser Artikel enthält Zitate aus dieser Quelle, die unter der Creative Commons Attribution 4.0 International (CC BY 4.0) Lizenz verfügbar ist. Archiviert am 16. Oktober 2017 in der Wayback Machine .
- ^ Parks, DH; Chuvochina, M.; Chaumeil, PA; Rinke, C.; Mussig, AJ; Hugenholtz, P. (September 2020). „Eine vollständige Domänen-zu-Arten-Taxonomie für Bakterien und Archaeen“ . Nature Biotechnology . 38 (9): 1079–1086 . bioRxiv 10.1101/771964 . doi : 10.1038 / s41587-020-0501-8 . PMID 32341564. S2CID 216560589 .
- ^ Rodriguez-R, Luis M.; Jain, Chirag; Conrad, Roth E.; Aluru, Srinivas; Konstantinidis, Konstantinos T. (7. Juli 2021). „Antwort auf: „Neubewertung der Belege für eine universelle genetische Grenze zwischen mikrobiellen Arten“" . Nature Communications . 12 (1): 4060. Bibcode : 2021NatCo..12.4060R . doi : 10.1038/s41467-021-24129-1 . PMC 8263725 . PMID 34234115 .
- ^ a b c Nixon, KC; Wheeler, QD (1990). „Eine Erweiterung des phylogenetischen Artenkonzepts“ . Cladistics . 6 (3): 211–223 . doi : 10.1111/j.1096-0031.1990.tb00541.x . S2CID 84095773 .
- ^ Wheeler, Quentin D.; Platnick, Norman I. 2000. Das phylogenetische Artkonzept (sensu Wheeler & Platnick). In: Wheeler & Meier 2000 , S. 55–69
- ^ Giraud, T.; Refrégier, G.; Le Gac, M.; de Vienne, DM; Hood, ME (2008). „Artbildung bei Pilzen“. Fungal Genetics and Biology . 45 (6): 791–802 . doi : 10.1016/j.fgb.2008.02.001 . PMID 18346919 .
- Bernardo , J. (2011). „Eine kritische Bewertung der Bedeutung und Diagnostizierbarkeit kryptischer evolutionärer Diversität und ihrer Implikationen für den Naturschutz angesichts des Klimawandels“. In: Hodkinson, T.; Jones, M.; Waldren, S.; Parnell, J. (Hrsg.). Klimawandel, Ökologie und Systematik. Sonderreihe der Systematics Association . Cambridge University Press. S. 380–438 . ISBN 978-0-521-76609-8DieDie
- ^ Brower, Andrew VZ und Randall T. Schuh. (2021). Biologische Systematik: Prinzipien und Anwendungen. Cornell University Press, Ithaca, NY.
- ^ a b Giraud, T.; Refrégier, G.; Le Gac, M.; de Vienne, DM; Hood, ME (2008). „Speciation in Fungi“. Fungal Genetics and Biology . 45 (6): 791–802 . doi : 10.1016/j.fgb.2008.02.001 . PMID 18346919 .
- ^ a b c d Taylor, JW; Jacobson, DJ; Kroken, S.; Kasuga, T.; Geiser, DM; Hibbett, DS; Fisher, MC (2000). „Phylogenetische Artenerkennung und Artkonzepte bei Pilzen“. Fungal Genetics and Biology . 31 (1): 21–32 . doi : 10.1006 / fgbi.2000.1228 . PMID 11118132. S2CID 2551424 .
- ^ Taylor, JW; Turner, E.; Townsend, JP; Dettman, JR; Jacobson, D. (2006). „Eukaryotische Mikroben, Artenerkennung und die geographischen Grenzen von Arten: Beispiele aus dem Reich der Pilze“ . Philosophical Transactions of the Royal Society B: Biological Sciences . 361 (1475): 1947–1963 . doi : 10.1098 / rstb.2006.1923 . PMC 1764934. PMID 17062413 .
- ^ Zachos 2016 , S. 91–92.
- ^ Groves, C.; Grubb, P. 2011. Ungulate taxonomy. Baltimore, MD: The Johns Hopkins University Press.
- ^ Heller, R.; Frandsen, P.; Lorenzen, ED; Siegismund, HR (2013). „Gibt es wirklich doppelt so viele Rinderarten wie bisher angenommen?“ Systematic Biology . 62 (3): 490–493 . doi : 10.1093/sysbio/syt004 . hdl : 10400.7/566 . PMID 23362112 .
- ^ Cotterill, F.; Taylor, P.; Gippoliti, S.; et al. (2014). „Warum ein Jahrhundert Phänetik genug ist: Antwort auf ‚Gibt es wirklich doppelt so viele Horntierarten wie wir dachten?‘“" . Systematic Biology . 63 (5): 819– 832. doi : 10.1093/sysbio/syu003 . PMID 24415680 .
- ^ Laporte, LOF (1994). „ Simpson on species“. Journal of the History of Biology . 27 (1): 141–159 . doi : 10.1007/BF01058629 . PMID 11639257. S2CID 34975382 .
- ^ Wheeler & Meier 2000 , S. 70–92, 146–160, 198–208
- ^ de Queiroz, Kevin (1998). „Das allgemeine Abstammungskonzept der Arten, Artkriterien und der Prozess der Artbildung“. In: DJ Howard; SH Berlocher (Hrsg.). Endlose Formen: Arten und Artbildung . Oxford University Press. S. 57–75 .
- ^ Ridley, Mark . „Die Idee der Arten“. Evolution (2. Aufl.). Blackwell Science. S. 719. ISBN 978-0-86542-495-1Die
- ^ Baker, Robert J.; Bradley, Robert D. (2006). „Artbildung bei Säugetieren und das genetische Artkonzept“ . Journal of Mammalogy . 87 (4): 643–662 . doi : 10.1644/06-MAMM-F- 038R2.1 . PMC 2771874. PMID 19890476 .
- ^ Baker, Robert J.; Bradley, Robert D. (2006). „Artbildung bei Säugetieren und das genetische Artkonzept“ . Journal of Mammalogy . 87 (4): 643–662 . doi : 10.1644/06-MAMM-F- 038R2.1 . PMC 2771874. PMID 19890476 .
- ^ Regierung von Kanada. Komitee für den Status gefährdeter Wildtiere in Kanada. „COSEWIC-Bewertungsprozess und -Kriterien“ . Cosepac.gc.ca. Archiviert vom Original am 12. April 2015. Abgerufen am 7. April 2015 .
- ^ DeWeerdt, Sarah (29. Juli 2002). „Was ist wirklich eine evolutionär bedeutsame Einheit?“ . Universität von Washington. Archiviert vom Original am 5. Februar 2017. Abgerufen am 1. Dezember 2016 .
- ^ de Buffrénil, Vivian; de Ricqlès, Armand J; Zylberberg, Louise; Padian, Kevin; Laurin, Michel; Quilhac, Alexandra (2021). Histologie und Paläohistologie des Wirbeltierskeletts . Boca Raton, FL: CRC Press. S. xii + 825. ISBN 978-1-351-18957-6Die
- ^ „Chronospecies“ . Oxford Reference. Archiviert vom Original am 1. Oktober 2014. Abgerufen am 12. Januar 2018 .
- ^ Carr, Steven M. (2005). „Evolutionäre Arten und Chronospezies“ . Memorial University Newfoundland and Labrador. Archiviert vom Original am 10. März 2016. Abgerufen am 12. Januar 2018 .
- ^ Dzik, J. (1985). „Typologische versus populationsbiologische Konzepte von Chronospezies: Implikationen für die Ammoniten-Biostratigraphie“ (PDF) . Acta Palaeontologica Polonica . 30 ( 1–2 ): 71–92 . Archiviert (PDF) vom Original am 13. März 2017.
- ^ O’Brien, Michael J.; Lyman, R. Lee (2007). Anwendung der Evolutionsarchäologie: Ein systematischer Ansatz . Springer. S. 146–149 . ISBN 978-0-306-47468-2Archiviert vom Original am 7. Februar 2018 .
- ^ Van Regenmortel, Marc HV (2010). „Logische Rätsel und wissenschaftliche Kontroversen: Die Natur von Arten, Viren und lebenden Organismen“. Systematic and Applied Microbiology . 33 (1): 1–6 . Bibcode : 2010SyApM..33....1V . doi : 10.1016/j.syapm.2009.11.001 . PMID 20005655 .
- ^ van Nimwegen, Erik; Crutchfield, James P.; Huynen, Martijn (August 1999). „Neutrale Entwicklung der Mutationsrobustheit“ . PNAS . 96 (17): 9716–9720 . arXiv : adap-org/9903006 . Bibcode : 1999PNAS...96.9716V . doi : 10.1073/pnas.96.17.9716 . PMC 22276 . PMID 10449760 .
- ^ Wilke, Claus O.; Wang, Jia Lan; Ofria, Charles; Lenski, Richard E.; Adami, Christoph (2001). „ Evolution digitaler Organismen bei hohen Mutationsraten führt zum Überleben der flachsten“ (PDF) . Nature . 412 (6844): 331–333 . Bibcode : 2001Natur.412..331W . doi : 10.1038/35085569 . PMID 11460163. S2CID 1482925 .
- Elena , SF; Agudelo-Romero, P.; Carrasco, P.; et al. (2008). „Experimentelle Evolution pflanzlicher RNA-Viren“ . Heredity . 100 ( 5): 478–483 . Bibcode : 2008Hered.100..478E . doi : 10.1038/sj.hdy.6801088 . PMC 7094686. PMID 18253158 .
- ^King, Andrew M.Q.; Lefkowitz, E.; Adams, M. J.; Carstens, E. B. (2012). Virus Taxonomy Classification and Nomenclature of Viruses: Ninth Report of the International Committee on Taxonomy of Viruses. Elsevier. ISBN 978-0-12-384684-6. Archived from the original on 10 December 2017. Retrieved 13 April 2017.
- ^Fauquet, C. M.; Fargette, D. (2005). "International Committee on Taxonomy of Viruses and the 3,142 unassigned species". Virology Journal. 2 64. doi:10.1186/1743-422X-2-64. PMC 1208960. PMID 16105179.
- ^Gibbs, A. J. (2013). "Viral taxonomy needs a spring clean; its exploration era is over". Virology Journal. 10 254. doi:10.1186/1743-422X-10-254. PMC 3751428. PMID 23938184.
- ^Mayr, Ernst (1942). Systematics and the Origin of Species. New York: Columbia University Press.
- ^Wheeler, pp. 17–29
- ^ abcdde Queiroz, K. (2005). "Ernst Mayr and the modern concept of species". PNAS. 102 (Supplement 1): 6600–6607. Bibcode:2005PNAS..102.6600D. doi:10.1073/pnas.0502030102. PMC 1131873. PMID 15851674.
- ^Hopf, F. A.; Hopf, F. W. (1985). "The role of the Allee effect on species packing". Theoretical Population Biology. 27 (1): 27–50. Bibcode:1985TPBio..27...27H. doi:10.1016/0040-5809(85)90014-0.
- ^Bernstein, H.; Byerly, H. C.; Hopf, F. A.; Michod, R.E. (1985). "Sex and the emergence of species". Journal of Theoretical Biology. 117 (4): 665–690. Bibcode:1985JThBi.117..665B. doi:10.1016/S0022-5193(85)80246-0. PMID 4094459.
- ^Bernstein, Carol; Bernstein, Harris (1991). Aging, sex, and DNA repair. Boston: Academic Press. ISBN 978-0-12-092860-6.
- ^Michod, Richard E. (1995). Eros and Evolution: A Natural Philosophy of Sex. Addison-Wesley. ISBN 978-0-201-44232-8.
- ^Pshenichnov, Andrei (2019). "The Renewing Species, General Population-Genetic Explanation of Species Phenomenon for Syngamic and Agamic Species". Biology Bulletin Reviews. 9 (5): 385–392 – via Pleiades Publishing, Ltd.
- ^ abTempleton, A. R. (1989). "The meaning of species and speciation: A genetic perspective". In Otte, D.; Endler, J. A. (eds.). Speciation and its Consequences. Sinauer Associates. pp. 3–27.
- ^Hanage, William P. (2013), "Fuzzy species revisited", BMC Biology, 11 (41) 41, doi:10.1186/1741-7007-11-41, PMC 3626887, PMID 23587266
- ^Koch, H. (2010). "Combining morphology and DNA barcoding resolves the taxonomy of Western Malagasy Liotrigona Moure, 1961"(PDF). African Invertebrates. 51 (2): 413–421. doi:10.5733/afin.051.0210. Archived(PDF) from the original on 1 December 2016.
- ^De Queiroz, K. (2007). "Species concepts and species delimitation". Systematic Biology. 56 (6): 879–886. doi:10.1080/10635150701701083. PMID 18027281.
- ^Fraser, C.; Alm, E. J.; Polz, M. F.; Spratt, B. G.; Hanage, W. P. (2009). "The bacterial species challenge: making sense of genetic and ecological diversity". Science. 323 (5915): 741–746. Bibcode:2009Sci...323..741F. doi:10.1126/science.1159388. PMID 19197054. S2CID 15763831.

- ^. On the Origin of Species (1859) – via Wikisource.
- ^"Darwin 1859 Chapter II, p. 59". Darwin-online.org.uk. Archived from the original on 21 October 2012. Retrieved 25 November 2012.
- ^ Gevers, Dirk; Cohan, Frederick M.; Lawrence, Jeffrey G.; Spratt, Brian G.; Coenye, Tom; Feil, Edward J.; Stackebrandt, Erko; De Peer, Yves Van; Vandamme, Peter; Thompson, Fabiano L.; Schaukeln, Jean (2005). „Meinung: Neubewertung prokaryotischer Arten“ . Nature Reviews Mikrobiologie . 3 (9): 733– 9. doi : 10.1038/nrmicro1236 . PMID 16138101 . S2CID 41706247 .
- ^ Edward G. Reekie; Fakhri A. Bazzaz (2005). Reproduktionsallokation bei Pflanzen . Academic Press. S. 99. ISBN 978-0-12-088386-8Archiviert vom Original am 17. Juni 2013 .
- ^ Rosselló-Mora, Ramon; Amann, Rudolf (Januar 2001). „Das Artkonzept für Prokaryoten“ . FEMS Microbiology Reviews . 25 (1): 39–67 . doi : 10.1111/j.1574-6976.2001.tb00571.x . PMID 11152940 .
- ^ Andino, Raul; Domingo, Esteban (2015). „Virale Quasispezies“ . Virologie . 479– 480: 46– 51. doi : 10.1016/j.virol.2015.03.022 . PMC 4826558 . PMID 25824477 .
- ^ Biebricher, CK; Eigen, M. (2006). „Was ist eine Quasispezies?“. Quasispezies: Konzept und Implikationen für die Virologie . Aktuelle Themen der Mikrobiologie und Immunologie. Band 299. Springer. S. 1–31 . doi : 10.1007/3-540-26397-7_1 . ISBN 978-3-540-26397-5PMID 16568894 .
- ^ Teueman, AE (2009). „Das Artkonzept in der Paläontologie“ . Geological Magazine . 61 (8): 355–360 . Bibcode : 1924GeoM...61..355T . doi : 10.1017/S001675680008660X . S2CID 84339122. Archiviert vom Original am 14. März 2017 .
- ^ Zachos 2016 , S. 101.
- ^ Zachos 2016 , S. 156–157.
- ^Lahr, D. J.; Laughinghouse, H. D.; Oliverio, A. M.; Gao, F.; Katz, L. A. (2014). "How discordant morphological and molecular evolution among microorganisms can revise our notions of biodiversity on Earth". BioEssays. 36 (10): 950–959. doi:10.1002/bies.201400056. PMC 4288574. PMID 25156897.
- ^ abcMelcher, Ulrich (2001). "Molecular genetics: Horizontal gene transfer". Oklahoma State University. Archived from the original on 4 March 2016.
- ^Bapteste, E.; et al. (May 2005). "Do orthologous gene phylogenies really support tree-thinking?". BMC Evolutionary Biology. 5 (33) 33. Bibcode:2005BMCEE...5...33B. doi:10.1186/1471-2148-5-33. PMC 1156881. PMID 15913459.
- ^Williamson, David I. (2003). The Origins of Larvae. Kluwer. ISBN 978-1-4020-1514-4.
- ^Mishler, Brent D. (2022). "Ecology, evolution, and systematics in a post-species world". In Wilkins, John S.; Zachos, Frank E.; Pavlinov, Igor (eds.). Species problems and beyond: contemporary issues in philosophy and practice. Boca Raton: CRC Press, Taylor & Francis Group. ISBN 978-0-367-85560-4. OCLC 1273727987.
- ^ abMishler, Brent D. (1999). "Getting Rid of Species?". In Wilson, R. (ed.). Species: New Interdisciplinary Essays(PDF). MIT Press. pp. 307–315. ISBN 978-0-262-73123-2. Archived(PDF) from the original on 10 January 2018.
- ^Salzburger, Walter (November 2018). "Understanding explosive diversification through cichlid fish genomics". Nature Reviews Genetics. 19 (11): 705–717. doi:10.1038/s41576-018-0043-9. ISSN 1471-0064. PMID 30111830. S2CID 52008986.
- ^ a b c Wilkins, John S. (2022). „Die gute Spezies“. In: Wilkins, John S.; Zachos, Frank E.; Pavlinov, Igor (Hrsg.). Speziesprobleme und darüber hinaus: Aktuelle Fragen in Philosophie und Praxis . Boca Raton: CRC Press , Taylor & Francis Group. ISBN 978-0-367-85560-4OCLC 1273727987 .
- ^ Mishler, Brent D .; Wilkins, John S. (2018). „Die Jagd nach dem SNaRC: Eine sarkastische Lösung für das Artenproblem“ . Philosophy, Theory, and Practice in Biology . 10 (20220112). Universitätsbibliothek Michigan . doi : 10.3998/ptpbio.16039257.0010.001 . hdl : 2027/spo.16039257.0010.001 .
- ^ a b c d Laurin, Michel (3. August 2023). The Advent of PhyloCode: The Continuing Evolution of Biological Nomenclature . CRC Press . S. xv + 209. doi : 10.1201/9781003092827 . ISBN 978-1-003-09282-7Die
- ^ Kitcher, Philip (Juni 1984). „Arten“. Philosophy of Science . 51 (2): 308–333 . doi : 10.1086/289182 . S2CID 224836299. Ich verteidige eine Auffassung der Artenkategorie, den
pluralistischen Realismus, der den Erkenntnissen vieler verschiedener Gruppen von Systematikern gerecht werden soll.
- ^ Pleijel, F.; Rouse, GW (22. März 2000). „Die kleinste taxonomische Einheit: ein neues taxonomisches Konzept für die Biologie“ . Proceedings of the Royal Society of London. Series B: Biological Sciences . 267 (1443): 627–630 . Bibcode : 2000PBioS.267..627P . doi : 10.1098 / rspb.2000.1048 . ISSN 0962-8452 . PMC 1690571. PMID 10787169 .
- Heywood , VH (1962). „Das ‚Artenaggregat‘ in Theorie und Praxis“. In: Heywood, VH; Löve, Á. (Hrsg.). Symposium über Biosystematik, Montreal, Oktober 1962. S. 26–36 .
- ^ Pimentel, David (2014). Biologische Invasionen: Ökonomische und ökologische Kosten gebietsfremder Pflanzen-, Tier- und Mikrobenarten . CRC Press. S. 92. ISBN 978-1-4200-4166-8Archiviert vom Original am 7. Februar 2018 .
- ^ Jarvis, CE (1992). „Seventy-Two Proposals for the Conservation of Types of Selected Linnaean Generic Names, the Report of Subcommittee 3C on the Lectotypification of Linnaean Generic Names“. Taxon . 41 (3): 552–583 . Bibcode : 1992Taxon..41..552J . doi : 10.2307/1222833 . JSTOR 1222833 .
- Wittzell , Hakan (1999). „Chloroplasten-DNA-Variation und retikuläre Evolution in sexuellen und apomiktischen Sektionen von Löwenzahn“. Molecular Ecology . 8 (12): 2023–2035 . Bibcode : 1999MolEc...8.2023W . doi : 10.1046 / j.1365-294x.1999.00807.x . PMID 10632854. S2CID 25180463 .
- ^ Dijk, Peter J. van (2003). „Ökologische und evolutionäre Möglichkeiten der Apomixis: Erkenntnisse aus Taraxacum und Chondrilla “ . Philosophical Transactions of the Royal Society B. 358 ( 1434): 1113–1121 . doi : 10.1098 / rstb.2003.1302 . PMC 1693208. PMID 12831477 .
- ^ Mallet, James ; Beltrán, M.; Neukirchen, W.; Linares, M. (2007). „Natürliche Hybridisierung bei Heliconiinae-Schmetterlingen: Die Artgrenze als Kontinuum“ . BMC Evolutionary Biology . 7 (1): 28. Bibcode : 2007BMCEE...7...28M . doi : 10.1186 /1471-2148-7-28 . PMC 1821009. PMID 17319954 .
- Ron , Santiago; Caminer, Marcel (2014). „Systematik der Laubfrösche des Hypsiboas calcaratus und Hypsiboas fasciatus Artenkomplexes (Anura, Hylidae) mit der Beschreibung von vier neuen Arten“ . ZooKeys ( 370): 1–68 . Bibcode : 2014ZooK..370....1C . doi : 10.3897/zookeys.370.6291 . PMC 3904076. PMID 24478591 .
- ^Geml, J.; Tulloss, R. E.; Laursen, G. A.; Sasanova, N. A.; Taylor, D. L. (2008). "Evidence for strong inter- and intracontinental phylogeographic structure in Amanita muscaria, a wind-dispersed ectomycorrhizal basidiomycete". Molecular Phylogenetics and Evolution. 48 (2): 694–701. Bibcode:2008MolPE..48..694G. doi:10.1016/j.ympev.2008.04.029. PMID 18547823. S2CID 619242.
- ^"Defining a species". University of California Berkeley. Archived from the original on 13 March 2017. Retrieved 12 March 2017.
- ^Zachos 2016, p. 188.
- ^Stamos, David N. (2003). The Species Problem: Biological Species, Ontology, and the Metaphysics of Biology. Lexington Books. p. 330. ISBN 978-0-7391-6118-0. Archived from the original on 12 March 2017.
- ^Moritz, C.; Schneider, C. J.; Wake, D. B. (1992). "Evolutionary Relationships Within the Ensatina eschscholtzii Complex Confirm the Ring Species Interpretation"(PDF). Systematic Biology. 41 (3): 273–291. doi:10.1093/sysbio/41.3.273. Archived(PDF) from the original on 12 January 2018.
- ^Irwin, D. E.; Bensch, Staffan; Irwin, Jessica H.; Price, Trevor D. (2005). "Speciation by Distance in a Ring Species". Science. 307 (5708): 414–6. Bibcode:2005Sci...307..414I. doi:10.1126/science.1105201. PMID 15662011. S2CID 18347146.
- ^Martens, Jochen; Päckert, Martin (2007). "Ring species – Do they exist in birds?". Zoologischer Anzeiger. 246 (4): 315–324. Bibcode:2007ZooAn.246..315M. doi:10.1016/j.jcz.2007.07.004.
- ^ Alcaide, M.; Scordato, ESC; Price, TD; Irwin, DE (2014). „Genomische Divergenz in einem Ringartenkomplex“. Nature . 511 ( 7507): 83–85 . Bibcode : 2014Natur.511...83A . doi : 10.1038/nature13285 . hdl : 10261/101651 . PMID 24870239. S2CID 4458956 .
- ^ Liebers, Dorit; Knijff, Peter de; Helbig, Andreas J. (2004). „Der Silbermöwenkomplex ist keine Ringart“ . Proceedings of the Royal Society of London. Series B: Biological Sciences . 271 (1542): 893–901 . doi : 10.1098/rspb.2004.2679 . PMC 1691675. PMID 15255043 .
- ^ Highton, R. (1998). „Ist Ensatina eschscholtzii eine Ringart?“. Herpetologica . 54 (2): 254– 278. JSTOR 3893431 .
- ^ „Ein Wort zu Artnamen …“ Smithsonian Marine Station in Fort Pierce. Archiviert vom Original am 24. März 2017. Abgerufen am 11. März 2017 .
- ^ Hone, Dave (19. Juni 2013). „Was steckt in einem Namen? Warum wissenschaftliche Namen wichtig sind“ . The Guardian . Archiviert vom Original am 15. Februar 2017. Abgerufen am 11. März 2017 .
- ^ Lawley, Jonathan W.; Gamero-Mora, Edgar; Maronna, Maximiliano M.; Chiaverano, Luciano M.; Stampar, Sérgio N.; Hopcroft, Russell R.; Collins, Allen G.; Morandini, André C. (29. September 2022). „Morphologie ist nicht immer für die Diagnose nützlich, und das ist in Ordnung: Artenhypothesen sollten nicht an eine bestimmte Datenklasse gebunden sein. Antwort auf Brown und Gibbons (S Afr J Sci. 2022;118(9/10), Art. #12590)“ . South African Journal of Science . 118 (9/10). doi : 10.17159/sajs.2022/14495 . S2CID 252562185 .
- Ein Beispiel für die Zusammenfassung eines Artikels, in dem eine neue Art beschrieben wird, findet sich in: Wellner , S.; Lodders, N.; Kämpfer, P. (2012). „ Methylobacterium cerastii sp. nov., a novel species isolated from the leaf surface of Cerastium holosteoides “ . International Journal of Systematic and Evolutionary Microbiology . 62 (Pt 4): 917–924 . doi : 10.1099/ijs.0.030767-0 . PMID 21669927 .
- ^ Hitchcock, A. S. (1921), „Das Typenkonzept in der systematischen Botanik“ , American Journal of Botany , 8 (5): 251–255 , doi : 10.2307/2434993 , JSTOR 2434993
- ^ Nicholson, Dan H. „Botanische Nomenklatur, Typen und Standardwerke“ . Smithsonian National Museum of Natural History, Botanische Abteilung. Archiviert vom Original am 16. September 2015. Abgerufen am 17. November 2015 .
- ^ „Internationaler Code der Zoologischen Nomenklatur, Empfehlung 25C“ . Archiviert vom Original am 8. Juni 2011. Abgerufen am 18. Juni 2011 .
- ^ a b c d e Winston, Judith E. (1999). Artenbeschreibung. Praktische taxonomische Verfahren für Biologen . New York: Columbia University Press. S. 141–144 .
- ^ „Startseite – Taxonomie – NCBI“ . Ncbi.nlm.nih.gov. 19. Oktober 2012. Archiviert vom Original am 7. Februar 2018. Abgerufen am 25. November 2012 .
- ^ „KEGG-Organismen: Vollständige Genome“ . Genome.jp. Archiviert vom Original am 14. Oktober 2012. Abgerufen am 25. November 2012 .
- ^ „Taxonomie“ . Uniprot.org . Archiviert vom Original am 27. November 2012. Abgerufen am 25. November 2012 .
- ^ „ITIS: Homo sapiens“ . Catalogue of Life. Archiviert vom Original am 12. März 2017. Abgerufen am 11. März 2017 .
- ^Simpson, George Gaylord (1945). "The Principles of Classification and a Classification of Mammals". Bulletin of the American Museum of Natural History. 85: 23.
- ^Chase, Bob (2005). "Upstart Antichrist". History Workshop Journal. 60 (1): 202–206. doi:10.1093/hwj/dbi042. S2CID 201790420.
- ^Laurin, Michel (23 July 2023). "The PhyloCode: The logical outcome of millennia of evolution of biological nomenclature?"(PDF). Zoologica Scripta. 52 (6): 543–555. doi:10.1111/zsc.12625. ISSN 0300-3256. S2CID 260224728.
- ^Wilson, Philip (2016). "sensu stricto, sensu lato". AZ of tree terms. Archived from the original on 10 January 2018. Retrieved 9 January 2018.
- ^"Glossary: sensu". International Commission on Zoological Nomenclature. Archived from the original on 2 August 2017. Retrieved 9 January 2018.
- ^ abBarton, N. H. (June 2010). "What role does natural selection play in speciation?". Philosophical Transactions of the Royal Society B. 365 (1547): 1825–1840. doi:10.1098/rstb.2010.0001. PMC 2871892. PMID 20439284.
- ^ abVaux, Felix; Trewick, Steven A.; Morgan-Richards, Mary (2017). "Speciation through the looking-glass". Biological Journal of the Linnean Society. 120 (2): 480–488. doi:10.1111/bij.12872.
- ^Zachos 2016, pp. 77–96.
- ^Cook, Orator F. (30 March 1906). "Factors of species-formation". Science. 23 (587): 506–507. Bibcode:1906Sci....23..506C. doi:10.1126/science.23.587.506. PMID 17789700.
- ^Cook, Orator F. (November 1908). "Evolution Without Isolation". The American Naturalist. 42 (503): 727–731. Bibcode:1908ANat...42..727C. doi:10.1086/279001. S2CID 84565616.
- ^Via, Sara (16 June 2009). "Natural selection in action during speciation". Proc. Natl. Acad. Sci. U.S.A.106 (Suppl 1): 9939–9946. Bibcode:2009PNAS..106.9939V. doi:10.1073/pnas.0901397106. PMC 2702801. PMID 19528641.
- ^Mayr, Ernst (1982). "Speciation and Macroevolution". Evolution. 36 (6): 1119–1132. Bibcode:1982Evolu..36.1119M. doi:10.1111/j.1558-5646.1982.tb05483.x. PMID 28563569. S2CID 27401899.
- ^Pennisi, Elizabeth (2004). "Researchers Trade Insights about Gene Swapping"(PDF). Science. 334–335: 335. Archived from the original(PDF) on 18 February 2006.
- ^Zhaxybayeva, Olga; Peter Gogarten, J. (2004). "Cladogenesis, coalescence and the evolution of the three domains of life"(PDF). Trends in Genetics. 20 (4): 182–187. doi:10.1016/j.tig.2004.02.004. PMID 15041172. Archived(PDF) from the original on 26 March 2009.
- ^Venton, Danielle (2017). "Highlight: Applying the Biological Species Concept across All of Life". Genome Biology and Evolution. 9 (3): 502–503. doi:10.1093/gbe/evx045. PMC 5381533. PMID 28391326.
- ^Bobay, Louis-Marie; Ochman, Howard (2017). "Biological Species Are Universal across Life's Domains". Genome Biology and Evolution. 9 (3): 491–501. doi:10.1093/gbe/evx026. PMC 5381558. PMID 28186559.
- ^Kunin, W. E.; Gaston, Kevin, eds. (1996). The Biology of Rarity: Causes and consequences of rare–common differences. Springer. ISBN 978-0-412-63380-5. Archived from the original on 5 September 2015.
- ^Stearns, Beverly Peterson; Stearns, Stephen C. (2000). Watching, from the Edge of Extinction. New Haven, London: Yale University Press. p. preface x. ISBN 978-0-300-08469-6.
- ^Zachos 2016, p. 82.
- ^Zachos, Frank E. (2015). "Taxonomic inflation, the Phylogenetic Species Concept and lineages in the Tree of Life – a cautionary comment on species splitting". Journal of Zoological Systematics and Evolutionary Research. 53 (2): 180–184. doi:10.1111/jzs.12088.
- ^Agapow, Paul-Michael; Bininda-Emonds, Olaf R. P.; Crandall, Keith A.; Gittleman, John L.; Mace, Georgina M.; Marshall, Jonathon C.; Purvis, Andy (2004). "The Impact of Species Concept on Biodiversity Studies"(PDF). The Quarterly Review of Biology. 79 (2): 161–179. CiteSeerX 10.1.1.535.2974. doi:10.1086/383542. JSTOR 10.1086/383542. PMID 15232950. S2CID 2698838. Archived(PDF) from the original on 11 January 2018.
- ^ abHey, Jody (July 2001). "The mind of the species problem". Trends in Ecology and Evolution. 16 (7): 326–329. doi:10.1016/S0169-5347(01)02145-0. PMID 11403864.
- ^Haig, Susan M.; Allendorf, F.W. (2006). "Hybrids and Policy". In Scott, J. Michael; Goble, D. D.; Davis, Frank W. (eds.). The Endangered Species Act at Thirty, Volume 2: Conserving Biodiversity in Human-Dominated Landscapes. Washington: Island Press. pp. 150–163. Archived from the original on 7 February 2018.
- ^Faith, Daniel P. (1 January 1992). "Conservation evaluation and phylogenetic diversity". Biological Conservation. 61 (1): 1–10. Bibcode:1992BCons..61....1F. doi:10.1016/0006-3207(92)91201-3. ISSN 0006-3207.
- ^Vane-Wright, R. I.; Humphries, C. J.; Williams, P. H. (1991). "What to protect? – systematics and the agony of choice". Biological Conservation. 55 (3): 235–254. Bibcode:1991BCons..55..235V. doi:10.1016/0006-3207(91)90030-D.
- ^Pellegrin, Pierre (1986). Aristotle's classification of animals: biology and the conceptual unity of the Aristotelian corpus. Berkeley, Calif.: Univ. of California Pr. p. xiv + 235. ISBN 0-520-05502-0.
- ^Laurin, Michel; Humar, Marcel (10 January 2022). "Phylogenetic signal in characters from Aristotle's History of Animals". Comptes Rendus Palevol (in French) (1). doi:10.5852/cr-palevol2022v21a1. S2CID 245863171.
- ^Leroi, Armand Marie (2014). The Lagoon: How Aristotle Invented Science. Bloomsbury. pp. 88–90. ISBN 978-1-4088-3622-4.
- ^Rigato, Emanuele; Minelli, Alessandro (28 June 2013). "The great chain of being is still here". Evolution: Education and Outreach. 6 (1): 18. doi:10.1186/1936-6434-6-18. ISSN 1936-6434.
- ^Ray, John (1686). Historia plantarum generalis, Tome I, Libr. I. p. Chap. XX, page 40., quoted in Mayr, Ernst (1982). The growth of biological thought: diversity, evolution, and inheritance. Belknap Press. p. 256. ISBN 978-0-674-36445-5.
- ^ Davis, PH; Heywood, VH (1973). Principles of Angiosperm Taxonomy . Huntington, NY: Robert E. Krieger Publishing Company. S. 17.
- ^ Magnol, Petrus (1689). Prodromus historiae generalis plantarum in quo familiae plantarum per tabulas disponuntur (in Latein). Pech. P. 79.
- ^ Tournefort, Joseph Pitton de (1694). Elemente der Botanik, oder Methode zum Erkennen der Pflanzen. I. [Texte.] / . Von Herrn Pitton Tournefort... [T. I-III] . Paris: L'Imprimerie Royale. P. 562.
- ^ Jussieu, Antoine-Laurent de (1789). Antonii Laurentii de Jussieu ... Genera plantarum secundum ordines naturales disposita: juxta methodum in horto regio Parisiensi exaratam, anno M.DCC.LXXIV. (in Latein). Apud viduam Herissant, typographum, via novâ BM sub signo Crucis Aureæ. Et Theophilum Barrois, ad ripam Augustinianorum. P. 498.
- Reveal , James L.; Pringle, James S. (1993). „7. Taxonomische Botanik und Floristik“. Flora von Nordamerika . Oxford University Press. S. 160–161 . ISBN 978-0-19-505713-3Die
- ^ Simpson, George Gaylord (1961). Principles of Animal Taxonomy . Columbia University Press. S. 56–57 .
- ^ Mahoney, Edward P. (1987). „Liebesfreude und die Hierarchie des Seins“. Journal of the History of Ideas . 48 (2): 211–230 . doi : 10.2307/2709555 . JSTOR 2709555 .
- ^ „Carl Linnaeus (1707–1778)“ . UCMP Berkeley. Archiviert vom Original am 30. April 2011. Abgerufen am 24. Januar 2018 .
- ^ Gould, Stephen Jay (2002). Die Struktur der Evolutionstheorie . Harvard: Belknap Harvard. S. 170–197 . ISBN 978-0-674-00613-3Die
- ^ „Die Darwin-Wallace-Studie von 1858 | Die Alfred-Russel-Wallace-Website“ . wallacefund.myspecies.info . Abgerufen am 8. November 2025 .
- ^ Bowler, Peter J. (2003). Evolution: Die Geschichte einer Idee (3. Aufl.). Berkeley, CA: University of California Press . S. 177–223 und passim . ISBN 978-0-520-23693-6Die
- ^ Menand, Louis (2001). Der Metaphysische Club: Eine Ideengeschichte in Amerika . Farrar, Straus and Giroux. S. 123–124 . ISBN 978-0-374-70638-8Die
Quellen
- Claridge, M. F.; Dawah, H. A.; Wilson, M. R., eds. (1997). Species: The Units of Biodiversity. Chapman & Hall. ISBN 978-0-412-63120-7.
- Wheeler, Quentin; Meier, Rudolf, eds. (2000). Species Concepts and Phylogenetic Theory: A Debate. Columbia University Press. ISBN 978-0-231-10143-1.
- Zachos, Frank E. (2016). Species Concepts in Biology: Historical Development, Theoretical Foundations and Practical Relevance. Springer. ISBN 978-3-319-44964-7.
External links
- Wikispecies – The free species directory that anyone can edit from the Wikimedia Foundation
- Barcoding of species
- Catalogue of Life
- European Species Names in Linnaean, Czech, English, German and French
- "Species" entry at the Stanford Encyclopedia of Philosophy
- VisualTaxa