
| Meereslebensräume |
|---|
| Küstenlebensräume |
| Meeresoberfläche |
| Offener Ozean |
| Meeresboden |
Eine Seegraswiese ist ein Unterwasserökosystem, das aus Seegräsern besteht. Seegräser sind Meerespflanzen (Salzwasserpflanzen) , die in flachen Küstengewässern und im Brackwasser von Flussmündungen vorkommen . Sie sind Blütenpflanzen mit Stängeln und langen, grünen, grasartigen Blättern. Sie produzieren Samen und Pollen und besitzen Wurzeln und Rhizome , die sie im Meeresboden verankern.
Seegraswiesen bilden dichte Unterwasserbestände , die zu den produktivsten Ökosystemen der Welt zählen. Sie bieten Lebensraum und Nahrung für eine Vielfalt an Meereslebewesen , die mit der von Korallenriffen vergleichbar ist . Dazu gehören Wirbellose wie Garnelen und Krabben , Kabeljau und Plattfische , Meeressäugetiere und Vögel. Sie dienen als Rückzugsgebiete für bedrohte Arten wie Seepferdchen , Schildkröten und Dugongs . Sie sind Kinderstuben für Garnelen, Jakobsmuscheln und viele kommerziell genutzte Fischarten. Seegraswiesen schützen die Küste vor Stürmen, indem ihre Blätter die Energie der auftreffenden Wellen absorbieren. Sie tragen zur Gesundheit der Küstengewässer bei, indem sie Bakterien und Nährstoffe aufnehmen, und verlangsamen den Klimawandel, indem sie Kohlendioxid im Meeresboden binden .
Seegraswiesen entwickelten sich aus Meeresalgen, die das Land besiedelten, zu Landpflanzen wurden und vor etwa 100 Millionen Jahren ins Meer zurückkehrten. Heute werden Seegraswiesen jedoch durch menschliche Aktivitäten wie Verschmutzung durch Oberflächenabfluss, Fischereifahrzeuge, die Dredgen oder Schleppnetze über die Wiesen ziehen und das Gras entwurzeln, sowie Überfischung, die das Ökosystem aus dem Gleichgewicht bringt, geschädigt. Derzeit werden Seegraswiesen mit einer Geschwindigkeit von etwa 3 Quadratmetern pro Sekunde (1.900 Quadratfuß/Minute) zerstört.
Hintergrund
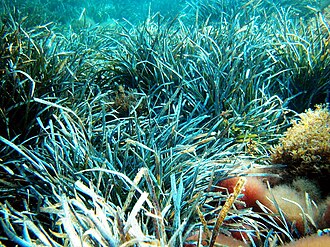
Seegräser sind Blütenpflanzen (Angiospermen), die im Meer wachsen . Sie entwickelten sich aus Landpflanzen , die vor etwa 75 bis 100 Millionen Jahren ins Meer zurückwanderten. [ 1 ] [ 2 ] Heute besiedeln sie den Meeresboden in flachen, geschützten Küstengewässern und verankern sich auf Sand- oder Schlickböden. [ 3 ]
Es gibt vier Abstammungslinien von Seegräsern [ 4 ] mit relativ wenigen Arten (alle gehören zu einer einzigen Ordnung der Monokotyledonen ). Sie besiedeln flache Lebensräume auf allen Kontinenten außer der Antarktis: [ 5 ] ihre Verbreitung erstreckt sich auch auf die Hohe See, beispielsweise auf das Maskarenenplateau .
Seegräser gehören zu einer polyphyletischen Gruppe einkeimblättriger Pflanzen (Ordnung Alismatales ), die vor etwa 80 Millionen Jahren marine Lebensräume wiederbesiedelten . [ 4 ] Seegräser sind habitatbildende Arten, da sie Nahrung und Unterschlupf für eine Vielzahl von Fischen und Wirbellosen bieten und wichtige Ökosystemleistungen erbringen . [ 6 ] [ 7 ]
Es gibt etwa 60 Arten von rein marinen Seegräsern, die vier Familien angehören ( Posidoniaceae , Zosteraceae , Hydrocharitaceae und Cymodoceaceae ) und alle zur Ordnung der Alismatales (Klasse der Einkeimblättrigen) zählen. [ 8 ] Seegraswiesen können entweder aus einer einzigen Art ( monospezifisch ) oder aus verschiedenen Arten bestehen. In gemäßigten Zonen dominiert meist eine oder wenige Arten (wie das Seegras Zostera marina im Nordatlantik), während tropische Bestände in der Regel artenreicher sind; auf den Philippinen wurden bis zu dreizehn Arten nachgewiesen . Wie alle autotrophen Pflanzen betreiben Seegräser Photosynthese in der photischen Zone unter Wasser . Die meisten Arten werden unter Wasser bestäubt und vollenden ihren Lebenszyklus unter Wasser. [ 9 ]

Seegraswiesen kommen je nach Wasserqualität und Lichtverhältnissen in Tiefen bis zu etwa 50 Metern vor . [ 11 ] Diese Seegraswiesen sind hochproduktive Lebensräume, die zahlreiche Ökosystemleistungen erbringen . Dazu gehören der Schutz der Küste vor Stürmen und hohen Wellen, die Stabilisierung von Sedimenten, die Bereitstellung sicherer Lebensräume für andere Arten und die Förderung der Biodiversität , die Verbesserung der Wasserqualität sowie die Bindung von Kohlenstoff und Nährstoffen. [ 12 ] [ 3 ]
Seegraswiesen werden mitunter auch als Prärien des Meeres bezeichnet . Sie sind vielfältige und produktive Ökosysteme, die Arten aller Stämme Schutz und Lebensraum bieten , darunter Jung- und Altfische , epiphytische und freilebende Makro- und Mikroalgen , Weichtiere , Borstenwürmer und Fadenwürmer . Ursprünglich ging man davon aus, dass nur wenige Arten sich direkt von Seegrasblättern ernähren (teilweise aufgrund ihres geringen Nährstoffgehalts). Wissenschaftliche Untersuchungen und verbesserte Arbeitsmethoden haben jedoch gezeigt, dass der Fraß an Seegras ein wichtiges Glied in der Nahrungskette darstellt und Hunderte von Arten ernährt, darunter Grüne Meeresschildkröten , Dugongs , Manatis , Fische, Gänse , Schwäne , Seeigel und Krebse . Einige Fischarten, die Seegraswiesen aufsuchen oder sich davon ernähren, ziehen ihre Jungen in angrenzenden Mangroven oder Korallenriffen auf . [ 9 ]

Seegraswiesen sind artenreiche Ökosysteme, die weltweit in tropischen und gemäßigten Meeren vorkommen. [ 14 ] Sie beherbergen komplexe Nahrungsnetze, die Arten und Lebensräume weit über ihr Verbreitungsgebiet hinaus mit Nährstoffen versorgen. [ 15 ] Angesichts der Vielfalt an Nahrungsquellen in diesem produktiven Lebensraum ist es nicht verwunderlich, dass Seegraswiesen eine ebenso große Bandbreite an Weidegängern und Raubtieren beherbergen. Trotz ihrer Bedeutung für den Erhalt der Biodiversität und vieler anderer Ökosystemleistungen [ 16 ] ist die weltweite Verbreitung von Seegras jedoch nur noch ein Bruchteil dessen, was historisch vorhanden war. [ 17 ] [ 18 ] Jüngste Schätzungen, basierend auf vorhandenen Aufzeichnungen, deuten darauf hin, dass mindestens 20 % der weltweiten Seegrasbestände verloren gegangen sind. [ 18 ] Seegraswiesen erbringen zudem weitere wichtige Leistungen in Küstengebieten, wie die Verhinderung von Küstenerosion, die Speicherung und Bindung von Kohlenstoff [ 19 ] und die Filterung der Wassersäule. [ 20 ] [ 21 ]
Die tatsächlichen Folgen eines solchen Rückgangs für das Ökosystem und der Nutzen, der sich durch die Wiederherstellung von Lebensräumen erzielen lässt, sind noch unzureichend erforscht. Angesichts der relativ hohen Kosten pro Flächeneinheit für die Wiederherstellung mariner Lebensräume [ 22 ] erfordert die Begründung solcher Maßnahmen eine gründliche Untersuchung der Ökosystemleistungen, die sich aus der Schaffung neuer Lebensräume ergeben. [ 21 ]
Weltweiter Vertrieb

Seegraswiesen finden sich in den flachen Meeren der Kontinentalschelfe aller Kontinente außer der Antarktis. Kontinentalschelfe sind unterseeische Landmassen, die jeden Kontinent umgeben und relativ flache Wasserflächen, die sogenannten Schelfmeere, bilden. [ 10 ] Die Gräser wachsen in Gebieten mit weichem Sediment, die entweder im Gezeitenbereich (täglich vom Meerwasser freigelegt) oder unterhalb der Gezeiten (immer unter Wasser) liegen. Sie bevorzugen geschützte Orte wie flache Buchten, Lagunen und Ästuare (geschützte Bereiche, in denen Flüsse ins Meer münden), wo der Wellengang gering und die Licht- und Nährstoffkonzentration hoch ist.
Seegraswiesen können bis in Tiefen von etwa 60 Metern überleben. Dies ist jedoch von der Lichtverfügbarkeit abhängig, da Seegraswiesen – wie Landpflanzen – Sonnenlicht für die Photosynthese benötigen . Gezeiten, Wellengang, Wasserklarheit und ein niedriger Salzgehalt bestimmen, wo Seegraswiesen in Küstennähe anwachsen können; [ 23 ] all diese Bedingungen müssen erfüllt sein, damit Seegras überleben und wachsen kann. [ 10 ]
Die derzeit dokumentierte Seegrasfläche beträgt 177.000 km² ( 68.000 Quadratmeilen), es wird jedoch angenommen, dass die tatsächliche Fläche unterschätzt wird, da viele Gebiete mit großen Seegraswiesen noch nicht vollständig erfasst wurden. [ 11 ] Die gängigsten Schätzungen liegen zwischen 300.000 und 600.000 km² , wobei weltweit bis zu 4.320.000 km² geeigneter Seegraslebensraum zur Verfügung stehen. [ 24 ]
Ökosystemleistungen
Seegraswiesen bieten Küstenzonen bedeutende Ökosystemleistungen . Sie verbessern die Wasserqualität, indem sie Schwermetalle und andere Schadstoffe binden, überschüssige Nährstoffe abbauen [ 25 ] [ 2 ] [ 1 ] und den Säuregehalt in Küstengewässern senken [ 26 ] [ 27 ] . Da Seegras unter Wasser wächst, produziert es zudem erhebliche Mengen an Sauerstoff, der die Wassersäule anreichert. Auch die Wurzeln tragen zur Sauerstoffanreicherung des Sediments bei und schaffen so günstige Lebensräume für dort lebende Organismen [ 28 ] . Darüber hinaus trägt der Schutz von Seegraswiesen zu 16 der 17 UN-Nachhaltigkeitsziele bei [ 29 ] .

Viele Epiphyten können auf den Blättern von Seegräsern wachsen, und Algen , Kieselalgen und Bakterienfilme können die Oberfläche bedecken. Das Gras wird von Schildkröten, pflanzenfressenden Papageifischen , Doktorfischen und Seeigeln gefressen , während die Blattoberflächenbeläge eine Nahrungsquelle für viele kleine Wirbellose darstellen . [ 31 ]


Blauer Kohlenstoff
Die Seegraswiesen speichern zudem mehr als 10 % des gesamten Kohlenstoffs im Ozean. Pro Hektar binden sie doppelt so viel Kohlendioxid wie Regenwälder und können jährlich etwa 27 Millionen Tonnen CO₂ binden . [ 32 ] Diese Fähigkeit zur Kohlenstoffspeicherung ist angesichts des anhaltenden Anstiegs des atmosphärischen Kohlenstoffgehalts von großer Bedeutung.
Blauer Kohlenstoff bezeichnet Kohlendioxid, das von den Küstenökosystemen der Welt , hauptsächlich Mangroven , Salzwiesen , Seegraswiesen und möglicherweise Makroalgen , durch Pflanzenwachstum sowie die Anreicherung und Einlagerung organischer Substanz im Sediment aus der Atmosphäre entfernt wird. [ 33 ] [ 34 ]
Obwohl Seegraswiesen nur 0,1 % der Meeresbodenfläche bedecken, tragen sie zu 10–18 % der gesamten ozeanischen Kohlenstoffspeicherung bei. [ 35 ] Weltweit speichern Seegraswiesen schätzungsweise bis zu 19,9 Pg (Petagramm oder Gigatonnen, entsprechend einer Milliarde Tonnen) organischen Kohlenstoff. [ 35 ] Kohlenstoff reichert sich vorwiegend in marinen Sedimenten an, die sauerstoffarm sind und daher organischen Kohlenstoff über Jahrzehnte bis Jahrtausende hinweg kontinuierlich konservieren. Hohe Akkumulationsraten, geringer Sauerstoffgehalt, niedrige Sedimentleitfähigkeit und langsamere mikrobielle Abbauprozesse begünstigen die Kohlenstoffspeicherung und -akkumulation in diesen Küstensedimenten. [ 11 ] Im Vergleich zu terrestrischen Lebensräumen, die Kohlenstoffspeicher als CO₂ durch Zersetzung oder Störungen wie Brände oder Abholzung verlieren , können marine Kohlenstoffsenken Kohlenstoff über deutlich längere Zeiträume speichern. Die Kohlenstoffspeicherungsraten in Seegraswiesen variieren je nach Art, Sedimenteigenschaften und Wassertiefe, im Durchschnitt beträgt die Kohlenstoffspeicherungsrate jedoch etwa 140 g C m −2 yr −1 . [ 25 ] [ 36 ]
Küstenschutz
Seegraswiesen sind auch Ökosystemingenieure , d. h. sie verändern das Ökosystem um sich herum, indem sie ihre Umgebung sowohl physikalisch als auch chemisch anpassen. [ 2 ] [ 1 ] Die langen Blätter der Seegraswiesen verlangsamen die Wasserbewegung, wodurch die Wellenenergie reduziert und ein zusätzlicher Schutz vor Küstenerosion und Sturmfluten geschaffen wird . Viele Seegrasarten bilden ein ausgedehntes unterirdisches Netzwerk aus Wurzeln und Rhizomen , das Sedimente stabilisiert und die Küstenerosion verringert. [ 37 ] Seegraswiesen werden nicht nur von der Wasserbewegung beeinflusst, sondern auch von Strömungen, Wellen und Turbulenzen. [ 38 ]

Seegraswiesen helfen, von Meeresströmungen transportierte Sedimentpartikel aufzufangen. Die Blätter, die sich zur Meeresoberfläche erstrecken, verlangsamen die Wasserströmung. Die langsamere Strömung kann die Sedimentpartikel nicht mitreißen, sodass diese absinken und Teil des Meeresbodens werden, wodurch dieser mit der Zeit anwächst. Fehlen Seegraswiesen, trifft die Meeresströmung auf keinen Widerstand und transportiert die Sedimentpartikel ungehindert fort, hebt sie an und trägt so den Meeresboden ab. [ 3 ]
Seegraswiesen verhindern die Erosion des Meeresbodens so stark, dass sie ihn sogar anheben können. Sie tragen zum Küstenschutz bei, indem sie vom Meer transportiertes Gesteinsmaterial auffangen. Seegraswiesen reduzieren die Küstenerosion und schützen Häuser und Städte sowohl vor der Kraft des Meeres als auch vor dem durch die globale Erwärmung verursachten Meeresspiegelanstieg. Dies erreichen sie, indem sie mit ihren Blättern die Wellenenergie dämpfen [ 40 ] und dazu beitragen, dass sich im Meerwasser transportierte Sedimente am Meeresboden ablagern. Seegrasblätter und ihre Epiphyten wirken in turbulentem Wasser wie Strömungsbarrieren, die die Wasserbewegung verlangsamen und das Absetzen von Partikeln fördern. [ 41 ]
Archäologen haben von Seegraswiesen gelernt, wie man Unterwasserfundstätten schützt, beispielsweise eine Fundstätte in Dänemark, wo Dutzende antike römische und Wikingerschiffswracks entdeckt wurden. Die Archäologen nutzen seegrasartige Bestände als Sedimentfallen, um Sediment anzusammeln und so die Schiffe zu bedecken. Durch die Bedeckung entstehen sauerstoffarme Bedingungen, die das Holz vor Fäulnis schützen. [ 42 ] [ 3 ]
Links zu Seevögeln

Vögel sind ein oft übersehener Bestandteil mariner Ökosysteme. Dabei sind sie nicht nur entscheidend für deren Gesundheit, sondern ihre Populationen hängen auch von der Produktivität und Biodiversität mariner und küstennaher Ökosysteme ab. [ 43 ] [ 44 ] [ 45 ] Die Bindung von Vögeln an spezifische Lebensraumtypen wie Seegraswiesen wird weitgehend vernachlässigt, außer im Kontext des direkten pflanzlichen Verzehrs durch Wasservögel. [ 46 ] Dies geschieht trotz der Tatsache, dass sowohl Bottom-up- als auch Top-down-Prozesse als Mechanismen für den Populationserhalt einiger Küstenvögel in Betracht gezogen wurden. [ 47 ] [ 21 ]

Angesichts des langfristigen Rückgangs der Populationen vieler Küsten- und Seevögel, der bekannten Reaktion vieler Seevogelpopulationen auf Schwankungen in ihren Beutetieren und der Notwendigkeit kompensatorischer Wiederherstellungsmaßnahmen zur Stärkung ihrer Populationen besteht ein Bedarf, die Rolle wichtiger mariner Lebensräume wie Seegraswiesen für den Erhalt von Küsten- und Seevögeln zu verstehen. [ 21 ]
Aufzuchtgebiete für Fische
Seegraswiesen bieten vielen wirtschaftlich wichtigen Fischarten Aufzuchtgebiete . Schätzungsweise die Hälfte aller weltweiten Fischereien entsteht durch die Nutzung von Seegraswiesen. Gehen diese verloren, gehen auch die Fischereien verloren. Laut einer Studie von Unsworth et al . aus dem Jahr 2019 [ 48 ] wird die bedeutende Rolle der Seegraswiesen für die Produktivität der Fischerei und die Ernährungssicherheit weltweit in den Entscheidungen der zuständigen Behörden nicht ausreichend berücksichtigt. Die Autoren argumentieren: (1) Seegraswiesen bieten wertvolle Aufzuchtgebiete für über ein Fünftel der 25 größten Fischereien weltweit, darunter auch für den Alaska-Seelachs , die am häufigsten angelandete Fischart. (2) In komplexen, kleingewerblichen Fischereien weltweit (die in der Fischereistatistik unterrepräsentiert sind) gibt es Hinweise darauf, dass viele der in der Nähe von Seegraswiesen gelegenen Betriebe maßgeblich von diesen Lebensräumen abhängig sind. (3) Die Fischerei in Gezeitenzonen von Seegraswiesen ist ein globales Phänomen und sichert oft direkt den Lebensunterhalt der Menschen. Laut der Studie sollten Seegraswiesen anerkannt und bewirtschaftet werden, um ihre Bedeutung für die globale Fischereiproduktion zu erhalten und zu maximieren. [ 48 ] Jones et al. [ 49 ] zeigten 2022, dass die mit Seegraswiesen verbundene Kleinfischerei ein soziales Sicherheitsnetz für die Ärmsten bieten kann und im gesamten Indopazifik häufiger genutzt wird als die riffgebundene Fischerei. Fast die Hälfte der Befragten gab an, die Fischerei in Seegraswiesen zu bevorzugen, da deren Funktion als Kinderstube zu großen und verlässlichen Fischfängen führen kann. [ 49 ]
 Seegraswiesen tragen zur globalen Ernährungssicherheit bei , indem sie (1) als Kinderstuben für Fischbestände in angrenzenden und tieferen Gewässern dienen, (2) ausgedehnte, artenreiche Fischgründe schaffen und (3) benachbarte Fischereien mit Nahrung versorgen. Sie unterstützen zudem die Gesundheit von Fischbeständen in verbundenen Lebensräumen wie Korallenriffen . [ 48 ]

In den Ozeanen bezeichnet „Gleaning“ das Fischen mit einfachem Gerät, einschließlich bloßer Hände, in flachem Wasser, das nicht tiefer ist, als man stehen kann. [ 51 ] Das Sammeln von Wirbellosen (durch sogenanntes „Walking Fishering“) ist in Gezeitenzonen- Seegraswiesen weltweit verbreitet und trägt zur Ernährung von Hunderten Millionen Menschen bei. Das Wissen über diese Fischerei und ihre ökologischen Ursachen ist jedoch äußerst begrenzt. Eine Studie von Nessa et al. aus dem Jahr 2019 analysierte diese Fischerei mit einem kombinierten sozial-ökologischen Ansatz. Die Fänge bestanden hauptsächlich aus Muscheln , Seeigeln und Schnecken . Der Fang pro Aufwandseinheit (CPUE) variierte an allen Standorten zwischen 0,05 und 3 kg pro Sammler und Stunde, wobei die Mehrheit der Fischer Frauen und Kinder waren. Die Anlandungen waren an allen Standorten von großer Bedeutung für die lokale Ernährung und die Lebensgrundlagen der Bevölkerung. Lokales ökologisches Wissen deutet darauf hin, dass die Seegraswiesen im Einklang mit anderen regionalen Trends zurückgehen. Eine zunehmende Seegrasdichte korrelierte signifikant und positiv mit dem Fangertrag (CPUE) der Wirbellosenfischerei, was die Bedeutung des Schutzes dieser bedrohten Lebensräume unterstreicht. [ 50 ]
Galerie der Lebensräume der Arten
 Geisterpfeifenfische schwimmen normalerweise paarweise.
 Blattseepferdchen


 Manati (Seekuh)

 Grüne Meeresschildkröten beim Grasen
 Stachelrochen im Seegras
 Gefleckte Muräne im Seegras
 Schwarzflecken-Kaiser im Seegras
Sonstige Dienstleistungen
Historisch gesehen wurden Seegräser als Dünger für sandige Böden gesammelt . Dies war in der Lagune von Aveiro in Portugal weit verbreitet ; dort waren die gesammelten Pflanzen als „Moliço“ bekannt . Anfang des 20. Jahrhunderts wurden getrocknete Seegräser in Frankreich und, in geringerem Umfang, auf den Kanalinseln als Füllung für Matratzen ( Paillasse ) verwendet – solche Matratzen waren während des Ersten Weltkriegs bei den französischen Streitkräften sehr gefragt . Seegras wurde auch für Verbände und andere Zwecke eingesetzt.
Im Februar 2017 stellten Forscher fest, dass Seegraswiesen verschiedene Krankheitserreger aus dem Meerwasser filtern können. Auf kleinen Inseln ohne Kläranlagen in Zentralindonesien sank der Anteil pathogener Meeresbakterien – wie beispielsweise Enterokokken –, die Menschen, Fische und Wirbellose befallen , um 50 Prozent, wenn Seegraswiesen vorhanden waren, verglichen mit ähnlichen Standorten ohne Seegras [ 52 ]. Dies könnte jedoch deren Überleben beeinträchtigen [ 53 ] .
Bewegungsökologie

Das Verständnis der Bewegungsökologie von Seegraswiesen ermöglicht es, die Fähigkeit von Populationen zur Erholung von den Auswirkungen bestehender und zukünftiger Belastungen zu beurteilen. Dazu gehören die (Wieder-)Besiedlung veränderter oder fragmentierter Landschaften sowie Wanderungen im Zusammenhang mit dem Klimawandel. [ 54 ]
Die Meeresumwelt fungiert als abiotischer Ausbreitungsvektor , und ihre physikalischen Eigenschaften beeinflussen die Bewegung maßgeblich. Dies birgt Herausforderungen und Chancen, die sich von denen terrestrischer Umgebungen unterscheiden. Typische Strömungsgeschwindigkeiten im Ozean liegen bei etwa 0,1 m/ s und sind damit in der Regel ein bis zwei Größenordnungen schwächer als typische atmosphärische Strömungen (1–10 m/ s ), was die Ausbreitung einschränken kann. [ 55 ] Da die Dichte von Meerwasser jedoch etwa 1000-mal höher ist als die von Luft, ist der Impuls einer sich mit derselben Geschwindigkeit bewegenden Wassermasse drei Größenordnungen höher als in Luft. Folglich sind auch die auf einzelne Organismen wirkenden Widerstandskräfte (proportional zur Dichte) drei Größenordnungen höher, wodurch relativ größere Ausbreitungseinheiten mobilisiert werden können. Vor allem aber reduzieren Auftriebskräfte (proportional zum Dichteunterschied zwischen Meerwasser und Ausbreitungseinheit) das effektive Gewicht untergetauchter Ausbreitungseinheiten erheblich. [ 56 ] In Seegraswiesen können sich die Ausbreitungseinheiten schwach absetzen (negativer Auftrieb), im Inneren der Wassersäule praktisch suspendiert bleiben (neutraler Auftrieb) oder an der Oberfläche treiben (positiver Auftrieb). [ 57 ] [ 54 ]
With positive buoyancy (e.g. floating fruit), ocean surface currents freely move propagules, and dispersal distances are only limited by the viability time of the fruit,[58][59] leading to exceptionally long single dispersal events (more than 100 km),[60] which is rare for passive abiotic movement of terrestrial fruit and seeds.[61][54]
There are a variety of biotic dispersal vectors for seagrasses, as they feed on or live in seagrass habitat. These include dugongs, manatees, turtles, waterfowl, fish and invertebrates.[62][63][64][65] Each biotic vector has its own internal state, motion capacity, navigation capacity and external factors influencing its movement. These interact with plant movement ecology to determine the ultimate movement path of the plant.[66][67][54]
For example, if a waterbird feeds on a seagrass containing fruit with seeds that are viable after defecation, then the bird has the potential to transport the seeds from one feeding ground to another. Therefore, the movement path of the bird determines the potential movement path of the seed. Particular traits of the animal, such as its digestive passage time, directly influence the plant's movement path.[54]
Biogeochemistry

Die wichtigsten Nährstoffe für das Wachstum von Seegras sind Kohlenstoff (C), Stickstoff (N), Phosphor (P) und Licht für die Photosynthese. Stickstoff und Phosphor können aus dem Porenwasser des Sediments oder aus der Wassersäule aufgenommen werden, wobei Seegras Stickstoff sowohl in Form von Ammonium (NH₄⁺ ) als auch von Nitrat (NO₃⁻ ) aufnehmen kann . [ 69 ]
Zahlreiche Studien weltweit haben gezeigt, dass die Konzentrationen von Kohlenstoff (C), Stickstoff (N) und Phosphor (P) in Seegräsern je nach Art und Umweltfaktoren stark variieren. So wiesen beispielsweise Pflanzen aus nährstoffreichen Umgebungen niedrigere C:N- und C:P-Verhältnisse auf als Pflanzen aus nährstoffarmen Umgebungen. Die Stöchiometrie von Seegras entspricht nicht dem Redfield-Verhältnis, das üblicherweise als Indikator für die Nährstoffverfügbarkeit für das Phytoplanktonwachstum verwendet wird. Tatsächlich zeigen zahlreiche Studien weltweit, dass das C:N:P-Verhältnis in Seegräsern je nach Art, Nährstoffverfügbarkeit und anderen Umweltfaktoren erheblich schwanken kann. Abhängig von den Umweltbedingungen können Seegräser entweder phosphor- oder stickstofflimitiert sein. [ 70 ]
Eine frühe Studie zur Stöchiometrie von Seegras deutete darauf hin, dass das Redfield-Verhältnis zwischen Stickstoff (N) und Phosphor (P) bei Seegräsern etwa 30:1 beträgt. [ 71 ] Allerdings korrelieren die N- und P-Konzentrationen nicht direkt miteinander, was darauf hindeutet, dass Seegräser ihre Nährstoffaufnahme an die jeweilige Umweltverfügbarkeit anpassen können. So weisen beispielsweise Seegräser aus mit Vogelkot gedüngten Wiesen einen höheren Phosphatanteil auf als ungedüngte Wiesen. Umgekehrt liefern Seegräser in Umgebungen mit höherer Nährstoffbelastung und verstärkter Diagenese organischer Substanz mehr Phosphor, was zu Stickstofflimitierung führt. Die Phosphorverfügbarkeit ist bei Thalassia testudinum der limitierende Nährstoff. Die Nährstoffverteilung in Thalassia testudinum liegt zwischen 29,4 und 43,3 % C, 0,88–3,96 % N und 0,048–0,243 % P. Dies entspricht einem mittleren Verhältnis von 24,6 C:N, 937,4 C:P und 40,2 N:P. Diese Informationen können auch genutzt werden, um die Nährstoffverfügbarkeit einer Bucht oder eines anderen Gewässers (die sich nur schwer direkt messen lässt) durch die Untersuchung der dort vorkommenden Seegraswiesen zu charakterisieren. [ 72 ]
Die Lichtverfügbarkeit ist ein weiterer Faktor, der die Nährstoffzusammensetzung von Seegraswiesen beeinflussen kann. Nährstofflimitierung tritt nur dann auf, wenn die Photosyntheseenergie das Wachstum der Gräser beschleunigt und die Zufuhr neuer Nährstoffe nicht ausreicht. Beispielsweise weisen lichtarme Umgebungen tendenziell ein niedrigeres C:N-Verhältnis auf. [ 72 ] Umgekehrt können stickstoffreiche Umgebungen das Seegraswachstum indirekt negativ beeinflussen, indem sie das Wachstum von Algen fördern, welche die Gesamtmenge des verfügbaren Lichts reduzieren. [ 73 ]
Die Nährstoffvariabilität in Seegraswiesen kann Auswirkungen auf das Abwassermanagement in Küstengebieten haben. Hohe anthropogene Stickstoffeinträge können in zuvor stickstofflimitierten Umgebungen zur Eutrophierung führen, was hypoxische Bedingungen in der Seegraswiese zur Folge hat und die Tragfähigkeit dieses Ökosystems beeinträchtigt. [ 72 ]
Eine Studie zur jährlichen Ablagerung von Kohlenstoff (C), Stickstoff (N) und Phosphor (P) aus Posidonia oceanica - Seegraswiesen im Nordosten Spaniens ergab, dass die Wiesen 198 g C m⁻² Jahr⁻¹, 13,4 g N m⁻² Jahr⁻¹ und 2,01 g P m⁻² Jahr⁻¹ im Sediment speicherten . Die anschließende Remineralisierung des Kohlenstoffs aus den Sedimenten durch Atmung führte zur Freisetzung von etwa 8 % des gespeicherten Kohlenstoffs, also 15,6 g C m⁻² Jahr⁻¹ . [ 74 ]
 Seegraslagune, Chek Jawa , Singapur
Bedrohungen
Die Seegraswiesen sind weltweit rückläufig; in den letzten Jahrzehnten gingen etwa 30.000 km² ( 12.000 Quadratmeilen) verloren. Der Seegrasverlust hat sich in den letzten Jahrzehnten beschleunigt, von 0,9 % pro Jahr vor 1940 auf 7 % pro Jahr im Jahr 1990. [ 17 ]
Natürliche Störungen wie Beweidung , Stürme , Eisgang und Austrocknung sind ein natürlicher Bestandteil der Dynamik von Seegraswiesen . Seegräser weisen eine hohe phänotypische Plastizität auf und passen sich schnell an veränderte Umweltbedingungen an. Menschliche Aktivitäten hingegen haben erhebliche Störungen verursacht und sind für den Großteil der Verluste verantwortlich.
Seegraswiesen können durch die direkte mechanische Zerstörung ihres Lebensraums, beispielsweise durch Fischereimethoden mit schweren, über den Meeresboden gezogenen Netzen, geschädigt werden, wodurch dieses wichtige Ökosystem ernsthaft gefährdet wird. [ 3 ] Auch die Propeller von Motorbooten, die über flache Seegraswiesen fahren, können diese beschädigen.
Seegraswiesen sind durch Küsten -Eutrophierung bedroht , die durch übermäßigen Nährstoffeintrag ( Stickstoff , Phosphor ) verursacht wird. Dieser übermäßige Eintrag ist direkt toxisch für Seegras, fördert aber vor allem das Wachstum von epiphytischen und frei schwebenden Makro- und Mikroalgen . Diese als Plagearten bekannten Makroalgen wachsen fadenförmig und flächig und bilden dichte, nicht anhaftende Matten auf Seegras, indem sie als Epiphyten auf den Seegrasblättern vorkommen. Die Eutrophierung führt zur Bildung von Algenblüten , die die Lichtdurchlässigkeit der Wassersäule verringern und schließlich zu sauerstoffarmen Bedingungen für das Seegras und die darin und um die Pflanzen lebenden Organismen führen. Zusätzlich zur direkten Lichtblockade für die Pflanzen weisen benthische Makroalgen einen niedrigen Kohlenstoff-/Stickstoffgehalt auf. Ihre Zersetzung regt die Bakterienaktivität an, was zu Sedimentaufwirbelung, erhöhter Wassertrübung und weiterer Lichtdämpfung führt. [ 75 ] [ 76 ] Erhält das Seegras nicht genügend Sonnenlicht , verringert sich die Photosynthese , die das Seegras ernährt, und die Primärproduktion sinkt. Verrottende Seegrasblätter und Algen fördern dann das Algenwachstum zusätzlich, wodurch ein sich selbst verstärkender Kreislauf entsteht . Dies kann zum Rückgang und schließlich zur vollständigen Verdrängung der Seegraswiesen durch Algen führen.
Zunehmende Erkenntnisse deuten auch darauf hin, dass die Überfischung von Spitzenprädatoren (großen Raubfischen) indirekt das Algenwachstum steigern könnte, indem sie die Weidekontrolle durch Mesograzer wie Krebstiere und Schnecken über eine trophische Kaskade verringert .
Erhöhte Meerwassertemperaturen [ 11 ] , verstärkte Sedimentation und die Bebauung der Küsten haben ebenfalls einen erheblichen Einfluss auf den Rückgang der Seegraswiesen. [ 25 ]
Zu den am häufigsten angewandten Methoden zum Schutz und zur Wiederherstellung von Seegraswiesen zählen die Reduzierung von Nährstoffen und Schadstoffen , Meeresschutzgebiete und die Wiederherstellung durch Seegrasverpflanzung . Seegras gilt nicht als widerstandsfähig gegenüber den Auswirkungen zukünftiger Umweltveränderungen. [ 77 ]
Ozeanentsauerstoff
Weltweit ist ein rapider Rückgang der Seegrasbestände zu verzeichnen. Hypoxie , die durch die Sauerstoffarmut der Ozeane zur Eutrophierung führt , ist einer der Hauptgründe für dieses Massensterben. Eutrophierung bewirkt eine erhöhte Nährstoffanreicherung, die zwar die Produktivität von Seegraswiesen steigern kann, aber bei anhaltender Nährstoffanreicherung zu übermäßigem Wachstum von Mikroalgen , Epiphyten und Phytoplankton und damit zu hypoxischen Bedingungen führt. [ 78 ]
Seegras ist sowohl Quelle als auch Senke für Sauerstoff im umgebenden Wasser und Sediment. Nachts ist der Sauerstoffdruck im Inneren des Seegrases linear mit der Sauerstoffkonzentration im Wasser verbunden. Niedrige Sauerstoffkonzentrationen im Wasser führen daher häufig zu hypoxischem Seegrasgewebe, was letztendlich zum Absterben des Seegrases führen kann. Normalerweise muss das Seegrassediment das unterirdische Gewebe mit Sauerstoff versorgen, entweder durch Photosynthese oder durch Diffusion von Sauerstoff aus dem Wasser über die Blätter zu den Rhizomen und Wurzeln. Veränderungen im Sauerstoffhaushalt des Seegrases können jedoch häufig zu hypoxischem Seegrasgewebe führen. Seegras, das dieser hypoxischen Wassersäule ausgesetzt ist, zeigt eine erhöhte Atmung, eine verringerte Photosyntheserate, kleinere Blätter und eine geringere Anzahl von Blättern pro Trieb. Dies führt zu einer unzureichenden Sauerstoffversorgung des unterirdischen Gewebes für die aerobe Atmung, sodass das Seegras auf die weniger effiziente anaerobe Atmung zurückgreifen muss . Das Absterben von Seegraswiesen erzeugt einen positiven Rückkopplungseffekt, bei dem die Sterbeereignisse zu weiterem Absterben führen, da beim Zersetzen des abgestorbenen Pflanzenmaterials ein höherer Sauerstoffbedarf entsteht. [ 78 ]
Da Sauerstoffmangel das Eindringen von Sulfiden in Seegraswiesen verstärkt, beeinträchtigt dies die Photosynthese, den Stoffwechsel und das Wachstum des Seegrases. Normalerweise kann Seegras den Sulfiden entgegenwirken, indem es die Wurzeln ausreichend mit Sauerstoff versorgt. Sauerstoffmangel führt jedoch dazu, dass das Seegras diesen Sauerstoff nicht mehr bereitstellen kann und somit abstirbt. [ 78 ] Sauerstoffmangel verringert die Artenvielfalt in Seegraswiesen , indem er Arten eliminiert, die die niedrigen Sauerstoffbedingungen nicht tolerieren. Indirekt bedroht der Verlust und die Degradierung von Seegras zahlreiche Arten, die auf Seegras als Lebensraum oder Nahrungsquelle angewiesen sind. Der Verlust von Seegras beeinträchtigt auch die physikalischen Eigenschaften und die Widerstandsfähigkeit von Seegrasökosystemen. Seegraswiesen dienen vielen kommerziell, für die Freizeit und den Eigenbedarf genutzten Fischen und Schalentieren als Kinderstube und Lebensraum. In vielen tropischen Regionen sind die lokalen Bevölkerungsgruppen auf die mit Seegraswiesen verbundene Fischerei als Nahrungs- und Einkommensquelle angewiesen. [ 78 ]
Schwindende Wiesen
Die Speicherung von Kohlenstoff ist eine essenzielle Ökosystemleistung in einer Zeit erhöhter atmosphärischer Kohlenstoffkonzentrationen. Einige Klimamodelle deuten jedoch darauf hin, dass manche Seegrasarten aussterben werden – Posidonia oceanica wird voraussichtlich bis 2050 aussterben oder nahezu aussterben. [ 79 ]
Das UNESCO-Welterbegebiet um die Baleareninseln Mallorca und Formentera umfasst rund 55.000 Hektar (140.000 Acres) Seegraswiesen ( Posidonia oceanica ) , die aufgrund ihrer Fähigkeit, Kohlendioxid zu absorbieren, von globaler Bedeutung sind. Die Seegraswiesen sind jedoch durch steigende Temperaturen, die ihr Wachstum verlangsamen, sowie durch Schäden durch Anker bedroht . [ 80 ]
Wiederherstellung
Verwendung von Diasporen
Seegras -Propagulen sind Materialien, die zur Vermehrung von Seegras beitragen. Seegräser bestäuben sich durch Hydrophilie , d. h. durch Verbreitung im Wasser. Sexuell und asexuell erzeugte Propagulen sind für diese Verbreitung wichtig . [ 81 ]

Arten der Gattungen Amphibolis und Thalassodendron bilden lebendgebärende Sämlinge. [ 83 ] Die meisten anderen Arten bilden Samen, deren Eigenschaften jedoch stark variieren. [ 84 ] Einige Arten produzieren Samen oder Früchte, die positiv schwimmfähig sind und sich potenziell über weite Strecken verbreiten können (z. B. Enhalus , Posidonia und Thalassia ). Andere Arten produzieren Samen, die negativ schwimmfähig sind und nur ein begrenztes Verbreitungspotenzial aufweisen (z. B. Zostera und Halophila ). [ 59 ] [ 84 ] Eine Fernverbreitung ist jedoch auch durch den Transport abgelöster Fragmente möglich, die Spatha (modifizierte Blätter, die den Blütenstand umschließen) tragen; z. B. bei Zostera spp. [ 85 ] Nahezu alle Arten können sich auch ungeschlechtlich durch Rhizomverlängerung [ 86 ] oder die Bildung ungeschlechtlicher Fragmente (z. B. Rhizomfragmente, pseudovivipare Pflänzchen ) vermehren . [ 87 ] [ 88 ] Sexuell erzeugte Diasporen einiger Arten können nicht in einen Ruhezustand verfallen (z. B. Amphibolis und Posidonia), während andere über lange Zeiträume ruhen können. [ 89 ] [ 90 ] Diese Unterschiede in Biologie und Ökologie der Diasporen beeinflussen maßgeblich die Muster der Rekrutierung und Ausbreitung sowie deren effektive Nutzung bei Renaturierungsmaßnahmen. [ 81 ]
Die Wiederherstellung von Seegraswiesen erfolgte bisher hauptsächlich mithilfe von asexuellem Material (z. B. Stecklingen, Rhizomfragmenten oder -kernen), das aus Spenderwiesen gewonnen wurde. Sexuell vermehrtes Material wurde hingegen nur in wenigen Projekten zur Seegraswiederherstellung eingesetzt. [ 91 ] [ 92 ] Die seltene Verwendung von sexuell vermehrtem Material ist vermutlich teilweise auf die zeitliche und räumliche Variabilität der Saatgutverfügbarkeit [ 93 ] sowie auf die Annahme zurückzuführen, dass die Überlebensraten von Samen und Sämlingen gering sind. [ 94 ] [ 95 ] Obwohl die Überlebensraten oft niedrig sind, zeigen neuere Studien zur samenbasierten Forschung, dass dies wahrscheinlich auf begrenztes Wissen über die Verfügbarkeit und Gewinnung von qualitativ hochwertigem Saatgut, mangelnde Kenntnisse im Umgang mit und der Ausbringung von Saatgut sowie die Eignung von Wiederherstellungsstandorten zurückzuführen ist. [ 91 ] [ 92 ] [ 86 ] [ 81 ]
Methoden zum Sammeln und Aufbereiten von Vermehrungseinheiten variieren je nach deren Eigenschaften und nutzen typischerweise deren natürliche Ausbreitungsmechanismen. Bei lebendgebärenden Arten wie Amphibolis können beispielsweise frisch abgelöste Sämlinge gesammelt werden, indem man faseriges und beschwertes Material, etwa mit Sand gefüllte Jutesäcke, auslegt, an denen sich die Haftorgane der Sämlinge beim Vorbeidriften festsetzen. Auf diese Weise lassen sich Tausende von Sämlingen auf weniger als einem Quadratmeter einfangen. [ 96 ] Typischerweise werden Sandsäcke an Orten ausgelegt, an denen Renaturierungsmaßnahmen erforderlich sind, und nicht eingesammelt und an anderer Stelle wiederverwendet. [ 81 ]

Bei Arten, deren Samen in den Hüllblättern eingeschlossen sind (z. B. Zostera spp.), können diese mithilfe von Tauchern oder maschinellen Erntemaschinen geerntet werden. [ 97 ] In der Chesapeake Bay wurden während der Hauptfortpflanzungszeit jährlich mehrere Millionen Samen von Zostera marina mit Hilfe einer maschinellen Erntemaschine gesammelt. [ 97 ] Die Samen werden nach der Ernte aus den Hüllblättern extrahiert, wobei die Extraktions- und Ausbringungsmethoden variieren. Beispielsweise werden die Hüllblätter in großen Behältern aufbewahrt, wo sie sich schließlich öffnen und die (negativ auftriebsfähigen) Samen freigeben, die dann vom Behälterboden aufgesammelt werden. [ 97 ] Anschließend werden die Samen in einem Strömungskanal platziert , um die Samenqualität anhand der Sinkgeschwindigkeit zu bestimmen. Danach werden sie von Booten aus per Hand über den Zielgebieten verstreut. [ 97 ] Alternativ können die Hüllblätter von Z. marina mithilfe von verankerten Bojen in Netzsäcken über Renaturierungsflächen aufgehängt werden; die Hüllblätter geben die Samen frei und bringen sie zum Meeresboden. [ 98 ] [ 81 ]
Bei Arten, deren Früchte Samen freisetzen (z. B. Posidonia spp., Halophila spp.), können die Früchte durch Schütteln von der Mutterpflanze gelöst werden; sie treiben dann an die Oberfläche und werden dort mit Netzen aufgefangen. [ 99 ] [ 100 ] Die Samen werden anschließend durch kräftige Belüftung und Wasserbewegung mittels Pumpen bei einer konstanten Temperatur von 25 °C in Becken aus den Früchten extrahiert. Die negativ auftriebsstarken Samen werden dann vom Beckenboden aufgesammelt und von Hand über den Zielhabitaten verstreut. Andere Methoden wurden mit mäßigem Erfolg erprobt, darunter die direkte Aussaat von Hand, die maschinelle Ausbringung der Samen oder die Aussaat und Verteilung in Jutesäcken. [ 81 ]
Die Wiederherstellung von Seegraswiesen mithilfe von Seegras-Propagulen hat bisher geringe und variable Ergebnisse gezeigt, wobei über 90 % der Propagulen nicht überlebten. [ 101 ] [ 102 ] [ 96 ] Feldversuche haben gezeigt, dass die Ergebnisse der Wiederherstellung mit Saatgut von der Ausbringungsmethode, Saatgutverlusten und den lokalen Umweltbedingungen abhängen. [ 103 ] Für den erfolgreichen Einsatz von Propagulen in Seegras-Wiederherstellungsprogrammen muss der Verlust an Propagulen (einschließlich Mortalität, aber auch Keimungsversagen oder Ausbreitung vom Wiederherstellungsort) reduziert werden, um höhere Keimungs- und Überlebensraten zu erzielen. Ein wesentliches Hindernis für den effektiven Einsatz von Saatgut bei der Seegraswiederherstellung ist das Wissen über die Saatgutqualität. Zur Saatgutqualität gehören Aspekte wie Keimfähigkeit, Größe (die Energiereserven für das anfängliche Wachstum und die Etablierung liefern kann), Beschädigungen der Samenschale oder des Sämlings, bakterielle Infektionen, genetische Vielfalt und Ökotyp (der die Anpassungsfähigkeit des Saatguts an die Wiederherstellungsumgebung beeinflussen kann). [ 81 ] Dennoch nimmt die Vielfalt der für Renaturierungsmaßnahmen verwendeten Vermehrungseinheiten und Arten zu, und das Verständnis der Biologie und Ökologie von Seegrassamen schreitet voran. [ 96 ] [ 100 ] [ 104 ] Um die Etablierungschancen der Vermehrungseinheiten zu verbessern, ist ein besseres Verständnis der Schritte erforderlich, die der Ausbringung der Samen an den Renaturierungsstandorten vorausgehen, einschließlich der Samenqualität [ 90 ] sowie der ökologischen und sozialen Barrieren, die das Überleben und Wachstum beeinflussen. [ 81 ]
Andere Bemühungen
An verschiedenen Orten versuchen Gemeinden, durch menschliche Eingriffe zerstörte Seegraswiesen wiederherzustellen, darunter in den US-Bundesstaaten Virginia [ 105 ] , Florida [ 106 ] und Hawaii [ 107 ] sowie im Vereinigten Königreich [ 108 ] . Solche Wiederansiedlungen verbessern nachweislich die Ökosystemleistungen [ 109 ] .
Dr. Fred Short von der University of New Hampshire entwickelte eine spezielle Transplantationsmethode namens „Transplanting Eelgrass Remotely with Frames“ (TERF). Bei dieser Methode werden Pflanzenbüschel vorübergehend mit biologisch abbaubarem Krepppapier an einem beschwerten Drahtgeflechtrahmen befestigt. Die Methode wurde bereits von Save the Bay erprobt. [ 110 ]
Im Jahr 2001 nutzte Steve Granger von der Graduate School of Oceanography der University of Rhode Island einen von einem Boot gezogenen Schlitten, mit dem Samen unter der Sedimentoberfläche abgelagert werden konnten. Zusammen mit seinem Kollegen Mike Traber (der eine Knox-Gelatinematrix zur Einkapselung der Samen entwickelt hatte) führte er eine Testpflanzung in der Narragansett Bay durch. Sie konnten eine Fläche von 400 m² ( 480 Quadratyard) in weniger als zwei Stunden bepflanzen. [ 110 ]
Das Coastal Marine Ecosystems Research Centre der Central Queensland University züchtet seit 2019 seit sechs Jahren Seegras und produziert Seegrassamen. Dort werden Versuche zu Keimungs- und Aussaattechniken durchgeführt. [ 111 ]
Referenzen
- ^ a b c Orth RJ, Carruthers TJ, Dennison WC, Duarte CM, Fourqurean JW, Heck KL, et al. (2006). „Eine globale Krise für Seegraswiesen“ . BioScience . 56 (12): 987. doi : 10.1641/0006-3568(2006)56[987:AGCFSE]2.0.CO;2 . ISSN 0006-3568 .
- ^ a b c Papenbrock J (2012). „Highlights in Seagrasses' Phylogeny, Physiology, and Metabolism: What Makes Them Special?“ . ISRN Botany . 2012 : 1– 15. doi : 10.5402/2012/103892 . ISSN 2090-8598 .
- Fusi M , Daffonchio D (2019). „ Wie Seegraswiesen unsere Küsten schützen“ . Frontiers for Young Minds . 7, 114. doi : 10.3389 / frym.2019.00114 . ISSN 2296-6846 .
 Das Material wurde aus dieser Quelle kopiert, die unter einer Creative Commons Attribution 4.0 International License verfügbar ist .
- ^ a b Les DH, Cleland MA, Waycott M (1997). „Phylogenetische Studien an Alismatidae, II: Evolution mariner Angiospermen (Seegräser) und Hydrophilie“. Systematic Botany . 22 (3): 443–463 . Bibcode : 1997SysBo..22..443L . doi : 10.2307/2419820 . JSTOR 2419820 .
- ^ Short F, Carruthers T, Dennison W, Waycott M (2007). „Globale Seegrasverteilung und -diversität: Ein bioregionales Modell“. Journal of Experimental Marine Biology and Ecology . 350 ( 1–2 ): 3–20 . Bibcode : 2007JEMBE.350....3S . doi : 10.1016/j.jembe.2007.06.012 .
- ^ Hughes AR, Williams SL, Duarte CM, Heck KL, Waycott M (2009). „Besorgniserregende Zusammenhänge: Abnehmende Seegraswiesen und bedrohte abhängige Arten“ . Frontiers in Ecology and the Environment . 7 (5): 242–246 . Bibcode : 2009FrEE....7..242H . doi : 10.1890/080041 .
- ^ Heck Hay KL, Hays G, Orth RJ (2003). „Kritische Bewertung der Hypothese der Aufzuchtrolle von Seegraswiesen“ . Marine Ecology Progress Series . 253 : 123–136 . Bibcode : 2003MEPS..253..123H . doi : 10.3354/meps253123 . hdl : 10536/DRO/DU:30058231 .
- ^ Tomlinson, Vargo (1966). „Zur Morphologie und Anatomie des Schildkrötengrases, Thalassia testudinum (Hydrocharitaceae). I. Vegetative Morphologie“. Bulletin of Marine Science . 16 : 748–761 .
- ^ a b Hogarth PJ (2015). Die Biologie der Mangroven und Seegräser . Oxford University Press. ISBN 978-0-19-871655-6Die
- Cullen -Unsworth LC , Jones BL, Lilley R, Unsworth RK (2018). „ Geheime Gärten unter dem Meer: Was sind Seegraswiesen und warum sind sie wichtig?“ Frontiers for Young Minds . 6 ( 2 ) 2: 1–10 . doi : 10.3389/frym.2018.00002 .Das Material wurde aus dieser Quelle kopiert, die unter einer Creative Commons Attribution 4.0 International License verfügbar ist .
- ^ a b c d Duarte CM (2011). "Bewertung der Kapazität von Seegraswiesen zur Kohlenstoffspeicherung: Aktuelle Einschränkungen und zukünftige Strategien". Ocean Coastal Management .
- ^ Greiner J (2013). „Die Wiederherstellung von Seegraswiesen erhöht die Bindung von „blauem Kohlenstoff“ in Küstengewässern“ . PLOS ONE . 8 (8) e72469. Bibcode : 2013PLoSO...872469G . doi : 10.1371/journal.pone.0072469 . PMC 3743776. PMID 23967303 .
- ^ Reynolds PL (2018). „Seegras und Seegraswiesen“ (PDF) . Smithsonian Ocean Portal .
- ^ McKenzie LJ, Nordlund LM, Jones BL, Cullen-Unsworth LC, Roelfsema C, Unsworth RK (2020). „Die globale Verbreitung von Seegraswiesen“ . Environmental Research Letters . 15 (7): 074041. Bibcode : 2020ERL....15g4041M . doi : 10.1088/1748-9326/ab7d06 . S2CID 216481192 . Das Material wurde aus dieser Quelle kopiert, die unter einer Creative Commons Attribution 4.0 International License verfügbar ist .
- ^ Heck KL, Carruthers TJ, Duarte CM, Hughes AR, Kendrick G, Orth RJ, et al. (2008). „Trophische Transfers aus Seegraswiesen subventionieren diverse marine und terrestrische Konsumenten“. Ecosystems . 11 (7): 1198–1210 . Bibcode : 2008Ecosy..11.1198H . doi : 10.1007/s10021-008-9155-y . S2CID 7289464 .
- ^ Nordlund LM, Koch EW, Barbier EB, Creed JC (2017). „Korrektur: Ökosystemleistungen von Seegraswiesen und ihre Variabilität zwischen Gattungen und geographischen Regionen“ . PLOS ONE . 12 (1) e0169942. Bibcode : 2017PLoSO..1269942N . doi : 10.1371/ journal.pone.0169942 . PMC 5215874. PMID 28056075 .
- Waycott M, Duarte CM, Carruthers TJ, Orth RJ, Dennison WC, Olyarnik S, et al. (2009). „ Der beschleunigte Verlust von Seegraswiesen weltweit bedroht Küstenökosysteme“ . Proceedings of the National Academy of Sciences . 106 (30): 12377–12381 . Bibcode : 2009PNAS..10612377W . doi : 10.1073 / pnas.0905620106 . PMC 2707273. PMID 19587236 .
- ^ a b Dunic JC, Brown CJ, Connolly RM, Turschwell MP, Côté IM (2021). „ Langfristiger Rückgang und Erholung der Wiesenflächen in den Seegrasbioregionen der Welt“ . Global Change Biology . 27 (17): 4096–4109 . Bibcode : 2021GCBio..27.4096D . doi : 10.1111 / gcb.15684 . hdl : 10072/404960 . PMID 33993580. S2CID 234746753 . Das Material wurde aus dieser Quelle kopiert, die unter einer Creative Commons Attribution 4.0 International License verfügbar ist .
- ^ Röhr ME, Holmer M, Baum JK, Björk M, Boyer K, Chin D, et al. (2018). „Blue Carbon Storage Capacity of Temperate Eelgrass (Zostera marina) Meadows“ (PDF) . Global Biogeochemical Cycles . 32 (10): 1457–1475 . Bibcode : 2018GBioC..32.1457R . doi : 10.1029/2018GB005941 . S2CID 53481706 .
{{cite journal}}: CS1 Wartung: Überschriebene Einstellung ( Link ) - ^ Maxwell PS, Eklöf JS, Van Katwijk MM, O'Brien KR, de la Torre-Castro M, Boström C, et al. (2017). „Die fundamentale Rolle ökologischer Rückkopplungsmechanismen für das adaptive Management von Seegraswiesen – ein Überblick“. Biological Reviews . 92 (3): 1521–1538 . doi : 10.1111/brv.12294 . hdl : 2066/160637 . PMID 27581168. S2CID 8693669 .
- Unsworth RK , Butterworth EG (2021). „ Seegraswiesen als wichtige Ressource für die Avifauna“ . Diversity . 13 ( 8 ): 363. Bibcode : 2021Diver..13..363U . doi : 10.3390/d13080363 .Das Material wurde aus dieser Quelle kopiert, die unter einer Creative Commons Attribution 4.0 International Lizenz verfügbar ist.
- ^ Bayraktarov E, Saunders MI, Abdullah S, Mills M, Beher J, Possingham HP, et al. (2016). „Kosten und Machbarkeit der marinen Küstenrenaturierung“ . Ecological Applications . 26 (4): 1055–1074 . Bibcode : 2016EcoAp..26.1055B . doi : 10.1890/15-1077 . PMID 27509748 .
- ^ Hemminga MA, Duarte CM (2000). Seegrasökologie . Cambridge University Press. ISBN 978-0-521-66184-3Die
- ^ Gattuso J (2006). „Lichtverfügbarkeit im Küstenmeer: Auswirkungen auf die Verbreitung benthischer photosynthetischer Organismen und deren Beitrag zur Primärproduktion“ . Biogeosciences . 3 (4): 489–513 . Bibcode : 2006BGeo....3..489G . doi : 10.5194/bg-3-489-2006 . hdl : 20.500.11937/23744 .
- ^ a b c Darnell K, Dunton K (2016). „Reproduktive Phänologie der subtropischen Seegräser Thalassia testudinum (Schildkrötengras) und Halodule wrightii (Flachgras) im nordwestlichen Golf von Mexiko“. Botanica Marina . 59 (6): 473–483 . Bibcode : 2016BoMar..59...80D . doi : 10.1515/bot-2016-0080 . S2CID 88685282 .
- ^ Harvey C (5. April 2021). „Seegraswälder wirken der Ozeanversauerung entgegen“ . Scientific American . Abgerufen am 23. November 2021 .
- Ricart AM, Ward M, Hill TM, Sanford E, Kroeker KJ, Takeshita Y, et al. (2021). „Küstenweite Belege für die Verbesserung des pH-Werts durch Seegraswiesen“ . Global Change Biology . 27 (11): 2580–2591 . Bibcode : 2021GCBio..27.2580R . doi : 10.1111/gcb.15594 . ISSN 1365-2486 . PMC 8252054. PMID 33788362 .
- ^ Jones CG, Lawton JH, Shachak M (1994). „Organismen als Ökosystemingenieure“. Oikos . 69 (3): 373–386 . Bibcode : 1994Oikos..69..373J . doi : 10.2307/3545850 . JSTOR 3545850 .
- ^ Unsworth RK, Cullen-Unsworth LC, Jones BL, Lilley RJ (5. August 2022). „Die planetare Bedeutung des Seegrasschutzes“. Science . 377 ( 6606): 609–613 . Bibcode : 2022Sci...377..609U . doi : 10.1126/science.abq6923 . PMID 35926055. S2CID 251347987 .
- ^ Orth RJ, Heck KL (2023). „Die Dynamik von Seegraswiesen: Geschichte, bisherige Erfolge und Zukunftsperspektiven“ . Estuaries and Coasts . 46 (7): 1653–1676 . Bibcode : 2023EstCo..46.1653O . doi : 10.1007/s12237-023-01252-4 . ISSN 1559-2723 . Abgerufen am 2. April 2026 . Das Material wurde aus dieser Quelle kopiert, die unter einer Creative Commons Attribution 4.0 International License verfügbar ist .
- ^ a b Dineen J (25. Juli 2001). " Thalassia testudinum (Schildkrötengras)" . Smithsonian Marine Station at Fort Pierce . Abgerufen am 7. November 2012 .
- ^ Macreadie PI, Baird ME, Trevathan-Tackett SM, Larkum AW, Ralph PJ (2013). „Quantifizierung und Modellierung der Kohlenstoffspeicherkapazität von Seegraswiesen“ . Marine Pollution Bulletin . 83 (2): 430–439 . doi : 10.1016/j.marpolbul.2013.07.038 . PMID 23948090 .
- ^ Nellemann C, et al. (2009). Blauer Kohlenstoff. Die Rolle gesunder Ozeane bei der Kohlenstoffbindung. Eine Schnellbewertung . Arendal, Norwegen: UNEP/GRID-Arendal.
- ^ National Academies of Sciences E (2019). Negative Emissions Technologies and Reliable Sequestration: A Research Agenda . Washington, DC: National Academies of Sciences, Engineering, and Medicine. S. 45. doi : 10.17226/25259 . ISBN 978-0-309-48452-7PMID 31120708 . S2CID 134196575 .
- ^ a b Fourqurean JW (2012). „Seegrasökosysteme als global bedeutender Kohlenstoffspeicher“. Nature Geoscience . 5 (7): 505–509 . Bibcode : 2012NatGe...5..505F . doi : 10.1038/ngeo1477 .
- ^ Oreska MP, McGlathery KJ, Aoki LR, Berger AC, Berg P, Mullins L (30. April 2020). „Das Treibhausgas-Kompensationspotenzial der Seegras-Wiederherstellung“ . Scientific Reports . 10 (1): 7325. Bibcode : 2020NatSR..10.7325O . doi : 10.1038/s41598-020-64094-1 . ISSN 2045-2322 . PMC 7193639. PMID 32355280 .
- ^ Infantes E, Hoeks S (2022). „Seegraswurzeln reduzieren die Erosionsraten von Kliffs in sandigen Sedimenten deutlich“ (PDF) . Marine Ecology Progress Series . 700 : 1–12 . Bibcode : 2022MEPS..700....1I . doi : 10.3354/meps14196 .
- ^ Koch EW, Ackerman JD, Verduin J, van Keulen M (2007). „Fluiddynamik in der Seegrasökologie – von Molekülen zu Ökosystemen“. Seegräser: Biologie, Ökologie und Naturschutz . Dordrecht: Springer. S. 193–225 . doi : 10.1007/978-1-4020-2983-7_8 . ISBN 978-1-4020-2983-7Die
- ^ Van Veelen TJ, Karunarathna H, Reeve DE (2021). „Modellierung der Wellendämpfung durch quasi-flexible Küstenvegetation“ . Coastal Engineering . 164 103820. Bibcode : 2021CoasE.16403820V . doi : 10.1016/j.coastaleng.2020.103820 . S2CID 229402284 . Das Material wurde aus dieser Quelle kopiert, die unter einer Creative Commons Attribution 4.0 International License verfügbar ist .
- ^ Infantes E (2012). „Einfluss einer Seegraswiese (Posidonia oceanica) auf die Wellenausbreitung“ (PDF) . Marine Ecology Progress Series . 456 : 63–72 . Bibcode : 2012MEPS..456...63I . doi : 10.3354/meps09754 .
- ^ Barcelona A (2023). „Die Rolle von Epiphyten bei der Partikelaufnahme durch Seegraswiesen“ . Marine Environmental Research . 192106238 (9) 106238. doi : 10.1016/j.marenvres.2023.106238 . PMID 37883828 – via Elsevier Science Direct.
- ^ Gregory D, Jensen P, Strætkvern K (2012). „Erhaltung und In-situ-Konservierung von hölzernen Schiffswracks aus marinen Umgebungen“ . Journal of Cultural Heritage . 13 (3): S139– S148. doi : 10.1016/j.culher.2012.03.005 .
- ^ Green AJ, Elmberg J (2014). „Ökosystemleistungen von Wasservögeln“ . Biological Reviews . 89 (1): 105–122 . doi : 10.1111 / brv.12045 . hdl : 10261/90051 . PMID 23786594. S2CID 17234490 .
- ^ Kollars NM, Henry AK, Whalen MA, Boyer KE, Cusson M, Eklöf JS, et al. (2017). „Metaanalyse wechselseitiger Verbindungen zwischen Seegraswiesen gemäßigter Breiten und Wasservögeln mit Implikationen für den Naturschutz“ . Frontiers in Plant Science . 8 2119. Bibcode : 2017FrPS....8.2119K . doi : 10.3389/fpls.2017.02119 . PMC 5744074. PMID 29312384 .
- ^ Cury PM, Boyd IL, Bonhommeau S, Anker-Nilssen T, Crawford RJ, Furness RW, et al. (2011). „Globale Reaktion der Seevögel auf den Rückgang der Futterfischbestände – ein Drittel für die Vögel“ . Science . 334 (6063): 1703–1706 . Bibcode : 2011Sci...334.1703C . doi : 10.1126/science.1212928 . PMID 22194577. S2CID 1855657 .
- ^ Percival S, Sutherland W, Evans P (1998). „Verlust von Gezeitenhabitaten und Wildvogelbestände: Anwendungen eines räumlichen Erschöpfungsmodells“ . Journal of Applied Ecology . 35 (1): 57–63 . Bibcode : 1998JApEc..35...57P . doi : 10.1046/j.1365-2664.1998.00273.x .
- ^ Frederiksen M, Edwards M, Richardson AJ, Halliday NC, Wanless S (2006). „Vom Plankton zu den Spitzenprädatoren: Bottom-up-Kontrolle eines marinen Nahrungsnetzes über vier trophische Ebenen hinweg“. Journal of Animal Ecology . 75 (6): 1259–1268 . Bibcode : 2006JAnEc..75.1259F . doi : 10.1111/j.1365-2656.2006.01148.x . PMID 17032358 .
- Unsworth RK , Nordlund LM, Cullen-Unsworth LC (2019). „Seegraswiesen unterstützen die globale Fischereiproduktion“ . Conservation Letters . 12 (1) e12566. Bibcode : 2019ConL...12E2566U . doi : 10.1111/conl.12566 . ISSN 1755-263X . Das Material wurde aus dieser Quelle kopiert, die unter einer Creative Commons Attribution 4.0 International License verfügbar ist .
- Jones BL , Unsworth RK, Nordlund LM, Eklöf JS, Ambo-Rappe R, Carly F, et al. (2022). „ Abhängigkeit von Seegrasfischereien in Abhängigkeit vom Haushaltseinkommen und der Anpassungsfähigkeit“ . Ocean & Coastal Management . 225 106247. Bibcode : 2022OCM...22506247J . doi : 10.1016/j.ocecoaman.2022.106247 .
- ^ a b Furkon, Nessa N, Ambo-Rappe R, Cullen-Unsworth LC, Kazimierz R, Unsworth F (2020). „Sozial-ökologische Treiber und Dynamik der Seegrasfischerei“ . Ambio . 49 (7): 1271– 1281. Bibcode : 2020Ambio..49.1271F . doi : 10.1007/s13280-019-01267-x . ISSN 0044-7447 . PMC 7190608 . PMID 31628609 . Das Material wurde aus dieser Quelle kopiert, die unter einer Creative Commons Attribution 4.0 International License verfügbar ist .
- ^ Nordlund LM, Unsworth RK, Gullström M, Cullen-Unsworth LC (2018). „Globale Bedeutung der Seegrasfischerei“ . Fish and Fisheries . 19 (3): 399–412 . Bibcode : 2018FiFi...19..399N . doi : 10.1111/faf.12259 . ISSN 1467-2960 . Das Material wurde aus dieser Quelle kopiert, die unter einer Creative Commons Attribution 4.0 International License verfügbar ist .
- ^ Byington C (17. Februar 2017). „Neue wissenschaftliche Erkenntnisse zeigen, dass Seegraswiesen Krankheitserreger unterdrücken“ . Nature.org . NatureNet Fellows for Cool Green Science . Abgerufen am 17. Februar 2017 .
- ^ Jones BJ, Cullen-Unsworth LC, Unsworth RK (2018). „Die Bestimmung der Stickstoffquelle mittels δ15N deckt menschliche und landwirtschaftliche Faktoren der Seegrasdegradation auf den Britischen Inseln auf“ . Frontiers in Plant Science . 9, 133. doi : 10.3389/fpls.2018.00133 . PMC 5808166. PMID 29467789 .
- ^ a b c d e f McMahon K, Van Dijk KJ, Ruiz-Montoya L, Kendrick GA, Krauss SL, Waycott M, et al. (2014). „Die Bewegungsökologie von Seegraswiesen“ . Proceedings of the Royal Society B: Biological Sciences . 281 (1795). doi : 10.1098 / rspb.2014.0878 . PMC 4213608. PMID 25297859 . Das Material wurde aus dieser Quelle kopiert, die unter einer Creative Commons Attribution 4.0 International License verfügbar ist .
- ^ Denny M (1993). Luft und Wasser: Die Biologie und Physik der Lebensmedien . Princeton University Press. ISBN 0-691-02518-5Die
- ^ Vogel S (5. Mai 2020). Leben in bewegten Flüssigkeiten: Die physikalische Biologie der Strömung – überarbeitete und erweiterte zweite Auflage . Princeton University Press. ISBN 978-0-691-21297-5Die
- ^ Larkum AW, Orth RJ, Duarte C (16. Mai 2007). Seegraswiesen: Biologie, Ökologie und Schutz . Springer. ISBN 978-1-4020-2983-7Die
- ^ Van Dijk JK, Van Tussenbroek BI, Jiménez-Durán K, Márquez-Guzmán GJ, Ouborg J (2009). „Hoher Genfluss und geringe populationsgenetische Struktur in Zusammenhang mit hohem Ausbreitungspotenzial einer tropischen marinen Angiosperme“ . Marine Ecology Progress Series . 390 : 67–77 . Bibcode : 2009MEPS..390...67V . doi : 10.3354/meps08190 . hdl : 2066/75120 .
- ^ a b Lacap CD, Vermaat JE, Rollon RN, Nacorda HM (2002). „Propagulenverbreitung der südostasiatischen Seegräser Enhalus acoroides und Thalassia hemprichii“ . Marine Ecology Progress Series . 235 : 75–80 . Bibcode : 2002MEPS..235...75L . doi : 10.3354/meps235075 .
- ^ Ruiz-Montoya L, Lowe RJ, Van Niel KP, Kendrick GA (2012). „Die Rolle der Hydrodynamik bei der Samenverbreitung in Seegräsern“ . Limnology and Oceanography . 57 (5): 1257–1265 . Bibcode : 2012LimOc..57.1257R . doi : 10.4319/lo.2012.57.5.1257 .
- ^ Maurer KD, Bohrer G, Medvigy D, Wright SJ (2013). „Der Zeitpunkt des Blattfalls beeinflusst die Ausbreitungsdistanz bei einem windverbreiteten tropischen Baum“ . Functional Ecology . 27 (1): 208–218 . Bibcode : 2013FuEco..27..208M . doi : 10.1111/1365-2435.12028 .
- ^ Van Tussenbroek BI, Monroy-Velazquez LV, Solis-Weiss V (2012). „Mesofauna, die Seegraspollen sammelt, könnte der marinen zoophilen Bestäubung dienen“ . Marine Ecology Progress Series . 469 : 1–6 . Bibcode : 2012MEPS..469....1V . doi : 10.3354/meps10072 .
- Figuerola J, Green AJ, Santamaria L (2002). „Vergleichende Ausbreitungseffektivität von Peigeongras-Samen durch im Südwesten Spaniens überwinternde Wasservögel: Quantitative und qualitative Aspekte“. Journal of Ecology . 90 (6): 989–1001 . Bibcode : 2002JEcol..90..989F . doi : 10.1046/j.1365-2745.2002.00734.x . hdl : 10261/43047 . S2CID 55550198 .
- ^ Sumoski SE, Orth RJ (2012). „Biotische Ausbreitung im Seegras Zostera marina“ . Marine Ecology Progress Series . 471 : 1–10 . Bibcode : 2012MEPS..471....1S . doi : 10.3354/meps10145 .
- ^ Sheppard JK, Marsh H, Jones RE, Lawler IR (2010). „Habitatnutzung von Dugongs in Abhängigkeit von Seegras-Nährstoffen, Gezeiten und Tagesrhythmen“. Marine Mammal Science . 26 (4): 855–879 . Bibcode : 2010MMamS..26..855S . doi : 10.1111/j.1748-7692.2010.00374.x .
- ^ Damschen EI, Brudvig LA, Haddad NM, Levey DJ, Orrock JL, Tewksbury JJ (2008). „Bewegungsökologie und Dynamik von Pflanzengemeinschaften in fragmentierten Landschaften“ . Proceedings of the National Academy of Sciences . 105 (49): 19078–19083 . Bibcode : 2008PNAS..10519078D . doi : 10.1073 / pnas.0802037105 . PMC 2614718. PMID 19060187 .
- ^ Tsoar A, Shohami D, Nathan R (2011). „Ein bewegungsökologischer Ansatz zur Untersuchung der Samenverbreitung und Pflanzeninvasion: Ein Überblick und eine Anwendung der Samenverbreitung durch Flughunde“. In: Richardson DM (Hrsg.). Fünfzig Jahre Invasionsökologie, das Vermächtnis von Charles Elton . Wiley Blackwell. S. 103–120 .
- ^ Brodersen KE, Koren K, Moßhammer M, Ralph PJ, Kühl M, Santner J (2017). „ Seegrasvermittelte Phosphor- und Eisenfreisetzung in tropischen Sedimenten“ . Environmental Science & Technology . 51 (24): 14155–14163 . Bibcode : 2017EnST...5114155B . doi : 10.1021/acs.est.7b03878 . ISSN 0013-936X . PMC 5738630. PMID 29149570 . Das Material wurde aus dieser Quelle kopiert, die unter einer Creative Commons Attribution 4.0 International License verfügbar ist .
- ^ Chung IK, Beardall J, Mehta S, Sahoo D, Stojkovic S (2011). „Nutzung mariner Makroalgen zur Kohlenstoffbindung: eine kritische Bewertung“. Journal of Applied Phycology . 23 (5): 877–886 . Bibcode : 2011JAPco..23..877C . doi : 10.1007/s10811-010-9604-9 . S2CID 45039472 .
- ^ Fourqurean JW, Zieman JC, Powell GV (1992). „Phosphorlimitierung der Primärproduktion in der Florida Bay: Belege aus den C:N:P-Verhältnissen der dominanten Seegrasart Thalassia testudinum“ . Limnology and Oceanography . 37 (1): 162–71 . Bibcode : 1992LimOc..37..162F . doi : 10.4319/lo.1992.37.1.0162 .
- ^ McLeod E, Chmura GL, Bouillon S, Salm R, Björk M, Duarte CM, et al. (2011). „Ein Konzept für blauen Kohlenstoff: Für ein besseres Verständnis der Rolle bewachsener Küstenlebensräume bei der CO₂-Bindung“ (PDF) . Frontiers in Ecology and the Environment . 9 (10): 552–560 . Bibcode : 2011FrEE....9..552M . doi : 10.1890/110004 .
- Fourqurean JW , Zieman JC (2002). „ Nährstoffgehalt der Seegrasart Thalassia testudinum offenbart regionale Muster der relativen Verfügbarkeit von Stickstoff und Phosphor in den Florida Keys, USA“. Biogeochemistry . 61 ( 3): 229–45 . Bibcode : 2002Biogc..61..229F . doi : 10.1023/A:1020293503405 . S2CID 4948302 .
- ^ Chmura G, Anisfield S (2003). „Globale Kohlenstoffbindung in Gezeiten- und Salzböden“ . Global Biogeochemical Cycles . 17 (4) 2002GB001917: n/a. Bibcode : 2003GBioC..17.1111C . doi : 10.1029/2002GB001917 .
- ^ Chi Z, Xie Y, Elloy F, Zheng Y, Hu Y, Chen S (2013). „Bicarbonatbasiertes integriertes Kohlenstoffabscheidungs- und Algenproduktionssystem mit alkalihalophilen Cyanobakterien“. Bioresource Technology . 133 : 513–521 . Bibcode : 2013BiTec.133..513C . doi : 10.1016/j.biortech.2013.01.150 . PMID 23455223 .
- ^ McGlathery KJ (2001). „Makroalgenblüten tragen zum Rückgang von Seegras in nährstoffreichen Küstengewässern bei“ (PDF) . Journal of Phycology . 37 (4): 453–456 . Bibcode : 2001JPcgy..37..453M . doi : 10.1046/j.1529-8817.2001.037004453.x . S2CID 38983997 .
- ^ Fox SE, Olsen YS, Spivak AC (2010). „Auswirkungen von Bottom-up- und Top-down-Kontrollen sowie des Klimawandels auf Makrophytengemeinschaften in Ästuaren und die von ihnen erbrachten Ökosystemleistungen“ (PDF) . In: Kemp PF (Hrsg.). Eco-DAS Symposium Proceedings . S. 129–145 .
- ^ Unsworth RK, Collier CJ, Waycott M, McKenzie LJ, Cullen-Unsworth LC (2015). „Ein Rahmenkonzept für die Resilienz von Seegraswiesen“ . Marine Pollution Bulletin . 100 (1): 34–46 . Bibcode : 2015MarPB.100...34U . doi : 10.1016/j.marpolbul.2015.08.016 . PMID 26342389 .
- ^ a b c d Altieri AH, Nelson HR, Gedan KB (2019). „Die Bedeutung der Sauerstoffarmut der Ozeane für tropische Ökosysteme – Korallen, Seegraswiesen und Mangroven“. In: Laffoley D, Baxter JM (Hrsg.). Sauerstoffarmut der Ozeane: Ein Problem für alle – Ursachen, Auswirkungen, Folgen und Lösungen (PDF) . IUCN.
- ^ Jordà G, Marbà N, Duarte CM (2012). „Mediterrane Seegraswiesen anfällig für regionale Klimaerwärmung“ . Nature Climate Change . 2 (11): 821–824 . Bibcode : 2012NatCC...2..821J . doi : 10.1038/nclimate1533 . ISSN 1758-6798 .
- ^ McGrath M (13. März 2021). „Klimawandel: Seegras, die ‚Ewigkeitspflanze‘, steht vor einer ungewissen Zukunft“ . BBC News . Abgerufen am 20. April 2021 .
- Vanderklift MA , Doropoulos C, Gorman D, Leal I, Minne AJ , Statton J , et al . (2020). „ Using Propagules to Restore Coastal Marine Ecosystems“ . Frontiers in Marine Science . 7, 724. Bibcode : 2020FrMaS...7..724V . doi : 10.3389 /fmars.2020.00724 . hdl : 11250/2733931 . S2CID : 221667138 . Das Material wurde aus dieser Quelle kopiert, die unter einer Creative Commons Attribution 4.0 International License verfügbar ist .
- ^ Valdez SR, Zhang YS, van der Heide T, Vanderklift MA, Tarquinio F, Orth RJ, et al. (20. Februar 2020). „Positive ökologische Wechselwirkungen und der Erfolg der Seegraswiederansiedlung“ . Frontiers in Marine Science . 7 91. Bibcode : 2020FrMaS...7...91V . doi : 10.3389/fmars.2020.00091 . ISSN 2296-7745 . Das Material wurde aus dieser Quelle kopiert, die unter einer Creative Commons Attribution 4.0 International License verfügbar ist .
- ^ Kuo J, Hartog Cd (2006). „Seegrasmorphologie, -anatomie und -ultrastruktur“. Seegras: Biologie, Ökologie und Schutz . S. 51–87 . doi : 10.1007/978-1-4020-2983-7_3 . ISBN 978-1-4020-2942-4Die
- ^ a b Kendrick GA, Waycott M, Carruthers TJ, Cambridge ML, Hovey R, Krauss SL, et al. (2012). „Die zentrale Rolle der Ausbreitung für den Erhalt und die Persistenz von Seegraspopulationen“ . BioScience . 62 (1): 56–65 . Bibcode : 2012BiSci..62...56K . doi : 10.1525/bio.2012.62.1.10 . hdl : 2440/73234 . S2CID 4632119 .
- ^ Harwell MC, Orth RJ (2002). „Langstreckenausbreitungspotenzial einer marinen Makrophyte“ . Ecology . 83 (12): 3319–3330 . doi : 10.1890/0012-9658(2002)083[3319:lddpia]2.0.co;2 .
- ^ a b Kendrick GA, Orth RJ, Statton J, Hovey R, Ruiz Montoya L, Lowe RJ, et al. (2017). „Demografische und genetische Vernetzung: Die Rolle und Folgen von Reproduktion, Ausbreitung und Rekrutierung bei Seegraswiesen“. Biological Reviews . 92 (2): 921–938 . doi : 10.1111/brv.12261 . PMID 27010433. S2CID 3470879 .
- ^ Ballesteros E, Cebrian E, Garcia-Rubies A, Alcoverro T, Romero J, Font X (2005). „Pseudovivipary, eine neue Form der asexuellen Fortpflanzung im Seegras Posidonia Oceanica“. Botanica Marina . 48 (2): 26. Bibcode : 2005BoMar..48...26B . doi : 10.1515/BOT.2005.026 . HDL : 10261/2993 . S2CID 84864719 .
- ^ Sinclair EA, Statton J, Hovey R, Anthony JM, Dixon KW, Kendrick GA (2015). „Reproduktion an den Extremen: Pseudoviviparie, Hybridisierung und genetischer Mosaizismus bei Posidonia australis (Posidoniaceae)“ . Annals of Botany . 117 (2): 237–47 . doi : 10.1093/aob/ mcv162 . PMC 4724040. PMID 26578720 .
- ^ Inglis GJ (2000). „Störungsbedingte Heterogenität in den Samenbanken einer marinen Angiosperme“. Journal of Ecology . 88 (1): 88–99 . Bibcode : 2000JEcol..88...88I . doi : 10.1046/j.1365-2745.2000.00433.x . S2CID 84928065 .
- ^ a b Orth RJ, Harwell MC, Bailey EM, Bartholomew A, Jawad JT, Lombana AV, et al. (2000). „Eine Übersicht über Probleme der Samenruhe und Keimung von Seegras: Implikationen für Naturschutz und Wiederherstellung“ . Marine Ecology Progress Series . 200 : 277–288 . Bibcode : 2000MEPS..200..277O . doi : 10.3354/meps200277 .
- Statton J, Dixon KW, Hovey RK, Kendrick GA (2012). „ Eine vergleichende Bewertung von Ansätzen und Ergebnissen zur Seegraswiederbegrünung in der Shark Bay und der Florida Bay“. Marine and Freshwater Research . 63 (11): 984. Bibcode : 2012MFRes..63..984S . doi : 10.1071/mf12032 .
- Van Katwijk MM, Thorhaug A, Marbà N, Orth RJ, Duarte CM, Kendrick GA, et al. (2016). „Globale Analyse der Seegraswiederherstellung: Die Bedeutung großflächiger Anpflanzungen“ . Journal of Applied Ecology . 53 (2): 567–578 . Bibcode : 2016JApEc..53..567V . doi : 10.1111/1365-2664.12562 . hdl : 10754/621770 .
- ^ Orth RJ, Luckenbach ML, Marion SR, Moore KA, Wilcox DJ (2006). „Seegraserholung in den Küstenbuchten der Delmarva-Halbinsel, USA“. Aquatic Botany . 84 (1): 26–36 . Bibcode : 2006AqBot..84...26O . doi : 10.1016/j.aquabot.2005.07.007 .
- ^ Fonseca MS, Kenworthy WJ, Thayer GW (1998). Richtlinien für die Erhaltung und Wiederherstellung von Seegraswiesen in den Vereinigten Staaten und angrenzenden Gewässern (Bericht). Washington, DC: US-Handelsministerium. Archiviert vom Original am 15. April 2017.
- ^ Kirkman H (1999). „Pilotversuche zur Anpflanzung von Sämlingen und kleinen Seegras-Propagulen in Westaustralien“. Marine Pollution Bulletin . 37 ( 8–12 ): 460–467 . Bibcode : 1999MarPB..37..460K . doi : 10.1016/s0025-326x(99)00146-0 .
- ^ a b c Tanner JE (2015). „Wiederherstellung der Seegrasart Amphibolis antarctica – Zeitliche Variabilität und langfristiger Erfolg“. Estuaries and Coasts . 38 (2): 668–678 . Bibcode : 2015EstCo..38..668T . doi : 10.1007/s12237-014-9823-4 . S2CID 88784518 .
- ^ a b c d Orth RJ, Moore KA, Marion SR, Wilcox DJ, Parrish DB (2012). „Die Zugabe von Saatgut erleichtert die Erholung von Seegras in einem Küstenbuchtsystem“ . Marine Ecology Progress Series . 448 : 177–195 . Bibcode : 2012MEPS..448..177O . doi : 10.3354/meps09522 .
- ^ Pickerell CH, Schott S, Wyllie-Echeverria S (2005). „Bojenbasierte Aussaat: Demonstration einer neuen Methode zur Anpflanzung von Seegras (Zostera marina L.)“. Ecological Engineering . 25 (2): 127–136 . Bibcode : 2005EcEng..25..127P . doi : 10.1016/j.ecoleng.2005.03.005 .
- Statton J, Cambridge ML, Dixon KW, Kendrick GA (2013). „Aquakultur von Posidonia australis -Sämlingen für Seegras-Renaturierungsprogramme: Einfluss von Sedimenttyp und organischer Anreicherung auf das Wachstum“. Restoration Ecology . 21 (2): 250–259 . Bibcode : 2013ResEc..21..250S . doi : 10.1111/j.1526-100x.2012.00873.x . S2CID 84428852 .
- Statton J, Montoya LR, Orth RJ, Dixon KW, Kendrick GA (2017). „ Identifizierung kritischer Rekrutierungsengpässe, die die Etablierung von Sämlingen in einem degradierten Seegrasökosystem einschränken“ . Scientific Reports . 7 ( 1): 14786. Bibcode : 2017NatSR...714786S . doi : 10.1038/s41598-017-13833-y . PMC 5665928. PMID 29093460 .
- ^ Orth RJ, Fishman JR, Harwell MC, Marion SR (2003). „Einfluss der Samendichte auf die Keimung und das anfängliche Anwachsen von Seegras (Zostera marina) in der Chesapeake Bay“ . Marine Ecology Progress Series . 250 : 71–79 . Bibcode : 2003MEPS..250...71O . doi : 10.3354/meps250071 .
- ^ Orth RJ, Marion SR, Moore KA (2007). Eine Zusammenfassung der Fortpflanzungsbiologie von Seegras (Zostera marina) mit Schwerpunkt auf Samenbiologie und Ökologie aus der Chesapeake-Bay-Region (PDF) (Bericht). US Army Corps of Engineers.
- ^ Infantes E, Eriander L, Moksnes PO (2016). „Wiederherstellung von Seegras (Zostera marina) an der schwedischen Westküste mittels Samen“. Marine Ecology Progress Series . 545 : 31–45 . Bibcode : 2016MEPS..546...31I . doi : 10.3354/meps11615 .
- ^ Strydom S, McMahon K, Lavery PS (2017). „Reaktion des Seegrases Halophila ovalis auf veränderte Lichtqualität in einer simulierten Baggerabgasfahne“ . Marine Pollution Bulletin . 121 ( 1–2 ): 323–330 . Bibcode : 2017MarPB.121..323S . doi : 10.1016/j.marpolbul.2017.05.060 . PMID 28625617 .
- ^ „Seegras-Wiederherstellung | The Nature Conservancy in Virginia“ . www.nature.org . Abgerufen am 6. August 2018 .
- ^ „Seegras-Wiederherstellung“ . myfwc.com . Abgerufen am 6. August 2018 .
- ^ „Seegras-Wiederansiedlungsinitiative“ . Malama Maunalua . Abgerufen am 6. August 2018 .
- ^ Unsworth RK, McKenzie LJ, Collier CJ, Cullen-Unsworth LC, Duarte CM, Eklöf JS, et al. (1. August 2019). „Globale Herausforderungen für den Seegrasschutz“ . Ambio . 48 (8): 801–815 . Bibcode : 2019Ambio..48..801U . doi : 10.1007/s13280-018-1115-y . ISSN 1654-7209 . PMC 6541581. PMID 30456457 .
- ^ van Katwijk MM, Thorhaug A, Marbà N, Orth RJ, Duarte CM, Kendrick GA, et al. (25. November 2015). „Globale Analyse der Seegraswiederherstellung: Die Bedeutung großflächiger Anpflanzungen“ . Journal of Applied Ecology . 53 (2): 567–578 . Bibcode : 2016JApEc..53..567V . doi : 10.1111/1365-2664.12562 . hdl : 11568/759969 . ISSN 0021-8901 .
- ^ a b „Restaurierungsmethoden“ . Archiviert vom Original am 19. Februar 2020. Abgerufen am 9. März 2021 .
- ^ Mackay J, Stünzner I (24. Oktober 2019). „Seegras-Aufzuchtstation in Zentral-Queensland könnte CO₂-Emissionen kompensieren“ . ABC News . Australian Broadcasting Corporation . Abgerufen am 24. Oktober 2019.
Eine Blüte kann 15 Samen produzieren, und ein Samen, der unter den richtigen Bedingungen gepflanzt wird, kann einen Hektar Seegras hervorbringen.


