
| Teil einer Reihe von Übersichten über |
| Meeresleben |
|---|
 |
|

Meereslebewesen , auch bekannt als Meeres- oder Ozeanleben , umfasst alle Organismen, die in Salzwasserhabitaten leben, oder ökologische Gemeinschaften , die alle aquatischen Tiere , Pflanzen , Algen , Pilze , Protisten , einzelligen Mikroorganismen und die dazugehörigen Viren beinhalten, die im Salzwasser mariner Lebensräume vorkommen – sei es im Meerwasser von Randmeeren und Ozeanen oder im Brackwasser von Küstenfeuchtgebieten , Lagunen , Ästuaren und Binnenmeeren . Bis 2023 wurden mehr als 242.000 Meeresarten dokumentiert , und schätzungsweise zwei Millionen weitere Arten sind noch unentdeckt. Im Durchschnitt beschreiben Forscher jährlich etwa 2.300 neue Meeresarten. [ 2 ] [ 3 ] Die Erforschung des Meereslebens erstreckt sich über verschiedene Fachgebiete, vor allem die Meeresbiologie und die biologische Ozeanographie.
Die Ozeane bedecken volumenmäßig etwa 90 % des Lebensraums auf der Erde [ 4 ] und dienten im Laufe der Erdgeschichte als Wiege des Lebens und als lebenswichtige Rückzugsgebiete für Organismen . Die frühesten bekannten Lebensformen entwickelten sich als anaerobe Prokaryoten ( Archaeen und Bakterien ) in den archaischen Ozeanen um die Tiefsee -Hydrothermalquellen , bevor Photoautotrophe auftraten und es den mikrobiellen Matten ermöglichten , sich in flache Meeresgebiete auszubreiten . Das Große Sauerstoffereignis des frühen Proterozoikums veränderte die marine Chemie grundlegend , was wahrscheinlich ein weitverbreitetes Aussterben anaerober Organismen verursachte , aber auch zur Evolution von Eukaryoten durch Symbiogenese zwischen überlebenden Anaerobiern und Aerobiern führte . Komplexes Leben entstand schließlich im Neoproterozoikum aus marinen Eukaryoten , was in einer großen evolutionären Radiation hauptsächlich sessiler Makrofauna, der sogenannten Avalon-Explosion , gipfelte . Im frühen Phanerozoikum folgte darauf ein bedeutenderes Radiationsereignis, die Kambrische Explosion , in deren Verlauf sich aktiv bewegende Eumetazoen stark verbreiteten. Diese Meereslebewesen breiteten sich auch in Süßwasser aus , wo Pilze und Grünalgen , die an Uferzonen gespült wurden, sich im Laufe des Ordoviziums ansiedelten und sich im Silur und Devon rasch landeinwärts ausbreiteten , wodurch der Weg für die Entwicklung terrestrischer Ökosysteme geebnet wurde.
Heute reicht die Größe mariner Arten von mikroskopisch kleinen Phytoplanktonarten mit einer Größe von nur 0,02 Mikrometern bis hin zu riesigen Walen wie dem Blauwal , der eine Länge von bis zu 33 Metern erreichen kann. [ 5 ] [ 6 ] Schätzungen zufolge machen marine Mikroorganismen etwa 70 % [ 7 ] oder etwa 90 % [ 8 ] [ 1 ] der gesamten marinen Biomasse aus . Marine Primärproduzenten , hauptsächlich Cyanobakterien und Chloroplastenalgen , produzieren Sauerstoff und binden Kohlenstoff durch Photosynthese . Dadurch erzeugen sie enorme Biomasse und beeinflussen die Atmosphärenchemie maßgeblich . Wanderfische , wie beispielsweise ozeanodrome und anadrome Arten , tragen ebenfalls zur Biomassebildung und zum biologischen Energietransfer zwischen verschiedenen Regionen der Erde bei. Viele von ihnen fungieren als Schlüsselarten in verschiedenen Ökosystemen. Auf einer fundamentalen Ebene beeinflusst das Meeresleben die Natur des Planeten und formt und schützt zum Teil Küstenlinien; einige Meeresorganismen (z. B. Korallen ) tragen sogar zur Entstehung neuen Landes durch den Aufbau von Riffen bei .
Das marine Leben lässt sich grob in Autotrophe und Heterotrophe einteilen , je nach ihrer Rolle im Nahrungsnetz : Zu den Autotrophen zählen photosynthetische und die deutlich selteneren chemosynthetischen Organismen ( Chemoautotrophe ), die anorganische Moleküle mithilfe von Sonnenlicht oder exothermer Oxidation in organische Verbindungen umwandeln können . Beispiele hierfür sind Cyanobakterien, eisenoxidierende Bakterien , Algen ( Seetang und verschiedene Mikroalgen ) und Seegras . Heterotrophe Organismen hingegen sind auf die Nahrungsaufnahme anderer Organismen angewiesen, um Nährstoffe und Energie zu gewinnen. Dazu gehören Tiere, Pilze, Protisten und nicht-photosynthetische Mikroorganismen. Meerestiere werden zudem informell in marine Wirbeltiere und marine Wirbellose unterteilt . Beide Gruppen sind polyphyletisch: Zu den Wirbeltieren gehören alle Salzwasserfische , Meeressäugetiere , Meeresreptilien und Seevögel , zu den Wirbellosen alle Tiere, die nicht zu den Wirbeltieren gezählt werden . Im Allgemeinen sind marine Wirbeltiere viel stärker nektonisch und benötigen einen höheren Stoffwechselbedarf an Sauerstoff und Nährstoffen. Sie leiden oft unter Stress oder sterben sogar massenhaft (auch „ Fischsterben “ genannt) während anoxischer Ereignisse , wohingegen marine Wirbellose viel toleranter gegenüber Hypoxie sind und eine breite Palette morphologischer und physiologischer Anpassungen aufweisen, um in sauerstoffarmen Gewässern zu überleben .
Wasser
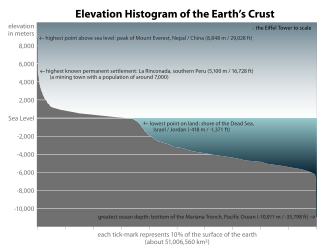
Ohne Wasser gibt es kein Leben. [ 9 ] Es wird aufgrund seiner Fähigkeit, viele Substanzen zu lösen , als universelles Lösungsmittel [ 10 ] [ 11 ] und als Lösungsmittel des Lebens [ 12 ] bezeichnet . Wasser ist die einzige häufig vorkommende Substanz, die unter den für das Leben auf der Erde üblichen Bedingungen sowohl fest als auch flüssig und gasförmig ist. [ 13 ] Der Nobelpreisträger Albert Szent-Györgyi bezeichnete Wasser als „ mater und matrix“ : Mutter und Schoß des Lebens. [ 14 ]

Der Reichtum an Oberflächenwasser auf der Erde ist ein einzigartiges Merkmal im Sonnensystem . Die Hydrosphäre der Erde besteht hauptsächlich aus den Ozeanen, umfasst aber streng genommen alle Wasseroberflächen der Welt, einschließlich Binnenmeere, Seen, Flüsse und Grundwasser bis zu einer Tiefe von 2.000 Metern. Der tiefste Punkt unter Wasser ist das Challengertief im Marianengraben im Pazifischen Ozean mit einer Tiefe von 10.900 Metern. [ Anmerkung 1 ] [ 15 ]
Üblicherweise wird die Erde in fünf separate Ozeane unterteilt, die jedoch alle zu einem einzigen Weltozean verbunden sind . [ 16 ] Die Masse dieses Weltozeans beträgt 1,35 × 10 <sup>16</sup>18 Tonnen oder etwa 1/4400 der gesamten Erdmasse. Der Weltozean bedeckt eine Fläche von3,618 × 10 8 km 2 mit einer mittleren Tiefe von3682 m³ , was zu einem geschätzten Volumen von1,332 × 10⁹ km³ . [ 17 ] Wenn die gesamte Erdkruste auf der gleichen Höhe wie eine glatte Kugel läge, ergäbe sich eine Tiefe des resultierenden Weltozeans von etwa 2,7 Kilometern (1,7 Meilen ) . [ 18 ] [ 19 ]

Etwa 97,5 % des Wassers auf der Erde sind Salzwasser ; die restlichen 2,5 % sind Süßwasser . Der größte Teil des Süßwassers – etwa 69 % – ist in Form von Eis in Eiskappen und Gletschern gebunden . [ 20 ] Der durchschnittliche Salzgehalt der Ozeane beträgt etwa 35 Gramm Salz pro Kilogramm Meerwasser (3,5 % Salz). [ 21 ] Der größte Teil des Salzes im Meer stammt aus der Verwitterung und Erosion von Gesteinen an Land. [ 22 ] Ein Teil des Salzes wird durch vulkanische Aktivität freigesetzt oder aus abgekühlten magmatischen Gesteinen gewonnen . [ 23 ]
Die Ozeane sind zudem ein Reservoir gelöster atmosphärischer Gase, die für das Überleben vieler Wasserlebewesen unerlässlich sind. [ 24 ] Meerwasser hat einen wichtigen Einfluss auf das Weltklima, da die Ozeane als großer Wärmespeicher fungieren . [ 25 ] Verschiebungen in der Temperaturverteilung der Ozeane können erhebliche Wetterveränderungen, wie beispielsweise die El-Niño-Südliche-Oszillation, verursachen . [ 26 ]
Insgesamt bedeckt der Ozean 71 Prozent der Erdoberfläche [ 4 ] und ist durchschnittlich fast 3,7 Kilometer tief [ 27 ] . Volumenmäßig bietet der Ozean etwa 90 Prozent des Lebensraums auf unserem Planeten [ 4 ] . Der Science-Fiction-Autor Arthur C. Clarke merkte an, dass es treffender wäre, die Erde als „Planet Ozean“ zu bezeichnen [ 28 ] [ 29 ] .
Wasser findet sich jedoch auch an anderen Orten im Sonnensystem. Europa , einer der Jupitermonde , ist etwas kleiner als der Erdmond . Es besteht eine hohe Wahrscheinlichkeit, dass sich unter seiner Eisoberfläche ein großer Salzwasserozean befindet. [ 30 ] Schätzungen zufolge ist die äußere Kruste aus festem Eis etwa 10–30 km dick, und der darunter liegende flüssige Ozean ist etwa 100 km tief. [ 31 ] Damit wäre Europas Ozean mehr als doppelt so groß wie der Ozean der Erde. Es gibt Spekulationen darüber, dass Europas Ozean Leben beherbergen könnte [ 32 ] [ 33 ] und möglicherweise auch mehrzellige Mikroorganismen beherbergen könnte , falls hydrothermale Quellen am Meeresboden aktiv sind. [ 34 ] Auch Enceladus , ein kleiner Eismond des Saturn, besitzt anscheinend einen unterirdischen Ozean , aus dem aktiv warmes Wasser an die Oberfläche austritt. [ 35 ]
Evolution
−4500 — – — – −4000 — – — – −3500 — – — – -3000 — – — – −2500 — – — – -2000 — – — – -1500 — – — – −1000 — – — – −500 — – — – 0 — |
| |||||||||||||||||||||||||
Historische Entwicklung
Die Erde ist etwa 4,54 Milliarden Jahre alt. [ 36 ] [ 37 ] [ 38 ] Die frühesten unbestrittenen Lebensnachweise auf der Erde stammen aus der Zeit vor mindestens 3,5 Milliarden Jahren [ 39 ] [ 40 ] , dem Eoarchaikum , nachdem sich die geologische Kruste nach dem vorangegangenen, flüssigen Hadaikum zu verfestigen begann . Fossilien mikrobieller Matten wurden in 3,48 Milliarden Jahre altem Sandstein in Westaustralien gefunden . [ 41 ] [ 42 ] Weitere frühe physikalische Belege für biogene Substanzen sind Graphit in 3,7 Milliarden Jahre alten Metasedimenten, die in Westgrönland entdeckt wurden [ 43 ] , sowie „Überreste biotischen Lebens “, die in 4,1 Milliarden Jahre alten Gesteinen in Westaustralien gefunden wurden. [ 44 ] [ 45 ] Einem der Forscher zufolge: „Wenn Leben auf der Erde relativ schnell entstanden ist, … dann könnte es im Universum weit verbreitet sein .“ [ 44 ]
Alle Organismen auf der Erde stammen von einem gemeinsamen Vorfahren oder einem gemeinsamen Genpool ab . [ 46 ] [ 47 ] Man geht davon aus, dass vor etwa vier Milliarden Jahren durch hochenergetische chemische Reaktionen ein sich selbst replizierendes Molekül entstand und eine halbe Milliarde Jahre später der letzte gemeinsame Vorfahre allen Lebens existierte. [ 48 ] Der aktuelle wissenschaftliche Konsens besagt, dass die komplexe Biochemie des Lebens aus einfacheren chemischen Reaktionen hervorgegangen ist. [ 49 ] Der Beginn des Lebens könnte selbstreplizierende Moleküle wie RNA [ 50 ] und die Bildung einfacher Zellen umfasst haben. [ 51 ] Im Jahr 2016 berichteten Wissenschaftler über 355 Gene des letzten gemeinsamen Vorfahren (LUCA) allen Lebens , einschließlich der Mikroorganismen, auf der Erde . [ 52 ]
Die heutigen Arten stellen ein Stadium im Evolutionsprozess dar, deren Vielfalt das Ergebnis einer langen Reihe von Artbildungs- und Aussterbeereignissen ist. [ 53 ] Die gemeinsame Abstammung der Organismen wurde zunächst aus vier einfachen Tatsachen abgeleitet: Erstens weisen sie geografische Verbreitungsmuster auf, die nicht durch lokale Anpassung erklärt werden können. Zweitens besteht die Vielfalt des Lebens nicht aus einer Vielzahl einzigartiger Organismen, sondern aus Organismen mit morphologischen Ähnlichkeiten . Drittens ähneln rudimentäre Merkmale ohne erkennbaren Zweck funktionalen Merkmalen ursprünglicher Vorfahren. Und schließlich lassen sich Organismen anhand dieser Ähnlichkeiten in eine Hierarchie verschachtelter Gruppen einordnen – ähnlich einem Stammbaum. [ 54 ] Neuere Forschungen deuten jedoch darauf hin, dass dieser „Stammbaum des Lebens“ aufgrund horizontalen Gentransfers komplexer sein könnte als ein einfacher verzweigter Baum, da sich einige Gene unabhängig voneinander zwischen entfernt verwandten Arten verbreitet haben. [ 55 ] [ 56 ]
Auch vergangene Arten haben Spuren ihrer Evolutionsgeschichte hinterlassen. Fossilien bilden zusammen mit der vergleichenden Anatomie heutiger Organismen den morphologischen bzw. anatomischen Befund. [ 57 ] Durch den Vergleich der Anatomie moderner und ausgestorbener Arten können Paläontologen auf deren Abstammungslinien schließen. Dieser Ansatz ist jedoch am erfolgreichsten bei Organismen mit harten Körperteilen wie Schalen, Knochen oder Zähnen. Da Prokaryoten wie Bakterien und Archaeen nur wenige gemeinsame morphologische Merkmale aufweisen, geben ihre Fossilien keine Auskunft über ihre Abstammung.
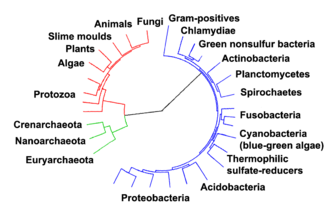
Neuere Erkenntnisse über eine gemeinsame Abstammung stammen aus der Untersuchung biochemischer Ähnlichkeiten zwischen Organismen. So verwenden beispielsweise alle lebenden Zellen denselben Grundsatz an Nukleotiden und Aminosäuren . [ 59 ] Die Entwicklung der Molekulargenetik hat die in den Genomen von Organismen hinterlassenen Spuren der Evolution sichtbar gemacht: Mithilfe der durch Mutationen erzeugten molekularen Uhr lässt sich der Zeitpunkt der Artentrennung bestimmen. [ 60 ] Beispielsweise haben DNA-Sequenzvergleiche gezeigt, dass Menschen und Schimpansen 98 % ihres Genoms gemeinsam haben. Die Analyse der wenigen Bereiche, in denen sie sich unterscheiden, trägt dazu bei, den Zeitpunkt des gemeinsamen Vorfahren dieser Arten zu bestimmen. [ 61 ]
Prokaryoten besiedelten die Erde vor etwa 3–4 Milliarden Jahren. [ 62 ] [ 63 ] In den folgenden Milliarden Jahren traten bei diesen Organismen keine offensichtlichen Veränderungen in Morphologie oder Zellorganisation auf. [ 64 ] Die eukaryotischen Zellen entstanden vor 1,6 bis 2,7 Milliarden Jahren. Die nächste bedeutende Veränderung der Zellstruktur erfolgte durch die Aufnahme von Bakterien in eukaryotische Zellen in einer kooperativen Verbindung, der sogenannten Endosymbiose . [ 65 ] [ 66 ] Die aufgenommenen Bakterien und die Wirtszelle durchliefen anschließend eine Koevolution, wobei sich die Bakterien entweder zu Mitochondrien oder Hydrogenosomen entwickelten . [ 67 ] Eine weitere Aufnahme von cyanobakterienähnlichen Organismen führte zur Bildung von Chloroplasten in Algen und Pflanzen. [ 68 ]

Die Geschichte des Lebens bestand bis vor etwa 610 Millionen Jahren aus einzelligen Eukaryoten, Prokaryoten und Archaeen. Erst im Ediacarium traten in den Ozeanen mehrzellige Organismen auf . [ 62 ] [ 69 ] Die Evolution der Vielzelligkeit erfolgte in mehreren unabhängigen Ereignissen bei so unterschiedlichen Organismen wie Schwämmen , Braunalgen , Cyanobakterien , Schleimpilzen und Myxobakterien . [ 70 ] Im Jahr 2016 berichteten Wissenschaftler, dass vor etwa 800 Millionen Jahren eine geringfügige genetische Veränderung in einem einzigen Molekül namens GK-PID Organismen möglicherweise den Übergang vom Einzeller zum Vielzeller ermöglichte. [ 71 ]
Kurz nach dem Auftreten dieser ersten vielzelligen Organismen entstand innerhalb von etwa 10 Millionen Jahren eine bemerkenswerte Artenvielfalt – die sogenannte Kambrische Explosion . In dieser Zeit tauchten die meisten Arten moderner Tiere im Fossilienbestand auf, ebenso wie einzigartige Abstammungslinien, die später ausstarben. [ 72 ] Verschiedene Auslöser für die Kambrische Explosion wurden vorgeschlagen, darunter die Anreicherung von Sauerstoff in der Atmosphäre durch Photosynthese. [ 73 ]
Vor etwa 500 Millionen Jahren begannen Pflanzen und Pilze, das Land zu besiedeln. Belege für das Auftreten der ersten Landpflanzen finden sich im Ordovizium vor etwa 450 Millionen Jahren in Form fossiler Sporen. [ 74 ] Die Diversifizierung der Landpflanzen begann im späten Silur vor etwa 430 Millionen Jahren . [ 75 ] Auf die Besiedlung des Landes durch Pflanzen folgten bald Arthropoden und andere Tiere. [ 76 ] Insekten waren besonders erfolgreich und stellen noch heute die Mehrheit der Tierarten dar. [ 77 ] Amphibien erschienen erstmals vor etwa 364 Millionen Jahren, gefolgt von frühen Amnioten und Vögeln vor etwa 155 Millionen Jahren (beide aus reptilienartigen Linien), Säugetieren vor etwa 129 Millionen Jahren, Homininae vor etwa 10 Millionen Jahren und dem modernen Menschen vor etwa 250.000 Jahren. [ 78 ] [ 79 ] [ 80 ] Trotz der Evolution dieser großen Tiere sind kleinere Organismen, die den früh in diesem Prozess entstandenen Arten ähneln, weiterhin sehr erfolgreich und dominieren die Erde, wobei der Großteil sowohl der Biomasse als auch der Arten aus Prokaryoten besteht. [ 81 ]
Schätzungen zur Anzahl der derzeit auf der Erde vorkommenden Arten reichen von 10 bis 14 Millionen [ 82 ] , von denen etwa 1,2 Millionen dokumentiert und über 86 Prozent noch nicht beschrieben wurden. [ 83 ]
Mikroorganismen


Mikroorganismen machen etwa 70 % der marinen Biomasse aus . [ 7 ] Ein Mikroorganismus , auch Mikrobe genannt, ist ein mikroskopisch kleiner Organismus , der mit bloßem Auge nicht erkennbar ist. Er kann einzellig [ 84 ] oder mehrzellig sein . Mikroorganismen sind vielfältig und umfassen alle Bakterien und Archaeen , die meisten Protozoen wie Algen , Pilze und bestimmte mikroskopische Tiere wie Rädertierchen .
Viele makroskopische Tiere und Pflanzen haben mikroskopische Jugendstadien . Einige Mikrobiologen klassifizieren auch Viren (und Viroide ) als Mikroorganismen, andere betrachten sie jedoch als nicht lebend. [ 85 ] [ 86 ]
Mikroorganismen sind für den Nährstoffkreislauf in Ökosystemen unerlässlich, da sie als Zersetzer wirken . Einige Mikroorganismen sind pathogen und verursachen Krankheiten und sogar den Tod von Pflanzen und Tieren. [ 87 ] Als Bewohner des größten Ökosystems der Erde treiben mikrobielle marine Systeme Veränderungen in allen globalen Systemen voran. Mikroben sind für nahezu die gesamte Photosynthese im Ozean sowie für den Kreislauf von Kohlenstoff , Stickstoff , Phosphor , anderen Nährstoffen und Spurenelementen verantwortlich. [ 88 ]


Das mikroskopische Leben unter Wasser ist vielfältig und noch immer unzureichend erforscht, beispielsweise die Rolle von Viren in marinen Ökosystemen. [ 89 ] Die meisten marinen Viren sind Bakteriophagen , die für Pflanzen und Tiere harmlos sind, aber für die Regulation von Salz- und Süßwasserökosystemen unerlässlich sind. [ 90 ] : 5 Sie infizieren und zerstören Bakterien in aquatischen mikrobiellen Gemeinschaften und stellen den wichtigsten Mechanismus des Kohlenstoffrecyclings im marinen Milieu dar. Die aus den abgestorbenen Bakterienzellen freigesetzten organischen Moleküle stimulieren das Wachstum neuer Bakterien und Algen. [ 90 ] : 593 Die Virusaktivität trägt möglicherweise auch zur biologischen Pumpe bei , dem Prozess, durch den Kohlenstoff in der Tiefsee gebunden wird . [ 91 ]
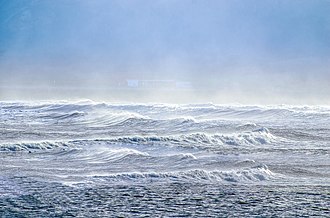
Ein Strom von Mikroorganismen in der Luft umkreist den Planeten oberhalb von Wettersystemen, aber unterhalb von kommerziellen Flugrouten. [ 92 ] Einige dieser Mikroorganismen werden von terrestrischen Staubstürmen aufgewirbelt, die meisten stammen jedoch von marinen Mikroorganismen aus dem Gischt . Im Jahr 2018 berichteten Wissenschaftler, dass täglich Hunderte Millionen Viren und Dutzende Millionen Bakterien auf jedem Quadratmeter der Erde abgelagert werden. [ 93 ] [ 94 ]
Mikroskopische Organismen leben in der gesamten Biosphäre . Die Masse prokaryotischer Mikroorganismen – zu denen Bakterien und Archaeen, aber nicht die kernhaltigen eukaryotischen Mikroorganismen gehören – beträgt möglicherweise bis zu 0,8 Billionen Tonnen Kohlenstoff (von der Gesamtmasse der Biosphäre , die auf 1 bis 4 Billionen Tonnen geschätzt wird). [ 95 ] Einzellige barophile Meeresmikroben wurden in einer Tiefe von 10.900 m im Marianengraben , der tiefsten Stelle der Weltmeere, gefunden . [ 96 ] [ 97 ] Mikroorganismen leben in Gesteinen 580 m unter dem Meeresboden in 2.590 m Meerestiefe vor der Küste der nordwestlichen USA [ 96 ] [ 98 ] sowie in 2.400 m Tiefe vor Japan. [ 99 ] Die höchste bekannte Temperatur, bei der mikrobielles Leben möglich ist, beträgt 122 °C ( Methanopyrus kandleri ). [ 100 ] Im Jahr 2014 bestätigten Wissenschaftler die Existenz von Mikroorganismen in 800 m Tiefe unter dem Eis der Antarktis . [ 101 ] [ 102 ] Ein Forscher erklärte: „Mikroben findet man überall – sie sind extrem anpassungsfähig und überleben fast überall.“ [ 96 ]
Marine Viren
Viren sind kleine, infektiöse Erreger ohne eigenen Stoffwechsel , die sich nur innerhalb lebender Zellen anderer Organismen vermehren können . [ 103 ] Viren können alle Arten von Lebensformen infizieren , von Tieren und Pflanzen bis hin zu Mikroorganismen , einschließlich Bakterien und Archaeen . [ 104 ] Die lineare Größe eines durchschnittlichen Virus beträgt etwa ein Hundertstel der eines durchschnittlichen Bakteriums . Die meisten Viren sind mit einem Lichtmikroskop nicht sichtbar, daher werden stattdessen Elektronenmikroskope verwendet. [ 105 ]
Viren kommen überall dort vor, wo Leben existiert, und existieren wahrscheinlich seit der Entstehung lebender Zellen. [ 106 ] Der Ursprung der Viren ist unklar, da sie keine Fossilien bilden. Daher werden molekulare Techniken eingesetzt, um die DNA oder RNA von Viren zu vergleichen. Diese Methoden sind ein nützliches Mittel, um ihre Entstehung zu erforschen. [ 107 ]
Viren gelten heute als uralt und haben einen Ursprung, der der Aufspaltung des Lebens in die drei Domänen vorausging . [ 108 ] Ihre genaue Herkunft in der Evolutionsgeschichte ist jedoch unklar: Einige könnten sich aus Plasmiden – DNA-Abschnitten, die zwischen Zellen wandern können – entwickelt haben , während andere ihren Ursprung in Bakterien haben könnten. In der Evolution spielen Viren eine wichtige Rolle beim horizontalen Gentransfer , der die genetische Vielfalt erhöht . [ 109 ]


Die Meinungen darüber, ob Viren eine Lebensform oder organische Strukturen sind, die mit lebenden Organismen interagieren, gehen auseinander. [ 110 ] Einige betrachten sie als Lebensform, da sie genetisches Material tragen, sich durch Selbstorganisation vermehren und sich durch natürliche Selektion weiterentwickeln . Allerdings fehlen ihnen wichtige Merkmale wie eine Zellstruktur, die allgemein als notwendig für die Einstufung als Leben gilt. Da sie einige, aber nicht alle dieser Eigenschaften besitzen, wurden Viren als Replikatoren [ 110 ] und als „Organismen an der Grenze zum Leben“ [ 111 ] bezeichnet .
Bakteriophagen , oft einfach nur Phagen genannt , sind Viren, die Bakterien und Archaeen parasitieren . Marine Phagen befallen marine Bakterien und Archaeen, wie beispielsweise Cyanobakterien . [ 112 ] Sie bilden eine weit verbreitete und vielfältige Gruppe von Viren und sind die häufigste biologische Einheit in marinen Ökosystemen, da ihre Wirte, die Bakterien, typischerweise die zahlenmäßig dominierenden zellulären Lebensformen im Meer darstellen. Im Allgemeinen befinden sich etwa 1 bis 10 Millionen Viren pro Milliliter Meerwasser, also etwa zehnmal so viele doppelsträngige DNA-Viren wie zelluläre Organismen. [ 113 ] [ 114 ] Schätzungen der Virushäufigkeit im Meerwasser können jedoch stark variieren. [ 115 ] [ 116 ] Schwanzbakteriophagen scheinen marine Ökosysteme hinsichtlich Anzahl und Artenvielfalt der Organismen zu dominieren. [ 112 ] Bakteriophagen der Familien Corticoviridae , [ 117 ] Inoviridae [ 118 ] und Microviridae [ 119 ] sind ebenfalls dafür bekannt, verschiedene marine Bakterien zu infizieren.
Mikroorganismen machen etwa 70 % der marinen Biomasse aus. [ 7 ] Schätzungen zufolge vernichten Viren täglich 20 % dieser Biomasse, und es gibt 15-mal so viele Viren wie Bakterien und Archaeen in den Ozeanen. Viren sind die Hauptverantwortlichen für die rasche Zerstörung schädlicher Algenblüten [ 114 ] , die oft auch andere Meereslebewesen töten. [ 120 ] Die Anzahl der Viren in den Ozeanen nimmt mit zunehmender Entfernung vom Meer und in tieferen Wasserschichten ab, wo es weniger Wirtsorganismen gibt. [ 91 ]
Es gibt auch Archaeenviren , die sich innerhalb von Archaeen vermehren : Dabei handelt es sich um doppelsträngige DNA-Viren mit ungewöhnlichen und manchmal einzigartigen Formen. [ 121 ] [ 122 ] Diese Viren wurden am detailliertesten in den thermophilen Archaeen, insbesondere in den Ordnungen Sulfolobales und Thermoproteales , untersucht . [ 123 ]
Viren sind ein wichtiges natürliches Mittel zur Übertragung von Genen zwischen verschiedenen Arten, was die genetische Vielfalt erhöht und die Evolution vorantreibt. [ 109 ] Man geht davon aus, dass Viren in der frühen Evolution, vor der Diversifizierung von Bakterien, Archaeen und Eukaryoten, zum Zeitpunkt des letzten gemeinsamen Vorfahren aller Lebewesen auf der Erde eine zentrale Rolle spielten. [ 124 ] Viren stellen nach wie vor eines der größten Reservoirs unerforschter genetischer Vielfalt auf der Erde dar. [ 91 ]
Meeresbakterien

Bakterien bilden eine große Domäne prokaryotischer Mikroorganismen . Sie sind typischerweise wenige Mikrometer lang und weisen eine Vielzahl von Formen auf, von Kugeln über Stäbchen bis hin zu Spiralen. Bakterien gehörten zu den ersten Lebensformen auf der Erde und sind in den meisten ihrer Lebensräume anzutreffen . Sie besiedeln Böden, Gewässer, saure Thermalquellen , radioaktive Abfälle [ 125 ] und die tiefen Bereiche der Erdkruste . Darüber hinaus leben Bakterien in symbiotischen und parasitären Beziehungen mit Pflanzen und Tieren.
Bakterien, die einst als Pflanzen der Klasse Schizomycetes galten , werden heute als Prokaryoten klassifiziert . Im Gegensatz zu den Zellen von Tieren und anderen Eukaryoten besitzen Bakterienzellen keinen Zellkern und nur selten membrangebundene Organellen . Obwohl der Begriff „Bakterien“ traditionell alle Prokaryoten umfasste, änderte sich die wissenschaftliche Klassifizierung nach der Entdeckung in den 1990er Jahren, dass Prokaryoten aus zwei sehr unterschiedlichen Organismengruppen bestehen, die sich von einem gemeinsamen Vorfahren entwickelt haben . Diese evolutionären Domänen werden als Bakterien und Archaeen bezeichnet . [ 126 ]
Die Vorfahren moderner Bakterien waren einzellige Mikroorganismen, die vor etwa vier Milliarden Jahren als erste Lebensformen auf der Erde entstanden. Rund drei Milliarden Jahre lang waren die meisten Organismen mikroskopisch klein, wobei Bakterien und Archaeen die dominierenden Lebensformen darstellten. [ 64 ] [ 127 ] Obwohl Bakterienfossilien wie Stromatolithen existieren , verhindert deren fehlende charakteristische Morphologie , dass sie zur Erforschung der bakteriellen Evolutionsgeschichte oder zur Datierung des Ursprungszeitpunkts einer bestimmten Bakterienart herangezogen werden können. Gensequenzen ermöglichen jedoch die Rekonstruktion der bakteriellen Phylogenie , und diese Studien deuten darauf hin, dass sich Bakterien zuerst von der archaealen/eukaryotischen Linie abspalteten. [ 128 ] Bakterien waren auch an der zweiten großen evolutionären Aufspaltung beteiligt, der Trennung von Archaeen und Eukaryoten. Hierbei entstanden Eukaryoten durch die endosymbiotische Verbindung von Urbakterien mit den Vorfahren eukaryotischer Zellen, die selbst möglicherweise mit den Archaeen verwandt waren . [ 66 ] [ 65 ] Dabei wurden alphaproteobakterielle Symbionten von proto-eukaryotischen Zellen aufgenommen, wodurch entweder Mitochondrien oder Hydrogenosomen entstanden , die noch heute in allen bekannten Eukaryoten vorkommen. Später nahmen einige Eukaryoten, die bereits Mitochondrien besaßen, auch cyanobakterienähnliche Organismen auf. Dies führte zur Bildung von Chloroplasten in Algen und Pflanzen. Es gibt auch Algen, die aus noch späteren endosymbiotischen Ereignissen hervorgegangen sind. Hierbei nahmen Eukaryoten eine eukaryotische Alge auf, die sich zu einem Plastiden der „zweiten Generation“ entwickelte. [ 129 ] [ 130 ] Dies wird als sekundäre Endosymbiose bezeichnet .
 Das marine Bakterium Thiomargarita namibiensis , das größte bekannte Bakterium
 Die Chloroplasten der Glaukophyten besitzen eine Peptidoglykanschicht , was auf ihren endosymbiotischen Ursprung aus Cyanobakterien hindeutet . [ 131 ]
Das größte bekannte Bakterium, das marine Thiomargarita namibiensis , ist mit bloßem Auge sichtbar und erreicht mitunter eine Größe von 0,75 mm (750 μm). [ 132 ] [ 133 ]
Marine Archaeen
Die Archaeen (griechisch für „ alt“ [134]) bilden eine Domäne und ein Reich einzelliger Mikroorganismen . Diese Mikroben sind Prokaryoten , das heißt , sie besitzen keinen Zellkern oder andere membrangebundene Organellen .
Archaeen wurden ursprünglich als Bakterien klassifiziert , diese Klassifizierung ist jedoch überholt. [ 135 ] Archaeenzellen besitzen einzigartige Eigenschaften, die sie von den beiden anderen Domänen des Lebens, Bakterien und Eukaryoten, unterscheiden . Die Archaeen werden weiter in mehrere anerkannte Phyla unterteilt . Die Klassifizierung gestaltet sich schwierig, da die meisten Archaeen bisher nicht im Labor isoliert werden konnten und lediglich durch die Analyse ihrer Nukleinsäuren in Umweltproben nachgewiesen wurden.
Archaeen und Bakterien ähneln sich im Allgemeinen in Größe und Form, obwohl einige Archaeen sehr ungewöhnliche Formen aufweisen, wie beispielsweise die flachen, quadratischen Zellen von Haloquadratum walsbyi . [ 136 ] Trotz dieser morphologischen Ähnlichkeit zu Bakterien besitzen Archaeen Gene und verschiedene Stoffwechselwege , die enger mit denen von Eukaryoten verwandt sind, insbesondere die an Transkription und Translation beteiligten Enzyme . Andere Aspekte der archaeellen Biochemie sind einzigartig, wie etwa ihre Abhängigkeit von Etherlipiden in ihren Zellmembranen , beispielsweise Archaeolen . Archaeen nutzen mehr Energiequellen als Eukaryoten: Diese reichen von organischen Verbindungen wie Zuckern über Ammoniak und Metallionen bis hin zu Wasserstoffgas . Salztolerante Archaeen (die Haloarchaea ) nutzen Sonnenlicht als Energiequelle, und andere Archaeenarten fixieren Kohlenstoff ; im Gegensatz zu Pflanzen und Cyanobakterien ist jedoch keine Archaeenart bekannt, die beides tut. Archaeen vermehren sich ungeschlechtlich durch Zweiteilung , Fragmentierung oder Knospung ; im Gegensatz zu Bakterien und Eukaryoten bildet keine bekannte Art Sporen .
Archaeen sind in den Ozeanen besonders zahlreich, und die Archaeen im Plankton gehören möglicherweise zu den häufigsten Organismengruppen der Erde. Sie sind ein wichtiger Bestandteil des Lebens auf der Erde und spielen vermutlich eine Rolle sowohl im Kohlenstoffkreislauf als auch im Stickstoffkreislauf .
 Halobakterien , die in nahezu salzgesättigtem Wasser vorkommen, werden heute als Archaeen bezeichnet.
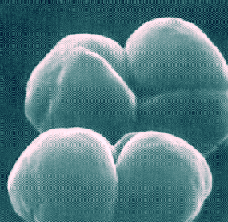
 Thermophile Organismen wie Pyrolobus fumarii überleben Temperaturen weit über 100 °C.
Marine Protisten
Protisten sind Eukaryoten, die sich nicht eindeutig Pflanzen, Pilzen oder Tieren zuordnen lassen. Sie sind in der Regel einzellig und mikroskopisch klein. Das Leben entstand aus einzelligen Prokaryoten ( Bakterien und Archaeen ) und entwickelte sich später zu komplexeren Eukaryoten . Eukaryoten sind die höher entwickelten Lebensformen, zu denen Pflanzen, Tiere, Pilze und Protisten gehören. Der Begriff „Protist“ wurde historisch als praktische Bezeichnung für Eukaryoten eingeführt, die sich nicht eindeutig als Pflanzen, Tiere oder Pilze klassifizieren lassen. Sie sind kein Bestandteil der modernen Kladistik, da sie paraphyletisch sind (keinen gemeinsamen Vorfahren haben). Protisten lassen sich grob in vier Gruppen einteilen, je nachdem, ob ihre Ernährung pflanzenähnlich, tierähnlich, pilzähnlich [ 137 ] oder eine Mischung aus diesen ist. [ 138 ]
Protisten, je nachdem, wie sie Nahrung aufnehmen | |||||||
|---|---|---|---|---|---|---|---|
| Protistenart | Beschreibung | Beispiel | Weitere Beispiele | ||||
| Pflanzenähnlich | Algen ( siehe unten ) | Autotrophe Protisten, die ihre eigene Nahrung herstellen, ohne andere Organismen konsumieren zu müssen, in der Regel durch Photosynthese. |  | Rotalgen, Cyanidium sp. | Grünalgen , Braunalgen , Kieselalgen und einige Dinoflagellaten . Pflanzenähnliche Protisten sind wichtige Bestandteile des Phytoplanktons, die weiter unten besprochen werden . | ||
| Tierähnlich | Heterotrophe Protisten, die sich durch den Verzehr anderer Organismen ernähren |  | Radiolarienprotisten , wie von Haeckel gezeichnet | Foraminiferen sowie einige marine Amöben , Ciliaten und Flagellaten . | |||
| Pilzartig | Saprotrophische Protisten, die ihre Nahrung aus den Überresten von Organismen gewinnen, die sich zersetzt und verwest haben |  | Marine Schleimnetze bilden labyrinthische Netzwerke aus Röhren, in denen Amöben ohne Pseudopodien wandern können. | Meeresflechten | |||
| Mixotrope | Verschieden | Mixotrophe und osmotrophe Protisten, die ihre Nahrung aus einer Kombination der oben genannten Quellen beziehen | 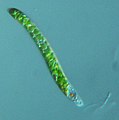 | Euglena mutabilis , ein photosynthetisches Flagellat | Viele marine Mixotrophe finden sich unter den Protisten, darunter auch unter den Ciliaten, Rhizaria und Dinoflagellaten [ 139 ]. | ||


 Unsere einzelligen Vorfahren kennenlernen – Mikrokosmos
Protisten sind äußerst vielfältige Organismen, die derzeit in 18 Stämme unterteilt werden, deren Klassifizierung jedoch schwierig ist. [ 141 ] [ 142 ] Studien belegen eine hohe Protistendiversität in Ozeanen, Tiefseequellen und Flusssedimenten, was darauf hindeutet, dass noch viele eukaryotische mikrobielle Gemeinschaften unentdeckt sind. [ 143 ] [ 144 ] Jüngste Untersuchungen in marinen Umgebungen haben gezeigt, dass mixotrophe Protisten einen signifikanten Anteil der Protistenbiomasse ausmachen . [ 139 ]
- Einzellige und mikroskopische Protisten
 Kieselalgen sind eine wichtige Algengruppe, die etwa 20 % der weltweiten Sauerstoffproduktion erzeugt. [ 145 ]
 Kieselalgen besitzen glasartige Zellwände aus Siliziumdioxid , die als Frusteln bezeichnet werden . [ 146 ]

 Einzellige Alge, Gephyrocapsa oceanica
 Zwei Dinoflagellaten
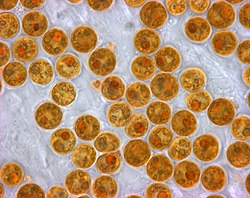 Zooxanthellen sind photosynthetische Algen, die in Wirten wie Korallen leben .


 Dieses Wimpertierchen verdaut Cyanobakterien . Das Cytostom oder der Mund befindet sich unten rechts.
Im Gegensatz zu den Zellen der Prokaryoten sind die Zellen der Eukaryoten hochgradig organisiert. Pflanzen, Tiere und Pilze sind in der Regel vielzellig und typischerweise makroskopisch . Die meisten Protisten sind einzellig und mikroskopisch klein. Es gibt jedoch Ausnahmen. Einige einzellige marine Protisten sind makroskopisch. Manche marine Schleimpilze weisen einzigartige Lebenszyklen auf, die den Wechsel zwischen einzelligen, koloniebildenden und vielzelligen Formen beinhalten. [ 147 ] Andere marine Protisten sind weder einzellig noch mikroskopisch klein, wie beispielsweise Algen .
- Makroskopische Protisten (siehe auch einzellige Makroalgen → )
 Die einzellige Riesenamöbe besitzt bis zu 1000 Zellkerne und erreicht eine Länge von 5 mm.
 Der Xenophyophor , ein weiterer einzelliger Foraminifer, lebt in der Tiefsee . Er besitzt ein riesiges Gehäuse mit einem Durchmesser von bis zu 20 cm. [ 148 ]
 Der Riesentang , eine Braunalge , ist keine echte Pflanze, aber er ist mehrzellig und kann bis zu 50 m lang werden.
Protisten wurden als taxonomische Sammelbezeichnung für alles beschrieben, was nicht in eines der Hauptreiche der Biologie passt. [ 149 ] Einige moderne Autoren ziehen es vor, mehrzellige Organismen aus der traditionellen Definition von Protisten auszuschließen und sie auf einzellige Organismen zu beschränken. [ 150 ] [ 151 ] Diese engere Definition schließt Algen und Schleimpilze aus . [ 152 ]
Meeresmikrotiere
Als Jungtiere entwickeln sich Tiere aus mikroskopischen Stadien, zu denen Sporen , Eier und Larven gehören . Mindestens eine Gruppe mikroskopischer Tiere, die parasitischen Nesseltiere (Myxozoa ), sind im adulten Stadium einzellig und umfassen auch marine Arten. Andere adulte marine Mikroorganismen sind mehrzellig. Mikroskopische adulte Arthropoden kommen häufiger im Binnenland in Süßwasser vor, es gibt aber auch marine Arten. Zu den mikroskopischen adulten marinen Krebstieren zählen einige Ruderfußkrebse , Wasserflöhe und Bärtierchen . Einige marine Nematoden und Rädertierchen sind ebenfalls zu klein, um mit bloßem Auge erkannt zu werden, ebenso wie viele Harnischwelse , darunter die kürzlich entdeckten anaeroben Arten, die ihr Leben in einer sauerstofffreien Umgebung verbringen. [ 153 ] [ 154 ] Ruderfußkrebse tragen mehr zur Sekundärproduktion und Kohlenstoffsenke der Weltmeere bei als jede andere Organismengruppe. [ 155 ] [ 156 ] Obwohl Milben normalerweise nicht als Meeresorganismen gelten, leben die meisten Arten der Familie Halacaridae im Meer. [ 157 ]
- Meeresmikrotiere
 Über 10.000 Meeresarten sind Ruderfußkrebse , kleine, oft mikroskopisch kleine Krebstiere.
 Dunkelfeldaufnahme eines Gastrotrichs , eines wurmartigen Tieres, das zwischen Sedimentpartikeln lebt.
 Zeichnung eines Bärtierchens auf einem Sandkorn
 Rädertiere sind in der Regel 0,1–0,5 mm lang, sehen zwar aus wie Protisten, bestehen aber aus vielen Zellen und gehören zum Tierreich (Animalia).
Pilze

Mehr als 1500 Pilzarten sind aus marinen Lebensräumen bekannt. [ 158 ] Diese parasitieren auf Meeresalgen oder -tieren oder ernähren sich als Saprobionten von abgestorbenem organischem Material von Algen, Korallen, Protozoenzysten, Seegraswiesen, Holz und anderen Substraten. [ 159 ] Die Sporen vieler Arten besitzen spezielle Anhängsel, die die Anhaftung an das Substrat erleichtern. [ 160 ] Meerespilze kommen auch im Meerschaum und in der Nähe hydrothermaler Gebiete des Ozeans vor. [ 161 ] Sie produzieren eine Vielzahl ungewöhnlicher Sekundärmetaboliten . [ 162 ]
Mykoplankton sind saprotrophische Mitglieder der Planktongemeinschaften mariner und Süßwasserökosysteme . [ 163 ] [ 164 ] Sie bestehen aus fadenförmigen, freilebenden Pilzen und Hefen, die mit Planktonpartikeln oder Phytoplankton assoziiert sind . [ 165 ] Ähnlich wie Bakterioplankton spielen diese Wasserpilze eine wichtige Rolle bei der heterotrophen Mineralisierung und dem Nährstoffkreislauf . [ 166 ] Mykoplankton kann einen Durchmesser von bis zu 20 mm und eine Länge von über 50 mm erreichen. [ 167 ]
Ein typischer Milliliter Meerwasser enthält etwa 10³ bis 10⁴ Pilzzellen . [ 168 ] In Küstenökosystemen und Ästuaren ist diese Zahl aufgrund des Nährstoffeintrags aus terrestrischen Lebensgemeinschaften höher. Eine höhere Mykoplanktondiversität findet sich in Küstennähe und in Oberflächengewässern bis in Tiefen von 1000 Metern, wobei das vertikale Profil von der Phytoplanktondichte abhängt . [ 169 ] [ 170 ] Dieses Profil verändert sich saisonal aufgrund der schwankenden Nährstoffverfügbarkeit. [ 171 ] Marine Pilze überleben in einer konstant sauerstoffarmen Umgebung und sind daher auf die Sauerstoffdiffusion durch Turbulenzen und den von photosynthetischen Organismen erzeugten Sauerstoff angewiesen . [ 172 ]
Marine Pilze können wie folgt klassifiziert werden: [ 172 ]
- Niedere Pilze – angepasst an marine Lebensräume ( zoosporische Pilze, einschließlich Mastigomyceten: Oomyceten und Chytridiomyceten )
- Höhere Pilze – fadenförmig, angepasst an eine planktonische Lebensweise ( Hyphomyceten , Ascomyceten , Basidiomyceten ). Die meisten Mykoplanktonarten sind höhere Pilze. [ 169 ]
Flechten sind mutualistische Symbiosen zwischen einem Pilz, meist einem Schlauchpilz (Ascomyceten) , und einer Alge oder einem Cyanobakterium . Einige Flechtenarten kommen in marinen Lebensräumen vor. [ 173 ] Viele weitere finden sich in der Spritzwasserzone , wo sie je nach ihrer Toleranz gegenüber Überflutung unterschiedliche vertikale Zonen besiedeln. [ 174 ] Manche Flechten erreichen ein hohes Alter; eine Art wurde auf 8.600 Jahre datiert. [ 175 ] Ihre Lebensdauer ist jedoch schwer zu bestimmen, da die Definition einer Flechte nicht präzise ist. [ 176 ] Flechten vermehren sich vegetativ durch Abspaltung von Teilen, die nicht zwangsläufig zur selben Flechte gehören. Auch können zwei Flechten unterschiedlichen Alters miteinander verschmelzen, was die Frage aufwirft, ob es sich um dieselbe Flechte handelt. [ 176 ] Die Meeresschnecke Littoraria irrorata schädigt Spartina -Pflanzen in den von ihr bewohnten Meeresmarschen, wodurch Sporen von Schlauchpilzen aus dem Gezeitenbereich die Pflanzen besiedeln können. Die Schnecke frisst dann den Pilzbefall bevorzugt gegenüber dem Gras selbst. [ 177 ]
Laut Fossilienfunden existieren Pilze seit dem späten Proterozoikum vor 900–570 Millionen Jahren. In China wurden 600 Millionen Jahre alte fossile Meeresflechten entdeckt. [ 178 ] Es wird angenommen, dass sich Mykoplankton aus Landpilzen entwickelte, wahrscheinlich im Paläozoikum (vor 390 Millionen Jahren). [ 179 ]
Ursprung der Tiere
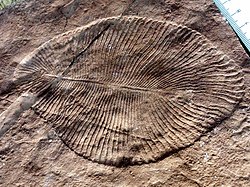
Die frühesten Tiere waren marine Wirbellose ; Wirbeltiere entwickelten sich erst später. Tiere sind vielzellige Eukaryoten [ Anmerkung 2 ] und unterscheiden sich von Pflanzen, Algen und Pilzen durch das Fehlen von Zellwänden . [ 180 ] Marine Wirbellose sind Tiere, die im Meer leben und nicht zu den Wirbeltieren des Stammes der Chordatiere gehören ; ihnen fehlt die Wirbelsäule . Einige haben eine Schale oder ein hartes Außenskelett entwickelt .
Die ältesten Tierfossilien gehören möglicherweise zur Gattung Dickinsonia [ 181 ] und leben vor 571 bis 541 Millionen Jahren [ 182 ] . Einzelne Dickinsonia ähneln typischerweise einem bilateral symmetrischen, gerippten Oval. Sie wuchsen so lange, bis sie von Sediment bedeckt wurden oder auf andere Weise starben [ 183 ] und verbrachten den Großteil ihres Lebens fest im Sediment verankert [ 184 ] . Ihre taxonomische Zuordnung ist derzeit unbekannt, aber ihre Wachstumsweise deutet auf eine Zugehörigkeit zu den Bilateria hin [ 185 ] .
Abgesehen von Dickinsonia zählen die vergleichsweise modern anmutenden Nesseltiere (zu denen Korallen , Quallen , Seeanemonen und die Hydra gehören ) zu den ältesten allgemein anerkannten Tierfossilien. Sie stammen möglicherweise aus der Zeit um 580 Millionen Jahre [ 186 ]. Die Ediacara-Fauna , die in den letzten 40 Millionen Jahren vor Beginn des Kambriums blühte [ 187 ] , waren die ersten Tiere, die länger als einige Zentimeter waren. Wie Dickinsonia waren viele von ihnen flach mit einem gesteppten Aussehen und wirkten so ungewöhnlich, dass vorgeschlagen wurde, sie als eigenes Reich , die Vendobionta , zu klassifizieren . [ 188 ] Andere Exemplare wurden jedoch als frühe Weichtiere ( Kimberella [ 189 ] [ 190 ] ), Stachelhäuter ( Arkarua [ 191 ] ) und Gliederfüßer ( Spriggina [ 192 ] Parvancorina [ 193 ] ) interpretiert. Die Klassifizierung dieser Exemplare ist weiterhin umstritten, vor allem weil die diagnostischen Merkmale , die Taxonomen die Klassifizierung jüngerer Organismen ermöglichen, wie etwa Ähnlichkeiten mit lebenden Organismen, bei den Ediacara-Arten im Allgemeinen fehlen. Es besteht jedoch kaum Zweifel daran, dass Kimberella zumindest ein triploblastisches Bilateria war, also ein Tier, das deutlich komplexer war als die Nesseltiere. [ 194 ]
Kleinschalige Schalentiere bilden eine sehr heterogene Fossiliensammlung aus dem späten Ediacarium und dem mittleren Kambrium . Die früheste Art, Cloudina , zeigt Anzeichen erfolgreicher Verteidigung gegen Fressfeinde und könnte den Beginn eines evolutionären Wettrüstens markieren . Einige winzige Schalen aus dem frühen Kambrium gehörten mit hoher Wahrscheinlichkeit zu Weichtieren, während die Träger einiger „Panzerplatten“, Halkieria und Microdictyon , erst identifiziert wurden, als vollständigere Exemplare in kambrischen Lagerstätten gefunden wurden , die Weichtiere konservierten. [ 195 ]
Körperbaupläne und Stämme

Wirbellose Tiere werden in verschiedene Stämme eingeteilt . Anschaulich gesprochen kann man sich Stämme als eine Möglichkeit vorstellen, Organismen nach ihrem Körperbauplan zu gruppieren . [ 196 ] [ 197 ] : 33 Ein Körperbauplan beschreibt die Form oder Morphologie eines Organismus, wie beispielsweise seine Symmetrie , Segmentierung und die Anordnung seiner Extremitäten . Die Idee der Körperbaupläne entstand bei den Wirbeltieren , die in einem einzigen Stamm zusammengefasst wurden. Der Körperbauplan der Wirbeltiere ist jedoch nur einer von vielen, und Wirbellose bestehen aus vielen Stämmen bzw. Körperbauplänen. Die Geschichte der Entdeckung von Körperbauplänen kann als eine Entwicklung von einer auf Wirbeltiere zentrierten Weltsicht hin zur Betrachtung der Wirbeltiere als einen Körperbauplan unter vielen gesehen werden. Unter den Pionieren der Zoologie identifizierte Linné zwei Körperbaupläne außerhalb der Wirbeltiere; Cuvier identifizierte drei; Haeckel zählte vier Stämme, die Protisten acht weitere, insgesamt also zwölf. Zum Vergleich: Die Zahl der von modernen Zoologen anerkannten Stämme ist auf 35 gestiegen . [ 197 ]

Historisch gesehen ging man davon aus, dass sich Körperbaupläne während der kambrischen Explosion rasant entwickelt hätten [ 200 ]. Ein differenzierteres Verständnis der Tierentwicklung deutet jedoch auf eine allmähliche Entwicklung der Körperbaupläne im frühen Paläozoikum und darüber hinaus hin [ 201 ] . Allgemeiner lässt sich ein Stamm auf zwei Arten definieren: wie oben beschrieben, als eine Gruppe von Organismen mit einem gewissen Grad an morphologischer oder entwicklungsgeschichtlicher Ähnlichkeit (die phänetische Definition) oder als eine Gruppe von Organismen mit einem gewissen Grad an evolutionärer Verwandtschaft (die phylogenetische Definition) [ 201 ] .
In den 1970er Jahren gab es bereits eine Debatte darüber, ob die Entstehung der modernen Tierstämme explosionsartig oder allmählich, aber aufgrund des Mangels an präkambrischen Tierfossilien verschleiert, erfolgte. [ 195 ] Eine erneute Analyse von Fossilien aus der Burgess-Schiefer -Lagerstätte verstärkte das Interesse an dieser Frage, da sie Tiere wie Opabinia zutage förderte , die keinem bekannten Stamm zugeordnet werden konnten . Damals wurden diese Funde als Beleg dafür interpretiert, dass sich die modernen Tierstämme während der kambrischen Explosion sehr schnell entwickelt hatten und dass die ungewöhnlichen Funde des Burgess-Schiefers zeigten, dass das frühe Kambrium eine einzigartige experimentelle Phase der Tierentwicklung war. [ 202 ] Spätere Entdeckungen ähnlicher Tiere und die Entwicklung neuer theoretischer Ansätze führten zu dem Schluss, dass viele der „seltsamen Wunder“ evolutionäre „Tanten“ oder „Cousins“ moderner Gruppen waren [ 203 ] – beispielsweise, dass Opabinia zu den Lobopoden gehörte , einer Gruppe, zu der die Vorfahren der Arthropoden zählen, und dass sie möglicherweise eng mit den heutigen Bärtierchen verwandt war . [ 204 ] Dennoch wird weiterhin viel darüber diskutiert, ob die kambrische Explosion tatsächlich explosiv war und, falls ja, wie und warum sie stattfand und warum sie in der Tiergeschichte einzigartig erscheint. [ 205 ]
frühesten Tiere
Die am weitesten verzweigten Tiere – die frühesten Tiere der Evolution – sind marine Wirbellose. Zu den frühesten Tierstämmen zählen die Schwämme (Porifera) , Rippenquallen (Ctenophora) , Placozoa und Nesseltiere (Cnidaria) . Kein Vertreter dieser Gruppen weist einen Körperbauplan mit bilateraler Symmetrie auf .
| |||||||||||||||||||||||||||||||


Meeresschwämme

Schwämme gehören zum Stamm der Porifera (lateinisch für „ porentragend“ [ 209 ] ). Es handelt sich um vielzellige Organismen mit einem Körper voller Poren und Kanäle, durch die Wasser zirkulieren kann. Dieser besteht aus einer gallertartigen Mesohylschicht , die zwischen zwei dünnen Zellschichten eingebettet ist . Schwämme besitzen nicht spezialisierte Zellen, die sich in andere Zelltypen umwandeln können und dabei häufig zwischen den Hauptzellschichten und der Mesohylschicht wandern. Sie haben kein Nerven- , Verdauungs- oder Kreislaufsystem . Stattdessen sind die meisten auf einen ständigen Wasserdurchfluss durch ihren Körper angewiesen, um Nahrung und Sauerstoff aufzunehmen und Abfallstoffe auszuscheiden.
Schwämme ähneln anderen Tieren insofern, als sie vielzellig und heterotroph sind , keine Zellwände besitzen und Spermien produzieren . Im Gegensatz zu anderen Tieren fehlen ihnen jedoch echte Gewebe und Organe , und sie weisen keine Körpersymmetrie auf. Ihre Körperform ist an eine maximale Effizienz des Wasserdurchflusses durch die zentrale Höhle angepasst, in der Nährstoffe eingelagert werden, und durch eine Öffnung, das Osculum , wieder austreten . Viele Schwämme besitzen ein inneres Skelett aus Spongin und/oder Spicula aus Kalziumkarbonat oder Siliziumdioxid . Alle Schwämme sind sessile Wassertiere. Obwohl es auch Süßwasserarten gibt, ist die große Mehrheit mariner (Salzwasser-)Arten, die von Gezeitenzonen bis in Tiefen von über 8.800 m vorkommen. Einige Schwämme erreichen ein sehr hohes Alter; es gibt Hinweise darauf, dass der Tiefsee-Glasschwamm Monorhaphis chuni etwa 11.000 Jahre alt wurde. [ 210 ] [ 211 ]
Während sich die meisten der etwa 5.000 bis 10.000 bekannten Arten von Bakterien und anderen Nahrungspartikeln im Wasser ernähren, beherbergen einige photosynthetisierende Mikroorganismen als Endosymbionten . Diese Symbiosen produzieren oft mehr Nahrung und Sauerstoff, als sie verbrauchen. Einige wenige Schwammarten, die in nährstoffarmen Umgebungen leben, haben sich zu Fleischfressern entwickelt , die sich hauptsächlich von kleinen Krebstieren ernähren . [ 212 ]
 Schwammvielfalt. Auf diesem Foto sind vier Schwammarten zu sehen.
 Venus' Blumenkorb in einer Tiefe von 2572 Metern
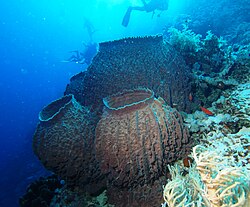
Linnaeus ordnete Schwämme fälschlicherweise den Pflanzen der Ordnung Algen zu . [ 213 ] Lange Zeit wurden Schwämme daraufhin einem eigenen Unterreich, den Parazoa (was so viel wie „ neben den Tieren “ bedeutet ), zugeordnet. [ 214 ] Heute gelten sie als paraphyletischer Stamm, aus dem sich die höheren Tiere entwickelt haben. [ 215 ]
Rippenquallen
Rippenquallen (Ctenophora, griechisch für „Kammträger “) sind ein weltweit in Meeresgewässern verbreiteter Stamm. Sie sind die größten nichtkoloniebildenden Tiere, die sich mithilfe von Zilien (Haaren oder Kämmen) fortbewegen. [ 216 ] Küstennahe Arten müssen robust genug sein, um Wellen und aufgewirbeltem Sediment standzuhalten, doch einige ozeanische Arten sind so zerbrechlich und transparent, dass es sehr schwierig ist, sie unversehrt für Forschungszwecke zu fangen. [ 217 ] Früher ging man davon aus, dass Rippenquallen im Ozean nur eine geringe Rolle spielen, doch heute weiß man, dass sie oft bedeutende und sogar dominante Bestandteile der planktonischen Biomasse sind. [ 218 ] : 269
Der Stamm der Rippenquallen umfasst etwa 150 bekannte Arten mit einer großen Vielfalt an Körperformen. Die Größe reicht von wenigen Millimetern bis zu 1,5 Metern. Die Cydippiden sind eiförmig, ihre Wimpern sind in acht radialen Kammreihen angeordnet, und sie setzen einziehbare Tentakel zum Beutefang ein. Die bodenlebenden Plattquallen sind in der Regel kammlos und flach. Die küstennahen Beroiden besitzen ein weit geöffnetes Maul und keine Tentakel. Die meisten adulten Rippenquallen ernähren sich von mikroskopisch kleinen Larven und Rädertierchen sowie kleinen Krebstieren , während Beroiden andere Rippenquallen jagen.
 Lichtbeugung entlang der Kammreihen eines Cydippiden, linker Tentakel ausgefahren, rechter eingefahren .
 Tiefsee-Rippenqualle mit nachziehenden Tentakeln, die mit Tentillen (Subtentakeln) besetzt sind
 Eiförmiger Cydippiden - Rippenqualle
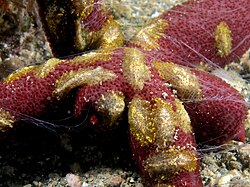 Eine Gruppe kleiner, am Meeresboden lebender Rippenquallen, die ihre Tentakel ausstrecken und in Symbiose mit einem Seestern leben.
 Lobata sp. mit paarigen dicken Lappen
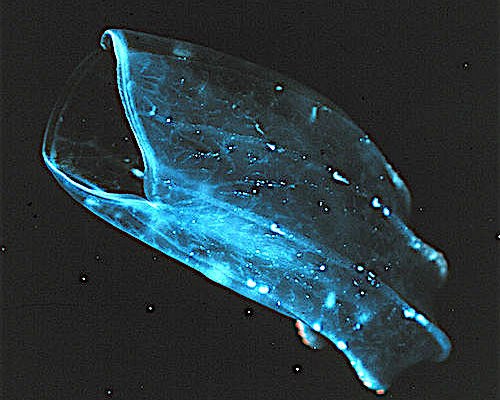
Frühe Autoren fassten Rippenquallen und Nesseltiere zusammen . Rippenquallen ähneln Nesseltieren insofern, als sie für Verdauung und Atmung auf den Wasserstrom durch die Körperhöhle angewiesen sind und anstelle eines Gehirns ein dezentrales Nervennetz besitzen . Wie bei Nesseltieren besteht der Körper der Rippenquallen aus einer Gallertmasse, die von einer äußeren Zellschicht und einer weiteren, die die innere Körperhöhle auskleidet, umgeben ist. Bei Rippenquallen sind diese Schichten jedoch zweizellig, während sie bei Nesseltieren nur einzellig sind. Während Nesseltiere Radiärsymmetrie aufweisen , besitzen Rippenquallen zwei Analkanäle mit biradialer Symmetrie (halbe Rotationssymmetrie). [ 219 ] Die Stellung der Rippenquallen im Stammbaum der Tiere ist seit Langem umstritten, und die gegenwärtig vorherrschende Ansicht, basierend auf molekularer Phylogenetik , besagt, dass Nesseltiere und Bilateria enger miteinander verwandt sind als mit den Rippenquallen. [ 218 ] : 222
| Externe Videos | |
|---|---|
| Schimmernde rote Rippenqualle — EVNautilus |
Placozoa
Placozoa (vom griechischen Wort für „ flache Tiere “) besitzen den einfachsten Körperbau aller Tiere. Sie stellen eine basale Form freilebender (nicht-parasitärer) vielzelliger Organismen dar [ 220 ] , die noch keinen gebräuchlichen Namen haben. [ 221 ] Sie leben in marinen Lebensräumen und bilden einen Stamm, der bisher nur drei beschriebene Arten umfasst. Die erste, die klassische Art Trichoplax adhaerens , wurde 1883 entdeckt. [ 222 ] Seit 2017 wurden zwei weitere Arten entdeckt [ 223 ] [ 224 ] , und genetische Methoden deuten darauf hin, dass dieser Stamm weitere 100 bis 200 unbeschriebene Arten umfasst . [ 225 ]


Trichoplax ist ein kleines, abgeflachtes Tier von etwa einem Millimeter Durchmesser und üblicherweise etwa 25 μm Dicke. Wie die Amöben , denen es oberflächlich ähnelt, verändert es ständig seine äußere Form. Gelegentlich bildet es zudem kugelförmige Phasen, die die Fortbewegung erleichtern könnten. Trichoplax besitzt keine Gewebe oder Organe. Es weist keine erkennbare Körpersymmetrie auf, sodass Vorder- und Hinterseite oder links und rechts nicht unterschieden werden können. Es besteht aus einigen Tausend Zellen von sechs verschiedenen Typen in drei deutlich abgegrenzten Schichten. [ 226 ] Die äußere Schicht aus einfachen Epithelzellen trägt Zilien , mit denen sich das Tier über den Meeresboden fortbewegt. [ 227 ] Trichoplax ernährt sich, indem es Nahrungspartikel – hauptsächlich Mikroben und organischen Detritus – mit seiner Unterseite aufnimmt und absorbiert.
Marine Nesseltiere

Nesseltiere (vom griechischen Wort für Brennnessel ) zeichnen sich durch das Vorhandensein von Nesselzellen aus , spezialisierten Zellen, die sie hauptsächlich zum Beutefang einsetzen. Zu den Nesseltieren gehören Korallen , Seeanemonen , Quallen und Hydrozoen . Sie bilden einen Stamm mit über 10.000 [ 228 ] Arten , die ausschließlich in aquatischen (hauptsächlich marinen) Lebensräumen vorkommen. Ihr Körper besteht aus Mesogloea , einer nicht lebenden, gallertartigen Substanz, die zwischen zwei meist einschichtigen Epithelschichten eingebettet ist . Sie weisen zwei grundlegende Körperformen auf: schwimmende Medusen und sessile Polypen . Beide sind radiärsymmetrisch und besitzen eine Mundöffnung, die von Tentakeln mit Nesselzellen umgeben ist. Beide Formen haben eine einzige Körperöffnung und eine Körperhöhle, die der Verdauung und Atmung dienen .
Fossile Nesseltiere wurden in Gesteinen gefunden, die vor etwa 580 Millionen Jahren entstanden sind . Fossilien von Nesseltieren, die keine mineralisierten Strukturen bilden, sind selten. Wissenschaftler gehen derzeit davon aus, dass Nesseltiere, Rippenquallen und Bilateria enger mit Kalkschwämmen verwandt sind als diese wiederum mit anderen Schwämmen . Anthozoen gelten als die evolutionären „Tanten“ oder „Schwestern“ der anderen Nesseltiere und als die engsten Verwandten der Bilateria.
Nesseltiere sind die einfachsten Tiere, deren Zellen zu Geweben organisiert sind. [ 229 ] Die Sternchen-Seeanemone wird in der Forschung als Modellorganismus verwendet. [ 230 ] Sie ist im Labor leicht zu pflegen, und es wurde ein Protokoll entwickelt, mit dem täglich eine große Anzahl von Embryonen gewonnen werden kann. [ 231 ] Zwischen der Seeanemone und Wirbeltieren besteht eine bemerkenswerte Ähnlichkeit in der Konservierung und Komplexität der Gensequenzen. [ 231 ] Insbesondere Gene, die bei Wirbeltieren an der Kopfbildung beteiligt sind, finden sich auch in der Seeanemone. [ 232 ] [ 233 ]
 Seeanemonen sind in Gezeitentümpeln häufig anzutreffen .

 Wenn eine Insel im Meer versinkt, kann das Korallenwachstum mit dem steigenden Wasser mithalten und ein Atoll bilden .
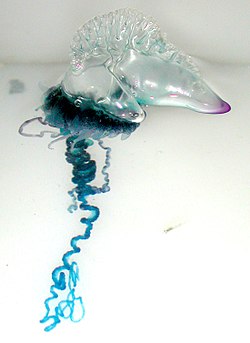

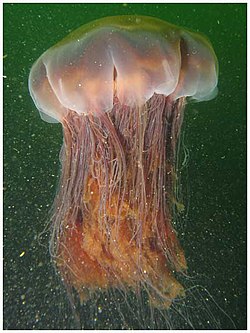
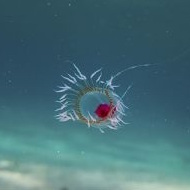 Turritopsis dohrnii erlangt biologische Unsterblichkeit, indem es seine Zellen in die Kindheit zurückversetzt. [ 236 ] [ 237 ]

Bilaterale Wirbellose Tiere

Einige der frühesten Bilateria waren wurmartig, und der ursprüngliche Bilateria war möglicherweise ein am Meeresboden lebender Wurm mit einer einzigen Körperöffnung. [ 239 ] Der Körper eines Bilaterias lässt sich als Zylinder mit einem Darm zwischen zwei Öffnungen, dem Mund und dem After, vorstellen. Um den Darm herum befindet sich eine innere Körperhöhle, das Coelom oder Pseudocoelom. [ a ] Tiere mit diesem bilateral symmetrischen Körperbau besitzen ein Kopfende (vorderes Ende) und ein Schwanzende (hinteres Ende) sowie einen Rücken (dorsal) und einen Bauch (ventral); daher haben sie auch eine linke und eine rechte Seite. [ 240 ] [ 241 ]
Das Vorhandensein eines Vorderendes bedeutet, dass dieser Körperteil Reizen wie Nahrung ausgesetzt ist, was die Cephalisation , die Entwicklung eines Kopfes mit Sinnesorganen und Mund, begünstigt. [ 242 ] Der Körper erstreckt sich vom Kopf nach hinten, und viele Bilateria besitzen eine Kombination aus ringförmigen Muskeln , die den Körper verengen und ihn dadurch verlängern, und längsgerichteten Muskeln, die ihn verkürzen. [ 241 ] Diese ermöglichen es Weichtieren mit einem hydrostatischen Skelett , sich durch Peristaltik fortzubewegen . [ 243 ] Sie besitzen außerdem einen Darm, der sich vom Mund bis zum After durch den im Wesentlichen zylindrischen Körper erstreckt. Viele Stämme der Bilateria haben primäre Larven , die mit Zilien schwimmen und ein apikales Organ mit Sinneszellen besitzen. Es gibt jedoch Ausnahmen von diesen Merkmalen; so sind beispielsweise adulte Stachelhäuter (im Gegensatz zu ihren Larven) radiärsymmetrisch, und bestimmte parasitäre Würmer weisen extrem vereinfachte Körperstrukturen auf. [ 240 ] [ 241 ]

| ← Bilateria |
| |||||||||||||||||||||


Protostomier
Protostomier ( griechisch für „erster Mund “) sind ein Überstamm der Tiere . Sie bilden die Schwestergruppe der Deuterostomier (griechisch für „ zweiter Mund“ ), mit denen sie den Stamm der Nephrozoa bilden . Protostomier unterscheiden sich von Deuterostomiern durch die Art ihrer Embryonalentwicklung . Bei Protostomiern entwickelt sich die erste Öffnung zum Mund , bei Deuterostomiern hingegen zum After. [ 245 ] [ 246 ]
| ← Protostomier |
| ||||||||||||||||||||||||||||||
| (vorhanden) |


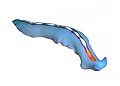


Meereswürmer

Würmer (altenglisch für Schlangen ) bilden mehrere Stämme. Verschiedene Gruppen von Meereswürmern sind nur entfernt verwandt und finden sich daher in mehreren verschiedenen Stämmen wie den Annelida (Ringelwürmern), Chaetognatha (Pfeilwürmern), Phoronida (Hufeisenwürmern) und Hemichordata . Alle Würmer außer den Hemichordata sind Protostomier. Die Hemichordata sind Deuterostomier und werden in einem eigenen Abschnitt weiter unten behandelt.
Der typische Körperbau eines Wurms besteht aus einem langen, zylindrischen, röhrenförmigen Körper ohne Gliedmaßen . Meereswürmer variieren in ihrer Größe von mikroskopisch klein bis über einen Meter lang bei einigen marinen Polychaeten ( Borstenwürmern ) [ 247 ] und bis zu 58 Metern beim marinen Schnurwurm (Schnurwurm ) [248]. Manche Meereswürmer besiedeln wenige parasitäre Nischen und leben im Körper anderer Tiere, während andere freier im Meer leben oder sich in den Boden eingraben. Viele dieser Würmer besitzen spezialisierte Tentakel zum Austausch von Sauerstoff und Kohlendioxid, die möglicherweise auch der Fortpflanzung dienen. Einige Meereswürmer sind Röhrenwürmer , wie beispielsweise der Riesenröhrenwurm , der in Gewässern in der Nähe von Unterwasservulkanen lebt und Temperaturen von bis zu 90 Grad Celsius aushält . Plattwürmer (Platyhelminthes) bilden einen weiteren Wurmstamm, zu dem auch eine Klasse parasitärer Bandwürmer gehört. Der im Darm von Pottwalen vorkommende Meeresbandwurm Polygonoporus giganticus kann über 30 Meter lang werden. [ 249 ] [ 250 ]
Nematoden (Fadenwürmer) bilden einen weiteren Wurmstamm mit röhrenförmigen Verdauungssystemen und einer Öffnung an beiden Enden. [ 251 ] [ 252 ] Über 25.000 Nematodenarten wurden beschrieben, [ 253 ] [ 254 ] von denen mehr als die Hälfte parasitär leben. Schätzungen zufolge existieren noch weitere Millionen Arten, die uns derzeit unbekannt sind. [ 255 ] Sie sind in marinen, Süßwasser- und terrestrischen Lebensräumen allgegenwärtig und übertreffen dort oft andere Tiere sowohl in der Anzahl der Individuen als auch der Arten. Man findet sie in allen Bereichen der Erdlithosphäre , von den Gipfeln der Berge bis zum Grund der Tiefseegräben . [ 256 ] Sie machen 90 % aller Tiere am Meeresboden aus . [ 257 ] Ihre zahlenmäßige Überlegenheit, die oft eine Million Individuen pro Quadratmeter übersteigt und etwa 80 % aller einzelnen Tiere auf der Erde ausmacht, ihre Vielfalt an Lebenszyklen und ihr Vorkommen auf verschiedenen trophischen Ebenen deuten auf eine wichtige Rolle in vielen Ökosystemen hin. [ 258 ]
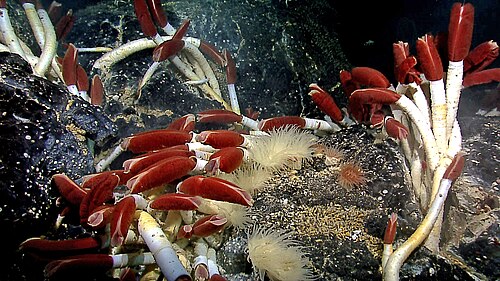 Riesige Röhrenwürmer sammeln sich um hydrothermale Quellen .
 Nematoden sind allgegenwärtige Pseudocoelomaten , die Meerespflanzen und -tiere parasitieren können.
Meeresmollusken
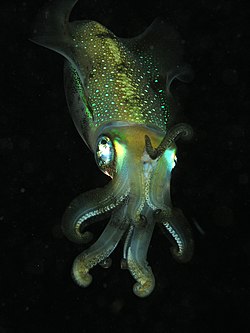


Mollusken (lateinisch für weich ) bilden einen Stamm mit etwa 85.000 bekannten , heute noch existierenden Arten . [ 261 ] Sie sind der artenreichste marine Stamm und umfassen etwa 23 % aller bekannten Meeresorganismen . [ 262 ] Mollusken weisen eine größere Formenvielfalt auf als andere Stämme der Wirbellosen. Ihre Diversität zeigt sich nicht nur in Größe und anatomischer Struktur, sondern auch im Verhalten und im Lebensraum.
Der Stamm der Weichtiere (Mollusken) ist in neun oder zehn taxonomische Klassen unterteilt . Zu diesen Klassen gehören Schnecken (Gastropoden) , Muscheln (Bivalven) und Kopffüßer (Cephalopoden) sowie weitere, weniger bekannte, aber dennoch charakteristische Klassen. Schnecken mit schützendem Gehäuse werden als Nacktschnecken bezeichnet , während Schnecken ohne schützendes Gehäuse als Nacktschnecken bekannt sind . Schnecken sind mit Abstand die artenreichsten Weichtiere. [ 263 ] Zu den Muscheln zählen unter anderem Austern , Herzmuscheln , Miesmuscheln , Jakobsmuscheln und zahlreiche weitere Familien . Es gibt etwa 8.000 marine Muschelarten (einschließlich Brackwasser- und Ästuararten ). Eine Tiefsee -Quahog- Muschel soll 507 Jahre alt geworden sein [ 264 ] , was sie zum ältesten jemals dokumentierten Tier macht, abgesehen von Kolonien bildenden Tieren oder solchen, die beinahe Kolonien bilden, wie beispielsweise Schwämmen . [ 210 ]
- Schnecken und Muscheln
 Marine Gastropoden sind Meeresschnecken oder Nacktschnecken . Diese Nacktschnecke ist eine Nacktschnecke.
 Die Meeresschnecke Syrinx aruanus besitzt ein bis zu 91 cm langes Gehäuse und ist damit die größte aller lebenden Gastropoden.
 Weichtiere besitzen in der Regel Augen. Am Rand des Mantels einer Jakobsmuschel , einer Muschelart , können sich über 100 einfache Augen befinden .
Zu den Kopffüßern gehören Oktopusse , Kalmare und Tintenfische . Etwa 800 lebende Arten mariner Kopffüßer wurden identifiziert [ 265 ] , und schätzungsweise 11.000 ausgestorbene Taxa wurden beschrieben [ 266 ] . Sie kommen in allen Ozeanen vor, es gibt jedoch keine Kopffüßer, die ausschließlich im Süßwasser leben [ 267 ] .
- Kopffüßer

 Rekonstruktion eines Ammoniten , eines äußerst erfolgreichen frühen Kopffüßers, der vor 400 Millionen Jahren auftrat .

Weichtiere weisen so vielfältige Formen auf, dass viele Lehrbücher ihre Beschreibungen der Weichtieranatomie auf einem verallgemeinerten oder hypothetischen Ur-Weichtier basieren . Dieses verallgemeinerte Weichtier ist unsegmentiert und bilateral symmetrisch, wobei die Unterseite aus einem einzigen muskulösen Fuß besteht . Darüber hinaus besitzt es drei weitere Hauptmerkmale. Erstens einen muskulösen Mantel, der die Eingeweide bedeckt und eine bedeutende Höhle für Atmung und Ausscheidung enthält . Eine vom Mantel abgesonderte Schale bedeckt die Oberseite. Zweitens (mit Ausnahme der Muscheln) besitzt es eine Raspelzunge, die Radula , die der Nahrungsaufnahme dient. Drittens verfügt es über ein Nervensystem mit einem komplexen Verdauungssystem, das mithilfe mikroskopisch kleiner, muskelbetriebener Härchen, den Zilien , Schleim absondert . Das verallgemeinerte Weichtier besitzt zwei paarige Nervenstränge (bei Muscheln drei). Das Gehirn umschließt bei Arten mit einem Gehirn die Speiseröhre . Die meisten Weichtiere besitzen Augen , und alle verfügen über Sensoren zur Wahrnehmung von Chemikalien, Vibrationen und Berührungen. [ 271 ] [ 272 ]
Es gibt gute Belege für das Auftreten von marinen Gastropoden, Cephalopoden und Muscheln im Kambrium vor 538,8 bis 486,85 Millionen Jahren .
Marine Arthropoden
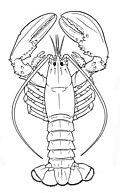

Arthropoden (griechisch für „Gliederfüßer “) besitzen ein Exoskelett (Außenskelett ) , einen segmentierten Körper und paarige Gliedmaßen . Sie bilden einen Stamm , zu dem Insekten , Spinnentiere , Tausendfüßer und Krebstiere gehören . Arthropoden sind charakteristisch für ihre gegliederten Gliedmaßen und ihre aus Chitin bestehende Kutikula , die häufig mit Kalziumkarbonat mineralisiert ist . Der Körperbau der Arthropoden besteht aus Segmenten , von denen jedes ein Paar Gliedmaßen trägt. Die starre Kutikula hemmt das Wachstum, weshalb Arthropoden sie regelmäßig durch Häutung erneuern. Ihre Anpassungsfähigkeit hat es ihnen ermöglicht, in den meisten Lebensräumen zu den artenreichsten Vertretern aller ökologischen Gilden zu gehören.
Die evolutionäre Abstammung der Arthropoden lässt sich bis ins Kambrium zurückverfolgen und gilt allgemein als monophyletisch . Allerdings werden die basalen Verwandtschaftsverhältnisse der Arthropoden zu ausgestorbenen Stämmen wie den Lobopodien seit Kurzem diskutiert. [ 275 ] [ 276 ]
| Panarthropoden |
| ||||||||||||


- Fossilien der Arthropoden und lebende Fossilien
 Fossiler Trilobit . Trilobiten traten erstmals vor etwa 521 Millionen Jahren auf . Sie waren sehr erfolgreich und wurden 270 Millionen Jahre lang überall im Ozean gefunden. [ 277 ]
 Die Anomalocaris („abnorme Garnele“) war einer der ersten Spitzenprädatoren und erschien erstmals vor etwa 515 Millionen Jahren.
 Der größte bekannte Arthropode, der Seeskorpion Jaekelopterus rhenaniae , wurde in Ästuarsedimenten aus der Zeit vor etwa 390 Millionen Jahren gefunden. Er erreichte eine Länge von bis zu 2,5 m. [ 278 ] [ 279 ]
 Die Xiphosuren , zu denen auch die modernen Pfeilschwanzkrebse gehören , erschienen vor etwa 480 Millionen Jahren. [ 280 ]
Die Größe der heute lebenden marinen Arthropoden reicht vom mikroskopisch kleinen Krebstier Stygotantulus bis zur Japanischen Riesenkrabbe . Ihre primäre innere Körperhöhle ist die Hämolymphe (Hämocoel) , die ihre inneren Organe beherbergt und durch die ihre Hämolymphe – das Analogon zum Blut – zirkuliert; sie besitzen offene Kreislaufsysteme . Wie ihre äußere Hülle sind auch die inneren Organe der Arthropoden in der Regel aus sich wiederholenden Segmenten aufgebaut. Ihr Nervensystem ist leiterartig aufgebaut: Paarige ventrale Nervenstränge verlaufen durch alle Segmente und bilden in jedem Segment paarige Ganglien . Der Kopf entsteht durch die Verschmelzung einer unterschiedlichen Anzahl von Segmenten, und das Gehirn entsteht durch die Verschmelzung der Ganglien dieser Segmente und umschließt die Speiseröhre . Atmungs- und Ausscheidungssysteme der Arthropoden variieren und hängen sowohl von ihrem Lebensraum als auch vom jeweiligen Unterstamm ab.
- Moderne Krustentiere
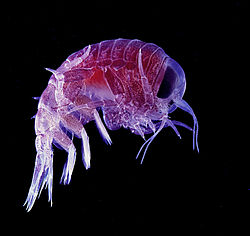 Viele Krebstiere sind sehr klein, wie dieser winzige Flohkrebs , und machen einen bedeutenden Teil des Zooplanktons der Ozeane aus .
 Fangschreckenkrebse besitzen die am weitesten entwickelten Augen im Tierreich [ 281 ] und erbeuten ihre Beute, indem sie ihre keulenartigen Fangscheren schwingen . [ 282 ]
Das Sehvermögen von Arthropoden beruht auf verschiedenen Kombinationen von Facettenaugen und Pigmentgrubenaugen : Bei den meisten Arten können die Augen nur die Richtung des einfallenden Lichts erkennen, die Facettenaugen sind die Hauptinformationsquelle. Arthropoden besitzen zudem eine Vielzahl chemischer und mechanischer Sensoren, die größtenteils auf Modifikationen der zahlreichen Borsten beruhen, die durch ihre Kutikula ragen. Die Fortpflanzungsmethoden der Arthropoden sind vielfältig: Landarten nutzen eine Form der inneren Befruchtung, während Meeresarten Eier legen, die entweder innerlich oder äußerlich befruchtet werden . Die Larven der Arthropoden variieren von winzigen Exemplaren bis hin zu Maden ohne Gliedmaßen, die schließlich eine vollständige Metamorphose durchlaufen , um die adulte Form zu erreichen.
Deuterostomier
Bei Deuterostomiern entwickelt sich die erste Öffnung im wachsenden Embryo zum After , bei Protostomiern hingegen zum Mund. Deuterostomier bilden einen Überstamm der Tiere und sind die Schwestergruppe der Protostomier . [ 245 ] [ 246 ] Früher galten Fossilien der Gattung Saccorhytus aus der Zeit vor etwa 540 Millionen Jahren als die ältesten bekannten Deuterostomier . [ 283 ] Eine andere Studie geht jedoch davon aus, dass Saccorhytus eher zu den Ecdysozoa gehört . [ 284 ]



Stachelhäuter

Die Stachelhäuter (Echinodermata , griechisch für „Stachelhäuter“ ) sind ein Stamm, der ausschließlich marine Wirbellose umfasst. Mit etwa 7000 lebenden Arten [ 285 ] sind sie nach den Chordaten die zweitgrößte Gruppe der Deuterostomier .
Adulte Stachelhäuter sind an ihrer Radiärsymmetrie (meist fünfzählig) erkennbar und umfassen Seesterne , Seeigel , Sanddollar und Seegurken sowie Seelilien . [ 286 ] Stachelhäuter kommen in allen Meerestiefen vor, von der Gezeitenzone bis zur Tiefsee . Sie sind unter den Tieren einzigartig, da sie im Larvenstadium bilaterale Symmetrie, im adulten Stadium jedoch fünfzählige Symmetrie ( Pentamerismus , eine spezielle Form der Radiärsymmetrie) aufweisen. [ 287 ]
Stachelhäuter sind sowohl biologisch als auch geologisch von Bedeutung. Biologisch gesehen gibt es nur wenige andere Tiergruppen, die in der artenarmen Tiefsee und auch in flacheren Ozeanen so häufig vorkommen. Die meisten Stachelhäuter können Gewebe, Organe und Gliedmaßen regenerieren und sich ungeschlechtlich fortpflanzen ; in manchen Fällen ist ihnen sogar die vollständige Regeneration einer einzelnen Gliedmaße möglich. Geologisch betrachtet liegt der Wert der Stachelhäuter in ihren verknöcherten Skeletten , die maßgeblich zu vielen Kalksteinformationen beitragen und wertvolle Hinweise auf die geologische Umgebung liefern können. Sie waren im 19. und 20. Jahrhundert die am häufigsten untersuchten Arten in der Regenerationsforschung.
 Echinoderm bedeutet wörtlich "stachelige Haut", wie dieser Wassermelonen-Seeigel veranschaulicht.
 Der Ockerseestern war der erste untersuchte Schlüsselprädator . Er begrenzt das Muschelwachstum , das sonst die Lebensgemeinschaften im Gezeitenbereich überwuchern könnte. [ 288 ]
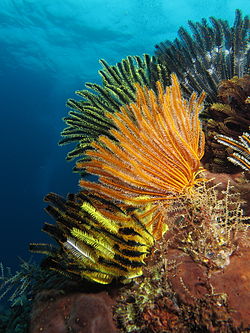 Farbenfrohe Seelilien in flachen Gewässern
 Seegurken ernähren sich durch Filtrieren von Plankton und Schwebstoffen.
 Das Seeschwein , eine Tiefsee-Seegurke, ist der einzige Stachelhäuter, der sich mit Beinen fortbewegt.
 Eine benthopelagische und biolumineszente schwimmende Seegurke in 3200 Metern Tiefe
Einige Wissenschaftler vertreten die Ansicht, dass die Radiation der Stachelhäuter für die mesozoische marine Revolution verantwortlich war . Abgesehen von dem schwer zu klassifizierenden Arkarua (einem präkambrischen Tier mit stachelhäuterartiger fünfzähliger Radiärsymmetrie) traten die ersten eindeutigen Vertreter des Stammes gegen Beginn des Kambriums auf .
Hemichordaten


Hemichordaten bilden den Schwesterstamm der Stachelhäuter . Es handelt sich um einzelgängerische, wurmförmige Organismen, die aufgrund ihrer Lebensweise nur selten von Menschen gesehen werden. Sie umfassen zwei Hauptgruppen: die Eichelwürmer und die Flugwürmer (Pterobranchia ). Die Flugwürmer bilden eine Klasse mit etwa 30 Arten kleiner, wurmförmiger Tiere, die in abgesonderten Röhren am Meeresboden leben. Die Eichelwürmer bilden eine Klasse mit etwa 111 Arten, die in der Regel in U-förmigen Gängen am Meeresboden leben, von der Küste bis in Tiefen von 3000 Metern. Die Würmer liegen dort, wobei der Rüssel aus einer Öffnung des Ganges ragt, und ernähren sich von Sedimenten oder Suspensionsfressern. Man nimmt an, dass die Vorfahren der Eichelwürmer einst wie ihre Verwandten, die Flugwürmer, in Röhren lebten, später aber begannen, ein sichereres und geschützteres Leben in Sedimentgängen zu führen. [ 292 ] Einige dieser Würmer können sehr lang werden; eine bestimmte Art kann eine Länge von 2,5 Metern (8 Fuß 2 Zoll) erreichen, obwohl die meisten Eichelwürmer viel kleiner sind.
Eichelwürmer sind höher spezialisiert und entwickelt als andere wurmartige Organismen. Sie besitzen ein Kreislaufsystem mit einem Herzen, das gleichzeitig als Niere fungiert. Eichelwürmer atmen mithilfe kiemenartiger Strukturen, ähnlich den Kiemen von Fischen. Daher gelten Eichelwürmer mitunter als Bindeglied zwischen klassischen Wirbellosen und Wirbeltieren . Eichelwürmer bilden mit zunehmender Größe fortwährend neue Kiemenspalten, und einige ältere Exemplare weisen mehr als hundert auf jeder Seite auf. Jede Spalte besteht aus einer Kiemenkammer, die sich über eine U-förmige Spalte zum Pharynx öffnet. Zilien befördern Wasser durch die Spalten und sorgen so für einen konstanten Wasserfluss, genau wie bei Fischen. [ 293 ] Einige Eichelwürmer besitzen zudem einen postanalen Schwanz, der möglicherweise homolog zum postanalen Schwanz der Wirbeltiere ist.
Der dreigeteilte Körperbau des Eichelwurms ist bei den Wirbeltieren nicht mehr vorhanden, außer in der Anatomie des frontalen Neuralrohrs, das sich später zu einem dreigeteilten Gehirn entwickelte. Dies bedeutet, dass Teile der ursprünglichen Anatomie der frühen Chordaten-Vorfahren noch immer in den Wirbeltieren vorhanden sind, auch wenn sie nicht immer sichtbar sind. Eine Theorie besagt, dass der dreigeteilte Körper von einem frühen gemeinsamen Vorfahren der Deuterostomier und möglicherweise sogar von einem gemeinsamen bilateralen Vorfahren von Deuterostomiern und Protostomiern abstammt. Studien haben gezeigt, dass die Genexpression im Embryo drei der gleichen Signalzentren aufweist, die auch die Gehirne aller Wirbeltiere prägen. Anstatt jedoch an der Bildung ihres Nervensystems beteiligt zu sein [ 294 ] , steuern diese Zentren die Entwicklung der verschiedenen Körperregionen. [ 295 ]
Marine Chordaten

Der Stamm der Chordatiere umfasst drei Unterstämme, darunter die Wirbeltiere (siehe unten). Die beiden anderen Unterstämme sind marine Wirbellose: die Manteltiere ( Salpen und Seescheiden ) und die Cephalochordaten (wie z. B. Lanzettfischchen ). Wirbellose Chordatiere sind eng mit den Wirbeltieren verwandt. Insbesondere wurde diskutiert, wie eng einige ausgestorbene Meeresarten, wie z. B. Pikaiidae , Palaeospondylus , Zhongxiniscus und Vetulicolia , mit den Wirbeltieren verwandt sein könnten.
- Wirbellose Chordatiere sind enge Verwandte der Wirbeltiere.
 Das Lanzettfischchen , ein kleines, durchscheinendes, fischähnliches Cephalochordatentier , ist einer der nächsten lebenden wirbellosen Verwandten der Wirbeltiere. [ 297 ] [ 298 ]
 Manteltiere wie diese fluoreszierenden Seescheiden könnten Hinweise auf die Abstammung von Wirbeltieren und damit auch des Menschen liefern. [ 299 ]
 Pyrosomen sind frei schwebende, biolumineszente Manteltiere, die aus Hunderten von Individuen bestehen.


Wirbeltiere


Wirbeltiere (lateinisch für „ Gelenke der Wirbelsäule “) sind ein Unterstamm der Chordatiere . Sie besitzen eine Wirbelsäule (Rückgrat). Diese bildet die zentrale Stützstruktur für das innere Skelett , das dem Körper Form, Halt und Schutz verleiht und Flossen oder Gliedmaßen am Körper verankert. Die Wirbelsäule beherbergt und schützt zudem das darin verlaufende Rückenmark .
Marine Wirbeltiere lassen sich in Meeresfische und marine Tetrapoden unterteilen .
Meeresfische
Fische atmen typischerweise, indem sie Sauerstoff über Kiemen aus dem Wasser aufnehmen . Ihre Haut ist durch Schuppen und Schleim geschützt . Sie nutzen Flossen zur Fortbewegung und Stabilisierung im Wasser und besitzen in der Regel ein zweikammeriges Herz sowie Augen , die gut an das Sehen unter Wasser angepasst sind, und weitere Sinnesorgane . Bis 2017 wurden über 33.000 Fischarten beschrieben [ 300 ] , davon sind etwa 20.000 Meeresfische [ 301 ] .
| ← Wirbeltiere | |
| (vorhanden) |


Kieferloser Fisch

Frühe Fische besaßen keine Kiefer . Die meisten starben aus, als sie von Kieferfischen (siehe unten) verdrängt wurden, doch zwei Gruppen überlebten: Schleimaale und Neunaugen . Schleimaale bilden eine Klasse von etwa 20 Arten aalartiger , schleimproduzierender Meeresfische. Sie sind die einzigen bekannten lebenden Tiere mit Schädel , aber ohne Wirbelsäule . Neunaugen bilden eine Überklasse mit 38 bekannten, heute noch existierenden Arten kieferloser Fische . [ 302 ] Das adulte Neunauge zeichnet sich durch ein gezahntes, trichterförmiges Saugmaul aus. Obwohl sie dafür bekannt sind, sich in das Fleisch anderer Fische zu bohren , um deren Blut zu saugen , [ 303 ] sind nur 18 Neunaugenarten tatsächlich parasitär. [ 304 ] Schleimaale und Neunaugen bilden zusammen die Schwestergruppe der Wirbeltiere. Heutige Schleimaale ähneln noch immer den Schleimaalen von vor etwa 300 Millionen Jahren. [ 305 ] Die Neunaugen stellen eine sehr alte Linie der Wirbeltiere dar, obwohl ihre genaue Verwandtschaft zu Schleimaalen und Kiefermäulern noch immer umstritten ist. [ 306 ] Molekularanalysen seit 1992 legen nahe, dass Schleimaale am engsten mit den Neunaugen verwandt sind [ 307 ] und somit ebenfalls im monophyletischen Sinne zu den Wirbeltieren gehören. Andere betrachten sie als Schwestergruppe der Wirbeltiere innerhalb des gemeinsamen Taxons der Craniata. [ 308 ]
Das Tully-Monster ist eine ausgestorbene Gattung weichkörperiger Bilateria, die vor etwa 300 Millionen Jahren in tropischen Flussmündungen lebte. Seit 2016 herrscht Uneinigkeit darüber, ob es sich bei diesem Tier um ein Wirbeltier oder ein Wirbelloses handelte. [ 309 ] [ 310 ] Im Jahr 2020 fanden Forscher „starke Beweise“ dafür, dass das Tully-Monster ein Wirbeltier und ein kieferloser Fisch aus der Linie der Neunaugen war . [ 311 ] [ 312 ] Im Jahr 2023 kamen andere Forscher jedoch zu dem Schluss, dass 3D-Scans von Fossilien diese Schlussfolgerungen nicht stützten. [ 313 ]

 Neunaugen sind oft parasitär und besitzen ein zahnbesetztes, trichterförmiges Saugmaul.
 Die ausgestorbenen Pteraspidomorphi , Vorfahren der Kieferwirbeltiere
Pteraspidomorphi ist eine ausgestorbene Klasse früher kieferloser Fische, die Vorfahren der Kieferwirbeltiere waren. Die wenigen Merkmale, die sie mit diesen gemeinsam haben, gelten heute als ursprünglich für alle Wirbeltiere .
Zu Beginn des Devons traten Fische auf, deren Wirbeltierschädel sich grundlegend umgestaltete und einen Kiefer entwickelte . [ 314 ] Alle Wirbeltierkiefer, einschließlich des menschlichen, stammen von diesen frühen Fischkiefern ab. Das Auftreten des frühen Wirbeltierkiefers wurde als „vielleicht der tiefgreifendste und radikalste evolutionäre Schritt in der Geschichte der Wirbeltiere“ beschrieben. [ 315 ] [ 316 ] Kiefer ermöglichen es, Beute zu fangen, festzuhalten und zu zerkauen. Fische ohne Kiefer hatten größere Überlebensschwierigkeiten als Fische mit Kiefern, und die meisten kieferlosen Fische starben während der Trias aus.
Knorpelfische
Kieferfische lassen sich in zwei Hauptgruppen einteilen: Fische mit knöchernem und Fische mit knorpeligem Innenskelett . Knorpelfische wie Haie und Rochen besitzen Kiefer und Skelett aus Knorpel statt aus Knochen . Der Megalodon ist eine ausgestorbene Haiart, die vor etwa 28 bis 1,5 Millionen Jahren lebte. Er ähnelte möglicherweise einer gedrungenen Version des Weißen Hais , war aber deutlich größer und erreichte geschätzte Längen von bis zu 20,3 Metern. [ 317 ] Er war in allen Ozeanen verbreitet [ 318 ] und zählte zu den größten und stärksten Raubtieren der Wirbeltiergeschichte [ 317 ] und hatte vermutlich einen tiefgreifenden Einfluss auf das Meeresleben. [ 319 ] Der Grönlandhai hat mit etwa 400 Jahren die längste bekannte Lebensspanne aller Wirbeltiere. [ 320 ] Einige Haie, wie der Weiße Hai, sind teilweise warmblütig und bringen lebende Junge zur Welt. Der Mantarochen , der größte Rochen der Welt, ist Zielscheibe der Fischerei und gilt nun als gefährdet . [ 321 ]
- Knorpelfische
 Knorpelfische könnten sich aus Stachelhaien entwickelt haben .

 Mantarochen , der größte Rochen
 Sägefische sind Rochen mit langen, sägeartigen Rostren . Alle Arten sind heute vom Aussterben bedroht . [ 322 ]
 Der ausgestorbene Megalodon ähnelte einem riesigen Weißen Hai .
 Der Grönlandhai lebt länger als jedes andere Wirbeltier.

Knochenfisch
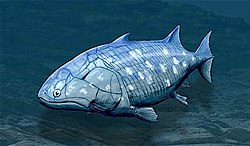


Knochenfische besitzen Kiefer und Skelett aus Knochen , nicht aus Knorpel . Sie haben außerdem harte, knöcherne Deckel, den sogenannten Kiemendeckel (Operculum) , der ihnen beim Atmen hilft und ihre Kiemen schützt. Oft besitzen sie auch eine Schwimmblase , mit der sie ihren Auftrieb besser kontrollieren können. Knochenfische lassen sich weiter in solche mit Fleischflossen und solche mit Strahlenflossen unterteilen . Die ungefähren Datierungen im phylogenetischen Baum stammen von Near et al., 2012 [ 323 ] und Zhu et al., 2009 [ 324 ].
| ← Knochenfisch |
| ||||||||||||||||||
| (vorhanden) |


Fleischflossen bestehen aus fleischigen Lappen , die von knöchernen Stielen gestützt werden, welche vom Körper ausgehen. [ 325 ] Guiyu oneiros , der früheste bekannte Knochenfisch, lebte im späten Silur vor 419 Millionen Jahren. Er weist Merkmale von Strahlenflossern und Fleischflossern auf, wobei die Analyse aller Merkmale ihn eher den Fleischflossern zuordnet. [ 324 ] Aus den Fleischflossen entwickelten sich die Beine der ersten vierfüßigen Landwirbeltiere, sodass ein früher Vorfahre des Menschen vermutlich ein Fleischflosser war. Abgesehen von den Quastenflossern und den Lungenfischen sind Fleischflosser heute ausgestorben.
Die übrigen Knochenfische besitzen Strahlenflossen. Diese bestehen aus Hautfalten, die von knöchernen oder hornigen Stacheln (Strahlen) gestützt werden, welche aufgerichtet werden können, um die Steifigkeit der Flosse zu regulieren.
- Das Hauptunterscheidungsmerkmal der Knorpelfische ( Stör , Löffelstör , Flösselhecht und Schilffisch ) ist die Knorpelbeschaffenheit ihres Skeletts. Man geht davon aus, dass die Vorfahren der Knorpelfische Knochenfische waren, doch ging das Merkmal eines verknöcherten Skeletts im Laufe der Evolution verloren, was zu einer Verringerung des Körpergewichts führte. [ 326 ]
- Neopterygier (vom griechischen Wort für „ neue Flossen “) traten irgendwann im späten Perm, vor den Dinosauriern, auf. Sie waren eine sehr erfolgreiche Fischgruppe, da sie sich schneller fortbewegen konnten als ihre Vorfahren. Ihre Schuppen und Skelette wurden im Laufe ihrer Evolution leichter, und ihre Kiefer wurden kräftiger und effizienter. [ 327 ]
Knochenfische

Etwa 96 % aller modernen Fischarten sind Teleostier [ 328 ] , davon sind etwa 14.000 Meeresarten [329]. Teleostier unterscheiden sich von anderen Knochenfischen durch ihren homozerken Schwanz , bei dem die obere Hälfte die untere spiegelt [330]. Ein weiterer Unterschied liegt in ihren Kieferknochen: Teleostier besitzen Modifikationen der Kiefermuskulatur, die es ihnen ermöglichen, ihre Kiefer vorzuschieben . Dadurch können sie Beute greifen und ins Maul ziehen [ 330 ] . Im Allgemeinen sind Teleostier schneller und wendiger als urtümlichere Knochenfische. Ihr Skelettbau hat sich in Richtung größerer Leichtigkeit entwickelt. Obwohl die Knochen der Teleostier gut verkalkt sind , bestehen sie aus einem Gerüst aus Streben und nicht aus den dichten Spongiosaknochen der Holostei [ 331 ] .
Knochenfische kommen in nahezu allen marinen Lebensräumen vor . [ 332 ] Sie weisen eine enorme Artenvielfalt auf und variieren in der Größe von ausgewachsenen Grundeln mit einer Länge von 8 mm [ 333 ] bis hin zu Mondfischen mit einem Gewicht von über 2.000 kg. [ 334 ] Die folgenden Bilder veranschaulichen die Vielfalt in Form und Farbe moderner mariner Knochenfische…


Fast die Hälfte aller heute lebenden Wirbeltierarten sind Knochenfische. [ 335 ]
Marine Tetrapoden

Ein Tetrapode (griechisch für „Vierfüßer “) ist ein Wirbeltier mit Gliedmaßen (Füßen). Tetrapoden entwickelten sich vor etwa 400 Millionen Jahren im Devon aus urtümlichen Fleischflossern, als ihre frühesten Vorfahren das Meer verließen und sich an das Leben an Land anpassten. [ 336 ] Dieser Wandel von einem Körperbauplan zum Atmen und Navigieren im schwerkraftneutralen Wasser hin zu einem Körperbauplan mit Mechanismen, die es dem Tier ermöglichen, Luft zu atmen, ohne auszutrocknen, und sich an Land fortzubewegen, ist eine der bedeutendsten bekannten evolutionären Veränderungen. [ 337 ] [ 338 ] Tetrapoden lassen sich in vier Klassen einteilen: Amphibien , Reptilien , Vögel und Säugetiere .
| ← Tetrapoden |
| ||||||||||||||||||


Marine Tetrapoden sind Vierfüßer, die vom Land ins Meer zurückkehrten. Die ersten Rückkehren ins Meer erfolgten möglicherweise bereits im Karbon [ 339 ] , während weitere Rückkehrer erst im Känozoikum stattfanden , beispielsweise bei Walen, Robben [ 340 ] und einigen modernen Amphibien [ 341 ] . Amphibien (vom griechischen Wort für „Lebensarten“ ) verbringen einen Teil ihres Lebens im Wasser und einen Teil an Land. Zur Fortpflanzung benötigen sie meist Süßwasser. Einige wenige leben in Brackwasser, aber es gibt keine rein marinen Amphibien [342]. Es gibt jedoch Berichte über Amphibien, die in Meeresgewässer eindringen, wie beispielsweise die Invasion des natürlichen Hybriden Pelophylax esculentus im Schwarzen Meer im Jahr 2010 [ 343 ].
Reptilien
Reptilien (spätlateinisch für kriechend ) haben kein aquatisches Larvenstadium und unterscheiden sich dadurch von Amphibien. Die meisten Reptilien sind eierlegend, obwohl einige Schuppenkriechtiere lebendgebärend sind , ebenso wie einige ausgestorbene aquatische Gruppen [ 344 ] – der Fötus entwickelt sich im Mutterleib in einer Plazenta statt in einer Eierschale . Als Amnioten sind Reptilieneier zum Schutz und Transport von Membranen umgeben, die sie an die Fortpflanzung an Land anpassen. Viele der lebendgebärenden Arten ernähren ihre Föten über verschiedene Formen der Plazenta, ähnlich denen von Säugetieren , wobei einige die Jungtiere auch anfangs selbst versorgen.
Manche Reptilien sind enger mit Vögeln verwandt als andere, und viele Wissenschaftler bevorzugen es, die Reptilien als monophyletische Gruppe zu betrachten, zu der auch die Vögel gehören. [ 345 ] [ 346 ] [ 347 ] [ 348 ] Zu den heute noch lebenden , nicht-vogelartigen Reptilien, die im Meer leben oder sich dort häufig aufhalten, zählen Meeresschildkröten , Seeschlangen , Wasserschildkröten , Meerechsen und Salzwasserkrokodile . Von den derzeit etwa 12.000 existierenden Reptilienarten und -unterarten werden nur etwa 100 als Meeresreptilien klassifiziert. [ 349 ]
Mit Ausnahme einiger Seeschlangen sind die meisten heute lebenden Meeresreptilien eierlegend und müssen zur Eiablage an Land zurückkehren. Abgesehen von Meeresschildkröten verbringen die meisten Arten den größten Teil ihres Lebens an oder in der Nähe des Landes und nicht im Meer. Seeschlangen bevorzugen im Allgemeinen flache Gewässer in Küstennähe, um Inseln herum, insbesondere geschützte Gewässer, sowie die Nähe von Flussmündungen. [ 350 ] [ 351 ] Im Gegensatz zu Landschlangen haben Seeschlangen abgeflachte Schwänze entwickelt, die ihnen beim Schwimmen helfen. [ 352 ]


 Seeschlangen haben abgeflachte Schwänze.
 Der urzeitliche Ichthyosaurus communis entwickelte unabhängig voneinander Flossen, die denen von Delfinen ähnelten.
Einige ausgestorbene Meeresreptilien, wie die Ichthyosaurier , entwickelten sich zu lebendgebärenden Tieren und waren nicht mehr auf die Rückkehr an Land angewiesen. Ichthyosaurier ähnelten Delfinen. Sie traten erstmals vor etwa 245 Millionen Jahren auf und verschwanden vor etwa 90 Millionen Jahren. Der landlebende Vorfahre des Ichthyosauriers besaß weder auf dem Rücken noch am Schwanz Merkmale, die den evolutionären Prozess begünstigt hätten. Dennoch entwickelte der Ichthyosaurier eine Rücken- und eine Schwanzflosse , die seine Schwimmfähigkeit verbesserten. [ 353 ] Der Biologe Stephen Jay Gould bezeichnete den Ichthyosaurier als sein Lieblingsbeispiel für konvergente Evolution . [ 354 ] Die frühesten Meeresreptilien entstanden im Perm . Im Mesozoikum passten sich viele Reptiliengruppen an das Leben im Meer an, darunter Ichthyosaurier , Plesiosaurier , Mosasaurier , Nothosaurier , Placodonten , Meeresschildkröten , Thalattosaurier und Thalattosuchier . Nach dem Massenaussterben am Ende der Kreidezeit waren Meeresreptilien deutlich weniger zahlreich .
Vögel

Seevögel sind an das Leben im Meer angepasst . Sie werden oft als Meeresvögel bezeichnet . Obwohl sich Seevögel hinsichtlich Lebensweise, Verhalten und Physiologie stark unterscheiden, weisen sie häufig eine bemerkenswerte konvergente Evolution auf , da dieselben Umweltprobleme und Nahrungsnischen zu ähnlichen Anpassungen geführt haben. Beispiele hierfür sind Albatrosse , Pinguine , Basstölpel und Alkenvögel .
Im Allgemeinen leben Seevögel länger, brüten später und haben weniger Junge als Landvögel, investieren aber viel Zeit in ihre Jungen. Die meisten Arten nisten in Kolonien , deren Größe von einigen Dutzend Vögeln bis zu Millionen variieren kann. Viele Arten sind bekannt für ihre langen jährlichen Wanderungen , bei denen sie den Äquator überqueren oder in manchen Fällen sogar die Erde umrunden. Sie ernähren sich sowohl an der Meeresoberfläche als auch darunter und fressen sogar Artgenossen. Seevögel können hochgradig pelagisch , küstennah oder in manchen Fällen einen Teil des Jahres ganz außerhalb des Meeres verbringen. Einige Seevögel stürzen sich aus großer Höhe ins Wasser und hinterlassen dabei dampfartige Kondensstreifen, ähnlich denen von Kampfflugzeugen. [ 355 ] Basstölpel stürzen sich mit bis zu 100 Kilometern pro Stunde (60 mph) ins Wasser. Sie besitzen Luftsäcke unter der Haut in Gesicht und Brust, die wie Luftpolsterfolie wirken und den Aufprall auf das Wasser abfedern.
 Europäische Silbermöwen greifen Heringsschwärme von oben an.
 Eselspinguin schwimmt unter Wasser
 Albatrosse durchstreifen riesige Meeresgebiete, manche umrunden sogar den Globus.
Die ersten Seevögel entwickelten sich in der Kreidezeit , und die modernen Seevogelfamilien entstanden im Paläogen .
Säugetiere

Säugetiere (vom lateinischen Wort für Brust ) zeichnen sich durch das Vorhandensein von Milchdrüsen aus , die bei Weibchen Milch zur Aufzucht ihrer Jungen produzieren . Es gibt etwa 130 lebende und kürzlich ausgestorbene Meeressäugetierarten , darunter Robben , Delfine , Wale , Seekühe , Seeotter und Eisbären . [ 356 ] Sie bilden kein eigenes Taxon oder eine systematische Gruppe, sondern sind vielmehr durch ihre Abhängigkeit vom marinen Lebensraum zur Nahrungsaufnahme vereint. Wale und Seekühe sind vollständig aquatisch und daher obligat im Wasser. Robben und Seelöwen sind semiaquatisch; sie verbringen den Großteil ihrer Zeit im Wasser, müssen aber für wichtige Aktivitäten wie Paarung , Fortpflanzung und Häutung an Land zurückkehren . Im Gegensatz dazu sind Otter und Eisbären deutlich weniger an das Leben im Wasser angepasst. Auch ihre Ernährung ist sehr vielfältig: Einige fressen Zooplankton ; Andere ernähren sich von Fischen, Tintenfischen, Schalentieren und Seegras; und einige wenige fressen auch andere Säugetiere.
Im Zuge konvergenter Evolution entwickelten Meeressäugetiere, insbesondere Wale wie Delfine und Delfine, ihren Körperbau so um, dass er dem stromlinienförmigen, spindelförmigen Körperbau pelagischer Fische ähnelte . Vorderbeine wandelten sich zu Flossen , Hinterbeine verschwanden, eine Rückenflosse entstand wieder und der Schwanz entwickelte sich zu einer kräftigen, horizontalen Schwanzflosse . Dieser Körperbau ist eine Anpassung an das Leben als aktiver Jäger in einer Umgebung mit hohem Wasserwiderstand . Eine ähnliche Konvergenz fand beim heute ausgestorbenen Meeresreptil Ichthyosaurier statt . [ 357 ]


Primärproduzenten

Primärproduzenten sind autotrophe Organismen, die ihre eigene Nahrung herstellen, anstatt andere Organismen zu fressen. Dadurch bilden sie den Ausgangspunkt der Nahrungskette für heterotrophe Organismen, die andere Organismen fressen. Einige marine Primärproduzenten sind spezialisierte Bakterien und Archaeen, die als Chemotrophe ihre eigene Nahrung herstellen, indem sie sich an hydrothermalen Quellen und Kaltwasseraustritten versammeln und Chemosynthese betreiben. Der größte Teil der marinen Primärproduktion stammt jedoch von Organismen, die Photosynthese betreiben und dabei das im Wasser gelöste Kohlendioxid nutzen. Dieser Prozess verwendet Sonnenenergie, um Wasser und Kohlendioxid [ 360 ] : 186–187 in Zucker umzuwandeln, die sowohl als Quelle chemischer Energie als auch als organische Moleküle für die Zellstruktur dienen können. [ 360 ] : 1242 Marine Primärproduzenten sind wichtig, da sie die Grundlage für fast alles marine tierische Leben bilden, indem sie den größten Teil des Sauerstoffs und der Nahrung produzieren, die anderen Organismen die zum Überleben notwendige chemische Energie liefern.
Die wichtigsten marinen Primärproduzenten sind Cyanobakterien , Algen und Meerespflanzen. Der bei der Photosynthese freigesetzte Sauerstoff wird von nahezu allen Lebewesen für die Zellatmung benötigt . Darüber hinaus spielen Primärproduzenten eine wichtige Rolle im globalen Kohlenstoff- und Wasserkreislauf . Sie stabilisieren Küstengebiete und bieten Lebensraum für Meerestiere. Traditionell wurde bei der Beschreibung von Primärproduzenten der Begriff „ Abteilung“ anstelle von „Phylum“ verwendet, doch der Internationale Code der Nomenklatur für Algen, Pilze und Pflanzen akzeptiert beide Begriffe mittlerweile als gleichwertig. [ 361 ]
Cyanobakterien
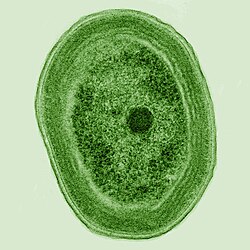
Cyanobakterien waren die ersten Organismen, die die Fähigkeit entwickelten, Sonnenlicht in chemische Energie umzuwandeln. Sie bilden einen Stamm (eine Abteilung) von Bakterien, deren Spektrum von einzellig bis fadenförmig reicht und auch koloniebildende Arten umfasst . Sie kommen fast überall auf der Erde vor: in feuchten Böden, in Süßwasser- und Meeresumgebungen und sogar auf antarktischen Felsen. [ 362 ] Einige Arten treiben als im Ozean treibende Zellen und gehörten somit zu den ersten Phytoplanktonarten .
Die ersten Primärproduzenten, die Photosynthese nutzten, waren ozeanische Cyanobakterien vor etwa 2,3 Milliarden Jahren. [ 363 ] [ 364 ] Die Freisetzung von molekularem Sauerstoff durch Cyanobakterien als Nebenprodukt der Photosynthese führte zu globalen Veränderungen der Erdumwelt. Da Sauerstoff damals für die meisten Lebewesen auf der Erde giftig war, kam es beinahe zum Aussterben sauerstoffempfindlicher Organismen – eine dramatische Veränderung , die die Evolution der wichtigsten Tier- und Pflanzenarten maßgeblich beeinflusste. [ 365 ]
Das winzige marine Cyanobakterium Prochlorococcus , das 1986 entdeckt wurde, bildet heute einen Teil der Basis der marinen Nahrungskette und ist für einen Großteil der Photosynthese im offenen Ozean [ 366 ] sowie für schätzungsweise 20 % des Sauerstoffs in der Erdatmosphäre verantwortlich. [ 367 ] Es ist möglicherweise die artenreichste Gattung der Erde: Ein einziger Milliliter Oberflächenmeerwasser kann 100.000 Zellen oder mehr enthalten. [ 368 ]
Ursprünglich klassifizierten Biologen Cyanobakterien als Algen und bezeichneten sie als „Blaualgen“. Neuere Erkenntnisse gehen davon aus, dass Cyanobakterien Bakterien sind und somit nicht einmal zum selben Reich wie Algen gehören. Die meisten Experten schließen heute alle Prokaryoten und damit auch Cyanobakterien von der Definition der Algen aus . [ 369 ] [ 370 ]
Algen


Algen ist ein informeller Begriff für eine weitverbreitete und vielfältige Gruppe photosynthetischer Protisten , die nicht unbedingt eng miteinander verwandt und daher polyphyletisch sind . Meeresalgen lassen sich in sechs Gruppen unterteilen:
- Grünalgen , eine informelle Gruppe mit etwa 8.000 anerkannten Arten. [ 371 ] Viele Arten verbringen den größten Teil ihres Lebens als Einzelzellen oder sind fadenförmig, während andere Kolonien aus langen Zellketten bilden oder hochdifferenzierte makroskopische Meeresalgen sind.
- Rotalgen , ein (umstrittener) Stamm mit etwa 7.000 anerkannten Arten [ 372 ] , meist mehrzellig und zu dem viele bemerkenswerte Meeresalgen gehören . [ 372 ] [ 373 ]
- Braunalgen , eine Klasse mit etwa 2.000 anerkannten Arten [ 374 ], sind meist mehrzellig und umfassen viele Meerespflanzen, darunter Kelp.
- Kieselalgen sind ein (umstrittener) Stamm mit etwa 100.000 bekannten Arten, die hauptsächlich einzellige Algen sind. Sie produzieren jährlich etwa 20 Prozent des auf der Erde entstehenden Sauerstoffs [ 145 ] , nehmen jährlich über 6,7 Milliarden Tonnen Silizium aus dem Wasser auf, in dem sie leben [ 375 ] , und tragen fast die Hälfte zum organischen Material der Ozeane bei. Die Schalen ( Frusteln ) abgestorbener Kieselalgen können bis zu 800 Meter tief auf dem Meeresboden liegen [ 376 ] .
- Dinoflagellaten sind ein Stamm einzelliger Flagellaten mit etwa 2000 marinen Arten. [ 377 ] Viele Dinoflagellaten sind photosynthetisch , ein Großteil von ihnen ist jedoch mixotroph und kombiniert Photosynthese mit der Aufnahme von Beute ( Phagotrophie ). [ 378 ] Einige Arten leben als Endosymbionten in Meerestieren und spielen eine wichtige Rolle in der Biologie von Korallenriffen . Andere ernähren sich von anderen Protozoen, und einige wenige sind parasitär.
- Euglenophyten , ein Stamm einzelliger Flagellaten mit nur wenigen marinen Vertretern
Im Gegensatz zu höheren Pflanzen besitzen Algen weder Wurzeln, Stängel noch Blätter. Sie lassen sich anhand ihrer Größe in Mikroalgen und Makroalgen einteilen .
Mikroalgen sind mikroskopisch kleine Algen, die mit bloßem Auge nicht sichtbar sind. Sie sind meist einzellig und kommen einzeln, in Ketten oder Gruppen vor, einige jedoch auch mehrzellig . Mikroalgen sind wichtige Bestandteile der marinen Protisten ( siehe oben ) sowie des Phytoplanktons ( siehe unten ). Ihre Artenvielfalt ist enorm . Schätzungen zufolge gibt es 200.000 bis 800.000 Arten, von denen etwa 50.000 beschrieben wurden. [ 379 ] Je nach Art variiert ihre Größe von wenigen Mikrometern (µm) bis zu mehreren hundert Mikrometern. Sie sind optimal an ein von viskosen Kräften geprägtes Milieu angepasst.
 Chlamydomonas globosa , eine einzellige Grünalge, bei der zwei Flagellen unten links gerade noch erkennbar sind.

 Centric Diatomee
 Dinoflagellaten
Makroalgen sind die größeren, vielzelligen und besser sichtbaren Algenarten, die gemeinhin als Seetang bezeichnet werden . Seetang wächst üblicherweise in flachen Küstengewässern, wo er sich mit einer Haftscheibe am Meeresboden verankert . Abgetriebener Seetang kann an Strände gespült werden. Kelp ist ein großer Braunalgenwald, der ausgedehnte Unterwasserwälder bildet und etwa 25 % der weltweiten Küstenlinien bedeckt. [ 381 ] Sie zählen zu den produktivsten und dynamischsten Ökosystemen der Erde. [ 382 ] Einige Sargassum -Algen sind planktonisch (frei schwebend). Wie Mikroalgen sind auch Makroalgen (Seetang) streng genommen marine Protisten, da sie keine echten Pflanzen sind.

 Die Sargassum -Alge ist eine planktonische Braunalge mit Luftblasen, die ihr beim Schweben helfen.
 Sargassum-Fische sind an das Leben zwischen treibenden Sargassum- Algen angepasst .
- Einzellige Makroalgen (siehe auch makroskopische Protisten ← )
 Die einzellige Blasenalge lebt in Gezeitenzonen . Sie kann einen Durchmesser von 4 cm erreichen. [ 383 ]
 Die einzelligen Weingläser der Meerjungfrauen sind pilzförmige Algen, die bis zu 10 cm hoch wachsen.
 Killeralgen sind einzellige Organismen, die Farnen ähneln und bis zu 80 cm lange Stiele ausbilden. [ 384 ]
Einzellige Organismen sind in der Regel mikroskopisch klein, weniger als ein Zehntel Millimeter lang. Es gibt jedoch Ausnahmen. Die Alge *Meerjungfrauen-Weinglas* , eine Gattung subtropischer Grünalgen , ist zwar einzellig, aber bemerkenswert groß und komplex in ihrer Form mit einem einzigen großen Zellkern. Dadurch dient sie als Modellorganismus für die Zellbiologie . [ 385 ] Eine weitere einzellige Alge, *Caulerpa taxifolia *, ähnelt einer Gefäßpflanze mit „Blättern“, die wie bei einem Farn ordentlich an Stielen angeordnet sind. Durch gezielte Züchtung in Aquarien zur Erzeugung robusterer Stämme gelangte sie versehentlich ins Mittelmeer, wo sie sich zu einer invasiven Art entwickelte , die umgangssprachlich als Killeralge bekannt ist . [ 386 ]
Ursprung der Pflanzen

Im Silur entwickelten sich einige Phytoplanktonarten zu Rotalgen , Braunalgen und Grünalgen . Diese Algen besiedelten dann das Land und begannen, sich zu den uns heute bekannten Landpflanzen zu entwickeln. Später, in der Kreidezeit , kehrten einige dieser Landpflanzen als Meerespflanzen wie Mangroven und Seegraswiesen ins Meer zurück . [ 387 ]
Meerespflanzen wie Seegras (z. B. Aalgras und Schildkrötengras , Thalassia) finden sich in Gezeitenzonen und flachen Gewässern. Diese Pflanzen haben sich an den hohen Salzgehalt des Meeres angepasst. Auch in den Brackwassergebieten von Flussmündungen gedeihen Pflanzen , beispielsweise Mangroven , Schlickgras oder Strandgras .


 Seepferdchen , die wie treibende Algen getarnt sind, leben in Kelpwäldern und Seegraswiesen. [ 388 ]
Die weltweite Gesamtfläche der Mangrovenwälder wurde 2010 auf 134.257 Quadratkilometer (51.837 Quadratmeilen) geschätzt (basierend auf Satellitendaten). [ 389 ] [ 390 ] Die weltweite Gesamtfläche der Seegraswiesen ist schwieriger zu bestimmen, wurde aber 2003 konservativ auf 177.000 Quadratkilometer (68.000 Quadratmeilen) geschätzt. [ 391 ]
Mangroven und Seegraswiesen bieten wichtige Kinderstuben für Meereslebewesen und dienen als Versteck- und Nahrungsplätze für Larven und Jungtiere größerer Fische und Wirbelloser. [ 392 ]
Plankton- und trophische Interaktionen

Plankton (vom griechischen Wort für Wanderer ) ist eine vielfältige Gruppe von Organismen, die in der Wassersäule großer Gewässer leben, aber nicht gegen die Strömung schwimmen können. Daher treiben sie mit der Strömung. [ 393 ] Plankton wird durch seine ökologische Nische definiert , nicht durch eine phylogenetische oder taxonomische Klassifizierung. Es ist eine wichtige Nahrungsquelle für viele Meerestiere, von Futterfischen bis hin zu Walen . Man kann Plankton in eine pflanzenähnliche und eine tierische Komponente unterteilen.
Phytoplankton
Phytoplankton sind die pflanzenähnlichen Bestandteile der Planktongemeinschaft (das griechische Wort „phyto“ kommt von „ Pflanze “). Sie sind autotroph (selbsternährend), das heißt, sie produzieren, ähnlich wie Pflanzen, ihre eigene Nahrung und müssen keine anderen Organismen konsumieren.
Phytoplankton besteht hauptsächlich aus mikroskopisch kleinen, photosynthetisch aktiven Eukaryoten , die in der oberen, sonnenbeschienenen Schicht aller Ozeane vorkommen. Sie benötigen Sonnenlicht für die Photosynthese. Die meisten Phytoplanktonarten sind einzellige Algen, es gibt aber auch Bakterien und Protisten . [ 394 ] Zu den Phytoplanktongruppen gehören Cyanobakterien (siehe oben) , Kieselalgen , verschiedene andere Algenarten ( rote, grüne, braune und gelbgrüne), Dinoflagellaten , Euglenophyten , Coccolithophoriden , Cryptomonaden , Chrysophyten , Chlorophyten , Prasinophyten und Silicoflagellaten . Sie bilden die Grundlage der Primärproduktion , die das Nahrungsnetz der Ozeane antreibt , und tragen zur Hälfte der aktuellen globalen Primärproduktion bei – mehr als die Wälder an Land. [ 395 ]


- Phytoplankton
 Phytoplankton bilden die Grundlage der marinen Nahrungskette.
 Phytoplankton gibt es in vielen Formen und Größen.
 Kieselalgen gehören zu den häufigsten Phytoplanktonarten.
 Das Cyanobakterium Prochlorococcus ist für einen Großteil der Primärproduktion der Ozeane verantwortlich.
 Grüne Cyanobakterienablagerungen wurden an einem Felsen in Kalifornien angespült
 Zoochlorellen (grün), die im Inneren des Wimpertierchens Stichotricha secunda leben

 Coccolithophoriden, benannt nach der BBC-Dokumentarserie „ Der blaue Planet“ .

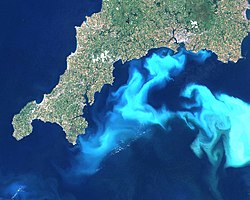 Algenblüte von Emiliania huxleyi vor der Südküste Englands
Zooplankton


Zooplankton ist der tierähnliche Bestandteil der planktonischen Lebensgemeinschaft (der Begriff „Zoo“ stammt vom griechischen Wort für Tier ). Es ist heterotroph (fremdfressend), das heißt, es kann, wie Tiere, keine eigene Nahrung produzieren und muss sich stattdessen von anderen Pflanzen oder Tieren ernähren. Konkret bedeutet dies, dass es Phytoplankton frisst.


Zooplankton ist im Allgemeinen größer als Phytoplankton, meist mikroskopisch klein, einige Arten sind jedoch mit bloßem Auge sichtbar. Viele Protozoen (einzellige Protisten , die sich von anderen mikroskopischen Lebewesen ernähren) zählen zum Zooplankton, darunter Zooflagellaten , Foraminiferen , Radiolarien und einige Dinoflagellaten . Andere Dinoflagellaten sind mixotroph und könnten ebenfalls dem Phytoplankton zugeordnet werden; die Unterscheidung zwischen Pflanzen und Tieren ist bei sehr kleinen Organismen oft nicht mehr eindeutig. Weitere Zooplanktonarten sind pelagische Nesseltiere , Rippenquallen , Weichtiere , Gliederfüßer und Manteltiere sowie planktonische Pfeilwürmer und Borstenwürmer .
Radiolarien sind einzellige Protisten mit komplexen Kieselsäureschalen.
- Mikrozooplankton: die wichtigsten Planktonfresser
 Radiolarien gibt es in vielen Formen.
 Gruppe planktischer Foraminiferen
 Ruderfußkrebse ernähren sich von Phytoplankton. Dieser hier trägt Eier.
 Der Dinoflagellat Protoperidinium stülpt einen großen Fressschleier aus, um Beute zu fangen.
- Makrozooplankton: Größeres Zooplankton kann kleineres Zooplankton räuberisch jagen.

 Venusgürtel , eine Rippenqualle


 Meeresflohkrebs

 Pelagische Seegurke
| Externe Videos | |
|---|---|
| Venusgürtel - YouTube |
Viele Meerestiere beginnen ihr Leben als Zooplankton in Form von Eiern oder Larven, bevor sie sich zu ausgewachsenen Tieren entwickeln. Sie sind meroplanktisch , das heißt, sie verbringen nur einen Teil ihres Lebens im Plankton.
- Larven und Jungtiere
 Lachslarve schlüpft aus dem Ei

 Junger planktonischer Tintenfisch
 Larvenstadium eines Langusten
Mixoplankton


Mixoplankton sind mixotrophe Planktonarten, die sowohl Photosynthese betreiben als auch räuberisch leben können. Im Gegensatz zu Phytoplankton und Zooplankton, die nur einen trophischen Modus aufweisen, beherrschen Mixoplanktonarten beide Modi und befinden sich auf einem Kontinuum zwischen vollständiger Autotrophie und Heterotrophie . Schätzungen zufolge machen Mixoplanktonarten mehr als die Hälfte aller mikroskopischen Planktonarten aus. [ 400 ]
- Mixoplankton
 Tintinniden- Wimperntierchen Favella
 Euglena mutabilis , ein photosynthetisches Flagellat
 Noctiluca scintillans , ein biolumineszenter Dinoflagellat
Dinoflagellaten sind oft mixotroph oder leben in Symbiose mit anderen Organismen. Einige Dinoflagellaten sind biolumineszent . Nachts kann das Meerwasser durch diese Dinoflagellaten von innen aufleuchten und blau funkeln . [ 401 ] [ 402 ] Biolumineszente Dinoflagellaten besitzen Scintillons , einzelne Zytoplasmakörperchen , die Dinoflagellaten-Luciferase enthalten , das Hauptenzym der Lumineszenz. Die Lumineszenz, auch als Meeresphosphoreszenz bezeichnet , tritt als kurze (0,1 Sekunden) blaue Blitze oder Funken auf, wenn einzelne Scintillons angeregt werden, üblicherweise durch mechanische Einwirkungen, beispielsweise durch ein Boot, einen Schwimmer oder die Brandung. [ 403 ]
Nahrungsnetz im Meer

Im Vergleich zu terrestrischen Ökosystemen weisen marine Biomassepyramiden eine umgekehrte Basis auf. [ 404 ] [ 405 ] Insbesondere ist die Biomasse der Konsumenten ( Ruderfußkrebse , Krill , Garnelen , Futterfische ) größer als die der Primärproduzenten . Dies liegt daran, dass die Primärproduzenten der Ozeane winzige Phytoplanktonarten sind , die tendenziell einen schnellen Lebenszyklus aufweisen (sie sind r-Strategen und wachsen und vermehren sich schnell), sodass bereits eine geringe Masse eine hohe Primärproduktionsrate ermöglicht. [ 406 ] Im Gegensatz dazu haben terrestrische Primärproduzenten, wie beispielsweise ausgewachsene Wälder, oft einen langsamen Lebenszyklus (sie sind K-Strategen und wachsen und vermehren sich langsam), sodass eine deutlich größere Masse erforderlich ist, um die gleiche Primärproduktionsrate zu erreichen. [ 407 ]
Aufgrund dieser Umkehrung macht das Zooplankton den größten Teil der marinen Tierbiomasse aus . Als Primärkonsumenten bilden sie das entscheidende Bindeglied zwischen den Primärproduzenten (hauptsächlich Phytoplankton) und dem Rest des marinen Nahrungsnetzes ( Sekundärkonsumenten ). [ 408 ]

Stirbt Phytoplankton, bevor es gefressen wird, sinkt es als Teil des Meeresschnees aus der euphotischen Zone durch die pelagische Wassersäule und setzt sich in der Tiefsee ab. Auf diese Weise binden Phytoplankton jährlich etwa 2 Milliarden Tonnen Kohlendioxid im Ozean, wodurch dieser zu einer Kohlendioxidsenke wird, die etwa 90 % des gesamten gebundenen Kohlenstoffs enthält. [ 410 ]
Im Jahr 2010 entdeckten Forscher, dass Wale Nährstoffe aus der Tiefsee durch einen Prozess, den sie „ Walpumpe“ nannten, wieder an die Oberfläche transportieren . [ 411 ] Wale ernähren sich in tieferen Wasserschichten, wo Krill vorkommt, kehren aber regelmäßig zum Atmen an die Oberfläche zurück. Dort scheiden sie eine stickstoff- und eisenreiche Flüssigkeit aus . Anstatt zu sinken, bleibt diese Flüssigkeit an der Oberfläche, wo sie von Phytoplankton aufgenommen wird. Im Golf von Maine liefert die Walpumpe mehr Stickstoff als die Flüsse. [ 412 ]
Andere Interaktionen
Biogeochemische Kreisläufe

Die Ozeane bilden als Ganzes ein einheitliches marines System, in dem Wasser – das „universelle Lösungsmittel“ [ 413 ] – Nährstoffe und Substanzen löst, die Elemente wie Sauerstoff, Kohlenstoff, Stickstoff und Phosphor enthalten. Diese Substanzen werden unaufhörlich recycelt, chemisch verbunden und wieder abgebaut, gelöst und anschließend ausgefällt oder verdunstet, vom Land, der Atmosphäre und dem Meeresboden aufgenommen und wieder dorthin transportiert. Angetrieben durch die biologische Aktivität mariner Organismen sowie durch die natürlichen Einflüsse von Sonne, Gezeiten und Bewegungen in der Erdkruste, handelt es sich hierbei um die marinen biogeochemischen Kreisläufe . [ 414 ] [ 415 ]


Sedimente und biogener Schlamm

Die Sedimente am Meeresboden haben zwei Hauptursprünge: terrigene und biogene. Terrigene Sedimente machen etwa 45 % der gesamten marinen Sedimente aus und entstehen durch die Erosion von Gesteinen an Land, den Transport durch Flüsse und Oberflächenabfluss, durch vom Wind verwehten Staub, durch Vulkane oder durch die Zerkleinerung durch Gletscher.
Biogene Sedimente machen die übrigen 55 % des Gesamtsediments aus und stammen aus den Skelettresten mariner Protisten (einzelliger Plankton- und Benthosorganismen). Deutlich geringere Mengen ausgefällter Mineralien und Meteorstaub können ebenfalls vorhanden sein. Der Begriff „Schlamm“ bezieht sich im Zusammenhang mit marinen Sedimenten nicht auf deren Konsistenz, sondern auf ihren biologischen Ursprung. Er wurde ursprünglich von John Murray , dem „Vater der modernen Ozeanographie“, geprägt, der die Bezeichnung „ Radiolarienschlamm“ für die Kieselsäureablagerungen von Radiolarienschalen vorschlug, die während der Challenger-Expedition an die Oberfläche gelangten . [ 417 ] Ein biogener Schlamm ist ein pelagisches Sediment, das zu mindestens 30 Prozent aus Skelettresten mariner Organismen besteht.
Haupttypen von biogenem Schlamm | |||||||
|---|---|---|---|---|---|---|---|
| Typ | Mineralformen | Protisten verantwortlich | Name des Skeletts | Beschreibung | |||
| Kieselsäureschlamm | SiO₂ Quarzglas Opal Chert | Kieselalgen |  | Stempel | Einzelne Kieselalgen weisen eine Größe von 0,002 bis 0,2 mm auf. [ 418 ] | ||
| Radiolarien |  | Skeleton | Radiolarien sind Protozoen mit einem Durchmesser von typischerweise 0,1 bis 0,2 mm, die komplexe Mineralskelette bilden, die üblicherweise aus Siliziumdioxid bestehen. | ||||
| Kalkschlamm | CaCO₃ Calcit Aragonit Kalkstein Kreide | Foraminiferen |  | prüfen | Es gibt etwa 10.000 lebende Foraminiferenarten, [ 419 ] die in der Regel kleiner als 1 mm sind. | ||
| Coccolithophoriden |  | Coccolith | Coccolithophoriden sind kugelförmige Zellen mit einem Durchmesser von meist weniger als 0,1 mm, die von Kalkplättchen, den sogenannten Coccolithen, umschlossen sind. [ 420 ] Coccolithen sind wichtige Mikrofossilien . Sie stellen die weltweit größte Quelle biogenen Calciumcarbonats dar und leisten einen bedeutenden Beitrag zum globalen Kohlenstoffkreislauf. [ 421 ] Sie sind der Hauptbestandteil von Kreideablagerungen wie den weißen Klippen von Dover . | ||||
 Ein aufwendiges Mineralskelett eines Radiolarien aus Siliziumdioxid.
 Diatomeen, wichtige Bestandteile des marinen Planktons, besitzen ebenfalls Kieselskelette, die als Frusteln bezeichnet werden .
 Coccolithophoriden besitzen Platten oder Schuppen aus Kalziumkarbonat, die als Coccolithen bezeichnet werden.
 Ein Kieselalgen- Mikrofossil aus der Zeit vor 40 Millionen Jahren
 Kieselgur ist ein weiches, kieselsäurehaltiges Sedimentgestein , das aus Mikrofossilien in Form der Schalen (Frusteln) einzelliger Kieselalgen besteht (zum Vergrößern klicken).
Landinteraktionen

Die Wechselwirkungen zwischen Land und Meer beeinflussen das Meeresleben auf vielfältige Weise. Küstenlinien weisen typischerweise Kontinentalschelfe auf , die sich ein Stück weit ins Meer erstrecken. Diese bieten ausgedehnte, bis zum Meeresboden reichende Flachwasserzonen, die die Photosynthese ermöglichen und Lebensraum für Seegraswiesen, Korallenriffe, Kelpwälder und andere benthische Lebewesen bieten . Weiter vom Ufer fällt der Kontinentalschelf zum Tiefwasser ab. Winde an der Meeresoberfläche oder Tiefseeströmungen können dazu führen, dass kaltes und nährstoffreiches Wasser aus der Tiefsee die Kontinentalhänge hinaufströmt . Dies kann zu Auftriebsströmungen an den äußeren Rändern der Kontinentalschelfe führen und somit ideale Bedingungen für Phytoplanktonblüten schaffen .
Das von der Sonne verdunstete Wasser der Meeresoberfläche kann sich an Land niederschlagen und schließlich als Oberflächenabfluss oder durch Flüsse wieder ins Meer gelangen, angereichert mit Nährstoffen und Schadstoffen . Wenn Flüsse in Ästuare münden , vermischt sich Süßwasser mit Salzwasser und wird brackig . Dadurch entsteht ein weiterer Flachwasserlebensraum, in dem Mangrovenwälder und Fische der Ästuare gedeihen. Insgesamt kann sich das Leben in Binnenseen vielfältiger entwickeln als im Meer, da Süßwasserlebensräume im Gegensatz zu Meereslebensräumen selbst vielfältig und abgegrenzt sind. Einige Wasserlebewesen, wie Lachse und Aale , wandern zwischen Süßwasser- und Meereslebensräumen hin und her. Diese Wanderungen können zum Austausch von Krankheitserregern führen und Auswirkungen auf die Evolution des Lebens im Meer haben.
Anthropogene Einflüsse

Menschliche Aktivitäten beeinträchtigen das Meeresleben und die marinen Lebensräume durch Überfischung , Verschmutzung , Versauerung und die Einschleppung invasiver Arten . Diese Faktoren wirken sich auf marine Ökosysteme und Nahrungsnetze aus und können bisher unerkannte Folgen für die Biodiversität und den Fortbestand mariner Lebensformen nach sich ziehen. [ 423 ]
Biodiversität und Aussterbeereignisse


Die Biodiversität ist das Ergebnis von über drei Milliarden Jahren Evolution . Bis vor etwa 600 Millionen Jahren bestand alles Leben aus Archaeen , Bakterien , Protozoen und ähnlichen Einzellern . Die Geschichte der Biodiversität im Phanerozoikum (den letzten 540 Millionen Jahren) beginnt mit einem rasanten Wachstum während der Kambrischen Explosion – einer Periode, in der nahezu alle Stämme mehrzelliger Organismen erstmals auftraten. In den darauffolgenden rund 400 Millionen Jahren zeigte die Diversität der Wirbellosen nur eine geringe allgemeine Tendenz, während die Diversität der Wirbeltiere einen exponentiellen Anstieg aufwies. [ 425 ]
Mehr als 99 Prozent aller jemals auf der Erde lebenden Arten, insgesamt über fünf Milliarden Arten [ 426 ] , gelten als ausgestorben . [ 427 ] [ 428 ] Diese Aussterbeereignisse verlaufen ungleichmäßig. Der dramatische Anstieg der Artenvielfalt wurde von periodischen, massiven Verlusten begleitet, die als Massenaussterben klassifiziert werden . [ 425 ] Massenaussterben treten auf, wenn das Leben weltweit rapide abnimmt. Der größte Teil der Artenvielfalt und Biomasse auf der Erde findet sich bei Mikroorganismen , die schwer zu messen sind. Die dokumentierten Aussterbeereignisse basieren daher auf den leichter zu beobachtenden Veränderungen in der Artenvielfalt und Häufigkeit größerer, vielzelliger Organismen und nicht auf der gesamten Artenvielfalt und -häufigkeit. [ 429 ] Marine Fossilien werden aufgrund ihres besseren Fossilienbestands und ihrer größeren stratigraphischen Reichweite im Vergleich zu Landorganismen hauptsächlich zur Messung von Aussterberaten herangezogen .
Basierend auf den Fossilienfunden liegt die natürliche Aussterberate auf der Erde bei etwa zwei bis fünf taxonomischen Familien mariner Tiere pro Million Jahre. Das Große Sauerstoffereignis war vermutlich das erste große Aussterbeereignis. Seit der Kambrischen Explosion haben fünf große Massenaussterben die natürliche Aussterberate deutlich überschritten. [ 430 ] Das verheerendste war das Massenaussterben an der Perm-Trias-Grenze vor 251 Millionen Jahren. Man schätzt allgemein, dass die fünf großen Massenaussterben des Phanerozoikums (der letzten 540 Millionen Jahre) mehr als 40 % der marinen Gattungen und wahrscheinlich mehr als 70 % der marinen Arten auslöschten. [ 431 ] Das gegenwärtige, durch menschliche Aktivitäten verursachte Aussterben im Holozän , das heute als „sechstes Aussterben“ bezeichnet wird, könnte sich letztendlich als noch verheerender erweisen.
Erforschung und Erkundung des Meereslebens
Forschung und Studium
Um Forschung zu betreiben und das Wissen über das Meeresleben zu erweitern, nutzen Wissenschaftler verschiedene Methoden, um die Tiefen des Ozeans zu erreichen und zu erforschen. Zu diesem Zweck werden mehrere Hightech-Instrumente und -Fahrzeuge eingesetzt. [ 432 ]
- Autonome Unterwasserfahrzeuge (AUVs) – Unterwasserroboter zur Erforschung der Ozeane. AUVs sind unabhängige Roboter und können unbemannt erkunden. Sie werden von einem Schiff ausgesetzt und von der Oberfläche aus gesteuert. [ 433 ]
- Tiefseeschleppfahrzeuge (DTVs) – Fahrzeuge, die von Forschungsschiffen geschleppt werden und eine einfachere Alternative zu komplexeren Unterwasserfahrzeugen darstellen. Sie dienen als vielseitige Plattformen für den Einsatz ozeanografischer Instrumente zur Messung verschiedener Ozeanparameter. Spezielle Modelle wie das DTV BRIDGET werden zur Untersuchung hydrothermaler Quellen eingesetzt, indem sie sich in der Nähe des Meeresbodens bewegen. [ 434 ]
- Bemannte U-Boote – bemannte Unterwasserfahrzeuge, die zur Erkundung und zu Experimenten eingesetzt werden und häufig vom Militär verwendet werden. [ 432 ]
- Forschungsschiffe sind Boote oder Schiffe, die zur Durchführung von Forschung über einen längeren Zeitraum eingesetzt werden. Sie können eine Vielzahl von Probenahme- und Vermessungsgeräten transportieren. Forschungsschiffe verfügen typischerweise über Bordlabore, die es den Forschern ermöglichen, die während der Fahrten gesammelten Materialien umgehend zu analysieren.
- Ferngesteuerte Unterwasserfahrzeuge (ROVs) – unbemannte Fahrzeuge, die in der Lage sind, größere Wassertiefen zu erreichen, um ein breiteres Spektrum an Informationen zu sammeln. [ 432 ] [ 435 ]
Siehe auch
- Blue Planet – Britische Naturdokumentationsserie aus dem Jahr 2001 – David Attenborough
- Blue Planet II – Britische Naturdokumentationsserie aus dem Jahr 2017
- Bestandsaufnahme des Meereslebens – 10-jähriges internationales meeresbiologisches Programm
- Kolonisierung des Landes
- Ökologie mariner Larven
- Taxonomie der Wirbellosen – System zur Klassifizierung der Tiere mit Schwerpunkt auf den Wirbellosen
Anmerkungen
- ^ Dies ist die Messung, die das Forschungsschiff Kaikō im März 1995 durchführteund die bis dato als die genaueste gilt.Weitere Details finden Sie im Artikel über das Challengertief .
- Man ging lange davon aus, dass Myxozoa eine Ausnahme bildeten, doch mittlerweile werden sie als stark modifizierte Vertreter der Nesseltiere ( Cnidaria) betrachtet . Jiménez-Guri E, Philippe H, Okamura B, Holland PW (Juli 2007). „Buddenbrockia is a cnidarian worm“. Science . 317 ( 5834): 116–118 . Bibcode : 2007Sci...317..116J . doi : 10.1126/science.1142024 . PMID 17615357. S2CID 5170702 .
Referenzen
- ^ a b Cavicchioli R, Ripple WJ, Timmis KN, Azam F, Bakken LR, Baylis M, et al. (September 2019). „Warnung von Wissenschaftlern an die Menschheit: Mikroorganismen und Klimawandel“ . Nature Reviews Microbiology . 17 (9): 569–586 . doi : 10.1038/ s41579-019-0222-5 . PMC 7136171. PMID 31213707 .
 Der bearbeitete Text wurde aus dieser Quelle kopiert, die unter einer Creative Commons Attribution 4.0 International License verfügbar ist .
- ^ Drogin, B (2. August 2009). „Die Kartierung eines Ozeans von Arten“ . Los Angeles Times . Abgerufen am 18. August 2009 .
- ^ Bouchet, Philippe; Decock, Wim; Lonneville, Britt; Vanhoorne, Bart; Vandepitte, Leen (Juni 2023). „Entdeckung der marinen Biodiversität: Die Metriken neuer Artenbeschreibungen“ . Frontiers in Marine Science . 10 (3389) 929989. Bibcode : 2023FrMaS..1029989B . doi : 10.3389/fmars.2023.929989 – via ResearchGate .
- ^ a b c „National Oceanic and Atmospheric Administration – Ocean“ . NOAA . Abgerufen am 20. Februar 2019 .
- ^ Paul, GS (2010). „Die Evolution der Dinosaurier und ihrer Welt“. In: The Princeton Field Guide to Dinosaurs . Princeton: Princeton University Press . S. 19. ISBN 978-0-691-13720-9Die
- ^ Bortolotti, Dan (2008). Wildes Blau: eine Naturgeschichte des größten Tieres der Welt . New York: Thomas Dunn Books. ISBN 978-0-312-38387-9OCLC 213451450 .
- ^ a b c Bar-On YM, Phillips R, Milo R (Juni 2018). „Die Biomasseverteilung auf der Erde“ . Proceedings of the National Academy of Sciences of the United States of America . 115 (25): 6506–6511 . Bibcode : 2018PNAS..115.6506B . doi : 10.1073/pnas.1711842115 . PMC 6016768. PMID 29784790 .
- ^ „Census Of Marine Life“ . Smithsonian . 30. April 2018. Abgerufen am 29. Oktober 2020 .
- ^ Xiao-Feng P (2014). „Kapitel 5“. Wasser: Molekulare Struktur und Eigenschaften . World Scientific. S. 390–461 . ISBN 978-981-4440-44-8Die
- ^ Greenwood NN , Earnshaw A (1997). Chemistry of the Elements (2. Aufl.). Butterworth-Heinemann. S. 620. doi : 10.1016/C2009-0-30414-6 . ISBN 978-0-08-037941-8Die
- ^ „Wasser, das universelle Lösungsmittel“ . USGS . Archiviert vom Original am 9. Juli 2017. Abgerufen am 27. Juni 2017 .
- ^ Reece JB (31. Oktober 2013). Campbell Biologie (10. Aufl.). Pearson . S. 48. ISBN 978-0-321-77565-8Die
- ^ Reece JB (31. Oktober 2013). Campbell Biologie (10. Aufl.). Pearson . S. 44. ISBN 978-0-321-77565-8Die
- ^ Collins JC (1991). Die Matrix des Lebens: Eine Betrachtung natürlicher Moleküle aus der Perspektive des Umweltwassers . Molecular Presentations. ISBN 978-0-9629719-0-7Die
- ^ „7.000-m-Klasse-ferngesteuertes Unterwasserfahrzeug KAIKO 7000 “ . Japanische Agentur für Meeres- und Geowissenschaft und Technologie (JAMSTEC). Archiviert vom Original am 10. April 2020. Abgerufen am 7. Juni 2008 .
- ^ „Wie viele Ozeane gibt es?“ . NOAA . 9. April 2020.
- ^ Charette MA, Smith WH (Juni 2010). „Das Volumen des Ozeans der Erde“ . Oceanography . 23 (2): 112–114 . Bibcode : 2010Ocgpy..23b.112C . doi : 10.5670/oceanog.2010.51 . hdl : 1912/3862 .
- ^ Duxbury AC, Cenedese C (7. Mai 2021). „Kugelförmige Meerestiefe – Hydrologie“ . Encyclopædia Britannica . Abgerufen am 12. April 2015 .
- ^ „Dritter Planet von der Sonne – die unruhige Erde“ . NASA Cosmos . Abgerufen am 12. April 2015 .
- ^ Perlman H (17. März 2014). „Das Wasser der Welt“ . USGS Water-Science School . Abgerufen am 12. April 2015 .
- ^ Kennish KJ (2001). Praktisches Handbuch der Meereswissenschaften . Reihe Meereswissenschaften (3. Aufl.). CRC Press. S. 35. ISBN 978-0-8493-2391-1Die
- ^ "Warum ist das Meer salzig? "
- ^ Mullen L (11. Juni 2002). „Salz der frühen Erde“ . NASA Astrobiology Magazine. Archiviert vom Original am 30. Juni 2007. Abgerufen am 14. März 2007 .
- ^ Morris RM. „Ozeanische Prozesse“ . NASA Astrobiology Magazine. Archiviert vom Original am 15. April 2009. Abgerufen am 14. März 2007 .
- ^ Scott M (24. April 2006). „Der große Wärmespeicher der Erde“ . NASA Earth Observatory . Abgerufen am 14. März 2007 .
- ^ Sample S (21. Juni 2005). „Meeresoberflächentemperatur“ . NASA. Archiviert vom Original am 6. April 2013. Abgerufen am 21. April 2007 .
- ^ „Volumina der Weltmeere von ETOPO1“ . NOAA . Archiviert vom Original am 11. März 2015. Abgerufen am 20. Februar 2019 .
- ^ "Planet "Erde"": Wir hätten ihn "Meer" nennen sollen" . Zitat Invertigator . 25. Januar 2017.
- ^ „Enthüllung des Planeten Ozean“ . NASA Science . 14. März 2002. Archiviert vom Original am 8. Oktober 2022. Abgerufen am 19. Februar 2019 .
- ^ Dyches P, Brown D (12. Mai 2015). „NASA-Forschung enthüllt: Europas mysteriöses dunkles Material könnte Meersalz sein“ . NASA . Abgerufen am 12. Mai 2015 .
- ^ Adamu Z (1. Oktober 2012). „Wasser nahe der Oberfläche eines Jupitermondes nur vorübergehend“ . CNN Light Years . Archiviert vom Original am 5. Oktober 2012. Abgerufen am 24. April 2019 .
- ^ Tritt CS (2002). „Möglichkeit von Leben auf Europa“ . Milwaukee School of Engineering. Archiviert vom Original am 9. Juni 2007. Abgerufen am 10. August 2007 .
- ^ Schulze-Makuch D, Irwin LN (2001). „Alternative Energiequellen könnten Leben auf Europa ermöglichen“ (PDF) . Fachbereiche Geologie und Biologie, Universität von Texas in El Paso . Archiviert vom Original (PDF) am 3. Juli 2006. Abgerufen am 21. Dezember 2007 .
- ^ Friedman L (14. Dezember 2005). „Projekte: Europa-Missionskampagne“ . The Planetary Society. Archiviert vom Original am 11. August 2011. Abgerufen am 8. August 2011 .
- ^ „Ozean innerhalb von Enceladus könnte hydrothermale Aktivität beherbergen“ . NASA-Pressemitteilung . 11. März 2015.
- ^ „Alter der Erde“ . United States Geological Survey . 9. Juli 2007. Abgerufen am 31. Mai 2015 .
- ^ Dalrymple GB (Januar 2001). „Das Alter der Erde im 20. Jahrhundert: ein (weitgehend) gelöstes) Problem“. Special Publications . 190 (1). London: Geological Society: 205–221 . Bibcode : 2001GSLSP.190..205D . doi : 10.1144/GSL.SP.2001.190.01.14 . S2CID 130092094 .
- ^ Manhes G, Allègre CJ , Dupré B, Hamelin B (Mai 1980). „Bleiisotopenuntersuchung basischer bis ultrabasischer Schichtkomplexe: Spekulationen über das Alter der Erde und die Eigenschaften des primitiven Mantels“. Earth and Planetary Science Letters . 47 (3): 370–382 . Bibcode : 1980E&PSL..47..370M . doi : 10.1016/0012-821X(80)90024-2 . ISSN 0012-821X .
- ^ Schopf JW , Kudryavtsev AB, Czaja AD, Tripathi AB (5. Oktober 2007). „Beweise für archaisches Leben: Stromatolithen und Mikrofossilien“. Precambrian Research . 158 ( 3–4 ): 141–155 . Bibcode : 2007PreR..158..141S . doi : 10.1016/j.precamres.2007.04.009 . ISSN 0301-9268 .
- ^ Raven PH, Johnson GB (2002). Biologie (6. Aufl.). Boston: McGraw-Hill. S. 68. ISBN 978-0-07-112261-0Die
- ^ Baumgartner RJ, Van Kranendonk MJ, Wacey D, Fiorentini ML, Saunders M, Caruso S, et al. (2019). „Nanoporöser Pyrit und organische Substanz in 3,5 Milliarden Jahre alten Stromatolithen dokumentieren primordiales Leben“ (PDF) . Geology . 47 (11): 1039–1043 . Bibcode : 2019Geo....47.1039B . doi : 10.1130/G46365.1 . S2CID 204258554 .
- ^ „Früheste Lebenszeichen: Wissenschaftler entdecken mikrobielle Überreste in uralten Gesteinen“ . Phys.org . 26. September 2019.
- ^ Ohtomo Y, Kakegawa T, Ishida A, Nagase T, Rosing MT (Januar 2014). „Hinweise auf biogenen Graphit in frühen archaischen Isua-Metasedimentgesteinen“. Naturgeowissenschaften . 7 (1): 25–28 . Bibcode : 2014NatGe...7...25O . doi : 10.1038/ngeo2025 . ISSN 1752-0894 .
- ^ a b Borenstein S (19. Oktober 2015). „Hinweise auf Leben auf der vermeintlich öden frühen Erde“ . Associated Press . Abgerufen am 9. Oktober 2018 .
- ^ Bell EA, Boehnke P, Harrison TM, Mao WL (November 2015). „Potenziell biogener Kohlenstoff in einem 4,1 Milliarden Jahre alten Zirkon“ . Proceedings of the National Academy of Sciences of the United States of America . 112 (47): 14518–21 . Bibcode : 2015PNAS..11214518B . doi : 10.1073/pnas.1517557112 . PMC 4664351. PMID 26483481 .
- ^ Penny D, Poole A (Dezember 1999). „Die Natur des letzten gemeinsamen Vorfahren aller Lebewesen“. Current Opinion in Genetics & Development . 9 (6): 672–7 . doi : 10.1016/S0959-437X(99)00020-9 . PMID 10607605 .
- ^ Theobald DL (Mai 2010) . „Ein formaler Test der Theorie der universellen gemeinsamen Abstammung“. Nature . 465 (7295): 219–22 . Bibcode : 2010Natur.465..219T . doi : 10.1038/nature09014 . PMID 20463738. S2CID 4422345 .
- ^ Doolittle WF (Februar 2000). „Die Entwurzelung des Baumes des Lebens“ (PDF) . Scientific American . 282 (2): 90–95 . Bibcode : 2000SciAm.282b..90D . doi : 10.1038/scientificamerican0200-90 . PMID 10710791. Archiviert vom Original (PDF) am 7. September 2006. Abgerufen am 5. April 2015 .
- ^ Peretó J (März 2005). „Kontroversen über den Ursprung des Lebens“ (PDF) . International Microbiology . 8 (1): 23–31 . PMID 15906258. Archiviert vom Original (PDF) am 24. August 2015.
- ^ Joyce GF (Juli 2002). „Das hohe Alter der RNA-basierten Evolution“. Nature . 418 ( 6894): 214–21 . Bibcode : 2002Natur.418..214J . doi : 10.1038/418214a . PMID 12110897. S2CID 4331004 .
- ^ Trevors JT, Psenner R (Dezember 2001). „Von der Selbstorganisation des Lebens zu heutigen Bakterien: Eine mögliche Rolle für Nanozellen“ . FEMS Microbiology Reviews . 25 (5): 573–82 . doi : 10.1111/j.1574-6976.2001.tb00592.x . PMID 11742692 .
- ^ Wade N (25. Juli 2016). „Lernen Sie Luca kennen, den Vorfahren aller Lebewesen“ . New York Times . Abgerufen am 25. Juli 2016 .
- ^ Bapteste E, Walsh DA (Juni 2005). „Stimmt der ‚Ring des Lebens‘ wirklich?“. Trends in Microbiology . 13 (6): 256–61 . doi : 10.1016/j.tim.2005.03.012 . PMID 15936656 .
- ^ Darwin C (1859). „Über die Entstehung der Arten“ . London: John Murray.
- ^ Doolittle WF, Bapteste E (Februar 2007). „Musterpluralismus und die Baum-des-Lebens-Hypothese“ . Proceedings of the National Academy of Sciences of the United States of America . 104 (7): 2043–9 . Bibcode : 2007PNAS..104.2043D . doi : 10.1073 / pnas.0610699104 . PMC 1892968. PMID 17261804 .
- ^ Kunin V, Goldovsky L, Darzentas N, Ouzounis CA (Juli 2005). „Das Netz des Lebens: Rekonstruktion des mikrobiellen phylogenetischen Netzwerks“ . Genome Research . 15 (7): 954–959 . doi : 10.1101/gr.3666505 . PMC 1172039. PMID 15965028 .
- ^ Jablonski D (Juni 1999). „Die Zukunft des Fossilienbestands“. Science . 284 (5423): 2114–6 . Bibcode : 1999Sci...284.2114J . doi : 10.1126 / science.284.5423.2114 . PMID 10381868. S2CID 43388925 .
- ^ Ciccarelli FD, Doerks T, von Mering C, Creevey CJ, Snel B, Bork P (März 2006). „Zur automatischen Rekonstruktion eines hochaufgelösten Stammbaums des Lebens“. Science . 311 (5765): 1283–7 . Bibcode : 2006Sci...311.1283C . CiteSeerX 10.1.1.381.9514 . doi : 10.1126/science.1123061 . PMID 16513982. S2CID 1615592 .
- ^ Mason SF (6. September 1984). „Ursprünge der biomolekularen Händigkeit“. Nature . 311 (5981): 19–23 . Bibcode : 1984Natur.311...19M . doi : 10.1038 / 311019a0 . PMID 6472461. S2CID 103653 .
- ^ Wolf YI, Rogozin IB, Grishin NV, Koonin EV (September 2002). „Genombäume und der Baum des Lebens“. Trends in Genetics . 18 (9): 472–9 . doi : 10.1016/S0168-9525(02)02744-0 . PMID 12175808 .
- ^ Varki A , Altheide TK (Dezember 2005). „Vergleich des menschlichen und des Schimpansengenoms: Die Suche nach der Nadel im Heuhaufen“ . Genome Research . 15 (12): 1746–58 . doi : 10.1101/gr.3737405 . PMID 16339373 .
- ^ a b Cavalier-Smith T (Juni 2006). „Zellevolution und Erdgeschichte: Stasis und Revolution“ . Philosophical Transactions of the Royal Society of London. Series B, Biological Sciences . 361 (1470): 969–1006 . doi : 10.1098 / rstb.2006.1842 . PMC 1578732. PMID 16754610 .
- ^ Schopf JW (Juni 2006). „ Fossilienbelege archaischen Lebens“ . Philosophical Transactions of the Royal Society of London. Series B, Biological Sciences . 361 (1470): 869–885 . doi : 10.1098/rstb.2006.1834 . PMC 1578735. PMID 16754604 .
- Altermann W, Kazmierczak J (November 2003). „Archaische Mikrofossilien: Eine Neubewertung des frühen Lebens auf der Erde“ . Research in Microbiology . 154 (9): 611–7 . doi : 10.1016/j.resmic.2003.08.006 . PMID 14596897 .
- ^ a b Schopf JW (Juli 1994). „Unterschiedliche Raten, unterschiedliche Schicksale: Tempo und Modus der Evolution veränderten sich vom Präkambrium zum Phanerozoikum“ . Proceedings of the National Academy of Sciences of the United States of America . 91 (15): 6735–42 . Bibcode : 1994PNAS...91.6735S . doi : 10.1073 / pnas.91.15.6735 . PMC 44277. PMID 8041691 .
- Poole AM , Penny D ( Januar 2007). „Bewertung von Hypothesen zur Entstehung der Eukaryoten“. BioEssays . 29 (1): 74–84 . Bibcode : 2007BiEss..29...74P . doi : 10.1002/bies.20516 . PMID 17187354 .
- ^ a b Dyall SD, Brown MT, Johnson PJ (April 2004). „Ancient invasions: from endosymbionts to organelles“. Science . 304 ( 5668): 253–7 . Bibcode : 2004Sci...304..253D . doi : 10.1126/science.1094884 . PMID 15073369. S2CID 19424594 .
- ^ Martin W (Oktober 2005). „Das fehlende Bindeglied zwischen Hydrogenosomen und Mitochondrien“. Trends in Microbiology . 13 (10): 457–9 . doi : 10.1016/j.tim.2005.08.005 . PMID 16109488 .
- ^ Lang BF, Gray MW, Burger G (Dezember 1999). „Mitochondriale Genom-Evolution und der Ursprung der Eukaryoten“. Annual Review of Genetics . 33 : 351–97 . doi : 10.1146/annurev.genet.33.1.351 . PMID 10690412 .
- McFadden GI (Dezember 1999). „Endosymbiose und Evolution der Pflanzenzelle“. Current Opinion in Plant Biology . 2 (6): 513–9 . Bibcode : 1999COPB....2..513M . doi : 10.1016/S1369-5266(99)00025-4 . PMID 10607659 .
- ^ DeLong EF , Pace NR (August 2001). „Umweltdiversität von Bakterien und Archaeen“. Systematic Biology . 50 (4): 470–478 . CiteSeerX 10.1.1.321.8828 . doi : 10.1080/106351501750435040 . PMID 12116647 .
- ^ Kaiser D (Dezember 2001). „Aufbau eines vielzelligen Organismus“. Annual Review of Genetics . 35 : 103–23 . doi : 10.1146/annurev.genet.35.102401.090145 . PMID 11700279. S2CID 18276422 .
- ^ Zimmer C (7. Januar 2016). „Genetischer Flip half Organismen, sich von einer Zelle zu vielen zu vermehren“ . The New York Times . Abgerufen am 7. Januar 2016 .
- Valentine JW , Jablonski D, Erwin DH (Februar 1999). „Fossilien, Moleküle und Embryonen: Neue Perspektiven auf die kambrische Explosion“. Development . 126 (5): 851–9 . doi : 10.1242/dev.126.5.851 . PMID 9927587 .
- ^ Ohno S (Januar 1997). „Die Ursache und die Folgen der kambrischen Explosion in der Tierentwicklung“. Journal of Molecular Evolution . 44 (Suppl. 1): S23–S27. Bibcode : 1997JMolE..44S..23O . doi : 10.1007 /PL00000055 . PMID 9071008. S2CID 21879320 .
- Valentine JW, Jablonski D (2003). „Morphologische und entwicklungsbiologische Makroevolution: eine paläontologische Perspektive“ . The International Journal of Developmental Biology . 47 ( 7–8 ): 517–22 . doi : 10.1387/ijdb.14756327 . PMID 14756327. Abgerufen am 30. Dezember 2014 .
- ^ Wellman CH, Osterloff PL, Mohiuddin U (September 2003). „Fragmente der frühesten Landpflanzen“ (PDF) . Nature . 425 (6955): 282–5 . Bibcode : 2003Natur.425..282W . doi : 10.1038 / nature01884 . PMID 13679913. S2CID 4383813 .
- ^ Barton N (2007). Evolution . CSHL Press. S. 273–274 . ISBN 978-0-19-922632-0Abgerufen am 30. September 2012 .
- ^ Waters ER (Dezember 2003). „Molekulare Anpassung und der Ursprung der Landpflanzen“. Molecular Phylogenetics and Evolution . 29 (3): 456–63 . Bibcode : 2003MolPE..29..456W . doi : 10.1016/j.ympev.2003.07.018 . PMID 14615186 .
- ^ Mayhew PJ (August 2007). „Warum gibt es so viele Insektenarten? Perspektiven aus Fossilien und Phylogenien“. Biological Reviews of the Cambridge Philosophical Society . 82 (3): 425–54 . Bibcode : 2007BioRv..82..425M . doi : 10.1111 / j.1469-185X.2007.00018.x . PMID 17624962. S2CID 9356614 .
- ^ Carroll RL (Mai 2007). „Die paläozoische Abstammung von Salamandern, Fröschen und Blindwühlen“ . Zoological Journal of the Linnean Society . 150 (Supplement s1): 1–140 . doi : 10.1111/j.1096-3642.2007.00246.x . ISSN 1096-3642 .
- ^ Wible JR, Rougier GW, Novacek MJ, Asher RJ (Juni 2007). „Eutheria aus der Kreidezeit und laurasischer Ursprung der Plazentatiere nahe der K/T-Grenze“. Nature . 447 ( 7147): 1003–6 . Bibcode : 2007Natur.447.1003W . doi : 10.1038/nature05854 . PMID 17581585. S2CID 4334424 .
- ^ Witmer LM (Juli 2011). „Paläontologie: Eine Ikone vom Thron gestoßen“. Nature . 475 (7357): 458–9 . doi : 10.1038/475458a . PMID 21796198. S2CID 205066360 .
- ^ Schloss PD, Handelsman J (Dezember 2004). „Status der mikrobiellen Bestandsaufnahme“ . Microbiology and Molecular Biology Reviews . 68 (4): 686–91 . doi : 10.1128/MMBR.68.4.686-691.2004 . PMC 539005. PMID 15590780 .
- ^ Miller GT, Spoolman S (Januar 2012). „Kapitel 4.1: Was ist Biodiversität und warum ist sie wichtig?“ . Environmental Science . Cengage Learning. S. 62. ISBN 978-1-133-70787-5Die
- ^ Mora C, Tittensor DP, Adl S, Simpson AG, Worm B (August 2011). „Wie viele Arten gibt es auf der Erde und im Ozean?“ . PLOS Biology . 9 (8) e1001127. doi : 10.1371/journal.pbio.1001127 . PMC 3160336 . PMID 21886479 .
- ^ Madigan M, Martinko J, Hrsg. (2006). Brock Biology of Microorganisms (13. Aufl.). Pearson-Ausbildung. P. 1096. ISBN 978-0-321-73551-5Die
- ^ Rybicki EP (1990). „Die Klassifizierung von Organismen an der Grenze des Lebens oder Probleme der Virussystematik“. South African Journal of Science . 86 : 182–6 . ISSN 0038-2353 .
- ^ Lwoff A (Oktober 1957). „Das Konzept des Virus“ . Journal of General Microbiology . 17 (2): 239–53 . doi : 10.1099/00221287-17-2-239 . PMID 13481308 .
- ^ „WHO-Sterblichkeitsdaten 2002“ . Archiviert vom Original am 19. August 2006. Abgerufen am 20. Januar 2007 .
- ^ „Funktionen des globalen ozeanischen Mikrobioms sind der Schlüssel zum Verständnis von Umweltveränderungen“ . www.sciencedaily.com . Universität von Georgia. 10. Dezember 2015. Abgerufen am 11. Dezember 2015 .
- ^ Suttle CA (September 2005). „Viren im Meer“. Nature . 437 (7057): 356–61 . Bibcode : 2005Natur.437..356S . doi : 10.1038 / nature04160 . PMID 16163346. S2CID 4370363 .
- ^ a b Shors T (2017). Understanding Viruses (3. Aufl.). Jones and Bartlett Publishers. ISBN 978-1-284-02592-7Die
- Suttle CA ( Oktober 2007). „Marine Viren – wichtige Akteure im globalen Ökosystem“. Nature Reviews Microbiology . 5 (10): 801–12 . doi : 10.1038/nrmicro1750 . PMID 17853907. S2CID 4658457 .
- ^ Morrison J (11. Januar 2016). „Lebende Bakterien reiten auf den Luftströmungen der Erde“ . Smithsonian Magazine .
- ^ Robbins J (13. April 2018). „Täglich fallen Billionen von Viren vom Himmel“ . The New York Times . Abgerufen am 14. April 2018 .
- ^ Reche I, D'Orta G, Mladenov N, Winget DM, Suttle CA (April 2018). „Depositionsraten von Viren und Bakterien oberhalb der atmosphärischen Grenzschicht“ . The ISME Journal . 12 (4): 1154–1162 . Bibcode : 2018ISMEJ..12.1154R . doi : 10.1038/ s41396-017-0042-4 . PMC 5864199. PMID 29379178 .
- ^ Mitarbeiter (2014). „Die Biosphäre“ . Aspen Global Change Institute . Archiviert vom Original am 2. September 2010. Abgerufen am 10. November 2014 .
- ^ a b c Choi CQ (17. März 2013). „Mikroben gedeihen im tiefsten Punkt der Erde“ . LiveScience . Abgerufen am 17. März 2013 .
- ^ Glud RN, Wenzhöfer F, Middelboe M, Oguri K, Turnewitsch R, Canfield DE, Kitazato H (17. März 2013). „Hohe Raten des mikrobiellen Kohlenstoffumsatzes in Sedimenten des tiefsten ozeanischen Grabens der Erde“. Nature Geoscience . 6 (4): 284–288 . Bibcode : 2013NatGe...6..284G . doi : 10.1038/ngeo1773 .
- ^ Oskin B (14. März 2013). „Intraterrestrisches Leben: Leben gedeiht auf dem Meeresboden“ . LiveScience . Abgerufen am 17. März 2013 .
- ^ Morelle R (15. Dezember 2014). „Von der tiefsten Meeresbohrung entdeckte Mikroben analysiert“ . BBC News . Abgerufen am 15. Dezember 2014 .
- ^ Takai K, Nakamura K, Toki T, Tsunogai U, Miyazaki M, Miyazaki J, et al. (August 2008). „Zellproliferation bei 122 °C und Produktion von isotopisch schwerem CH4 durch ein hyperthermophiles Methanogen unter Hochdruckkultivierung“ . Proceedings of the National Academy of Sciences of the United States of America . 105 (31): 10949–54 . Bibcode : 2008PNAS..10510949T . doi : 10.1073 / pnas.0712334105 . PMC 2490668. PMID 18664583 .
- ^ Fox D (August 2014). „Seen unter dem Eis: Der geheime Garten der Antarktis“ . Nature . 512 (7514): 244–6 . Bibcode : 2014Natur.512..244F . doi : 10.1038/512244a . PMID 25143097 .
- ^ Mack E (20. August 2014). „Leben unter dem antarktischen Eis bestätigt; folgt als Nächstes der Weltraum?“ . Forbes . Abgerufen am 21. August 2014 .
- ^ Wimmer E, Mueller S, Tumpey TM, Taubenberger JK (Dezember 2009). „Synthetische Viren: Eine neue Chance zum Verständnis und zur Prävention von Viruserkrankungen“ . Nature Biotechnology . 27 (12): 1163–72 . doi : 10.1038/nbt.1593 . PMC 2819212. PMID 20010599 .
- ^ Koonin EV, Senkevich TG, Dolja VV (September 2006). „Die uralte Viruswelt und die Evolution der Zellen“ . Biology Direct . 1 : 29. doi : 10.1186/1745-6150-1-29 . PMC 1594570. PMID 16984643 .
- ^ Topley WW, Wilson GS, Collier LH, Balows A, Sussman M (1998). Mahy BW, Collier L (Hrsg.). Topley and Wilson's Microbiology and Microbial Infections . Band 1 (9. Aufl.). London: Arnold. S. 33–37 . ISBN 978-0-340-66316-5Die
- ^ Iyer LM, Balaji S, Koonin EV, Aravind L (April 2006). „Evolutionäre Genomik nukleozytoplasmatischer großer DNA-Viren“ . Virus Research . 117 (1): 156–84 . doi : 10.1016/j.virusres.2006.01.009 . PMID 16494962 .
- ^ Sanjuán R, Nebot MR, Chirico N, Mansky LM, Belshaw R (Oktober 2010). „Virusmutationsraten“ . Zeitschrift für Virologie . 84 (19): 9733– 48. Bibcode : 2010JVir...84.9733S . doi : 10.1128/JVI.00694-10 . PMC 2937809 . PMID 20660197 .
- ^ Mahy WJ, Van Regenmortel MH (Hrsg.). (2009). Desk Encyclopedia of General Virology . Oxford: Academic Press. S. 28. ISBN 978-0-12-375146-1Die
- ^ a b Canchaya C, Fournous G, Chibani-Chennoufi S, Dillmann ML, Brüssow H (August 2003). „Phagen als Vermittler des horizontalen Gentransfers“. Current Opinion in Microbiology . 6 (4): 417–24 . doi : 10.1016/S1369-5274(03)00086-9 . PMID 12941415 .
- ^ a b Koonin EV, Starokadomskyy P (Oktober 2016). „Sind Viren lebendig? Das Replikatorparadigma wirft ein entscheidendes Licht auf eine alte, aber fehlgeleitete Frage“ . Studies in History and Philosophy of Biological and Biomedical Sciences . 59 : 125–34 . doi : 10.1016/j.shpsc.2016.02.016 . PMC 5406846. PMID 26965225 .
- ^ Rybicki EP (1990). „Die Klassifizierung von Organismen am Rande des Lebens oder Probleme der Virussystematik“. South African Journal of Science . 86 : 182–186 .
- ^ a b Mann NH (Mai 2005). „Das dritte Zeitalter der Phagen“ . PLOS Biology . 3 (5) e182. doi : 10.1371/ journal.pbio.0030182 . PMC 1110918. PMID 15884981 .
- ^ Wommack KE, Colwell RR (März 2000). „Virioplankton: Viren in aquatischen Ökosystemen“ . Microbiology and Molecular Biology Reviews . 64 (1): 69–114 . Bibcode : 2000MMBR...64...69W . doi : 10.1128/MMBR.64.1.69-114.2000 . PMC 98987. PMID 10704475 .
- ^ a b Suttle CA (September 2005). „Viren im Meer“. Nature . 437 (7057): 356–61 . Bibcode : 2005Natur.437..356S . doi : 10.1038 / nature04160 . PMID 16163346. S2CID 4370363 .
- ^ Bergh O, Børsheim KY, Bratbak G, Heldal M (August 1989). „Hohe Virusdichte in aquatischen Umgebungen“. Nature . 340 ( 6233): 467–8 . Bibcode : 1989Natur.340..467B . doi : 10.1038/340467a0 . PMID 2755508. S2CID 4271861 .
- ^ Wigington CH, Sonderegger D, Brussaard CP, Buchan A, Finke JF, Fuhrman JA, et al. (Januar 2016). „Re-examination of the relationship between marine virus and microbial cell abundances“ (PDF) . Nature Microbiology . 1 (3) 15024. doi : 10.1038 / nmicrobiol.2015.24 . PMID 27572161. S2CID 52829633 .
- ^ Krupovic M, Bamford DH (Juli 2007). „Mutmaßliche Prophagen, die mit dem lytischen, schwanzlosen marinen dsDNA-Phagen PM2 verwandt sind , sind in den Genomen aquatischer Bakterien weit verbreitet . “ BMC Genomics . 8 : 236. doi : 10.1186/1471-2164-8-236 . PMC 1950889. PMID 17634101 .
- Xue H, Xu Y, Boucher Y, Polz MF (Januar 2012). „Hohe Frequenz eines neuartigen filamentösen Phagen, VCY φ, in einer Umweltpopulation von Vibrio cholerae“ . Applied and Environmental Microbiology . 78 (1): 28–33 . Bibcode : 2012ApEnM..78...28X . doi : 10.1128/AEM.06297-11 . PMC 3255608. PMID 22020507 .
- Roux S, Krupovic M, Poulet A, Debroas D, Enault F (2012). „Evolution und Diversität der Virusfamilie Microviridae anhand einer Sammlung von 81 neuen vollständigen Genomen, die aus Virom-Reads assembliert wurden“ . PLOS ONE . 7 (7) : e40418. Bibcode : 2012PLoSO...740418R . doi : 10.1371/journal.pone.0040418 . PMC 3394797. PMID 22808158 .
- ^ „Schädliche Algenblüten: Rote Flut: Startseite | CDC HSB“ . www.cdc.gov . Abgerufen am 19. Dezember 2014 .
- ^ Lawrence CM, Menon S, Eilers BJ, Bothner B, Khayat R, Douglas T, Young MJ (Mai 2009). „ Struktur- und Funktionsstudien an Archaeenviren“ . The Journal of Biological Chemistry . 284 (19): 12599–603 . doi : 10.1074/jbc.R800078200 . PMC 2675988. PMID 19158076 .
- ^ Prangishvili D, Forterre P, Garrett RA (November 2006). „Viren der Archaeen: eine einheitliche Sichtweise“. Nature Reviews Microbiology . 4 (11): 837–48 . doi : 10.1038/nrmicro1527 . PMID 17041631. S2CID 9915859 .
- ^ Prangishvili D, Garrett RA (April 2004). „Außergewöhnlich diverse Morphotypen und Genome von hyperthermophilen Crenarchaeen-Viren“ ( PDF) . Biochemical Society Transactions . 32 (Pt 2): 204–208 . doi : 10.1042/BST0320204 . PMID 15046572. S2CID 20018642 .
- ^ Forterre P, Philippe H (Juni 1999). „Der letzte gemeinsame Vorfahre aller Lebewesen (LUCA), einfach oder komplex?“. The Biological Bulletin . 196 (3): 373–5 , Diskussion 375–7. doi : 10.2307/1542973 . JSTOR 1542973. PMID 11536914 .
- ^ Fredrickson JK, Zachara JM, Balkwill DL, Kennedy D, Li SM, Kostandarithes HM et al. (Juli 2004). „Geomikrobiologie hochradioaktiver, mit vadose Sedimenten kontaminierter Böden am Standort Hanford, Washington State“ . Applied and Environmental Microbiology . 70 (7): 4230–4241 . Bibcode : 2004ApEnM..70.4230F . doi : 10.1128 / AEM.70.7.4230-4241.2004 . PMC 444790. PMID 15240306 .
- ^ Woese CR, Kandler O, Wheelis ML (Juni 1990). „Auf dem Weg zu einem natürlichen System von Organismen: Vorschlag für die Domänen Archaea, Bacteria und Eucarya“ . Proceedings of the National Academy of Sciences of the United States of America . 87 (12): 4576–9 . Bibcode : 1990PNAS...87.4576W . doi : 10.1073 / pnas.87.12.4576 . PMC 54159. PMID 2112744 .
- ^ DeLong EF, Pace NR (August 2001). „Umweltdiversität von Bakterien und Archaeen“. Systematic Biology . 50 (4): 470–8 . CiteSeerX 10.1.1.321.8828 . doi : 10.1080/106351501750435040 . PMID 12116647 .
- ^ Brown JR, Doolittle WF (Dezember 1997). „Archaea and the prokaryote-to-eukaryote transition“ . Microbiology and Molecular Biology Reviews . 61 (4): 456–502 . doi : 10.1128/mmbr.61.4.456-502.1997 . PMC 232621. PMID 9409149 .
- ^ Lang BF, Gray MW, Burger G (1999). „Mitochondriale Genom-Evolution und der Ursprung der Eukaryoten“. Annual Review of Genetics . 33 : 351–97 . doi : 10.1146/annurev.genet.33.1.351 . PMID 10690412 .
- ^ McFadden GI (Dezember 1999). „Endosymbiose und Evolution der Pflanzenzelle“. Current Opinion in Plant Biology . 2 (6): 513–9 . Bibcode : 1999COPB....2..513M . doi : 10.1016/S1369-5266(99)00025-4 . PMID 10607659 .
- ^ Keeling PJ (2004). „ Diversität und Evolutionsgeschichte der Plastiden und ihrer Wirte“. American Journal of Botany . 91 (10): 1481–1493 . Bibcode : 2004AmJB...91.1481K . doi : 10.3732/ajb.91.10.1481 . PMID 21652304. S2CID 17522125 .
- ^ „Das größte Bakterium: Wissenschaftler entdeckt neue bakterielle Lebensform vor der afrikanischen Küste“ , Max-Planck-Institut für Marine Mikrobiologie , 8. April 1999, archiviert vom Original am 20. Januar 2010
- ^ Liste der prokaryotischen Namen mit Status in der Nomenklatur - Gattung Thiomargarita
- ^ „Archaea“ . Online Etymology Dictionary . Abgerufen am 17. August 2016 .
- ^ Pace NR (Mai 2006). „Zeit für einen Wandel“ . Nature . 441 (7091): 289. Bibcode : 2006Natur.441..289P . doi : 10.1038 / 441289a . PMID 16710401. S2CID 4431143 .
- ^ Stoeckenius W (Oktober 1981). „Walsbys quadratisches Bakterium: Feinstruktur eines orthogonalen Prokaryoten“ . Journal of Bacteriology . 148 (1): 352–60 . doi : 10.1128/JB.148.1.352-360.1981 . PMC 216199. PMID 7287626 .
- ^ Whittaker RH, Margulis L (April 1978). „Protistenklassifizierung und die Reiche der Organismen“. Bio Systems . 10 ( 1–2 ): 3–18 . Bibcode : 1978BiSys..10....3W . doi : 10.1016/0303-2647(78)90023-0 . PMID 418827 .
- ^ Faure E, Not F, Benoiston AS, Labadie K, Bittner L, Ayata SD (April 2019). „Mixotrophe Protisten zeigen kontrastierende Biogeographien im Weltozean“ . The ISME Journal . 13 (4): 1072–1083 . Bibcode : 2019ISMEJ..13.1072F . doi : 10.1038/s41396-018-0340-5 . PMC 6461780. PMID 30643201 .
- Leles SG, Mitra A, Flynn KJ, Stoecker DK, Hansen PJ, Calbet A et al. (August 2017). „ Ozeanische Protisten mit unterschiedlichen Formen erworbener Phototrophie zeigen kontrastierende Biogeographien und Abundanzen“ . Proceedings Biological Sciences . 284 (1860) 20170664. Bibcode : 2017PBioS.28470664L . doi : 10.1098/ rspb.2017.0664 . PMC 5563798. PMID 28768886 .
- ^ Budd GE, Jensen S (Februar 2017). „Der Ursprung der Tiere und eine ‚Savannen‘-Hypothese für die frühe Evolution der Bilateria“ . Biological Reviews of the Cambridge Philosophical Society . 92 (1): 446–473 . doi : 10.1111/brv.12239 . PMID 26588818 .
- ^ Cavalier-Smith T (Dezember 1993). „ Das Reich der Protozoen und seine 18 Stämme“ . Microbiological Reviews . 57 (4): 953–94 . doi : 10.1128/MMBR.57.4.953-994.1993 . PMC 372943. PMID 8302218 .
- ^ Corliss JO (1992). „Sollte es einen separaten Nomenklaturcode für die Protisten geben?“. Bio Systems . 28 ( 1–3 ): 1–14 . Bibcode : 1992BiSys..28....1C . doi : 10.1016/0303-2647(92)90003-H . PMID 1292654 .
- ^ Slapeta J, Moreira D, López-García P (Oktober 2005). „Das Ausmaß der Protistendiversität: Erkenntnisse aus der molekularen Ökologie von Süßwasser-Eukaryoten“ . Proceedings Biological Sciences . 272 (1576): 2073–81 . doi : 10.1098/rspb.2005.3195 . PMC 1559898. PMID 16191619 .
- ^ Moreira D, López-García P (Januar 2002). „Die molekulare Ökologie mikrobieller Eukaryoten enthüllt eine verborgene Welt“. Trends in Microbiology . 10 (1): 31–38 . doi : 10.1016/S0966-842X(01)02257-0 . PMID 11755083 .
- ^ a b Alverson A (11. Juni 2014). „Die Luft, die Sie atmen? Eine Kieselalge hat sie hergestellt“ . Live Science .
- ^ „Mehr über Kieselalgen“ . Museum für Paläontologie der Universität von Kalifornien . Archiviert vom Original am 4. Oktober 2012. Abgerufen am 27. Juni 2019 .
- ^ Devreotes P (September 1989). „Dictyostelium discoideum: ein Modellsystem für Zell-Zell-Interaktionen in der Entwicklung“. Science . 245 (4922): 1054–8 . Bibcode : 1989Sci...245.1054D . doi : 10.1126/science.2672337 . PMID 2672337 .
- ^ Gooday AJ, Da Silva AA, Pawlowski J (1. Dezember 2011). „Xenophyophoren (Rhizaria, Foraminifera) aus dem Nazaré-Canyon (Portugiesischer Kontinentalrand, Nordostatlantik)“. Deep-Sea Research Part II: Topical Studies in Oceanography . Die Geologie, Geochemie und Biologie submariner Canyons westlich von Portugal. 58 ( 23–24 ): 2401–2419 . Bibcode : 2011DSRII..58.2401G . doi : 10.1016/j.dsr2.2011.04.005 .
- ^ Neil AC, Reece JB, Simon EJ (2004). Essential biology with physiology . Pearson/Benjamin Cummings. S. 291. ISBN 978-0-8053-7503-9Die
- ^ O'Malley MA, Simpson AG, Roger AJ (2012). „Die anderen Eukaryoten im Lichte der evolutionären Protistologie“. Biology & Philosophy . 28 (2): 299–330 . doi : 10.1007/s10539-012-9354-y . S2CID 85406712 .
- Adl SM, Simpson AG, Farmer MA, Andersen RA, Anderson OR, Barta JR et al. (2005). „Die neue höhere Klassifizierung der Eukaryoten mit Schwerpunkt auf der Taxonomie der Protisten“ . The Journal of Eukaryotic Microbiology . 52 (5): 399–451 . doi : 10.1111 / j.1550-7408.2005.00053.x . PMID 16248873. S2CID 8060916 .
- ^ Margulis L, Chapman MJ (19. März 2009). Königreiche und Domänen: Ein illustrierter Leitfaden zu den Stämmen des Lebens auf der Erde . Academic Press. ISBN 978-0-08-092014-6Die
- ^ Fang J (April 2010). „Tiere gedeihen ohne Sauerstoff am Meeresboden“ . Nature . 464 (7290): 825. Bibcode : 2010Natur.464..825F . doi : 10.1038/464825b . PMID 20376121 .
- ^ „Ein salzhaltiges Tiefseebecken könnte die Heimat von Tieren sein, die ohne Sauerstoff gedeihen . “ Science News . 23. September 2013. Archiviert vom Original am 26. September 2012. Abgerufen am 19. Februar 2019 .
- ^ Jónasdóttir, Sigrún Huld; Visser, André W.; Richardson, Katherine; Heath, Michael R. (29. September 2015). „ Die saisonale Lipidpumpe von Copepoden fördert die Kohlenstoffbindung im tiefen Nordatlantik“ . Proceedings of the National Academy of Sciences . 112 (39): 12122–12126 . doi : 10.1073/pnas.1512110112 . ISSN 0027-8424 . PMC 4593097. PMID 26338976 .
- ^ Pinti, Jérôme; Jónasdóttir, Sigrún H.; Record, Nicholas R.; Visser, André W. (7. März 2023). „Der globale Beitrag saisonal wandernder Ruderfußkrebse zur biologischen Kohlenstoffpumpe“ . Limnology and Oceanography . 68 (5): 1147–1160 . Bibcode : 2023LimOc..68.1147P . doi : 10.1002/lno.12335 . ISSN 0024-3590 . S2CID 257422956 .
- ^ Pepato, Almir R.; Vidigal, Teofânia HDA; Klimov, Pavel B. (2018). „ Molekulare Phylogenie mariner Milben (Acariformes: Halacaridae), der ältesten Radiation rezenter sekundär mariner Tiere“ . Molecular Phylogenetics and Evolution . 129 : 182–188 . Bibcode : 2018MolPE.129..182P . doi : 10.1016 / j.ympev.2018.08.012 . PMID 30172010. S2CID 52145427 .
- ^ Hyde KD, Jones EG, Leaño E, Pointing SB, Poonyth AD, Vrijmoed LL (1998). „Rolle von Pilzen in Meeresökosystemen“. Biodiversität und Naturschutz . 7 (9): 1147–1161 . Bibcode : 1998BiCon...7.1147H . doi : 10.1023/A:1008823515157 . S2CID 22264931 .
- ^ Kirk PM, Cannon PF, Minter DW, Stalpers J (2008). Dictionary of the Fungi (10. Aufl.). CABI.
- ^ Hyde KD, Greenwood R, Jones EG (1989). „Sporenanheftung bei marinen Pilzen“. Botanica Marina . 32 (3): 205–218 . doi : 10.1515/botm.1989.32.3.205 . S2CID 84879817 .
- ^ Le Calvez T, Burgaud G, Mahé S, Barbier G, Vandenkoornhuyse P (Oktober 2009). „Pilzdiversität in hydrothermalen Tiefseeökosystemen“ . Applied and Environmental Microbiology . 75 (20): 6415–21 . Bibcode : 2009ApEnM..75.6415L . doi : 10.1128/AEM.00653-09 . PMC 2765129. PMID 19633124 .
- ^ San-Martin A, Orejarena S, Gallardo C, Silva M, Becerra J, Reinoso RO, Chamy MC, Vergara K, Rovirosa J (2008). „Steroide aus dem marinen Pilz Geotrichum sp . “ Journal of the Chilean Chemical Society . 53 (1): 1377–1378 . doi : 10.4067/S0717-97072008000100011 . hdl : 10533/140036 .
- ^ Jones EB, Hyde KD, Pang KL (Hrsg.) (2014). Süßwasserpilze und pilzähnliche Organismen . Berlin/Boston: De Gruyter. ISBN 978-3-11-033348-0Die
- ^ Jones EB, Pang KL (Hrsg.). (2012). Marine Pilze und pilzähnliche Organismen . Marine und Süßwasserbotanik. Berlin, Boston: De Gruyter (erschienen im August 2012). doi : 10.1515/9783110264067 . ISBN 978-3-11-026406-7Abgerufen am 3. September 2015 .
- ^ Wang X, Singh P, Gao Z, Zhang X, Johnson ZI, Wang G (2014). „Verbreitung und Diversität planktonischer Pilze im Westpazifischen Warmwasserbecken“ . PLOS ONE . 9 (7): e101523. Bibcode : 2014PLoSO...9j1523W . doi : 10.1371/ journal.pone.0101523.s001 . PMC 4081592. PMID 24992154 .
- ^ Wang G, Wang X, Liu X, Li Q (2012). „Diversität und biogeochemische Funktion planktonischer Pilze im Ozean“ . In: Raghukumar C (Hrsg.). Biologie mariner Pilze . Fortschritte in der Molekular- und Subzellulären Biologie. Band 53. Berlin, Heidelberg: Springer-Verlag. S. 71–88 . doi : 10.1007/978-3-642-23342-5 . ISBN 978-3-642-23341-8S2CID 39378040. Abgerufen am 3. September 2015 .
- ^ Damare S, Raghukumar C (Juli 2008). „Pilze und Makroaggregate in Tiefseesedimenten“. Microbial Ecology . 56 (1): 168–77 . Bibcode : 2008MicEc..56..168D . doi : 10.1007/s00248-007-9334- y . PMID 17994287. S2CID 21288251 .
- Kubanek J, Jensen PR, Keifer PA, Sullards MC, Collins DO, Fenical W (Juni 2003). „Algenresistenz gegen mikrobiellen Befall: Eine gezielte chemische Abwehr gegen marine Pilze“ . Proceedings of the National Academy of Sciences of the United States of America . 100 (12): 6916–21 . Bibcode : 2003PNAS..100.6916K . doi : 10.1073 / pnas.1131855100 . PMC 165804. PMID 12756301 .
- ^ a b Gao Z, Johnson ZI, Wang G (Januar 2010). „Molekulare Charakterisierung der räumlichen Diversität und neuartiger Linien von Mykoplankton in hawaiianischen Küstengewässern“ . The ISME Journal . 4 (1): 111–20 . Bibcode : 2010ISMEJ...4..111G . doi : 10.1038/ismej.2009.87 . PMID 19641535 .
- Panzer K, Yilmaz P, Weiß M, Reich L, Richter M, Wiese J, et al. (30. Juli 2015). „ Identifizierung habitatspezifischer Biome aquatischer Pilzgemeinschaften mithilfe eines umfassenden, nahezu vollständigen 18S-rRNA-Datensatzes, angereichert mit Kontextdaten“ . PLOS ONE . 10 (7) e0134377. Bibcode : 2015PLoSO..1034377P . doi : 10.1371/ journal.pone.0134377 . PMC 4520555. PMID 26226014 .
- ^ Gutierrez MH, Pantoja S, Quinones RA, Gonzalez RR (2010). „Primer registro de hongos filamentosos en el ecosistema de Surgencia costero frente a Chile central“ [Erste Aufzeichnung von Fadenpilzen im Küstenauftriebsökosystem vor Zentralchile]. Gayana (auf Spanisch). 74 (1): 66–73 .
- ^ a b Sridhar KR (2009). „10. Wasserpilze – Sind sie planktonisch?“. Planktondynamik indischer Gewässer . Jaipur, Indien: Pratiksha Publications. S. 133–148 .
- ^ „Arten höherer Meerespilze“ . Universität von Mississippi. Archiviert vom Original am 22. April 2013. Abgerufen am 5. Februar 2012 .
- ^ Hawksworth DL (2000). „Süßwasser- und marine Flechten bildende Pilze“ (PDF) . Fungal Diversity . 5 : 1–7 .
- ^ „Flechten“ . National Park Service, US-Innenministerium, Regierung der Vereinigten Staaten. 22. Mai 2016. Abgerufen am 4. April 2018 .
- ^ a b „Das Erdlebensnetz, Wachstum und Entwicklung bei Flechten“ . earthlife.net. 14. Februar 2020.
- ^ Silliman BR, Newell SY (Dezember 2003). „Pilzzucht in einer Schnecke“ . Proceedings of the National Academy of Sciences of the United States of America . 100 (26): 15643–8 . Bibcode : 2003PNAS..10015643S . doi : 10.1073 / pnas.2535227100 . PMC 307621. PMID 14657360 .
- ^ Yuan X, Xiao S, Taylor TN (Mai 2005). „Flechtenartige Symbiose vor 600 Millionen Jahren“. Science . 308 (5724): 1017–20 . Bibcode : 2005Sci...308.1017Y . doi : 10.1126 / science.1111347 . PMID 15890881. S2CID 27083645 .
- ^ Jones EB, Pang KL (31. August 2012). Marine Pilze und pilzähnliche Organismen . Walter de Gruyter. ISBN 978-3-11-026406-7Die
- ^ Davidson MW (26. Mai 2005). „Tierische Zellstruktur“ . Molekulare Expressionen . Tallahassee, Fla.: Florida State University . Abgerufen am 3. September 2008 .
- ^ Vogel G (20. September 2018). „Dieses Fossil ist eines der frühesten Tiere der Welt, wie die über eine halbe Milliarde Jahre erhaltenen Fettmoleküle belegen . “ Science . AAAS . Abgerufen am 21. September 2018 .
- ^ Bobrovskiy I, Hope JM, Ivantsov A, Nettersheim BJ, Hallmann C, Brocks JJ (September 2018). „Uralte Steroide belegen, dass das Ediacara-Fossil Dickinsonia zu den frühesten Tieren zählt“ . Science . 361 (6408): 1246–1249 . Bibcode : 2018Sci...361.1246B . doi : 10.1126/science.aat7228 . hdl : 1885/230014 . PMID 30237355 .
- ^ Retallack GJ (2007). „Wachstum, Zerfall und Verdichtung durch Einbettung von Dickinsonia, einem ikonischen Ediacarium-Fossil“ (PDF) . Alcheringa: An Australasian Journal of Palaeontology . 31 (3): 215–240 . Bibcode : 2007Alch...31..215R . doi : 10.1080/03115510701484705 . S2CID 17181699 .
- ^ Sperling EA, Vinther J (2010). „Eine Placozoen-Affinität für Dickinsonia und die Evolution der Ernährungsweisen von Metazoen im späten Proterozoikum“. Evolution & Development . 12 (2): 201–9 . doi : 10.1111/j.1525-142X.2010.00404.x . PMID 20433459. S2CID 38559058 .
- ^ Gold DA, Runnegar B, Gehling JG, Jacobs DK (2015). „Die Rekonstruktion des Vorfahrenzustands der Ontogenese unterstützt eine bilaterale Verwandtschaft für Dickinsonia“. Evolution & Development . 17 (6): 315–24 . Bibcode : 2015EvDev..17..315G . doi : 10.1111/ede.12168 . PMID 26492825. S2CID 26099557 .
- ^ Chen JY, Oliveri P, Gao F, Dornbos SQ, Li CW, Bottjer DJ, Davidson EH (August 2002). „Präkambrisches Tierleben: Wahrscheinliche Entwicklungsstadien und adulte Nesseltierformen aus Südwestchina“ (PDF) . Developmental Biology . 248 (1): 182–96 . doi : 10.1006/dbio.2002.0714 . PMID 12142030. Archiviert vom Original (PDF) am 26. Mai 2013. Abgerufen am 4. Februar 2015 .
- ^ Grazhdankin D (Juni 2004). „Verbreitungsmuster in den Ediacaran-Biotas: Fazies versus Biogeographie und Evolution“. Paläobiologie . 30 (2): 203–221 . Bibcode : 2004Pbio...30..203G . doi : 10.1666/0094-8373(2004)030<0203:PODITE>2.0.CO;2 . ISSN 0094-8373 . S2CID 129376371 .
- Seilacher A (August 1992). „Vendobionta und Psammocorallia: Verlorene Konstruktionen der präkambrischen Evolution“ . Journal of the Geological Society . 149 (4): 607–613 . Bibcode : 1992JGSoc.149..607S . doi : 10.1144/gsjgs.149.4.0607 . ISSN 0016-7649 . S2CID 128681462. Abgerufen am 4. Februar 2015 .
- ^ Martin MW, Grazhdankin DV, Bowring SA, Evans DA, Fedonkin MA, Kirschvink JL (Mai 2000). „Alter neoproterozoischer Bilatarien-Körper- und Spurenfossilien aus dem Weißen Meer, Russland: Implikationen für die Metazoen-Evolution“. Science . 288 ( 5467): 841–5 . Bibcode : 2000Sci...288..841M . doi : 10.1126/science.288.5467.841 . PMID 10797002. S2CID 1019572 .
- ^ Fedonkin MA, Waggoner BM (28. August 1997). „Das spätpräkambrische Fossil Kimberella ist ein molluskenartiger Bilateria-Organismus“ . Nature . 388 (6645): 868–871 . Bibcode : 1997Natur.388..868F . doi : 10.1038/42242 . ISSN 0028-0836 . S2CID 4395089 .
- ^ Mooi R, David B (Dezember 1998). „Evolution innerhalb eines bizarren Stammes: Homologien der ersten Stachelhäuter“ . American Zoologist . 38 (6): 965–974 . doi : 10.1093/icb/38.6.965 . ISSN 1540-7063 .
- ^ McMenamin MA (September 2003).Spriggina ist ein trilobitoides Ecdysozoon . Geoscience Horizons Seattle 2003. Abstracts with Programs. Band 35. Boulder, Colorado: Geological Society of America. S. 105. OCLC 249088612. Archiviert vom Original am 12. April 2016. Abgerufen am 24. November 2007 .Vortrag Nr. 40-2 auf der Jahrestagung der Geological Society of America in Seattle (2.–5. November 2003) am 2. November 2003 im Washington State Convention Center .
- Lin JP, Gon III SM, Gehling JG, Babcock LE, Zhao YL, Zhang XL et al. (2006). „Ein Parvancorina -ähnlicher Arthropode aus dem Kambrium Südchinas“. Historical Biology: An International Journal of Paleobiology . 18 (1): 33–45 . Bibcode : 2006HBio...18...33L . doi : 10.1080/08912960500508689 . ISSN 1029-2381 . S2CID 85821717 .
- ^ Butterfield NJ (Dezember 2006). „Hooking some stem-group "worms": fossil lophotrochozoans in the Burgess Shale“. BioEssays . 28 ( 12): 1161–6 . Bibcode : 2006BiEss..28.1161B . doi : 10.1002/bies.20507 . PMID 17120226. S2CID 29130876 .
- ^ a b Bengtson S (November 2004). "Frühe Skelettfossilien". Paleontological Society Papers . 10 : 67– 78. doi : 10.1017/S1089332600002345 .
- ^ Valentine JW (2004). On the Origin of Phyla . Chicago: University of Chicago Press. S. 7. ISBN 978-0-226-84548-7
Die Klassifizierung von Organismen in hierarchischen Systemen war bereits im 17. und 18. Jahrhundert üblich. Üblicherweise wurden Organismen nach ihren morphologischen Ähnlichkeiten gruppiert, wie sie von den damaligen Forschern wahrgenommen wurden, und diese Gruppen wurden dann wiederum nach ihren Ähnlichkeiten weiter unterteilt, um eine Hierarchie zu bilden
. - ^ a b Valentine JW (18. Juni 2004). Über den Ursprung der Stämme . University of Chicago Press. ISBN 978-0-226-84548-7Die
- ^ „WoRMS – Weltregister der Meeresarten“ . www.marinespecies.org .
- ^ Novak BJ, Fraser D , Maloney TH (Februar 2020). „Transforming Ocean Conservation: Applying the Genetic Rescue Toolkit“ . Genes . 11 (2): 209. doi : 10.3390/genes11020209 . PMC 7074136. PMID 32085502 .
- ^ Erwin D, Valentine J, Jablonski D (1997). „Neue Fossilienfunde und Erkenntnisse zur Tierentwicklung eröffnen neue Perspektiven auf das Rätsel der Tiervermehrung im frühen Kambrium“ . American Scientist ( März –April). Archiviert vom Original am 17. September 2016. Abgerufen am 5. September 2016 .
- Budd GE, Jensen S (Mai 2000). „Eine kritische Neubewertung des Fossilienbestands der Bilateria-Stämme“. Biological Reviews of the Cambridge Philosophical Society . 75 (2): 253–95 . Bibcode : 2000BioRv..75..253B . doi : 10.1111 / j.1469-185X.1999.tb00046.x . PMID 10881389. S2CID 39772232 .
- ^ Gould SJ (1989). Wunderbares Leben: Der Burgess-Schiefer und das Wesen der Geschichte (1. Aufl.). New York: WW Norton. ISBN 978-0-393-02705-1Die
- ^ Budd GE (Februar 2003). „Der kambrische Fossilienbestand und der Ursprung der Stämme“ . Integrative and Comparative Biology . 43 (1): 157–65 . doi : 10.1093/icb/43.1.157 . PMID 21680420 .
- ^ Budd GE (März 1996). „Die Morphologie von Opabinia regalis und die Rekonstruktion der Arthropoden-Stammgruppe“. Lethaia . 29 (1): 1–14 . Bibcode : 1996Letha..29....1B . doi : 10.1111/j.1502-3931.1996.tb01831.x . ISSN 0024-1164 .
- ^ Marshall CR (Mai 2006). „Erklärung der kambrischen ‚Explosion‘ der Tiere“. Annual Review of Earth and Planetary Sciences . 34 : 355–384 . Bibcode : 2006AREPS..34..355M . doi : 10.1146/annurev.earth.33.031504.103001 . ISSN 1545-4495 . S2CID 85623607 .
- ^ King N, Rokas A (Oktober 2017). „Die Unsicherheit bei der Rekonstruktion der frühen Tierentwicklung akzeptieren“ . Current Biology . 27 (19): R1081– R1088 . Bibcode : 2017CBio...27R1081K . doi : 10.1016/j.cub.2017.08.054 . PMC 5679448. PMID 29017048 .
- ^ Feuda R, Dohrmann M, Pett W, Philippe H, Rota-Stabelli O, Lartillot N, et al. (Dezember 2017). „Verbesserte Modellierung der Zusammensetzungsheterogenität stützt die Rolle der Schwämme als Schwestergruppe aller anderen Tiere“ . Current Biology . 27 (24): 3864–3870.e4. Bibcode : 2017CBio...27E3864F . doi : 10.1016/j.cub.2017.11.008 . hdl : 11572/302898 . PMID 29199080 .
- ^ Nielsen C (Juli 2019). „Frühe Tierentwicklung: Die Sicht eines Morphologen“ . Royal Society Open Science . 6 (7) 190638. Bibcode : 2019RSOS....690638N . doi : 10.1098/rsos.190638 . PMC 6689584. PMID 31417759 .
- ^ „Porifera (n.)“ . Online Etymology Dictionary . Abgerufen am 18. August 2016 .
- Petralia RS , Mattson MP, Yao PJ ( Juli 2014). „Altern und Langlebigkeit bei den einfachsten Tieren und das Streben nach Unsterblichkeit“ . Ageing Research Reviews . 16 : 66–82 . doi : 10.1016/j.arr.2014.05.003 . PMC 4133289. PMID 24910306 .
- ^ Jochum KP, Wang X, Vennemann TW, Sinha B, Müller WE (2012). „Der Kieselschwamm Monorhaphis chuni : Ein potenzielles Paläoklimaarchiv in urzeitlichen Tieren“. Chemical Geology . 300 : 143–151 . Bibcode : 2012ChGeo.300..143J . doi : 10.1016/j.chemgeo.2012.01.009 .
- ^ Vacelet J, Duport E (November 2004). „Beutefang und Verdauung beim fleischfressenden Schwamm Asbestopluma hypogea (Porifera: Demospongiae)“. Zoomorphology . 123 (4): 179–90 . doi : 10.1007/s00435-004-0100-0 . S2CID 24484610 .
- ^ " Spongia Linnaeus , 1759" . World Register of Marine Species . Abgerufen am 18. Juli 2012 .
- ^ Rowland SM, Stephens T (2001). „Archaeocyatha: Eine Geschichte der phylogenetischen Interpretation“. Journal of Paleontology . 75 (6): 1065–1078 . doi : 10.1666/0022-3360(2001) 075 <1065:AAHOPI>2.0.CO;2 . JSTOR 1307076. S2CID 86211946 .
- ^ Sperling EA, Pisani D, Peterson KJ (1. Januar 2007). „Poriferenparaphylie und ihre Implikationen für die präkambrische Paläobiologie“ (PDF) . Geological Society, London, Special Publications . 286 (1): 355–368 . Bibcode : 2007GSLSP.286..355S . doi : 10.1144/SP286.25 . S2CID 34175521. Archiviert vom Original (PDF) am 9. Mai 2009. Abgerufen am 22. August 2012 .
- ^ Ruppert EE, Fox RS, Barnes RD (2004). Invertebrate Zoology (7. Aufl.). Brooks/Cole. S. 182–195 . ISBN 978-0-03-025982-1Die
- ^ Mills CE. „Ctenophoren – einige Anmerkungen eines Experten“ . Abgerufen am 5. Februar 2009 .
- ^ a b Brusca RC, Brusca GJ (2003). Wirbellose Tiere (2. Aufl.). Sinauer Associates. ISBN 978-0-87893-097-5Die
- ^ Martindale MQ, Finnerty JR, Henry JQ (September 2002). „Die Radiata und die evolutionären Ursprünge des Bilateria-Körperbauplans“. Molecular Phylogenetics and Evolution . 24 (3): 358–65 . Bibcode : 2002MolPE..24..358M . doi : 10.1016/s1055-7903(02)00208-7 . PMID 12220977 .
- ^ Placozoa in den Medical Subject Headings (MeSH)der US National Library of Medicine
- ^ Wehner R, Gehring W (Juni 2007). Zoologie (auf Deutsch) (24. Aufl.). Stuttgart: Thieme. P. 696.
- ^ Schulze FE (1883). „ Trichoplax adhaerens ng, ns“. Zoologischer Anzeiger . Bd. 6. Amsterdam und Jena: Elsevier. P. 92.
- ^ Eitel M, Francis WR, Osigus HJ, Krebs S, Vargas S, Blum H, et al. (13. Oktober 2017). „Ein taxogenomischer Ansatz entdeckt eine neue Gattung im Stamm der Placozoa“. bioRxiv 10.1101/202119 .
- ^ Osigus HJ, Rolfes S, Herzog R, Kamm K, Schierwater B (März 2019). „Polyplacotoma mediterranea ist eine neue verzweigte Placozoenart“ . Current Biology . 29 (5): R148– R149. Bibcode : 2019CBio...29.R148O . doi : 10.1016/j.cub.2019.01.068 . PMID 30836080 .
- ^ „Trichoplax adhaerens“ . WoRMS . 2009.
- ^ Smith CL, Varoqueaux F, Kittelmann M, Azzam RN, Cooper B, Winters CA, et al. (Juli 2014). „Neue Zelltypen, neurosekretorische Zellen und Körperbauplan des früh abzweigenden Metazoons Trichoplax adhaerens“ . Current Biology . 24 (14): 1565–1572 . Bibcode : 2014CBio...24.1565S . doi : 10.1016 / j.cub.2014.05.046 . PMC 4128346. PMID 24954051 .
- ^ Barnes RD (1982). Invertebrate Zoology . Philadelphia: Holt-Saunders International. S. 84–85 . ISBN 978-0-03-056747-6Die
- ^ Zhang ZQ (2011). „Tierische Biodiversität: Eine Einführung in die höhere Klassifizierung und den taxonomischen Reichtum“ (PDF) . Zootaxa . 3148 : 7–12 . Bibcode : 2011Zoot.31488.1.3Z . doi : 10.11646/zootaxa.3148.1.3 .
- ^ " Nematostella vectensis v1.0" . Genome Portal . University of California . Abgerufen am 19. Januar 2014 .
- ^ " Nematostella " . Nematostella.org. Archiviert vom Original am 8. Mai 2006. Abgerufen am 18. Januar 2014 .
- ^ a b Genikhovich G, Technau U (September 2009). „Die Sternchen-Seeanemone Nematostella vectensis: ein Anthozoen-Modellorganismus für Studien in vergleichender Genomik und funktioneller evolutionärer Entwicklungsbiologie“. Cold Spring Harbor Protocols . 2009 (9) pdb.emo129. doi : 10.1101/pdb.emo129 . PMID 20147257 .
- ^ „Woher kommt unser Kopf? Hirnlose Seeanemone wirft neues Licht auf den evolutionären Ursprung des Kopfes“ . Science Daily . 12. Februar 2013. Abgerufen am 18. Januar 2014 .
- ^ Sinigaglia C, Busengdal H, Leclère L, Technau U, Rentzsch F (2013). „Das bilaterale Kopfmusterungsgen six3/6 steuert die Entwicklung der aboralen Domäne bei einem Nesseltier . “ PLOS-Biologie . 11 (2) e1001488. doi : 10.1371/journal.pbio.1001488 . PMC 3586664 . PMID 23483856 .
- ^ „Blaue Knöpfe in Florida“ . BeachHunter.net .
- ^ Karleskint G, Turner R, Small J (2012). Einführung in die Meeresbiologie (4. Aufl.). Cengage Learning. S. 445. ISBN 978-1-133-36446-7Die
- ^ Bavestrello G, Sommer C, Sarà M (1992). „Bidirektionale Umwandlung in Turritopsis nutricula (Hydrozoa)“. Scientia Marina . 56 ( 2– 3): 137– 140.
- ^ Piraino S, Boero F, Aeschbach B, Schmid V (1996). „Umkehrung des Lebenszyklus: Medusen verwandeln sich in Polypen und Zelltransdifferenzierung bei Turritopsis nutricula (Cnidaria, Hydrozoa)“. Biological Bulletin . 190 (3): 302–312 . Bibcode : 1996BiolB.190..302P . doi : 10.2307/ 1543022 . JSTOR 1543022. PMID 29227703. S2CID 3956265 .
- ^ Fenner PJ, Williamson JA (1996). „Weltweite Todesfälle und schwere Vergiftungen durch Quallenstiche“. The Medical Journal of Australia . 165 ( 11–12 ): 658–661 . doi : 10.5694/j.1326-5377.1996.tb138679.x . PMID 8985452. S2CID 45032896 .
- ^ a b c Cannon JT, Vellutini BC, Smith J, Ronquist F, Jondelius U, Hejnol A (Februar 2016). „ Xenacoelomorpha ist die Schwestergruppe der Nephrozoa“ . Nature . 530 (7588): 89–93 . Bibcode : 2016Natur.530...89C . doi : 10.1038/nature16520 . PMID 26842059. S2CID 205247296 .
- ^ a b Minelli A (2009). Perspectives in Animal Phylogeny and Evolution . Oxford University Press. S. 53. ISBN 978-0-19-856620-5Die
- Brusca RC (2016). „Einführung in die Bilateria und den Stamm der Xenacoelomorpha | Triploblastie und bilaterale Symmetrie eröffnen neue Wege für die Radiation der Tiere“ ( PDF) . Invertebrates . Sinauer Associates. S. 345–372 . ISBN 978-1-60535-375-3Die
- ^ Finnerty JR (November 2005). „Hat der interne Transport, anstatt der gerichteten Fortbewegung, die Evolution der bilateralen Symmetrie bei Tieren begünstigt?“ (PDF) . BioEssays . 27 (11): 1174–80 . doi : 10.1002/bies.20299 . PMID 16237677. Archiviert vom Original (PDF) am 10. August 2014. Abgerufen am 27. August 2019 .
- ^ Quillin KJ (Mai 1998). „Ontogenetische Skalierung hydrostatischer Skelette: Geometrische, statische und dynamische Spannungsskalierung des Regenwurms Lumbricus terrestris“ . The Journal of Experimental Biology . 201 (12): 1871–83 . Bibcode : 1998JExpB.201.1871Q . doi : 10.1242/jeb.201.12.1871 . PMID 9600869 .
- ^ Specktor B (26. März 2020). „Dieser urzeitliche Wurm könnte der Vorfahre aller Tiere sein . “ Live ScienceDie
- ^ a b Wade N (30. Januar 2017). „Dieser prähistorische menschliche Vorfahre war nur am Reden“ . The New York Times . Abgerufen am 31. Januar 2017 .
- ^ a b Han J, Morris SC, Ou Q, Shu D, Huang H (Februar 2017). „Meiofaunale Deuterostome aus dem basalen Kambrium von Shaanxi (China)“. Nature . 542 ( 7640): 228–231 . Bibcode : 2017Natur.542..228H . doi : 10.1038/nature21072 . PMID 28135722. S2CID 353780 .
- ^ „Cornwall – Natur – Superstar-Wurm“ . BBC .
- ^ Mark Carwardine (1995) Das Guinness-Buch der Tierrekorde . Guinness Publishing. S. 232.
- ^ „Die hartnäckigen Parasiten“ . Time . 8. April 1957. Archiviert vom Original am 27. Juni 2008.
- ^ Hargis W, Hrsg. (1985). Parasitologie und Pathologie mariner Organismen des Weltozeans (Technischer Bericht). Nationale Ozean- und Atmosphärenbehörde .
- ^ „Klassifizierung tierischer Parasiten“ . Archiviert vom Original am 14. September 2006.
- ^ Garcia LS (Oktober 1999). „Klassifizierung menschlicher Parasiten, Vektoren und ähnlicher Organismen“ . Clinical Infectious Diseases . 29 (4): 734–6 . doi : 10.1086/520425 . PMID 10589879 .
- ^ Hodda M (2011). „Phylum Nematoda Cobb, 1932. In: Zhang, Z.-Q. Animal biodiversity: An outline of higher-level classification and survey of taxonomic richness“. Zootaxa . 3148 : 63–95 . doi : 10.11646/zootaxa.3148.1.11 .
- ^ Zhang Z (2013). „Tierische Biodiversität: Ein Update der Klassifizierung und Diversität im Jahr 2013. In: Zhang, Z.-Q. (Hrsg.) Tierische Biodiversität: Ein Überblick über die übergeordnete Klassifizierung und eine Übersicht über den taxonomischen Reichtum (Nachträge 2013)“ . Zootaxa . 3703 (1): 5–11 . doi : 10.11646/zootaxa.3703.1.3 . S2CID 85252974 .
- ^ Lambshead PJ (1993). „Neuere Entwicklungen in der Forschung zur marinen benthischen Biodiversität“. Oceanis . 19 (6): 5–24 .
- ^ Borgonie G, García-Moyano A, Litthauer D, Bert W, Bester A, van Heerden E, et al. (Juni 2011). „Nematoden aus dem tiefen Erduntergrund Südafrikas“ . Natur . 474 (7349): 79– 82. Bibcode : 2011Natur.474...79B . doi : 10.1038/nature09974 . hdl : 1854/LU-1269676 . PMID 21637257 . S2CID 4399763 .
- ^ Danovaro R, Gambi C, Dell'Anno A, Corinaldesi C, Fraschetti S, Vanreusel A, et al. (Januar 2008). „ Exponentieller Rückgang der Tiefseeökosystemfunktionen in Verbindung mit dem Verlust der benthischen Biodiversität“ . Current Biology . 18 (1): 1–8 . Bibcode : 2008CBio...18....1D . doi : 10.1016/j.cub.2007.11.056 . PMID 18164201. S2CID 15272791 .
- „Verlust von Tiefseearten könnte zum Zusammenbruch der Ozeane führen, legt eine Studie nahe . “ EurekAlert! (Pressemitteilung). 27. Dezember 2007. Archiviert vom Original am 28. April 2021. Abgerufen am 10. August 2016 .
- ^ Platt HM (1994). „Vorwort“. In: Lorenzen S, Lorenzen SA (Hrsg.). Die phylogenetische Systematik freilebender Nematoden . London: The Ray Society. ISBN 978-0-903874-22-9Die
- ^ Barnes RS, Calow P, Olive PJ (2001). Die Wirbellosen, eine Synthese (3. Aufl.). Großbritannien: Blackwell Science.
- ^ „Tyrischer Purpur“ . Green Lion . 28. Februar 2014. Archiviert vom Original am 28. Februar 2014.
- ^ Chapman AD (2009). Anzahl der lebenden Arten in Australien und der Welt (2. Aufl.). Canberra: Australian Biological Resources Study. ISBN 978-0-642-56860-1Die
- ^ Hancock R (2008). „Forschung an Mollusken erkennen“ . Australian Museum. Archiviert vom Original am 30. Mai 2009. Abgerufen am 9. März 2009 .
- ^ Ponder WF, Lindberg DR, Hrsg. (2008). Phylogenie und Evolution der Mollusken . Berkeley: University of California Press. S. 481. ISBN 978-0-520-25092-5Die
{{cite book}}: CS1 Wartung: Herausgeberstandort ( Link ) - ^ Munro D, Blier PU (Oktober 2012). „Die extreme Langlebigkeit von Arctica islandica ist mit einer erhöhten Peroxidationsresistenz in den Mitochondrienmembranen verbunden . “ Aging Cell . 11 (5): 845–55 . doi : 10.1111/j.1474-9726.2012.00847.x . PMID 22708840. S2CID 205634828 .
- ^ „Willkommen bei CephBase“ . CephBase . Archiviert vom Original am 12. Januar 2016. Abgerufen am 29. Januar 2016 .
- ^ Wilbur KM, Clarke, MR, Trueman, ER, Hrsg. (1985), The Mollusca , Bd. 12. Paläontologie und Neontologie der Cephalopoden, New York: Academic Press, ISBN 0-12-728702-7
- ^ „Gibt es Süßwasser-Kopffüßer?“ . Australian Broadcasting Corporation . 16. Januar 2013.
- ^ Callaway E (2. Juni 2008). „Einfältiger Nautilus zeigt plötzlich ein Gedächtnis“ . New Scientist . Abgerufen am 7. März 2012 .
- ^ Phillips K (15. Juni 2008). „Lebende Fossilien – Erinnerungen“. Journal of Experimental Biology . 211 (12): iii. Bibcode : 2008JExpB.211Y...3P . doi : 10.1242/jeb.020370 . S2CID 84279320 .
- ^ Crook R, Basil J (2008). „Eine zweiphasige Gedächtniskurve beim Perlboot, Nautilus pompilius L. (Cephalopoda: Nautiloidea)“. Journal of Experimental Biology . 211 (12): 1992–1998 . Bibcode : 2008JExpB.211.1992C . doi : 10.1242 / jeb.018531 . PMID 18515730. S2CID 6305526 .
- ^ a b Ruppert RE, Fox RS, Barnes RD (2004). Invertebrate Zoology (7. Aufl.). Cengage Learning. ISBN 978-81-315-0104-7Die
- ^ Hayward PJ (1996). Handbuch der Meeresfauna Nordwesteuropas . Oxford University Press. ISBN 978-0-19-854055-7Die
- ^ Wilson HM, Anderson LI (Januar 2004). „Morphologie und Taxonomie paläozoischer Tausendfüßer (Diplopoda: Chilognatha: Archipolypoda) aus Schottland“ . Journal of Paleontology . 78 (1): 169–184 . Bibcode : 2004JPal...78..169W . doi : 10.1666/0022-3360(2004)078<0169:MATOPM>2.0.CO;2 . S2CID 131201588 .
- ^ Suarez SE, Brookfield ME, Catlos EJ, Stöckli DF (2017). „Eine U-Pb-Zirkon-Altersbestimmung für das älteste bekannte luftatmende Landtier“ . PLOS ONE . 12 (6) e0179262. Bibcode : 2017PLoSO..1279262S . doi : 10.1371/journal.pone.0179262 . PMC 5489152. PMID 28658320 .
- Campbell LI, Rota-Stabelli O, Edgecombe GD, Marchioro T, Longhorn SJ, Telford MJ et al. (September 2011). „MicroRNAs and phylogennomics resolve the relationships of Tardigrada and suggest that velvetworms are the sister group of Arthropoda“ . Proceedings of the National Academy of Sciences of the United States of America . 108 (38): 15920–4 . Bibcode : 2011PNAS..10815920C . doi : 10.1073/pnas.1105499108 . PMC 3179045. PMID 21896763 .
- ^ Smith FW, Goldstein B (Mai 2017). „Segmentation in Tardigrada and diversification of segmental patterns in Panarthropoda“. Arthropod Structure & Development . 46 (3): 328–340 . Bibcode : 2017ArtSD..46..328S . doi : 10.1016/j.asd.2016.10.005 . PMID 27725256 .
- ^ „David Attenboroughs erstes Leben“ . Archiviert vom Original am 26. Januar 2011. Abgerufen am 10. März 2011 .
- ^ Braddy SJ, Poschmann M, Tetlie OE (Februar 2008). „Riesenklaue enthüllt das größte jemals entdeckte Arthropode“ . Biology Letters . 4 (1): 106–9 . doi : 10.1098/rsbl.2007.0491 . PMC 2412931. PMID 18029297 .
- ^ Daniel C (21. November 2007). „Riesenseeskorpion entdeckt“ . Nature . doi : 10.1038/news.2007.272 . Abgerufen am 10. Juni 2013 .
- ^ Bicknell, Russell DC; Pates, Stephen (2020). „Bildatlas fossiler und rezenter Pfeilschwanzkrebse mit Schwerpunkt auf Xiphosurida“ . Frontiers in Earth Science . 8, 98. Bibcode : 2020FrEaS...8...98B . doi : 10.3389/feart.2020.00098 . ISSN 2296-6463 .
- ^ Kilday P (28. September 2005). „Fangschreckenkrebse besitzen die fortschrittlichsten Augen“ . The Daily Californian . Archiviert vom Original am 29. September 2012. Abgerufen am 23. September 2016 .
- ^ Patek SN, Caldwell RL (2005). „Extreme Stoß- und Kavitationskräfte eines biologischen Hammers: Schlagkräfte der Pfauen-Fangschrecke“ . Journal of Experimental Biology . 208 (19): 3655–3664 . doi : 10.1242/jeb.01831 . PMID 16169943. S2CID 312009 .
- Han , Jian; Morris, Simon Conway; Ou, Qiang; Shu, Degan; Huang, Hai (2017). „Meiofauna-Deuterostomier aus dem basalen Kambrium von Shaanxi (China)“ . Nature . 542 (7640): 228–231 . Bibcode : 2017Natur.542..228H . doi : 10.1038 / nature21072 . ISSN 1476-4687 . PMID 28135722. S2CID 353780 .
- ^ Liu, Yunhuan; Carlisle, Emily; Zhang, Huaqiao; Yang, Ben; Steiner, Michael; Shao, Tiequan; Duan, Baichuan; Marone, Federica; Xiao, Shuhai; Donoghue, Philip CJ (17. August 2022). „Saccorhytus ist ein frühes Ecdysozoon und nicht der früheste Deuterostomier“ . Nature . 609 (7927): 541–546 . Bibcode : 2022Natur.609..541L . doi : 10.1038/s41586-022-05107-z . hdl : 1983/454e7bec-4cd4-4121-933e-abeab69e96c1 . ISSN 1476-4687 . PMID 35978194 . S2CID 251646316 .
- ^ „Tierdiversitäts-Web – Stachelhäuter“ . Zoologisches Museum der Universität Michigan . Abgerufen am 26. August 2012 .
- ^ „Stachelhäuter | Definition, Merkmale, Arten & Fakten | Britannica“ . www.britannica.com . 8. Juni 2023. Abgerufen am 24. Juni 2023 .
- ^ Fox R. " Asterias forbesi " . Invertebrate Anatomy OnLine . Lander University . Abgerufen am 14. Juni 2014 .
- ^ Holsinger, K. (2005). Schlüsselarten. Abgerufen am 10. Mai 2010 von Holsinger K (11. Oktober 2005). „Schlüsselarten“ . Universität von Connecticut . Archiviert vom Original am 30. Juni 2010. Abgerufen am 12. Mai 2010 .
- ^ Simakov O, Kawashima T, Marlétaz F, Jenkins J, Koyanagi R, Mitros T, et al. (November 2015). „Hemichordate-Genome und Deuterostom-Ursprünge“ . Natur . 527 (7579): 459– 65. Bibcode : 2015Natur.527..459S . doi : 10.1038/nature16150 . PMC 4729200 . PMID 26580012 .
- ^ „Wie der Mensch von diesem ‚hässlichen Biest‘ einen Rachen bekam“" . Futurity . 23. November 2015. Archiviert vom Original am 7. November 2023 . Abgerufen am 8. September 2019 ."
- ^ Clark MA, Choi J, Douglas M (2018) . „Akkordate“ . Biologie (2. Aufl.). OpenStax. ISBN 978-1-947172-95-1DieDer bearbeitete Text stammt aus dieser Quelle, die unter einer Creative Commons Attribution 4.0 International Lizenz verfügbar ist .
- ^ „Das Geheimnis des Lebens in Oesia: Ein prähistorischer Wurm baute röhrenartige ‚Häuser‘ auf dem Meeresboden“ . phys.org .
- ^ Barnes RD (1982). Invertebrate Zoology . Philadelphia, PA: Holt-Saunders International. S. 1018–1026 . ISBN 978-0-03-056747-6Die
- ^ „Sekundäre Organisatoren des frühen Gehirns und die Lage der meso-diencephalen dopaminergen Vorläuferzellen“ . Life Map . Archiviert vom Original am 10. März 2014. Abgerufen am 10. März 2014 .
- ^ Pani AM, Mullarkey EE, Aronowicz J, Assimacopoulos S, Grove EA, Lowe CJ (März 2012). „Ursprünge der Signalzentren im Gehirn von Wirbeltieren bei den Deuterostomiern“ . Nature . 483 (7389). ScienceLife: 289–94 . Bibcode : 2012Natur.483..289P . doi : 10.1038/nature10838 . PMC 3719855. PMID 22422262 .
- ^ „Akkordaten“ . OpenStax . 9. Mai 2019.
- Gewin V (2005). „ Funktionelle Genomik verdichtet das biologische Geschehen“ . PLOS Biology . 3 (6) e219. doi : 10.1371/journal.pbio.0030219 . PMC 1149496. PMID 15941356 .
- ^ Timmer J (19. Juni 2008). „Das Genom des Lanzettfischchens (Amphioxus) und der Ursprung der Wirbeltiere“ . Ars Technica .
- ^ Lemaire P (2011). „Evolutionäre Kreuzungspunkte in der Entwicklungsbiologie: die Manteltiere“. Development . 138 (11): 2143–2152 . doi : 10.1242/dev.048975 . PMID 21558365. S2CID 40452112 .
- ^ „FishBase: Ein globales Informationssystem über Fische“ . FishBase . Abgerufen am 17. Januar 2017 .
- ^ „Wie viele Fische gibt es im Meer? Die erste Zählung der Meereslebewesen veröffentlicht ihren Bericht . “ Science Daily . Abgerufen am 17. Januar 2017 .
- ^ Docker MF (November 2006). „Bill Beamishs Beiträge zur Neunaugenforschung und aktuelle Fortschritte auf diesem Gebiet“ . Guelph Ichthyology Reviews . 7 .
- ^ Hardisty MW, Potter IC (1971). Hardisty MW, Potter IC (Hrsg.). Die Biologie der Neunaugen (1. Aufl.). Academic Press. ISBN 978-0-123-24801-5Die
- ^ Gill HS, Renaud CB, Chapleau F, Mayden RL, Potter IC (2003). „Phylogenie lebender parasitärer Neunaugen (Petromyzontiformes) auf der Grundlage morphologischer Daten“. Copeia . 2003 (4): 687–703 . Bibcode : 2003Copei2003..687G . doi : 10.1643/IA02-085.1 . S2CID 85969032 .
- ^ „Myxini“ . Museum für Paläontologie der Universität von Kalifornien. Archiviert vom Original am 15. Dezember 2017. Abgerufen am 17. Januar 2017 .
- ^ Green SA, Bronner ME (2014). „Das Neunauge: Ein kieferloses Wirbeltiermodellsystem zur Untersuchung des Ursprungs der Neuralleiste und anderer Wirbeltiermerkmale“ . Differentiation ; Research in Biological Diversity . 87 ( 1–2 ): 44–51 . doi : 10.1016/j.diff.2014.02.001 . PMC 3995830. PMID 24560767 .
- ^ Stock DW, Whitt GS (August 1992). „Nachweis anhand von 18S ribosomalen RNA-Sequenzen, dass Neunaugen und Schleimaale eine natürliche Gruppe bilden“. Science . 257 (5071): 787–9 . Bibcode : 1992Sci...257..787S . doi : 10.1126/science.1496398 . PMID 1496398 .
- ^ Nicholls H (September 2009). „Evolution: Mouth to mouth“ . Nature . 461 (7261): 164–6 . doi : 10.1038/461164a . PMID 19741680 .
- ^ McCoy VE, Saupe EE, Lamsdell JC, Tarhan LG, McMahon S, Lidgard S, et al. (April 2016). „Das ‚Tully - Monster‘ ist ein Wirbeltier“ . Nature . 532 (7600): 496–9 . Bibcode : 2016Natur.532..496M . doi : 10.1038/nature16992 . PMID 26982721. S2CID 205247805 .
- ^ Sallan L, Giles S, Sansom RS, Clarke JT, Johanson Z, Sansom IJ, et al. (20. Februar 2017). „Das ‚Tully-Monster‘ ist kein Wirbeltier: Merkmale, Konvergenz und Taphonomie bei problematischen Tieren des Paläozoikums“ (PDF) . Palaeontology . 60 (2): 149–157 . Bibcode : 2017Palgy..60..149S . doi : 10.1111/pala.12282 .
- ^ Geggel L (4. Mai 2020). „Das uralte ‚Tully-Monster‘ war ein Wirbeltier, kein wirbelloser Klumpen, behauptet eine Studie . “ Live Science .
- ^ McCoy VE, Wiemann J, Lamsdell JC, Whalen CD, Lidgard S, Mayer P, et al. (September 2020). „Chemische Signaturen von Weichgewebe unterscheiden Wirbeltiere und Wirbellose aus der karbonischen Mazon Creek Lagerstätte in Illinois“. Geobiology . 18 ( 5): 560–565 . Bibcode : 2020Gbio...18..560M . doi : 10.1111/gbi.12397 . PMID 32347003. S2CID 216646333 .
- ^ Mikami, Tomoyuki; Ikeda, Takafumi; Muramiya, Yusuke; Hirasawa, Tatsuya; Iwasaki, Wataru (2023). Cherns, Lesley (Hrsg.). „Die dreidimensionale Anatomie des Tully-Monsters lässt Zweifel an seiner vermuteten Verwandtschaft mit Wirbeltieren aufkommen“ . Paläontologie . 66 (2) 12646. Bibcode : 2023Palgy..6612646M . doi : 10.1111/pala.12646 . ISSN 0031-0239 . S2CID 258198566 .
- ^ Kimmel CB, Miller CT, Keynes RJ (2001). „ Musterbildung der Neuralleiste und die Evolution des Kiefers“ . Journal of Anatomy . 199 (Pt 1-2) S0021878201008068: 105–20 . doi : 10.1017/S0021878201008068 . PMC 1594948. PMID 11523812 .
- ^ Gai Z, Zhu M (2012). „Der Ursprung des Wirbeltierkiefers: Schnittpunkt entwicklungsbiologischer Modelle und fossiler Belege“ . Chinese Science Bulletin . 57 (30): 3819–3828 . Bibcode : 2012ChSBu..57.3819G . doi : 10.1007/s11434-012-5372-z .
- ^ Maisey JG (2000). Discovering Fossil Fishes . Westview Press. S. 1–223 . ISBN 978-0-8133-3807-1Die
- ^ a b Wroe S, Huber DR, Lowry M, McHenry C, Moreno K, Clausen P, et al. (2008). „Dreidimensionale Computeranalyse der Kiefermechanik des Weißen Hais: Wie fest kann ein Weißer Hai zubeißen?“ (PDF) . Journal of Zoology . 276 (4): 336–342 . Bibcode : 2008JZoo..276..336W . doi : 10.1111/j.1469-7998.2008.00494.x .
- ^ Pimiento C, Ehret DJ, Macfadden BJ, Hubbell G (Mai 2010). Stepanova A (Hrsg.). „ Uraltes Aufzuchtgebiet des ausgestorbenen Riesenhais Megalodon aus dem Miozän Panamas“ . PLOS ONE . 5 (5) e10552. Bibcode : 2010PLoSO...510552P . doi : 10.1371/journal.pone.0010552 . PMC 2866656. PMID 20479893 .
- ^ Lambert O, Bianucci G, Post K, de Muizon C, Salas-Gismondi R, Urbina M, Reumer J (Juli 2010). „Der gewaltige Biss eines neuen räuberischen Pottwals aus dem Miozän Perus“. Nature . 466 ( 7302): 105–108 . Bibcode : 2010Natur.466..105L . doi : 10.1038/nature09067 . PMID 20596020. S2CID 4369352 .
- ^ Nielsen J, Hedeholm RB, Heinemeier J, Bushnell PG, Christiansen JS, Olsen J, et al. (August 2016). „Radiokohlenstoffdatierung der Augenlinse belegt jahrhundertelange Langlebigkeit beim Grönlandhai (Somniosus microcephalus)“. Science . 353 (6300): 702–4 . Bibcode : 2016Sci...353..702N . doi : 10.1126 /science.aaf1703 . hdl : 2022/26597 . PMID 27516602. S2CID 206647043 .
- Enrico de Lazaro (12. August 2016). „Grönlandhaie sind die langlebigsten Wirbeltiere der Erde, sagen Meeresbiologen“ . Science News .
- ^ Marshall A, Bennett MB, Kodja G, Hinojosa-Alvarez S, Galvan-Magana F, Harding M, et al. (2011). „ Manta birostris “ . Rote Liste gefährdeter Arten der IUCN . 2011 e.T198921A9108067. doi : 10.2305/IUCN.UK.2011-2.RLTS.T198921A9108067.en .
- ^ Black R (11. Juni 2007). „Sägefischschutz gewinnt an Durchsetzungskraft“ . BBC News .
- ^ Near TJ, Eytan RI, Dornburg A, Kuhn KL, Moore JA, Davis MP, et al. (August 2012). „Auflösung der Phylogenie der Strahlenflosser und Zeitpunkt der Diversifizierung“ . Proceedings of the National Academy of Sciences of the United States of America . 109 (34): 13698–703 . Bibcode : 2012PNAS..10913698N . doi : 10.1073 / pnas.1206625109 . PMC 3427055. PMID 22869754 .
- ^ a b Zhu M, Zhao W, Jia L, Lu J, Qiao T, Qu Q (März 2009). „Der älteste artikulierte Osteichthyan zeigt Mosaik-Gnathostom-Charaktere“ . Natur . 458 (7237): 469– 74. Bibcode : 2009Natur.458..469Z . doi : 10.1038/nature07855 . PMID 19325627 . S2CID 669711 .
- ^ Clack, JA (2002) Gaining Ground . Indiana University
- ^ „Chondrosteen: Verwandte der Störe“ . paleos.com. Archiviert vom Original am 25. Dezember 2010.
- ^ López-Arbarello A (2012). „Phylogenetische Wechselbeziehungen von Ginglymodian-Fischen (Actinopterygii: Neopterygii)“ . PLUS EINS . 7 (7) e39370. Bibcode : 2012PLoSO...739370L . doi : 10.1371/journal.pone.0039370 . PMC 3394768 . PMID 22808031 .
- ^ Berra TM (2008). Verbreitung von Süßwasserfischen . University of Chicago Press . S. 55. ISBN 978-0-226-04443-9Die
- ^ Lackmann AR, Andrews AH, Butler MG, Bielak-Lackmann ES, Clark ME (23. Mai 2019). „Großmaulbüffel (Ictiobus cyprinellus) stellt Rekord für Süßwasser-Teleostier auf: Verbesserte Altersanalyse belegt hundertjährige Lebenserwartung“ . Communications Biology . 2 (1) 197. Bibcode : 2019CmBio...2..197L . doi : 10.1038/s42003-019-0452-0 . PMC 6533251. PMID 31149641 .
- ^ a b Benton M (2005). „Die Evolution der Fische nach dem Devon“ . Wirbeltierpaläontologie (3. Aufl.). John Wiley & Sons . S. 175–184 . ISBN 978-1-4051-4449-0Die
- ^ Bone Q, Moore R (2008). Biologie der Fische . Garland Science . S. 29. ISBN 978-0-415-37562-7Die
- ^ Dorit R, Walker WF, Barnes RD (1991). Zoologie . Saunders College Publishing. S. 67–69 . ISBN 978-0-03-030504-7Die
- ^ „Wissenschaftler beschreiben den kleinsten und leichtesten Fisch der Welt“ . Scripps Institution of Oceanography . 20. Juli 2004. Archiviert vom Original am 5. März 2016. Abgerufen am 9. April 2016 .
- ^ Roach J (13. Mai 2003). „Der schwerste Knochenfisch der Welt entdeckt?“ . National Geographic News . Archiviert vom Original am 17. Mai 2003 . Abgerufen am 9. Januar 2016 .
- ^ „Zusammenfassende Statistiken zu weltweit bedrohten Arten“ (PDF) . Rote Liste gefährdeter Arten der IUCN . Weltnaturschutzunion. Herbst 2014.
Tabelle 1: Anzahl der bedrohten Arten nach Hauptgruppen von Organismen (1996–2014)
- ^ Narkiewicz K, Narkiewicz M (Januar 2015). „Das Alter der ältesten Tetrapodenspuren aus Zachełmie, Polen“. Lethaia . 48 (1): 10–12 . Bibcode : 2015Letha..48...10N . doi : 10.1111/let.12083 . ISSN 0024-1164 .
- ^ Long JA, Gordon MS (September–Oktober 2004). „Der größte Schritt in der Wirbeltiergeschichte: Eine paläobiologische Übersicht über den Übergang von Fischen zu Tetrapoden“ ( PDF) . Physiological and Biochemical Zoology . 77 (5): 700–19 . Bibcode : 2004PhyBZ..77..700L . doi : 10.1086/425183 . PMID 15547790. S2CID 1260442 .
- ^ Shubin N (2008). Dein innerer Fisch: Eine Reise durch die 3,5 Milliarden Jahre alte Geschichte des menschlichen Körpers . New York: Pantheon Books. ISBN 978-0-375-42447-2Die
- ^ Laurin M (2010). Wie die Wirbeltiere das Wasser verließen . Berkeley, Kalifornien, USA: University of California Press. ISBN 978-0-520-26647-6Die
- ^ Canoville A, Laurin M (2010). „Evolution der humeralen Mikroanatomie und des Lebensstils bei Amnioten und einige Anmerkungen zu paläobiologischen Schlussfolgerungen“ . Biological Journal of the Linnean Society . 100 (2): 384–406 . doi : 10.1111/j.1095-8312.2010.01431.x .
- Laurin M , Canoville A, Quilhac A (August 2009). „Nutzung paläontologischer und molekularer Daten in Supertrees für vergleichende Studien: das Beispiel der Femurmikroanatomie der Lissamphibien“ . Journal of Anatomy . 215 (2): 110–23 . doi : 10.1111/j.1469-7580.2009.01104.x . PMC 2740958. PMID 19508493 .
- ^ Hopkins GR, Brodie Jr ED (2015). „Vorkommen von Amphibien in salzhaltigen Lebensräumen: Ein Überblick und eine evolutionäre Perspektive“. Herpetological Monographs . 29 (1): 1–27 . doi : 10.1655/HERPMONOGRAPHS-D-14-00006 . S2CID 83659304 .
- ^ Natchev N, Tzankov N, Geme R (2011). „Invasion des Grünen Frosches im Schwarzen Meer: Habitatökologie der Population des Pelophylax esculentus- Komplexes (Anura, Amphibia) in der Region der Lagune von Schablenska Tuzla in Bulgarien“ (PDF) . Herpetology Notes . 4 : 347–351 . Archiviert vom Original (PDF) am 24. September 2015. Abgerufen am 11. August 2016 .
- ^ Sander PM (August 2012). „Paläontologie. Fortpflanzung bei frühen Amnioten“. Science . 337 (6096): 806–808 . Bibcode : 2012Sci...337..806S . doi : 10.1126/science.1224301 . PMID 22904001. S2CID 7041966 .
- ^ Modesto SP, Anderson JS (Oktober 2004). „Die phylogenetische Definition der Reptilien“ . Systematic Biology . 53 (5): 815–21 . doi : 10.1080/10635150490503026 . PMID 15545258 .

- ^ Gauthier JA, Kluge AG, Rowe T (1988). „Die frühe Evolution der Amniota“. In: Benton MJ (Hrsg.). Die Phylogenie und Klassifikation der Tetrapoden . Band 1. Oxford: Clarendon Press. S. 103–155 . ISBN 978-0-19-857705-8Die
- ^ Laurin M, Reisz RR (1995). „Eine Neubewertung der frühen Amniotenphylogenie“ (PDF) . Zoological Journal of the Linnean Society . 113 (2): 165–223 . doi : 10.1111/j.1096-3642.1995.tb00932.x . Archiviert vom Original (PDF) am 8. Juni 2019. Abgerufen am 14. August 2016 .
- ^ Modesto SP (1999). „Beobachtungen zur Struktur des frühpermischen Reptils Stereosternum tumidum Cope“. Palaeontologia Africana . 35 : 7–19 .
- ^ Rasmussen AR, Murphy JC, Ompi M, Gibbons JW, Uetz P (8. November 2011). „Meeresreptilien“ . PLOS ONE . 6 (11) e27373. Bibcode : 2011PLoSO...627373R . doi : 10.1371/ journal.pone.0027373 . PMC 3210815. PMID 22087300 .
- ^ Stidworthy J (1974). Schlangen der Welt . Grosset & Dunlap Inc. S. 160. ISBN 978-0-448-11856-7Die
- ^ „Seeschlangen“ (PDF) . Ernährungs- und Landwirtschaftsorganisation der Vereinten Nationen . Abgerufen am 22. August 2020 .
- ^ Rasmussen AR, Murphy JC, Ompi M, Gibbons JW, Uetz P (2011). „Meeresreptilien“ . PLOS ONE . 6 (11) e27373. Bibcode : 2011PLoSO...627373R . doi : 10.1371/ journal.pone.0027373 . PMC 3210815. PMID 22087300 .
- ^ Martill DM (1993). „Suppige Substrate: Ein Medium für die außergewöhnliche Erhaltung von Ichthyosauriern des Posidonienschiefers (Unterjura) in Deutschland“. Kaupia – Darmstädter Beiträge zur Naturgeschichte , 2 : 77–97.
- ^ Gould SJ (1993). „Aus der Form geraten“ . Acht kleine Schweinchen: Betrachtungen zur Naturgeschichte . Norton. S. 179–194 . ISBN 978-0-393-31139-6Die
- ^ „Das Phänomen der Hai-Fressorgie während des Sardinenlaufs in Afrika“ . Archiviert vom Original am 2. Dezember 2008.
- ^ „Liste der Arten und Unterarten des Taxonomie-Komitees der Gesellschaft für Meeressäugetiere“ . Gesellschaft für Meeressäugetiere. Oktober 2015. Archiviert vom Original am 6. Januar 2015. Abgerufen am 23. November 2015 .
- ^ Romer AS, Parsons TS (1986). Der Wirbeltierkörper . Sanders College Publishing. S. 96. ISBN 978-0-03-058446-6Die
- ^ „Blauwal“ . World Wide Fund For Nature . Abgerufen am 15. August 2016 .
- ^ Marino L (2004). „Evolution des Walgehirns: Multiplikation erzeugt Komplexität“ (PDF) . International Society for Comparative Psychology (17): 1–16 . Archiviert vom Original (PDF) am 16. September 2018. Abgerufen am 15. August 2016 .
- ^ a b Campbell NA, Reece JB, Urry LA, Cain ML, Wasserman SA, Minorsky PV, Jackson RB (2008). Biologie (8. Aufl.). San Francisco: Pearson – Benjamin Cummings. ISBN 978-0-321-54325-7Die
- ^ Barrie FR, Buck WR, Demoulin V, Greuter W, Hawksworth DL, Herendeen PS, et al., Hrsg. (2012). Internationaler Code der Nomenklatur für Algen, Pilze und Pflanzen (Melbourne-Code), verabschiedet vom Achtzehnten Internationalen Botanischen Kongress, Melbourne, Australien, Juli 2011 (elektronische Ausgabe). Internationale Vereinigung für Pflanzentaxonomie . Abgerufen am 14. Mai 2017 .
- ^ Walsh PJ, Smith S, Fleming L, Solo-Gabriele H, Gerwick WH (Hrsg.). (2. September 2011). „Cyanobakterien und Cyanobakterientoxine“ . Ozeane und menschliche Gesundheit: Risiken und Heilmittel aus den Meeren . Academic Press. S. 271–296 . ISBN 978-0-08-087782-2Die
- ^ „Der Aufstieg des Sauerstoffs – Astrobiology Magazine“ . Astrobiology Magazine . 30. Juli 2003. Abgerufen am 6. April 2016 .
- Flannery DT, Walter RM (2012). „Archaische, büschelförmige mikrobielle Matten und das Große Sauerstoffereignis: Neue Erkenntnisse zu einem uralten Problem“. Australian Journal of Earth Sciences . 59 (1): 1–11 . Bibcode : 2012AuJES..59....1F . doi : 10.1080/08120099.2011.607849 . S2CID 53618061 .
- ^Rothschild L (September 2003). "Understand the evolutionary mechanisms and environmental limits of life". NASA. Archived from the original on 29 March 2012. Retrieved 13 July 2009.
- ^Nadis S (December 2003). "The cells that rule the seas"(PDF). Scientific American. 289 (6): 52–3. Bibcode:2003SciAm.289f..52N. doi:10.1038/scientificamerican1203-52. PMID 14631732. Archived from the original(PDF) on 19 April 2014. Retrieved 2 June 2019.
- ^"The Most Important Microbe You've Never Heard Of". npr.org.
- ^Flombaum P, Gallegos JL, Gordillo RA, Rincón J, Zabala LL, Jiao N, et al. (June 2013). "Present and future global distributions of the marine Cyanobacteria Prochlorococcus and Synechococcus". Proceedings of the National Academy of Sciences of the United States of America. 110 (24): 9824–9. Bibcode:2013PNAS..110.9824F. doi:10.1073/pnas.1307701110. PMC 3683724. PMID 23703908.
- ^Nabors MW (2004). Introduction to Botany. San Francisco, CA: Pearson Education, Inc. ISBN 978-0-8053-4416-5.
- ^Allaby M, ed. (1992). "Algae". The Concise Dictionary of Botany. Oxford: Oxford University Press.
- ^Guiry MD (October 2012). "How Many Species of Algae Are There?". Journal of Phycology. 48 (5): 1057–63. Bibcode:2012JPcgy..48.1057G. doi:10.1111/j.1529-8817.2012.01222.x. PMID 27011267. S2CID 30911529.
- ^ abGuiry MD, Guiry GM (2016). "Algaebase". www.algaebase.org. Retrieved 20 November 2016.
- ^Thomas D (2002). Seaweeds. Life Series. Natural History Museum, London. ISBN 978-0-565-09175-0.
- ^ Hoek C, Mann D, Jahns HM, Jahns M (1995). Algen: Eine Einführung in die Phykologie . Cambridge University Press. S. 166. ISBN 978-0-521-31687-3OCLC 443576944 .
- ^ Tréguer P, Nelson DM, Van Bennekom AJ, Demaster DJ, Leynaert A, Quéguiner B (April 1995). „Die Siliziumbilanz im Weltozean: eine Neuberechnung“. Science . 268 ( 5209): 375–9 . Bibcode : 1995Sci...268..375T . doi : 10.1126/science.268.5209.375 . PMID 17746543. S2CID 5672525 .
- ^ „King’s College London – Lake Megachad“ . www.kcl.ac.uk. Abgerufen am 5. Mai 2018 .
- ^ Gómez F (2012). „Eine Checkliste und Klassifizierung der lebenden Dinoflagellaten (Dinoflagellata, Alveolata)“ . CICIMAR Oceánides . 27 (1): 65–140 . doi : 10.37543/oceanides.v27i1.111 .
- ^ Stoecker DK (1999). „Mixotrophie bei Dinoflagellaten“. The Journal of Eukaryotic Microbiology . 46 (4): 397–401 . doi : 10.1111/j.1550-7408.1999.tb04619.x . S2CID 83885629 .
- ^ Starckx S (31. Oktober 2012). „Ein Platz an der Sonne – Algen sind die Ernte der Zukunft, so Forscher in Geel] Flanders Today“ . Archiviert vom Original am 4. März 2016. Abgerufen am 8. Dezember 2012 .
- ^ Duval B, Margulis L (1995). „Die mikrobielle Gemeinschaft von Ophrydium versatile -Kolonien: Endosymbionten, Bewohner und Mieter“. Symbiosis . 18 : 181–210 . PMID 11539474 .
- ^ Wernberg, T., Krumhansl, K., Filbee-Dexter, K. und Pedersen, MF (2019) „Status und Trends der Kelpwälder weltweit“. In: Weltmeere: Eine Umweltbewertung (S. 57–78). Academic Press. doi : 10.1016/B978-0-12-805052-1.00003-6 .
- ^ Mann KH (Dezember 1973). „Meeresalgen: Ihre Produktivität und Wachstumsstrategie: Die Rolle großer Meeresalgen für die Produktivität der Küstengewässer ist weitaus wichtiger als bisher angenommen“. Science . 182 ( 4116): 975–81 . Bibcode : 1973Sci...182..975M . doi : 10.1126/science.182.4116.975 . PMID 17833778. S2CID 26764207 .
- Tunnell JW, Chávez EA, Withers K (2007). Korallenriffe des südlichen Golfs von Mexiko . Texas A&M University Press. S. 91. ISBN 978-1-58544-617-9Die
- ^ " Caulerpa taxifolia (Killeralge)" . Kompendium invasiver Arten . Centre for Agriculture and Bioscience International. 6. November 2018.
- ^ Mandoli DF (Juni 1998). „Ausarbeitung des Körperbauplans und Phasenwechsel während der Entwicklung von Acetabularia: Wie entsteht die komplexe Architektur einer riesigen Einzellerzelle?“. Annual Review of Plant Physiology and Plant Molecular Biology . 49 (1): 173–198 . Bibcode : 1998ARPMB..49..173M . doi : 10.1146/annurev.arplant.49.1.173 . PMID 15012232. S2CID 6241264 .
- ^ Madl P, Yip M (2004). „Literaturübersicht zu Caulerpa taxifolia“ . BUFUS-Info . 19 (31). Archiviert vom Original am 8. Oktober 2022. Abgerufen am 18. Juli 2017 .
- ^ Orth RJ, Carruthers TJ, Dennison WC, Duarte CM, Fourqurean JW, Heck KL, et al. (2006). „Eine globale Krise für Seegraswiesen“ . BioScience . 56 (12): 987–996 . doi : 10.1641/0006-3568(2006)56[987:AGCFSE]2.0.CO;2 . hdl : 10261/88476 . S2CID 4936412 .
- ^ Froese, Rainer ; Pauly, Daniel (Hrsg.). " Phycodurus eques " . FishBase . Version Juli 2009.
- ^Giri C, Ochieng E, Tieszen LL, Zhu Z, Singh A, Loveland T, et al. (2011). "Status and distribution of mangrove forests of the world using earth observation satellite data". Global Ecology and Biogeography. 20 (1): 154–159. Bibcode:2011GloEB..20..154G. doi:10.1111/j.1466-8238.2010.00584.x.
- ^Thomas N, Lucas R, Bunting P, Hardy A, Rosenqvist A, Simard M (2017). "Distribution and drivers of global mangrove forest change, 1996-2010". PLOS ONE. 12 (6) e0179302. Bibcode:2017PLoSO..1279302T. doi:10.1371/journal.pone.0179302. PMC 5464653. PMID 28594908.
- ^Short FT, Frederick T (2003). World atlas of seagrasses. Berkeley, Calif.: University of California Press. p. 24. ISBN 978-0-520-24047-6. Archived from the original on 10 July 2019. Retrieved 10 July 2019.
- ^Spalding M (2010). World atlas of mangroves. Routledge. doi:10.4324/9781849776608. ISBN 978-1-84977-660-8.
- ^Lalli C, Parsons T (1993). Biological Oceanography: An Introduction. Butterworth-Heinemann. ISBN 0-7506-3384-0.
- ^Lindsey R, Scott M, Simmon R (2010). "What are phytoplankton". NASA Earth Observatory.
- ^Field CB, Behrenfeld MJ, Randerson JT, Falkowski P (July 1998). "Primary production of the biosphere: integrating terrestrial and oceanic components". Science. 281 (5374): 237–40. Bibcode:1998Sci...281..237F. doi:10.1126/science.281.5374.237. PMID 9657713.
- ^Rost B, Riebesell U (2004). "Coccolithophores and the biological pump: responses to environmental changes". Coccolithophores: From Molecular Processes to Global Impact. Springer. pp. 99–125. ISBN 978-3-662-06278-4.
- ^Varea C, Aragón JL, Barrio RA (October 1999). "Turing patterns on a sphere". Physical Review E. 60 (4 Pt B): 4588–92. Bibcode:1999PhRvE..60.4588V. doi:10.1103/PhysRevE.60.4588. PMID 11970318.
- ^Harvey EN (1952). Bioluminescence. Academic Press.
- ^"Suggested Explanation for Glowing Seas – Including Currently Glowing California Seas". National Science Foundation. 18 October 2011.
- ^Richard Collins (14 November 2016). "Beware the mixotrophs – they can destroy entire ecosystems 'in a matter of hours'". Irish Examiner.
- ^Castro P, Huber ME (2010). Marine Biology (8th ed.). McGraw Hill. pp. 95. ISBN 978-0-07-111302-1.
- ^Hastings JW (1996). "Chemistries and colors of bioluminescent reactions: a review". Gene. 173 (1 Spec No): 5–11. doi:10.1016/0378-1119(95)00676-1. PMID 8707056.
- ^Haddock SH, Moline MA, Case JF (2009). "Bioluminescence in the sea". Annual Review of Marine Science. 2: 443–93. Bibcode:2010ARMS....2..443H. doi:10.1146/annurev-marine-120308-081028. PMID 21141672. S2CID 3872860.
- ^Kolding, Jeppe; Bundy, Alida; van Zwieten, Paul A.M.; Plank, Michael J. (1 June 2016). "Fisheries, the inverted food pyramid"(PDF). ICES Journal of Marine Science. 73 (6): 1697–1713. doi:10.1093/icesjms/fsv225. ISSN 1095-9289. Retrieved 15 October 2025.
- ^ Woodson, C. Brock; Schramski, John R.; Joye, Samantha B. (2. Januar 2018). „Eine vereinheitlichende Theorie für die Ökosystemstruktur mit Schwerpunkt im Ozean“ ( PDF) . Nature Communications . 9 (1) 23. Bibcode : 2018NatCo...9...23W . doi : 10.1038/s41467-017-02450-y . ISSN 2041-1723 . PMC 5750233. PMID 29295998. Abgerufen am 15. Oktober 2025 .
- ^ Edwards, Kyle F. (2016). „Community trait structure in phytoplankton: seasonal dynamics from a method for sparse trait data“ . Ecology . 97 (12): 3441–3451 . Bibcode : 2016Ecol...97.3441E . doi : 10.1002/ecy.1581 . ISSN 0012-9658 . PMID 27911997. Abgerufen am 15. Oktober 2025 .
- Reich , Peter B. (2014). „Das weltweite Spektrum der Pflanzenökonomie von ‚schnell‘ bis langsam: ein Manifest der Merkmale“ . Journal of Ecology . 102 (2): 275–301 . Bibcode : 2014JEcol.102..275R . doi : 10.1111/1365-2745.12211 . ISSN 0022-0477 .
- ^ „Kohlenstoffkreislauf und Biosequestrierung“ . US-Energieministerium – Büro für Wissenschaft des Energieministeriums. 2008. S. 81.
Workshopbericht DOE/SC-108
- ^ Mitra, Aditee; Leles, Suzana Gonçalves (2023). „Eine revidierte Interpretation der marinen Primärproduktion im Indischen Ozean: Die Rolle des Mixoplanktons“ . Dynamik der planktonischen Primärproduktion im Indischen Ozean . Cham: Springer International Publishing. S. 101–128 . doi : 10.1007/978-3-031-34467-1_5 . ISBN 978-3-031-34466-4Abgerufen am 6. August 2025 .
- ^ Campbell M (22. Juni 2011). „Die Rolle des Meeresplanktons bei der Kohlenstoffbindung“ . EarthTimes . Abgerufen am 22. August 2014 .
- ^ Roman J, McCarthy JJ (Oktober 2010). „Die Walpumpe: Meeressäugetiere steigern die Primärproduktion in einem Küstenbecken“ . PLOS ONE . 5 (10) e13255. Bibcode : 2010PLoSO...513255R . doi : 10.1371/journal.pone.0013255 . PMC 2952594. PMID 20949007. e13255.
- ^ Brown JE (12. Oktober 2010). „Walkot verbessert die Gesundheit der Ozeane“ . Science Daily . Abgerufen am 18. August 2014 .
- ^ „Wasser, das universelle Lösungsmittel“ . USGS . Archiviert vom Original am 9. Juli 2017. Abgerufen am 27. Juni 2017 .
- ^ Brum JR, Morris JJ, Décima M, Stukel MR (2014). Kapitel 2: Mortalität in den Ozeanen: Ursachen und Folgen . Tagungsband des Eco-DAS IX Symposiums. Association for the Sciences of Limnology and Oceanography. S. 16–48 . ISBN 978-0-9845591-3-8DieDie
- ^ Reece JB (2013). Campbell Biologie (10. Aufl.). Pearson . ISBN 978-0-321-77565-8Die
- ^ Prentice IC (2001). „Der Kohlenstoffkreislauf und das atmosphärische Kohlendioxid“ . Klimawandel 2001: Die wissenschaftlichen Grundlagen: Beitrag der Arbeitsgruppe I zum Dritten Sachstandsbericht des Zwischenstaatlichen Ausschusses für Klimaänderungen / Houghton, JT [Bearbeitung]. Archiviert vom Original am 27. September 2013. Abgerufen am 31. Mai 2012 .
- ^ Thomson CW (2014). Die Reise der Challenger: Der Atlantik . Cambridge University Press. S. 235. ISBN 978-1-108-07475-9Die
- ^ Hasle GR, Syvertsen EE, Steidinger, Tangen K (25. Januar 1996). „Marine Diatomeen“ . In: Tomas CR (Hrsg.). Identifizierung mariner Diatomeen und Dinoflagellaten . Academic Press. S. 5–385 . ISBN 978-0-08-053441-1Abgerufen am 13. November 2013 .
- ^ Adl SM, Leander BS, Simpson AG, Archibald JM, Anderson OR, Bass D, et al. (August 2007). „Diversität, Nomenklatur und Taxonomie der Protisten“ . Systematic Biology . 56 (4): 684–9 . doi : 10.1080/10635150701494127 . PMID 17661235 .
- ^ Moheimani NR, Webb JP, Borowitzka MA (Oktober 2012). „Bioremediation and other potential applications of coccolithophorid algae: a review“. Algal Research . 1 (2): 120– 33. doi : 10.1016/j.algal.2012.06.002 .
- ^ Taylor AR, Chrachri A, Wheeler G, Goddard H, Brownlee C (Juni 2011). „Ein spannungsgesteuerter H+-Kanal als Grundlage der pH-Homöostase in kalzifizierenden Coccolithophoriden“ . PLOS Biology . 9 (6) e1001085. doi : 10.1371/journal.pbio.1001085 . PMC 3119654. PMID 21713028 .
- Halpern BS, Frazier M, Afflerbach J, Lowndes JS, Micheli F, O'Hara C et al. (August 2019). „Aktuelles Tempo des Wandels der menschlichen Einflüsse auf die Weltmeere“ . Scientific Reports . 9 (1) 11609. Bibcode : 2019NatSR...911609H . doi : 10.1038/ s41598-019-47201-9 . PMC 6691109. PMID 31406130 .
- ^ „Einflüsse des Menschen auf marine Ökosysteme“ . GEOMAR Helmholtz-Zentrum für Ozeanforschung . Archiviert vom Original am 31. Oktober 2020. Abgerufen am 22. Oktober 2019 .
- ^ Rosing MT, Bird DK, Sleep NH, Bjerrum CJ (April 2010). „Kein Klimaparadoxon unter der schwachen frühen Sonne“. Nature . 464 (7289): 744–747 . Bibcode : 2010Natur.464..744R . doi : 10.1038 / nature08955 . PMID 20360739. S2CID 205220182 .
- Sahney S, Benton MJ, Ferry PA (August 2010). „ Links between global taxonomic diversity, ecological diversity and the expansion of vertebrates on land“ . Biology Letters . 6 (4): 544–7 . doi : 10.1098/rsbl.2009.1024 . PMC 2936204. PMID 20106856 .
- ^ McKinney ML (1997). „Wie entgehen seltene Arten dem Aussterben? Eine paläontologische Betrachtung“ . The Biology of Rarity . S. 110–129 . doi : 10.1007/978-94-011-5874-9_7 . ISBN 978-94-010-6483-5Die
- ^ Stearns BP, Stearns SC (1999). Watching, from the Edge of Extinction . New Haven, CT: Yale University Press. S. x. ISBN 978-0-300-08469-6Die
- ^ Novacek MJ (8. November 2014). „Die brillante Zukunft der Vorgeschichte“ . The New York Times . New York. ISSN 0362-4331 . Abgerufen am 25. Dezember 2014 .
- ^ Nee S (August 2004). „Extinction, slime, and bottoms“ . PLOS Biology . 2 (8) E272. doi : 10.1371/ journal.pbio.0020272 . PMC 509315. PMID 15314670 .
- ^ Ward PD (Oktober 2006). „Impact from the deep“. Scientific American . 295 (4): 64–71 . Bibcode : 2006SciAm.295d..64W . doi : 10.1038/scientificamerican1006-64 (inaktiv seit 12. Juli 2025). PMID 16989482 .
{{cite journal}}: CS1 Wartung: DOI inaktiv ab Juli 2025 ( Link ) - ^ Marine Aussterben: Muster und Prozesse – ein Überblick. 2013. CIESM-Monographie 45 [1]
- ^ a b c „Untersuchung des Meereslebens | Volkszählung des Meereslebens“ . www.coml.org . Abgerufen am 27. Dezember 2023 .
- ^ „Explorationswerkzeuge: AUVs: NOAA Office of Ocean Exploration and Research“ . oceanexplorer.noaa.gov . Abgerufen am 27. Dezember 2023 .
- ^ „Tiefseeschleppfahrzeuge (DTVs) | Zählung des Meereslebens“ . www.coml.org . Abgerufen am 27. Dezember 2023 .
- ^ „Die Drohnenrevolution unter Wasser“ . Advanced Navigation . Abgerufen am 27. Dezember 2023 .
Weiterführende Literatur
- Halpern BS, Walbridge S, Selkoe KA, Kappel CV, Micheli F, D'Agrosa C, et al. (Februar 2008). „Eine globale Karte der menschlichen Einflüsse auf marine Ökosysteme“. Science . 319 ( 5865): 948–52 . Bibcode : 2008Sci...319..948H . doi : 10.1126/science.1149345 . PMID 18276889. S2CID 26206024 .
- Paleczny M, Hammill E, Karpouzi V, Pauly D (2015). „Populationstrend der weltweit überwachten Seevögel, 1950–2010“ . PLOS ONE . 10 (6) e0129342. Bibcode : 2015PLoSO..1029342P . doi : 10.1371/ journal.pone.0129342 . PMC 4461279. PMID 26058068 .
- Ruppert EE, Fox RS, Barnes RD (2004). Invertebrate Zoology (7. Aufl.). Brooks/Cole. ISBN 978-0-03-025982-1Die
- „Nach 60 Millionen Jahren extremer Lebensbedingungen brechen die Seevogelbestände zusammen . “ The Guardian . 22. September 2015.


