Nicotinamidadenindinukleotid ( NAD ) ist ein für den Stoffwechsel zentrales Coenzym . [ 1 ] Es kommt in allen lebenden Zellen vor und wird als Dinukleotid bezeichnet, da es aus zwei Nukleotiden besteht , die über ihre Phosphatgruppen verbunden sind . Ein Nukleotid enthält die Nukleobase Adenin , das andere Nicotinamid . NAD existiert in zwei Formen: einer oxidierten und einer reduzierten Form , abgekürzt NAD⁺ bzw. NADH (H für Wasserstoff ).
Im Zellstoffwechsel ist NAD an Redoxreaktionen beteiligt und überträgt Elektronen von einer Reaktion zur anderen. Es kommt in zwei Formen vor: NAD <sup>+</sup> wirkt als Oxidationsmittel , nimmt Elektronen von anderen Molekülen auf und wird reduziert. Mit H<sup> + </sup> bildet sich dabei NADH, das als Reduktionsmittel Elektronen abgeben kann . Diese Elektronentransferreaktionen sind die Hauptfunktion von NAD. Es wird auch in anderen zellulären Prozessen verwendet, insbesondere als Substrat von Enzymen beim Anfügen oder Entfernen chemischer Gruppen an bzw. von Proteinen sowie bei posttranslationalen Modifikationen . Aufgrund der Bedeutung dieser Funktionen sind die am NAD-Stoffwechsel beteiligten Enzyme Zielstrukturen für die Wirkstoffforschung .
In Organismen kann NAD aus einfachen Bausteinen ( de novo ) aus Tryptophan oder Asparaginsäure , beides Aminosäuren , synthetisiert werden . Alternativ werden komplexere Bestandteile der Coenzyme aus Nährstoffen wie Vitamin B3 (auch Niacin genannt) oder Nicotinsäure (daher der Name „Nicotinamid“) aufgenommen. Ähnliche Verbindungen entstehen durch Reaktionen, die die Struktur von NAD aufbrechen und so einen Recyclingweg bilden , der sie wieder in ihre jeweilige aktive Form überführt.
Im Namen NAD + kennzeichnet das hochgestellte Pluszeichen die positive formale Ladung eines seiner Stickstoffatome .
Ein Teil des NAD wird in das Coenzym Nicotinamidadenindinukleotidphosphat (NADP) umgewandelt , dessen chemische Eigenschaften weitgehend denen von NAD ähneln, wobei seine Hauptfunktion jedoch in der Funktion als Coenzym im anabolen Stoffwechsel liegt. NADP wirkt als Reduktionsmittel in anabolen Reaktionen wie dem Calvin-Zyklus sowie der Lipid- und Nukleinsäuresynthese. NADP existiert in zwei Formen: NADP<sup>+</sup>, der oxidierten Form, und NADPH, der reduzierten Form. NADP ist Nicotinamidadenindinukleotid (NAD) ähnlich, besitzt jedoch eine Phosphatgruppe an der C-2′-Position des Adenosylrests.
Physikalische und chemische Eigenschaften
Nicotinamidadenindinukleotid besteht aus zwei Nukleosiden, die durch Pyrophosphat verbunden sind . Jedes Nukleosid enthält einen Ribosering , wobei an das erste Kohlenstoffatom ( Position 1' ) Adenin gebunden ist ( Adenosindiphosphatribose ) und an die andere Nicotinamid . [ 2 ] [ 3 ]
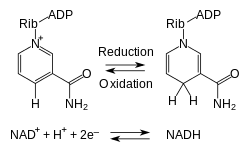
Die Verbindung nimmt ein Äquivalent an H⁻ auf oder gibt es ab . [ 4 ] Solche Reaktionen (zusammengefasst in der untenstehenden Formel) beinhalten die Abspaltung von zwei Wasserstoffatomen von einem Reaktanten (R) in Form eines Hydridions (H⁻ ) und eines Protons (H⁺ ) . Das Proton wird in Lösung freigesetzt, während das Reduktionsmittel RH₂ oxidiert und NAD⁺ durch Übertragung des Hydridions auf den Nicotinamidring zu NADH reduziert wird.
- RH 2 + NAD + → NADH + H + + R;
Vom Elektronenpaar des Hydridions wird ein Elektron vom etwas elektronegativeren Atom des Nicotinamidrings von NAD⁺ angezogen und wird Teil des Nicotinamidrests. Das verbleibende Wasserstoffatom wird auf das dem Stickstoffatom gegenüberliegende Kohlenstoffatom übertragen. Das Redoxpotential des NAD⁺ / NADH-Paares beträgt −0,32 Volt , wodurch NADH ein mäßig starkes Reduktionsmittel ist . [ 5 ] Die Reaktion ist leicht reversibel, da NADH ein weiteres Molekül reduziert und wieder zu NAD⁺ oxidiert wird . Dies bedeutet, dass das Coenzym kontinuierlich zwischen den Formen NAD⁺ und NADH wechseln kann, ohne verbraucht zu werden. [ 3 ]
Äußerlich handelt es sich bei allen Formen dieses Coenzyms um weiße , amorphe Pulver, die hygroskopisch und sehr gut wasserlöslich sind. [ 6 ] Die Feststoffe sind bei trockener und dunkler Lagerung stabil. Lösungen von NAD <sup>+</sup> sind farblos und bei 4 °C und neutralem pH-Wert etwa eine Woche lang stabil , zersetzen sich jedoch in sauren oder alkalischen Lösungen rasch. Bei der Zersetzung entstehen Produkte, die Enzymhemmer sind . [ 7 ]
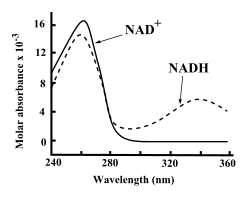
Sowohl NAD⁺ als auch NADH absorbieren aufgrund des Adenins stark ultraviolettes Licht. Beispielsweise liegt die maximale Absorption von NAD⁺ bei einer Wellenlänge von 259 Nanometern (nm) mit einem Extinktionskoeffizienten von 16.900 M⁻¹ cm⁻¹. NADH absorbiert ebenfalls bei höheren Wellenlängen, mit einem zweiten Absorptionsmaximum bei 339 nm und einem Extinktionskoeffizienten von 6.220 M⁻¹ cm⁻¹. [ 8 ] Dieser Unterschied in den UV - Absorptionsspektren der oxidierten und reduzierten Formen der Coenzyme bei höheren Wellenlängen ermöglicht eine einfache Messung der Umwandlung in Enzymassays – durch Messung der UV-Absorption bei 340 nm mit einem Spektralphotometer . [ 8 ]
NAD⁺ und NADH unterscheiden sich auch in ihrer Fluoreszenz . Frei diffundierendes NADH in wässriger Lösung fluoresziert bei Anregung mit der Nicotinamid-Absorptionsbande von ~335 nm (nahes UV) im Bereich von 445–460 nm (violett bis blau) mit einer Fluoreszenzlebensdauer von 0,4 Nanosekunden , während NAD⁺ nicht fluoresziert. [ 9 ] [ 10 ] Die Eigenschaften des Fluoreszenzsignals verändern sich, wenn NADH an Proteine bindet. Diese Veränderungen können zur Messung von Dissoziationskonstanten genutzt werden , die für die Untersuchung der Enzymkinetik von Bedeutung sind . [ 10 ] [ 11 ] Mithilfe der Fluoreszenzmikroskopie werden diese Fluoreszenzänderungen auch zur Messung von Veränderungen des Redoxzustands lebender Zellen verwendet . [ 12 ]
NADH kann in einer kupferkatalysierten Reaktion, die Wasserstoffperoxid erfordert, in NAD+ umgewandelt werden. Daher ist die Versorgung der Zellen mit NAD+ von mitochondrialem Kupfer(II) abhängig. [ 13 ] [ 14 ]
Konzentration und Zustand in Zellen
In der Rattenleber beträgt die Gesamtmenge an NAD⁺ und NADH etwa 1 μmol pro Gramm Frischgewicht, was etwa dem Zehnfachen der Konzentration von NADP⁺ und NADPH in denselben Zellen entspricht. [15] Die tatsächliche NAD⁺-Konzentration im Zellzytosol ist schwieriger zu messen; neuere Schätzungen für tierische Zellen liegen bei etwa 0,3 mM [16, 17] und für Hefe bei etwa 1,0 bis 2,0 mM . [ 18 ] Da jedoch mehr als 80 % der NADH-Fluoreszenz in Mitochondrien von gebundenem NADH stammen, ist die Konzentration in Lösung deutlich geringer. [ 19 ]
Die NAD + -Konzentration ist in den Mitochondrien am höchsten und macht 40–70 % des gesamten zellulären NAD + aus . [ 20 ] NAD + aus dem Zytosol wird durch ein spezifisches Membrantransportprotein in die Mitochondrien transportiert , da das Coenzym nicht durch Membranen diffundieren kann. [ 21 ] Eine Übersichtsarbeit gab die intrazelluläre Halbwertszeit von NAD + mit 1–2 Stunden an, [ 22 ] während eine andere Übersichtsarbeit je nach Kompartiment unterschiedliche Werte nannte: intrazellulär 1–4 Stunden, zytoplasmatisch 2 Stunden und mitochondrial 4–6 Stunden. [ 23 ]
Das Gleichgewicht zwischen den oxidierten und reduzierten Formen von Nicotinamidadenindinukleotid (NAD+) wird als NAD + /NADH-Verhältnis bezeichnet. Dieses Verhältnis ist ein wichtiger Bestandteil des sogenannten Redoxstatus einer Zelle, einem Messwert, der sowohl die Stoffwechselaktivitäten als auch die Zellgesundheit widerspiegelt. [ 24 ] Die Auswirkungen des NAD + /NADH-Verhältnisses sind komplex und regulieren die Aktivität mehrerer Schlüsselenzyme, darunter Glycerinaldehyd-3-phosphat-Dehydrogenase und Pyruvat-Dehydrogenase . In gesundem Säugetiergewebe liegt das Verhältnis von freiem NAD + zu NADH im Zytoplasma typischerweise bei etwa 700:1; dieses Verhältnis ist somit günstig für oxidative Reaktionen. [ 25 ] [ 26 ] Das Verhältnis von Gesamt-NAD + zu NADH ist deutlich niedriger und wird bei Säugetieren auf Werte zwischen 3 und 10 geschätzt. [ 27 ] Im Gegensatz dazu beträgt das NADP + /NADPH -Verhältnis normalerweise etwa 0,005, sodass NADPH die vorherrschende Form dieses Coenzyms ist. [ 28 ] Diese unterschiedlichen Verhältnisse sind entscheidend für die verschiedenen metabolischen Funktionen von NADH und NADPH.
Biosynthese
NAD + wird über zwei Stoffwechselwege synthetisiert. Es wird entweder de novo aus Aminosäuren oder durch Recycling vorgeformter Komponenten wie Nicotinamid zu NAD + gebildet . Obwohl die meisten Gewebe von Säugetieren NAD + über den Recyclingweg synthetisieren, findet in der Leber deutlich mehr de novo Synthese aus Tryptophan und in der Niere sowie in Makrophagen aus Nicotinsäure statt . [ 29 ]
Neuproduktion

Die meisten Organismen synthetisieren NAD + aus einfachen Bausteinen. [ 4 ] Die spezifischen Reaktionen variieren zwischen den Organismen, aber allen gemeinsam ist die Bildung von Chinolinsäure (QA) aus einer Aminosäure – entweder Tryptophan (Trp) bei Tieren und einigen Bakterien oder Asparaginsäure (Asp) bei einigen Bakterien und Pflanzen. [ 30 ] [ 31 ] Die Chinolinsäure wird durch Übertragung einer Phosphoribose-Einheit in Nicotinsäuremononukleotid (NaMN) umgewandelt. Anschließend wird eine Adenylat-Einheit übertragen, wodurch Nicotinsäureadenindinukleotid (NaAD) entsteht. Schließlich wird die Nicotinsäure-Einheit in NaAD mit einer Nicotinamid-Einheit (Nam) amidiert , wodurch Nicotinamidadenindinukleotid entsteht. [ 4 ]
In einem weiteren Schritt wird ein Teil des NAD + durch die NAD + -Kinase in NADP + umgewandelt , welches NAD + phosphoryliert . [ 32 ] In den meisten Organismen verwendet dieses Enzym Adenosintriphosphat (ATP) als Quelle der Phosphatgruppe, obwohl einige Bakterien wie Mycobacterium tuberculosis und das hyperthermophile Archaebakterium Pyrococcus horikoshii anorganisches Polyphosphat als alternativen Phosphoryldonator nutzen . [ 33 ] [ 34 ]

Bergungswege
Trotz des vorhandenen De-novo- Synthesewegs sind die Wiederverwertungsreaktionen für den Menschen essenziell; ein Mangel an Vitamin B3 in der Ernährung verursacht die Vitaminmangelkrankheit Pellagra . [ 35 ] Dieser hohe Bedarf an NAD + resultiert aus dem ständigen Verbrauch des Coenzyms in Reaktionen wie posttranslationalen Modifikationen, da der Kreislauf von NAD + zwischen oxidierter und reduzierter Form in Redoxreaktionen den Gesamtspiegel des Coenzyms nicht verändert. [ 4 ] Die Hauptquelle für NAD + bei Säugetieren ist der Wiederverwertungsweg, der das von NAD + -verbrauchenden Enzymen produzierte Nicotinamid recycelt . [ 36 ] Der erste Schritt und das geschwindigkeitsbestimmende Enzym im Wiederverwertungsweg ist die Nicotinamid-Phosphoribosyltransferase (NAMPT), die Nicotinamid-Mononukleotid (NMN) produziert . [ 36 ] NMN ist die unmittelbare Vorstufe von NAD+ im Wiederverwertungsweg. [ 37 ]
Neben der Neusynthese von NAD + aus einfachen Aminosäurevorstufen können Zellen auch vorgeformte Verbindungen mit einer Pyridinbase wiederverwerten. Die drei Vitaminvorstufen dieser Wiederverwertungswege sind Nicotinsäure (NA), Nicotinamid (Nam) und Nicotinamidribosid (NR). [ 4 ] Diese Verbindungen können über die Nahrung aufgenommen werden und werden als Vitamin B3 oder Niacin bezeichnet . Sie werden jedoch auch in den Zellen selbst und durch die Verdauung von zellulärem NAD + gebildet . Einige der an diesen Wiederverwertungswegen beteiligten Enzyme scheinen im Zellkern konzentriert zu sein , was den hohen NAD + -Verbrauch in diesem Organell kompensieren könnte . [ 38 ] Es gibt Berichte, wonach Säugetierzellen extrazelluläres NAD + aus ihrer Umgebung aufnehmen können [ 39 ] und sowohl Nicotinamid als auch Nicotinamidribosid über den Darm resorbiert werden können. [ 40 ]
Die in Mikroorganismen genutzten Wiederverwertungswege unterscheiden sich von denen der Säugetiere . [ 41 ] Einige Krankheitserreger, wie die Hefe Candida glabrata und das Bakterium Haemophilus influenzae , sind NAD + -Auxotrophe – sie können NAD + nicht selbst synthetisieren –, besitzen aber Wiederverwertungswege und sind daher auf externe NAD + -Quellen oder deren Vorstufen angewiesen. [ 42 ] [ 43 ] Noch überraschender ist der intrazelluläre Krankheitserreger Chlamydia trachomatis , dem erkennbare Kandidatengene für die Biosynthese oder Wiederverwertung von NAD + und NADP + fehlen und der diese Coenzyme von seinem Wirt beziehen muss . [ 44 ]
Funktionen

Nicotinamidadenindinukleotid (NAD+) spielt mehrere essenzielle Rollen im Stoffwechsel . Es fungiert als Coenzym in Redoxreaktionen , als Donor von ADP-Ribose-Einheiten in ADP-Ribosylierungsreaktionen , als Vorstufe des sekundären Botenstoffs cyclisches ADP-Ribose (cRAM) und dient zudem als Substrat für bakterielle DNA-Ligasen sowie für Sirtuine , eine Gruppe von Enzymen , die NAD + zur Abspaltung von Acetylgruppen von Proteinen nutzen. Neben diesen metabolischen Funktionen tritt NAD + als Adeninnukleotid auf, das spontan und durch regulierte Mechanismen aus Zellen freigesetzt werden kann [ 46 , 47 ] und daher wichtige extrazelluläre Funktionen erfüllen kann . [ 47 ]
Oxidoreduktase-Bindung von NAD
Die Hauptrolle von NAD + im Stoffwechsel ist die Übertragung von Elektronen von einem Molekül auf ein anderes. Reaktionen dieser Art werden von einer großen Gruppe von Enzymen, den Oxidoreduktasen, katalysiert . Die korrekten Bezeichnungen dieser Enzyme enthalten die Namen beider Substrate: Beispielsweise katalysiert die NADH-Ubichinon-Oxidoreduktase die Oxidation von NADH durch Coenzym Q. [ 48 ] Diese Enzyme werden jedoch auch als Dehydrogenasen oder Reduktasen bezeichnet, wobei die NADH-Ubichinon-Oxidoreduktase üblicherweise als NADH-Dehydrogenase oder manchmal auch als Coenzym-Q-Reduktase bezeichnet wird . [ 49 ]
Es gibt viele verschiedene Superfamilien von Enzymen, die NAD + /NADH binden. Eine der häufigsten Superfamilien umfasst ein Strukturmotiv, das als Rossmann-Faltung bekannt ist . [ 50 ] [ 51 ] Das Motiv ist nach Michael Rossmann benannt , der als erster Wissenschaftler die Häufigkeit dieser Struktur in Nukleotid-bindenden Proteinen erkannte. [ 52 ]
Ein Beispiel für ein NAD-bindendes bakterielles Enzym, das am Aminosäurestoffwechsel beteiligt ist und keine Rossmann-Faltung aufweist, findet sich in Pseudomonas syringae pv. tomato ( PDB : 2CWH ; InterPro : IPR003767 ). [ 53 ]

Wenn das Nicotinamidring des Coenzyms im aktiven Zentrum einer Oxidoreduktase gebunden ist, ist er so positioniert, dass er ein Hydridion vom anderen Substrat aufnehmen kann. Je nach Enzym befindet sich der Hydrid-Donor entweder oberhalb oder unterhalb der Ebene des planaren C4-Kohlenstoffatoms (siehe Abbildung). Oxidoreduktasen der Klasse A übertragen das Atom von oben, Enzyme der Klasse B von unten. Da das C4-Kohlenstoffatom, das den Wasserstoff aufnimmt, prochiral ist , kann dies in der Enzymkinetik genutzt werden , um Informationen über den Enzymmechanismus zu gewinnen. Dazu wird ein Enzym mit einem Substrat gemischt, in dem die Wasserstoffatome durch Deuteriumatome ersetzt sind. Das Enzym reduziert dann NAD<sup> +</sup> durch Übertragung von Deuterium anstelle von Wasserstoff. In diesem Fall kann das Enzym eines von zwei Stereoisomeren von NADH produzieren . [ 54 ]
Trotz der Ähnlichkeit der Bindungsmechanismen von Proteinen an die beiden Coenzyme weisen Enzyme fast immer eine hohe Spezifität für entweder NAD⁺ oder NADP⁺ auf . [ 55 ] Diese Spezifität spiegelt die unterschiedlichen metabolischen Funktionen der jeweiligen Coenzyme wider und beruht auf unterschiedlichen Aminosäureresten in den beiden Arten von Coenzym-Bindungstaschen. Beispielsweise bildet sich im aktiven Zentrum NADP-abhängiger Enzyme eine Ionenbindung zwischen einer basischen Aminosäureseitenkette und der sauren Phosphatgruppe von NADP⁺ . Im Gegensatz dazu ist bei NAD-abhängigen Enzymen die Ladung in dieser Tasche umgekehrt, wodurch die Bindung von NADP⁺ verhindert wird . Es gibt jedoch einige Ausnahmen von dieser Regel, und Enzyme wie Aldosereduktase , Glucose-6-phosphat-Dehydrogenase und Methylentetrahydrofolatreduktase können in einigen Spezies beide Coenzyme nutzen. [ 56 ]
Rolle im Redoxstoffwechsel
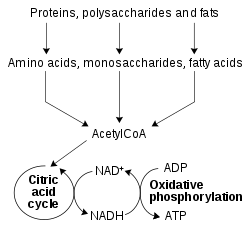
Die von Oxidoreduktasen katalysierten Redoxreaktionen sind in allen Bereichen des Stoffwechsels essenziell, insbesondere aber bei der Energiegewinnung aus Nährstoffen. Hierbei werden reduzierte Verbindungen wie Glucose und Fettsäuren oxidiert, wodurch Energie freigesetzt wird. Diese Energie wird im Rahmen der β-Oxidation , der Glykolyse und des Citratzyklus durch Reduktion zu NADH auf NAD + übertragen . In Eukaryoten werden die Elektronen des im Zytoplasma produzierten NADH mithilfe mitochondrialer Shuttles , wie dem Malat-Aspartat-Shuttle , in die Mitochondrien transportiert, um dort das mitochondriale NAD + zu reduzieren . [ 57 ] Das mitochondriale NADH wird anschließend in der Atmungskette oxidiert , welche Protonen durch die Membran pumpt und durch oxidative Phosphorylierung ATP generiert . [ 58 ] Diese Shuttle-Systeme erfüllen dieselbe Transportfunktion auch in Chloroplasten . [ 59 ]
Da sowohl die oxidierte als auch die reduzierte Form von Nicotinamidadenindinukleotid in diesen gekoppelten Reaktionsketten verwendet werden, hält die Zelle signifikante Konzentrationen von NAD⁺ und NADH aufrecht. Das hohe NAD⁺ / NADH-Verhältnis ermöglicht es diesem Coenzym, sowohl als Oxidationsmittel als auch als Reduktionsmittel zu wirken. [ 60 ] Im Gegensatz dazu ist die Hauptfunktion von NADPH die eines Reduktionsmittels im Anabolismus . Dieses Coenzym ist an Stoffwechselwegen wie der Fettsäuresynthese und der Photosynthese beteiligt . Da NADPH als starkes Reduktionsmittel für Redoxreaktionen benötigt wird, ist das NADP⁺ / NADPH-Verhältnis sehr niedrig. [ 60 ]
Obwohl NADH im Katabolismus eine wichtige Rolle spielt, wird es auch in anabolen Reaktionen wie der Gluconeogenese verwendet . [ 61 ] Dieser Bedarf an NADH im Anabolismus stellt ein Problem für Prokaryoten dar, die auf Nährstoffen wachsen, welche nur wenig Energie freisetzen. Beispielsweise oxidieren nitrifizierende Bakterien wie Nitrobacter Nitrit zu Nitrat, wodurch zwar genügend Energie freigesetzt wird, um Protonen zu pumpen und ATP zu generieren, jedoch nicht genug, um NADH direkt zu bilden. [ 62 ] Da NADH weiterhin für anabole Reaktionen benötigt wird, nutzen diese Bakterien eine Nitrit-Oxidoreduktase , um genügend protonenmotorische Kraft zu erzeugen , um einen Teil der Elektronentransportkette rückwärts laufen zu lassen und so NADH zu generieren. [ 63 ]
Nicht-Redox-Rollen
Das Coenzym NAD + wird auch bei ADP-Ribose-Transferreaktionen verbraucht. Beispielsweise fügen Enzyme, sogenannte ADP-Ribosyltransferasen, den ADP-Ribose-Anteil dieses Moleküls Proteinen hinzu – eine posttranslationale Modifikation, die als ADP-Ribosylierung bezeichnet wird . [ 64 ] Bei der ADP-Ribosylierung wird entweder ein einzelner ADP-Ribose-Anteil angehängt ( Mono-ADP-Ribosylierung ) oder ADP-Ribose in Form langer, verzweigter Ketten auf Proteine übertragen (Poly(ADP-Ribosyl)ierung) . [ 65 ] Die Mono-ADP-Ribosylierung wurde zunächst als Wirkmechanismus einer Gruppe bakterieller Toxine , insbesondere des Choleratoxins , identifiziert , ist aber auch an der normalen Zellsignalisierung beteiligt . [ 66 ] [ 67 ] Die Poly(ADP-Ribosylierung) wird durch Poly(ADP-Ribose)-Polymerasen katalysiert . [ 65 ] [ 68 ] Die Poly(ADP-Ribose)-Struktur ist an der Regulation verschiedener zellulärer Prozesse beteiligt und spielt insbesondere im Zellkern eine wichtige Rolle , beispielsweise bei der DNA-Reparatur und der Telomererhaltung . [ 68 ] Zusätzlich zu diesen intrazellulären Funktionen wurde kürzlich eine Gruppe extrazellulärer ADP-Ribosyltransferasen entdeckt, deren Funktionen jedoch noch weitgehend unbekannt sind. [ 69 ] NAD + kann auch als 5'-terminale Modifikation an zelluläre RNA angehängt werden . [ 70 ]

Eine weitere Funktion dieses Coenzyms in der Zellsignalisierung besteht darin, als Vorstufe von cyclischem ADP-Ribose zu dienen, das aus NAD + durch ADP-Ribosylcyclasen als Teil eines Second-Messenger-Systems gebildet wird . [ 71 ] Dieses Molekül wirkt in der Calcium-Signalisierung , indem es Calcium aus intrazellulären Speichern freisetzt. [ 72 ] Dies geschieht durch Bindung an und Öffnung einer Klasse von Calciumkanälen, den sogenannten Ryanodinrezeptoren , die sich in den Membranen von Organellen wie dem endoplasmatischen Retikulum befinden , und durch Induktion der Aktivierung des Transkriptionsfaktors NAFC3. [ 73 ]
NAD + wird auch von verschiedenen NAD+-verbrauchenden Enzymen wie CD38 , CD157 , PARPs und den NAD-abhängigen Deacetylasen ( Sirtuinen , z. B. Sir2 [ 74 ] ) verbraucht. [ 75 ] Diese Enzyme wirken, indem sie eine Acetylgruppe von ihrem Substratprotein auf den ADP-Ribose-Anteil von NAD+ übertragen ; dadurch wird das Coenzym gespalten und Nicotinamid sowie O-Acetyl-ADP-Ribose freigesetzt. Die Sirtuine scheinen hauptsächlich an der Regulation der Transkription durch Deacetylierung von Histonen und Veränderung der Nukleosomenstruktur beteiligt zu sein . [ 76 ] Allerdings können auch Nicht-Histon-Proteine durch Sirtuine deacetyliert werden. Diese Aktivitäten der Sirtuine sind aufgrund ihrer Bedeutung für die Regulation des Alterns besonders interessant . [ 77 ] [ 78 ]
Zu den weiteren NAD-abhängigen Enzymen gehören bakterielle DNA-Ligasen , die zwei DNA-Enden verknüpfen, indem sie NAD <sup>+</sup> als Substrat nutzen, um eine Adenosinmonophosphat- (AMP)-Einheit an das 5'-Phosphat eines DNA-Endes zu übertragen. Dieses Zwischenprodukt wird dann von der 3'-Hydroxylgruppe des anderen DNA-Endes angegriffen, wodurch eine neue Phosphodiesterbindung entsteht . [ 79 ] Dies steht im Gegensatz zu eukaryotischen DNA-Ligasen, die ATP zur Bildung des DNA-AMP-Zwischenprodukts verwenden. [ 80 ]
Li et al. fanden heraus, dass NAD + Protein-Protein-Interaktionen direkt reguliert. [ 81 ] Sie zeigen auch, dass eine Ursache für den altersbedingten Rückgang der DNA-Reparatur die verstärkte Bindung des Proteins DBC1 (Deleted in Breast Cancer 1) an PARP1 (Poly[ADP-Ribose]-Polymerase 1) sein könnte, wenn die NAD + -Konzentration im Alter sinkt. [ 81 ] Der Rückgang der zellulären NAD + -Konzentration im Alter trägt wahrscheinlich zum Alterungsprozess und zur Pathogenese chronischer Erkrankungen im Alter bei. [ 82 ] Die Evidenz für einen altersbedingten NAD + -Rückgang beim Menschen ist jedoch weiterhin uneinheitlich und kann vom untersuchten Gewebe oder biologischen Kompartiment abhängen. Neuere Studien berichten von stabilen NAD + -Konzentrationen im Vollblut über verschiedene Altersgruppen und Lebensstilinterventionen hinweg. [ 83 ] Daher wurde die Modulation des NAD + -Stoffwechsels im Zusammenhang mit Krebs, Strahlenreaktion und Alterung untersucht. [ 81 ]
Extrazelluläre Wirkungen von NAD +
In den letzten Jahren wurde NAD + auch als extrazelluläres Signalmolekül erkannt, das an der Zell-zu-Zell-Kommunikation beteiligt ist. [ 47 ] [ 84 ] [ 85 ] NAD + wird von Neuronen in Blutgefäßen [ 46 ] , der Harnblase [ 46 ] [ 86 ] , dem Dickdarm [ 87 ] [ 88 ] , von neurosekretorischen Zellen [ 89 ] und von Synaptosomen im Gehirn [ 90 ] freigesetzt und gilt als neuartiger Neurotransmitter , der Informationen von Nerven zu Effektorzellen in glattmuskulären Organen überträgt . [ 87 ] [ 88 ] In Pflanzen induziert das extrazelluläre Nicotinamidadenindinukleotid Resistenz gegen Pathogeninfektionen, und der erste extrazelluläre NAD-Rezeptor wurde identifiziert. [ 91 ] Weitere Studien sind erforderlich, um die zugrundeliegenden Mechanismen seiner extrazellulären Wirkungen und deren Bedeutung für die menschliche Gesundheit und Lebensprozesse in anderen Organismen zu bestimmen.
Klinische Bedeutung
Die Enzyme, die NAD + und NADH synthetisieren und verbrauchen, sind sowohl in der Pharmakologie als auch in der Forschung zu zukünftigen Therapien von Bedeutung. [ 92 ] NAD + wird in der Arzneimittelentwicklung auf drei Arten genutzt: als direktes Zielmolekül, durch die Entwicklung von Enzymhemmern oder -aktivatoren, die auf seiner Struktur basieren und die Aktivität NAD+-abhängiger Enzyme verändern, und durch den Versuch, die NAD + -Biosynthese zu hemmen . [ 93 ]
Da Krebszellen vermehrt Glykolyse nutzen und NAD die Glykolyse verstärkt, ist die Nicotinamid-Phosphoribosyltransferase (NAD-Recyclingweg) in Krebszellen häufig amplifiziert. [ 94 ] [ 95 ]
Es wurde hinsichtlich seines potenziellen Einsatzes in der Therapie neurodegenerativer Erkrankungen wie Alzheimer, Parkinson und Multipler Sklerose untersucht . [ 4 ] [ 78 ] [ 96 ] [ 75 ] Eine placebokontrollierte klinische Studie mit NADH (in der NADH-Vorstufen ausgeschlossen wurden) bei Parkinson-Patienten zeigte keine Wirkung. [ 97 ]
NAD + ist auch ein direktes Zielmolekül des Medikaments Isoniazid , das zur Behandlung von Tuberkulose , einer durch Mycobacterium tuberculosis verursachten Infektion, eingesetzt wird . Isoniazid ist ein Prodrug und wird nach dem Eindringen in die Bakterien durch ein Peroxidase- Enzym aktiviert, welches die Verbindung in eine freie Radikalform oxidiert . [ 98 ] Dieses Radikal reagiert dann mit NADH und bildet Addukte, die sehr potente Inhibitoren der Enzyme Enoyl-Acyl-Carrier-Protein-Reduktase [ 99 ] und Dihydrofolat -Reduktase [ 100 ] sind .
Da viele Oxidoreduktasen NAD⁺ und NADH als Substrate nutzen und diese über ein hochkonserviertes Strukturmotiv binden, ist die Vorstellung, dass NAD⁺-basierte Inhibitoren spezifisch für ein einzelnes Enzym sein könnten, überraschend. [ 101 ] Dies ist jedoch möglich: Beispielsweise hemmen Inhibitoren auf Basis von Mycophenolsäure und Tiazofurin die IMP-Dehydrogenase an der NAD⁺ - Bindungsstelle. Aufgrund der Bedeutung dieses Enzyms im Purinstoffwechsel könnten diese Verbindungen als Antikrebs-, antivirale oder immunsuppressive Medikamente eingesetzt werden . [ 101 ] [ 102 ] Andere Wirkstoffe sind keine Enzymhemmer, sondern aktivieren Enzyme des NAD⁺ - Stoffwechsels. Sirtuine stellen ein besonders interessantes Ziel für solche Wirkstoffe dar, da die Aktivierung dieser NAD-abhängigen Deacetylasen in einigen Tiermodellen die Lebensspanne verlängert. [ 103 ] Verbindungen wie Resveratrol erhöhen die Aktivität dieser Enzyme, was für deren Fähigkeit, die Alterung sowohl in Wirbeltier- [ 104 ] als auch in Wirbellosen -Modellorganismen zu verzögern, von Bedeutung sein könnte . [ 105 ] [ 106 ] In einem Experiment zeigte sich bei Mäusen, denen eine Woche lang NAD verabreicht wurde, eine verbesserte Kommunikation zwischen Zellkern und Mitochondrien. [ 107 ]
Aufgrund der Unterschiede in den Stoffwechselwegen der NAD + -Biosynthese zwischen verschiedenen Organismen, beispielsweise zwischen Bakterien und Menschen, stellt dieser Bereich des Stoffwechsels ein vielversprechendes Forschungsfeld für die Entwicklung neuer Antibiotika dar . [ 108 ] [ 109 ] So ist beispielsweise das Enzym Nicotinamidase , das Nicotinamid in Nicotinsäure umwandelt, ein Ziel für die Wirkstoffentwicklung, da dieses Enzym beim Menschen fehlt, aber in Hefen und Bakterien vorkommt. [ 41 ]
In der Bakteriologie wird NAD, manchmal auch Faktor V genannt, als Zusatz zu Kulturmedien für einige anspruchsvolle Bakterien verwendet. [ 110 ]
In Großbritannien wurden teure, nicht zugelassene NAD+-Infusionen als „klinisch erprobte“ und „wirksame“ Behandlungsmethode für Alkoholismus und Drogenmissbrauch beworben . NAD+ ist in Großbritannien weder für die medizinische Anwendung zugelassen noch lizenziert ; es liegen wahrscheinlich Verstöße gegen Werbe- und Arzneimittelvorschriften vor, und es gibt keinen Beweis für die Wirksamkeit der Behandlungen. Medizinische Experten bezeichnen dies als „völligen Unsinn“ … „Es ist ungetestet und nicht erwiesen. Wir wissen nichts über seine Wirksamkeit oder Langzeitsicherheit.“ Eine Studie vom November 2024, die 700 Mal zitiert wurde und behauptete, dass der NAD+-Spiegel bei Laborratten mit dem Alter abnimmt, wurde zurückgezogen, nachdem festgestellt wurde, dass die Bilder manipuliert waren. Die zugrundeliegenden Daten wurden den Herausgebern auf Anfrage nicht zur Verfügung gestellt. [ 111 ]
Geschichte
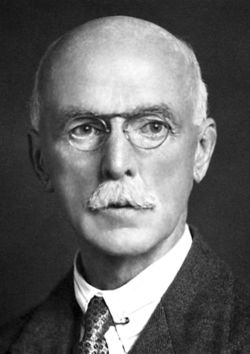
Das Coenzym NAD + wurde 1906 von den britischen Biochemikern Arthur Harden und William John Young entdeckt. [ 112 ] Sie beobachteten, dass die Zugabe von gekochtem und filtriertem Hefeextrakt die alkoholische Gärung in ungekochten Hefeextrakten stark beschleunigte . Den für diesen Effekt verantwortlichen, unbekannten Faktor nannten sie Coferment . Durch eine langwierige und aufwendige Reinigung aus Hefeextrakten wurde dieser hitzestabile Faktor von Hans von Euler-Chelpin als Nukleotidzuckerphosphat identifiziert . [ 113 ] 1936 wies der deutsche Wissenschaftler Otto Heinrich Warburg die Funktion des Nukleotid-Coenzyms beim Hydridtransfer nach und identifizierte den Nicotinamid-Anteil als Ort der Redoxreaktionen. [ 114 ]
Vitaminvorstufen von NAD + wurden erstmals 1938 identifiziert, als Conrad Elvehjem nachwies, dass die Leber in Form von Nicotinamid eine „Anti-Schwarzzungen“-Aktivität besitzt. [ 115 ] 1939 lieferte er dann den ersten überzeugenden Beweis dafür, dass Nicotinsäure zur Synthese von NAD + verwendet wird . [ 116 ] Anfang der 1940er Jahre entdeckte Arthur Kornberg als Erster ein Enzym im Biosyntheseweg. [ 117 ] 1949 bewiesen die amerikanischen Biochemiker Morris Friedkin und Albert L. Lehninger , dass NADH Stoffwechselwege wie den Citratzyklus mit der ATP-Synthese in der oxidativen Phosphorylierung verknüpft. [ 118 ] 1958 entdeckten Jack Preiss und Philip Handler die Zwischenprodukte und Enzyme, die an der Biosynthese von NAD + beteiligt sind . [ 119 ] [ 120 ] Die Wiederverwertungssynthese aus Nicotinsäure wird als Preiss-Handler-Weg bezeichnet. Im Jahr 2004 entdeckten Charles Brenner und Mitarbeiter den Nicotinamid-Ribosid- Kinase-Weg zu NAD + . [ 121 ]
Die nicht-redoxaktiven Funktionen von NAD(P) wurden später entdeckt. [ 3 ] Die erste identifizierte Funktion war die Verwendung von NAD + als ADP-Ribose-Donor in ADP-Ribosylierungsreaktionen, die Anfang der 1960er Jahre beobachtet wurde. [ 122 ] Studien in den 1980er und 1990er Jahren zeigten die Aktivitäten von NAD + und NADP + -Metaboliten in der Zellsignalisierung auf – wie beispielsweise die Wirkung von cyclischer ADP-Ribose , die 1987 entdeckt wurde. [ 123 ]
Der NAD + -Stoffwechsel blieb bis ins 21. Jahrhundert ein intensiv erforschtes Gebiet. Das Interesse daran verstärkte sich nach der Entdeckung der NAD + -abhängigen Protein-Deacetylasen, den sogenannten Sirtuinen , im Jahr 2000 durch Shin-ichiro Imai und Mitarbeiter im Labor von Leonard P. Guarente . [ 124 ] Im Jahr 2009 stellte Imai die „NAD-Welt“-Hypothese auf, der zufolge Sirtuin 1 und das primäre NAD + -synthetisierende Enzym Nicotinamid-Phosphoribosyltransferase (NAMPT) Schlüsselregulatoren des Alterns und der Langlebigkeit bei Säugetieren sind . [ 125 ] 2016 erweiterte Imai seine Hypothese zu „NAD-Welt 2.0“, die postuliert, dass extrazelluläres NAMPT aus dem Fettgewebe in Verbindung mit Myokinen aus Skelettmuskelzellen den NAD +-Spiegel im Hypothalamus (dem Kontrollzentrum) aufrechterhält . [ 126 ] Im Jahr 2018 wurde Napa Therapeutics gegründet, um auf der Grundlage der im Labor von Eric Verdin durchgeführten Forschung zum NAD-Stoffwechsel Medikamente gegen ein neuartiges, mit dem Altern zusammenhängendes Ziel zu entwickeln . [ 127 ]
Siehe auch
Referenzen
- ^ Nelson, David L.; Cox, Michael M. (2005). Grundlagen der Biochemie (4. Aufl.). New York: W. H. Freeman. ISBN 0-7167-4339-6Die
- Die Nicotinamidgruppe kann in zwei Orientierungen an das anomere Ribose-Kohlenstoffatom gebunden sein. Aufgrund dieser zwei möglichen Strukturen kann NAD als eines von zwei Diastereomeren vorliegen . In der Natur kommtdas β-Nicotinamid-Diastereomer von NAD<sup> +</sup> vor.
- Pollak N , Dölle C, Ziegler M (2007). „ Die Kraft zu reduzieren: Pyridinnukleotide – kleine Moleküle mit vielfältigen Funktionen“ . Biochem . J. 402 ( 2 ): 205–218 . doi : 10.1042/BJ20061638 . PMC 1798440. PMID 17295611 .
- ^ a b c d e f Belenky, Peter; Bogan, Katrina L.; Brenner, Charles (Januar 2007). „NAD+-Stoffwechsel in Gesundheit und Krankheit“. Trends in Biochemical Sciences . 32 (1): 12–19 . doi : 10.1016/j.tibs.2006.11.006 . PMID 17161604 .
- Unden G, Bongaerts J (1997). „Alternative Atmungswege von Escherichia coli : Energetik und Transkriptionsregulation in Reaktion auf Elektronenakzeptoren“ . Biochim. Biophys. Acta . 1320 (3): 217–234 . doi : 10.1016/S0005-2728(97)00034-0 . PMID 9230919 .
- ^ Windholz, Martha (1983). The Merck Index: an encyclopedia of chemicals, drugs, and biologicals (10. Aufl.). Rahway , NJ: Merck. S. 909. ISBN 978-0-911910-27-8Die
- ^ Biellmann JF, Lapinte C, Haid E, Weimann G (1979). „Struktur des aus Coenzym generierten Lactatdehydrogenase-Inhibitors“. Biochemistry . 18 (7): 1212–1217 . doi : 10.1021/bi00574a015 . PMID 218616 .
- ^ a b Dawson, R. Ben (1985). Daten für die biochemische Forschung (3. Aufl.). Oxford: Clarendon Press. S. 122. ISBN 978-0-19-855358-8Die
- Blacker , Thomas S.; Mann, Zoe F.; Gale, Jonathan E.; Ziegler, Mathias; Bain, Angus J.; Szabadkai, Gyorgy; Duchen, Michael R. (29. Mai 2014). „Trennung der NADH- und NADPH-Fluoreszenz in lebenden Zellen und Geweben mittels FLIM“ . Nature Communications . 5 (1). Springer Science and Business Media LLC: 3936. Bibcode : 2014NatCo ...5.3936B . doi : 10.1038/ncomms4936 . ISSN 2041-1723 . PMC 4046109. PMID 24874098 .
- ^ a b Lakowicz JR, Szmacinski H, Nowaczyk K, Johnson ML (1992). „Fluoreszenzlebensdauer-Bildgebung von freiem und protein-gebundenem NADH“ . Proc . Natl. Acad. Sci. USA . 89 (4): 1271–1275 . Bibcode : 1992PNAS...89.1271L . doi : 10.1073/pnas.89.4.1271 . PMC 48431. PMID 1741380 .
- ^ Jameson DM, Thomas V, Zhou DM (1989). „Zeitaufgelöste Fluoreszenzstudien an an mitochondriale Malatdehydrogenase gebundenem NADH“. Biochim. Biophys. Acta . 994 (2): 187–190 . doi : 10.1016/0167-4838(89)90159-3 . PMID 2910350 .
- ^ Kasimova MR, Grigiene J, Krab K, Hagedorn PH, Flyvbjerg H, Andersen PE, Møller IM (2006). „ Die freie NADH-Konzentration in Pflanzenmitochondrien bleibt unter verschiedenen Stoffwechselbedingungen konstant“ . Plant Cell . 18 (3): 688–698 . Bibcode : 2006PlanC..18..688K . doi : 10.1105/tpc.105.039354 . PMC 1383643. PMID 16461578 .
- ^ Chan, PC; Kesner, L (September 1980). „Kupfer(II)-Komplex-katalysierte Oxidation von NADH durch Wasserstoffperoxid“. Biol Trace Elem Res . 2 (3): 159–174 . Bibcode : 1980BTER....2..159C . doi : 10.1007/BF02785352 . PMID 24271266. S2CID 24264851 .
- ^ Solier, Stephanie; Müller, Sebastian; Tatiana, Cañeque; Antoine, Versini; Arnaud, Mansart; Fabien, Sindikubwabo; Leeroy, Baron; Laila, Emam; Pierre, Gestraud; G. Dan, Pantoș; Vincent, Gandon; Christine, Gaillet; Ting-Di, Wu; Florent, Dingli; Damarys, Löw; Sylvain, Baulande; Sylvère, Durand; Valentin, Sencio; Cyril, Robil; François, Trottein; David, Pericat; Emmanuelle, Näser; Céline, Cougoule; Etienne, Meunier; Anne-Laure, Bègue; Hélène, Lachs; Nicolas, Manel; Alain, Puisieux; Sarah, Watson; Mark A., Dawson; Nicolas, Diener; Guido, Kroemer; Djillali, Annane; Raphaël, Rodriguez (2023). „ Ein medikamentös beeinflussbarer Kupfer-Signalweg, der Entzündungen auslöst“ . Nature . 617 ( 7960): 386–394 . Bibcode : 2023Natur.617..386S . doi : 10.1038/s41586-023-06017-4 . PMC 10131557. PMID 37100912. S2CID 258353949 .
- Reiss PD, Zuurendonk PF, Veech RL (1984). „Messung von Purinen, Pyrimidinen und anderen Nukleotiden im Gewebe mittels radialer Kompressions-Hochleistungsflüssigkeitschromatographie“. Anal. Biochem . 140 (1): 162–71 . doi : 10.1016/0003-2697(84)90148-9 . PMID 6486402 .
- ^ Yamada K, Hara N, Shibata T, Osago H, Tsuchiya M (2006). „Die simultane Messung von Nicotinamidadenindinukleotid und verwandten Verbindungen mittels Flüssigkeitschromatographie/Elektrospray-Ionisations-Tandem-Massenspektrometrie“. Anal. Biochem . 352 (2): 282–5 . doi : 10.1016/j.ab.2006.02.017 . PMID 16574057 .
- ^ Yang H, Yang T, Baur JA, Perez E, Matsui T, Carmona JJ, Lamming DW, Souza-Pinto NC, Bohr VA, Rosenzweig A, de Cabo R, Sauve AA, Sinclair DA (2007). „Nährstoffempfindliche mitochondriale NAD + -Spiegel bestimmen das Zellüberleben“ . Zelle . 130 (6): 1095– 107. doi : 10.1016/j.cell.2007.07.035 . PMC 3366687 . PMID 17889652 .
- ^ Belenky P, Racette FG, Bogan KL, McClure JM, Smith JS, Brenner C (2007). „Nicotinamidribosid fördert die Sir2-Stilllegung und verlängert die Lebensspanne über die Nrk- und Urh1/Pnp1/Meu1-Signalwege zu NAD + “ . Cell . 129 ( 3): 473–84 . doi : 10.1016/j.cell.2007.03.024 . PMID 17482543. S2CID 4661723 .
- ^ Blinova K, Carroll S, Bose S, Smirnov AV, Harvey JJ, Knutson JR, Balaban RS (2005). „Verteilung der Fluoreszenzlebensdauern von mitochondrialem NADH: Steady-State-Kinetik von Matrix-NADH-Wechselwirkungen“. Biochemistry . 44 (7): 2585–94 . doi : 10.1021/bi0485124 . PMID 15709771 .
- ^ Hopp A, Grüter P , Hottiger MO (2019). „Regulation des Glukosestoffwechsels durch NAD+ und ADP-Ribosylierung“ . Cells . 8 (8): 890. doi : 10.3390/cells8080890 . PMC 6721828. PMID 31412683 .
- ^ Todisco S, Agrimi G, Castegna A, Palmieri F (2006). „Identifizierung des mitochondrialen NAD + -Transporters in Saccharomyces cerevisiae “ . J. Biol. Chem . 281 (3): 1524–31 . Bibcode : 2006JBiCh.281.1524T . doi : 10.1074/jbc.M510425200 . PMID 16291748 .
- ^ Srivastava S (2016). „Neue therapeutische Rollen des NAD(+) - Stoffwechsels bei mitochondrialen und altersbedingten Erkrankungen“ . Clinical and Translational Medicine . 5 (1) e25: 25. doi : 10.1186/s40169-016-0104-7 . PMC 4963347. PMID 27465020 .
- ^ Zhang, Ning; Sauve, Anthony A. (2018). „Regulatorische Effekte von NAD+-Stoffwechselwegen auf die Sirtuinaktivität“. Sirtuine in Gesundheit und Krankheit . Fortschritte in der Molekularbiologie und Translationswissenschaft. Band 154. S. 71–104 . doi : 10.1016/bs.pmbts.2017.11.012 . ISBN 978-0-12-812261-7PMID 29413178 .
- ^ Schafer FQ, Buettner GR (2001). „Redoxumgebung der Zelle, betrachtet durch den Redoxzustand des Glutathiondisulfid/Glutathion-Paares“. Free Radic Biol Med . 30 (11): 1191–212 . doi : 10.1016/S0891-5849(01)00480-4 . PMID 11368918 .
- ^ Williamson DH, Lund P, Krebs HA (1967). „Der Redoxzustand von freiem Nicotinamidadenindinukleotid im Zytoplasma und in den Mitochondrien der Rattenleber“ . Biochem . J. 103 ( 2): 514–27 . doi : 10.1042/bj1030514 . PMC 1270436. PMID 4291787 .
- ^ Zhang Q, Piston DW, Goodman RH (2002). „Regulation der Corepressorfunktion durch nukleäres NADH“ . Science . 295 (5561): 1895–7 . doi : 10.1126/science.1069300 . PMID 11847309. S2CID 31268989 .
- ^ Lin SJ, Guarente L (April 2003). „Nicotinamidadenindinukleotid, ein metabolischer Regulator der Transkription, Langlebigkeit und Krankheit“. Curr. Opin. Cell Biol . 15 (2): 241–6 . doi : 10.1016/S0955-0674(03)00006-1 . PMID 12648681 .
- ^ Veech RL, Eggleston LV, Krebs HA (1969). „Der Redoxzustand von freiem Nicotinamid-Adenin-Dinukleotidphosphat im Zytoplasma der Rattenleber“ . Biochem . J. 115 ( 4): 609–19 . doi : 10.1042/bj1150609a . PMC 1185185. PMID 4391039 .
- ^ McReynolds MR, Chellappa K, Baur JA (2020). „Altersbedingter Rückgang von NAD+“ . Experimental Gerontology . 134 110888. doi : 10.1016/j.exger.2020.110888 . PMC 7442590. PMID 32097708 .
- ^ Katoh A, Uenohara K, Akita M, Hashimoto T (2006). „Frühe Schritte der NAD-Biosynthese in Arabidopsis beginnen mit Aspartat und finden im Plastiden statt“ . Plant Physiol . 141 (3): 851–857 . doi : 10.1104/pp.106.081091 . PMC 1489895. PMID 16698895 .
- ^ Foster JW, Moat AG (1. März 1980). „Nicotinamidadenindinukleotid-Biosynthese und Pyridinnukleotid-Zyklus-Metabolismus in mikrobiellen Systemen“ . Microbiol . Rev. 44 ( 1): 83–105 . doi : 10.1128/MMBR.44.1.83-105.1980 . PMC 373235. PMID 6997723 .
- ^ Magni G, Orsomando G, Raffaelli N (2006). „Strukturelle und funktionelle Eigenschaften der NAD-Kinase, eines Schlüsselenzyms der NADP-Biosynthese“. Mini Reviews in Medicinal Chemistry . 6 (7): 739–746 . doi : 10.2174/138955706777698688 . PMID 16842123 .
- Sakuraba H, Kawakami R, Ohshima T (2005). „Erste archäale anorganische Polyphosphat/ATP-abhängige NAD-Kinase aus dem hyperthermophilen Archaeon Pyrococcus horikoshii: Klonierung, Expression und Charakterisierung“ . Appl . Environ. Microbiol . 71 (8): 4352–4358 . Bibcode : 2005ApEnM..71.4352S . doi : 10.1128/AEM.71.8.4352-4358.2005 . PMC 1183369. PMID 16085824 .
- Raffaelli N, Finaurini L, Mazzola F, Pucci L, Sorci L, Amici A, Magni G (2004). „Charakterisierung der NAD-Kinase von Mycobacterium tuberculosis: Funktionelle Analyse des vollständigen Enzyms mittels ortsgerichteter Mutagenese“. Biochemistry . 43 (23): 7610–7617 . doi : 10.1021/bi049650w . PMID 15182203 .
- ^ Henderson LM (1983). "Niacin". Annu. Rev. Nutr . 3 : 289–307 . doi : 10.1146/annurev.nu.03.070183.001445 . PMID 6357238 .
- ^ a b Rajman L, Chwalek K, Sinclair DA (2018). „Therapeutisches Potenzial von NAD-steigernden Molekülen: In-vivo-Befunde“ . Cell Metabolism . 27 (3): 529–547 . doi : 10.1016/j.cmet.2018.02.011 . PMC 6342515. PMID 29514064 .
- ^ „Was ist NMN?“ . www.nmn.com . Abgerufen am 8. Januar 2021 .
- Anderson RM, Bitterman KJ, Wood JG, Medvedik O, Cohen H, Lin SS, Manchester JK, Gordon JI, Sinclair DA (2002). „Manipulation eines nukleären NAD + -Wiederverwertungsweges verzögert das Altern, ohne den NAD + -Spiegel im Steady-State zu verändern . “ J. Biol. Chem . 277 (21): 18881–18890 . doi : 10.1074/jbc.M111773200 . PMC 3745358. PMID 11884393 .
- ^ Billington RA, Travelli C, Ercolano E, Galli U, Roman CB, Grolla AA, Canonico PL, Condorelli F, Genazzani AA (2008). „Charakterisierung der NAD-Aufnahme in Säugetierzellen“ . J. Biol. Chem . 283 (10): 6367–6374 . doi : 10.1074/jbc.M706204200 . PMID 18180302 .
- ^ Trammell SA, Schmidt MS, Weidemann BJ, Redpath P, Jaksch F, Dellinger RW, Li Z, Abel ED, Migaud ME, Brenner C (2016). „Nicotinamidribosid ist einzigartig und oral bioverfügbar bei Mäusen und Menschen“ . Nature Communications . 7 12948. Bibcode : 2016NatCo...712948T . doi : 10.1038/ ncomms12948 . PMC 5062546. PMID 27721479 .
- ^ a b Rongvaux A, Andris F, Van Gool F, Leo O (2003). „Reconstructing eukaryotic NAD metabolism“. BioEssays . 25 (7): 683–690 . Bibcode : 2003BiEss..25..683R . doi : 10.1002/bies.10297 . PMID 12815723 .
- ^ Ma B, Pan SJ, Zupancic ML, Cormack BP (2007). „Assimilation von NAD + -Vorstufen in Candida glabrata “ . Mol. Microbiol . 66 (1): 14–25 . doi : 10.1111/j.1365-2958.2007.05886.x . PMID 17725566. S2CID 22282128 .
- ^ Reidl J, Schlör S, Kraiss A, Schmidt-Brauns J, Kemmer G, Soleva E (2000). „NADP- und NAD-Nutzung bei Haemophilus influenzae “. Mol. Mikrobiol . 35 (6): 1573–1581 . doi : 10.1046/j.1365-2958.2000.01829.x . PMID 10760156 . S2CID 29776509 .
- ^ Gerdes SY, Scholle MD, D'Souza M, Bernal A, Baev MV, Farrell M, Kurnasov OV, Daugherty MD, Mseeh F, Polanuyer BM, Campbell JW, Anantha S, Shatalin KY, Chowdhury SA, Fonstein MY, Osterman AL (2002). „ Vom genetischen Footprinting zu antimikrobiellen Wirkstoffzielen: Beispiele aus Cofaktor-Biosynthesewegen“ . J. Bacteriol . 184 (16): 4555–4572 . doi : 10.1128/JB.184.16.4555-4572.2002 . PMC 135229. PMID 12142426 .
- ^ Senkovich O, Speed H, Grigorian A, et al. (2005). „Kristallisation dreier wichtiger glykolytischer Enzyme des opportunistischen Krankheitserregers Cryptosporidium parvum “. Biochim. Biophys. Acta . 1750 (2): 166–72 . doi : 10.1016/j.bbapap.2005.04.009 . PMID 15953771 .
- ^ a b c Smyth LM, Bobalova J, Mendoza MG, Lew C, Mutafova-Yambolieva VN (2004). „Freisetzung von β-Nicotinamidadenindinukleotid nach Stimulation postganglionärer Nervenendigungen in Blutgefäßen und Harnblase“ . J Biol Chem . 279 (47): 48893–903 . doi : 10.1074/jbc.M407266200 . PMID 15364945 .
- ^ a b c Billington RA, Bruzzone S, De Flora A, Genazzani AA, Koch-Nolte F, Ziegler M, Zocchi E (2006). „Emerging functions of extracellular pyridine nucleotides“ . Mol. Med . 12 ( 11–12 ) : 324–7 . doi : 10.2119/2006-00075.Billington . PMC 1829198. PMID 17380199 .
- ^ „Enzymnomenklatur, Empfehlungen für Enzymnamen des Nomenklaturkomitees der Internationalen Union für Biochemie und Molekularbiologie“ . Archiviert vom Original am 5. Dezember 2007. Abgerufen am 6. Dezember 2007 .
- ^ „NiceZyme View of ENZYME: EC 1.6.5.3“ . Expasy . Abgerufen am 16. Dezember 2007 .
- ^ Hanukoglu I (2015). „ Proteopedia: Rossmann-Faltung: Eine β-α-β-Faltung an Dinukleotid-Bindungsstellen“ . Biochem Mol Biol Educ . 43 (3): 206–209 . doi : 10.1002/bmb.20849 . PMID 25704928. S2CID 11857160 .
- ^ Lesk AM (1995). „NAD-Bindungsdomänen von Dehydrogenasen“. Curr. Opin. Struct. Biol . 5 (6): 775–83 . doi : 10.1016/0959-440X(95)80010-7 . PMID 8749365 .
- ^ Rao ST, Rossmann MG (1973). „Vergleich von Supersekundärstrukturen in Proteinen“. J Mol Biol . 76 (2): 241–56 . Bibcode : 1973JMBio..76..241R . doi : 10.1016/0022-2836(73)90388-4 . PMID 4737475 .
- ^ Goto M, Muramatsu H, Mihara H, Kurihara T, Esaki N, Omi R, Miyahara I, Hirotsu K (2005). „Kristallstrukturen der Δ1-Piperidein-2-carboxylat/Δ1-Pyrrolin-2-carboxylat-Reduktase, die zu einer neuen Familie NAD(P)H-abhängiger Oxidoreduktasen gehört: Konformationsänderung, Substraterkennung und Stereochemie der Reaktion“ . J. Biol. Chem . 280 (49): 40875–84 . doi : 10.1074/jbc.M507399200 . PMID 16192274 .
- ^ a b Bellamacina CR (1. September 1996). „Das Nicotinamid-Dinukleotid-Bindungsmotiv: Ein Vergleich von Nukleotid-bindenden Proteinen“ . FASEB J. 10 ( 11): 1257–69 . doi : 10.1096/fasebj.10.11.8836039 . PMID 8836039. S2CID 24189316 .
- ^ Carugo O, Argos P (1997). „NADP-abhängige Enzyme. I: Konservierte Stereochemie der Cofaktorbindung“. Proteins . 28 (1): 10–28 . doi : 10.1002/(SICI)1097-0134(199705)28:1<10::AID-PROT2>3.0.CO;2- N . PMID 9144787. S2CID 23969986 .
- ^ Vickers TJ, Orsomando G, de la Garza RD, Scott DA, Kang SO, Hanson AD, Beverley SM (2006). „Biochemische und genetische Analyse der Methylentetrahydrofolatreduktase im Stoffwechsel und der Virulenz von Leishmania“ . J. Biol. Chem . 281 (50): 38150–8 . doi : 10.1074/jbc.M608387200 . hdl : 11566/34789 . PMID 17032644 .
- ^ Bakker BM, Overkamp KM, Kötter P, Luttik MA, Pronk JT (2001). „Stöchiometrie und Kompartimentierung des NADH-Stoffwechsels in Saccharomyces cerevisiae “ . FEMS Microbiol. Rev. 25 ( 1): 15–37 . Bibcode : 2001FEMMR..25...15B . doi : 10.1111/j.1574-6976.2001.tb00570.x . PMID 11152939 .
- ^ Rich, PR (1. Dezember 2003). „Die molekulare Maschinerie der Keilin - Atmungskette“. Biochemical Society Transactions . 31 (6): 1095–1105 . doi : 10.1042/bst0311095 . PMID 14641005. S2CID 32361233 .
- ^ Heineke D, Riens B, Grosse H, Hoferichter P, Peter U, Flügge UI, Heldt HW (1991). „Redoxtransfer über die innere Chloroplastenhüllenmembran“ . Pflanzenphysiologie . 95 (4): 1131–1137 . doi : 10.1104/pp.95.4.1131 . PMC 1077662 . PMID 16668101 .
- ^ a b Nicholls DG; Ferguson SJ (2002). Bioenergetics 3 (1. Aufl.). Academic Press. ISBN 978-0-12-518121-1Die
- Sistare , FD; Haynes, RC (Oktober 1985). „Die Wechselwirkung zwischen dem Redoxpotential des cytosolischen Pyridinnukleotids und der Gluconeogenese aus Laktat/Pyruvat in isolierten Rattenhepatozyten. Implikationen für Untersuchungen der Hormonwirkung“ . Journal of Biological Chemistry . 260 (23): 12748–12753 . doi : 10.1016/S0021-9258(17)38940-8 . PMID 4044607 .
- ^ Freitag A, Bock E (1990). „Energieerhaltung in Nitrobacter “ . FEMS Microbiology Letters . 66 ( 1–3 ): 157–62 . Bibcode : 1990FEMML..66..157F . doi : 10.1111/j.1574-6968.1990.tb03989.x .
- ^ Starkenburg SR, Chain PS, Sayavedra-Soto LA, Hauser L, Land ML, Larimer FW, Malfatti SA, Klotz MG, Bottomley PJ, Arp DJ, Hickey WJ (2006). „Genomsequenz des chemolithoautotrophen nitritoxidierenden Bakteriums Nitrobacter winogradskyi Nb-255“ . Appl. Environ. Microbiol . 72 (3): 2050–63 . Bibcode : 2006ApEnM..72.2050S . doi : 10.1128 / AEM.72.3.2050-2063.2006 . PMC 1393235. PMID 16517654 .
- ^ Ziegler M (2000). „Neue Funktionen eines lange bekannten Moleküls. Neue Rollen von NAD in der zellulären Signalübertragung“ . Eur. J. Biochem . 267 (6): 1550–64 . doi : 10.1046/j.1432-1327.2000.01187.x . PMID 10712584 .
- ^ a b Diefenbach J, Bürkle A (2005). „Einführung in den Poly(ADP-Ribose)-Stoffwechsel“ . Cell. Mol. Life Sci . 62 ( 7–8 ): 721–30 . doi : 10.1007/ s00018-004-4503-3 . PMC 11924567. PMID 15868397 .
- ^ Berger F, Ramírez-Hernández MH, Ziegler M (2004). „Das neue Leben eines Hundertjährigen: Signalfunktionen von NAD(P)“. Trends Biochem. Wissenschaft . 29 (3): 111– 8. doi : 10.1016/j.tibs.2004.01.007 . PMID 15003268 . S2CID 8820773 .
- ^ Corda D, Di Girolamo M (2003). „Übersichtsartikel eines neuen EMBO-Mitglieds: Funktionelle Aspekte der Mono-ADP-Ribosylierung von Proteinen“ . EMBO J. 22 ( 9): 1953–8 . doi : 10.1093/emboj/cdg209 . PMC 156081. PMID 12727863 .
- ^ a b Bürkle A (2005). „Poly(ADP-Ribose). Der komplexeste Metabolit von NAD + “ . FEBS J . 272 (18): 4576– 89. doi : 10.1111/j.1742-4658.2005.04864.x . PMID 16156780 . S2CID 22975714 .
- ^ Seman M, Adriouch S, Haag F, Koch-Nolte F (2004). „Ecto-ADP-Ribosyltransferasen (ARTs): Neue Akteure in der Zellkommunikation und Signalübertragung“. Curr. Med. Chem . 11 (7): 857–72 . doi : 10.2174/0929867043455611 . PMID 15078170 .
- ^ Chen YG, Kowtoniuk WE, Agarwal I, Shen Y, Liu DR (Dezember 2009). „LC/MS-Analyse zellulärer RNA zeigt NAD-gebundene RNA“ . Nat Chem Biol . 5 (12): 879–881 . doi : 10.1038/nchembio.235 . PMC 2842606. PMID 19820715 .
- ^ Guse AH (2004). „Biochemie, Biologie und Pharmakologie von cyclischem Adenosindiphosphoribose (cADPR)“. Curr. Med. Chem . 11 (7): 847–55 . doi : 10.2174/0929867043455602 . PMID 15078169 .
- ^ Guse AH (2004). „Regulation der Kalziumsignalübertragung durch den sekundären Botenstoff cyclisches Adenosindiphosphoribose (cADPR)“. Curr. Mol. Med . 4 (3): 239–48 . doi : 10.2174/1566524043360771 . PMID 15101682 .
- ^ Guse AH (2005). „ Second messenger function and the structure-activity relationship of cyclic adenosin diphosphoribose (cADPR)“ . FEBS J. 272 ( 18): 4590–7 . doi : 10.1111/j.1742-4658.2005.04863.x . PMID 16156781. S2CID 21509962 .
- ^ North BJ, Verdin E (2004). „Sirtuine: Sir2-verwandte NAD -abhängige Proteindeacetylasen“ . Genome Biol . 5 (5): 224. doi : 10.1186/gb-2004-5-5-224 . PMC 416462. PMID 15128440 .
- ^ a b Verdin, Eric (4. Dezember 2015). „NAD⁺ in Alterung, Stoffwechsel und Neurodegeneration“. Science . 350 (6265): 1208–1213 . Bibcode : 2015Sci...350.1208V . doi : 10.1126 / science.aac4854 . ISSN 1095-9203 . PMID 26785480. S2CID 27313960 .
- ^ Blander, Gil; Guarente, Leonard (Juni 2004). „Die Sir2 - Familie der Proteindeacetylasen“. Annual Review of Biochemistry . 73 (1): 417–435 . Bibcode : 2004ARBio..73..417B . doi : 10.1146/annurev.biochem.73.011303.073651 . PMID 15189148. S2CID 27494475 .
- Trapp J, Jung M (2006). „Die Rolle NAD+-abhängiger Histon-Deacetylasen (Sirtuine) beim Altern“. Curr Drug Targets . 7 (11): 1553–60 . doi : 10.2174/1389450110607011553 . PMID 17100594 .
- ^ a b Meyer, Tom; Shimon, Dor; Youssef, Sawsan; Yankovitz, Gal; Tessler, Adi; Chernobylsky, Tom; Gaoni-Yogev, Anat; Perelroizen, Rita; Budick-Harmelin, Noga; Steinman, Lawrence; Mayo, Lior (30. August 2022). „NAD+-Metabolismus treibt die proinflammatorische Reprogrammierung von Astrozyten bei Autoimmunerkrankungen des zentralen Nervensystems an“ . Proceedings of the National Academy of Sciences of the United States of America . 119 (35) e2211310119. Bibcode : 2022PNAS..11911310M . doi : 10.1073/pnas.2211310119 . ISSN 1091-6490 . PMC 9436380 . PMID 35994674 .
- ^ Wilkinson A, Day J, Bowater R (2001). „Bakterielle DNA-Ligasen“ . Mol . Microbiol . 40 (6): 1241–8 . doi : 10.1046/j.1365-2958.2001.02479.x . PMID 11442824. S2CID 19909818 .
- ^ Schär P, Herrmann G, Daly G, Lindahl T (1997). „Eine neu identifizierte DNA-Ligase von Saccharomyces cerevisiae, die an der RAD52-unabhängigen Reparatur von DNA-Doppelstrangbrüchen beteiligt ist“ . Genes & Development . 11 (15): 1912–24 . doi : 10.1101/gad.11.15.1912 . PMC 316416. PMID 9271115 .
- Li , Jun; Bonkowski, Michael S.; Moniot, Sébastien; Zhang, Dapeng; Hubbard, Basil P.; Ling, Alvin JY; Rajman, Luis A.; Qin, Bo; Lou, Zhenkun; Gorbunova, Vera; Aravind, L.; Steegborn, Clemens; Sinclair, David A. (23. März 2017). „ Eine konservierte NAD-Bindungstasche, die Protein-Protein-Interaktionen während des Alterns reguliert“ . Science . 355 ( 6331): 1312–1317 . Bibcode : 2017Sci...355.1312L . doi : 10.1126/science.aad8242 . PMC 5456119. PMID 28336669 .
- ^ Verdin E. NAD⁺ in Alterung, Stoffwechsel und Neurodegeneration. Science. 2015 Dez 4;350(6265):1208-13. doi: 10.1126/science.aac4854. PMID 26785480
- ^ Trętowicz, Maria M. (2026). „Die NAD⁺-Konzentration im menschlichen Vollblut variiert weder mit dem Alter noch mit Lebensstilinterventionen“. Nature Metabolism . doi : 10.1038/s42255-026-01537-5 .
- ^ Ziegler M, Niere M (2004). „NAD + surfaces again“ . Biochem. J. 382 ( Pt 3) E5 : e5–6. doi : 10.1042/BJ20041217 . PMC 1133982. PMID 15352307 .
- ^ Koch-Nolte F, Fischer S, Haag F, Ziegler M (2011). „Kompartimentierung der NAD + -abhängigen Signalübertragung“ . FEBS Lett . 585 (11): 1651–6 . Bibcode : 2011FEBSL.585.1651K . doi : 10.1016/j.febslet.2011.03.045 . PMID 21443875. S2CID 4333147 .
- ^ Breen, Leanne T.; Smyth, Lisa M.; Yamboliev, Ilia A.; Mutafova-Yambolieva, Violeta N. (Februar 2006). „β-NAD ist ein neuartiges Nukleotid, das bei Stimulation von Nervenendigungen im Detrusormuskel der menschlichen Harnblase freigesetzt wird“. American Journal of Physiology. Renal Physiology . 290 (2): F486– F495 . doi : 10.1152/ajprenal.00314.2005 . PMID 16189287. S2CID 11400206 .
- ^ a b Mutafova-Yambolieva VN, Hwang SJ, Hao X, Chen H, Zhu MX, Wood JD, Ward SM, Sanders KM (2007). „Beta-Nicotinamidadenindinukleotid ist ein inhibitorischer Neurotransmitter in der glatten Muskulatur der Eingeweide“ . Proc. Natl. Acad. Sci. USA . 104 (41): 16359–64 . Bibcode : 2007PNAS..10416359M . doi : 10.1073/ pnas.0705510104 . PMC 2042211. PMID 17913880 .
- ^ a b Hwang SJ, Durnin L, Dwyer L, Rhee PL, Ward SM, Koh SD, Sanders KM, Mutafova-Yambolieva VN (2011). „β-Nicotinamidadenindinukleotid ist ein enterischer inhibitorischer Neurotransmitter im Dickdarm von Menschen und nicht-menschlichen Primaten“ . Gastroenterology . 140 ( 2): 608–617.e6. doi : 10.1053/j.gastro.2010.09.039 . PMC 3031738. PMID 20875415 .
- ^ Yamboliev IA, Smyth LM, Durnin L, Dai Y, Mutafova-Yambolieva VN (2009). „Speicherung und Sekretion von β-NAD, ATP und Dopamin in NGF-differenzierten PC12-Zellen des Ratten-Phäochromozytoms“ . Eur. J. Neurosci . 30 (5): 756–68 . doi : 10.1111 / j.1460-9568.2009.06869.x . PMC 2774892. PMID 19712094 .
- ^ Durnin L, Dai Y, Aiba I, Shuttleworth CW, Yamboliev IA, Mutafova-Yambolieva VN (2012). „ Freisetzung, neuronale Effekte und Abbau von extrazellulärem β-Nicotinamidadenindinukleotid (β-NAD + ) im Rattenhirn“ . Eur. J. Neurosci . 35 (3): 423–35 . doi : 10.1111/j.1460-9568.2011.07957.x . PMC 3270379. PMID 22276961 .
- ^ Wang C, Zhou M, Zhang X, Yao J, Zhang Y, Mou Z (2017). „ Eine Lektinrezeptorkinase als potenzieller Sensor für extrazelluläres Nicotinamidadenindinukleotid in Arabidopsis thaliana“ . eLife . 6 e25474. doi : 10.7554/eLife.25474 . PMC 5560858. PMID 28722654 .
- ^ Sauve AA (März 2008). „NAD + und Vitamin B3: vom Metabolismus zur Therapie“. The Journal of Pharmacology and Experimental Therapeutics . 324 (3): 883–893 . doi : 10.1124 / jpet.107.120758 . PMID 18165311. S2CID 875753 .
- ^ Khan JA, Forouhar F, Tao X, Tong L (2007). „Nicotinamidadenindinukleotid-Metabolismus als attraktives Ziel für die Arzneimittelforschung“. Expert Opin. Ther. Targets . 11 (5): 695–705 . doi : 10.1517/14728222.11.5.695 . PMID 17465726. S2CID 6490887 .
- ^ Yaku K, Okabe K , Hikosaka K, Nakagawa T (2018). „NAD-Metabolismus in der Krebstherapie“ . Frontiers in Microbiology . 8, 622. doi : 10.3389/fonc.2018.00622 . PMC 6315198. PMID 30631755 .
- ^ Pramono AA, Rather GM, Herman H (2020). „NAD- und NADPH-beitragende Enzyme als therapeutische Ziele in der Krebstherapie: Ein Überblick“ . Biomolecules . 10 ( 3): 358. doi : 10.3390/biom10030358 . PMC 7175141. PMID 32111066 .
- ^ Penberthy, W. Todd; Tsunoda, Ikuo (2009). „Die Bedeutung von NAD bei Multipler Sklerose“ . Current Pharmaceutical Design . 15 (1): 64–99 . doi : 10.2174/138161209787185751 . ISSN 1873-4286 . PMC 2651433. PMID 19149604 .
- ^ Swerdlow RH (1998). „Ist NADH bei der Behandlung der Parkinson-Krankheit wirksam?“ Drugs Aging . 13 (4): 263–268 . doi : 10.2165/00002512-199813040-00002 . PMID 9805207. S2CID 10683162 .
- ^ Timmins GS, Deretic V (2006). „Wirkmechanismen von Isoniazid“ . Mol. Microbiol . 62 (5): 1220–1227 . doi : 10.1111 / j.1365-2958.2006.05467.x . PMID 17074073. S2CID 43379861 .
- Rawat R, Whitty A, Tonge PJ (2003). „Das Isoniazid-NAD-Addukt ist ein langsam wirkender, stark bindender Inhibitor von InhA, der Enoylreduktase von Mycobacterium tuberculosis: Adduktaffinität und Arzneimittelresistenz“ . Proc . Natl. Acad. Sci. USA . 100 (24): 13881–13886 . Bibcode : 2003PNAS..10013881R . doi : 10.1073/pnas.2235848100 . PMC 283515. PMID 14623976 .
- ^ Argyrou A, Vetting MW, Aladegbami B, Blanchard JS (2006). „Die Dihydrofolatreduktase von Mycobacterium tuberculosis ist ein Zielmolekül für Isoniazid“. Nat . Struct. Mol. Biol . 13 (5): 408–413 . doi : 10.1038/nsmb1089 . PMID 16648861. S2CID 7721666 .
- ^ a b Pankiewicz KW, Patterson SE, Black PL, Jayaram HN, Risal D, Goldstein BM, Stuyver LJ, Schinazi RF (2004). „Cofaktor-Mimetika als selektive Inhibitoren der NAD-abhängigen Inosinmonophosphat-Dehydrogenase (IMPDH) – dem wichtigsten therapeutischen Ziel“. Curr. Med. Chem . 11 (7): 887–900 . doi : 10.2174/0929867043455648 . PMID 15083807 .
- ^ Franchetti P, Grifantini M (1999). „Nukleosidische und nicht-nukleosidische IMP-Dehydrogenase-Inhibitoren als Antitumor- und antivirale Wirkstoffe“. Curr . Med. Chem . 6 (7): 599–614 . doi : 10.2174/092986730607220401123801 . PMID 10390603. S2CID 247868867 .
- ^ Kim EJ, Um SJ (2008). „SIRT1: Rollen bei Alterung und Krebs“ . BMB Rep . 41 (11): 751–756 . doi : 10.5483/BMBRep.2008.41.11.751 . PMID 19017485 .
- Valenzano DR, Terzibasi E, Genade T, Cattaneo A, Domenici L, Cellerino A (2006). „Resveratrol verlängert die Lebensspanne und verzögert das Auftreten altersbedingter Marker bei einem kurzlebigen Wirbeltier“ . Curr. Biol . 16 (3): 296–300 . Bibcode : 2006CBio...16..296V . doi : 10.1016 / j.cub.2005.12.038 . hdl : 11384/14713 . PMID 16461283. S2CID 1662390 .
- Howitz KT, Bitterman KJ, Cohen HY, Lamming DW, Lavu S, Wood JG, Zipkin RE, Chung P, Kisielewski A, Zhang LL, Scherer B, Sinclair DA (2003). „Kleinmolekulare Aktivatoren von Sirtuinen verlängern die Lebensspanne von Saccharomyces cerevisiae “ . Nature . 425 (6954): 191–196 . Bibcode : 2003Natur.425..191H . doi : 10.1038/nature01960 . PMID 12939617. S2CID 4395572 .
- ^ Wood JG, Rogina B, Lavu S, Howitz K, Helfand SL, Tatar M, Sinclair D (2004). „Sirtuin-Aktivatoren imitieren Kalorienrestriktion und verzögern die Alterung bei Metazoen“. Nature . 430 ( 7000): 686–689 . Bibcode : 2004Natur.430..686W . doi : 10.1038/nature02789 . PMID 15254550. S2CID 52851999 .
- ^ Gomes AP, Price NL, Ling AJ, Moslehi JJ, Montgomery MK, Rajman L, White JP, Teodoro JS, Wrann CD, Hubbard BP, Mercken EM, Palmeira CM, de Cabo R, Rolo AP, Turner N, Bell EL, Sinclair DA (19. Dezember 2013). „ Sinkende NAD+-Konzentrationen induzieren einen pseudohypoxischen Zustand und stören die nukleär-mitochondriale Kommunikation während des Alterns“ . Cell . 155 (7): 1624–1638 . doi : 10.1016/j.cell.2013.11.037 . PMC 4076149. PMID 24360282 .
- ^ Rizzi M, Schindelin H (2002). „Strukturbiologie von Enzymen, die an der NAD- und Molybdän-Cofaktor-Biosynthese beteiligt sind“. Curr. Opin. Struct. Biol . 12 (6): 709–720 . doi : 10.1016/S0959-440X(02)00385-8 . PMID 12504674 .
- ^ Begley, Tadhg P.; Kinsland, Cynthia; Mehl, Ryan A.; Osterman, Andrei; Dorrestein, Pieter (2001). „Die Biosynthese von Nicotinamidadenindinukleotiden in Bakterien“. Cofactor Biosynthesis . Vitamins & Hormones. Band 61. S. 103–119 . doi : 10.1016/S0083-6729(01)61003-3 . ISBN 978-0-12-709861-6PMID 11153263 .
- ^ „Meningitis Lab Manual: ID and Characterization of Hib“ . CDC. 30. März 2021.
- ^ Das, Shanti (23. Februar 2025). "„Es ist weder ethisch noch medizinisch vertretbar“: Wie britische Reha-Kliniken mit NAD+ Profit machen . The Observer .
- ^ Harden, A.; Young, W. J. (24. Oktober 1906). „Die alkoholische Gärung von Hefesaft, Teil II – Die Mitvergärung von Hefesaft“ . Proceedings of the Royal Society of London . Series B, Containing Papers of a Biological Character. 78 (526): 369–375 . doi : 10.1098/rspb.1906.0070 . JSTOR 80144 .
- ^ „Fermentation von Zuckern und fermentative Enzyme“ (PDF) . Nobelvortrag, 23. Mai 1930. Nobelstiftung. Archiviert vom Original (PDF) am 27. September 2007. Abgerufen am 30. September 2007 .
- ^ Warburg O, Christian W (1936). „Pyridin, der wasserstoffübertragende Bestandteil von gärungsfermenten (pyridin-nucleotid)“ [Pyridin, der wasserstoffübertragende Bestandteil der Fermentationsenzyme (pyridin-nucleotid)]. Biochemische Zeitschrift (auf Deutsch). 287 : 291. doi : 10.1002/hlca.193601901199 .
- ^ Elvehjem CA, Madden RJ, Strong FM, Woolley DW (1938). „Die Isolierung und Identifizierung des Anti-Schwarzzungenfaktors“ . J. Biol. Chem . 123 (1): 137–49 . doi : 10.1016/S0021-9258(18)74164-1 .
- ^ Axelrod AE, Madden RJ, Elvehjem CA (1939). „Der Einfluss eines Nikotinsäuremangels auf den Coenzym-I-Gehalt tierischer Gewebe“ . J. Biol. Chem . 131 (1): 85–93 . doi : 10.1016/S0021-9258(18)73482-0 .
- ^ Kornberg A (1948). „Die Beteiligung von anorganischem Pyrophosphat an der reversiblen enzymatischen Synthese von Diphosphopyridinnukleotid“ . J. Biol. Chem . 176 (3): 1475–76 . doi : 10.1016/S0021-9258(18)57167-2 . PMID 18098602 .
- ^ Friedkin M, Lehninger AL (1. April 1949). „Veresterung von anorganischem Phosphat gekoppelt an den Elektronentransport zwischen Dihydrodiphosphopyridinnukleotid und Sauerstoff“ . J. Biol. Chem . 178 (2): 611–23 . doi : 10.1016/S0021-9258(18)56879-4 . PMID 18116985 .
- ^ Preiss J, Handler P (1958). „Biosynthese von Diphosphopyridinnukleotid. I. Identifizierung von Zwischenprodukten“ . J. Biol. Chem . 233 (2): 488–92 . doi : 10.1016/S0021-9258(18)64789-1 . PMID 13563526 .
- ^ Preiss J, Handler P (1958). „Biosynthese von Diphosphopyridinnukleotid. II. Enzymatische Aspekte“ . J. Biol. Chem . 233 (2): 493–500 . doi : 10.1016/S0021-9258(18)64790-8 . PMID 13563527 .
- ^ Bieganowski, P.; Brenner, C. (2004). „Entdeckung von Nicotinamidribosid als Nährstoff und konservierte NRK-Gene etablieren einen Preiss-Handler-unabhängigen Weg zu NAD+ in Pilzen und Menschen“ . Cell . 117 (4): 495–502 . Bibcode : 2004Cell..117..495B . doi : 10.1016/S0092-8674( 04 )00416-7 . PMID 15137942. S2CID 4642295 .
- Chambon P, Weill JD, Mandel P (1963). „Nicotinamid-Mononukleotid-Aktivierung eines neuen DNA-abhängigen, Polyadenylsäure-synthetisierenden Kernenzyms“. Biochem. Biophys. Res. Commun . 11 (1): 39–43 . Bibcode : 1963BBRC...11...39C . doi : 10.1016/0006-291X(63)90024-X . PMID 14019961 .
- ^ Clapper DL, Walseth TF, Dargie PJ, Lee HC (15. Juli 1987). „Pyridinnukleotid-Metabolite stimulieren die Calciumfreisetzung aus gegenüber Inositoltrisphosphat desensibilisierten Seeigelei-Mikrosomen“ . J. Biol. Chem . 262 (20): 9561–8 . doi : 10.1016/S0021-9258(18)47970-7 . PMID 3496336 .
- ^ Imai S, Armstrong CM, Kaeberlein M, Guarente L (2000). „Das Transkriptionsstilllegungs- und Langlebigkeitsprotein Sir2 ist eine NAD-abhängige Histon-Deacetylase“. Nature . 403 ( 6771): 795–800 . Bibcode : 2000Natur.403..795I . doi : 10.1038/35001622 . PMID 10693811. S2CID 2967911 .
- ^ Imai S (2009). „Die NAD-Welt: Ein neues systemisches Regulationsnetzwerk für Stoffwechsel und Alterung – Sirt1, systemische NAD-Biosynthese und ihre Bedeutung“ . Cell Biochemistry and Biophysics . 53 (2): 65–74 . doi : 10.1007/s12013-008-9041-4 . PMC 2734380. PMID 19130305 .
- ^ Imai S (2016). „Die NAD-Welt 2.0: Die Bedeutung der interzellulären Kommunikation durch NAMPT/NAD+/SIRT1 für die Alterung und Langlebigkeitskontrolle bei Säugetieren“ . npj Systems Biology and Applications . 2 16018. doi : 10.1038/npjsba.2016.18 . PMC 5516857. PMID 28725474 .
- ^ „Napa Therapeutics gegründet zur Entwicklung von Medikamenten zur Beeinflussung des NAD-Stoffwechsels“ . Fight Aging! 17. August 2018. Abgerufen am 29. November 2023 .
Weiterführende Literatur
Funktion
- Nelson DL; Cox MM (2004). Lehninger Principles of Biochemistry (4. Aufl.). WH Freeman. ISBN 978-0-7167-4339-2Die
- Bugg T (2004). Einführung in die Enzym- und Coenzymchemie (2. Aufl.). Blackwell Publishing Limited. ISBN 978-1-4051-1452-3Die
- Lee HC (2002). Cyclisches ADP-Ribose und NAADP: Struktur, Metabolismus und Funktionen . Kluwer Academic Publishers. ISBN 978-1-4020-7281-9Die
- Levine OS, Schuchat A, Schwartz B, Wenger JD, Elliott J (1997). „Generisches Protokoll für die populationsbasierte Überwachung von Haemophilus influenzae Typ B“ (PDF) . Weltgesundheitsorganisation. Centers for Disease Control. S. 13. WHO/VRD/GEN/95.05. Archiviert vom Original (PDF) am 1. Juli 2004.
- Kim, Jinhyun; Lee, Sahng Ha; Tieves, Florian; Paul, Caroline E.; Hollmann, Frank; Park, Chan Beum (5. Juli 2019). „Nicotinamidadenindinukleotid als Photokatalysator“ . Science Advances . 5 (7) eaax0501. Bibcode : 2019SciA....5..501K . doi : 10.1126/ sciadv.aax0501 . PMC 6641943. PMID 31334353 .
Geschichte
- Cornish-Bowden, Athel (1997). Neues Bier in alten Schläuchen. Eduard Büchner und die Entwicklung des biochemischen Wissens . Valencia: Universität Valencia. ISBN 978-84-370-3328-0Archiviert vom Original am 13. Dezember 2010. Abgerufen am 8. Dezember 2007 .Eine Geschichte der frühen Enzymologie.
- Williams, Henry Smith (1904). Die moderne Entwicklung der chemischen und biologischen Wissenschaften . Eine Geschichte der Wissenschaft in fünf Bänden. Band IV. New York: Harper and Brothers. Archiviert vom Original am 9. Mai 2012. Abgerufen am 8. Dezember 2007 ., ein Lehrbuch aus dem 19. Jahrhundert.
Externe Links
- NAD ist an Proteine in der Proteindatenbank gebunden
- NAD-Animation (Flash erforderlich)
- β-Nicotinamidadenindinukleotid (NAD + , oxidiert) und NADH (reduziert) – Datenblatt von Sigma-Aldrich
- NAD + , NADH und NAD-Syntheseweg in der MetaCyc- Datenbank
- Liste der Oxidoreduktasen. Archiviert am 30. November 2010 in der Wayback Machine der SWISS-PROT- Datenbank.
- NAD +